Este estudio evalúa los efectos protectores de la Cápsula Yangjing sobre la disfunción espermatogénica inducida por ciclofosfamida en ratones y examina la participación de la vía de señalización lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de investigación
La cápsula Yangjing alivia la disfunción espermatogénica en ratones mediante la inhibición de la vía QKI-5/p38 MAPK a través de la regulación al alza del incRNA NONMMUT031883.2
En este artículo
Resumen
Resumen
La disfunción espermatogénica es una causa importante de infertilidad masculina, y la ciclofosfamida (CP) puede alterar la espermatogénesis al inducir apoptosis anormal de espermatogonias. La Cápsula Yangjing (YC) se ha utilizado para mejorar la función reproductiva, pero su mecanismo molecular subyacente sigue siendo poco claro. Este estudio investigó los efectos protectores de YC en un modelo murino de disfunción espermatogénica inducida por CP y en células espermatogoniales GC-1. Se evaluaron el recuento y la motilidad espermática, la fertilidad masculina, los niveles séricos de hormonas sexuales y los cambios histopatológicos en los testículos y epidídimos. En las células GC-1, se evaluó la viabilidad celular, la liberación de deshidrogenasa láctica, la apoptosis y las proteínas relacionadas con la apoptosis. Se utilizaron reacciones en cadena de la polimerasa cuantitativas de transcripción reversa, ensayos de captura de ARN, inmunofluorescencia y transferencia Western para examinar el lncRNA NONMMUT031883.2, Quaking-5 (QKI-5) y la señalización de la quinasa mitógeno-activada de proteínas p38 (MAPK). YC mejoró de manera dependiente de la dosis la calidad del esperma, los niveles séricos de hormonas sexuales, la morfología de los órganos reproductivos, la histopatología testicular y la fertilidad en ratones tratados con CP. En las células GC-1, YC aumentó la viabilidad celular y redujo el daño celular y la apoptosis. El lncRNA NONMMUT031883.2 interactuó físicamente con QKI-5, y el tratamiento con YC incrementó la expresión del lncRNA NONMMUT031883.2 mientras reducía la expresión de QKI-5 y la fosforilación de p38. El tratamiento con YC inhibió la apoptosis inducida por la inhibición del lncRNA NONMMUT031883.2 en células GC-1, mientras que la sobreexpresión de QKI-5 redujo los efectos antiapoptóticos de YC. Estos hallazgos sugieren que YC alivia la disfunción espermatogénica inducida por CP y que sus efectos protectores están mediados por la regulación de la vía lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Introducción
La disfunción espermatogénica se refiere al deterioro reproductivo causado por anomalías en la producción, maduración o función de los espermatozoides en el sistema reproductivo masculino. Se caracteriza por una reducción en el conteo y la motilidad espermática, así como por un aumento en la tasa de deformidades espermáticas.1,2La patogénesis de la disfunción espermatogénica es compleja y se asocia con factores genéticos, trastornos autoinmunes, toxinas ambientales, daño inducido por quimioterapia y lesiones de los órganos reproductivos3-5. Fármacos quimioterapéuticos como la ciclofosfamida (CP) pueden dañar directamente los túbulos seminíferos testiculares e inducir la apoptosis de espermatogonias, contribuyendo así a la disfunción espermatogénica masculina.6,7La terapia de reemplazo hormonal, la suplementación con antioxidantes y las tecnologías de reproducción asistida se utilizan actualmente como intervenciones clínicas. Sin embargo, estos enfoques presentan una eficacia inconsistente y efectos adversos considerables.8,9,10Por lo tanto, identificar intervenciones seguras y eficaces y aclarar sus dianas moleculares es clínicamente importante para mejorar los resultados de fertilidad en pacientes con disfunción espermatogénica.
La medicina herbal china ha mostrado potencial para proteger la función reproductiva masculina y tratar la disfunción espermatogénica debido a sus propiedades multitarget y su toxicidad relativamente baja11,12. La Cápsula Yangjing (YC) es un medicamento patentado chino tradicional compuesto por Rehmannia glutinosa, Epimedium, placenta, Polygonatum sibiricum, Angelica sinensis y otras medicinas herbales chinas. Se utiliza para tonificar el riñón y la esencia, nutrir la sangre y la médula, y regular la función reproductiva13. Estudios previos han demostrado que la YC puede regular los niveles de hormonas sexuales en animales macho, mejorar la calidad del esperma, reparar el daño en el tejido testicular y proteger contra lesiones reproductivas inducidas por agentes químicos14,15. Las células espermatogoniales constituyen la base de la espermatogénesis, y la apoptosis anormal de los espermatogonios es un evento central en el desarrollo de la disfunción espermatogénica16. También se ha informado que la YC mejora la viabilidad de los espermatogonios, aumenta la proporción de células en fase S e inhibe la apoptosis17. Sin embargo, sus efectos protectores y los mecanismos moleculares específicos en la disfunción espermatogénica inducida por CP permanecen poco claros.
Los ARN no codificantes largos (lncARN) son moléculas de ARN con una longitud superior a 200 nucleótidos que carecen de capacidad para codificar proteínas18. Los lncARN pueden regular la expresión génica mediante mecanismos que incluyen el silenciamiento cromosómico, la modificación de la cromatina, la impronta genómica y la activación transcripcional19,20. La proteína de unión al ARN Quaking-5 (QKI-5) participa en procesos fisiológicos y patológicos, incluyendo la proliferación celular y la apoptosis, mediante la regulación del empalme alternativo de genes diana21. La vía de la quinasa mitógeno-activada p38 (MAPK) interviene en la regulación de la apoptosis y también desempeña un papel importante en la fertilidad masculina y en el desarrollo testicular22,23. Un estudio previo mostró que la sobreexpresión de QKI-5 activa la vía p38 MAPK en células de carcinoma hepatocelular24. Además, se ha demostrado que el lncARN NONMMUT074098.2 se une a QKI-5 en espermatogonias, mientras que la inhibición de QKI-5 suprime la vía p38 MAPK y reduce la apoptosis de espermatogonias25. En este estudio se utilizó un modelo murino inducido por CP de disfunción espermatogénica para investigar si YC regula la expresión del lncARN NONMMUT031883.2 y el eje de señalización QKI-5/p38 MAPK, reduciendo así la apoptosis anormal de espermatogonias y aliviando la disfunción espermatogénica inducida por CP (Figura 1). El objetivo fue aclarar el mecanismo molecular subyacente a los efectos protectores de YC sobre la espermatogénesis y ampliar el conocimiento sobre su papel farmacológico en la protección de la función reproductiva masculina.
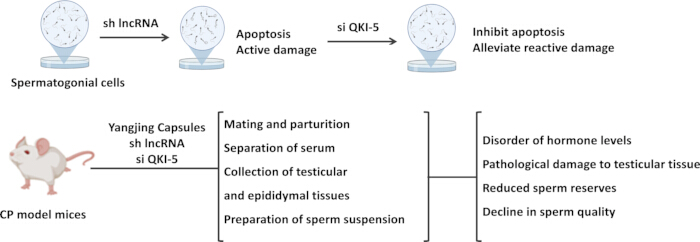
Figura 1: Diagrama esquemático del diseño experimental. El panel superior resume los experimentos in vitro en células espermatogoniales GC-1. La reducción del ARNl NOCMMUT031883.2 se utilizó para inducir apoptosis y daño celular, seguida de la reducción de QKI-5 para evaluar sus efectos sobre la apoptosis y la lesión celular. El panel inferior resume los experimentos in vivo en modelos murinos inducidos con ciclofosfamida (CP) de disfunción espermatogénica. Los ratones recibieron tratamiento con la Cápsula Yangjing y/o intervención con el ARNl NOCMMUT031883.2 o QKI-5. Posteriormente se evaluaron la fertilidad, los niveles séricos de hormonas, los tejidos testiculares y epididimarios, la suspensión espermática, las reservas espermáticas, la calidad del esperma y el daño histopatológico testicular. Haga clic aquí para ver una versión más grande de esta figura.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Todos los experimentos con animales se realizaron de acuerdo con las directrices ARRIVE y con la Guía para el cuidado y uso de animales de laboratorio de los Institutos Nacionales de Salud. Todos los protocolos experimentales fueron revisados y aprobados por el Comité de Ética Animal de la Universidad del Sudeste (número de aprobación: 20230216022).
1. Preparación del suero que contiene YC
Se abrieron dos cápsulas Yangjing (YC; 0,5 g/cápsula) y se pesaron 0,8 g del contenido. Se añadió suero fisiológico hasta un volumen final de 10 mL, y la mezcla se agitó completamente en vórtex para preparar una suspensión de 80 mg/mL. Se mantuvieron ratones macho BALB/c libres de patógenos específicos, con un peso de 22–25 g y una edad de 8 semanas, a 22 °C y una humedad del 55%–60% bajo un ciclo de 12 h luz/oscuridad, con alimento y agua disponibles ad libitum. Tras una semana de aclimatación, los ratones recibieron YC mediante gavaje oral a una dosis de 800 mg/kg de peso corporal en un volumen de 10 mL/kg, una vez al día durante 5 días consecutivos. Dos horas después de la última administración, los ratones se anestesiaron con pentobarbital sódico al 1% por vía intraperitoneal y se les tomaron muestras de sangre para preparar el suero que contiene YC. El suero se inactivó a 56 °C durante 30 min, se filtró a través de una membrana de 0,22 µm y se almacenó a −80 °C hasta su uso.
2. Cultivo celular y transfección
Las células espermatogoniales GC-1 de ratón se mantuvieron en DMEM que contenía 1% de penicilina-estreptomicina y 10% de suero bovino fetal. Todos los cultivos se mantuvieron a 37 °C en una atmósfera que contenía 5% de CO₂ (v/v).
Se sintetizaron y construyeron ARN de horquilla corta específicos para lncRNA (sh-lncRNA), un plásmido de sobreexpresión de QKI-5 (OE-QKI-5), ARN interferente pequeño de QKI-5 (si-QKI-5) y sus controles negativos correspondientes (sh-NC, OE-NC y si-NC). Las células GC-1 se transfectaron con sh-lncRNA o sh-NC, si-QKI-5 o si-NC, u OE-QKI-5 u OE-NC según las instrucciones del reactivo de transfección. Tras una incubación de 48 h, la eficiencia de transfección se evaluó midiendo la expresión de lncRNA NONMMUT031883.2 o de QKI-5.
Para el grupo sh-lncRNA + si-QKI-5 + etopósido, las células GC-1 se transfectaron con sh-lncRNA y si-QKI-5 y posteriormente se trataron con 100 µM de etopósido durante 12 h26. Para los ensayos posteriores de viabilidad celular, las células GC-1 se cultivaron en medio suplementado con suero que contenía 5%, 10% o 20% de YC y se designaron como los grupos de dosis baja de YC (L-YC), dosis media de YC (M-YC) y dosis alta de YC (H-YC), respectivamente. Las concentraciones de suero que contenía YC (5%, 10% y 20% de YC) se determinaron en función de los resultados de experimentos preliminares de gradiente de concentración. Para los grupos sh-lncRNA + H-YC + OE-NC y sh-lncRNA + H-YC + OE-QKI-5, las células GC-1 se transfectaron con sh-lncRNA más OE-NC o con sh-lncRNA más OE-QKI-5 durante 48 h y luego se expusieron a suero que contenía 20% de YC durante 24 h.
3. Ensayo con el kit Cell Counting Kit-8
Las células GC-1 se sembraron en placas de 96 pocillos a una densidad de 5 × 10³ células/pocillo y se cultivaron durante 24 h. Tras la adhesión celular, el medio original se sustituyó por 100 µL de medio completo suplementado con suero que contenía YC, y las células se incubaron durante 6, 12 o 24 h. Después de la incubación, se añadieron 10 µL del reactivo del kit Cell Counting Kit-8 a cada pocillo, y las células se incubaron a 37 °C en la oscuridad durante 2 h. La absorbancia a 450 nm se midió utilizando un lector de microplacas.
4. Ensayo de lactato deshidrogenasa
Después de la transfección con sh-NC o sh-lncRNA durante 48 h, se recogió el medio de cultivo de las células GC-1 y se obtuvo el sobrenadante mediante centrifugación. De acuerdo con las instrucciones del kit de ensayo de lactato deshidrogenasa, el sobrenadante se mezcló suavemente con la solución de detección preparada y se transfirió a una placa de 96 pocillos. La placa se incubó a 25 °C en la oscuridad durante 30 min. Se midió la absorbancia a 490 nm utilizando un lector de microplacas, y se calculó la liberación de lactato deshidrogenasa para evaluar el daño celular.
5. Tinción con Calceína AM/yoduro de propidio
Después de la transfección con sh-NC o sh-lncRNA durante 48 h, la supervivencia de las células GC-1 se evaluó mediante tinción con calceína AM/yoduro de propidio (PI). Las células se sembraron en placas de 12 pocillos a una densidad de 5 × 10⁴ células/pocillo y se cultivaron hasta alcanzar una confluencia del 60%–70%. Las células se enjuagaron suavemente con solución salina tamponada con fosfato y se añadieron 500 µL de solución de tinción con calceína AM/PI a cada pocillo. Las células se incubaron a 37 °C en oscuridad durante 30 min y se observaron bajo un microscopio de fluorescencia. Se contaron las células vivas y muertas utilizando un software de análisis de imágenes y se calculó la proporción de células sobrevivientes.
6. Citometría de flujo
Las células GC-1 se recolectaron por centrifugación y se lavaron suavemente con solución salina tamponada con fosfato. El sedimento celular se resuspendió en 500 µL de tampón de enlace a una densidad de 5 × 10⁵ células/mL. Luego se añadieron 5 µL de anexina V-APC y 5 µL de yoduro de propidio (PI), y la suspensión se mezcló completamente y se incubó a 25 °C en la oscuridad durante 10 min. La apoptosis se analizó mediante citometría de flujo utilizando longitudes de onda de excitación/emisión de 633/660 nm para APC y 488/630 nm para PI. La tasa de apoptosis se evaluó utilizando software de análisis de citometría de flujo.
7. Ensayo de actividad de caspasa-3
Después de los tratamientos indicados, se recolectaron aproximadamente 1 × 10⁶ células GC-1, se lavaron y resuspendieron en solución salina tamponada con fosfato. Las células se mezclaron con 100 µL del reactivo II del kit de ensayo de actividad de caspasa-3 y se lisaron en hielo durante 15 min. Tras la centrifugación, se recolectaron 50 µL del sobrenadante del lisado y se mezclaron con 40 µL del reactivo I y 10 µL del reactivo III. La mezcla se incubó a 37 °C durante 2 h. Se midió la absorbancia a 405 nm utilizando un lector de microplacas, y la actividad de la caspasa-3 se evaluó según las instrucciones del kit.
8. Ensayo de retención de ARN
Las cadenas sentido y antisentido del ARNl NONMMUT031883.2 se sintetizaron según la secuencia correspondiente y se marcaron con biotina. Las células se lisaron en tampón de lisis celular para inmunoprecipitación durante 30 min en hielo, y el sobrenadante que contenía proteínas se recolectó mediante centrifugación. Las perlas magnéticas de estreptavidina se lavaron tres veces con tampón de unión para ARN y se incubaron en tampón de unión que contenía 1% de albúmina sérica bovina durante 30 min.
Las perlas pretratadas se combinaron con las sondas marcadas con biotina e incubaron a 25 °C durante 30 min. Las sondas no unidas se eliminaron mediante separación magnética. Luego se añadió el sobrenadante del lisado celular, y la mezcla se incubó a 4 °C durante 4 h para formar complejos de perlas magnéticas-RNA-proteína. Las perlas magnéticas se lavaron tres veces con tampón de lavado para eliminar las proteínas unidas de forma no específica. El tampón de lavado se eliminó mediante separación magnética, y se añadió tampón de carga 2× SDS. Las muestras se calentaron a 95 °C durante 10 min, y el sobrenadante se recolectó mediante separación magnética para el análisis posterior por inmunotransferencia Western.
9. Construcción de un modelo murino de disfunción espermatogénica
Tras 5 días de aclimatación, ratones macho BALB/c libres de patógenos específicos, que pesaban entre 22 y 25 g y tenían 8 semanas de edad, recibieron ciclofosfamida (CP) por vía intraperitoneal a una dosis de 50 mg/kg una vez al día durante 7 días para establecer un modelo de disfunción espermatogénica14,27. Los ratones que fueron modelados con éxito se asignaron aleatoriamente, mediante una tabla de números aleatorios, a los grupos CP, YC 200 mg/kg, YC 400 mg/kg, YC 800 mg/kg, YC 800 mg/kg + sh-NC y YC 800 mg/kg + sh-lncRNA, con seis ratones en cada grupo.
Los ratones en los grupos tratados con YC recibieron la dosis correspondiente de YC mediante gavaje oral una vez al día durante 30 días13. Para los grupos de 800 mg/kg de YC + sh-NC y 800 mg/kg de YC + sh-lncRNA, tras el establecimiento exitoso del modelo, los ratones fueron anestesiados mediante inhalación de isoflurano al 2 %. Tras confirmar la ausencia del reflejo de retirada del pie en cada ratón y que la frecuencia respiratoria era estable, se afeitó y desinfectó la zona quirúrgica con povidona-yodo. En condiciones asépticas, se realizó una incisión media ventral a través de la piel y la pared corporal anterior a las genitales. Se expuso el testículo manipulando cuidadosamente la almohadilla de grasa epididimaria, teniendo cuidado de evitar daños vasculares. Utilizando un micromanipulador, se visualizaron los túbulos seminíferos y se inyectó lentamente 1 µL de la suspensión de adenovirus (1 × 10¹⁰ TU/mL) mediante una aguja de microinyección28. La aguja se mantuvo en su lugar durante 5 minutos tras la inyección antes de retirarla lentamente, y se logró la hemostasia con un hisopo estéril. Posteriormente, se realizó el mismo procedimiento en el testículo contralateral. A continuación, se suturó la incisión y los ratones se dejaron recuperar sobre una almohadilla térmica en el postoperatorio. Los ratones del grupo control recibieron diariamente un volumen igual de solución salina mediante gavaje e inyección.
10. Evaluación de la fertilidad
Tras finalizar la administración del fármaco, los ratones macho de cada grupo se aparearon libremente con ratonas BALB/c en una proporción de 1:2 durante 7 días. Se monitoreó y registró diariamente la formación del tapón vaginal en las ratonas. Una vez confirmado el apareamiento exitoso, se retiraron los ratones macho y las ratonas se mantuvieron individualmente hasta el parto natural. Se obtuvieron nueve ratonas preñadas por grupo, que fueron incluidas en el análisis. Se registró el tamaño promedio de la camada para evaluar la fertilidad masculina en cada grupo.
Al final del período experimental, los ratones fueron sacrificados mediante la administración intraperitoneal de pentobarbital sódico a 100 mg/kg. Este método de eutanasia fue aprobado por el Comité de Ética Animal de la Universidad del Sudeste (número de aprobación: 20230216022). Los testículos y las epídidas fueron cuidadosamente separados, fotografiados y pesados. Los índices de testículo y epídídimo se calcularon como peso del órgano/peso corporal. Se recolectó una epídídimo de cada ratón, se cortó en trozos, se colocó en 1 mL de solución salina tamponada con fosfato precalentada (37 °C) y se incubó durante 20 min para permitir que los espermatozoides salieran nadando29. La suspensión espermática se mezcló suavemente y se colocaron 10 µL de la suspensión espermática sobre una cámara de recuento de células sanguíneas precalentada. Los espermatozoides se contaron manualmente bajo un microscopio óptico a un aumento de 200×, y los resultados se expresaron como 106/L. Además, el porcentaje de espermatozoides con movimiento progresivo respecto al número total de espermatozoides se calculó como la motilidad espermática13.
11. Determinación de los niveles de hormonas sexuales
Se recogió sangre de la vena orbital de los ratones de cada grupo y se dejó reposar a 25 °C durante 30 min. El suero se recogió mediante centrifugación a 3.000 × g durante 10 min30. Los niveles séricos de testosterona, hormona luteinizante (LH) y hormona foliculoestimulante (FSH) se midieron utilizando los correspondientes kits de ensayo inmunoenzimático (ELISA).
12. Ensayo de estabilidad del ARN
Las células GC-1 se sembraron en placas de cultivo de 96 pocillos, se transfectaron con si-QKI-5 o si-NC y se cultivaron durante 48 h. Luego se añadió actinomicina D a 5 µg/mL, y las células se recolectaron a las 0, 3, 6 y 9 h. Se aisló el ARN total y el nivel de expresión relativo del lncARN NONMMUT031883.2 se determinó mediante reacción en cadena de la polimerasa con transcripción inversa cuantitativa tras la transcripción inversa. El nivel relativo de ARN en cada punto de tiempo se calculó utilizando el nivel de expresión a las 0 h como 100%.
13. Reacción en cadena de la polimerasa con transcripción inversa cuantitativa
Las células GC-1 y los tejidos testiculares de ratón se enjuagaron con solución salina tamponada con fosfato y se lisaron para el aislamiento de ARN total. Se generó ADN complementario mediante transcripción inversa utilizando transcriptasa inversa de AMV. Se realizó la amplificación por reacción en cadena de la polimerasa utilizando un sistema de PCR en tiempo real y un kit de PCR cuantitativa, empleando ADN complementario como molde de amplificación. Se utilizó U6 como referencia interna para el lncARN NONMMUT031883.2, y GAPDH se utilizó como la referencia interna para QKI-5. La expresión relativa del gen diana se calculó utilizando el 2−ΔΔCt método25. El ARN también se aisló por separado de las fracciones citoplasmática y nuclear para determinar la localización subcelular del ARN largo no codificante NONMMUT031883.2. Las secuencias de los cebadores se proporcionan en Tabla 1.
| Gen | Primer directo (5' a 3') | Primer inverso (5' a 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| U6 RNA | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Tabla 1: Secuencias de cebadores utilizadas para la reacción en cadena de la polimerasa por transcripción reversa cuantitativa. Se indican las secuencias de los cebadores directos e inversos en dirección 5′–3′ para el ARnl NONMMUT031883.2, QKI-5, U6 y GAPDH.
14. Tinción con hematoxilina y eosina
Los tejidos testiculares y epididimarios de ratón se sumergieron en paraformaldehído al 4% y se fijaron a 4 °C durante 24 h. Después de lavarlos con solución salina tamponada con fosfato, los tejidos se deshidrataron mediante una serie graduada de etanol, se incluyeron en parafina y se seccionaron a 5 µm. Las secciones se calentaron a 60 °C durante 60 min y se desparafinaron en xileno durante 30 min.
Después de la hidratación mediante una serie de etanol graduado, los cortes se tiñeron con hematoxilina durante 5 min, se trataron con solución diferenciadora de ácido clorhídrico-etanol durante 10 s, se lavaron con agua del grifo para la reacción de enrojecimiento, y se tiñeron con eosina al 1% durante 2 min. Luego, los cortes se deshidrataron en etanol al 95% y etanol absoluto, y se aclararon en xileno durante 30 min. Después del secado al aire, los cortes se montaron con goma neutra. Los cambios morfológicos en los testículos y los epidídimos se observaron bajo un microscopio.
15. Inmunofluorescencia
Las secciones parafinadas de testículo de ratón se desparafinaron e hidrataron mediante una serie de etanol gradual, seguido de recuperación de antígenos mediada por microondas en tampón citrato a pH 6,0. Después de enfriar a temperatura ambiente de forma natural, las secciones se incubaron con Triton X-100 al 0,3 % durante 10 min. Las secciones se bloquearon con albúmina sérica bovina al 5 % a 25 °C durante 60 min, se enjuagaron con solución salina tamponada con fosfato y se incubaron durante la noche a 4 °C con un anticuerpo primario contra Ki67. Al día siguiente, se aplicó un anticuerpo secundario de inmunoglobulina G marcado con fluorocromo, y las secciones se incubaron a 37 °C en oscuridad durante 60 min. Tras el enjuague con solución salina tamponada con fosfato, las secciones se contratinjeron con DAPI durante 10 min y se observaron bajo un microscopio de fluorescencia. La intensidad de fluorescencia se analizó mediante software de análisis de imágenes.
Para la tinción por inmunofluorescencia de células GC-1, las células se sembraron en placas de 12 pocillos a una densidad de 1 × 10⁵ células/pocillo y se incubaron durante 24 h. Las células se fijaron con paraformaldehído al 4 % durante 30 min, se permeabilizaron con Triton X-100 al 0,3 % durante 10 min, se bloquearon con albúmina sérica bovina al 5 % y se incubaron durante la noche a 4 °C con un anticuerpo primario contra QKI-5. El resto del procedimiento se realizó como se describió para las secciones de tejido testicular.
16. Tinción TUNEL
Se desparafinizaron secciones de testículo de ratón en parafina y se hidrataron mediante una serie de etanol graduado, luego se incubaron con Triton X-100 al 0,1 % durante 5 min para aumentar la permeabilidad de la membrana celular. Se aplicó uniformemente una solución de trabajo de proteinasa K a 20 µg/mL sin DNasa, seguida de incubación a 37 °C durante 15 min. Se añadió la solución de detección TUNEL y las secciones se incubaron a 37 °C en oscuridad durante 90 min. Tras la incubación con DAPI durante 10 min, se aplicó un medio de montaje antifade y se observó el tejido testicular mediante microscopía de fluorescencia.
Las células GC-1 se sembraron en placas de 12 pocillos y se fijaron con paraformaldehído al 4 % durante 30 min. Después de la permeabilización con Triton X-100 al 0,1 % durante 5 min, se aplicó a las células la solución de detección TUNEL, seguida de una incubación en oscuridad durante 60 min. Luego, las células se tiñeron con DAPI durante 10 min y se observaron bajo un microscopio de fluorescencia.
17. Inmunotransferencia (Western blotting)
Los tejidos testiculares de ratón y las células GC-1 se lisaron en tampón de lisis celular para inmunoprecipitación en hielo durante 30 min y se rompieron mediante ultrasonido. Tras la centrifugación, se recogió el sobrenadante que contenía proteínas y se determinó la concentración proteica utilizando un kit de ensayo con ácido bicinconínico. El sobrenadante proteico se mezcló con tampón de carga SDS y se calentó en agua hirviendo durante 10 min. Tras la separación mediante electroforesis en gel, las proteínas se transfirieron a membranas de fluoruro de polivinilideno y se bloquearon con albúmina sérica bovina al 5 % durante 2 h31.
Las membranas se incubaron durante la noche a 4 °C con anticuerpos primarios contra caspasa-3 escindida (1:500), Bcl-2 (1:1000), caspasa-3 (1:2000), Bax (1:500), QKI-5 (1:1000), p38 fosforilada (1:1000) o p38 (1:500). Al día siguiente, las membranas se lavaron con solución salina tamponada con Tris que contenía Tween 20 e incubadas con inmunoglobulina G de cabra anti-conejo a 1:10000 durante 2 h a 25 °C. Se aplicó la solución de trabajo de quimioluminiscencia mejorada sobre la superficie de la membrana y las bandas proteicas se visualizaron mediante un sistema de imagen de geles. La intensidad de las bandas se analizó utilizando software de análisis de imágenes, y la expresión proteica relativa se normalizó respecto a GAPDH (1:3000).
Se utilizó cicloheximida a 50 µg/mL para inhibir la síntesis de proteínas. Para determinar la vida media de QKI-5, las células se recolectaron a las 0, 3, 6 y 9 h, y los niveles de proteína QKI-5 se determinaron posteriormente mediante inmunotransferencia25.
18. Análisis estadístico
Todos los datos se analizaron estadísticamente y se representaron mediante software estadístico, de gráficos y de análisis de imágenes. Se utilizó la prueba de Shapiro-Wilk para evaluar la normalidad de los datos. Los datos experimentales se presentan como media ± desviación estándar. Se utilizó el análisis de varianza de un solo factor para evaluar las diferencias entre grupos. La prueba t de LSD se utilizó para comparaciones por pares posteriores al análisis cuando las varianzas eran homogéneas, mientras que la prueba T3 de Dunnett se utilizó cuando las varianzas eran heterogéneas. Un valor de p < 0,05 se consideró estadísticamente significativo.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
La inhibición del lncRNA NONMMUT031883.2 induce apoptosis en espermatogonias
Las células GC-1 fueron transfectadas con sh-lncRNA para reducir la expresión del lncRNA NONMMUT031883.2. En comparación con las células transfectadas con sh-NC, el nivel transcripcional del lncRNA NONMMUT031883.2 se redujo notablemente tras la transfección con sh-lncRNA, lo que confirma una inhibición exitosa (Figura 2A). Tras la inhibición del lncRNA NONMMUT031883.2, la viabilidad de las cél...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
La disfunción espermatogénica adquirida inducida por quimioterapia es una causa importante de infertilidad masculina32,33,34. Sin embargo, los mecanismos moleculares específicos aún no se comprenden completamente. Los hallazgos de este estudio demuestran que la Cápsula Yangjing (YC) mejora de manera dependiente de la dosis las alteraciones hormonales sexuales, el daño histopatológico testicular y el deterioro de la fertilidad in...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores declaran que no tienen conflictos de intereses financieros ni no financieros.
Agradecimientos
Este trabajo fue financiado por la Fundación Nacional de Ciencias Naturales de China (n.º de beca 82374257), el Cuarto Lote del Programa de Formación de Talento Académico de Excelencia del Hospital Provincial de Medicina China de Jiangsu (n.º de beca k2026yrc74) y los Proyectos de Investigación Científica de Medicina Tradicional China y Medicina Integrada China-Ocidental de la Provincia de Jiangsu (n.º de beca CYTF2026019).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Actinomicina D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | Inhibidor de la transcripción utilizado en ensayos de estabilidad del ARN |
| Transcriptasa inversa de AMV | Takara, Tokio, Japón | 2621 | Enzima para la síntesis de ADN complementario |
| Kit de detección de anexina V-APC/PI | BioLab Technology, Pekín, China | KFS191 | Kit para análisis por citometría de flujo de la apoptosis |
| Medio de montaje antifade | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Medio de montaje para la preservación de la fluorescencia |
| Anticuerpo primario Bax | Affinity Biosciences, OH, EE. UU. | AF0120 | Anticuerpo primario para la detección de Bax |
| Kit BCA | Macklin, Shanghái, China | B917925 | Kit para la determinación de la concentración de proteínas |
| Anticuerpo primario Bcl-2 | Affinity Biosciences, OH, EE. UU. | AF0769 | Anticuerpo primario para la detección de Bcl-2 |
| Albúmina sérica bovina | BioLab Technology, Pekín, China | BTN131070 | Reactivo bloqueante |
| Kit de detección de calceína/PI | Beyotime, Shanghái, China | C2015M | Kit para tinción de células vivas/muertas |
| Kit de ensayo de actividad de caspasa-3 | BioLab Technology, Pekín, China | QN2866 | Kit para medir la actividad de la caspasa-3 |
| Anticuerpo primario caspasa-3 | Abcam, MA, EE. UU. | ab184787 | Anticuerpo primario para la detección de caspasa-3 |
| Reactivo CCK-8 | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Reactivo para evaluación de viabilidad celular |
| Anticuerpo primario caspasa-3 escindida | Abcam, MA, EE. UU. | ab32042 | Anticuerpo primario para la detección de caspasa-3 escindida |
| Cicloheximida | Macklin, Shanghái, China | H823111 | Inhibidor de la síntesis de proteínas utilizado en ensayos de estabilidad proteica |
| Ciclofosfamida | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Utilizada para inducir disfunción espermatogénica |
| Reactivo DAPI | Beyotime, Shanghái, China | C1006 | Contratinción nuclear |
| Medio DMEM | Wuhan Sunncell Biotechnology, Hubei, China | SNLM-302 | Medio de cultivo celular para células GC-1 |
| Solución de trabajo ECL | Solarbio, Pekín, China | SW2030 | Sustrato quimioluminiscente para la detección de bandas proteicas |
| Etopósido | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Agente inductor de apoptosis |
| Citómetro de flujo | BD Biosciences, CA, EE. UU. | BD FACSCalibur | Instrumento para análisis de apoptosis |
| Software FlowJo | BD Biosciences, CA, EE. UU. | v10.8 | Software para análisis de datos de citometría de flujo |
| Microscopio de fluorescencia | Leica, Heidelberg, Alemania | DM3000 | Instrumento para imágenes de fluorescencia |
| Anticuerpo secundario IgG marcado con fluorescencia | Servicebio, Wuhan, China | GB22303 | Anticuerpo secundario para detección por inmunofluorescencia |
| Kit ELISA de hormona foliculoestimulante | Huamei Biotech, Wuhan, China | CSB-E06871m | Kit para medir la hormona foliculoestimulante sérica |
| Anticuerpo primario GAPDH | Affinity Biosciences, OH, EE. UU. | T0004 | Anticuerpo de control de carga para inmunotransferencia Western |
| Células GC-1 | Wuhan Sunncell Biotechnology, Hubei, China | SNL-302 | Línea celular de espermatogonias de ratón |
| Sistema de imagen de geles | Jinpeng Analysis Instrument, Shanghái, China | JP-2880 | Sistema de imagen para visualización de geles y transferencias |
| Sistema de imagen de geles | Invitrogen, Carlsbad, CA, EE. UU. | iBright CL1500 | Sistema de imagen quimioluminiscente para inmunotransferencias Western |
| Anticuerpo secundario de cabra anti-conejo IgG | Servicebio, Wuhan, China | GB23303 | Anticuerpo secundario para inmunotransferencia Western |
| Solución de hematoxilina | BioLab Technology, Pekín, China | YT165 | Tinción nuclear para análisis histológico |
| Solución de diferenciación de etanol con ácido clorhídrico | Beyotime, Shanghái, China | C0163S | Reactivo de diferenciación para tinción con hematoxilina |
| Software ImageJ | National Institutes of Health, EE. UU. | 1.54h | Software para cuantificación de imágenes |
| Tampón de lisis celular para IP | Beyotime, Shanghái, China | P0013 | Tampón de lisis para inmunoprecipitación y extracción de proteínas |
| Anticuerpo primario Ki67 | Affinity Biosciences, OH, EE. UU. | AF0198 | Anticuerpo primario para la detección de Ki67 |
| Kit de ensayo de citotoxicidad por LDH | Beyotime, Shanghái, China | C0016 | Kit para medir la liberación de lactato deshidrogenasa y daño celular |
| Microscopio óptico | Olympus, Tokio, Japón | CKX53 | Utilizado para conteo de espermatozoides y observación morfológica |
| Lipofectamina 3000 | Invitrogen, Carlsbad, CA, EE. UU. | L3000001 | Reactivo de transfección |
| Lector de microplacas | Molecular Devices, CA, EE. UU. | SpectraMax Mini | Instrumento para mediciones de absorbancia |
| Kit ELISA de hormona luteinizante de ratón | Huamei Biotech, Wuhan, China | CSB-E12770m | Kit para medir la hormona luteinizante sérica |
| Kit ELISA de testosterona de ratón | Huamei Biotech, Wuhan, China | CSB-E05101m | Kit para medir la testosterona sérica |
| Goma neutra | BioLab Technology, Pekín, China | QN1253 | Medio de montaje para secciones histológicas |
| Anticuerpo primario p38 | Affinity Biosciences, OH, EE. UU. | AF6456 | Anticuerpo primario para la detección de p38 total |
| Paraformaldehído | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Fijador para células y tejidos |
| Kit PARIS | Invitrogen, Carlsbad, CA, EE. UU. | AM1921 | Kit para fraccionamiento de ARN nuclear y citoplasmático |
| Sistema de PCR | ABI, CA, EE. UU. | ABI PRISM 7300 | Instrumento de PCR en tiempo real |
| Anticuerpo primario p-p38 | Affinity Biosciences, OH, EE. UU. | AF3455 | Anticuerpo primario para la detección de p38 fosforilada |
| Solución de proteinasa K | Beyotime, Shanghái, China | ST532 | Reactivo para permeabilización del tejido antes de la tinción TUNEL |
| Membranas de PVDF | Millipore, MA, EE. UU. | ISEQ00010 | Membranas para transferencia de proteínas en inmunotransferencia Western |
| Anticuerpo primario QKI-5 | Abcam, MA, EE. UU. | ab126742 | Anticuerpo primario para la detección de QKI-5 |
| Tampón de unión de ARN | Invitrogen, Carlsbad, CA, EE. UU. | 65040D | Tampón para reacciones de unión ARN-proteína |
| Tampón de carga SDS | Beyotime, Shanghái, China | P0286 | Tampón de carga de muestras para SDS-PAGE |
| Perlas magnéticas de estreptavidina | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Perlas magnéticas para captura de sondas de ARN marcadas con biotina |
| Kit TB Green FAST qPCR | Takara, Tokio, Japón | CN830S | Kit de reactivos para PCR cuantitativa |
| Tritón X-100 | Macklin, Shanghái, China | T824275 | Reactivo de permeabilización |
| Reactivo TRIzol | Invitrogen, Carlsbad, CA, EE. UU. | 15596018CN | Reactivo para extracción de ARN total |
| Solución de detección TUNEL | Beyotime, Shanghái, China | C1086 | Reactivo para detección de fragmentación del ADN |
| Xileno | Macklin, Shanghái, China | X821391 | Reactivo para eliminación de parafina y aclarado de tejidos |
Referencias
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.