Este estudio demuestra que miR-1298 está estrechamente asociado con la invasión y la migración en el CCR y podría actuar como supresor tumoral al inhibir la progresión del CCR, destacando su potencial como un nuevo objetivo terapéutico para el tratamiento del CCR.
Artículo de investigación
Papel del eje miR-1298/Proteína Morfogenética Ósea 7 en el cáncer colorrectal
* These authors contributed equally
En este artículo
Resumen
Resumen
La incidencia del cáncer colorrectal (CCR) ha aumentado en los últimos años. Exploramos la significancia clínica y los mecanismos moleculares de miR-1298 en el CCR. Se incluyó un total de 85 pacientes con CCR. Todos los niveles génicos se evaluaron mediante RT-qPCR. En células de CCR, los niveles de miR-1298 y de la proteína morfogenética ósea 7 (BMP7) se regulaban mediante transfección celular. El objetivo de miR-1298 se predijo mediante análisis bioinformático y se identificó utilizando el sistema de luciferasa dual. La función de las células de CCR se evaluó mediante el ensayo CCK-8, el ensayo Transwell y la citometría de flujo. La correlación entre miR-1298 y BMP7 en tejidos de CCR se analizó utilizando la correlación de Pearson. miR-1298 estaba significativamente regulado a la baja en el CCR y se asoció con características clinicopatológicas malignas. En las células de CCR, miR-1298 suprimió la proliferación, migración e invasión, y aumentó la apoptosis. BMP7 fue un blanco downstream de miR-1298 y mostró una correlación negativa con miR-1298. La sobreexpresión de BMP7 revirtió parcialmente el efecto supresor de miR-1298 sobre la proliferación, migración e invasión en células de CCR, así como su promoción de la apoptosis. miR-1298 se relacionó con la invasión y migración y podría suprimir la progresión del CCR. BMP7 podría ser un mediador funcional potencial de miR-1298 en el CCR.
Introducción
El CCR supone una carga sanitaria significativa a nivel mundial, siendo uno de los principales factores que contribuyen a las muertes relacionadas con el cáncer en todo el mundo1. El CCR se origina en las células epiteliales del colon-recto, desarrollándose generalmente de forma gradual mediante un proceso multietapa conocido como progresión de adenoma a cáncer, un proceso que dura varios años2. Las consecuencias del CCR son amplias y multifacéticas. Además del riesgo de muerte, el CCR también puede tener un impacto significativo en la vida diaria de los pacientes. El tratamiento normalmente requiere una cirugía mayor, que puede provocar complicaciones como una colostomía permanente, disfunción intestinal o disfunción sexual y urinaria3. Además, la carga financiera de la quimioterapia, la terapia dirigida y el seguimiento a largo plazo ejerce una presión considerable tanto sobre los pacientes como sobre el sistema sanitario. Por lo tanto, investigar los mecanismos moleculares subyacentes al CCR sigue siendo una prioridad clave en el campo de la salud pública.
En el CCR, la desregulación de microARNs (miARNs) específicos es una característica destacada de la tumorigénesis y afecta procesos clave4. La identificación de estos miARNs diferencialmente expresados no solo mejora nuestra comprensión de la patogénesis del CCR, sino que también ofrece posibles vías para nuevos biomarcadores diagnósticos y dianas terapéuticas. Entre los muchos miARNs asociados al cáncer, miR-1298 ha surgido como un objetivo clave de investigación. La evidencia actual sugiere que miR-1298 actúa frecuentemente como supresor tumoral en diversos tipos de cáncer. Por ejemplo, en el cáncer de pulmón de células no pequeñas (CPCNP), inhibe el crecimiento celular y la invasión al dirigirse a vías oncogénicas clave5. De manera similar, en los tumores cerebrales, su regulación negativa se asocia con el desarrollo tumoral, mientras que su recuperación inhibe la progresión del tumor6. Dado su papel supresor tumoral ya establecido en otros cánceres, el papel específico de miR-1298 en la carcinogénesis colorrectal—particularmente sus dianas descendentes y sus consecuencias funcionales en el CCR—sigue siendo en gran parte inexplorado. Esta brecha de conocimiento es significativa, dada la configuración molecular distinta del CCR en comparación con otras malignidades.
BMP7 es una citocina secretada y funcionalmente versátil que pertenece a la superfamilia del factor de crecimiento transformante-β (TGF-β)7. En el CCR, BMP7 desempeña principalmente un papel promotor del tumor. BMP7 suele estar sobreexpresado en tejidos y células de CCR8. BMP7 aumenta la invasión, la migración y las propiedades similares a las de células madre en las células cancerosas, probablemente mediante la activación de cascadas de señalización proinvasivas y la modulación del microambiente tumoral para favorecer la migración9. En diversos tipos de cáncer, se han identificado miARN específicos como represores post-transcripcionales directos de BMP7. Por ejemplo, el miR-137 dirige a BMP7 en el CPHN para inhibir el crecimiento celular10. A la luz de estos hallazgos, planteamos la hipótesis de que BMP7 podría estar implicado en el CCR. Sin embargo, no se ha validado experimentalmente si el miR-1298 dirige directamente a BMP7 en el CCR. Además, ningún estudio ha caracterizado exhaustivamente el eje miR-1298/BMP7 en el CCR mediante la integración de la validación mecanicista, la fenotipificación funcional y la correlación clínica.
Por lo tanto, nuestro objetivo fue: (1) investigar el patrón regulador de miR-1298 en el CCR y su asociación con características clínico-patológicas; (2) caracterizar funcionalmente los efectos de miR-1298 sobre la proliferación, apoptosis, invasión y migración en el CCR; (3) validar experimentalmente a BMP7 como un blanco de miR-1298 en el CCR; y (4) evaluar el valor diagnóstico y pronóstico de miR-1298 en pacientes con CCR. Al integrar estos enfoques complementarios, buscamos proporcionar una comprensión integral del eje miR-1298/BMP7 en el CCR y descubrir nuevos biomarcadores y dianas terapéuticas para esta enfermedad.
Protocolo
Este estudio fue aprobado por el Comité de Ética del Hospital Cerebral de Wuhan (número de aprobación: 20220826). Todos los participantes dieron su consentimiento informado por escrito antes de la inscripción. Este estudio se llevó a cabo de acuerdo con la Declaración de Helsinki. Se obtuvo el consentimiento para la publicación de todos los participantes cuyos datos fueron incluidos. Los detalles de los reactivos, kits, anticuerpos, líneas celulares, plásmidos y equipos utilizados en este estudio, incluyendo sus fabricantes e información de catálogo, se proporcionan en la Tabla de Materiales.
Pacientes y especímenes
De mayo de 2022 a agosto de 2024, recolectamos muestras apareadas de tejido canceroso y tejido no canceroso adyacente de 85 pacientes con CRC. Ninguno de los participantes tenía antecedentes de cáncer, quimioterapia o radioterapia. Además, se incluyeron en este estudio 71 sujetos sanos que se sometieron a un examen físico.
Diagnóstico
Los valores críticos para los grupos de expresión alta/baja de miR-1298 se determinaron en función del nivel de expresión mediana en muestras de tejido de CCR. El período de seguimiento fue de 12 meses, con seguimiento realizado por teléfono o mediante reevaluación. El evento final fue la muerte. Entre los 85 pacientes, se registraron 14 muertes durante el período de seguimiento, y no hubo pacientes censurados.
Cultivo celular y transfección de células
Se obtuvieron la línea celular normal de colon humano FHC, así como las líneas celulares de CCR humano SW480 y HCT-116. Las células se cultivaron en medio de Eagle modificado por Dulbecco (DMEM) suplementado con 10% de suero bovino fetal (FBS). Se transfectaron un análogo o un inhibidor de miR-1298 en células SW480 y HCT-116 utilizando Lipofectamina 3000. Luego, el análogo de miR-1298 y el plásmido pcDNA3.1-BMP7 (OE-BMP7) o el vector pcDNA3.1 (OE-NC) se co-transfectaron en células SW480 y HCT-116. Los pasos específicos fueron los siguientes: Las células se cultivaron a 37 °C con 5% de CO₂ hasta alcanzar una confluencia del 70%–80%. Las células se sembraron a una densidad de 5 x 10⁴ células por pocillo en una placa de 24 pocillos y se incubaron durante la noche. Se preparó una mezcla de transfección que contenía 250 µL de Opti-MEM, 1,25 µL de Lipofectamina 3000, 1,5 µL de P3000, 50 nM de miARN y 1 µg de plásmido, que se incubó durante 15 minutos antes de añadirla a las células. El medio se reemplazó por DMEM completo tras 6 h, y las muestras se recogieron a las 48 h.
Análisis de bioinformática
El blanco de miR-1298 se predijo utilizando la base de datos TargetScan 8.0 (https://www.targetscan.org/vert_80/). Luego se identificó el sitio de unión predicho entre miR-1298 y BMP7.
Ensayo de repórtor de luciferasa dual
El tipo silvestre y el mutante 3′Las secuencias de la región -UTR de BMP7 que contenían el sitio de unión predicho para miR-1298 se clonaron en el vector reportero dual-luciferasa pmirGLO para generar los plásmidos reporteros BMP7 Wt y BMP7 Mut, respectivamente. Para el ensayo de luciferasa, las células SW480 y HCT-116 se transfectaron simultáneamente con el plásmido BMP7 Wt o BMP7 Mut junto con el mimético de miR-1298, el inhibidor de miR-1298 o sus controles negativos correspondientes. Los pasos específicos fueron los siguientes: las células se sembraron en placas de 24 pocillos a una densidad de 4 x 10⁴ células por pocillo. Cada pocillo se co-transfectó con 0.8 µg de plásmido reportero, 50 nM de análogo, inhibidor o control negativo correspondiente de miR-1298 y Lipofectamine 3000. Tras 8 h, se aspiró el medio de cultivo y las células se lisaron mediante la adición de 100 µL de tampón de lisis pasiva (PLB) durante 15 min. A 20 µL una alícuota del lisado se transfirió a una placa de ensayo blanca, 50 µL de LAR II se agregó, y se midió la actividad de luciferasa de luciérnaga. Un adicional 50 µL Detener&Se añadió el reactivo #38;Glo para medir Renilla. Finalmente, se completó la normalización de los datos.
RT-qPCR
El ARN se extrajo de células cultivadas, suero y tejidos de CCR congelados utilizando el reactivo TRIzol. En resumen, las células se lisaron directamente en 1 mL de TRIzol por placa de 10 cm; los fragmentos de tejido se homogenizaron en TRIzol sobre hielo. Después de la separación por fases con cloroformo y la precipitación con isopropanol, los pellet de ARN se lavaron con etanol al 75 %, se secaron al aire y se disolvieron en agua libre de ARNasas. La pureza y concentración del ARN se determinaron mediante un espectrofotómetro de microvolumen (A260/A280 = 1,8–2,1, A260/A230 > 2,0). Para el análisis de ARNm, se eliminó el ADN genómico residual con gDNA Eraser, y 500 ng de ARN se transcribieron a ADNc utilizando el Kit de Reagentes PrimeScript RT con oligo(dT) y hexámeros aleatorios (37 °C durante 15 min y 85 °C durante 5 s). Para el análisis de miARN, 100 ng de ARN se transcribieron a ADNc con un cebador en bucle específico para miR-1298-5p o U6 utilizando el Kit de Síntesis de la Primera Cadena Mir-X miRNA (16 °C durante 30 min, 42 °C durante 30 min y 85 °C durante 5 s). En cada ensayo se incluyeron controles sin RT y sin molde. El ADNc se diluyó adecuadamente y se almacenó a −80 °C hasta la realización de la qPCR. Los niveles de miR-1298 y BMP7 se cuantificaron utilizando la química SYBR Green. U6 y GAPDH se utilizaron como controles endógenos para la normalización de miARN y ARNm, respectivamente. La expresión relativa se calculó mediante el método comparativo 2−ΔΔCt. Las secuencias de los cebadores (5′–3′) fueron las siguientes: miR-1298-adelantado: TCGGCAGGTTCATTCGGCTGTC, reverso: CTCAACTGGTGTCGTGGA; U6-adelantado: CTCGCTTCGGCAGCACA, reverso: AACGCTTCACGAATTTGCGT; BMP7-adelantado: CAAGAACCAGGAAGCCCTGC, reverso: TTCTTACAGGCCTGCCTCTGG; y GAPDH-adelantado: GACATGCCGCCTGGAGAAAC, reverso: AGCCCAGGATGCCCTTTAGT. Las condiciones de reacción para la qPCR fueron las siguientes: 95 °C durante 2 min, 35 ciclos de 95 °C durante 30 s, 60 °C durante 30 s y 72 °C durante 60 s. Las plantillas de ADNc se diluyeron seriamente (5 veces) para generar curvas estándar. La eficiencia de amplificación E se calculó utilizando la fórmula: E = (10-1/pendiente-1) x 100 %. La eficiencia de amplificación de los cebadores se calculó de la siguiente manera: EmiR-1298 = 102,1 %, EBMP7 = 96,3 %, EGAPDH = 100,3 %, EU6 = 99,8 %. Todos los cebadores cumplieron con el rango de eficiencia aceptable de 90–110 %. Todos los experimentos de RT-qPCR incluyeron tres réplicas biológicas independientes, cada una con 3 réplicas técnicas. La estabilidad de U6 y GAPDH se evaluó utilizando el algoritmo geNorm. Los valores M de ambos genes estuvieron por debajo del umbral recomendado de 1,5, confirmando su adecuación.
Ensayo con el kit de conteo de células-8 (CCK-8)
Las células SW480 y HCT-116 se sembraron en placas de 96 pocillos a una densidad de 2 x 10³ células/pocillo en 100 µL de DMEM completo y se incubaron durante 24 h. A las 48 h posteriores a la transfección, las placas se incubaron durante 1 h a 37 °C. Se midió la absorbancia a 450 nm utilizando un lector de microplacas. Se utilizaron seis pocillos replicados por grupo, y se restó un blanco que contenía medio más CCK-8 sin células.
Citometría de flujo
La apoptosis se evaluó mediante citometría de flujo utilizando un kit de detección de apoptosis con anexina V-FITC/PI. A las 48 h posteriores a la transfección, las células SW480 y HCT-116 se recolectaron mediante tripsinización, se lavaron dos veces con PBS frío y se resuspendieron en tampón de unión 1x a una concentración de 1 x 10⁶ células/mL. Se transfirieron alícuotas de 1 x 10⁵ células a tubos FACS, se tiñeron con 5 µL de anexina V-FITC y 5 µL de PI durante 15 min a temperatura ambiente en la oscuridad, y se diluyeron con 400 µL de tampón de unión antes de la adquisición. Se incluyeron controles positivos sin teñir, teñidos individualmente y tratados con estaurosporina para la compensación y el ajuste de las puertas. Los datos se analizaron utilizando el software FlowJo (FlowJo 10.2).
Migración e invasión celular
La migración e invasión celular se evaluaron utilizando cámaras Transwell de 24 pocillos con membranas de PET de 8 µm de tamaño de poro. Para los ensayos de invasión, la membrana superior se recubrió previamente con 50 µL de Matrigel a 37 °C durante 2 h y se rehidrató con DMEM sin suero durante 30 min antes de sembrar las células; en los ensayos de migración se omitió este paso de recubrimiento. Las células SW480 y HCT-116 transfectadas se privaron de suero en DMEM sin suero durante 12 h, tras lo cual se sembraron 2 x 10⁴ células en 100 µL de DMEM sin suero que contenía 0,1 % de BSA en la cámara superior. La cámara inferior se llenó con 600 µL de DMEM que contenía 10 % de FBS como quimioatractivo. Después de 24 h (migración) o 48 h (invasión) a 37 °C, las células no migradas en la superficie superior se eliminaron con un hisopo de algodón. Las células en la superficie inferior se fijaron con paraformaldehído al 4 % durante 15 min, se tiñeron con violeta cristal al 0,1 % durante 20 min, se enjuagaron y se secaron al aire. Se capturaron imágenes de cinco campos aleatorios por membrana a 200x de aumento utilizando un microscopio invertido y se contaron manualmente por dos observadores independientes.
Western blot
Las proteínas celulares totales se extrajeron homogenizando las células en tampón de lisis RIPA suplementado con un cóctel de inhibidores de proteasas. Las concentraciones de proteína se determinaron utilizando un Kit de ensayo de proteína BCA. Cantidades equivalentes de lisados de proteína (50 µg) se separaron mediante electroforesis en gel de SDS-PAGE al 10% y posteriormente se transfirieron a membranas de PVDF. Después de bloquear los sitios de unión no específicos con BSA al 2%, las membranas se incubaron con anticuerpos primarios contra BMP7 (1:1.000) y GAPDH (1:2.000) durante 90 min a 37 °C. Tras tres lavados con PBST, las membranas se incubaron con un anticuerpo secundario conjugado con peroxidasa de rábano picante (HRP). Las bandas proteicas se visualizaron utilizando un reactivo quimioluminiscente ECL.
Análisis estadístico
Los datos se analizaron utilizando SPSS 27.0. Todos los valores se expresaron como media ± desviación estándar (DE), salvo indicación contraria. Se aplicó la prueba de Shapiro-Wilk para verificar la distribución normal. Las diferencias entre grupos se determinaron mediante una prueba t de Student no apareada de dos colas. La comparación de la expresión de miR-1298 entre tejidos tumorales de CCR y tejidos adyacentes no cancerosos se realizó utilizando una prueba t de Student apareada. Antes de realizar la prueba paramétrica, se utilizó la prueba de Levene para evaluar la homogeneidad de varianzas. Para comparaciones entre múltiples grupos, los datos paramétricos se analizaron mediante ANOVA de un factor, utilizando la prueba HSD de Tukey para comparaciones por pares post hoc. La correlación entre miR-1298 y BMP7 en tejidos de CCR se evaluó mediante análisis de correlación de Pearson. Se consideró estadísticamente significativo un valor de p < 0,05.
Resultados
miR-1298 se redujo sustancialmente en el CCR
En tejidos de CCR, los niveles de miR-1298 fueron más bajos que en los tejidos adyacentes no cancerosos (Figura 1A). El análisis de metástasis en ganglios linfáticos reveló que los niveles de miR-1298 fueron más bajos en pacientes con metástasis linfática que en aquellos sin metástasis linfática (Figura 1B). En pacientes con CCR cuyo tamaño del tumor fue > 5 cm, miR-1298 fue significativamente más bajo que en pacientes cuyo tamaño del tumor fue ≤ 5 cm (p = 0.017; Figura 1C). miR-1298 disminuyó con la progresión del estadio tumoral, con diferencias significativas entre el estadio 1 y el estadio 3 (p = 0.047) y entre el estadio 1 y el estadio 4 (p = 0.009; Figura 1D). En el suero de pacientes con CCR, miR-1298 se redujo sustancialmente (Figura 1E), y el análisis de la curva ROC mostró un AUC de 0.889, con una sensibilidad del 78,82 % y una especificidad del 83,10 % (Figura 1F).
Basándose en el nivel de expresión mediana de miR-1298, los pacientes con CCR se dividieron en grupos de expresión baja y alta. En pacientes con CCR, miR-1298 estuvo estrechamente asociado con la etapa TNM (p < 0,001), el tamaño del tumor (p = 0,003), las metástasis en ganglios linfáticos (p = 0,003) y la diferenciación tumoral (p = 0,035). Sin embargo, miR-1298 no se asoció con la edad (p = 0,832) ni con el sexo (p = 0,165) (Tabla 1). El análisis de Kaplan-Meier mostró que los pacientes con CCR y baja expresión de miR-1298 tuvieron una supervivencia general más corta que aquellos con alta expresión de miR-1298 (log-rank p = 0,039; Figura 1G). El análisis de regresión de Cox indicó que la reducción en la expresión de miR-1298 podría ser un indicador pronóstico potencial en pacientes con CCR (p = 0,035, Tabla 2).
miR-1298 suprimió la proliferación y promovió la apoptosis en células de CCR
En células SW480, la transfección con el análogo o inhibidor de miR-1298 alteró eficazmente la expresión de miR-1298, con una diferencia significativa entre los grupos inhibidor NC e inhibidor de miR-1298 (p = 0,005; Figura 2A). La sobreexpresión de miR-1298 redujo la viabilidad celular y promovió la apoptosis, mientras que la supresión de miR-1298 aumentó la viabilidad celular y disminuyó la apoptosis; la apoptosis mostró diferencias significativas entre los grupos inhibidor NC e inhibidor de miR-1298 (p = 0,008; Figura 2B,C). En células HCT-116, la transfección alteró de manera similar la expresión de miR-1298 (p = 0,002; Figura 2D), y se observaron diferencias significativas entre los grupos inhibidor NC e inhibidor de miR-1298 respecto a la viabilidad celular (p = 0,007; Figura 2E) y la apoptosis (p = 0,005; Figura 2F).
El miR-1298 suprimió la migración y la invasión de células de CCR
La sobreexpresión del miR-1298 redujo el número de células migratorias e invasoras de SW480 y HCT-116, mientras que la inhibición del miR-1298 aumentó la migración e invasión celular (Figura 3A–D). En las células SW480, el número de células invasoras fue sustancialmente menor en el grupo con el análogo del miR-1298 que en el grupo con el control negativo análogo (p = 0.004; Figura 3B).
BMP7 fue un blanco de miR-1298 en el CCR
TargetScan indicó que BMP7 podría ser un blanco de miR-1298 (Figura 4A). Los ensayos de luciferasa dual en células SW480 y HCT-116 mostraron que la sobreexpresión o inhibición de miR-1298 alteró la actividad luciferasa del reportero BMP7 Wt, pero no la del reportero BMP7 Mut (Figura 4B,C). En células HCT-116, la actividad luciferasa del reportero BMP7 Wt fue significativamente menor en el grupo con mimético de miR-1298 que en el grupo con NC mimético (p = 0.002; Figura 4C). En tejidos de CCR, BMP7 se encontró considerablemente elevado (Figura 4D). Además, BMP7 y miR-1298 mostraron una correlación negativa (Figura 4E). En células SW480 y células HCT-116, la sobreexpresión de miR-1298 inhibió a BMP7 tanto a nivel de ARN como de proteína, mientras que la inhibición de miR-1298 aumentó la expresión de BMP7 (Figura 4F,G).
El miR-1298 podría ejercer un efecto supresor de tumores en el CCR mediante la regulación de BMP7
En células SW480, se confirmó la modulación exitosa de la expresión de BMP7 (Figura 5A). La sobreexpresión de BMP7 revirtió parcialmente la disminución de la viabilidad celular y el aumento de la apoptosis inducidos por la sobreexpresión de miR-1298, mientras que la inhibición de BMP7 redujo aún más la viabilidad celular y aumentó la apoptosis (Figura 5B,C). En células HCT-116, también se confirmó la modulación exitosa de la expresión de BMP7 (Figura 5D), con efectos correspondientes sobre la viabilidad celular y la apoptosis (Figura 5E,F). En células SW480, la expresión de BMP7 y la viabilidad celular fueron significativamente menores en el grupo miR-1298 mimético + si-BMP7 que en el grupo miR-1298 mimético + si-NC (p = 0,002 y p = 0,005, respectivamente; Figura 5A,B). La apoptosis mostró diferencias significativas entre los grupos miR-1298 mimético + OE-BMP7 y miR-1298 mimético + OE-NC (p = 0,001; Figura 5C). En células HCT-116, la viabilidad celular fue significativamente menor en el grupo miR-1298 mimético + si-BMP7 que en el grupo miR-1298 mimético + si-NC (p = 0,002; Figura 5E). La sobreexpresión elevada de BMP7 revirtió parcialmente los efectos supresores del miR-1298 sobre la migración e invasión de células de CCR, mientras que la inhibición de BMP7 potenció estos efectos inhibitorios (Figura 6A–D). En células SW480, la inhibición de BMP7 redujo significativamente el número de células migradas e invasivas en comparación con el grupo si-NC (p = 0,003 y p = 0,020, respectivamente; Figura 6A,B). En células HCT-116, la sobreexpresión de BMP7 alteró significativamente el número de células migradas en comparación con el grupo OE-NC (p = 0,030; Figura 6C), mientras que la inhibición de BMP7 redujo significativamente el número de células invasivas en comparación con el grupo si-NC (p = 0,007; Figura 6D).
DISPONIBILIDAD DE LOS DATOS:
Los datos que respaldan los hallazgos de este estudio se proporcionan como un Archivo Suplementario.
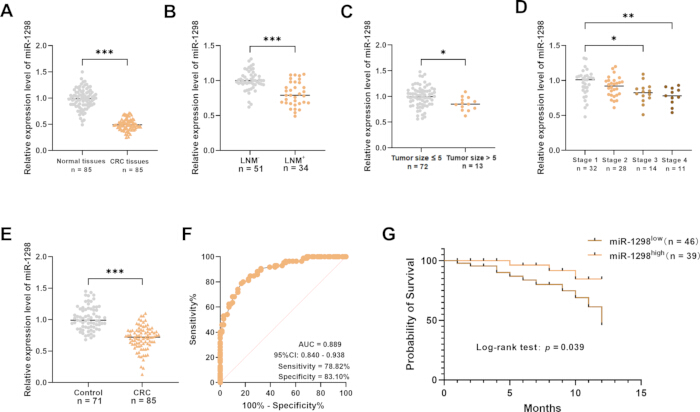
Figura 1: Expresión de miR-1298 en tejidos de CCR. (A) Expresión relativa de miR-1298 en tejidos de CCR y tejidos adyacentes no cancerosos. (B) Expresión relativa de miR-1298 en tejidos de CCR de pacientes con (MET+) y sin (MET−) metástasis en ganglios linfáticos. (C) Expresión relativa de miR-1298 en tejidos de CCR según el tamaño del tumor. (D) Expresión relativa de miR-1298 en tejidos de CCR según la etapa del tumor. (E) Expresión relativa de miR-1298 sérica en pacientes con CCR y controles sanos. (F) Curva característica de operación del receptor (ROC) para miR-1298 sérica para diferenciar a pacientes con CCR de controles sanos. (G) Curvas de supervivencia global de Kaplan-Meier para pacientes con CCR según baja y alta expresión de miR-1298. *p < 0,05; **p < 0,01; ***p < 0,001. Haga clic aquí para ver una versión ampliada de esta figura.
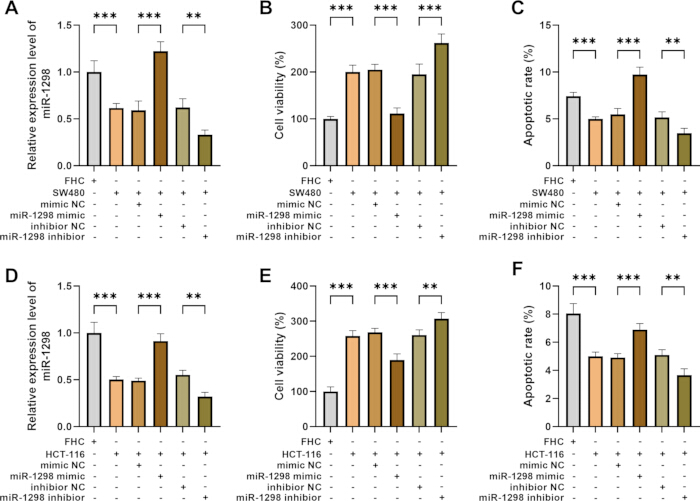
Figura 2: Efectos de miR-1298 sobre la proliferación y la apoptosis de células de CCR. (A) Expresión relativa de miR-1298 en células FHC y SW480 tras la transfección con el análogo de miR-1298, análogo NC, inhibidor de miR-1298 o inhibidor NC. (B) Viabilidad celular de las células SW480 tras la sobreexpresión o inhibición de miR-1298. (C) Apoptosis de las células SW480 tras la sobreexpresión o inhibición de miR-1298. (D) Expresión relativa de miR-1298 en células FHC y HCT-116 tras la transfección con el análogo de miR-1298, análogo NC, inhibidor de miR-1298 o inhibidor NC. (E) Viabilidad celular de las células HCT-116 tras la sobreexpresión o inhibición de miR-1298. (F) Apoptosis de las células HCT-116 tras la sobreexpresión o inhibición de miR-1298. Los datos se presentan como media ± DE. Las barras de error representan la DE. **p < 0,01; ***p < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
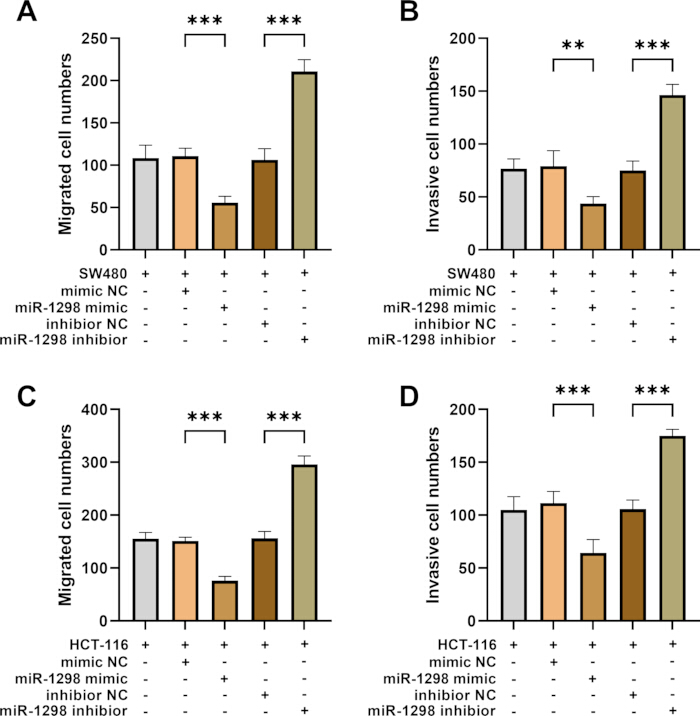
Figura 3: Efectos de miR-1298 sobre la migración e invasión de células de CRC. (A) Número de células migradas en células SW480 tras la transfección con el mimético de miR-1298, mimético NC, inhibidor de miR-1298 o inhibidor NC. (B) Número de células invasivas en células SW480 tras la transfección con el mimético de miR-1298, mimético NC, inhibidor de miR-1298 o inhibidor NC. (C) Número de células migradas en células HCT-116 tras la transfección con el mimético de miR-1298, mimético NC, inhibidor de miR-1298 o inhibidor NC. (D) Número de células invasivas en células HCT-116 tras la transfección con el mimético de miR-1298, mimético NC, inhibidor de miR-1298 o inhibidor NC. Los datos se presentan como media ± DE. Las barras de error representan la DE. **p < 0,01; ***p < 0,001. Haga clic aquí para ver una versión ampliada de esta figura.
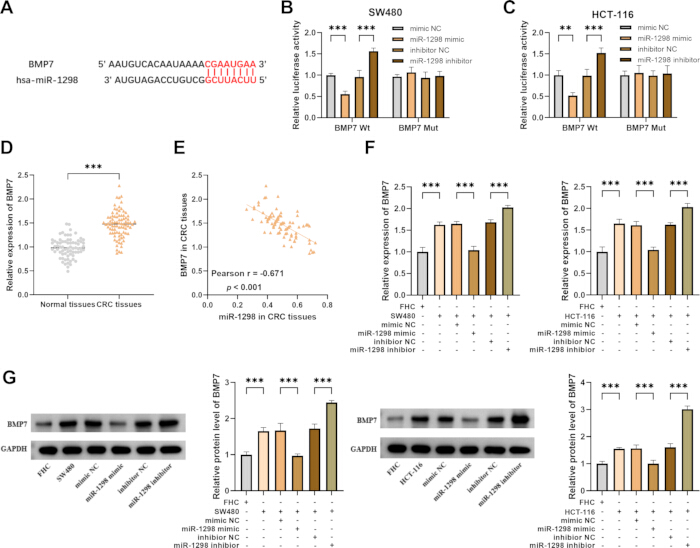
Figura 4: Relación de diana entre miR-1298 y BMP7. (A) Sitio de unión predicho entre miR-1298 y la región 3′ UTR de BMP7. (B) Actividad relativa de luciferasa de los reporteros BMP7 Wt y BMP7 Mut tras la sobreexpresión o inhibición de miR-1298 en células SW480. (C) Actividad relativa de luciferasa de los reporteros BMP7 Wt y BMP7 Mut tras la sobreexpresión o inhibición de miR-1298 en células HCT-116. (D) Expresión relativa de BMP7 en tejidos de CCR y tejidos adyacentes no cancerosos. (E) Correlación entre la expresión de miR-1298 y BMP7 en tejidos de CCR. (F) Expresión relativa de BMP7 en células SW480 y HCT-116 tras la transfección con el mimético de miR-1298, mimético NC, inhibidor de miR-1298 o inhibidor NC. (G) Niveles proteicos relativos de BMP7 en células SW480 y HCT-116 tras la transfección con el mimético de miR-1298, mimético NC, inhibidor de miR-1298 o inhibidor NC. **p < 0.01; ***p < 0.001. Haga clic aquí para ver una versión ampliada de esta figura.
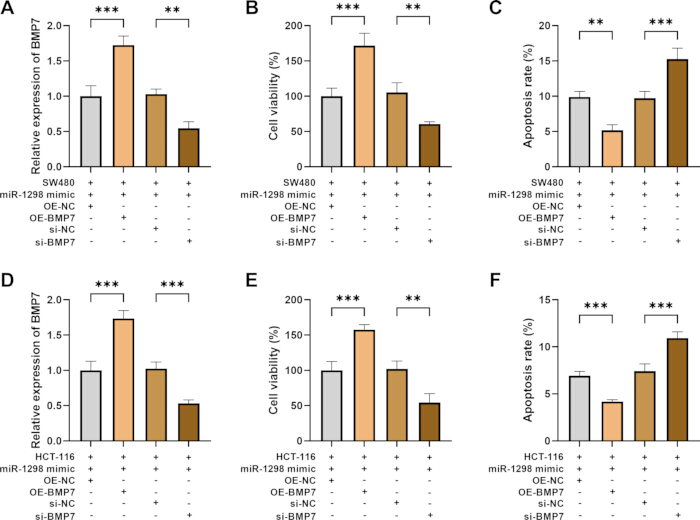
Figura 5: Co-regulación de miR-1298 y BMP7 sobre la proliferación y apoptosis en células de CCR. Las células SW480 y HCT-116 fueron co-transfectadas con el análogo de miR-1298 y OE-NC, OE-BMP7, si-NC o si-BMP7. (A) Expresión relativa de BMP7 en células SW480. (B) Viabilidad celular en células SW480. (C) Apoptosis en células SW480. (D) Expresión relativa de BMP7 en células HCT-116. (E) Viabilidad celular en células HCT-116. (F) Apoptosis en células HCT-116. Los datos se presentan como media ± DE. Las barras de error representan la DE. **p < 0,01; ***p < 0,001. Abreviaturas: OE-NC = control negativo de sobreexpresión; OE-BMP7 = sobreexpresión de BMP7; si-NC = control negativo de ARN de interferencia pequeño; si-BMP7 = ARN de interferencia pequeño dirigido contra BMP7. Haga clic aquí para ver una versión ampliada de esta figura.
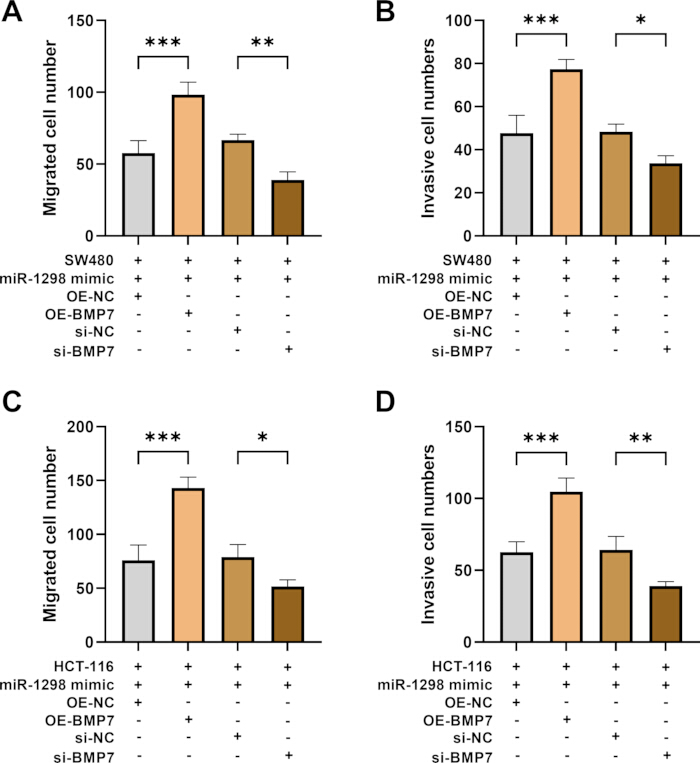
Figura 6: Co-regulación de miR-1298 y BMP7 sobre la migración e invasión de células de CCR. Las células SW480 y HCT-116 fueron co-transfectadas con el análogo de miR-1298 y OE-NC, OE-BMP7, si-NC o si-BMP7. (A) Número de células migradas en células SW480. (B) Número de células invasivas en células SW480. (C) Número de células migradas en células HCT-116. (D) Número de células invasivas en células HCT-116. Los datos se presentan como media ± DE. Las barras de error representan la DE. *p < 0,05; **p < 0,01; ***p < 0,001. Abreviaturas: OE-NC = control negativo de sobreexpresión; OE-BMP7 = sobreexpresión de BMP7; si-NC = control negativo de ARN de interferencia pequeño; si-BMP7 = ARN de interferencia pequeño dirigido contra BMP7. Haga clic aquí para ver una versión más grande de esta figura.
| Variable | Total | miR-1298 | p valor | |
| (n = 85) | Bajo (n = 46) | Alto (n = 39) | ||
| Edad (años) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Sexo (masculino/femenino) | ||||
| Masculino | 44 | 27 | 17 | 0.165 |
| Femenino | 41 | 19 | 22 | |
| Estadio TNM | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| Tamaño del tumor (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| Metástasis en ganglios linfáticos | ||||
| Sí | 34 | 25 | 9 | 0.003** |
| No | 51 | 21 | 30 | |
| Diferenciación tumoral | ||||
| Bajo grado | 53 | 24 | 29 | 0.035* |
| Alto grado | 32 | 22 | 10 | |
Tabla 1: Asociación entre características clinicopatológicas y niveles de expresión de miR-1298 en pacientes con CCR. Los pacientes se clasificaron en grupos de expresión baja (n = 46) y alta (n = 39) de miR-1298, y se evaluaron las asociaciones entre la expresión de miR-1298 y las características clinicopatológicas. *p < 0,05; **p < 0,01; ***p < 0,001. Abreviaturas: CCR = cáncer colorrectal; TNM = tumor, ganglio, metástasis.
| Variable | Ratio de riesgo | IC del 95% | Valor p | |
| Inferior | Superior | |||
| Edad | 0.776 | 0.186 | 3.242 | 0.728 |
| Sexo | 0.614 | 0.152 | 2.474 | 0.492 |
| Estadio TNM | 4.62 | 1.181 | 18.078 | 0.028* |
| Tamaño del tumor | 8.078 | 1.833 | 35.587 | 0.006** |
| Metástasis en ganglios linfáticos | 6.584 | 1.134 | 38.245 | 0.036* |
| Diferenciación del tumor | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tabla 2: Análisis de regresión de Cox de factores pronósticos en pacientes con CCR. Se realizó un análisis de regresión de Cox para evaluar la asociación entre las características clínico-patológicas y la expresión de miR-1298 con el pronóstico en pacientes con CCR. *p < 0,05; **p< 0,01. Abreviaturas: CI = intervalo de confianza; CCR = cáncer colorrectal; TNM = tumor nódulo metástasis.
Archivo complementario. Haga clic aquí para descargar este archivo.
Discusión
El CCR supone una carga significativa para los individuos y la sociedad debido a sus altas tasas de incidencia y mortalidad. A pesar de los programas de cribado como la colonoscopia, un gran número de pacientes con CCR aún se diagnostican en una etapa avanzada, lo que subraya la necesidad urgente de biomarcadores más eficaces y no invasivos para la detección temprana11. Además, el pronóstico del CCR metastásico sigue siendo desfavorable, siendo relativamente comunes la resistencia a los fármacos y la recurrencia de la enfermedad12. Por lo tanto, es fundamental comprender a fondo los mecanismos moleculares que subyacen al inicio, progresión y metástasis del CCR para desarrollar nuevas terapias dirigidas y superar la resistencia al tratamiento. El CCR es altamente heterogéneo, lo que significa que tumores que parecen similares pueden presentar diferencias significativas en su comportamiento13. Por consiguiente, la investigación continua es importante para mejorar la detección temprana, avanzar en el tratamiento personalizado y, en última instancia, mejorar la supervivencia en pacientes con CCR.
Las anomalías en el ARNm están implicadas en el desarrollo, estadio y pronóstico del CCR14. Debido a su estabilidad en los fluidos corporales, los ARNm también tienen un gran potencial como biomarcadores diagnósticos y pronósticos no invasivos15. En este estudio, miR-1298 se encontró regulado a la baja en tejidos de CCR, y su expresión se asoció con el estadio TNM y la metástasis ganglionar, lo que sugiere un posible papel en la progresión del CCR. Destacablemente, nuestro estudio es el primero en caracterizar exhaustivamente la expresión de miR-1298 en una cohorte clínica de CCR y en demostrar su asociación con parámetros clínico-patológicos clave, incluidos el estadio TNM, la metástasis ganglionar y la diferenciación tumoral.
La desregulación de procesos celulares fundamentales, incluyendo la proliferación, la apoptosis, la migración y la invasión, es un impulsor fundamental del desarrollo y la mortalidad del cáncer16. La proliferación descontrolada permite que las células tumorales realicen una expansión clonal inicial. Al mismo tiempo, la evasión de la apoptosis permite que estas células sobrevivan y se acumulen frente a daños internos o factores de estrés externos. Esta combinación conduce al crecimiento del tumor primario17,18. Por lo tanto, las terapias dirigidas que abordan los factores moleculares responsables de estas características son clave para desarrollar tratamientos eficaces contra el CCR. Los ARNm contribuyen al desarrollo tumoral al regular el fenotipo maligno de las células cancerosas19. El miR-1298 es uno de estos ARNm. Por ejemplo, la disminución del miR-1298-5p promueve la progresión del cáncer gástrico20. El miR-1298 sobreexpresado suprime la proliferación de células de cáncer de mama, induce la apoptosis y provoca la detención del ciclo celular21. Además, el miR-1298-5p también actúa como supresor tumoral en el cáncer de vejiga22. Los resultados de este estudio indicaron que la sobreexpresión del miR-1298 suprimió la proliferación, la migración y la invasión, y aumentó la apoptosis, lo que sugiere que podría suprimir el fenotipo maligno del CCR. Importante, nuestro estudio amplió los informes previos mediante la evaluación sistemática de los principales fenotipos malignos en células de CCR, proporcionando una caracterización funcional más completa del miR-1298 en este tipo específico de cáncer.
En cuanto a sus efectos promotores de tumores, BMP7 puede promover la proliferación de células cancerosas mediante la regulación de vías de señalización como PI3K/AKT23. Al modular el nivel de factores antiapoptóticos como Bcl-2, BMP7 confiere resistencia a la apoptosis en células cancerosas24. Además, BMP7 mejora principalmente la migración e invasión de células cancerosas al inducir la transición epitelial-mesénquima (EMT)25. La participación de BMP7 en la promoción del cáncer es coherente con nuestro hallazgo de que BMP7 estaba elevado en el tejido de CCR. Un análisis bioinformático sugirió que BMP7 podría ser un blanco de miR-1298 e identificó un sitio de unión predicho entre miR-1298 y BMP7. Asimismo, experimentos de rescate indicaron que BMP7 probablemente actuó como mediador funcional de miR-1298 en CCR. Considerando las vías de señalización asociadas con BMP7 en el cáncer, formulamos la hipótesis adicional de que el eje miR-1298/BMP7 regula las vías de señalización downstream (SMAD, PI3K/AKT, EMT) que controlan el comportamiento de las células de CCR. Crucialmente, validamos experimentalmente esta predicción mediante ensayos de luciferasa, confirmando la unión directa de miR-1298 al extremo 3′ UTR de BMP7. Además, experimentos de rescate demostraron que la recuperación de BMP7 revirtió parcialmente los efectos supresores tumorales de la sobreexpresión de miR-1298, proporcionando evidencia funcional de que BMP7 fue un mediador downstream de miR-1298 en CCR. Hasta donde sabemos, este es el primer estudio que establece el eje regulador miR-1298/BMP7 en el cáncer colorrectal.
Además de los conocimientos mecanicistas, nuestro estudio proporcionó evidencia traslacional que respalda la utilidad clínica de miR-1298. El análisis de la curva ROC demostró que miR-1298 podría tener valor diagnóstico en el CCR. El análisis de supervivencia reveló además que una baja expresión de miR-1298 se asoció con un peor pronóstico, y el análisis de regresión de Cox indicó que la reducción de miR-1298 podría ser un factor pronóstico para el CCR, lo que respalda el valor latente de miR-1298 como biomarcador diagnóstico y pronóstico para el CCR.
Este estudio tiene algunas limitaciones. En cuanto a las muestras clínicas, dado que este estudio utilizó principalmente datos de un solo centro, se necesitan futuros estudios de validación multicéntricos para confirmar de manera más robusta el papel supresor tumoral de miR-1298 en el CCR. Este estudio se centró en experimentos celulares in vitro, que no capturaron completamente la complejidad del microentorno tumoral in vivo. La falta de modelos de tumores xenoinjertados fue una de las limitaciones de este estudio. Las investigaciones futuras deberían incluir validación in vivo para elucidar mejor el papel del eje miR-1298/BMP7 en el microentorno tumoral. Además, experimentos futuros podrían validar aún más las vías upstream y downstream del eje miR-1298/BMP7 mediante predicciones de bioinformática y experimentos in vitro e in vivo. El período de seguimiento fue relativamente corto, lo que limitó la madurez de la estimación de supervivencia a largo plazo. Aunque se realizaron análisis de Kaplan-Meier y regresión de Cox, los resultados podrían haberse visto afectados por el período de seguimiento relativamente breve. Actualmente se está llevando a cabo un seguimiento prolongado para verificar el valor pronóstico de miR-1298 en el CCR. Asimismo, las vías de señalización downstream (SMAD, PI3K/AKT, EMT) reguladas por el eje miR-1298/BMP7 en el control del comportamiento de las células de CCR no se verificaron experimentalmente en este estudio y requieren mayor exploración. Este estudio no realizó experimentos de rescate inverso (inhibidor de miR-1298 + siRNA de BMP7). Dicho experimento proporcionaría evidencia complementaria sobre si el silenciamiento de BMP7 podría revertir los efectos promotores del tumor inducidos por la inhibición de miR-1298. La ausencia de este tipo de experimento de rescate debilita nuestras conclusiones mecanicistas. Se necesitan estudios futuros que incluyan este diseño experimental de rescate inverso y validación in vivo para establecer completamente la función del eje miR-1298/BMP7 en el CCR.
En resumen, el miR-1298 podría estar relacionado con la progresión del CCR. Funcionalmente, el miR-1298 podría inhibir la proliferación, invasión y migración de las células del CCR. La BMP7 podría ser un mediador funcional potencial del miR-1298 en el CCR.
Divulgaciones
Los autores no tienen intereses financieros ni no financieros relevantes que revelar.
Agradecimientos
Los autores declaran que no se recibieron fondos, becas ni otro tipo de apoyo durante la elaboración de este manuscrito.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Solución de violeta de cristal al 0,1 % | Sigma-Aldrich | C0775 | |
| Kit de SDS-PAGE al 10 % | Epizyme | PG112 | |
| Paraformaldehído al 4 % | Sigma-Aldrich | P6148 | |
| Placa de cultivo celular de 6 pocillos | Corning | 3516 | |
| Placa de cultivo celular de 96 pocillos | Corning | 3599 | |
| Kit de detección de apoptosis por anexina V-FITC/PI | Varios (por ejemplo, Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) o 556547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| Kit BCA | Sangon | C503021 | |
| Plásmido reportero del UTR 3‘ mutante de BMP7 | Construcción personalizada (clonado en pmirGLO) | Personalizado | |
| Primeros para BMP7 | Sangon Biotech (Shanghai, China) | Síntesis personalizada | |
| Plásmido reportero del UTR 3‘ de tipo silvestre de BMP7 | Construcción personalizada (clonado en pmirGLO) | Personalizado | |
| Kit de recuento celular-8 (CCK-8) | Dojindo (Japón) | CK04 | |
| Matraz de cultivo celular (T-25) | Corning | 430639 | |
| DMEM (medio Eagle modificado de Dulbecco‘s) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Suero bovino fetal (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| Línea celular FHC (epitelio normal del colon humano) | ATCC | CRL-1831 | |
| Citómetro de flujo | BD Biosciences | FACSCanto™ II | |
| Software FlowJo V10 | FlowJo, LLC | — | |
| Primeros para GAPDH (control endógeno para ARNm) | Sangon Biotech (Shanghai, China) | Síntesis personalizada | |
| Línea celular HCT-116 (carcinoma colorrectal humano) | ATCC | CCL-247 | |
| Anticuerpo secundario conjugado con HRP | Beyotime | A0208 | |
| Microscopio invertido | Nikon (o equivalente) | Eclipse Ts2 | |
| Reactivo de transfección Lipofectamin 3000 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Sistema de ensayo de luciferasa | Promega | E1500 | |
| Matriz de membrana basal Matrigel | Corning | 354230 | |
| Lector de microplacas | BioTek (Agilent) | Synergy H1 | |
| Inhibidor de miR-1298 | GenePharma (Shanghai, China) | Personalizado (sintetizado bajo pedido) | |
| Mimético de miR-1298 | GenePharma (Shanghai, China) | Personalizado (sintetizado bajo pedido) | |
| Primeros para miR-1298 | Sangon Biotech (Shanghai, China) | Síntesis personalizada | |
| Kit Mir-X para síntesis de primera cadena de ARNmi | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, China) | Personalizado (sintetizado bajo pedido) | |
| Opti-MEM | Gibco | 31985070 | |
| Tampón de lisis pasiva | Promega | E194A | |
| Vector pcDNA3.1 (control de vector vacío) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| Plásmido de sobreexpresión pcDNA3.1-BMP7 (OE-BMP7) | GenePharma (Shanghai, China) | Personalizado (sintetizado bajo pedido) | |
| Vector de expresión de destino de ARNmi con luciferasa dual pmirGLO | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| Kit de reactivo PrimeScript RT (tiempo real perfecto) | Takara (Japón) | RR037A | |
| Kit de reactivo PrimeScript RT con eliminador de ADN genómico | Takara Bio | RR047A | |
| Cóctel de inhibidores de proteasas | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| Tubos microcéntrifugos libres de RNasas (1,5 mL) | Axygen (Corning) | MCT-150-C | |
| Puntas de pipeta libres de RNasas | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Shanghai, China) | Personalizado (sintetizado bajo pedido) | |
| si-NC | GenePharma (Shanghai, China) | Personalizado (sintetizado bajo pedido) | |
| Estaurasporina (control positivo de apoptosis) | Sigma-Aldrich | S5921 | |
| Línea celular SW480 (adenocarcinoma colorrectal humano) | ATCC | CCL-228 | |
| Mezcla maestra de qPCR con SYBR Green | Takara (Japón) | RR036A | |
| Cámara Transwell (24 pocillos, tamaño de poro de 8,0 µm) | Corning (Costar) | 3422 | |
| Reactivo TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| Primeros para U6 (control endógeno para ARNmi) | Sangon Biotech (Shanghai, China) | Síntesis personalizada |
Referencias
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.