Este estudio combina tejidos humanos apareados, dos líneas celulares de carcinoma de células escamosas de pulmón, ensayos de estabilidad de ARN y proteínas, experimentos de rescate genético y un modelo de xenoinjerto con silenciamiento de FOXD1 para examinar la regulación de FOXD1 asociada a METTL3 y proporcionar un marco reproducible para investigar mecanismos oncogénicos postranscripcionales.
Artículo de investigación
La regulación de FOXD1 asociada a METTL3 promueve la progresión del carcinoma de células escamosas de pulmón: un enfoque experimental multimodelo
* These authors contributed equally
En este artículo
Resumen
Resumen
El carcinoma de pulmón de células escamosas (LUSC) tiene opciones de tratamiento limitadas, lo que motiva la investigación de vías moleculares que sustenten el crecimiento de las células tumorales. La expresión de la caja de horquilla D1 (FOXD1) se evaluó mediante análisis interactivo de perfiles de expresión génica (GEPIA), reacción en cadena de la polimerasa con transcripción inversa cuantitativa (qRT-PCR), inmunotransferencia western e inmunohistoquímica en tejidos apareados y líneas celulares. Se agotó FOXD1 o la metiltransferasa similar a 3 (METTL3) en células LUSC, y se evaluó la viabilidad celular, apoptosis, migración, m6A (N6-metiladenosina) global, estabilidad de los transcritos y estabilidad proteica. Un modelo de xenoinjerto con silenciamiento de FOXD1 evaluó el papel in vivo de FOXD1; METTL3 no se manipuló en animales.
La expresión de FOXD1 fue mayor en tejidos y células de LUSC que en los controles correspondientes. La inhibición de FOXD1 redujo la viabilidad y la migración, aumentó la apoptosis y suprimió el crecimiento de xenoinjertos. La expresión de METTL3 se correlacionó con FOXD1 en tejidos de LUSC apareados. En células en cultivo, la inhibición de METTL3 disminuyó la abundancia global de m6A y de FOXD1, mientras que la reexpresión de FOXD1 recuperó parcialmente los fenotipos asociados. Los ensayos con actinomicina D, cicloheximida y MG132 fueron consistentes con cambios asociados a METTL3 en la estabilidad del ARN y de la proteína FOXD1.
Estos datos respaldan una asociación funcional entre METTL3 y FOXD1 en células de LUSC. In vivo, la inhibición de FOXD1 suprimió el crecimiento del xenoinjerto y redujo la tinción de Ki-67, estableciendo a FOXD1 como un promotor del crecimiento del xenoinjerto. La unión directa entre METTL3 y FOXD1, la modificación específica de sitio de m6A, la dependencia del lector y la validación in vivo de la vía completa METTL3–FOXD1 permanecen por establecerse.
Introducción
El cáncer de pulmón sigue siendo una de las principales causas de mortalidad por cáncer en todo el mundo1,4. El carcinoma de células escamosas de pulmón (LUSC), un subtipo histológico importante del cáncer de pulmón de células no pequeñas (NSCLC), a menudo se presenta cuando ya no es factible un tratamiento local curativo3,4. Aunque el tratamiento sistémico ha mejorado, muchos pacientes aún presentan resultados desfavorables5. Por lo tanto, definir los programas moleculares que sostienen el crecimiento del LUSC podría revelar biomarcadores comprobables e hipótesis terapéuticas.
Forkhead box D1 (FOXD1) es un factor de transcripción implicado en cánceres colorrectal, de cabeza y cuello, gástrico, de carcinoma escamoso oral y de mama6,7,8,9,10. En el CPHN, la expresión de FOXD1 se ha asociado con un desenlace adverso y con crecimiento celular y metástasis experimentales11,12. El microARN-30a-5p también suprime la proliferación y migración de células de CUSP al dirigirse contra FOXD113. Estas observaciones identifican a FOXD1 como un regulador plausible del CUSP, pero no establecen cómo se mantiene su expresión en esta enfermedad.
La N6-metiladenosina (m6A) es una modificación reversible del ARN que es instalada, eliminada e interpretada por proteínas escritoras, borradoras y lectoras. Este sistema regulador puede influir en el procesamiento del ARN, la traducción y la degradación, y se ha relacionado su alteración con fenotipos malignos y respuesta al tratamiento14,15,16,17. La metiltransferasa similar a 3 (METTL3) es un componente catalítico del complejo escritor de m6A; sin embargo, una correlación entre METTL3 y FOXD1 por sí sola no puede demostrar una metilación directa o una regulación mediada por proteínas lectoras.
Hipotetizamos que METTL3 promueve la progresión del LUSC al mantener la expresión de FOXD1 mediante la regulación postranscripcional asociada a m6A. Al integrar especímenes clínicos pareados, dos líneas celulares tumorales, ensayos de pérdida de función y de rescate, análisis de estabilidad de ARN y proteínas, y un modelo de xenoinjerto con silenciamiento de FOXD1, este estudio proporciona un marco funcional para investigar la relación entre METTL3 y FOXD1, al tiempo que distingue la asociación de la metilación directa y específica de sitio.
Protocolo
La recolección de tejido humano se realizó de acuerdo con la Declaración de Helsinki y fue aprobada por el Comité de Revisión Institucional del Primer Hospital de la Universidad de Jilin (número de aprobación 2022-339; 22 de julio de 2022), y se obtuvo el consentimiento informado por escrito de todos los participantes. El protocolo con animales fue aprobado por el Comité de Manejo de Animales del Primer Hospital de la Universidad de Jilin (número de aprobación 2022-0015; 25 de enero de 2022) y se llevó a cabo de acuerdo con las directrices institucionales para el cuidado y uso de animales.
Sujetos del estudio
Los especímenes archivados comprendieron 12 tejidos primarios emparejados de LUSC y tejidos adyacentes no tumorales recolectados de pacientes que fueron sometidos a cirugía entre enero de 2019 y diciembre de 2020. Los pacientes elegibles tenían LUSC primario confirmado por estudios anatomopatológicos, sin metástasis documentada y sin tratamiento dirigido contra LUSC durante los 6 meses previos. Los casos se seleccionaron mediante una tabla de números aleatorios e incluyeron siete hombres y cinco mujeres con edades comprendidas entre 30 y 65 años. Se obtuvo el consentimiento informado por escrito de todos los participantes.
Líneas celulares
Las células epiteliales bronquiales humanas BEAS-2B (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) y células NCI-H226 (RRID: CVCL_1544) se obtuvieron del Banco de Células de la Academia China de Ciencias. Las células se mantuvieron en medio de Eagle modificado por Dulbecco que contenía 10% de suero bovino fetal y 1% de penicilina-estreptomicina a 37 °C en 5% de CO2. Los identificadores comerciales se consolidan en la Tabla de materiales adjunta.
Selección con ARN de interferencia pequeña y rescate
Se ensayaron tres ARN interferentes pequeños individuales dirigidos a FOXD1 o METTL3 en células SK-MES-1 y NCI-H226. La reducción se evaluó 48 h después de la transfección mediante PCR cuantitativa de transcripción reversa (qRT-PCR) e inmunotransferencia. Se utilizó el siRNA-1 de FOXD1 para los ensayos funcionales de FOXD1 posteriores porque produjo la mayor reducción en ambas líneas celulares. Los experimentos posteriores con METTL3 utilizaron el reactivo si-METTL3 seleccionado a partir del ensayo. El registro archivado no identifica un SmartPool ni conserva una secuencia o identificador de proveedor que pueda asignarse con certeza. Para los experimentos de rescate, las células recibieron el reactivo si-METTL3 seleccionado, el constructo de sobreexpresión de FOXD1, o ambos; la expresión y los fenotipos celulares se evaluaron 48 h después de la transfección.
Aislamiento de ARN y PCR cuantitativa en tiempo real
Se aisló ARN total de tejidos o células mediante un reactivo de fenol–guanidinio y se transcribió a reversa utilizando un kit comercial de transcripción inversa. La qRT-PCR se realizó con una mezcla maestra TB Green en un sistema de PCR en tiempo real (RRID: SCR_018051). Las secuencias de los cebadores se proporcionan en la Tabla 1. La expresión relativa se normalizó respecto a la gliceraldehído-3-fosfato deshidrogenasa (GAPDH). El ensamblaje de la reacción y el ciclo térmico siguieron el protocolo del fabricante para la mezcla maestra indicada.
Transferencia Western
Los tejidos o células se lisaron en tampón de ensayo de inmunoprecipitación con radioinmunoensayo (RIPA) que contenía inhibidores de proteasas. Cantidades equivalentes de proteína se separaron mediante electroforesis en gel de dodecilsulfato de sodio–poliacrilamida (SDS-PAGE) y se transfirieron a membranas de fluoruro de polivinilideno (PVDF). Las membranas se incubaron durante la noche a 4 °C con anticuerpos contra FOXD1 (1:1.000), METTL3 (1:1.000; RRID: AB_2142033) o GAPDH (1:2.000; RRID: AB_10622025), seguido de inmunoglobulina G anti-conejo conjugada con peroxidasa de rábano picante durante 1 h a temperatura ambiente. Las señales se revelaron mediante quimioluminiscencia mejorada, utilizando GAPDH como control de carga. La Tabla de materiales identifica los anticuerpos primarios comerciales y registra el reactivo secundario como un anticuerpo de detección de inmunoglobulina G anti-conejo.
Viabilidad celular y apoptosis
Para las mediciones de viabilidad, las células de LUSC control y transfectadas se sembraron en placas de 96 pocillos a 2.000 células por pocillo. A intervalos de 12 h, se añadieron 10 µL del reactivo del kit de conteo de células-8 por pocillo, las placas se incubaron durante 1 h a 37 °C y se registró la absorbancia a 450 nm. Para el análisis de apoptosis, se sembraron 1 × 10⁵ células por pocillo en placas de 6 pocillos y se analizaron a las 48 h posteriores a la transfección. Las células recolectadas se procesaron según las instrucciones del kit de anexina V–isotiocianato de fluoresceína (FITC)/yoduro de propidio (PI), se resuspendieron en 100 µL de tampón de unión, se tiñeron con 5 µL de cada reactivo durante 30 min a temperatura ambiente en la oscuridad y se analizaron mediante citometría de flujo dentro de las 4 h.
Migración en Transwell
Las células de LUSC transfectadas se colocaron en medio sin suero en la cámara superior del transwell; la cámara inferior contenía 500 µL de medio suplementado con 10% de suero bovino fetal. Después de 24 h, las células migradas se fijaron con paraformaldehído al 4% y se tiñeron con violeta de cristal durante 10 min. Las células no migradas en la superficie superior de la membrana se eliminaron con un hisopo de algodón. Las células migradas se capturaron mediante microscopía con configuraciones de adquisición idénticas y se cuantificaron con ImageJ (RRID: SCR_003070).
modificación de metilación m6A
La abundancia global de m6A se midió mediante un ensayo colorimétrico de metilación de ARN. Después de la extracción del ARN y la evaluación de su calidad, se aplicaron 200 ng de ARN a cada pocillo del ensayo. Se añadió el anticuerpo de captura (50 µL) durante 60 min a temperatura ambiente. Los pocillos se lavaron tres veces, se incubaron con 50 µL de anticuerpo de detección durante 30 min, se lavaron cuatro veces más y luego se incubaron con la solución de potenciación de señal durante 30 min. La absorbancia se midió a 450 nm. Todos los pasos siguieron las instrucciones del kit indicadas.
Detección de la estabilidad del ARNm
Las células LUSC se sembraron en placas de 6 pocillos y se transfectaron con ARN de interferencia pequeño de control negativo (si-NC) o con ARN de interferencia pequeño dirigido contra METTL3 (si-METTL3). A las 48 h, se agregó actinomicina D hasta una concentración de 5 µg/mL para detener la transcripción. Las células se recolectaron a las 0 h, 2 h, 4 h y 6 h, se aisló el ARN total y la abundancia del transcrito de FOXD1 se midió mediante qRT-PCR.
Cicloheximida (CHX) y ensayos con MG132
Para cada ensayo de punto final con inhibidores, se compararon células control vectorial no tratadas, células control vectorial tratadas con inhibidor y células que sobreexpresan METTL3 tratadas con inhibidor. Se utilizó MG132 a 10 µM y CHX a 20 µM; los lisados se recogieron tras 12 h para inmunotransferencia. Para el curso temporal con CHX, las células transfectadas con si-NC o si-METTL3 se trataron con 20 µM de CHX y se recogieron a las 0 h, 3 h, 6 h y 9 h. La abundancia de la proteína FOXD1 se midió mediante inmunotransferencia.
In vivo experimentos
A ratones BALB/c desnudos atímicos de cinco semanas de edad se les asignó aleatoriamente a los grupos de control negativo y de silenciamiento de FOXD1 con células SK-MES-1 (n = 8 ratones por grupo). A cada ratón se le administró una inyección subcutánea de aproximadamente 8 × 10⁶ células. La monitorización de los tumores comenzó una semana después del implante; el tamaño tumoral se registró cada 4 días durante 20 días consecutivos. Los ratones fueron sacrificados siguiendo los protocolos institucionales aprobados el día 27 después de la inoculación, inmediatamente después de la última medición, y los tumores fueron extirpados, pesados y fotografiados. Para la implantación se utilizaron poblaciones celulares estables de SK-MES-1 con silenciamiento de FOXD1 y sus controles negativos emparejados.
Inmunoquímica
Los tumores extirpados se incluyeron en parafina y se seccionaron a 4–5 µm. Las secciones se desparafinizaron, se rehidrataron, se incubaron durante la noche a 4 °C con el anticuerpo primario y luego se incubaron con el anticuerpo secundario adecuado durante 30 min. Las células positivas para el antígeno se visualizaron con un sustrato de diaminobencidina. Se evaluaron FOXD1 y Ki-67 en los xenoinjertos, con secciones apareadas procesadas en el mismo lote de tinción y capturadas con configuraciones de adquisición idénticas.
Análisis estadístico
Los análisis se realizaron con GraphPad Prism versión 8 (RRID: SCR_002798) y R (RRID: SCR_001905). Las comparaciones entre dos grupos utilizaron la prueba t de Student, y las comparaciones que incluían más de dos grupos utilizaron análisis de varianza. Los análisis emparejados de tejidos humanos utilizaron 12 pares de pacientes; los resúmenes in vitro representan tres experimentos biológicos independientes; los análisis de xenoinjertos utilizaron ocho ratones por grupo. Los réplicas técnicas no se consideraron observaciones independientes. Los datos se presentan como media ± desviación estándar. Se consideró estadísticamente significativo un valor de P bilateral < 0,05.
Resultados
La expresión de FOXD1 está elevada en tejidos humanos de CME
Una consulta de análisis interactivo de perfiles de expresión génica (GEPIA) mostró una mayor abundancia de transcritos de FOXD1 en LUSC en comparación con muestras pulmonares normales, mientras que la comparación con adenocarcinoma de pulmón no alcanzó significancia (Figura 1A). El análisis de 12 tejidos emparejados de LUSC y tejidos adyacentes no tumorales mostró la misma dirección del cambio mediante qRT-PCR e inmunotransferencia (Figura 1B,C). La tinción inmunohistoquímica también mostró una señal de FOXD1 más intensa en secciones tumorales que en tejido adyacente emparejado (Figura 1D).
La inhibición de FOXD1 reduce la viabilidad y la migración, y aumenta la apoptosis en células de LUSC
La abundancia del ARN mensajero de FOXD1 fue mayor en las células SK-MES-1 y NCI-H226 que en las células BEAS-2B (Figura 2A). Se evaluaron tres ARN de interferencia pequeños dirigidos contra FOXD1; el siARN-1 produjo la mayor reducción detectada mediante qRT-PCR y western blotting, y se seleccionó para los ensayos posteriores (Figura 2B,C). En comparación con el control negativo, el silenciamiento de FOXD1 redujo la señal del kit de conteo celular CCK-8 (Figura 2D), aumentó el número de células positivas para Annexina V (Figura 2E) y disminuyó la migración en Transwell (Figura 2F) en ambas líneas celulares de carcinoma de células escamosas pulmonares. Se utilizó un único reactivo seleccionado, por lo que los resultados funcionales no constituyen una exclusión independiente de la secuencia respecto a efectos fuera de blanco.
La expresión de METTL3 se correlaciona con FOXD1 en muestras de CUP
La metilación m6A es una modificación química dinámica y reversible ampliamente presente en eucariotas, que es regulada por metiltransferasas y desmetilasas, y es reconocida y procesada por proteínas que se unen a m6A18. La señal global de m6A fue mayor en los 12 tejidos de LUSC que en los tejidos adyacentes apareados, y también fue mayor en ambas líneas celulares de LUSC que en las células BEAS-2B (Figura 3A). Los transcritos que codifican METTL3, METTL14, WTAP y RBM15 aumentaron en las muestras tumorales apareadas (Figura 3B). Tanto en los datos de GEPIA como en el conjunto de 12 tumores, FOXD1 mostró su asociación positiva más clara con METTL3; la asociación con RBM15 fue más débil (Figura 3C,D). El análisis por inmunotransferencia mostró además una mayor abundancia de METTL3 en los tejidos tumorales (Figura 3E). Estos análisis establecen una co-variación, no una regulación directa.
La reducción de METTL3 altera la abundancia de FOXD1 y los fenotipos de células de CUSP
Se ensayaron tres ARN de interferencia pequeños dirigidos contra METTL3 en células SK-MES-1 y NCI-H226 mediante qRT-PCR y transferencia western (Figura 4A,B). La reducción de METTL3 disminuyó la señal global de m6A (Figura 4C). La sobreexpresión de FOXD1 incrementó FOXD1 sin aumentar METTL3 (Figura 4D), y el experimento de rescate de cuatro grupos confirmó una menor abundancia de FOXD1 tras la reducción de METTL3 y su restauración mediante el constructo de FOXD1 (Figura 4E,F). La reducción de METTL3 disminuyó la viabilidad y la migración, y aumentó la apoptosis; la reexpresión de FOXD1 se opuso parcialmente a estos cambios (Figura 4G–I). Por lo tanto, los datos de rescate son consistentes con un papel de FOXD1 actuando aguas abajo de METTL3 en células en cultivo.
La perturbación de METTL3 se asocia con la estabilidad del ARN y de la proteína FOXD1
Creciente evidencia sugiere que la modificación de ARNm por m6A regula diversos aspectos del ciclo del ARNm, incluyendo el empalme de pre-ARNm, la traducción, la exportación nucleocitoplasmática, la degradación y el empalme19,20. SRAMP identificó motivos candidatos de m6A en el ARN de FOXD1, y m6A2Target listó a METTL3 como una enzima escritora predicha asociada a FOXD1 en células H1299 (Figura 5A,B). Estas salidas de bases de datos generan hipótesis, pero no demuestran unión ni metilación específica en sitios en células de LUSC. Tras el bloqueo transcripcional con actinomicina D, el ARN de FOXD1 disminuyó más rápidamente tras el silenciamiento de METTL3 que en células control (Figura 5C). La abundancia de FOXD1 fue mayor en células que sobreexpresan METTL3 tratadas con MG132 que en controles vectoriales tratados con MG132, mientras que este patrón no se observó tras el tratamiento con CHX (Figura 5D,E). El curso temporal con CHX mostró una pérdida más rápida de la proteína FOXD1 tras el silenciamiento de METTL3 (Figura 5F). En conjunto, estos ensayos son consistentes con cambios asociados a METTL3 en la estabilidad del ARN y la proteína FOXD1, pero no identifican la adenosina modificada, no demuestran unión directa ni definen un lector de m6A.
La inhibición de FOXD1 suprime el crecimiento del xenoinjerto de LUSC
Para evaluar la función de FOXD1 in vivo, se implantaron células control y células SK-MES-1 con silenciamiento de FOXD1 subcutáneamente en ratones desnudos (n = 8 por grupo). A partir de la primera semana tras el implante, los tumores se midieron cada 4 días durante 20 días y se recolectaron el día 27 después de la inoculación. Los tumores extirpados fueron más pequeños en el grupo con silenciamiento de FOXD1 (Figura 6A), sus curvas de crecimiento aumentaron más lentamente (Figura 6B) y sus pesos finales fueron menores (Figura 6C). La tinción de FOXD1 y Ki-67 también se redujo en los tumores con silenciamiento (Figura 6D). Estos experimentos evalúan únicamente el silenciamiento de FOXD1; no evalúan la inhibición de METTL3 in vivo.
En conjunto, FOXD1 se sobreexpresó en tejidos y células de carcinoma de células escamosas de pulmón y promovió la proliferación, migración y crecimiento de xenoinjertos. La inhibición de METTL3 redujo los niveles globales de m6A, disminuyó la expresión de FOXD1 y alteró los fenotipos celulares malignos, mientras que la reexpresión de FOXD1 revirtió parcialmente estos efectos. Los ensayos de estabilidad respaldan la regulación postranscripcional de FOXD1 asociada a METTL3, pero no establecen una metilación directa y específica en sitios determinados ni la recuperación in vivo de la vía completa. El diseño del estudio se resume en la Figura 7.
DISPONIBILIDAD DE LOS DATOS:
Todos los datos analizados en este estudio se incluyen en el artículo y sus figuras. Los datos numéricos desidentificados que sustentan los resúmenes informados están disponibles a solicitud razonable del autor correspondiente, sujeto a los requisitos institucionales de gobernanza y de protección de los participantes. No se utilizaron archivos de simulación ni código personalizado de análisis.
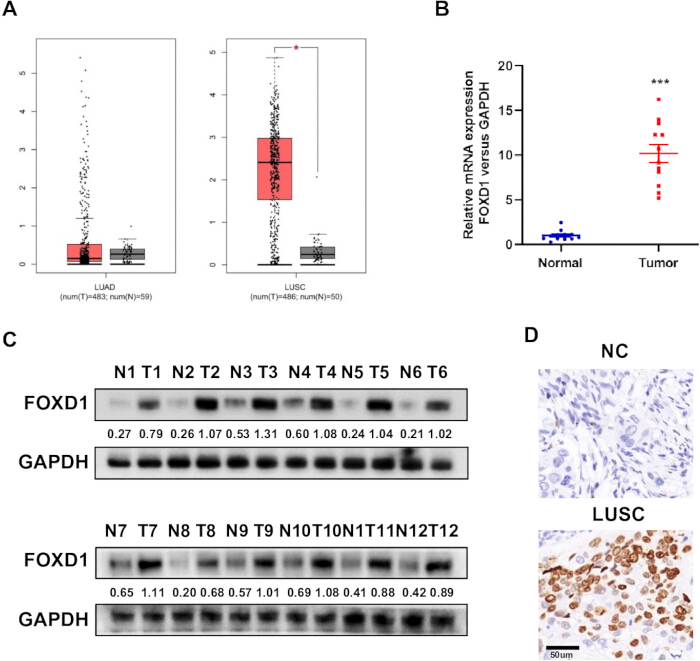
Figura 1: Expresión de FOXD1 en muestras de cáncer de pulmón humano. (A) Comparación mediante GEPIA de la abundancia de transcritos de FOXD1 en adenocarcinoma de pulmón (LUAD) y carcinoma de células escamosas de pulmón (LUSC) frente a muestras normales de pulmón. (B) Abundancia de transcritos de FOXD1 en 12 tejidos emparejados de LUSC y tejidos adyacentes no tumorales. (C) Abundancia de proteína FOXD1 en los mismos tejidos emparejados. (D) Inmunohistoquímica representativa de FOXD1. Tejido humano n = 12 pares; la repetición técnica al estilo in vitro no cambia el valor de n a nivel de paciente. Barra de escala en el panel D = 50 µm. ***P < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
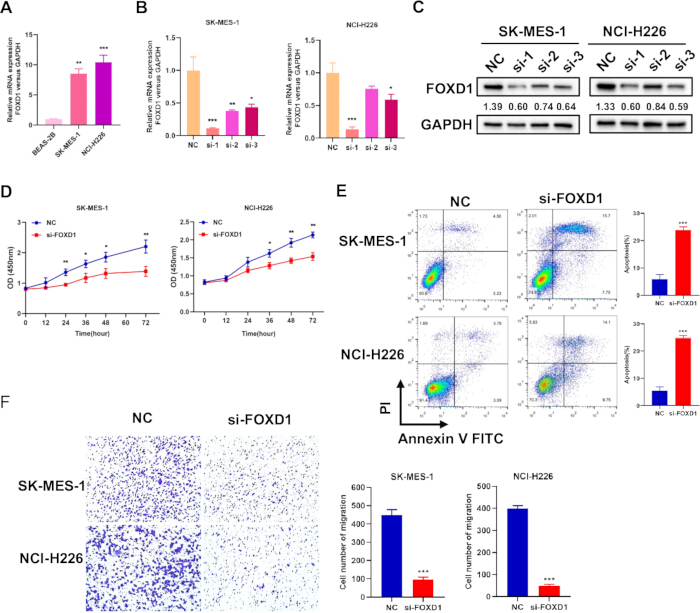
Figura 2: Efectos del silenciamiento de FOXD1 en células SK-MES-1 y NCI-H226. (A) Abundancia del transcrito de FOXD1 en células BEAS-2B, SK-MES-1 y NCI-H226. (B) Análisis por qRT-PCR de tres ARN interferentes pequeños dirigidos contra FOXD1 a las 48 h posteriores a la transfección. (C) Análisis por inmunotransferencia de los mismos tres ARN interferentes pequeños dirigidos contra FOXD1. (D) Ensayo con el kit de conteo celular-8 tras el silenciamiento de FOXD1. (E) Análisis de apoptosis mediante V-FITC/ioduro de propidio a las 48 h. (F) Migración en Transwell medida a las 24 h posteriores a la siembra de las células transfectadas; las imágenes archivadas del campo de visión se presentan sin barra de escala retrospectiva debido a la indisponibilidad de metadatos de calibración. Se realizaron tres experimentos biológicos independientes. *P < 0,05; **P < 0,01; ***P < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
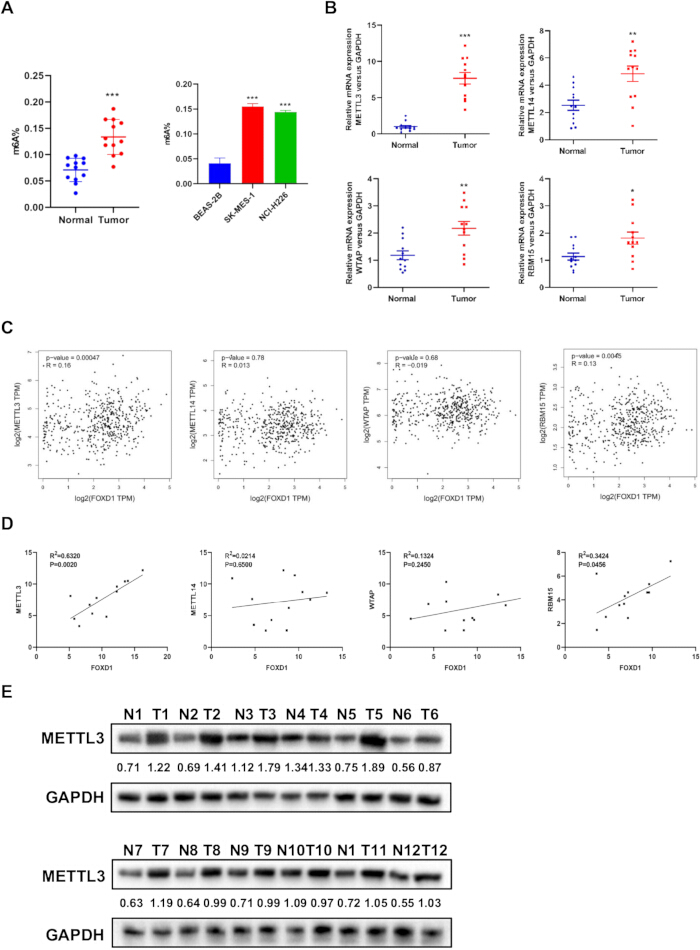
Figura 3: N6-metiladenosina global y la asociación entre METTL3 y FOXD1. (A) Señal global de m6A en tejidos apareados y en las células BEAS-2B, SK-MES-1 y NCI-H226. (B) Transcritos de METTL3, METTL14, WTAP y RBM15 en 12 pares de tejidos de carcinoma escamoso de pulmón (LUSC) y tejidos adyacentes. (C) Correlaciones GEPIA entre FOXD1 y cada enzima metiltransferasa. (D) Correlaciones entre FOXD1 y los transcritos de las enzimas metiltransferasas en 12 tumores de LUSC. (E) Proteína METTL3 en tejidos de LUSC y tejidos adyacentes apareados. Número de pares de tejidos humanos: n = 12; los ensayos en células representan tres experimentos biológicos independientes. *P < 0,05; **P < 0,01; ***P < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
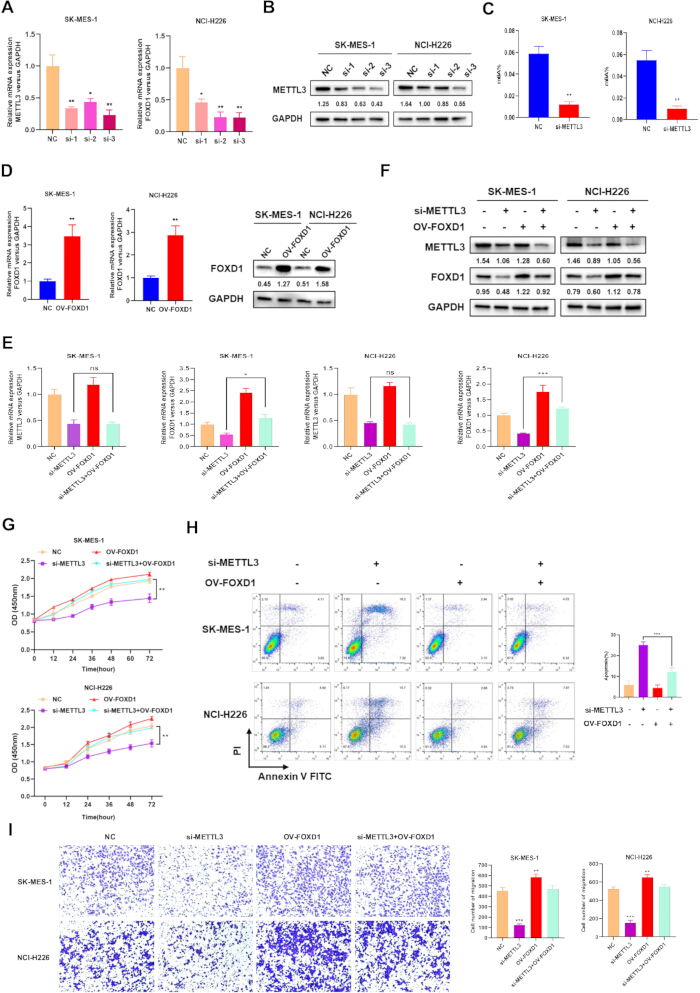
Figura 4: Silenciamiento de METTL3, rescate de FOXD1 y fenotipos de células de LUSC. (A) Análisis por qRT-PCR de tres ARN interferentes pequeños dirigidos contra METTL3 a las 48 h tras la transfección. (B) Análisis por inmunotransferencia de los mismos tres ARN interferentes pequeños dirigidos contra METTL3. (C) Señal global de m6A tras el silenciamiento de METTL3. (D) Abundancia del ARN mensajero y de la proteína FOXD1 tras la sobreexpresión de FOXD1. (E) Abundancia de los transcritos de METTL3 y FOXD1 en condiciones de control, si-METTL3, ov-FOXD1 y si-METTL3 + ov-FOXD1 combinadas, medida por qRT-PCR. (F) Abundancia proteica de METTL3 y FOXD1 en los mismos grupos de rescate medida por inmunotransferencia. (G) Ensayo con el kit Cell Counting Kit-8. (H) Apoptosis mediante citometría de flujo. (I) Migración en Transwell. Se realizaron tres experimentos biológicos independientes. Los números bajo las bandas de inmunotransferencia indican las relaciones normalizadas de proteína diana/GAPDH. ns, no significativo; *P < 0,05; **P < 0,01; ***P < 0,001. Haga clic aquí para ver una versión ampliada de esta figura.
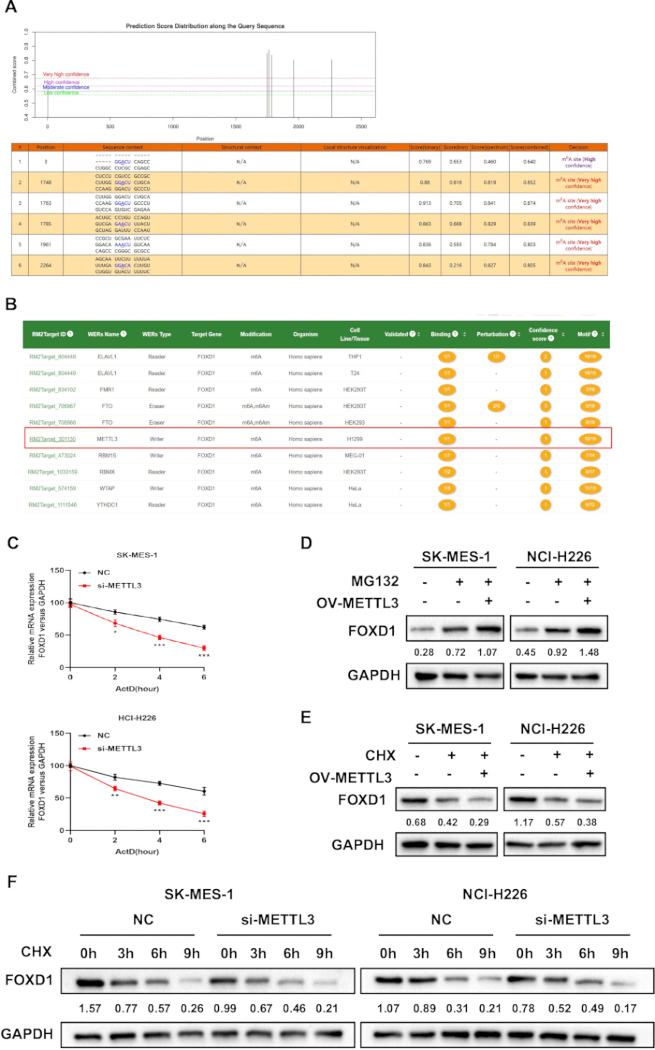
Figura 5: METTL3 está asociado con la regulación del ARNm y la proteína FOXD1. (A) Sitios predichos por SRAMP de N6-metiladenosina dentro del ARNm de FOXD1. (B) Predicción mediante m6A2Target que identifica a METTL3 como un escritor candidato asociado con FOXD1. (C) Abundancia relativa de ARNm de FOXD1 tras el tratamiento con actinomicina D a 5 µg/mL en células con control negativo y células con reducción de METTL3 a las 0 h, 2 h, 4 h y 6 h. (D) Abundancia de la proteína FOXD1 en células con vector de control sin tratar, células con vector de control tratadas con MG132 y células que sobreexpresan METTL3 tratadas con MG132 (10 µM MG132). (E) Abundancia de la proteína FOXD1 en células con vector de control sin tratar, células con vector de control tratadas con CHX y células que sobreexpresan METTL3 tratadas con CHX (20 µM CHX). (F) Expresión de la proteína FOXD1 tras el tratamiento con CHX a 20 µM durante 0 h, 3 h, 6 h y 9 h en células con control negativo y células con reducción de METTL3. GAPDH sirvió como control de carga. Los experimentos en células se realizaron en tres réplicas biológicas independientes. Las transferencias mostradas son representativas; los números debajo de las bandas indican las relaciones normalizadas de FOXD1/GAPDH. *P < 0,05; **P < 0,01; ***P < 0,001. Haga clic aquí para ver una versión ampliada de esta figura.
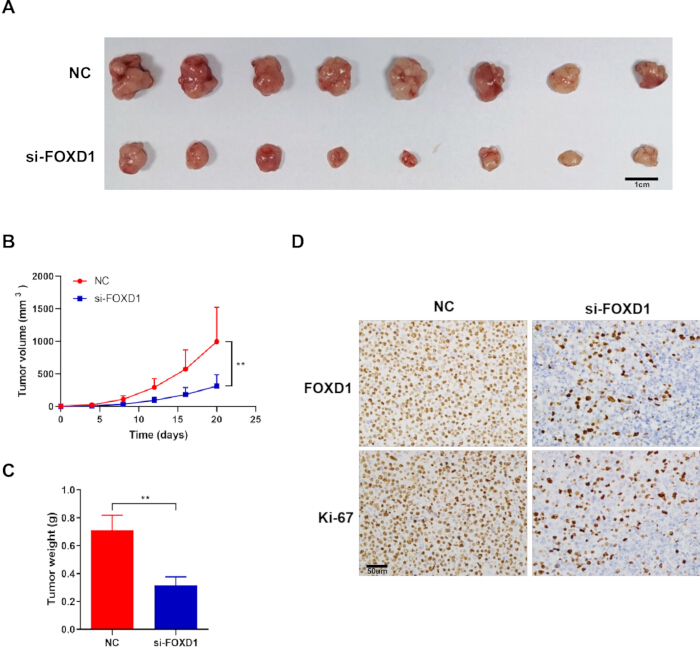
Figura 6: La inhibición de FOXD1 suprime el crecimiento del xenoinjerto SK-MES-1. (A) Tumores extirpados de los grupos control negativo y con inhibición de FOXD1; barra de escala = 1 cm. (B) Crecimiento tumoral medido cada 4 días durante 20 días, comenzando una semana después del implante, con recolección al día 27 tras la inoculación. (C) Peso tumoral en el momento de la recolección. (D) Inmunohistoquímica representativa de FOXD1 y Ki-67 en tejido de xenoinjerto; barra de escala = 50 µm. n = 8 ratones por grupo; **P < 0,01. Haga clic aquí para ver una versión ampliada de esta figura.
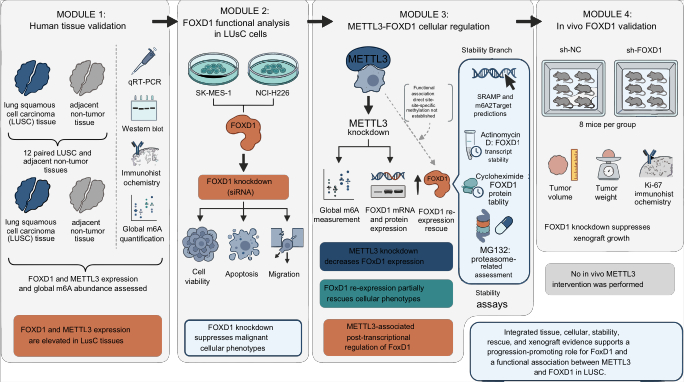
Figura 7: Diseño general del estudio y límites de la evidencia. Se utilizaron tejidos de CUSC pareados (n = 12 pares) y líneas celulares para el perfilado de FOXD1, METTL3 y m6A global; después de la perturbación genética y el rescate se realizaron ensayos de viabilidad, apoptosis, migración y estabilidad. Se monitoreó durante 20 días un modelo de xenoinjerto con silenciamiento de FOXD1 (n = 8 ratones por grupo). El diagrama distingue la evidencia basada en células para METTL3 de la evidencia específica de FOXD1 in vivo e identifica la unión directa, el m6A sitio-específico, la identidad del lector y la actividad de METTL3 in vivo como aspectos no probados. Haga clic aquí para ver una versión más grande de esta figura.
| Gen | Sentido | Secuencia (5′–3′) |
| FOXD1 | Directo | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Reverso | CGGAATCGGACGCAAGTCTT |
| GAPDH | Directo | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Reverso | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Directo | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Reverso | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Directo | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Reverso | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Directo | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Reverso | CACTTAAAACACCGGCATTGG |
| WTAP | Directo | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Reverso | CTGCTGGACTTGCTTGAGGTAC |
Tabla 1: Secuencias de cebadores para la reacción en cadena de la polimerasa con transcripción inversa cuantitativa. Las secuencias se indican en la dirección 5′–3′.
Discusión
El presente flujo de trabajo respalda un papel de FOXD1 en el carcinoma de pulmón de células escamosas (LUSC) en tejidos apareados, dos líneas celulares y un modelo de xenoinjerto. FOXD1 presentó niveles más altos en muestras tumorales y en células de LUSC, y su agotamiento redujo la viabilidad y la migración, mientras que aumentó la apoptosis. Estos hallazgos coinciden con informes que vinculan a FOXD1 con el crecimiento, la invasión, la resistencia a la terapia y resultados adversos en varios tipos de cáncer 10,11,12,13,21,22,23,24,25,26,27,28. Asimismo, estos resultados amplían observaciones previas en LUSC al conectar fenotipos basados en células con un experimento de xenoinjerto con silenciamiento de FOXD1.
Los análisis emparejados de tejidos y células vincularon además la abundancia de FOXD1 con METTL3 y la m6A global. Cuatro genes escritores estuvieron elevados en los 12 pares de tumores, pero METTL3 mostró la asociación positiva más fuerte con FOXD1. En células cultivadas, la reducción de METTL3 disminuyó la m6A global y la abundancia de FOXD1, y la reexpresión de FOXD1 recuperó parcialmente los fenotipos asociados de viabilidad, apoptosis y migración. Estos datos respaldan una relación funcional entre METTL3 y FOXD1 en las células analizadas, lo que es consistente con la amplia influencia de la regulación de la m6A en fenotipos malignos29,30,31,32,33,34,35,36.
Varios puntos del protocolo son importantes para la reproducibilidad. La eficiencia del silenciamiento debe confirmarse en cada línea celular antes de realizar los ensayos funcionales, y las condiciones de rescate deben verificar la restauración de FOXD1 sin interpretar el constructo como una sobreexpresión de METTL3. Los tratamientos con actinomicina D, CHX y MG132 deben utilizar las concentraciones y tiempos de muestreo indicados en el protocolo. En los ensayos Transwell, se debe controlar la densidad celular, el gradiente de suero y un campo de imagen consistente. Si un investigador adapta el procedimiento, puede ser preferible utilizar ARN corto en horquilla estable o edición genómica para experimentos in vivo de larga duración, aunque estas alternativas requieren una validación independiente.
El estudio tiene varias limitaciones. La cohorte humana constó de 12 muestras emparejadas y no fue diseñada para modelado de resultados. Solo se utilizó un pequeño ARN de interferencia seleccionado en los ensayos funcionales, por lo que no se logró una validación independiente de efectos fuera del blanco. La interpretación del Western blot se limita a los valores normalizados mostrados en las figuras; no se realizó prueba inferencial post hoc. Las predicciones de SRAMP y m6A2Target, las mediciones globales de m6A y los ensayos de estabilidad no sustituyen al inmunoprecipitado de ARN, inmunoprecipitado de ARN metilado, mutagénesis dirigida a sitio o rescate específico de lectores. METTL3 no se alteró in vivo, por lo que los datos de xenoinjertos no pueden respaldar una afirmación sobre METTL3 in vivo.
Los estudios futuros deben evaluar la inhibición farmacológica de METTL3, mapear los sitios de m6A asociados a FOXD1 y su unión directa, identificar la proteína lectora relevante y repetir la estrategia de rescate in vivo. También se requeriría una cohorte más grande y anotada independientemente para evaluar los resultados clínicos. Dentro de su alcance actual, el estudio respalda a FOXD1 como un regulador funcional del LUSC y proporciona evidencia basada en células de que METTL3 influye en la abundancia de FOXD1; sin embargo, no establece una vía completa METTL3-m6A-lector-FOXD1.
Divulgaciones
Los autores declaran que no tienen ningún conflicto de intereses.
Autor Contribuciones:
D.A. y Q.D. contribuyeron a la recopilación de datos y a la obtención de información clínica. K.W. y S.F. realizaron experimentos de biología molecular y análisis de datos. L.G. participó en el diseño del estudio y en la interpretación de los datos. H.Z. realizó el análisis estadístico y ayudó en la validación de los datos. Y.S. llevó a cabo los experimentos con animales y el análisis inmunohistoquímico. Q.P. contribuyó a los ensayos de migración y a los recursos experimentales. G.L. concibió y supervisó el estudio, y redactó el manuscrito. Todos los autores revisaron, modificaron y aprobaron el manuscrito.
Agradecimientos
Los autores agradecen a Zhe Tang y Yan Zhang por la asistencia técnica en la reacción en cadena de la polimerasa cuantitativa y en el inmunoblot, respectivamente, y a Yang Li por la asistencia en los ensayos de viabilidad celular y apoptosis. Esta investigación fue financiada por la Fundación de Ciencias Naturales de la Región Autónoma de Tíbet (No. XZ202001ZR0040G).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Sistema 7500 Fast de PCR en tiempo real | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Actinomicina D | Sigma-Aldrich | SBR00013 | Ensayo de estabilidad de ARN, 5 µg/mL |
| Kit de apoptosis Annexina V-FITC/PI | BD Biosciences | 556547 | Apoptosis por citometría de flujo |
| Ratones desnudos BALB/c atímicos | N/A | N/A | Xenoinjerto subcutáneo |
| BEAS-2B | Banco de Células de la Academia China de Ciencias | https://www.cellosaurus.org/CVCL_0168 | Epitelio bronquial de referencia no tumoral; RRID: CVCL_0168 |
| Kit de conteo celular-8 | Beyotime | C0037 | Viabilidad celular |
| Violeta de cristal | N/A | N/A | Tinción en Transwell, 10 min |
| Cicloheximida | MedChemExpress | HY-12320 | Ensayos de estabilidad proteica, 20 µM |
| Kit de sustrato DAB | N/A | N/A | Visualización por inmunohistoquímica |
| Medio de Eagle modificado por Dulbecco | Gibco | 11995065 | Cultivo celular |
| Reactivo de quimioluminiscencia mejorado | Thermo Fisher Scientific | A38556 | Detección por inmunotransferencia |
| Suero bovino fetal | Gibco | 10091148 | Cultivo celular, 10% |
| Citómetro de flujo | N/A | N/A | Medición de apoptosis |
| Anticuerpo contra FOXD1 | Thermo Fisher Scientific | PA5-27142 | Inmunotransferencia, 1:1.000; inmunohistoquímica |
| Constructo de sobreexpresión de FOXD1 | N/A | N/A | Rescate de FOXD1 |
| Anticuerpo contra GAPDH | Cell Signaling Technology | 5174 | Control de carga en inmunotransferencia, 1:2.000 (RRID: AB_10622025) |
| GEPIA | Universidad de Pekín | http://gepia.cancer-pku.cn/ | Consultas de expresión y correlación; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Version 8 | Análisis estadístico; RRID: SCR_002798 |
| Inmunoglobulina G anti-conejo conjugada con peroxidasa de rábano picante | N/A | N/A | Inmunotransferencia, 1 h a temperatura ambiente |
| ImageJ | Institutos Nacionales de Salud | https://imagej.nih.gov/ij/ | Cuantificación de imágenes de migración; RRID: SCR_003070 |
| Anticuerpo contra Ki-67 | N/A | N/A | Inmunohistoquímica en xenoinjerto |
| m6A2Target | Recurso web | http://m6a2target.canceromics.org/ | Predicción de asociación regulador-objetivo de m6A |
| Anticuerpo contra metiltransferasa similar a 3 | Proteintech | 15073-1-AP | Inmunotransferencia, 1:1.000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Ensayo de inhibición del proteasoma, 10 µM |
| Ensayo colorimétrico de N6-metiladenosina | Epigentek | P-9005-96 | Medición global de m6A |
| NCI-H226 | Banco de Células de la Academia China de Ciencias | https://www.cellosaurus.org/CVCL_1544 | Modelo celular de CUSP; RRID: CVCL_1544 |
| Microscopio Olympus | Olympus | Modelo no registrado | Imagen en Transwell |
| Penicilina-estreptomicina | Gibco | 10378016 | Cultivo celular, 1% |
| Membrana de fluoruro de polivinilideno | Merck | IPVH00010 | Transferencia en inmunotransferencia |
| Kit de reactivos de transcripción inversa PrimeScript | Takara | RR037A | Síntesis de ADN complementario |
| Proyecto R para computación estadística | Foundation R | https://www.r-project.org/ | Análisis estadístico; RRID: SCR_001905 |
| Tampón de lisis para ensayo de inmunoprecipitación con radioetiquetado | Beyotime | P0013B | Extracción de proteínas |
| RNAiso Plus | Takara | 9108 | Extracción de ARN |
| Reactivo de ARNip | N/A | N/A | Silenciamiento de FOXD1 y METTL3; seleccionado siRNA-1 |
| SK-MES-1 | Banco de Células de la Academia China de Ciencias | https://www.cellosaurus.org/CVCL_0630 | Modelo celular y de xenoinjerto de CUSP; RRID: CVCL_0630 |
| SRAMP | Recurso web | http://www.cuilab.cn/sramp | Predicción de sitios candidatos de m6A en FOXD1 |
| Mezcla maestra TB Green para PCR | Takara | RR820A | qRT-PCR |
| Reactivo de transfección | N/A | N/A | Entrega de ARNip y plásmidos |
| Insertos Transwell | N/A | N/A | Ensayo de migración |
Referencias
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.