Presentamos un protocolo de depleción por emisión estimulada tridimensional (STED 3D) que combina ensayos de absorción y perturbación farmacológica para visualizar el tráfico de proteínas de membrana en discos imaginales de ala de Drosophila intactos con superresolución casi isotrópica.
Artículo de método
Visualización del tráfico de proteínas en contexto de tejido completo mediante nanoscopía de superresolución en Drosophila
En este artículo
Resumen
Resumen
La mosca del vinagre Drosophila melanogaster se utiliza ampliamente para estudiar vías de señalización celular y desarrollo conservadas in vivo. Muchas de estas vías de señalización, incluida la señalización Wnt, dependen de eventos de secreción, endocitosis y tráfico intracelular estrictamente regulados. Sin embargo, visualizar la dinámica de proteínas asociadas a la membrana dentro de tejidos epiteliales intactos, como los discos imaginales de ala, sigue siendo un desafío debido al pequeño tamaño y la organización columnar densamente empaquetada de estas células. Aquí presentamos un protocolo que combina la nanoscopía de agotamiento por emisión estimulada tridimensional (3D STED) con ensayos de captación y perturbaciones farmacológicas en discos imaginales de ala de Drosophila. Este flujo de trabajo permite la obtención de imágenes con superresolución de la dinámica de proteínas asociadas a la membrana dentro de la arquitectura tisular intacta, con resolución casi isotrópica. Utilizando como ejemplo células secretoras de Wingless, visualizamos la localización y el tráfico de Wingless (Wg) en la membrana apical. Para analizar procesos dinámicos de tráfico, el flujo de trabajo de imágenes se combina con un ensayo de captación que marca selectivamente las proteínas que experimentan secreción y reinternalización dentro de una ventana de tiempo definida. En combinación con inhibidores químicos y visualización mediante nanoscopía 3D STED, este enfoque permite el análisis funcional de la dinámica del tráfico de membrana. En conjunto, este flujo de trabajo proporciona un marco versátil para estudiar la organización de la membrana y el tráfico de proteínas a resolución subcelular en muestras tisulares completas de Drosophila.
Introducción
La mosca del vinagre Drosophila melanogaster es un organismo modelo ampliamente utilizado en biología del desarrollo, evolución, comportamiento e investigación biomédica, incluido el estudio del cáncer y otras enfermedades humanas1,2. Muchas vías fundamentales de señalización celular están altamente conservadas entre Drosophila y los vertebrados, lo que hace que este sistema modelo sea particularmente valioso para investigar mecanismos biológicos conservados in vivo.
En este protocolo, el disco imaginario del ala de Drosophila se utiliza como un sistema modelo para estudiar la dinámica asociada a la membrana en la vía de señalización Wingless (Wg)/Wnt. Muchas vías de señalización del desarrollo dependen de la secreción, la localización en la membrana, la endocitosis y el tráfico intracelular de moléculas señalizadoras, procesos todos ellos estrictamente regulados3. Este también es el caso en el límite dorsoventral (DV) del disco imaginario del ala, donde Wg es secretado por las células productoras desde la membrana apical y transportado a células vecinas receptoras mediante interacciones con glicoproteínas4,5,6,7. En las células receptoras, Wg se une a los receptores Frizzled y activa la señalización Wnt downstream. Además del grupo de Wg que es transportado lejos del límite DV, una fracción de Wg es reinternalizada por las células productoras y dirigida a través del sistema endosomal hacia destinos intracelulares específicos8,9,10. Por lo tanto, las células productoras de Wg en el límite DV proporcionan un excelente modelo para investigar el tráfico de membrana, la dinámica de la secreción y los mecanismos celulares que regulan la actividad de señalización in vivo.
Sin embargo, la arquitectura altamente columnar de las células epiteliales de los discos imaginales dificulta la visualización, ya que requiere una resolución más alta y más isotrópica de la que puede proporcionar la microscopía confocal convencional para resolver vesículas individuales. Para superar estas limitaciones, optimizamos las condiciones de preparación de tejidos, tinción y adquisición de imágenes para la nanoscopía de superresolución en tejidos intactos de Drosophila. Específicamente, establecimos un protocolo para la nanoscopía tridimensional por agotamiento estimulado de emisión (3D STED) que permite la visualización ortogonal de la localización de proteínas asociadas a la membrana a lo largo del eje apical-basal del epitelio11,12. La técnica 3D STED es particularmente adecuada para esta aplicación porque ofrece una mejor resolución axial en comparación con la microscopía confocal convencional, lo que permite visualizar estructuras subcelulares finas en tejidos densamente empaquetados13,14. Mediante este enfoque, analizamos la región de la membrana apical de células secretoras de Wg en el límite DV del disco imaginal del ala y detectamos Wg en la membrana apical junto con otras proteínas asociadas a la membrana, como Discs large 1 (Dlg1) o Evenness interrupted/Wntless (Evi/Wls).
Para investigar más a fondo la dinámica del tráfico proteico, este flujo de trabajo de imágenes se combinó con un ensayo de captación previamente establecido15. Este ensayo permite la detección selectiva de proteínas que han experimentado secreción y posterior re-internalización dentro de un intervalo de tiempo definido, visualizando así un grupo dinámico de proteínas que transitan a través de la membrana plasmática. Para ampliar su utilidad, el ensayo de captación se combinó con perturbaciones farmacológicas, lo que permite analizar cómo procesos celulares específicos influyen en la dinámica del tráfico de membrana. Juntos, estos enfoques proporcionan un marco potente para estudiar los mecanismos de tráfico proteico, secreción y señalización en su contexto tisular nativo con alta resolución espacial.
Además, el protocolo es compatible con una amplia variedad de enfoques de tinción, incluidos los protocolos estándar de inmunofluorescencia. También es factible la incorporación de colorantes fluorescentes, lo que amplía aún más el rango de estructuras celulares y dianas moleculares que pueden visualizarse. En todos los casos, los fluoróforos deben seleccionarse teniendo en cuenta su compatibilidad con la nanoscopía STED. Aunque el presente protocolo se centra en la imagen 3D STED de dos colores (rojo y rojo lejano), el flujo de trabajo puede adaptarse fácilmente a fluoróforos adicionales y configuraciones de imagen alternativas, aumentando así su flexibilidad para diversas aplicaciones experimentales.
En conjunto, este protocolo establece un marco versátil para combinar la nanoscopía de superresolución STED con enfoques de perturbación funcional en tejidos intactos de Drosophila. El flujo de trabajo proporciona una base para estudios futuros que investiguen la organización de membranas, el tráfico de proteínas y la dinámica de señalización con resolución subcelular dentro de entornos tisulares complejos.
Protocolo
1. Ensayo combinado de tratamiento con inhibidores ex vivo y de captación
NOTA: Consulte la Tabla de materiales para obtener información detallada sobre los productos químicos y materiales utilizados.
- Preparación del medio y de las soluciones
- Preparar medio SchM+.
- Añada 4% de suero bovino fetal (FBS) al medio para insectos de Schneider y mezcle bien.
NOTA: El medio SchM+ debe prepararse fresco el día del experimento.
- Añada 4% de suero bovino fetal (FBS) al medio para insectos de Schneider y mezcle bien.
- Preparar 1× PBS-T
- Añada 0.1% de Triton X-100 a 1× salina tamponada con fosfato (PBS) y mezclar bien.
- Preparar soluciones de compuestos químicos.
ADVERTENCIA: Muchos de los siguientes compuestos químicos se consideran citotóxicos, por lo que es esencial manipularlos con cuidado bajo una campana extractora, utilizando equipo adecuado y disposición segura de desechos.- Dynasor2-24: Disuelva Dynasor2-24 (también conocido como Dyngo-4a) en dimetilsulfóxido (DMSO), según las instrucciones del fabricante, para preparar una solución stock de 10 mM. Para el tratamiento, diluya la solución stock 1:1000 o 1:2000 en SchM+ para obtener concentraciones finales de 10 µM o 5 µM, respectivamente.
- Control de DMSO: Diluir DMSO 1:1000 en SchM+ y utilizar 200 µL como control negativo en cada experimento.
- Preparar tampón ácido para el ensayo de absorción.
- Preparar una solución de 0,1 M de glicina en dH₂O2O.
- Ajustar el pH a 3,5 con HCl al 37%.
- Preparar medio SchM+.
- Recolección de muestras
- Mantenga las moscas en 25 °C con un ciclo luz/oscuridad de 12/12 h.
- Recoger larvas en estadio L3 (estadio larval 3) de los viales utilizando pinzas y colocarlas en una placa de vidrio para tinción de 12 pocillos, cada uno lleno con SchM+.
NOTA: Prepare suficiente tejido para incluir siempre muestras de control en cada réplica experimental. - Abrir las larvas en el extremo posterior e invertirlas.
- Retire el intestino y el cuerpo graso del tejido larval invertido tan completamente como sea posible, manteniendo el tejido sumergido en SchM+.
- Luego, transfiera el tejido a un tubo de PCR de 0,2 mL que contenga SchM+.
NOTA: colocamos solo 6-7 larvas invertidas por tubo de reacción en cadena de la polimerasa (PCR) para garantizar la inmersión completa y el movimiento libre del tejido.
NOTA: Se debe evitar llenar en exceso el tubo con tejido para prevenir artefactos durante la tinción. Consulte el Tabla de materiales para información detallada sobre los productos químicos y materiales utilizados en este estudio.
- Ex vivo tratamiento con inhibidor y ensayo de captación
- Retire el medio SchM+ de la muestra.
- Añada la solución del compuesto químico previamente preparada según sea necesario, por ejemplo, 200 µL de 5 µM Solución Dynasor2-24
ADVERTENCIA: Estos compuestos químicos se consideran citotóxicos, por lo que es esencial manipularlos con cuidado bajo una campana extractora, utilizando equipo adecuado y disposición apropiada de desechos. - Añadir 200 µL de solución de DMSO (1:1000) a la muestra control, que sirve como control negativo.
- Para el ensayo de absorción (Witte et al., 202115), añada el anticuerpo primario a la solución de fármaco: para anti-Wg, utilice una dilución 1:20 para la detección de Wg, y para anti-GFP para la detección de proteínas marcadas con proteína verde fluorescente (GFP), utilice una dilución 1:40.
- Incubar las muestras a temperatura ambiente (TA) durante 90 min en la oscuridad.
NOTA: El ensayo de absorción es opcional y puede excluirse fácilmente del protocolo si no es necesario. Asimismo, pueden utilizarse otros compuestos químicos según la pregunta experimental. Se recomienda realizar una titulación del compuesto y determinar la mejor concentración para cada aplicación específica. Consulte el Tabla de materiales para información detallada sobre los productos químicos y materiales utilizados en este estudio.
- Fijación de la muestra
- Retire la solución de tinción del paso 1.3 inmediatamente después del tiempo de incubación.
- (Opcional) Lavar las muestras dos veces con 200 µL de SchM+
- Para la correcta eliminación del anticuerpo primario del ensayo de captación, lave el tejido durante 5 min con el tampón ácido a temperatura ambiente (TA).
- Lavar rápidamente 3 veces× durante 3 min con SchM+
- Fije las muestras en formaldehído al 4% en SchM+ durante 30 minutos a temperatura ambiente.
- Incubación con anticuerpo primario
NOTA: Si se requiere un anticuerpo primario adicional junto con el anticuerpo utilizado en el ensayo de captación, debe aplicarse en esta etapa y procesarse según los procedimientos estándar de tinción de inmunohistoquímica.- Bloquee el tejido con suero de cabra normal al 4 % en 1× PBS-T durante al menos 30 min a temperatura ambiente con agitación suave.
- Elimine la solución bloqueante.
- Añada la solución de anticuerpo primario en 1× PBS a la concentración deseada (ejemplos: anti-wg 1:200, anti-dlg1 1:50 o anti-GFP 1:200, o cualquier otro anticuerpo requerido)
- Incubar muestras a 4 °C durante la noche con agitación suave.
- (Opcional) Incubar con el anticuerpo primario durante al menos 1,5 h a temperatura ambiente con agitación suave.
- NOTA: Consulte el Tabla de materiales para información detallada sobre los productos químicos y materiales utilizados en este estudio.
- Incubación con anticuerpo secundario
- Retire la solución de anticuerpo primario.
NOTA: Utilice la solución de anticuerpo primario en 1× El PBS puede reutilizarse varias veces cuando se almacena en un tubo de reacción fresco de 1,5 mL a 4 °C. - Lavar el tejido 3 veces× 10 min en 1× PBS-T con agitación suave.
Añada los anticuerpos secundarios deseados en una dilución 1:200 en 1× PBS-T con tinción nuclear contraste de Hoechst33342 1:2000. Los anticuerpos secundarios para STED incluyen anti-ratón procedente de pollo Alexa Fluor 594, anti-conejo procedente de cabra Alexa Fluor 594, anti-conejo STAR635P y anti-ratón STAR635P. Consulte el Tabla de materiales para información detallada sobre los productos químicos y materiales utilizados en este estudio. - Incubar con el anticuerpo secundario durante toda la noche a 4 °C (Opcional: incubar al menos 1,5 h con agitación suave a temperatura ambiente).
- Lave el tejido al día siguiente 3× 10 min en 1× PBS-T con agitación suave. Las muestras ya están listas para ser montadas para la imagenología por STED. Consulte todo el flujo de trabajo Figura 1.
NOTA: La óptica del microscopio generalmente está diseñada para 23 °C funcionamiento, a menos que se requieran otras condiciones. La estabilidad térmica es crítica, ya que las fluctuaciones provocan deriva térmica y pueden afectar la temporización del láser. Una temperatura ambiente estable de 20–23 °C (≤ ±±1 °C se recomienda fluctuaciones)16., con 21,5–22 °C a menudo compensa el calor generado por el microscopio. Todos los componentes del microscopio deben alcanzar el equilibrio térmico antes de la adquisición de imágenes. Los incubadores colocados sobre la platina ofrecen un control preciso de la temperatura de la muestra, pero los recintos pueden atrapar calor y aumentar la deriva. El enfriamiento activo mejora la estabilidad. En este estudio, un incubador de diseño personalizado (EMBL Heidelberg) mantuvo una temperatura de 21,5 ±± 0.05 °C, minimizando la deriva térmica y asegurando un rendimiento estable de la microscopía de emisión estimulada por depleción en 3D.
- Retire la solución de anticuerpo primario.
2. Preparación de la muestra para nanoscopia de superresolución 3D STED y adquisición de imágenes
- Preparaciones de equipos y materiales:
- Configure el microscopio.
- Asegúrese de utilizar un microscopio adecuado para el experimento. Aquí se utilizó el microscopio Leica Stellaris 8 STED Falcon.
- Utilice un objetivo adecuado. Aquí se utilizó un objetivo HC PL APO 86x/1.20 W motCORR STED blanco.
- Para permitir una correcta adquisición de imágenes, encienda todo el sistema del microscopio al menos 2 h antes de la adquisición (véase la NOTA después del paso 1.6.4).
- Prepare placas recubiertas con poli-L-lisina.
- Preparar la solución de poli-L-lisina con 0,6 % de poli-L-lisina, 0,002 % de Photo Flo en agua dH2O. Aliquotar la solución y almacenarla a largo plazo a -20 °C. Después del descongelamiento, mantener a 4 °C y reutilizar hasta 10 veces.
- Añadir 200 µL de solución de poli-L-lisina al fondo de cubreobjetos de vidrio 1.5H µ-placa (∅35 mm
- Coloque los recipientes en posición vertical inclinada para su secado.
- Después de que la solución de poli-L-lisina se haya secado completamente, repetir el recubrimiento una vez más.
- Añada cuidadosamente espaciadores de esmalte de uñas en 2 lados del fondo de vidrio de la cubeta
- Después de montar, cubrir las muestras con portaobjetos redondos de 1.5H (∅Cubreobjetos de 12 mm (ver Figura 2).
- Configure el microscopio.
- Configuración de montaje para STED 3D
- NOTA: Para la nanoscopía STED 3D (véase la NOTA tras el paso 2.2.12), es esencial igualar los índices de refracción entre el objetivo STED y el medio de montaje (ejemplo aquí: objetivo de agua y 1× medio de montaje PBS
- Coloque las muestras en una pequeña placa de Petri llena con 1× PBS.
- Añadir 15 µL de 1× PBS en una gota sobre el cultivo previamente preparado con poli-L-lisina.
- Disecar los discos imaginarios de las alas del tejido larval restante y colocarlos en un 15 µL 1× Gota de PBS
- Asegúrese de que los discos alares estén adheridos a la cubreobjetos recubierta y no flotando.
- No presione los discos con ninguna fuerza; déjelos asentarse sobre el cubreobjetos lo más suavemente posible. Para una orientación correcta, asegúrese de que los discos alares se monten con la membrana peripodal orientada hacia abajo, en dirección al cubreobjetos.
- Después de montar, cubra las muestras con redondas de 1.5H∅Cubreobjetos de 12 mm.
- Asegúrese de que los bordes del cubreobjetos estén sobre los espaciadores de esmalte de uñas aplicados previamente para evitar aplastar la muestra.
- Selle la laminilla con esmalte de uñas por todos los lados para evitar la evaporación del medio de montaje.
- Mantenga las placas en la oscuridad hasta la imagen final.
- Ajuste la temperatura de la muestra a la temperatura de la cámara de incubación del microscopio colocando la muestra en la cámara de incubación al menos 30 minutos antes de la adquisición de imágenes en el microscopio.
- Para evitar cualquier movimiento de la muestra, estabilice el recipiente en el soporte del microscopio con un adhesivo sensible a la presión (por ejemplo, Blu Tack).
NOTA: Los términos STED 2D y STED 3D describen el tipo de mejora de resolución, no si se adquiere una sola imagen o un z-stack12,17. La STED 2D mejora únicamente la resolución lateral (x,y), típicamente hasta <50 nm, mientras que la resolución axial (z) permanece similar a la de la microscopía confocal (~600 nm). Es comparativamente robusta y generalmente tolera un apareamiento imperfecto del índice de refracción entre la muestra y el medio de inmersión del objetivo.12. La microscopía 3D STED mejora tanto la resolución lateral como axial, con una mejora particularmente notable a lo largo del eje z. Al optimizar las condiciones del fluoróforo y del agotamiento STED, puede lograrse una resolución casi isotrópica de aproximadamente 100-120 nm en muestras biológicas.17,18Sin embargo, el patrón de agotamiento 3D por STED es muy sensible a las aberraciones esféricas. Por lo tanto, para lograr una imagen satisfactoria es necesario un ajuste cuidadoso del índice de refracción y una regulación precisa del collar de corrección del objetivo según el grosor real del cubreobjetos.
- Requisitos y configuración de la nanoscopía
- Encienda todos los dispositivos del microscopio necesarios según las instrucciones del fabricante.
- No encienda las llaves del láser todavía.
- Ajuste la temperatura de la cámara de incubación del microscopio a 22–23 °C al menos 1,5 h antes de la adquisición de imágenes.
- Coloque la muestra en la cámara del microscopio también y déjela adaptarse a la temperatura durante al menos 30 min.
- Encienda la computadora y abra el software LAS X (versión 4.9.0).
- Seleccionar Imagen STED en la ventana de apertura e inicie el software
- Cuando el software esté cargado, active las llaves de seguridad de ambos láseres cuando sus luces muestren un color verde.
- Vaya a la Adquirir pestaña y seleccione el objetivo STED adecuado (HC PL APO 86x/1.20 W motCORR STED).
- Vaya a la Configuración pestaña y haga clic en el botón para Configuración del láser.
- Haga clic en todos los controles deslizantes del láser para activarlos ENCENDIDO.
- Vaya a la Configuración pestaña y haga clic en el botón para STED.
- Haga clic Alinear haces.
- Repita el alineamiento de los haces después de 30 min y 2 h de adquisición de imágenes para garantizar un alineamiento óptimo; repita posteriormente si es necesario, por ejemplo, cuando se observe una disminución en la resolución o un fondo más elevado.
- Alinee el collar de corrección (motorizado) del objetivo con el grosor del cubreobjetos utilizando la señal de reflexión de la superficie del cubreobjetos:
- Vaya a la Adquirir y comience a establecer el valor de motCORR.
- Cree un nuevo canal para la fluorescencia de GFP en confocal modo y enfoque en las células de la muestra.
- Haga clic en el En vivo y mueva la muestra a una posición donde no haya ninguna muestra.
- Detenga la imagen en vivo.
- Asegúrese de que solo se utilice el detector HyDS para este canal.
- Establezca el filtro notch configuración a Reflexión.
- Haga clic en el Orientación botón y seleccione Orientación xzy.
- Reduzca la velocidad de adquisición rápida en tiempo real a 100 Hz si la muestra parece inestable o presenta movimiento en el eje z.
- Iniciar la imagen en vivo haciendo clic en el En vivo rápido botón.
- Localice la cubierta del muestra, que aparecerá como una línea
- Ajuste el valor de motCORR hasta que la señal de esta línea sea lo más nítida y estrecha posible
NOTA: Con una laminilla de 1,5H, el valor se encuentra típicamente en el rango de 48–56 %. - Ahora comience a seleccionar los canales para la adquisición de imágenes en el Adquirir pestaña
- Consulte Tabla 1 para la configuración de detección de Alexa Fluor 594 y STAR635P en modo STED.
- Imagenología
- Seleccione el área de imagen mediante los oculares del microscopio.
- Gire la muestra cuidadosamente para alinear verticalmente el límite DV (Figura 2).
- Cierre el obturador del microscopio y cambie a la imagen confocal, operando el microscopio mediante la computadora.
- Haga clic En vivo rápido botón, ajuste el enfoque y verifique la orientación del límite DV.
- Detenga la imagen en vivo.
- (Opcional) Tomar una imagen general en la orientación xyz en modo confocal (ajustar el láser STED al 0 % en ambos canales) como referencia posterior en esta etapa. Encender el láser STED después de adquirir la imagen general.
- Seleccione la orientación xzy y ajuste la línea que aparece a la zona exacta para la obtención de imágenes ortogonales.
- Haga clic en el En vivo rápido botón y ajuste el enfoque si es necesario.
- Ajuste la posición en x de la muestra utilizando la rueda z del microscopio.
- Asegúrese de que los láseres STED estén encendidos para ambos canales y de que todos los ajustes sean correctos.
- Haga clic Iniciar experimento.
- La intensidad por píxel (detector en modo de recuento de fotones) oscila entre 50 y 300 fotones detectados; esto también depende de la potencia del láser, el tiempo de permanencia por píxel y el número de acumulaciones de líneas aplicadas. Si se dispone del módulo de mediciones de vida media fluorescente (FLIM, Falcon), confirme que se detecte menos de un fotón por pulso láser.
- Ajuste los valores según sea necesario para la muestra individual.
- Desafíos para la nanoscopía STED
- Para visualizar un área morfológica específica en STED 3D, gire y oriente la muestra en el microscopio para alinear el tejido con precisión al eje requerido antes de cambiar de la vista XY a la vista XZ. Logre esta libertad montando las muestras en placas redondas que pueden moverse según los requisitos experimentales (Figura 2).
- Durante el escaneo en xz, la muestra se mueve físicamente a lo largo del eje z, lo que inicialmente provocó un ligero desplazamiento de la placa en xy debido a las oscilaciones a lo largo del eje vertical. Para evitar cualquier movimiento de las placas, fije la placa al soporte de muestra del microscopio con masilla adhesiva (Blu Tack). Esto permitió una rotación libre, al tiempo que evitó el movimiento vertical (eje z).
- Para evitar la evaporación del medio de montaje y el secado del tejido, se sellaron las laminillas con esmalte de uñas.
- Para evitar la deriva de la muestra debido a diferencias de temperatura entre la muestra y el microscopio, lleve las muestras a la cámara de incubación del microscopio al menos 30 minutos antes de la adquisición de imágenes y permita que se ajusten a la temperatura del microscopio.16.
- Para la selección del anticuerpo secundario, siga los pasos siguientes:
- Una amplia variedad de fluoróforos es adecuada para la imagenología por STED, pero solo un subconjunto combina propiedades fotofísicas y espectrales favorables para la técnica de dos colores con un único láser de agotamiento (en este caso, 775 nm). Utilice una misma longitud de onda de agotamiento STED para ambos fluoróforos a fin de garantizar un alineamiento cromático intrínseco y eliminar la necesidad de corrección por desplazamiento cromático, definiendo ambos canales con el mismo patrón de agotamiento STED.
- Pares comunes de fluoróforos incluyen STAR RED/STAR635P, ATTO 647N/ATTO 643, combinados con Alexa Fluor 594, STAR 580 o STAR ORANGE18,19. Aquí se utilizó la combinación ampliamente adoptada de Alexa Fluor 594 y STAR635P. Aunque sus espectros de emisión se superponen parcialmente, adquiera los fluoróforos en modo línea por línea utilizando una ventana de detección estrecha para Alexa Fluor 594 con el fin de minimizar la interferencia (véase Tabla 1). Dado que esto reduce la eficiencia de detección de Alexa Fluor 594, asigne la inmunotinción más intensa a este canal.
Resultados
Para establecer condiciones de imagen adecuadas para la nanoscopía 3D por STED en discos imaginales de ala, primero realizamos una tinción estándar de inmunofluorescencia de Wg y la proteína asociada a la membrana apical Dlp. Wg se detectó con Alexa Fluor 594, mientras que Dlp se marcó con STAR635P, dos fluoróforos compatibles con la nanoscopía por STED (Figura 3). Las imágenes se adquirieron tanto sin agotamiento STED para obtener imágenes de calidad confocal como con agotamiento STED para imágenes de superresolución, utilizando los ajustes descritos en el paso 2.3 (Figura 3).
La comparación directa de la misma región del tejido imagenada en condiciones de confocal y STED como cortes xz demostró el aumento sustancial en resolución espacial proporcionado por la nanoscopía 3D STED (Figura 3A–D′). Las estructuras que aparecían como señales alargadas en las imágenes confocales (Figura 3A,A′ y Figura C,C′) se resolvieron en múltiples puntos distintos en el modo STED (Figura 3B,B′ y Figura D,D′). Esta mejora se observó tanto en los canales Alexa Fluor 594 como STAR635P y se utilizó para optimizar los parámetros de tinción y de imagen, con el fin de lograr la mayor calidad de señal posible y una resolución isotrópica en tejido intacto de disco alar.
A continuación, combinamos el ensayo de captación de Wg15 con inhibición farmacológica para investigar el tráfico de Wg en la membrana apical y su reciclaje mediante endocitosis dependiente de clatrina. Utilizamos una línea de moscas con Wg::GFP marcado de forma endógena20, lo que permitió la detección de Wg::GFP extracelular con un anticuerpo anti-GFP, manteniendo al mismo tiempo la compatibilidad con otros anticuerpos derivados de ratón.
Los discos imaginales de ala fueron tratados con Dynasore 2-24, un inhibidor de la dinamina que actúa sobre la endocitosis dependiente de clatrina y dinamina21,22, y posteriormente sometidos al ensayo de captación de Wg. La Wg::GFP extracelular se marcó con un anticuerpo anti-GFP para monitorear la internalización, mientras que la tinción con anti-Dlg1 se utilizó para visualizar la morfología del tejido. La Wg se detectó con Alexa Fluor 594 y se observó en modo STED, mientras que Dlg1 se marcó con STAR635P (Figura 4). Los discos de control tratados con DMSO mostraron una internalización progresiva de Wg::GFP durante todo el ensayo de captación, con señal endocitada detectada hasta una profundidad de aproximadamente 14 µm (Figura 4A,A′). El experimento se repitió de forma independiente dos veces siguiendo los protocolos descritos en las secciones 1 y 2 (Figura 4B,C). En la primera réplica, el tratamiento con 5 µM de Dynasore2-24 abolieron completamente la captación de Wg (n = 4; Figura 4B,B′). En la segunda réplica, la internalización de Wg se redujo pero no se eliminó por completo (n = 4; Figura 4C,C′), con una profundidad máxima de penetración disminuida a aproximadamente 5 µm.
Dicha variabilidad se observa comúnmente en experimentos de inhibición farmacológica y probablemente refleja diferencias en la eficacia del inhibidor o en el momento de su aplicación. La inhibición incompleta, la penetración limitada del inhibidor en el tejido, la recuperación de la endocitosis durante el ensayo, o los retrasos introducidos por los pasos de lavado ácido y fijación pueden contribuir todos a la internalización residual de Wg. No obstante, ambos experimentos mostraron de forma consistente una reducción marcada en la captación de Wg y en la profundidad de penetración en comparación con los controles de DMSO, lo que demuestra una inhibición exitosa de la endocitosis. Estos hallazgos también enfatizan que un temporizado preciso a lo largo del protocolo es fundamental para obtener resultados reproducibles.
Ocasionalmente se observó una señal asociada a la membrana residual después del lavado ácido, lo que probablemente representa moléculas de Wg::GFP que ya habían entrado en las fosas endocíticas tempranas y, por lo tanto, eran inaccesibles para la eliminación del anticuerpo23,24,25.
En conjunto, estos experimentos demuestran que combinar el ensayo de captación de Wg con perturbaciones farmacológicas y nanoscopía 3D STED permite la visualización de la dinámica del tráfico de membrana en discos imaginales de ala intactos. Además, identifican parámetros clave para la implementación exitosa del protocolo, incluyendo combinaciones adecuadas de fluoróforos y anticuerpos, tratamiento optimizado con inhibidores, temporización estricta del ensayo de captación y montaje inmediato de las muestras antes de la adquisición de imágenes.
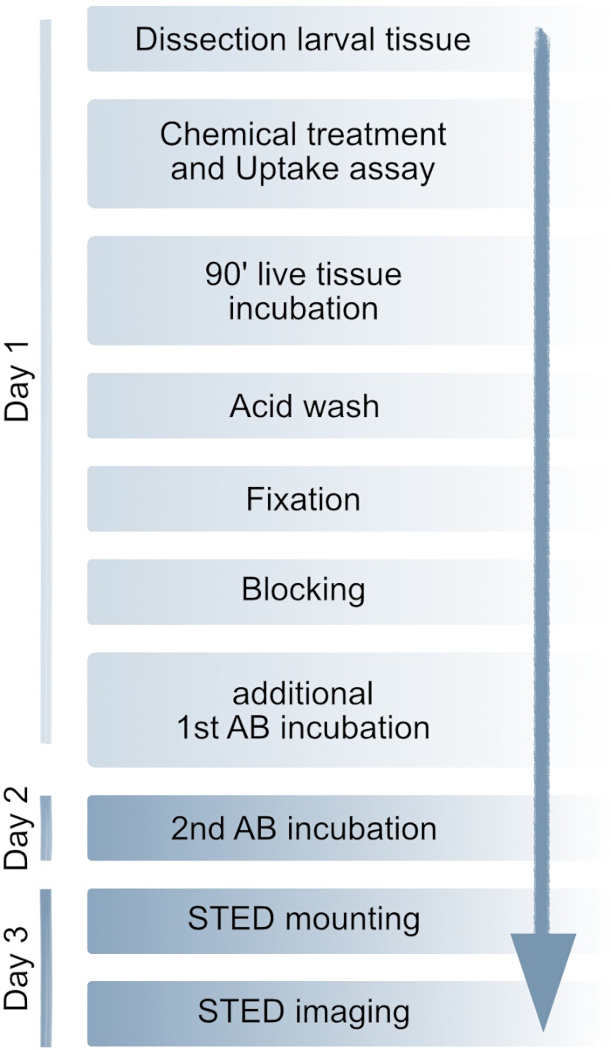
Figura 1: Flujo del método. El protocolo completo puede completarse en 3 días. Opcionalmente, la incubación con el anticuerpo secundario puede realizarse el mismo día. Los procedimientos detallados se proporcionan en la sección de Protocolo. AB: anticuerpo. Haga clic aquí para ver una versión más grande de esta figura.
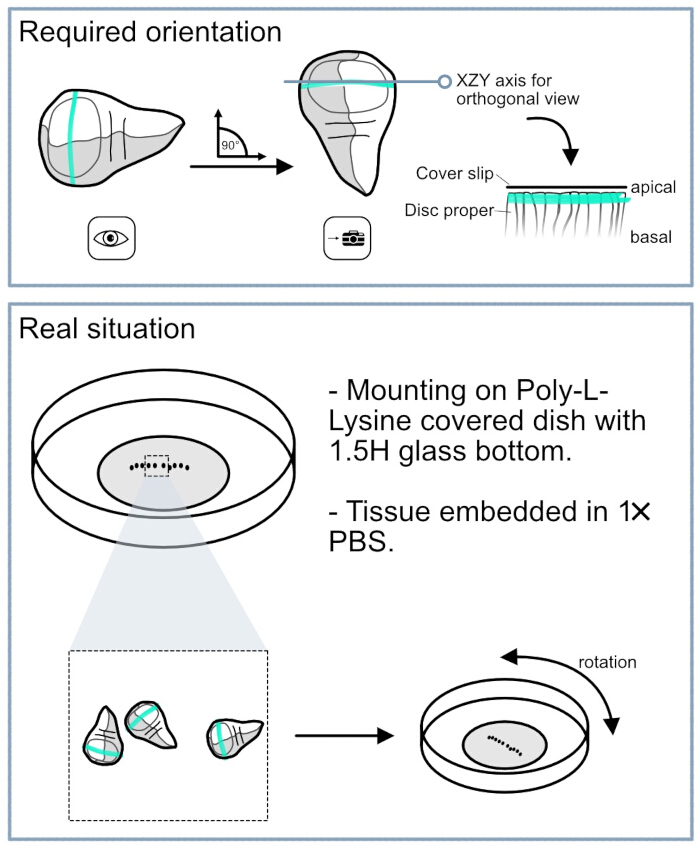
Figura 2: Desafíos en el montaje de discos alares de Drosophila para STED 3D. En el panel superior, se ilustra la orientación requerida de los discos alares. Para el análisis de células secretoras de Wg, es esencial que el límite DV esté perfectamente alineado de forma vertical en la vista del ocular. Este alineamiento permite rotar la vista de la cámara al plano ortogonal, lo que posibilita dirigirse con precisión a la población celular deseada. El panel inferior muestra la configuración práctica utilizada para manipular los discos alares durante la adquisición de imágenes. Los discos alares se montaron en placas de Petri redondas con fondo de cubreobjetos de vidrio 1.5H. La superficie del cubreobjetos se recubrió con poli-L-lisina para facilitar la adhesión del tejido. El diseño circular del recipiente permite su rotación dentro del soporte del microscopio, lo que posibilita un alineamiento vertical preciso del límite DV, tal como se requiere para la obtención de imágenes. Haga clic aquí para ver una versión más grande de esta figura.
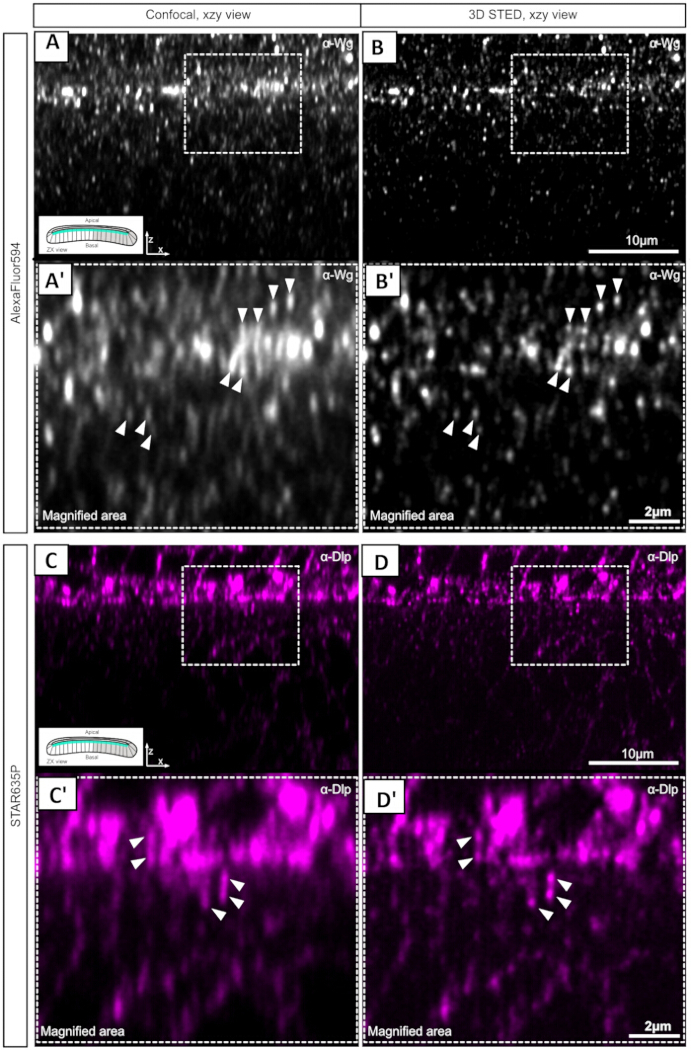
Figura 3: Comparación de imágenes confocales y de nanoscopía 3D STED en el límite DV de discos alares de Drosophila. (A) Imagen confocal de células secretoras de Wg en el límite DV mostrada en el plano XZ. La tinción con anticuerpo anti-Wg se detectó utilizando Alexa Fluor 594. (A’) Vista ampliada de la región indicada que muestra señales alargadas (flechas) en la región de la membrana apical. (B,B’) La misma región obtenida mediante nanoscopía 3D STED. Se muestra la señal de Alexa Fluor 594. En comparación con la imagen confocal, la nanoscopía 3D STED resuelve las señales alargadas en puntos discretos y revela múltiples señales individuales (flechas). (C) Imagen confocal del canal STAR635P del mismo espécimen mostrado en A y B. Como ejemplo, Dlp se detectó utilizando un anticuerpo secundario conjugado con STAR635P, destacando la membrana apical. (C’) Vista ampliada que muestra señales alargadas en la imagen confocal. (D) Imagen 3D STED de la misma región mostrada en C. (D’) Vista ampliada que demuestra que las señales amplias y alargadas observadas mediante microscopía confocal se resuelven en puntos discretos mediante imágenes 3D STED. Haga clic aquí para ver una versión más grande de esta figura.
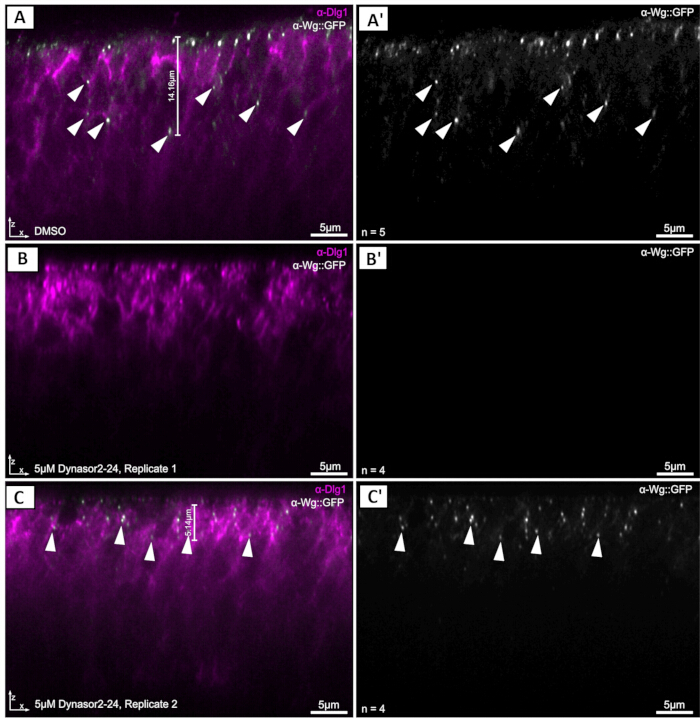
Figura 4: Combinación de la inhibición química con el ensayo de captación de Wg en discos imaginales de alas de Drosophila, visualizado mediante STED 3D. (A,A’) Disco control tratado con DMSO representativo (n = 5). La Wg::GFP extracelular (gris) se marca eficientemente, y la Wg::GFP internalizada se detecta intracelularmente (flechas). Dlg1 (magenta) marca la morfología del tejido y la región apical del disco propiamente dicho. (B,B’) Muestra representativa del replicado 1 tratado con 5 µM de Dynasore2-24 para inhibir la endocitosis dependiente de clatrina y dinamina (n = 4). La señal de Wg::GFP se anula tras el ensayo de captación. (C,C’) Muestra representativa del replicado 2 tratado con 5 µM de Dynasore2-24 (n = 4). Aún se detecta señal residual de Wg::GFP cerca de la superficie apical (flechas), pero la señal intracelular se restringe a los primeros aproximadamente 5 µm del tejido, en comparación con aproximadamente 14 µm en los controles tratados con DMSO (barras de medición en A y C). Dlg1 (magenta) sirve como referencia morfológica. Haga clic aquí para ver una versión ampliada de esta figura.
| Configuraciones | canal Alexa Fluor 594 | canal STAR635P |
| Objetivo | 86x/1.2 HC PL APO CS2 (agua) | 86x/1.2 HC PL APO CS2 (agua) |
| Tamaño del píxel | 37 nm × 37 nm | 37 nm × 37 nm |
| Acercar | 1.2 | 1.2 |
| Ventana de detección | 3072 × 1536 píxeles | 3072 × 1536 píxeles |
| Promedio de línea | 1 | 1 |
| Acumulación de líneas | 16 | 16 |
| Velocidad de escaneo | 100–200 | 100–200 |
| Tamaño del orificio | 70 μm | 70 μm |
| Línea láser de excitación | 580 nm | 638 nm |
| Intensidad de la línea láser de excitación | 4%–10% (depende de la muestra) | 8%–10% (depende de la muestra) |
| Detector | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Láser de excitación con puerta tau | 0,5–8 ns | 0,5–8 ns |
| Línea láser de agotamiento | 775 nm | 775 nm |
| Potencia del láser de agotamiento | 65-75 % (depende de la muestra) | 65-75 % (depende de la muestra) |
| Procesamiento posterior de imágenes basado en el tiempo de vidaτ-DETS | τ-Fuerza: 10 | τ-Fuerza: 10 |
| τ-Supresión de fondo: activa | τ-Supresión de fondo: activa | |
| Suavizado: 0 | Suavizado: 0 |
Tabla 1: Configuraciones detalladas del microscopio para fluoróforos en un microscopio STELLARIS SP8. Hemos proporcionado las configuraciones utilizadas para los fluoróforos Alexa Fluor 594 y Star635P.
Discusión
La visualización del tráfico de membranas y de la dinámica de señalización dentro de tejidos intactos sigue siendo un desafío técnico, particularmente en células epiteliales altamente polarizadas como las presentes en el disco imaginario del ala de Drosophila. La morfología estrecha y columnar de estas células limita la información que puede obtenerse mediante microscopía confocal convencional, especialmente al analizar la localización de proteínas a lo largo del eje apical-basal. En este protocolo, abordamos estas limitaciones combinando la nanoscopía 3D STED11,12 con ensayos de captación basados en anticuerpos y perturbaciones farmacológicas. En conjunto, estos enfoques permiten visualizar eventos dinámicos de tráfico de proteínas dentro de su entorno tisular nativo con una resolución espacial que no puede alcanzarse mediante imágenes confocales estándar.
Una ventaja importante del flujo de trabajo es el uso de la nanoscopía STED en 3D para investigar procesos asociados a membranas en tejidos completos. La comparación directa entre imágenes confocales y STED demostró que las señales alargadas observadas mediante microscopía confocal podían resolverse en puntos distintos mediante imágenes STED en 3D (Figura 3), mejorando considerablemente la visualización de proteínas en la membrana apical. Esta mayor resolución es particularmente valiosa para analizar la secreción, la endocitosis y las vías de tráfico intracelular, donde la localización precisa de vesículas individuales y complejos proteicos asociados a membranas es esencial. Además, la capacidad de obtener vistas ortogonales permite examinar la organización y el tráfico de proteínas a lo largo del eje apical-basal de las células epiteliales.
La integración de perturbaciones farmacológicas con el ensayo de captación amplía aún más las posibilidades experimentales del método. Mientras que el ensayo de captación marca selectivamente las proteínas que han experimentado secreción y posterior re-internalización dentro de un intervalo de tiempo definido, los tratamientos farmacológicos permiten la perturbación de vías específicas de tráfico intracelular. Por lo tanto, la combinación de estos enfoques proporciona una visión directa de cómo los procesos celulares influyen en la dinámica del tráfico de proteínas in vivo. Como se demostró, la visualización de Wg::GFP captado bajo inhibición de la endocitosis dependiente de clatrina resultó en la pérdida de la señal internalizada de la proteína marcada en la membrana apical y/o en una reducción de la señal intracelular de captación, lo que ilustra cómo el protocolo puede utilizarse para investigar mecanismos de tráfico en su contexto tisular fisiológico. De forma más general, este enfoque complementa las estrategias genéticas clásicas y refuerza aún más la utilidad de Drosophila como sistema modelo para estudios mecanicistas de vías de señalización.
Varios factores son fundamentales para la implementación exitosa del protocolo. En primer lugar, la elección de los anticuerpos primarios es crucial, ya que se requiere una marcación específica y robusta para la detección confiable de la señal. Sin embargo, la disponibilidad limitada de anticuerpos validados frente a proteínas endógenas de Drosophila sigue siendo una limitación importante. En este protocolo, esto obligó al uso de una línea de Wg::GFP etiquetada endógenamente, ya que muchos anticuerpos comúnmente utilizados en Drosophila se generan en ratón, lo que limita la inmunomarcación múltiple. Aunque los colorantes fluorescentes pueden ofrecer una alternativa para marcar estructuras celulares como membranas, mitocondrias u otros orgánulos, la mayoría de los colorantes disponibles comercialmente han sido optimizados para células en cultivo y es difícil aplicarlos eficazmente a tejidos intactos de Drosophila.
Además, los anticuerpos secundarios y los fluoróforos deben evaluarse cuidadosamente en cuanto a su compatibilidad con la nanoscopía STED, ya que no todos los fluoróforos proporcionan intensidad de señal suficiente, fotostabilidad o eficiencia de agotamiento bajo condiciones de imagen STED19,26. Los resultados presentados aquí resaltan aún más la importancia de la preparación de muestras y el manejo de tejidos. De manera similar, los tratamientos farmacológicos deben optimizarse cuidadosamente, ya que concentraciones excesivas de fármacos pueden comprometer la integridad del tejido y generar artefactos de imagen que oculten las señales biológicas. La orientación precisa del tejido es igualmente importante, dado que se requiere un alineamiento exacto del límite dorsoventral para obtener vistas ortogonales e imaginar de forma reproducible las poblaciones celulares deseadas (Figura 2).
Se pueden introducir varias modificaciones para adaptar el protocolo a diferentes requisitos experimentales: la duración del ensayo de captación puede ajustarse para equilibrar una etiquetación proteica suficiente con la preservación de la integridad del tejido. Asimismo, es posible que las concentraciones de inhibidores requieran una titulación según el tipo de tejido, la etapa de desarrollo o la vía de señalización bajo estudio. El protocolo también es compatible con diversas estrategias de tinción, incluyendo inmunofluorescencia estándar, inmunofluorescencia extracelular y estrategias de etiquetado basadas en fluoróforos, siempre que los fluoróforos seleccionados sean adecuados para la nanoscopía STED. Aunque el presente protocolo se centra en la imagen de dos colores, fluoróforos adicionales y configuraciones de imagen podrían ampliar aún más su aplicabilidad.
Aunque este protocolo fue desarrollado utilizando discos imaginales de ala de Drosophila y la vía de señalización Wg/Wnt como sistema modelo, el enfoque no se limita a estas aplicaciones. El flujo de trabajo puede adaptarse fácilmente a otros tejidos de Drosophila y probablemente sea transferible a otros modelos de insectos con dimensiones tisulares y propiedades ópticas comparables. Más en general, la combinación de ensayos de absorción, perturbaciones farmacológicas y nanoscopía 3D STED proporciona un marco versátil para investigar la organización de la membrana, el tráfico de proteínas, la secreción y la dinámica de señalización in vivo. Esta capacidad probablemente sea valiosa no solo para estudios fundamentales de vías de señalización en desarrollo, sino también para la investigación biomédica orientada a comprender los defectos de tráfico asociados con enfermedades. Al permitir la visualización directa de poblaciones dinámicas de proteínas a resolución subcelular dentro de tejidos intactos, el método ofrece una plataforma potente para estudiar los mecanismos celulares que regulan la señalización en sistemas biológicos complejos.
Divulgaciones
Los autores declaran que no tienen intereses en conflicto.
Agradecimientos
M.B. y M.H. reciben apoyo del Centro Colaborativo de Investigación CRC/SFB1324 (número de proyecto 331351713) de la Deutsche Forschungsgemeinschaft sobre los mecanismos y funciones de la señalización Wnt. Queremos agradecer a la instalación central de microscopía óptica del DKFZ (LMCF) su experiencia y apoyo.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Tubos de reacción PCR de 0,2 mL | Biozym | 711068 | |
| Tubo de reacción de 1,5 mL | Sarstedt | 72.706.700 | |
| Placa de vidrio 1.5H con fondo de cubreobjetos de μ-Dish, 35 mm | Ibidi | #81158 | |
| Cubreobjetos redondos de vidrio 1.5H (12 mm) | Marienfeld | ninguno | |
| Placa de tinción de vidrio de 12 pocillos | Marienfeld | CET6.20 | |
| Formaldehído al 37% | Merck | F8775 | |
| anticuerpo anti-dlg1 | DSHB | 4F3 | |
| anticuerpo anti-dlp | DSHB | 13G8 | |
| anticuerpo anti-GFP | Invitrogen | A11122 | |
| anticuerpo anti-ratón Alexa Fluor 594 | Invitrogen | A21201 | |
| anticuerpo anti-ratón STAR635P | Abberior | ST635P-1001 | |
| anticuerpo anti-conejo Alexa Fluor 594 | Invitrogen | A11012 | |
| anticuerpo anti-conejo STAR635P | Abberior | ST635P-1002 | |
| anticuerpo anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | Adhesivo sensible a la presión |
| DMSO | VWR | SIAL472301 | |
| Pinzas Dumont 5 | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| Suero bovino fetal (FBS) | Sigma-Aldrich | F7524 | |
| Glicina | Gerbu | 10.231.000 | |
| Microscopio Leica Stellaris 8 STED Falcon | Leica Microsystems | N/A | |
| Esmalte de uñas | essence | N/A | |
| Suero de cabra normal | Cell Signalling | 5425S | |
| Objetivo: HC PL APO 86x/1.20 W motCORR STED white objective | Leica Microsystems | N/A | |
| Tabletas de PBS | Life technologies | 18912014 | |
| Photo Flo | Kodak | N/A | |
| Polilisina | Sigma-Aldrich | P1524 | |
| Medio para insectos de Schneider | Sigma | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
Referencias
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.