Ocho semanas de ejercicio en cinta rodante se asociaron con cambios transcripcionales cardíacos, de la barrera intestinal y relacionados con Nlrp3, así como con una microbiota intestinal alterada, particularmente un aumento de Akkermansia muciniphila, en ratones diabéticos.
Artículo de investigación
El ejercicio en cinta rodante se asocia con cambios en la barrera intestinal y en la expresión del gen Nlrp3 cardíaco en ratones diabéticos
En este artículo
Resumen
Resumen
Este estudio investigó las asociaciones entre el ejercicio, la expresión génica relacionada con la barrera intestinal y el corazón Nlrp3 expresión génica relacionada con el inflamasoma en un modelo de ratón diabético. La disregulación metabólica se indujo en ratones macho C57BL/6J mediante una dieta alta en grasas combinada con estreptozotocina en dosis bajas, seguida de 8 semanas de ejercicio en cinta rodante5° pendiente, 12 m/min, 20–50 min/día, 5 días/semana). En comparación con ratones diabéticos sedentarios, los ratones ejercitados mostraron niveles más bajos de glucosa en ayunas, resistencia a la insulina y lípidos séricos, junto con mayores niveles de colon Ocludina expresión de ARNm (expresión relativa: 0,38 ± 0.04 en ratones diabéticos frente a 0.79 ± 0.05 en ratones ejercitados, P < 0,001), menor función cardíaca Nlrp3, IL-1β, TNF-α, Col1a1, y Tgfb1 expresión de ARNm, y una relación menor de ARNm Bax/Bcl-2 (3,06 ± 0.19 frente a 1.48 ± 0.10, P < 0,001). El análisis de qPCR en heces de seis taxones seleccionados mostró que el ejercicio se asoció con aumentos en las abundancias relativas de Akkermansia muciniphila (0.31 ± 0,04 a 0,84 ± 0.07) y Lactobacillus (0.48 ± 0,05 a 1,01 ± 0.07) y disminuyó Escherichia coli (3.84 ± 0,33 a 1,68 ± 0.13, P < 0,01). En ratones ejercitados, A. muciniphila la abundancia mostró una correlación negativa con el corazón Nlrp3 expresión de ARNm (R = −0,81, P = 0,0046). Estos hallazgos correlacionales indican asociaciones entre el ejercicio, los cambios transcripcionales cardíacos e intestinales y ciertos taxa microbianos intestinales en ratones diabéticos, pero no establecen relaciones causales. Todos los hallazgos moleculares se limitan a cambios a nivel de ARNm y no demuestran la función de la barrera intestinal, la activación del inflamasoma, la fibrosis miocárdica, la apoptosis ni otros efectos funcionales o a nivel proteico.
Introducción
La diabetes mellitus es una amenaza creciente para la salud global, y las complicaciones cardíacas diabéticas siguen siendo afecciones graves con terapias específicas limitadas1,2,3,4. El entrenamiento físico puede mejorar la función cardíaca en modelos animales diabéticos5,6, pero los mecanismos subyacentes, particularmente aquellos que involucran la microbiota intestinal y la barrera intestinal, aún no se comprenden completamente.
La microbiota intestinal regula el metabolismo y la inmunidad del hospedador7. En la diabetes, la disbiosis intestinal y la integridad comprometida de la barrera pueden aumentar la translocación de lipopolisacárido (LPS), promover la inflamación mediada por TLR4 y agravar la lesión miocárdica8,9. Esta carga inflamatoria de origen intestinal podría contribuir a la progresión de las complicaciones diabéticas, incluyendo la disfunción cardíaca. Bacterias beneficiosas como Akkermansia y Faecalibacterium pueden reducirse, mientras que bacterias como E. coli podrían aumentar10,11. Estas alteraciones microbianas podrían contribuir a la inflamación intestinal local y a la endotoxemia sistémica, afectando potencialmente órganos distantes, como el corazón. El inflamasoma NLRP3 es un mediador importante de la inflamación cardíaca en la patología cardíaca diabética, y su activación podría modularse por metabolitos microbianos intestinales12,13. Ciertos productos microbianos, particularmente los ácidos grasos de cadena corta y el LPS, tienen efectos opuestos en la preparación y ensamblaje de NLRP3, lo que sugiere una posible asociación entre el entorno microbiano intestinal y el estado inflamatorio miocárdico.
El ejercicio puede alterar la microbiota intestinal y mejorar la función de la barrera intestinal14,15, pero las asociaciones entre el ejercicio, la expresión génica relacionada con la barrera intestinal y la expresión génica cardíaca relacionada con el inflamasoma NLRP3 en modelos diabéticos aún no se comprenden completamente. El epitelio intestinal actúa como una interfaz entre los microbios del lumen y la circulación sistémica, por lo que podría contribuir a las asociaciones entre los cambios en la microbiota intestinal y las respuestas inflamatorias cardíacas. Sin embargo, aún falta evidencia experimental directa que establezca una relación causal entre los cambios inducidos por el ejercicio en la barrera intestinal, la activación del inflamasoma NLRP3 y la protección cardíaca en modelos diabéticos.
Por lo tanto, se planteó la hipótesis de que el ejercicio en cinta rodante estaría asociado con cambios transcripcionales cardíacos, alteraciones en ciertos taxa microbianos intestinales, preservación de la expresión génica relacionada con la barrera intestinal y reducción de la expresión génica cardíaca relacionada con el inflamasoma NLRP3 en ratones diabéticos. Se estableció un modelo de ratón diabético mediante una dieta alta en grasas combinada con estreptozotocina en dosis bajas, seguida de una intervención de ejercicio en cinta rodante durante 8 semanas. Las evaluaciones incluyeron parámetros metabólicos, expresión de ARNm de ocludina en el colon, expresión génica cardíaca relacionada con el inflamasoma NLRP3 y marcadores de expresión génica inflamatorios, fibroticos y apoptóticos. También se cuantificaron ciertos taxa microbianos intestinales para evaluar los cambios asociados al ejercicio en la microbiota intestinal. Se realizaron análisis de correlación para examinar las asociaciones entre ciertos taxa microbianos intestinales, la expresión génica relacionada con la barrera intestinal y los marcadores transcripcionales cardíacos. Dichos análisis tuvieron como objetivo identificar asociaciones, sin pretender establecer un mecanismo causal barrera intestinal-NLRP3.
Protocolo
Todos los procedimientos con animales se realizaron en una instalación para animales acreditada por una organización internacional de acreditación de cuidado de animales de laboratorio. El protocolo fue revisado y aprobado por el Comité Institucional de Cuidado y Uso de Animales de la instalación (IACUC; número de aprobación: VS212500103). Los experimentos se llevaron a cabo en una instalación externa autorizada porque la institución de origen no contaba con una instalación para animales autorizada para este modelo específico.
Establecimiento del modelo de ratón diabético
Se aclimataron ratones macho C57BL/6J (8 semanas de edad, grado libre de patógenos específicos, peso corporal de 20–22 g) durante 1 semana en condiciones controladas (22 ± 2 °C, 50 ± 10% de humedad relativa, ciclo de 12 h luz/oscuro) con acceso ad libitum a alimento estándar y agua.
Tras la aclimatación, los ratones se asignaron aleatoriamente mediante una tabla de números aleatorios a un grupo control normal (Control, n = 10) o a un grupo de inducción de diabetes. Los procedimientos experimentales y las mediciones de los resultados se realizaron con los investigadores enmascarados respecto a la asignación de los grupos. Los animales se mantuvieron cuatro por jaula en jaulas estándar de policarbonato con cama enriquecida, bajo condiciones libres de patógenos específicos. Solo se utilizaron ratones macho para minimizar la variabilidad potencial asociada con los ciclos estrales y porque el modelo de dieta alta en grasas/STZ produjo fenotipos metabólicos más consistentes en machos.
A los ratones sometidos a la inducción de diabetes se les administró una dieta alta en grasas (60 % kcal procedentes de grasas) durante 4 semanas, seguida de inyecciones intraperitoneales de estreptozotocina (STZ; 30 mg/kg de peso corporal) durante 5 días consecutivos. El STZ se disolvió recién en tampón de citrato 0,1 mol/L (pH 4,5), se protegió de la luz y se administró dentro de los 15 minutos posteriores a su preparación. Los ratones control recibieron volúmenes equivalentes de tampón de citrato. Una semana después de la última inyección, se midió la glucosa en sangre en ayunas (FBG) a partir de sangre del extremo de la cola tras un ayuno de 6 h. Se consideró que los ratones con FBG ≥ 11,1 mmol/L eran diabéticos. Estos ratones se mantuvieron en la dieta alta en grasas durante 4 semanas adicionales para permitir el desarrollo de cambios relacionados con la diabetes en la expresión génica.
Un total de 35 ratones fueron sometidos a la inducción del modelo, de los cuales 28 cumplieron con el criterio de diabetes. El peso corporal y la ingesta de alimento se monitorearon semanalmente, pero no se utilizaron como criterios de exclusión. Ningún animal murió ni fue excluido durante las fases de modelado o intervención. Los ratones que desarrollaron exitosamente el modelo se subdividieron aleatoriamente en un grupo de diabetes (DM, n = 10) y un grupo de intervención con ejercicio (DM+Ex, n = 10). El tamaño final de la muestra fue de n = 10 por grupo en todos los análisis, considerando a cada ratón individual como la unidad experimental.
Intervención de ejercicio en cinta de correr
Los ratones del grupo DM+Ex realizaron ejercicio en cinta rodante con una inclinación del 5° y una velocidad de 12 m/min, 5 días por semana durante 8 semanas. Todas las sesiones de ejercicio se realizaron entre las 9:00 y las 11:00 de la mañana. Antes de la intervención, los ratones se aclimataron a la carrera en cinta rodante durante 3 días a 6 m/min durante 5 min/día con una inclinación de 0°. Cada sesión de ejercicio incluyó un calentamiento de 5 min a 6 m/min y una vuelta a la calma de 5 min a 6 m/min. Se utilizó una leve estimulación mecánica para animarlos a correr, y no se empleó estimulación eléctrica.
Las duraciones diarias de carrera fueron de 20 min en la semana 1, 25 min en la semana 2, 30 min en la semana 3, 35 min en la semana 4, 40 min en la semana 5, 45 min en la semana 6, y 50 min en las semanas 7–8. Los ratones control y DM se colocaron en cintas de correr estacionarias durante duraciones equivalentes para controlar el manejo y la exposición ambiental. Un criterio predefinido de exclusión fue no completar más del 80 % de las sesiones prescritas de ejercicio. Ningún animal cumplió con este criterio; todos los animales completaron las sesiones prescritas de ejercicio, y no se observaron eventos adversos.
Recolección de muestras
Doce horas después de la última sesión de ejercicio, los ratones fueron sometidos a ayuno durante 6 h y anestesiados mediante inhalación de isoflurano (3 % para inducción y 1,5-2 % para mantenimiento en O₂ al 100 % a 1 L/min). Se recogieron aproximadamente 500 µL de sangre del plexo venoso retro-orbitario, se dejó coagular a temperatura ambiente durante 30 min y se centrifugó a 3.000 × g durante 15 min a 4 °C. El suero resultante se almacenó a −80 °C.
Posteriormente, los ratones fueron sacrificados mediante dislocación cervical bajo anestesia profunda. Los corazones se extirparon rápidamente y se lavaron con solución salina tamponada con fosfato (PBS) fría con hielo. Se aisló el tejido del ventrículo izquierdo; una porción se congeló rápidamente en nitrógeno líquido y se almacenó a −80 °C para la extracción de ARN, y el tejido restante se fijó en paraformaldehído al 4%. Se recogió aproximadamente 1 cm de tejido colónico distal, se lavó con PBS, se congeló rápidamente y se almacenó a −80 °C. Se recogieron muestras frescas de heces directamente del recto entre las 9:00 y las 10:00 AM para minimizar la contaminación de la jaula, se transfirieron a tubos estériles y se almacenaron a −80 °C dentro de los 15 minutos posteriores a la recolección.
Mediciones bioquímicas en suero
La FBG se midió utilizando un sistema de medición de glucosa en sangre. La insulina sérica se determinó mediante ensayo inmunoenzimático, y el colesterol total y los triglicéridos se midieron usando un analizador bioquímico automatizado. La resistencia a la insulina se calculó utilizando el modelo de evaluación homeostática: HOMA-IR = FBG (mmol/L) × insulina (mIU/L)/22.5.
Extracción de ARN y PCR cuantitativa en tiempo real a partir de tejido miocárdico
Aproximadamente 30 mg de tejido del ventrículo izquierdo se homogenizaron en un reactivo de extracción de ARN basado en fenol-guanidinio, y el ARN total se extrajo según el protocolo del reactivo. La concentración y pureza del ARN se evaluaron espectrofotométricamente, considerándose aceptable una relación A260/A280 de 1,8 a 2,0. El ARN total (1 µg) se transcribió inversamente a ADN complementario (ADNc).
Se realizó una PCR cuantitativa (qPCR) en una mezcla de reacción de 20 µL que contenía una mezcla maestra fluorescente para qPCR con unión al ADN, 0,4 µmol/L de cada cebador (directo e inverso) y 2 µL de la plantilla de ADNc. Las condiciones de amplificación fueron 95 °C durante 30 s, seguidas de 40 ciclos de 95 °C durante 5 s y 60 °C durante 34 s. Se realizó un análisis de la curva de disociación en el rango de 65 a 95 °C para verificar la especificidad de la amplificación. Todas las reacciones se realizaron por duplicado, e incluyeron controles sin plantilla y sin transcripción inversa. Las eficiencias de amplificación para todos los pares de cebadores oscilaron entre el 90 % y el 105 %. Los cebadores para Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 y Gapdh se enumeran en la Tabla 1. La expresión génica relativa se calculó mediante el método 2−ΔΔCt y se expresó como cambio en el número de copias respecto al grupo Control.
Extracción de ADN de microbiota fecal y cuantificación mediante qPCR
Se extrajo el ADN microbiano total de muestras fecales utilizando un protocolo de extracción de ADN a partir de heces. Las abundancias relativas de seis taxones bacterianos seleccionados—Faecalibacterium prausnitzii, Akkermansia muciniphila, género Lactobacillus, género Bifidobacterium, Escherichia coli y género Desulfovibrio—se determinaron mediante qPCR utilizando cebadores específicos para cada taxón, que se enumeran en la Tabla 1. Se utilizaron cebadores universales para el ARNr 16S bacteriano como referencia para la abundancia bacteriana total.
La abundancia relativa se calculó utilizando el método de 2−ΔΔCt con el ARNr 16S bacteriano total como referencia y se normalizó respecto al grupo Control. Se generaron curvas estándar para cada diana mediante diluciones seriadas de ADN plasmídico con concentraciones conocidas para verificar la eficiencia de amplificación. Todas las reacciones se realizaron por duplicado con análisis de la curva de disociación. Debido a que los taxa bacterianos difieren en el número de copias del gen del ARNr 16S, los resultados se expresaron como abundancia relativa de 2−ΔΔCt en lugar de números absolutos de copias.
Evaluación de la expresión de Occludin en el colon
Aproximadamente 30 mg de tejido colónico se procesaron para la extracción de ARN total y la síntesis de ADNc según se describió anteriormente. La expresión de ARNm de Occludin se midió mediante qPCR utilizando los siguientes cebadores: sentido, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; antisentido, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh se utilizó como referencia interna, y la expresión relativa se calculó utilizando el método 2−ΔΔCt.
Análisis estadístico
Los datos se presentaron como media ± desviación estándar (DE). La normalidad se evaluó mediante la prueba de Shapiro-Wilk, y la homogeneidad de varianzas se evaluó mediante la prueba de Levene. Los datos entre grupos que cumplían con los supuestos paramétricos se analizaron utilizando un análisis de varianza unidireccional (ANOVA), seguido por la prueba de diferencia significativa honrada de Tukey (HSD) para comparaciones por pares post hoc. Las comparaciones entre dos grupos se realizaron utilizando una prueba t de Student no apareada de dos colas t-prueba.
Se utilizó la correlación de rangos de Spearman para evaluar las asociaciones entre variables. Para el mapa de calor de correlación, se calcularon correlaciones parciales de Spearman controlando el grupo experimental. Los valores de P se ajustaron para comparaciones múltiples mediante el procedimiento de tasa de descubrimientos falsos (FDR) de Benjamini-Hochberg, y se consideró estadísticamente significativo un valor de P ajustado por FDR < 0,05. Se informaron tamaños del efecto (Cohen's f para ANOVA y r para correlaciones) e intervalos de confianza del 95 % para diferencias medias clave cuando fue aplicable. Todos los análisis estadísticos se realizaron utilizando software de computación estadística (versión 4.2.0).
Resultados
El ejercicio en cinta rodante se asoció con la mejora de las anomalías metabólicas en ratones diabéticos
En comparación con el grupo Control, los ratones diabéticos presentaron niveles significativamente más altos de glucosa en ayunas (18,23 ± 0,61 frente a 6,03 ± 0,21 mmol/L, P < 0,001), insulina sérica (16,30 ± 1,04 frente a 8,23 ± 0,38 mIU/L, P < 0,001), HOMA-IR (13,19 ± 1,18 frente a 2,21 ± 0,17, P < 0,001), colesterol total (4,62 ± 0,23 frente a 2,01 ± 0,09 mmol/L, P < 0,001) y triglicéridos (2,12 ± 0,15 frente a 0,80 ± 0,08 mmol/L, P < 0,001). Tras la intervención de ejercicio en cinta rodante durante 8 semanas, estos parámetros disminuyeron a 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L y 1,20 ± 0,14 mmol/L, respectivamente, en comparación con los ratones diabéticos (P < 0,01 o P < 0,001); sin embargo, la mayoría de los valores permanecieron más altos que los del grupo Control (Figura 1A–E). El análisis de varianza unidireccional mostró efectos significativos del grupo en todos los parámetros (todos F(2,27) > 25,0, P < 0,001).
El entrenamiento físico se asoció con una mayor expresión de mRNA de Occludin en el colon y una menor expresión génica relacionada con el inflamasoma cardíaco
En ratones diabéticos, la expresión de ARNm de Occludin en el colon fue aproximadamente un 62 % menor que en el grupo Control (0,38 ± 0,04 frente a 1,00 ± 0,06, P < 0,001). Concurrentemente, la expresión de ARNm de Nlrp3, Il1b y Tnfa en el corazón aumentó hasta 5,6, 6,5 y 5,1 veces los valores del grupo Control, respectivamente (todos P < 0,001). Tras la intervención con ejercicio, la expresión de ARNm de Occludin aumentó hasta 0,79 ± 0,05 (P < 0,001 frente a ratones diabéticos), mientras que la expresión de ARNm de Nlrp3, Il1b y Tnfa disminuyó hasta 2,30 ± 0,21, 2,66 ± 0,25 y 2,14 ± 0,17, respectivamente (todos P < 0,001 frente a ratones diabéticos; Figura 2A–D).
El ejercicio se asoció con una menor expresión génica relacionada con la fibrosis y la apoptosis miocárdicas
El grupo diabético mostró un aumento en la expresión cardíaca de los genes relacionados con la fibrosis Col1a1 (4,46 ± 0,29 veces, P < 0,001) y Tgfb1 (4,17 ± 0,24 veces, P < 0,001), junto con una mayor relación de ARNm Bax/Bcl2 (3,06 ± 0,19, P < 0,001) en comparación con el grupo Control. Tras el entrenamiento físico, la expresión de ARNm de Col1a1 y Tgfb1 disminuyó a 2,02 ± 0,16 y 1,92 ± 0,16, respectivamente (ambos P < 0,001 frente a ratones diabéticos), y la relación de ARNm Bax/Bcl2 disminuyó a 1,48 ± 0,10 (P < 0,001 frente a ratones diabéticos; Figura 3A–C).
El ejercicio se asoció con cambios en taxones microbianos intestinales seleccionados en ratones diabéticos
En comparación con el grupo control, los ratones diabéticos mostraron abundancias relativas significativamente más bajas de cuatro taxones bacterianos seleccionados: F. prausnitzii (0,25 ± 0,03 frente a 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 frente a 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 frente a 0,99 ± 0,04) y Bifidobacterium (0,56 ± 0,06 frente a 1,00 ± 0,06; todos P < 0,001). En contraste, las abundancias relativas de E. coli (3,84 ± 0,33 frente a 0,99 ± 0,08) y Desulfovibrio (3,07 ± 0,26 frente a 0,99 ± 0,07) fueron significativamente más altas (ambas P < 0,001). La intervención con ejercicio se asoció con abundancias relativas significativamente más altas de F. prausnitzii, A. muciniphila, Lactobacillus y Bifidobacterium (P < 0,01 o P < 0,001), alcanzando A. muciniphila un valor de 0,84 ± 0,07. Concurrentemente, las abundancias relativas de E. coli y Desulfovibrio disminuyeron a 1,68 ± 0,13 y 1,52 ± 0,08, respectivamente (ambas P < 0,001 frente a ratones diabéticos; Figura 4A–F).
Se correlacionaron alteraciones microbianas seleccionadas con la expresión génica cardíaca y colónica
Se realizó un análisis de correlación de Spearman para evaluar las asociaciones entre las abundancias relativas de taxones microbianos seleccionados y los marcadores de expresión génica en tejidos cardíacos y colónicos (Figura 5A). La abundancia relativa de A. muciniphila mostró una correlación negativa con el ARNm cardíaco de Nlrp3 (R = −0,81, P = 0,0046) y con el ARNm de Tnfa (R = −0,80, P = 0,0054). La abundancia relativa de E. coli mostró una correlación positiva con la expresión de ARNm de Occludin en el colon (R = 0,66, P = 0,036; Figura 5B–D). Estos hallazgos mostraron asociaciones entre taxones microbianos intestinales seleccionados y marcadores transcripcionales cardíacos y colónicos, pero no establecieron relaciones causales.
DISPONIBILIDAD DE LOS DATOS:
Los conjuntos de datos generados y/o analizados durante el presente estudio están disponibles a solicitud razonable del autor correspondiente.
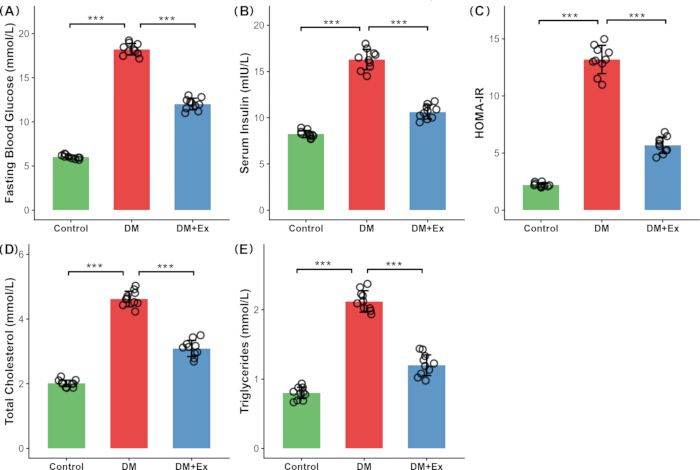
Figura 1: Efectos del ejercicio en cinta rodante sobre parámetros metabólicos en ratones diabéticos. (A) Glucosa sanguínea en ayunas. (B) Insulina sérica. (C) HOMA-IR. (D) Colesterol total. (E) Triglicéridos en los grupos Control, DM y DM+Ex. Los datos se presentan como media ± DE (n = 10 por grupo), con los puntos de datos individuales superpuestos en cada barra. Las comparaciones entre grupos se realizaron mediante ANOVA de un factor seguido de la prueba post hoc de Tukey. *P < 0,05, **P < 0,01, ***P < 0,001; ns = no significativo. Abreviaturas: DM = modelo de diabetes; Ex = ejercicio; HOMA-IR = evaluación del modelo homeostático de resistencia a la insulina; DE = desviación estándar. Haga clic aquí para ver una versión más grande de esta figura.
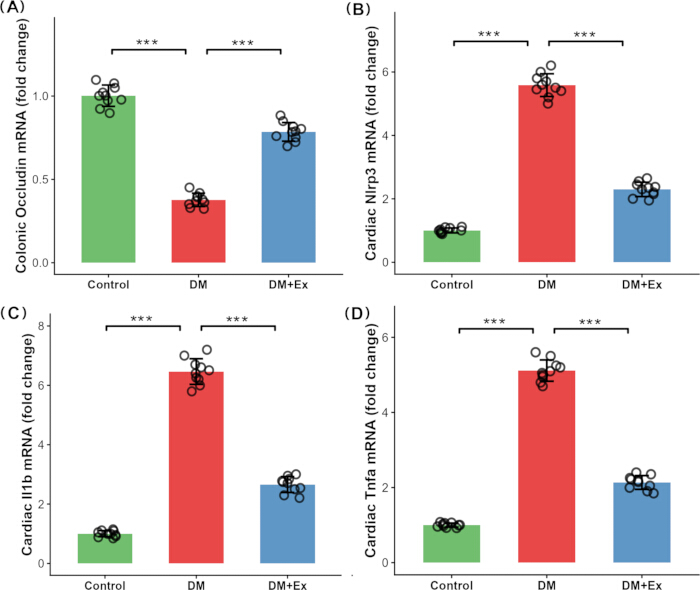
Figura 2: Efectos del ejercicio en cinta rodante sobre la expresión génica relacionada con la barrera intestinal y el inflamasoma cardíaco en ratones diabéticos. (A) Expresión relativa de ARNm de Occludin en colon. (B) Expresión relativa de ARNm de Nlrp3 en corazón. (C) Expresión relativa de ARNm de Il1b en corazón. (D) Expresión relativa de ARNm de Tnfa en corazón. La expresión génica se normalizó respecto a Gapdh y se expresó como cambio en el número de veces respecto al grupo Control. Los datos se presentan como media ± DE (n = 10 por grupo). *P < 0,05, **P < 0,01, ***P < 0,001. Abreviaturas: IL-1β = interleucina-1β; TNF-α = factor de necrosis tumoral-α; DE = desviación estándar. Haga clic aquí para ver una versión más grande de esta figura.
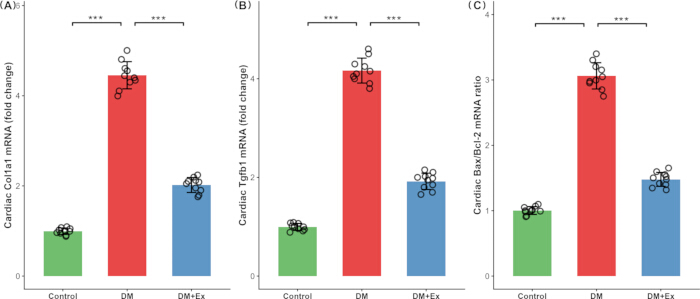
Figura 3: Efectos del ejercicio en cinta rodante sobre la expresión génica relacionada con la fibrosis miocárdica y la apoptosis en ratones diabéticos. (A) Expresión relativa de ARNm cardíaco de Col1a1. (B) Expresión relativa de ARNm cardíaco de Tgfb1. (C) Relación de ARNm Bax/Bcl2. La expresión génica se normalizó respecto a Gapdh y se expresó como cambio en el número de veces respecto al grupo Control. La relación Bax/Bcl2 se calculó a partir de los valores de expresión relativa de ARNm. Los datos se presentan como media ± DE (n = 10 por grupo), con los puntos de datos individuales superpuestos en cada barra. *P < 0,05, **P < 0,01, ***P < 0,001. Abreviaturas: Col1a1 = colágeno tipo I alfa 1; Tgfb1 = factor de crecimiento transformante-β1; Bax = proteína asociada a X de BCL2; Bcl2 = linfoma de células B 2; DE = desviación estándar. Haga clic aquí para ver una versión más grande de esta figura.
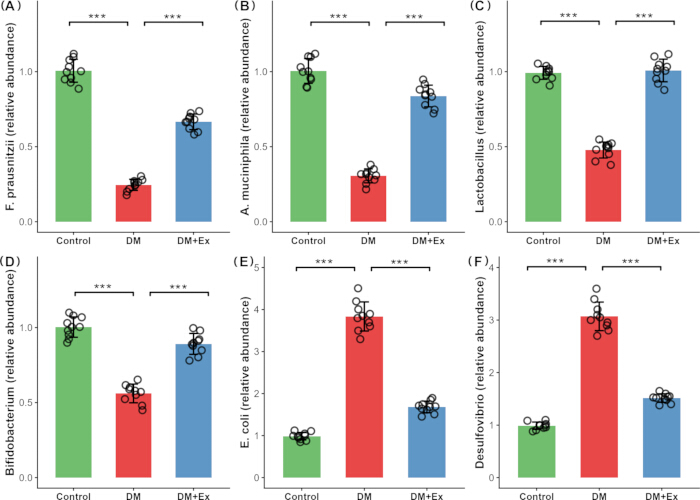
Figura 4: Efectos del ejercicio en cinta rodante sobre las abundancias relativas de taxones microbianos intestinales seleccionados en ratones diabéticos. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Las abundancias relativas se determinaron mediante qPCR utilizando dianas específicas del ARNr 16S según el grupo taxonómico, en relación con el ARNr 16S bacteriano total, y se normalizaron respecto al grupo Control. Los datos se presentan como media ± DE (n = 10 por grupo). *P < 0,05, **P < 0,01, ***P < 0,001. Abreviatura: DE = desviación estándar. Haga clic aquí para ver una versión ampliada de esta figura.
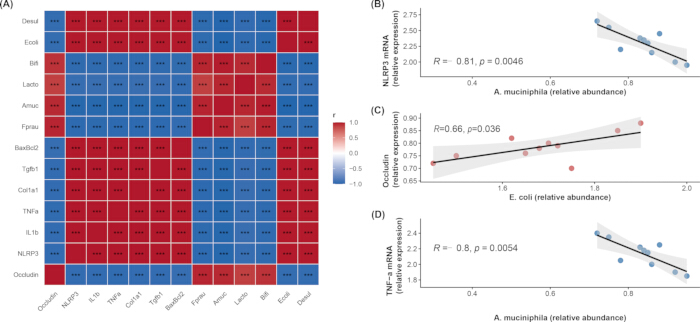
Figura 5: Análisis de correlación entre taxones microbianos intestinales seleccionados y parámetros de expresión génica cardíacos y colónicos. (A) Mapa de calor que muestra los coeficientes de correlación de Spearman entre taxones bacterianos seleccionados y los ARNm colónicos de Occludin, los ARNm cardíacos de Nlrp3, Il1b y Tnfa, los ARNm de Col1a1 y Tgfb1, y la relación de ARNm Bax/Bcl2. Las correlaciones se calcularon utilizando datos de los tres grupos (n = 30) como correlaciones parciales de Spearman ajustadas por el grupo experimental. La escala de colores varía desde azul para correlaciones negativas hasta rojo para correlaciones positivas. Los asteriscos dentro del mapa de calor indican significancia tras la corrección FDR (*P < 0,05, **P < 0,01, ***P < 0,001). (B) Correlación entre la abundancia relativa de A. muciniphila y la expresión de ARNm cardíaco de Nlrp3 dentro del grupo DM+Ex. (C) Correlación entre la abundancia relativa de E. coli y la expresión de ARNm colónico de Occludin dentro del grupo DM+Ex. (D) Correlación entre la abundancia relativa de A. muciniphila y la expresión de ARNm cardíaco de Tnfa dentro del grupo DM+Ex. Cada punto representa un ratón individual. Se muestran líneas de regresión lineal e intervalos de confianza del 95 % para facilitar la visualización. Abreviaturas: DM = modelo de diabetes; Ex = ejercicio; FDR = tasa de falsos descubrimientos. Haga clic aquí para ver una versión más grande de esta figura.
| Gen/Microbiano | Primer Directo | Primer Inverso |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Bacterias totales (ARNr 16S) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tabla 1: Secuencias de cebadores utilizadas para la PCR cuantitativa en tiempo real.
Discusión
En el presente estudio, se utilizó un modelo de ratón diabético inducido por una dieta alta en grasas combinada con una dosis baja de STZ para evaluar los cambios metabólicos, intestinales, cardíacos y microbianos asociados al ejercicio. Ocho semanas de ejercicio en cinta rodante se asociaron con una mejora en los parámetros metabólicos, una mayor expresión de ARNm de Occludin en el colon, una menor expresión de genes relacionados con el inflamasoma Nlrp3 cardíaco y una menor inflamación miocárdica, fibrosis y expresión génica relacionada con la apoptosis. El ejercicio también se asoció con cambios en las abundancias relativas de ciertos taxa microbianos intestinales. En conjunto, estos hallazgos sugieren que los cambios transcripcionales cardíacos asociados al ejercicio podrían estar relacionados con alteraciones en la expresión génica relacionada con la barrera intestinal y con ciertos taxa microbianos intestinales, aunque no se estableció causalidad.
Como era de esperar en el modelo diabético, los ratones desarrollaron alteraciones metabólicas pronunciadas, incluyendo hiperglucemia, hiperinsulinemia, resistencia a la insulina y dislipidemia, consistentes con el paradigma patológico bien establecido16,17. El régimen de ejercicio de 8 semanas se asoció con reducciones de aproximadamente el 34 % en la glucosa en ayunas y del 57 % en el HOMA-IR, lo que indica una mejora parcial de la resistencia a la insulina. A nivel miocárdico, el ejercicio se asoció con reducciones del 40 % al 60 % en la expresión de marcadores de ARNm proinflamatorios (Tnfa, Il1b), profibróticos (Tgfb1, Col1a1) y relacionados con la apoptosis (Bax/Bcl2), lo cual es consistente con estudios previos que vinculan el ejercicio aeróbico con la activación de AMPK y la inhibición de NF-κB18,19. Sin embargo, ninguno de estos parámetros regresó a los niveles del grupo Control, lo que indica que la intervención de 8 semanas fue insuficiente para normalizar el fenotipo transcripcional asociado a la diabetes establecida, lo cual podría estar relacionado con efectos persistentes de memoria glucémica20.
La expresión de ARNm de Occludin en el colon fue aproximadamente un 62 % menor en ratones diabéticos, lo que sugiere una reducción en la expresión génica relacionada con la barrera intestinal. Concurrentemente, la expresión de ARNm cardíaco de Nlrp3, Il1b y Tnfa aumentó 5,6 veces, 6,5 veces y 5,1 veces, respectivamente. El inflamasoma NLRP3 es un sensor importante del sistema inmunitario innato y se ha implicado en la patología cardíaca diabética. La hiperglucemia puede aumentar la expresión génica miocárdica de Nlrp3 a través de las vías de especies reactivas de oxígeno (ROS) y de la proteína interactiva con tioredoxina (TXNIP), con efectos posteriores sobre la señalización inflamatoria relacionada con IL-1β e IL-1821,22. También se ha descrito que la translocación sistémica aumentada de lipopolisacárido (LPS), secundaria a la alteración de la barrera intestinal, actúa como un estímulo previo para la activación del NLRP323. El LPS puede aumentar la expresión de Nlrp3 y de pro-Il1b a través del eje de señalización TLR4/MyD88/NF-κB, proporcionando la primera señal necesaria para la activación del inflamasoma24. En el presente modelo diabético, se observó una abundancia relativa aumentada de E. coli, junto con una expresión reducida de ARNm de Occludin en el colon y un aumento en la expresión génica cardíaca relacionada con el inflamasoma. Estos cambios paralelos son compatibles con una posible vía inflamatoria de origen intestinal, pero no demuestran un aumento en la translocación de LPS ni un mecanismo causal entre el intestino y el corazón.
La intervención mediante ejercicio se asoció con un aumento en la expresión de ARNm de Occludin en el colon hasta aproximadamente el 79 % del valor del Control, mientras que la expresión de ARNm de Nlrp3, Il1b y Tnfa en el corazón disminuyó hasta aproximadamente 2,3, 2,7 y 2,1 veces los valores del Control, respectivamente. Estos hallazgos indican una asociación entre una mayor expresión génica relacionada con la barrera intestinal y una menor expresión génica inflamatoria cardíaca tras el ejercicio. Estudios previos han propuesto que el ejercicio podría favorecer la función de la barrera intestinal mediante un aumento en la producción de moco, la regulación de las proteínas de las uniones estrechas y una mejor perfusión intestinal25,26,27,28. Sin embargo, los datos actuales se limitaron a mediciones de ARNm y, por lo tanto, no confirmaron estos mecanismos funcionales.
El análisis dirigido de la microbiota intestinal mostró que el ejercicio se asoció con la reversión parcial de los cambios relacionados con la diabetes en las abundancias relativas de taxones seleccionados, particularmente un aumento en A. muciniphila y una disminución en E. coli. Estos cambios recíprocos son consistentes con asociaciones previamente descritas entre estos taxones y los procesos relacionados con el mantenimiento de la barrera y las endotoxinas29,30,31. Sin embargo, dado que solo se cuantificaron taxones seleccionados, los hallazgos deben interpretarse como cambios asociados al ejercicio en las abundancias relativas de bacterias específicas, más que como una remodelación integral de la microbiota intestinal.
El análisis de correlación identificó además asociaciones entre taxones microbianos seleccionados y marcadores transcripcionales. Dentro del grupo de intervención con ejercicio, la abundancia de A. muciniphila mostró una correlación negativa con la expresión de ARNm cardíaco de Nlrp3 (R = −0,81, P = 0,0046) y de Tnfa (R = −0,80, P = 0,0054). En contraste, la abundancia de E. coli mostró una correlación positiva con la expresión de ARNm de Occludin en colon (R = 0,66, P = 0,036; Figura 5C). La asociación positiva entre E. coli y el ARNm de Occludin fue contraria a la hipótesis inicial e indica que la relación entre ciertos taxones microbianos intestinales y la expresión génica relacionada con la barrera intestinal no se explica mediante un modelo lineal simple. Estas correlaciones son coherentes con las asociaciones entre el ejercicio, taxones microbianos seleccionados y marcadores transcripcionales del hospedador, pero no establecen causalidad. Evidencia previa que muestra que la disminución de A. muciniphila puede aumentar la permeabilidad intestinal y la endotoxemia metabólica32, junto con evidencia que implica a NLRP3 en la patología cardíaca diabética33, proporciona un contexto biológico para estas asociaciones. No obstante, el presente estudio no demostró directamente que el aumento de A. muciniphila mejorara la función de la barrera de moco, redujera la translocación de LPS o atenuara la inflamación cardíaca mediada por TLR4/NLRP3.
Este estudio tuvo varias limitaciones. Primero, se utilizó qPCR dirigida al ARNr 16S para cuantificar seis taxones bacterianos representativos en lugar de secuenciación de amplicones de 16S o secuenciación metagenómica. En consecuencia, no se logró una evaluación integral de la estructura de la comunidad microbiana intestinal ni de su capacidad funcional, y no fue posible evaluar cambios más amplios en la comunidad ni vías funcionales. Por lo tanto, los hallazgos se describieron como cambios en las abundancias relativas de taxones seleccionados en lugar de remodelación de la microbiota intestinal. Segundo, no se midieron directamente los niveles circulantes de LPS, las concentraciones plasmáticas de AGCC ni la permeabilidad intestinal, lo que limitó la interpretación mecanicista. Tercero, el estudio se basó principalmente en datos de expresión de ARNm. No se realizó validación a nivel de proteína ni funcional de la integridad de la barrera, activación del inflamasoma, fibrosis y apoptosis. Por consiguiente, las conclusiones se limitaron a cambios transcripcionales y no establecieron efectos funcionales ni a nivel de proteína. Cuarto, solo se examinó un régimen de intensidad y duración del ejercicio, lo que limitó las conclusiones sobre una prescripción óptima de ejercicio para cambios transcripcionales cardíacos asociados a la diabetes. Quinto, solo se estudiaron ratones macho, por lo que los hallazgos podrían no ser generalizables a hembras. Sexto, la ausencia de un grupo control sano que realizara ejercicio limitó la capacidad de distinguir respuestas específicas de la diabetes de los efectos fisiológicos del ejercicio. Séptimo, no se realizaron ecocardiografía ni histopatología cardíaca; por lo tanto, el modelo se describió como un modelo de ratón diabético en lugar de un modelo confirmado de cardiomiopatía diabética, y todos los hallazgos cardíacos se limitaron a cambios transcripcionales. Finalmente, algunas correlaciones observadas podrían haber reflejado separación entre grupos en lugar de relaciones biológicas dentro de los grupos, aunque se utilizó análisis de correlación parcial ajustado por grupo para reducir esta preocupación.
En resumen, 8 semanas de ejercicio en cinta rodante se asociaron con mejoras metabólicas y cambios transcripcionales cardíacos y colónicos en ratones diabéticos. Estos cambios ocurrieron junto con modificaciones en las abundancias relativas de ciertos taxa microbianos intestinales seleccionados, particularmente aumentos en A. muciniphila y disminuciones en E. coli. Las asociaciones observadas respaldan la necesidad de investigar más a fondo las relaciones entre el ejercicio, ciertos taxa microbianos intestinales seleccionados, la expresión génica relacionada con la barrera intestinal y la transcripción relacionada con el inflamasoma cardíaco. Serán necesarios estudios futuros que incluyan perfiles más amplios del microbioma, cuantificación de ácidos grasos de cadena corta (SCFA), ensayos de permeabilidad intestinal y validación a nivel proteico o histológica para probar los mecanismos propuestos y establecer la causalidad. Se requerirían estudios adicionales de intervención utilizando trasplante de microbiota fecal, suplementación con A. muciniphila o inhibición de NLRP3 para determinar si las asociaciones observadas reflejan vías causales.
Divulgaciones
Los autores declaran que no existen intereses financieros competitivos ni relaciones personales que pudieran haber parecido influir en el trabajo descrito en este artículo. No se utilizaron herramientas de inteligencia artificial en la elaboración de este manuscrito ni de las figuras.
APORTES DE LOS AUTORES:
H.H. y G.Z. concibieron y diseñaron el estudio. H.H., G.Z. y Y.X. realizaron los experimentos con animales y la recolección de muestras. H.H. y G.Z. llevaron a cabo los experimentos de biología molecular y obtuvieron los datos. H.H. y Y.X. realizaron el análisis estadístico. H.H. redactó el manuscrito. H.W. revisó críticamente el manuscrito por su contenido intelectual importante. Todos los autores leyeron y aprobaron el manuscrito final
Agradecimientos
Esta investigación no recibió ninguna subvención específica de agencias financiadoras de los sectores público, comercial o sin fines de lucro.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Glucómetro Accu-Chek y tiras reactivas | Roche | Accu-Chek Active | Utilizado para la medición de glucosa en sangre en ayunas |
| Analizador bioquímico automático | Hitachi | 7180 | Utilizado para mediciones bioquímicas en suero |
| Ratones C57BL/6J (machos, 8 semanas) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Animales experimentales utilizados para establecer el modelo de ratón diabético |
| Tampón de citrato (0,1 mol/L, pH 4,5) | Sigma-Aldrich | C8532 | Utilizado para la preparación de la solución de estreptozotocina |
| Kit de ensayo por inmunoabsorción ligado a enzimas (ELISA) para insulina de ratón | Wuhan HuaMei Biotech | CSB-E05070m | Utilizado para la medición de insulina en suero |
| Dieta alta en grasas (60 % kcal procedentes de grasas) | Research Diets | D12492 | Utilizada para la inducción y mantenimiento del modelo diabético |
| Isoflurano | RWD Life Science | R510-22-10 | Utilizado para anestesia por inhalación |
| Microcentrífuga | Eppendorf | 5424 R | Utilizada para la centrifugación de muestras |
| Espectrofotómetro NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Utilizado para evaluar la concentración y pureza del ARN |
| Paraformaldehído (4 %, en PBS) | Servicebio | G1101 | Utilizado para la fijación de muestras de tejido |
| Solución salina tamponada con fosfato (PBS) | Servicebio | G0002 | Utilizada para lavar y perfundir muestras de tejido |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Utilizado para PCR cuantitativa en tiempo real |
| Kit de reactivos PrimeScript RT (para qPCR) | TaKaRa (Takara Bio) | RR037A | Utilizado para la transcripción inversa de ARN a ADNc |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Utilizado para la extracción de ADN microbiano de muestras fecales |
| Software R | R Foundation | 4.2.0 | Utilizado para análisis estadístico |
| Sistema de PCR en tiempo real (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Utilizado para la amplificación y detección por PCR cuantitativa en tiempo real |
| Estreptozotocina (STZ) | Sigma-Aldrich | S0130 | Utilizada junto con una dieta alta en grasas para inducir el modelo de ratón diabético |
| Kit de ensayo de colesterol total (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | Utilizado para la medición del colesterol total en suero |
| Cinta de correr (motorizada, con control de inclinación) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Utilizada para la intervención de ejercicio en cinta de correr |
| Kit de ensayo de triglicéridos (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | Utilizado para la medición de triglicéridos en suero |
| Reactivo TRIzol | Invitrogen (Thermo Fisher) | 15596018 | Utilizado para la extracción de ARN total de muestras de tejido |
Referencias
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.