Este estudio describe un protocolo para cuantificar aminas biogénicas en cerebros de Drosophila mediante cromatografía líquida de alta resolución acoplada a detección electroquímica (HPLC-ECD). Aprovechando la facilidad genética de Drosophila y la HPLC-ECD, este enfoque puede ayudar a los investigadores a elucidar los mecanismos moleculares y genéticos subyacentes a los cambios en las aminas biogénicas en trastornos cerebrales.
Artículo de método
Uso de la cromatografía líquida de alta eficacia para estudiar alteraciones en aminas biogénicas en modelos de Drosophila de trastornos cerebrales
* These authors contributed equally
En este artículo
Resumen
Resumen
Muchos trastornos neuropsiquiátricos y neurodegenerativos se caracterizan por alteraciones en los neurotransmisores cerebrales, incluyendo cambios en los niveles de aminas biogénicas (AB) como la dopamina (DA) y la serotonina (5-hidroxitriptamina; 5-HT), así como en su liberación o recaptación. Estos cambios neuroquímicos se correlacionan con fenotipos conductuales clave específicos, tales como déficits locomotores, fragmentación del sueño y respuestas al estrés alteradas, entre otros. Debido a que los principales sistemas de AB interactúan entre sí, los modelos de enfermedad frecuentemente muestran cambios coordinados en múltiples aminas en lugar de alteraciones aisladas en un solo neurotransmisor. Por lo tanto, la cuantificación precisa y simultánea de varias AB es esencial para interpretar hallazgos conductuales y genéticos. Drosophila melanogaster ofrece un sistema genéticamente manejable para modelar dichos trastornos y cambios en neurotransmisores, pero las AB se encuentran en el tejido cerebral de la mosca a concentraciones muy bajas, del orden de nanomolar a femtomolar, y el pequeño tamaño del sistema nervioso central de Drosophila hace que su detección sea técnicamente difícil. Este estudio describe un protocolo para detectar y cuantificar DA, 5-HT y octopamina en cerebros de moscas mediante cromatografía líquida de alta eficiencia acoplada a detección electroquímica (HPLC-ECD). Se aplicó HPLC-ECD para detectar cambios en las concentraciones cerebrales de DA y 5-HT en un modelo de enfermedad de Parkinson en moscas basado en la sobreexpresión dopaminérgica de alfa-sinucleína humana. La aplicación de este protocolo al modelo de enfermedad de Parkinson con alfa-sinucleína revela niveles significativamente elevados de dopamina, pero serotonina sin cambios, en comparación con los controles, lo cual es consistente con mecanismos dopaminérgicos compensatorios tempranos. Este enfoque proporciona un método sensible, de bajo costo y fácilmente accesible para la cuantificación multiplexada de AB a partir de cantidades limitadas de tejido de Drosophila. Asimismo, permite el cribado sistemático de modificadores genéticos y fármacos candidatos que actúan sobre vías monoaminérgicas relacionadas con trastornos cerebrales humanos.
Introducción
Se sabe que los neurotransmisores monoaminas, también conocidos como aminas biogénicas (AB), regulan varias características neurológicas y conductuales clave en diferentes taxones animales, incluyendo, entre otras, los estados motivacionales, el sueño, el aprendizaje, la memoria y la regulación del estado de ánimo1,2,3,4. La alteración de las AB, como la dopamina (DA) y la serotonina (5-hidroxitriptamina; 5-HT), es una característica fundamental de trastornos neurodegenerativos como la enfermedad de Parkinson, así como de trastornos psiquiátricos como la esquizofrenia3,5. Sin embargo, aún no se ha mapeado completamente la relación entre la progresión de la enfermedad y los cambios neuroquímicos específicos en distintas regiones cerebrales y subtipos neuronales. Responder a estas preguntas requiere un sistema modelo que no solo sea genéticamente manipulable, sino que también sea capaz de reproducir fenotipos fisiológicos y conductuales relevantes para la enfermedad. Drosophila melanogaster se ha consolidado como un sistema modelo potente para este fin6,7. La mosca del vinagre posee poblaciones discretas y bien caracterizadas de neuronas dopaminérgicas y serotoninérgicas7,8, y las vías biosintéticas, los transportadores y las familias de receptores que regulan estos sistemas están funcionalmente conservados en comparación con sus contrapartes en mamíferos9. Esta conservación proporciona una base mecanicista para trasladar los hallazgos neuroquímicos obtenidos en la mosca al contexto más amplio de las enfermedades humanas.
La utilidad de las moscas para modelar trastornos neurológicos y psiquiátricos va mucho más allá de la homología genética. Como un sistema genéticamente manipulable, las herramientas disponibles en moscas permiten la exploración específica de genes y vías en células determinadas, revelando factores que pueden agravar o revertir síntomas relacionados con enfermedades, facilitando así el descubrimiento de nuevos objetivos terapéuticos10. Además, los sistemas de expresión binaria pueden dirigirse no solo a subtipos neuronales monoaminérgicos específicos, sino también a ventanas temporales particulares durante el desarrollo11, proporcionando así una precisión espacial y temporal notable. El sistema modelo de la mosca de la fruta también ofrece un repertorio de comportamientos cuantificables que pueden utilizarse para evaluar la recapitulación de síntomas relevantes para la enfermedad, así como para probar estrategias de intervención destinadas a su rescate7. Por ejemplo, modelos genéticos bien establecidos de la enfermedad de Parkinson en moscas incluyen animales portadores de mutaciones de pérdida de función en Pink1 y parkin, así como moscas que sobreexpresan versiones de tipo silvestre o con mutaciones puntuales de la α-sinucleína humana (α-sin), SNCA12,13,14. Todos estos modelos de moscas presentan algunos de los signos más importantes de la enfermedad, incluyendo déficits locomotores, degeneración de neuronas dopaminérgicas, disfunción mitocondrial y agregación de α-sin en moscas que portan la secuencia humana15,16,17,18,19. Por otro lado, también se considera que las alteraciones del neurodesarrollo y una señalización anómala de dopamina son algunas de las causas subyacentes de trastornos como la esquizofrenia20. En consonancia con esto, Drosophila ha sido utilizada para modelar síntomas similares a la esquizofrenia, incluyendo hiperactividad, respuesta sensorial alterada y reducción del estado de alerta en moscas adultas21,22,23,24,25. En conjunto, estos modelos demuestran que Drosophila puede reproducir tanto la progresión de trastornos neurodegenerativos como los orígenes del desarrollo de trastornos psiquiátricos.
Asociar los cambios conductuales en modelos genéticos con cambios neuroquímicos requiere mediciones cuantitativas precisas y reproducibles de BA. Además, en varias enfermedades, la disregulación de las monoaminas no se limita a un solo sistema de neurotransmisores. En moscas mutantes Pink1B9, el contenido de serotonina se reduce y la actividad del transportador de serotonina está deteriorada antes de que surja la disfunción motora26. La recuperación farmacológica temprana de la señalización serotoninérgica evita la posterior pérdida de neuronas dopaminérgicas afectadas en moscas mutantes Pink1B9. Por lo tanto, los cambios serotoninérgicos pueden preceder y contribuir causalmente a la patología dopaminérgica, una relación que pasaría desapercibida en lecturas conductuales o en mediciones de un solo analito. Asimismo, se observan cambios en el sistema serotoninérgico en modelos de esquizofrenia22,27,28. Además, las principales aminas biogénicas en Drosophila interactúan de manera parcialmente redundante y parcialmente antagonista, de modo que el estado de un sistema no es un indicador fiable de los demás29. Por consiguiente, cuantificar BA individuales en estos modelos es fundamental.
Las aminas biogénicas son monoaminas electroquímicamente activas (por ejemplo, catecolaminas, indolaminas) presentes en concentraciones que van desde nanomolar hasta femtomolar en tejidos biológicos, lo que hace que su detección simultánea sea técnicamente exigente30,31. Abordar preguntas sobre la base genética y molecular de los cambios en las aminas biogénicas en enfermedades requiere por tanto un método analítico capaz de separar múltiples aminas estructuralmente similares. Este método también debe detectar concentraciones biológicamente relevantes en los pequeños volúmenes de tejido disponibles en preparaciones del sistema nervioso central de Drosophila. La cromatografía líquida de alta eficacia (HPLC) acoplada a detección electroquímica (ECD) cumple con estos requisitos. La HPLC es una técnica analítica que permite separar diferentes moléculas dentro de una muestra según sus características fisicoquímicas. Acoplar el sistema cromatográfico a un detector electroquímico posibilita un análisis rápido y de alta sensibilidad de analitos electroquímicamente activos, como las aminas biogénicas. Los detectores electroquímicos funcionan induciendo la oxidación de los analitos al salir de la columna, convirtiendo las interacciones en la superficie del electrodo en una señal eléctrica cuantificable. Otras técnicas, como la espectrometría de masas, pueden ofrecer selectividad y sensibilidad comparables32,33. Sin embargo, el bajo costo por muestra y la fiabilidad de la HPLC-ECD la convierten en ideal para la detección rutinaria y accesible de aminas biogénicas en laboratorios de investigación biológica. Combinar esta técnica con el potencial de la genética de Drosophila permite un análisis rápido y sencillo de la base genética y molecular de los cambios en los sistemas aminérgicos.
Este estudio utiliza un modelo genético de Parkinson basado en la sobrexpresión de α-sin para presentar un protocolo destinado a determinar las diferencias en el contenido de BA en muestras cerebrales de Drosophila. El artículo también describe cómo este enfoque puede utilizarse para estudiar la base molecular de los trastornos cerebrales.
Protocolo
Los datos brutos presentados en este trabajo están disponibles en https://doi.org/10.6084/m9.figshare.33868519.
Los reactivos y el equipo utilizados se enumeran en la Tabla de materiales.
1. Acondicionamiento y recolección de moscas
- Sincronice las moscas de interés bajo ciclos constantes de 12 h de luz y 12 h de oscuridad, a una temperatura constante de 25 °C, durante 3 días antes de la recolección. Para asegurar suficientes moscas preparadas por genotipo/condición, sincronice 3–9 réplicas biológicas de 5 moscas cada una.
- El día de la recolección, coloque tubos de 1.5 mL sobre hielo seco. Utilice un tubo por genotipo/condición de mosca. Mediante un embudo, vierta directamente las moscas en los tubos para congelarlas rápidamente.
NOTA: Recolectar directamente sobre hielo seco permite la recolección en diferentes momentos del día sin los posibles efectos nocivos de la anestesia. En este punto, las muestras pueden almacenarse a -80 °C indefinidamente o procesarse inmediatamente. Recolecte los grupos experimentales y de control al mismo tiempo para evitar cualquier efecto confundente debido a las variaciones del momento del día. En los resultados representativos actuales, las moscas se recolectaron 3 h después de la transición de encendido de las luces.
2. Disección del cerebro y preparación de muestras
- Para preparar la disección del tejido, utilice un recipiente bajo, como la tapa de una caja de puntas para pipeta, y llénelo con hielo. Coloque un plato de Petri de 30 mm encima para usarlo como plataforma de disección. Realizar la disección del tejido sobre hielo, especialmente cuando se utiliza un estereoscopio con iluminación cálida, previene la degradación del tejido.
- Coloque una gota de 200 µL de solución salina tamponada con fosfato (PBS) 1x fría sobre hielo en el plato y, bajo un estereoscopio, realice la disección de cada mosca utilizando pinzas finas y afiladas.
- Para diseccionar el cerebro, sujete una mosca por el abdomen con un par de pinzas e introdúzcala en la gota de PBS. Sin soltar la mosca, retire la cabeza agarrando la unión entre esta y el cuerpo.
- Tanto el cuerpo como la cabeza flotarán sobre el PBS. Retire el cuerpo de la gota y deséchelo. Con un par de pinzas, sujete la cabeza por el probóscide para empujarla nuevamente dentro de la gota de PBS.
- Con el otro par de pinzas, sujete el borde del ojo para mantener la cabeza fija y retire el probóscide.
- Sujete el tejido alrededor de la abertura generada al retirar el probóscide y tire. El cerebro debería quedar expuesto.
- Limpie suavemente el cerebro para eliminar cualquier resto de tejido de la cabeza, ya que cualquier residuo podría afectar la cuantificación. Además, tome una mosca a la vez del tubo sobre hielo seco para prevenir la degradación de la muestra.
- Utilizando una punta de pipeta, transfiera un pequeño volumen que contenga el cerebro diseccionado directamente a un tubo con PBS 1x frío sobre hielo. Repita este paso hasta obtener un total de cinco cerebros por réplica biológica. Para evitar que el cerebro se adhiera a la punta de la pipeta, primero condicione la punta con la solución de la placa de disección, aspirando y expulsando varias veces.
- Una vez finalizada la disección, realice una breve centrifugación de 10 s a 2.000 x g para recoger los cerebros en el fondo del tubo.
- Cambie cuidadosamente el PBS 1x por 50 µL de ácido perclórico (PCA) 0,2 N sobre hielo.
ADVERTENCIA: El PCA es altamente corrosivo. Prepare los alícuotas previamente bajo una campana extractora y utilice el equipo de protección personal adecuado durante su manipulación. Esto incluye gafas resistentes a productos químicos, guantes gruesos de neopreno y un delantal de caucho.
NOTA: Alternativamente, los cerebros también pueden recogerse inmediatamente en 50 µL de PCA 0,2 N. En ese caso, utilice una aguja para transferir los cerebros y evitar la transferencia no deseada de PBS. - Utilice un homogenizador ultrasónico para homogenizar el tejido. Controle la amplitud para evitar la generación de calor. Aquí se utiliza una frecuencia de 10 kHz con ciclos de pulsos cortos de 3 s seguidos de 3 s sobre hielo.
- Centrifugue la muestra durante 15 min a 15.000 x g y 4 °C. Recupere 40 µL del sobrenadante en un tubo nuevo mantenido sobre hielo. Mantener las muestras en PCA evita la oxidación de las BA. Evite recoger tejido en este paso, ya que probablemente obstruirá el sistema. Si se recoge algo de tejido, pueden utilizarse filtros de jeringa, aunque la recuperación de la muestra se verá negativamente afectada.
- Inmediatamente antes de analizar las muestras, añada 8 µL de acetato de sodio 1 M. Esto acerca el pH de la muestra al pH de la fase móvil (3,5), preservando la forma del pico cuando la muestra pasa por el detector. Las muestras ya están listas para ser inyectadas.
3. Preparación de la fase móvil
- Prepare 1 L de fase móvil de citrato-acetato añadiendo 870 mL de agua ultrapura en un frasco de vidrio.
- Añada 5,61 g de acetato de sodio trihidratado y 8,79 g de ácido cítrico anhidro al recipiente de vidrio y mezcle hasta disolución completa. Asegúrese de que el pH sea 3,5; si no lo es, ajústelo según sea necesario.
- En una campana extractora, añada 130 mL de metanol grado HPLC.
- Añada 130 mg de octanosulfonato de sodio monohidratado y mezcle bien.
- Filtre al vacío la solución mediante un filtro de 0,2 µm agitando durante 1 h. La agitación permite que los gases atrapados escapen de la solución, y el vacío ayuda en este proceso y también en la filtración.
- Someta la solución a ultrasonidos en un baño ultrasónico (42 kHz) durante 30 min para eliminar las burbujas de aire.
- Envuelva el recipiente en papel de aluminio y rotúlelo adecuadamente.
NOTA: La calidad de los reactivos afecta considerablemente los tiempos de retención. El uso de reactivos grado HPLC ayuda a mantener la consistencia entre corridas. Asimismo, utilizar los mismos reactivos al volver a preparar la fase móvil mantiene la consistencia en los resultados.
4. Preparación de los patrones
- Para preparar los patrones, pese individualmente 10 mg de OA, DA y 5-HT sobre papel de pesaje.
- Coloque la cantidad pesada en frascos de vidrio separados de 125 mL para preparar soluciones stock individuales. Vuelva a pesar el papel vacío para calcular la cantidad exacta de OA, DA o 5-HT que llegó a los frascos.
- Calcule la cantidad de disolvente que debe añadirse para alcanzar una concentración de 100 ng/µL del analito. Si se añadieron los 10 mg completos, use 100 mL de disolvente. Para OA y DA, utilice ácido clorhídrico 0,1 M como disolvente. Para 5-HT, use ácido acético 0,1 M en su lugar.
- Suplemente los patrones con 2Na-EDTA hasta una concentración final de 1 mg/mL. Mezcle bien hasta que se disuelva completamente. Envuelva el frasco con papel de aluminio para protegerlo de la luz y almacénelo a 4 °C.
NOTA: Los patrones pueden almacenarse hasta 3 meses bajo estas condiciones.
5. Preparación de las soluciones de calibración
NOTA: Para crear una curva de calibración, prepare tres estándares con BAs mixtas en diferentes concentraciones. En este ejemplo, utilizamos soluciones de trabajo de 0,03 ng/µL, 0,01 ng/µL y 0,001 ng/µL. La inyección de 10 µL producirá cantidades estándar de 0,3 ng, 0,1 ng y 0,01 ng, respectivamente.
- Comience preparando una mezcla stock de 1 ng/µL añadiendo 1 µL de cada stock de BA de 100 ng/µL a 97 µL de Ácido acético 0,02 M - 1 mg/mL 2Na-EDTA. Mezcle bien.
- Tome 2 µL de la mezcla stock de 1 ng/µL y añádalos a 64,6 µL de Ácido acético 0,02 M - 1 mg/mL 2Na-EDTA. Mezcle bien. Esta es la solución de trabajo de 0,03 ng/µL.
- Tome 2 µL de la mezcla stock de 1 ng/µL y añádalos a 18 µL de Ácido acético 0,02 M - 1 mg/mL 2Na-EDTA. Mezcle bien. Esta es la solución de trabajo de 0,1 ng/µL. Esta solución no se inyecta en este protocolo, sino que solo se utiliza para diluciones seriadas.
- Tome 4 µL de la solución stock de 0,1 ng/µL y añádalos a 36 µL de Ácido acético 0,02 M - 1 mg/mL 2Na-EDTA. Mezcle bien. Esta es la solución de trabajo de 0,01 ng/µL.
- Finalmente, tome 4 µL de la solución stock de 0,01 ng/µL y añádalos a 36 µL de Ácido acético 0,02 M - 1 mg/mL 2Na-EDTA. Mezcle bien. Esta es la solución de trabajo de 0,001 ng/µL.
NOTA: Guarde estos patrones en un recipiente protegido de la luz. Todas las soluciones patrón de trabajo deben prepararse recién.
6. Configuración e inyección del ensayo
NOTA: Todos los sistemas de HPLC funcionan según los mismos principios. Sin embargo, las diferencias en el hardware pueden provocar una gran variación en el tiempo de retención y la duración del análisis. Además, la sensibilidad del detector electroquímico (ECD) dará lugar a diferentes límites de detección. Estos deberán definirse empíricamente. En este estudio se utilizó un sistema de cromatografía líquida de alta resolución (HPLC) equipado con una columna de fase reversa C18.
- Encienda el equipo de HPLC, incluyendo la bomba y el detector electroquímico. Establezca el caudal en 100 µL/min y permita que el detector electroquímico alcance una línea base estable. Esto debería tardar entre 10 y 30 minutos.
- Una vez que las muestras estén listas para inyectarse, ajuste el caudal a 500 µL/min. Deje que el sistema se estabilice durante 5 minutos. Mientras tanto, enjuague tres veces una jeringa Hamilton de 20 µL con agua ultrapura.
- Aspire entre 10 y 20 µL de muestra hacia la jeringa. El volumen dependerá de la capacidad del bucle de muestra. Consulte el manual del bucle de muestra para obtener más información.
- Asegúrese de que no haya burbujas en la jeringa al inyectar. Cualquier gas atrapado interferirá con el bombeo correcto de la fase móvil o con las mediciones del ECD. Si hay burbujas, devuelva la muestra e intente cargar nuevamente la jeringa.
- Introduzca completamente la aguja en el puerto de inyección. Coloque la palanca en la posición de carga e inyecte la muestra presionando el émbolo de la jeringa hasta que todo el líquido haya salido de esta. Baje la palanca del inyector a la posición «inject» (inyección). El análisis ha comenzado y, bajo estas condiciones, debería completarse en 30–35 minutos.
- Si hay más muestras por analizar, deje que el sistema funcione durante 10–15 minutos a 500 µL/min antes de inyectar la siguiente.
NOTA: Si hay fluctuaciones constantes en la señal del ECD, revise los cambios en la presión del sistema. El gas atrapado en el sistema puede causar un flujo irregular y un fondo más alto de lo normal. Purifique el sistema con una solución fresca a alta velocidad, evitando el ECD, para resolver este problema.
7. Recuperación y análisis de datos
NOTA: Existen varios convertidores analógicos-digitales y software disponibles para recopilar y analizar este tipo de datos. Pueden diferir en la forma en que procesan los datos; sin embargo, comparten principios generales. En este estudio se utilizaron respectivamente un software de conversión de datos y un software de adquisición y análisis de datos cromatográficos.
- Los cambios en la corriente/voltaje derivados de la oxidación de las BA, capturados por el ECD, serán convertidos por el convertidor analógico-digital. La concentración de BA es proporcional al cambio en la corriente/voltaje.
- Utilice el área bajo la curva obtenida de las gráficas de corriente versus tiempo provenientes de los análisis estándar de BA para estimar una curva de calibración. Los valores se representarán mediante una regresión lineal en una gráfica de Corriente/Voltaje (nA o mV) versus Cantidad (ng).
- Usando la ecuación lineal, calcule la concentración de BA en su muestra.
Resultados
Los compuestos biológicos se oxidan a diferentes voltajes. En una matriz compleja, como los tejidos cerebrales, elegir el potencial adecuado para la detección electroquímica (ECD) permitirá una cuantificación más limpia y precisa. Aquí, elegimos dos voltajes distintos para mostrar el impacto de este factor en la identificación y cuantificación de OA, DA y 5-HT en muestras cerebrales de Drosophila. Usando 950 mV, podemos detectar fácilmente estas tres aminas en una mezcla (Figura 1A), mientras que solo se observan dopamina y serotonina a 650 mV (Figura 1B). Esto concuerda con los voltajes de oxidación de estos compuestos: 900–1000 mV para OA, 600–700 mV para DA y 5-HT. Los tiempos de retención para OA, DA y 5-HT son 6 min, 11 min y 29 min, respectivamente. La cuantificación de tres cantidades diferentes, 0,01 ng, 0,1 ng y 0,3 ng, produce curvas de calibración comparables a 950 mV o 650 mV (Figura 1C,D, respectivamente). Estas curvas demuestran la linealidad y sensibilidad del ensayo para cada analito en el rango de concentraciones ensayado a cada potencial de detección.
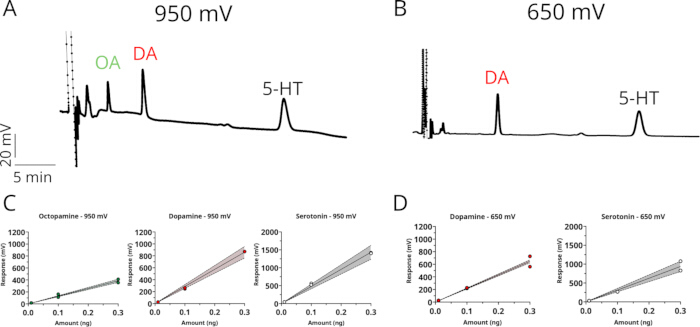
Figura 1: Detección y cuantificación de aminas biogénicas mediante HPLC-ECD a dos potenciales de oxidación. (A,B) Cromatogramas representativos que muestran la separación de patrones de octopamina (OA), dopamina (DA) y serotonina (5-HT) detectados a un potencial aplicado de (A) 950 mV o (B) 650 mV. Eje vertical: respuesta (mV); eje horizontal: tiempo de retención (5 min por marca, indicado por la barra de escala). (C,D) Curvas de calibración para cada analito a (C) 950 mV y (D) 650 mV, representando gráficamente la respuesta del pico (mV) frente a las cantidades del patrón (ng; 0,01–0,3 ng). Las líneas continuas representan los ajustes de regresión lineal, las bandas sombreadas indican los intervalos de confianza del 95 %, y los círculos rellenos y abiertos representan dos inyecciones individuales del patrón por concentración. Haga clic aquí para ver una versión más grande de esta figura.
Las muestras complejas, como las provenientes de extractos cerebrales, suelen ser responsables de un fondo biológico considerable. Siguiendo el protocolo descrito aquí, se determinó el efecto del voltaje del electrodo en la detección y cuantificación de las BA en muestras cerebrales. Se recolectaron moscas adultas macho cuando se encendieron las luces tras 2 días completos de sincronización, y sus cerebros se disectaron en PBS frío y luego se colocaron en PCA 0,2 N sobre hielo. Tras la disociación del tejido y la centrifugación, el sobrenadante se equilibró con acetato de sodio 1 M, y se inyectaron 10 µL. Al ajustar el potencial del electrodo a 950 mV, se obtienen picos para octopamina, dopamina y serotonina en los tiempos de retención respectivos (Figura 2A, traza negra). Sus identidades se confirmaron adicionalmente mediante el análisis de una muestra enriquecida con cantidades conocidas (0,01 ng de cada una) de cada BA (Figura 2A, traza roja). Sin embargo, se observan varios picos adicionales cercanos a los analitos de interés, lo que puede complicar la cuantificación. Ajustar el potencial del electrodo a 650 mV resuelve este problema, pero a expensas de la detección de octopamina (Figura 2B). Como en la Figura 1, la OA no se separa a 650 mV, lo que concuerda con su mayor potencial de oxidación.
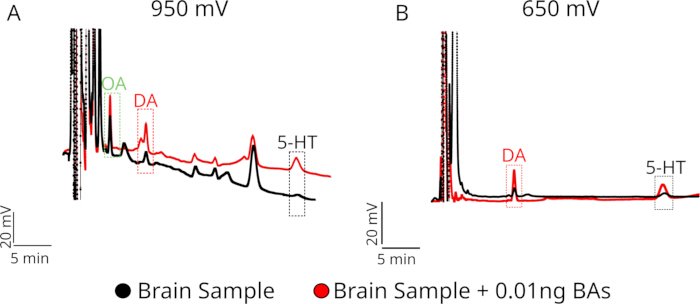
Figura 2: Identificación de aminas biogénicas endógenas en muestras de cerebro mediante el aumento de picos (adición de estándares) a dos potenciales de oxidación. (A,B) Cromatogramas representativos de un extracto de tejido cerebral analizado mediante HPLC-ECD a un potencial aplicado de (A) 950 mV o (B) 650 mV, mostrados antes (trazo negro, «Muestra de cerebro») y después (trazo rojo, «Muestra de cerebro + 0,01 ng de ABs») de la adición de una cantidad conocida (0,01 ng) de estándares de octopamina (OA), dopamina (DA) y serotonina (5-HT). Las cajas punteadas indican las ventanas de tiempo de retención para cada analito. Eje vertical: respuesta (20 mV, indicado por la escala); eje horizontal: tiempo de retención (5 min, indicado por la barra de escala). Haga clic aquí para ver una versión más grande de esta figura.
Siguiendo el mismo protocolo, utilizamos HPLC-ECD para detectar diferencias en el contenido de aminas biogénicas en los cerebros de moscas que expresan α-sinucleína en neuronas dopaminérgicas (TH-T2A-GAL4 > UAS-SNCA.J34), un modelo de mosca de la enfermedad de Parkinson. Estudios previos que utilizan un modelo de EP basado en mutaciones en el gen Pink1 han mostrado diferencias en los niveles de dopamina en moscas tan jóvenes como de 0-3 días de edad35. Aquí, se utilizaron moscas de 3 a 6 días de edad para comparar los niveles de dopamina y serotonina. Los niveles de dopamina estuvieron significativamente elevados en las moscas con EP, en comparación con las moscas control (Figura 3A), mientras que los niveles de serotonina no cambiaron (Figura 3B). El aumento en los niveles de dopamina en las etapas tempranas podría reflejar mecanismos compensatorios antes del inicio de los síntomas de la EP en este modelo (revisado en Blesa J et al.36).
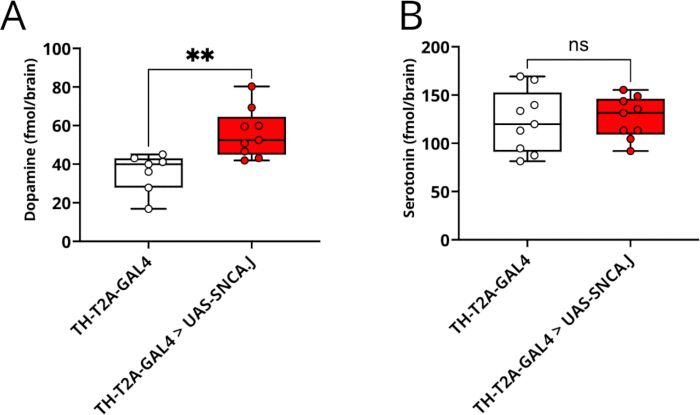
Figura 3: Cuantificación de los niveles de dopamina y serotonina en un modelo de Drosophila de la enfermedad de Parkinson mediante HPLC-ECD. Niveles tisulares de dopamina (A) y serotonina (B) en tejido cerebral completo, expresados como fmol/cerebro, en moscas control (TH-T2A-GAL4, n = 7 en A y n = 9 en B) y en moscas del modelo de enfermedad de Parkinson (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). En este modelo, la secuencia humana de α-sinucleína optimizada en codones (SNCA.J) se sobreexpresa selectivamente en neuronas dopaminérgicas bajo el control del conductor TH-T2A-GAL4. Los datos se presentan como diagramas de caja y bigotes (mediana, rango intercuartílico y valores mínimo-máximo), superpuestos con puntos de datos individuales, cada uno representando un réplica biológica (n) compuesta por 5 cerebros agrupados. La significancia estadística se determinó mediante la prueba t no pareada (**p < 0,01, ns, no significativo). Haga clic aquí para ver una versión más grande de esta figura.
Discusión
La HPLC es una técnica de separación altamente personalizable. Por ello, muchos pasos de este protocolo pueden modificarse. La obtención de resultados confiables depende de la atención cuidadosa y la consistencia en estas modificaciones. La polaridad relativa de las fases estacionaria y móvil define el modo de separación: en fase normal, se combina una fase estacionaria polar con una fase móvil no polar, mientras que en fase reversa se combina una fase estacionaria no polar con una fase móvil polar. El análisis de aminas biogénicas en tejidos biológicos generalmente utiliza condiciones de fase reversa. En este estudio se empleó una fase móvil de citrato-acetato con metanol como disolvente principal; sin embargo, mediciones similares se han realizado con éxito utilizando un tampón fosfato con acetonitrilo como disolvente22,26,35. Por lo tanto, la composición del tampón puede modificarse según la resolución y forma deseadas de los picos. Cambiar la composición de la fase móvil probablemente alterará los tiempos de elución37. Esto podría provocar solapamiento de picos, dificultando o impidiendo la cuantificación. Para resolver este problema, los cambios de pH son la solución más eficaz, ya que la interacción del analito con la columna depende fuertemente de su pKa38.
Las aminas pueden sufrir degradación oxidativa, por lo que la recolección y el tratamiento de tejidos son aspectos importantes en el protocolo. Recolectar las muestras sobre hielo seco y mantenerlas a -80 °C hasta su procesamiento es un paso fundamental. Una vez diseccionadas, las muestras deben homogeneizarse rápidamente en condiciones ácidas, lo que evita la descomposición de las BA30,39,40. En este contexto, otros ácidos pueden ser útiles si el acceso al PCA es limitado. Una combinación de ácido fórmico, un agente oxidante no explosivo alternativo al PCA, y metanol también podría utilizarse para la extracción; sin embargo, no hemos probado esto en muestras de cerebro de Drosophila41.
La elección del detector determina qué se puede medir y con qué sensibilidad; las opciones comunes incluyen detectores de UV/visible, fluorescencia y espectrometría de masas, cada uno adecuado para diferentes propiedades del analito y requisitos de sensibilidad. La detección electroquímica es especialmente adecuada para catecolaminas e indolaminas como la DA y la 5-HT, que se oxidan directamente en el electrodo de trabajo generando una corriente proporcional a su concentración. Se ha indicado que la ECD es una técnica más sencilla y precisa en comparación con métodos alternativos de detección, como la detección por fluorescencia y la detección por ultravioleta, los cuales a menudo requieren más pasos antes de que las muestras puedan analizarse, lo que los hace más complejos o más lentos42,43. La HPLC-ECD ofrece una sensibilidad excepcional, ya que puede detectar analitos en muestras biológicas a concentraciones del orden de los femtomoles44. Dado que un solo cerebro de Drosophila proporciona únicamente una cantidad muy pequeña de tejido, este nivel de sensibilidad es esencial. De forma crucial, la HPLC-ECD también permite la cuantificación simultánea de múltiples aminas biógenas a partir de una sola muestra, lo que significa que el perfil completo de monoaminas de una preparación del sistema nervioso central de Drosophila puede obtenerse en un único análisis.
El método tiene limitaciones inherentes que definen su alcance. Aunque este método es altamente sensible, la cuantificación de aminas biogénicas (AB) a partir de muestras de Drosophila requiere agrupar cerebros. Por lo tanto, no se ha reportado la detección a partir de un solo cerebro, como ocurre con otros enfoques45. Otra desventaja es el ensuciamiento del electrodo. El ensuciamiento del electrodo puede ocurrir con el tiempo cuando los subproductos oxidativos forman una capa aislante delgada sobre la superficie, lo que afecta la sensibilidad y provoca una deriva en la señal46. Esto es particularmente evidente en nuestros resultados al utilizar un voltaje de oxidación más alto (Figura 2). Para tener en cuenta tales cambios, puede ser útil repetir inyecciones de estándares tras varias corridas. También será necesario repetir las inyecciones de estándares cada vez que se modifique la fase móvil o el potencial de detección, para compensar cualquier desplazamiento en los picos observados. Limpiar periódicamente el electrodo puede ayudar a mitigar este problema. Otra desventaja es que la HPLC-ECD proporciona una medición estática y en bloque del contenido de aminas, integrada en todo el tejido sometido al análisis. Este método no ofrece información sobre la localización de esas aminas en el cerebro, ni sobre las contribuciones relativas de poblaciones neuronales específicas. Los compuestos no electroactivos, como el GABA y el glutamato, no son detectables bajo condiciones estándar de ECD y requieren ensayos separados. Quizás lo más importante es que la HPLC-ECD es un método dirigido. No puede utilizarse para identificar moléculas desconocidas que podrían estar correlacionadas con un fenotipo conductual, ya que depende completamente de la comparación de tiempos de retención con estándares conocidos y bien caracterizados. Para el descubrimiento no dirigido de correlatos neuroquímicos del comportamiento, técnicas como la LC-MS/MS serían más adecuadas, aunque con un costo más elevado.
Dentro de estos límites, la HPLC-ECD aborda un conjunto bien definido y biológicamente relevante de preguntas en Drosophila modelos de trastorno. Puede determinar si un genotipo o un tratamiento altera los niveles estacionarios de aminas y si tales cambios son selectivos para un sistema de transmisión determinado o afectan al perfil más amplio de monoaminas. Puede rastrear los cambios neuroquímicos a lo largo de las etapas del desarrollo o de la progresión de la enfermedad, aportando evidencia sobre estados bioquímicos presintomáticos que preceden a fenotipos conductuales detectables47. También es muy adecuado para evaluar si una intervención farmacológica o genética normaliza, excede o no logra revertir los déficits de aminas en un modelo determinado26. Abordar preguntas como en qué etapa cambia cada amina, si fijar un sistema perturba a otro, y si una perturbación durante el desarrollo deja un rastro neuroquímico duradero es precisamente para lo que se ha diseñado un método sensible, en bloque y multiplexado para aminas. Utilizado junto con los ensayos conductuales y las herramientas genéticas disponibles en Drosophila, la HPLC-ECD proporciona una capa bioquímica cuantitativa que amplía sustancialmente el alcance interpretativo de estos modelos de trastorno.
Divulgaciones
Los autores declaran que no existen conflictos de intereses.
Agradecimientos
Este trabajo fue apoyado por la subvención R00NS133470 de los Institutos Nacionales de Salud (S.H.). El contenido es responsabilidad exclusiva de los autores y no representa necesariamente las opiniones oficiales de los Institutos Nacionales de Salud. R.V.Z. cuenta con el apoyo de la Subvención a la Instalación en la Academia (SIA) N°85250142, y J.M.C. cuenta con el apoyo de FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Chile.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| (±) Octopamina Clorhidrato | Sigma Aldrich | 770-05-8 | |
| Unidad de Filtro de 500 mL | Thermo Scientific | FB12566504 | Membrana aPES de 0,2 µm, diámetro de 75 mm |
| Ácido Acético, Glacial | Fisher Scientific | 64-19-7 | |
| Ácido Cítrico Anhidro | USB | 77-92-9 | |
| Software de Cromatografía Clarity | Data Apex | Version 10.1 | |
| Convertidor de Datos Colibrick | Data Apex | Convertidor A/D | |
| Dopamina Clorhidrato | Sigma Aldrich | 62-31-7 | |
| Pinzas Dumont #5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | Pinzas de disección |
| EDTA, Sal Disódica, Dihidrato, Cristal (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Columna de Separación en Fase Reversa |
| Agua Ultrapura UV-R EMD Milipore Synergy (Tipo 1) | Milipore | ||
| Jeringa Hamilton de 25 µL (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | Equipo de HPLC | |
| Ácido Clorhídrico | Sigma Aldrich | 7647-01-0 | |
| Toallas para Tejidos de Uso Ligero | VWR | 82003-820 | |
| Metanol, Grado HPLC | Fisher Scientific | 67-56-1 | Filtrado de 0,2 micrones |
| Ácido Perclórico, 70% en agua | Fisher Scientific | AC424032500 | Usar para PCA 0,2 N |
| Serotonina Clorhidrato 98% | Fisher Scientific | 153-98-0 | |
| Octanosulfonato de Sodio Monohidratado, Grado HPLC, 99+% | Thermo Scientific | 5324-84-5 | |
| Acetato de Sodio, Trihidrato, Cristal | J.T Baker | 6131-90-4 | |
| Sonificador 1510 Bransonic Ultrasonic Cleaner | Branson | Model #: 1510R-MT | Sonificador |
| Procesador Ultrasónico Sonificador | Fisherbrand | Model FB50 | Con sonda CL18 |
Referencias
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente