Este protocolo proporciona una guía para la imagen confocal en vivo de la dinámica de los microtúbulos utilizando marcadores fluorescentes de microtúbulos en neuronas sensoriales larvales de Drosophila.
Artículo de método
Imagen de la dinámica de microtúbulos in vivo en dendritas sensoriales de Drosophila
* These authors contributed equally
En este artículo
Resumen
Resumen
Las neuronas sensoriales larvarias de clase IV de Drosophila se encuentran justo debajo de la cutícula y se caracterizan por arborizaciones dendríticas altamente ramificadas que se expanden de forma isotrópica en dos dimensiones a medida que las larvas se desarrollan. El crecimiento de estas arborizaciones está impulsado por procesos estocásticos que implican crecimiento, retracción y pausas en las puntas terminales dendríticas. Para probar la hipótesis de que la dinámica de las puntas está impulsada por la dinámica de los microtúbulos, se han desarrollado protocolos para obtener imágenes de microtúbulos marcados con fluorescencia dentro de las dendritas. Este método permite visualizar la dinámica de los microtúbulos en dendritas terminales finas de las neuronas sensoriales de clase IV mediante microscopía confocal. Está diseñado para preservar la morfología de la arborización dendrítica durante la obtención de imágenes, a la vez que permite visualizar los microtúbulos junto con un marcador de membrana. Este manuscrito describe los procedimientos utilizados para preparar larvas de Drosophila para la obtención de imágenes en vivo y para visualizar microtúbulos marcados con fluorescencia en las dendritas. Por lo tanto, el protocolo proporciona un enfoque para examinar el comportamiento de los microtúbulos en dendritas terminales finas, manteniéndose compatible con la marcación simultánea de la membrana.
Introducción
Las neuronas son células altamente polarizadas cuyo citoesqueleto define su arquitectura. Los microtúbulos, un componente del citoesqueleto neuronal, proporcionan soporte estructural y sirven como vías para el transporte de cargas a larga distancia1,2. El citoesqueleto de microtúbulos es crucial para el desarrollo de las dendritas3. Las dendritas crecen de forma estocástica mediante un proceso de ramificación, alargamiento y contracción4. Las neuronas de arborización dendrítica (da) en larvas de Drosophila constituyen un potente sistema modelo in vivo para estudiar la morfogénesis dendrítica. Estas neuronas sensoriales se agrupan en cuatro clases (I–IV) según su complejidad dendrítica creciente3,5. Las neuronas da de clase IV poseen dendritas complejas y altamente ramificadas y funcionan como nociceptores multimodales6,7,8. Las dendritas de estas neuronas forman campos receptivos estereotipados a lo largo de los segmentos abdominales y se sitúan justo debajo de la cutícula transparente9,10. Esta anatomía, junto con la facilidad genética de Drosophila, convierte a las neuronas da de clase IV en un sistema adecuado para visualizar el desarrollo dendrítico in vivo con alta resolución espacial y temporal. A medida que las dendritas crecen durante el desarrollo, sus extremos transitan estocásticamente entre estados de crecimiento, retracción y pausa11. El crecimiento y la retracción de los extremos presentan muchas similitudes cinéticas con el crecimiento y la retracción de los microtúbulos12. Por lo tanto, visualizar la dinámica de los microtúbulos en estas células es de gran interés.
Un enfoque común para visualizar la dinámica de los microtúbulos en células vivas, incluidas las de larvas de Drosophila, consiste en obtener imágenes de proteínas marcadoras del extremo, como EB1 y EB3, marcadas con fluorescencia13,14,15,16,17,18. Sin embargo, la interpretación de las señales de EB-GFP puede ser ambigua. Por ejemplo, un punto distal de EB-GFP que se mueve lejos del cuerpo celular podría representar un extremo positivo de microtúbulo en crecimiento hacia afuera o el extremo positivo en crecimiento de un microtúbulo que se desliza en dirección distal. Aunque EB-GFP etiqueta predominantemente los extremos positivos de los microtúbulos en crecimiento, también puede marcar extremos negativos en crecimiento19, lo que añade más ambigüedad. La visualización directa de los microtúbulos puede reducir estas ambigüedades.
Un enfoque alternativo al EB-GFP es la marcación directa de los microtúbulos mediante GFP-tubulina20,21. Sin embargo, la tubulina fluorescente marca de forma robusta las dendritas proximales22, pero no logra marcar las dendritas distales23. Otra dificultad con la tubulina fluorescente es que la alta concentración de tubulina soluble dificulta distinguir microtúbulos individuales en procesos estrechos como las dendritas terminales. Por lo tanto, la obtención de imágenes de la dinámica de los microtúbulos en neuronas intactas bajo condiciones fisiológicas normales sigue siendo un reto.
La proteína asociada a microtúbulos (MAP) Drosophila Jupiter, un homólogo estructural de las proteínas Tau, MAP2 y MAP4 de mamíferos, se ha utilizado para marcar microtúbulos en tejidos de Drosophila, incluyendo el ovario y los embriones24. En las dendritas de clase IV, mCherry-Jupiter y sfGFP-Jupiter se han utilizado para cuantificar microtúbulos en ramas proximales22,25,26. Este protocolo describe un método de imagen en vivo que permite la observación con alta resolución y en lapsos de tiempo del comportamiento de los microtúbulos neuronales en dendritas distales de neuronas de clase IV de Drosophila, utilizando líneas de moscas que expresan el dominio de unión a tubulina marcado con fluorescencia de Jupiter.
Protocolo
Este estudio utilizó Drosophila melanogaster, un modelo invertebrado para el cual no se requirió la aprobación institucional de ética animal. Las herramientas utilizadas para el protocolo se enumeran en la Tabla de Materiales.
1. Generación de líneas experimentales de moscas
- Establezca un cruce para obtener la línea parental deseada. Utilice el sistema binario GAL4/UAS para inducir la expresión de mNeonGreen (mNG)-Jupiter en neuronas de arborización dendrítica (da) de clase IV que expresan GAL4 bajo el promotor ppk.
- Cruce hembras vírgenes de una línea homocigota UAS-mNG-Jupiter con machos de una línea homocigota ppk-GAL4; CD4tdTomato. Obtenga descendencia F1 que porten tanto ppk-GAL4; CD4tdTomato como UAS-mNG-Jupiter.
NOTA: La descendencia F1 que porta tanto ppk-GAL4; CD4tdTomato como UAS-mNG-Jupiter expresa fuertemente mNG y CD4tdTomato en las neuronas da de clase IV. Realice imágenes con larvas derivadas de al menos tres cruces genéticos independientes, con un mínimo de seis larvas analizadas por cruce. - Mantenga el cruce en un frasco de cultivo para apareamiento, aplicando una pequeña cantidad de pasta de levadura en la pared. Incube a 25 °C durante 2–3 días.
NOTA: Alimentar con levadura aumenta la puesta de huevos y la oviposición. - Prepare la pasta de levadura colocando una cucharada de levadura en un vaso pequeño y agregando unas gotas de agua. Mezcle bien con una espátula hasta que la pasta alcance una consistencia semisólida, añadiendo agua gota a gota según sea necesario.
- Transfiera las moscas a un frasco de mantenimiento nuevo que contenga pasta de levadura fresca cada día.
NOTA: Asegúrese de que la pasta de levadura no esté demasiado blanda ni demasiado acuosa. Si queda demasiado blanda, las moscas podrían quedar atrapadas. Para más detalles metodológicos, consulte Hales et al.27 y Roote y Prokop28.
2. Puesta de huevos en placas de agar-uva, recolección de huevos y determinación de estadios larvales
- Prepare aproximadamente 0.5 L de medio de agar-uva combinando 376 mL de agua destilada, 126 mL de jugo de uva, 15 g de agar y 6 g de sacarosa en un vaso de precipitados de 1 L apto para microondas.
- Someta a microondas durante 3–5 min, agitando cada 1 min hasta que el agar se disuelva completamente. Deje enfriar ligeramente la mezcla y luego añada 10 mL de etanol y 5 mL de ácido acético.
- Mezcle bien y vierta el medio en placas de Petri de 60 mm para preparar las placas de agar-uva. Prepare las placas con antelación, almacénelas a 4 °C colocándolas apiladas boca abajo y envueltas en fundas para placas de Petri, y úselas dentro de las 2 semanas. Precaliente las placas a temperatura ambiente antes de usarlas.
- Transfiera aproximadamente 150 moscas, compuestas por 50 machos y 100 hembras, desde el frasco de mantenimiento a una jaula de puesta de huevos.
- Cubra la jaula de puesta de huevos con una placa de agar-uva de 60 mm que contenga una pequeña cantidad de pasta de levadura.
- Permita que las moscas depositen los huevos a 25 °C durante 2 h en la placa de agar-uva que contiene la pasta de levadura. Reemplace la placa por una placa de agar-uva nueva que contenga pasta de levadura y permita la puesta de huevos durante otras 2 h.
- Proporcione una tercera placa de agar-uva de 60 mm que contenga pasta de levadura y permita que las moscas depositen huevos durante 2 h más.
- Utilice la tercera placa como placa experimental y deseche las dos primeras placas para minimizar la heterogeneidad en la edad de los embriones.
NOTA: La recolección inicial de huevos suele contener embriones en diferentes estadios de desarrollo porque las hembras de Drosophila pueden retener huevos fertilizados en el tracto reproductivo durante varias horas antes de ponerlos. Desechar las placas iniciales ayuda a obtener huevos más sincronizados. - Para la obtención de imágenes según estadios posteriores a la puesta de huevos (AEL), permita que los embriones en las placas experimentales envejezcan a 25 °C hasta alcanzar el estadio deseado: Estadio 1, 24 h; Estadio 2, 48 h; Estadio 3, 72 h; y Estadio 4, 96–120 h.
3. Limpieza de las larvas
- Lave las larvas con 5 mL de solución de sacarosa al 5%, seguido de 5 mL de H₂O dH, para eliminar los restos de levadura de la superficie y prevenir la desecación.
- Transfiera las larvas, normalmente tres o cuatro, a la tapa de una placa de cultivo celular de 35 mm utilizando un pincel nº 3/0. Seque las larvas con un papel de laboratorio para eliminar el exceso de agua.
4. Anestesia
- Limpie y seque las larvas antes de la anestesia.
- Prepare de antemano el equipo para la anestesia (Figura 1). Coloque el recipiente para cultivo celular dentro del recinto de cartón para reducir el movimiento de aire sobre el recipiente y minimizar la interrupción de la anestesia con isoflurano.
PRECAUCIÓN: El isoflurano es un anestésico volátil. Manipule y use el isoflurano con ventilación adecuada en el laboratorio y de acuerdo con los procedimientos institucionales de seguridad química. Inmovilice las larvas añadiendo el volumen medido de isoflurano al aplicador anestésico fijado con cinta adhesiva dentro de un recipiente para cultivo celular de 35 mm que sirve como depósito de evaporación. - Coloque la tapa del recipiente para cultivo celular que contiene las larvas limpias y secas encima del recipiente para cultivo celular.
- Anestesie las larvas durante 2–3 min.
NOTA: El volumen de isoflurano y la duración de la anestesia dependen del estadio larval y del número de larvas. Determine la cantidad empíricamente. Por ejemplo, use 10–20 µL de isoflurano durante 2 min para anestesiar tres larvas de 72 h durante aproximadamente 30 min. Utilice 5 µL de isoflurano por larva por min como dosis inicial para la inmovilización, independientemente del estadio larval.
5. Montaje
- Realice un recinto rectangular o circular con vaselina sobre un portaobjetos de microscopio limpio y deje un pequeño espacio en una esquina (Figura 1C). Utilice un aplicador de henna para trazar el recinto sobre el portaobjetos.
- Transfiera las larvas anestesiadas al recinto utilizando un pincel. Monte las larvas con el lado dorsal hacia arriba en una gota de aceite de halocarburo 700.
- Coloque un cubreobjetos No. 1.5 sobre la larva. Aplique presión suave hasta que la vaselina selle el espacio entre el cubreobjetos y el portaobjetos y la larva quede ligeramente aplanada contra el portaobjetos del microscopio.
- Obtenga imágenes de la muestra inmediatamente durante un período de hasta 30–45 minutos a partir del paso de transferencia descrito en el paso 5.2. Detenga la adquisición de imágenes si se observan blebs o daño neuronal, incluyendo rotura dendrítica, en el canal de membrana; utilice una dosis más baja de anestésico.
NOTA: Asegúrese de que no haya burbujas presentes en el aceite de halocarburo después de colocar el cubreobjetos. Evitar burbujas es necesario para obtener videos dinámicos de alta calidad y para minimizar la deriva. Para minimizar la formación de burbujas de aire, deje un pequeño espacio en una esquina del recinto de vaselina para permitir que el aire escape durante la colocación del cubreobjetos. Selle el espacio con un pincel fino si es necesario.
6. Microscopía y adquisición de imágenes
- Realice imágenes en vivo de las muestras larvales utilizando un microscopio confocal de disco giratorio equipado con un orificio de 50 µm y un sistema de enfoque perfecto.
- Configure las líneas láser de 488 nm y 561 nm al 30% de la potencia máxima, suponiendo láseres de 100 mW, para visualizar el marcador de microtúbulos, como mNG-Jupiter, y el marcador de membrana, CD4tdTomato.
- Establezca el tiempo de exposición en 200 ms. Capture las imágenes utilizando una cámara sCMOS con sensores de 6,5 µm y el software asociado de adquisición de imágenes.
- Adquiera todas las imágenes utilizando un objetivo de inmersión en agua de 40× con una apertura numérica de 1,25 y un tamaño de píxel de 0,1614 µm.
- Enfoque manualmente la muestra para localizar los hemisegmentos abdominales segundo, tercero y cuarto de la superficie dorsal, donde las neuronas de clase IV son fácilmente accesibles a través de la cutícula transparente.
- Para cada registro, adquiera un conjunto de z-stacks que abarquen hasta 10 µm de profundidad con pasos de 1 µm. Adquiera los stacks a intervalos de 10 s durante 10 o 15 min.
NOTA: A menos que se indique lo contrario, utilice larvas a las 72 h AEL para la adquisición de imágenes.
7. Procesamiento y análisis de imágenes
- Importe las películas de lapso de tiempo adquiridas en formato .ND2 a FIJI (Fiji Is Just ImageJ) utilizando el importador Bio-Formats. Convierta las películas al formato TIFF para su análisis posterior.
- Estabilice las películas para corregir la deriva de la muestra utilizando el complemento de estabilización de imágenes con ajustes de transformación afín en FIJI.
- Excluya las películas del análisis si el movimiento es excesivo. Considere excesivo un desplazamiento mayor a 1 µm/min y excluya dichas películas del análisis. También excluya las películas si se observan blebs en el canal del marcador de membrana (CD4tdTomato).
- Convierta las pilas en z en series temporales bidimensionales generando proyecciones de intensidad máxima a lo largo del eje z en FIJI.
- Dibuje regiones de interés lineales (ROIs) en FIJI a lo largo de la estructura de interés para cuantificar las propiedades dinámicas de las puntas y los microtúbulos. Utilice el complemento Multi Kymograph en FIJI para generar cimógrafos. Genere el cimógrafo utilizando un barrido de línea de 3 píxeles de ancho a lo largo de la ROI y procéselo con el complemento Multi Kymograph en FIJI.
- Extraiga perfiles de intensidad utilizando la herramienta Perfil de intensidad con un ancho de línea de 3 píxeles. Genere un archivo CSV de varias columnas en el que columnas alternas codifiquen la posición e intensidad a lo largo de cada barrido de línea.
- Estime la intensidad de fondo a partir de una ROI equivalente en una región vacía del campo. Reste la intensidad de fondo de cada cuadro.
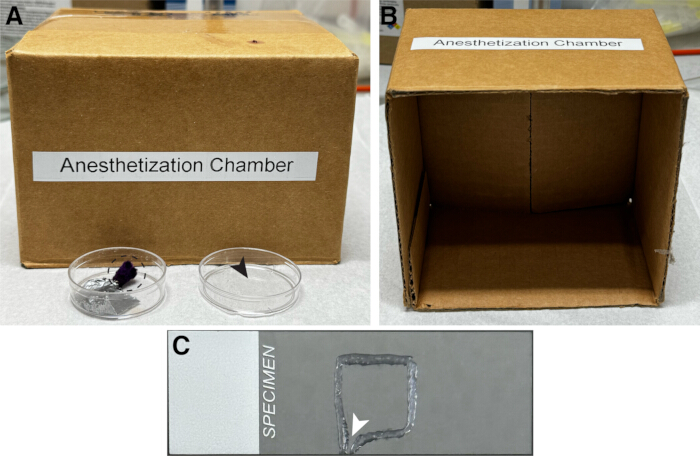
Figura 1: Componentes del montaje para la anestesia. (A) Una caja de cartón pequeña que cubre un platillo de cultivo celular de 35 mm que contiene una varilla anestésica por evaporación sujeta con cinta adhesiva (círculo discontinuo negro). La tapa del platillo de cultivo celular se utilizó para sostener larvas limpias y secas antes y durante la anestesia (flecha negra). (B) Vista interior de la caja. (C) Un portaobjetos con un recinto cuadrado de vaselina preparado usando un aplicador de henna para contener la muestra larval durante la obtención de imágenes. Un pequeño espacio (flecha blanca) facilita la eliminación del aire durante la colocación del cubreobjetos. Haga clic aquí para ver una versión más grande de esta figura.
Resultados
Siguiendo el protocolo descrito anteriormente, se logró visualizar con éxito los microtúbulos en neuronas de arborización dendrítica (da) de clase IV utilizando mNG-Jupiter en combinación con el marcador de membrana CD4tdTomato (Figura 2A–C). El marcador de membrana delimitó la morfología general del arbor dendrítico, mientras que mNG-Jupiter etiquetó las regiones que contienen microtúbulos dentro de las dendritas. En los extremos distales de las dendritas terminales, la fluorescencia de mNG-Jupiter era débil o ausente cerca de las puntas dendríticas, mientras que la fluorescencia de CD4tdTomato permaneció intensa en los terminales correspondientes (Figura 2D–F).
Las arborizaciones dendríticas no mostraron diferencias morfológicas evidentes en comparación con las larvas observadas con el marcador de membrana únicamente en estudios previos11. Para evaluar cuantitativamente si la expresión de mNG-Jupiter causó anormalidades morfológicas, se contó el número de extremos dendríticos en arborizaciones que expresaban mNG-Jupiter y en arborizaciones de control a las 72 h AEL. En ocho células provenientes de ocho larvas con expresión de mNG-Jupiter, el número de extremos en un cuarto de la arborización fue de 153 ± 25 (media ± SD), en comparación con 144 ± 27 (media ± SD) en larvas de control (Figura 2G). No se detectó una diferencia significativa utilizando la prueba de Welch t-prueba (véase la leyenda de la Figura 2). Por lo tanto, la expresión de mNG-Jupiter no alteró de manera detectable el número de ramas dendríticas.
La imagen de lapso de tiempo demostró el comportamiento dinámico de la señal mNG-Jupiter dentro de las dendritas terminales. En la secuencia representativa que se muestra en Figura 3A, la posición del extremo brillante del microtúbulo marcado con mNG-Jupiter cambió con el tiempo. Escaneos sucesivos en línea de la señal mNG-Jupiter se organizaron a lo largo del tiempo para visualizar los cambios en la posición y longitud del microtúbulo. El kymograph resultante en Figura 3B muestra fases alternantes de extensión y retracción de la señal fluorescente, lo cual es consistente con el crecimiento y encogimiento observados del microtúbulo marcado en las dendritas terminales (Vídeos 1 y 2). En dendritas más gruesas, cercanas al soma, el mayor número de microtúbulos impidió la visualización de la dinámica de microtúbulos individuales.
En conjunto, las imágenes representativas y los registros de lapso de tiempo muestran que el protocolo permite la visualización tanto de la morfología dendrítica como de los cambios dinámicos en la fluorescencia asociada a microtúbulos en neuronas sensoriales de larvas de Drosophila intactas. El marcador de membrana proporciona una referencia para la estructura dendrítica, mientras que mNG-Júpiter permite seguir el comportamiento de los microtúbulos dentro de la dendrita a lo largo del tiempo (Figuras 2 y 3).
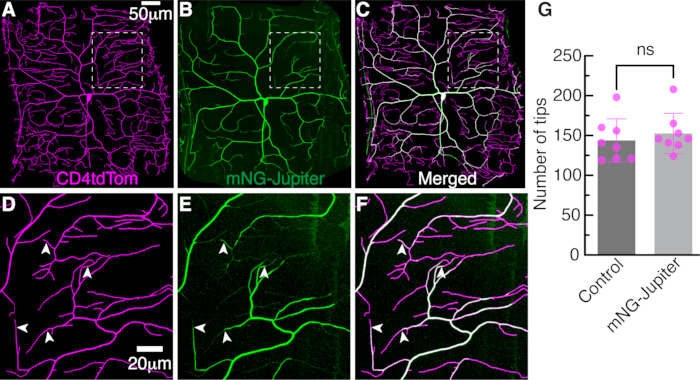
Figura 2: Dendritas en neuronas de clase IV. La arborización dendrítica de una neurona de arborización dendrítica (da) de clase IV, obtenida mediante microscopía confocal de disco giratorio a las 72 h después de la puesta de huevos (AEL). Los microtúbulos se visualizan utilizando el sistema binario de expresión GAL4/UAS. El promotor específico para la célula de clase IV ppk-GAL4 (pickpocket) facilita la expresión de Jupiter marcado con mNG (UAS-mNG-Jupiter). Las membranas dendríticas están marcadas por directa ppk expresión mediada por el promotor de tdTomato fusionado al marcador de membrana CD4 (ppk-CD4tdTomato (A) Marcador de membrana, CD4tdTomato. (B) Marcador de microtúbulos, mNG-Júpiter. (C) Imagen combinada. (D–F) Ampliaciones de las regiones delimitadas por cuadros discontinuos blancos en A–C, respectivamente, ilustran la distribución de los marcadores de microtúbulos y de membrana. Las flechas blancas indican la distribución de mNG-Júpiter en dendritas terminales. (G) Cuantificación del número de extremos dendríticos en neuronas control y en neuronas que expresan mNG-Jupiter a 72 h AEL. Cada punto representa el número de extremos contados en un cuarto de una neurona individual proveniente de una larva distinta. Se analizaron un total de ocho neuronas procedentes de ocho larvas independientes por grupo. Las barras de error representan la media ± SD. Los grupos se compararon mediante una prueba t de Welch no emparejada de dos colas t-prueba; ns, no significativoP > 0.05). Haga clic aquí para ver una versión más grande de esta figura.
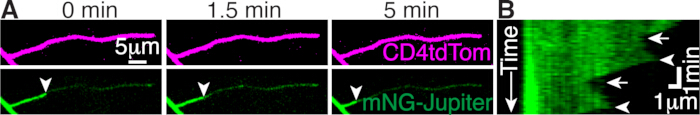
Figura 3: Dinámica de los microtúbulos en una dendrita terminal. (A) Tres imágenes de una dendrita terminal que expresa CD4tdTomato (arriba) y mNG-Jupiter (abajo) en los puntos de tiempo indicados. Las flechas indican el extremo del microtúbulo. Una señal débil de mNG es visible más allá de la señal brillante del microtúbulo. (B) Kymograph que muestra el crecimiento y la contracción de los microtúbulos. Las flechas indican fases de crecimiento, y las flechas indican fases de contracción. Escaneos sucesivos de líneas de 3 píxeles de ancho de la señal mNG se disponen uno debajo del otro, con el tiempo aumentando en dirección descendente. Haga clic aquí para ver una versión más grande de esta figura.
Video 1: Imagen de lapso de tiempo de mNG-Jupiter en neuronas de arborización dendrítica de clase IV. Secuencia de lapso de tiempo que muestra la fluorescencia de mNG-Jupiter en dendritas larvarias de Drosophila de clase IV. La secuencia ilustra los cambios en la fluorescencia asociada a microtúbulos a lo largo del tiempo dentro del arbor dendrítico. Las imágenes se adquirieron utilizando las condiciones de imagen en vivo descritas en el Protocolo. Barra de escala, 20 µm. Haga clic aquí para descargar este archivo.
Video 2: Imagen de lapso de tiempo del marcador de membrana CD4tdTomato en neuronas de arborización dendrítica de clase IV. Secuencia de lapso de tiempo que muestra la fluorescencia de CD4tdTomato en el arbor dendrítico de clase IV del larva de Drosophila. El marcador de membrana proporciona una referencia para la morfología dendrítica durante el período de adquisición de imágenes. Las imágenes se obtuvieron utilizando las condiciones de adquisición en tiempo real descritas en el Protocolo. Barra de escala, 20 µm. Haga clic aquí para descargar este archivo.
Discusión
Este protocolo demuestra el uso de líneas transgénicas de moscas Jupiter para la obtención de imágenes en vivo de la dinámica de los microtúbulos en neuronas sensoriales de Drosophila mediante microscopía confocal. El método permite la visualización de la fluorescencia asociada a microtúbulos en larvas intactas, manteniendo al mismo tiempo la morfología dendrítica, según se evalúa mediante un marcador de membrana11,29. Un enfoque similar también se ha utilizado para obtener imágenes de la dinámica de la actina usando GFP-actina y LifeAct-GFP en neuronas de clase IV22,30,31,32. En principio, el mismo enfoque general también podría aplicarse al estudio de otras proteínas que se unen a microtúbulos en células de clase IV y en otros tipos de neuronas de arborización dendrítica (clases I, II y III). En particular, combinar la marcación fluorescente de microtúbulos con la marcación de EB podría reducir la ambigüedad al interpretar el crecimiento de los microtúbulos. Por ejemplo, la ausencia de un cometa EB podría indicar ya sea la ausencia de microtúbulos o la presencia de microtúbulos que no están creciendo activamente; la visualización directa de los microtúbulos puede ayudar a distinguir entre estas posibilidades. Por lo tanto, la marcación simultánea de mNG-Jupiter con EB1 fluorescente podría permitir la interpretación de la dinámica del crecimiento de microtúbulos dentro del contexto local de la organización, abundancia e orientación inferida de los microtúbulos.
Varios pasos son fundamentales para obtener datos adecuados de imágenes en vivo. El protocolo utiliza el anestésico volátil isoflurano para un régimen definido y breve de inmovilización. La dosis de isoflurano debe controlarse cuidadosamente durante la inmovilización, ya que una anestesia insuficiente permite el movimiento de las larvas, mientras que una anestesia excesiva puede provocar degradación neuronal. También deben evitarse las burbujas de aire durante el montaje, ya que pueden interferir con la calidad de la imagen y contribuir a la deriva de la muestra. Además, debe evitarse una presión excesiva del cubreobjetos, ya que podría causar blebbing dendrítico y daño neuronal subsiguiente. Estos pasos son importantes para mantener la estabilidad de la muestra y la morfología dendrítica durante todo el proceso de adquisición de imágenes.
Una limitación importante de este protocolo es que el método de inmovilización y visualización, que implica la combinación de exposición a anestésicos y restricción física mediante la laminilla, podría influir en la dinámica de los microtúbulos. Para determinar si los microtúbulos se alteran bajo estas condiciones, se pueden utilizar métodos alternativos de inmovilización, ya sea por separado o en combinación con este protocolo. Dichos enfoques incluyen la obtención de imágenes de embriones y el uso de mutantes sensibles a la temperatura, como Shibirets 33, seguido de la comparación de parámetros cinéticos tales como las tasas de crecimiento y la frecuencia de catástrofe.
Con esta limitación, el protocolo actual permite obtener imágenes de larvas durante aproximadamente 30 minutos después del montaje sin presentar formación de blebs dendríticos, deterioro de la morfología o pérdida de la dinámica detectable de microtúbulos y extremos. El método posibilita la adquisición de datos con alta resolución y lapse de tiempo desde larvas intactas, así como la visualización del comportamiento dinámico de los microtúbulos en dendritas terminales.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Los autores agradecen a todos los miembros del laboratorio Howard, especialmente al antiguo miembro del laboratorio, la Dra. Maijia Liao, por iniciar el proyecto de etiquetado de microtúbulos, y a la Dra. Sonal Shree por desarrollar el protocolo para visualizar la dinámica dendrítica en Drosophila dentro del laboratorio Howard. La investigación descrita en esta publicación fue financiada por los Institutos Nacionales de Salud bajo el Número de Subvención R35 GM161634 (Instituto Nacional de Ciencias Médicas Generales) y el Número de Subvención R01 NS118884 (Instituto Nacional de Trastornos Neurológicos y Accidentes Cerebrovasculares) otorgados a J.H. El contenido es responsabilidad exclusiva de los autores y no representa necesariamente las opiniones oficiales de los Institutos Nacionales de Salud. Este trabajo también fue apoyado por la subvención de la NSF PHY-2210464 y el Premio de las Fundaciones PEW 38044 otorgados a J.H.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Ácido acético (glacial, reactivo ACS, ≥99,7 %) | Sigma-Aldrich | 695092 | Utilizado para preparar el medio de agar-uva; 5 mL por cada preparación de aproximadamente 0,5 L |
| Agar (bactoagar) | Becton Dickinson | 214010 | Utilizado para preparar el medio de agar-uva; 15 g por cada preparación de aproximadamente 0,5 L |
| Aplicador de anestésico | Carolina Biological Supply Co. | 173010 | Utilizado para contener el isoflurano dentro del depósito de evaporación durante la anestesia larval |
| Vaso de precipitados, 1 L, apto para microondas | Corning Inc. | 1000-1L | Utilizado para preparar aproximadamente 0,5 L de medio de agar-uva |
| Vaso de precipitados, 100 mL | Corning Inc. | 1000-100 | Utilizado para preparar la pasta de levadura |
| Complemento Bio-Formats | Proyecto Open Microscopy Environment | No aplicable | Complemento de FIJI utilizado para importar archivos de lapso de tiempo en formato .ND2 |
| Cámara (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | Sensor de 6,5 µm; utilizado para la adquisición de imágenes |
| Caja de cartón (5 × 5 × 3 pulgadas) | Uline | S-4579 | Utilizada para cubrir el montaje de anestesia y reducir el movimiento de aire sobre el recipiente de cultivo celular |
| Recipiente de cultivo celular | Corning Incorporated | 430165 | 35 × 10 mm; utilizado para manipular larvas y como depósito de evaporación de isoflurano |
| Cubreobjetos | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, No. 1,5; colocado sobre la larva montada |
| Cámara Darwin | Darwin Chambers | IN030-AA-LT-DA-MP | Utilizada para mantener cruces de moscas, puesta de huevos y estadios larvales a 25 °C |
| Agua destilada, grado reactivo de laboratorio | Research Products International (RPI) | No aplicable | Utilizada para la preparación del agar-uva, la preparación de la pasta de levadura y el lavado de larvas |
| Cinta adhesiva de aluminio | Uline | S-6519 | Utilizada para fijar el aplicador de anestésico dentro del recipiente de cultivo celular |
| Jaula para puesta de huevos/recolección de embriones | Genesee Scientific | 59-100 | Tamaño pequeño; se adapta a una placa de Petri de 60 × 15 mm; utilizada para la recolección controlada de huevos |
| Etileno (anhidro, 200 pruebas) | Decon Labs Inc. | V1001G | Utilizado para preparar el medio de agar-uva; 10 mL por cada preparación de aproximadamente 0,5 L |
| FIJI (Fiji Is Just ImageJ) | NIH | Versión 2.16.0/1.54p | Utilizado para importar imágenes, estabilización, proyección de intensidad máxima, análisis de regiones de interés (ROI), generación de cromogramas y extracción de perfiles de intensidad |
| Líneas de moscas: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Centro de Recursos de Drosophila Bloomington (1); Laboratorio Howard (2) | BDSC# 32078, BDSC# 35845 | Utilizadas para expresar CD4tdTomato y mNG-Jupiter en neuronas de arborización dendrítica de clase IV |
| Jugo de uva, 100 % uva Concord | Welch's | No aplicable | Utilizado para preparar el medio de agar-uva; 126 mL por cada preparación de aproximadamente 0,5 L |
| Aceite de halocarbono 700 | Sigma-Aldrich | H8898 | Utilizado para montar larvas para imágenes en vivo |
| Dispensador de henna | ZEYER | ZEYER-1005 | Utilizado para formar el recinto de vaselina sobre la placa de microscopio |
| Estabilizador de imagen | Desarrollado por Kang Li | No aplicable | Complemento de FIJI utilizado con ajustes de transformación afín para corregir la deriva de la muestra |
| Isoflurano | Santa Cruz Biotechnology, Inc. | sc-470926 | Utilizado para inmovilizar larvas antes del montaje y la obtención de imágenes |
| Paño de laboratorio (Kimwipes) | Kimberly-Clark Professional | 34120 | Utilizado para eliminar el exceso de agua de las larvas lavadas antes de la anestesia |
| Frasco de mantenimiento | Lab Express Inc. | 7001-PBT | Frasco de polipropileno de fondo cuadrado, 6 oz; contiene Fly Food B (receta Bloomington) y se utiliza para mantener stocks y cruces de moscas |
| Microondas | Panasonic | NN-SN686S | Utilizado para disolver el agar durante la preparación del medio de agar-uva |
| Microscopio invertido | Nikon Instruments Inc. | 736228 | Microscopio invertido Ti Eclipse equipado con sistema de enfoque perfecto para imágenes en vivo |
| Placa de microscopio | Fisherbrand | 12550143 | Placa Superfrost; utilizada para montar larvas para la obtención de imágenes |
| Multi Kymograph | Desarrollado por Jens Rietdorf, Arne Seitz y Johannes Schindelin | No aplicable | Complemento de FIJI utilizado para generar cromogramas de la dinámica de microtúbulos |
| Software Nikon Elements | Nikon Instruments Inc. | Versión 5.21.03 | Utilizado para la adquisición de imágenes de microscopía de lapso de tiempo y generación de archivos .ND2 |
| Objetivo, inmersión en agua | Nikon Instruments Inc. | MRD77400 | 40×, 1,25 NA; utilizado para imágenes en vivo |
| Pincel | Dynasty | 2157r | Tamaños 0 y 3/0; utilizado para transferir larvas y sellar el recinto de vaselina |
| Placa de Petri | Falcon | 351007 | 60 × 15 mm; utilizada para placas de agar-uva |
| Esátula | VWR | 82027-532 | 22,9 cm (9 pulgadas); utilizada para mezclar levadura y agua durante la preparación de la pasta de levadura |
| Unidad confocal de disco giratorio | Yokogawa CSU-W1 | SBW001 | Orificio de 50 µm; utilizada para imágenes confocales en vivo |
| Sacarosa | Sigma-Aldrich | 57-50-1 | Utilizada en el medio de agar-uva y como solución al 5 % para lavar larvas |
| Vaselina | Unilever | No aplicable | Utilizada para formar el recinto entre la placa de microscopio y el cubreobjetos |
| Levadura (levadura seca activa Red Star) | Lesaffre Corporation | No aplicable | Utilizada para preparar la pasta de levadura y favorecer la puesta de huevos |
Referencias
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente