Este protocolo permite el aislamiento confiable de cardiomiocitos ventriculares viables del pez killi anual de vida corta, Nothobranchius furzeri, en diferentes grupos de edad, obteniendo células adecuadas para estudios de registro de voltaje en celdas completas asociados a remodelación cardíaca por edad.
Artículo de método
Aislamiento de cardiomiocitos ventriculares del pez anual Nothobranchius furzeri para grabaciones de parche de célula completa
En este artículo
Resumen
Resumen
Los cardiomiocitos aislados siguen siendo el enfoque estándar para estudiar la electrofisiología cardíaca. Las preparaciones de células individuales permiten la investigación directa y la medición precisa de corrientes iónicas y potenciales de acción, sin la complejidad estructural del tejido cardíaco intacto. Nothobranchius furzeri (pez killi turquesa africano) ha surgido rápidamente como un organismo modelo destacado en la investigación gerontológica debido a su duración de vida excepcionalmente corta y a las similitudes en los mecanismos de envejecimiento con los mamíferos, incluidos los humanos. Esta especie combina ventajas prácticas como su pequeño tamaño, cría económica y ciclo vital rápido con relevancia traslacional. N. furzeri presenta deterioros dependientes de la edad en la actividad locomotora, la cognición y la función orgánica, acumulación de marcadores moleculares del envejecimiento y sensibilidad a tratamientos farmacológicos que modulan la longevidad y el periodo de buena salud. Sin embargo, investigar el deterioro funcional del corazón envejecido requiere un método confiable para obtener células viables de alta calidad adecuadas para técnicas exigentes a nivel de célula individual. Este estudio optimizó un protocolo previamente descrito para el aislamiento de cardiomiocitos de Danio rerio, con el fin de garantizar una recuperación constante de miocitos sanos a partir de ejemplares jóvenes y senescentes de N. furzeri. Este protocolo describe el aislamiento de cardiomiocitos ventriculares de N. furzeri, específicamente optimizado para la técnica de "patch clamp" en modo de célula completa. El artículo demuestra cómo excisar eficientemente el corazón, realizar la disociación enzimática del miocardio mediante perfusión retrógrada y almacenar los cardiomiocitos aislados. Discutimos la selección de enzimas necesarias para digerir la matriz extracelular y las uniones intercelulares sin comprometer la estructura de los canales iónicos. Los cardiomiocitos recién aislados son adecuados para ensayos electrofisiológicos de alta resolución, incluyendo la grabación de potenciales de acción y la medición de corrientes iónicas entrantes y salientes principales en diferentes grupos de edad. El artículo también aborda las particularidades del aislamiento de cardiomiocitos en peces, que difieren de los procedimientos estándar de aislamiento en mamíferos.
Introducción
La disfunción cardíaca dependiente de la edad está impulsada por remodelaciones estructurales, moleculares y electrofisiológicas, que en conjunto reducen la reserva cardíaca y aumentan la susceptibilidad a la arritmogénesis1. Para comprender los mecanismos que impulsan el envejecimiento cardíaco a nivel celular, la técnica de registro del parche en célula íntegra constituye una herramienta experimental indispensable. Esta técnica permite la evaluación directa y cuantitativa de corrientes iónicas transmembranales individuales y sus cinéticas, así como de los potenciales de acción (PA), proporcionando información sobre las alteraciones específicas en las corrientes iónicas que subyacen a la disfunción miocárdica asociada con la edad. El estudio de estos mecanismos requiere modelos vertebrados confiables de senescencia cardíaca. En los últimos años, el pez killi africano turquesa (Nothobranchius furzeri) se ha consolidado como un modelo prometedor para investigar el envejecimiento cardíaco debido a su corta vida natural2,3. Estudios moleculares e histológicos preliminares han revelado similitudes en los procesos de envejecimiento entre Nothobranchius y los mamíferos. Investigaciones realizadas por otros grupos han demostrado que N. furzeri presenta características esenciales del envejecimiento cardíaco mamífero, incluyendo acortamiento de los telómeros, reducción del contenido de ADN mitocondrial y de la expresión de enzimas antioxidantes, alteraciones estructurales y electrofisiológicas del miocardio, y la acumulación de marcadores de envejecimiento como la lipofuscina y una actividad elevada de β-galactosidasa4,5,6.
Sin embargo, a pesar de la creciente relevancia de N. furzeri en la investigación cardiovascular, la caracterización electrofisiológica detallada a nivel celular individual se ve limitada por desafíos técnicos persistentes. La obtención de registros de parche de alta calidad depende estrictamente del aislamiento de cardiomiocitos funcionales que mantengan la integridad estructural, canales iónicos intactos y una morfología no hipercontraída. Aunque los protocolos de disociación enzimática para cardiomiocitos de mamíferos están bien establecidos, el aislamiento de miocitos cardíacos viables de corazones de peces sigue siendo difícil debido a la arquitectura tisular no mamífera, el rendimiento celular relativamente bajo y el pequeño tamaño del corazón7,8. Las principales limitaciones de este procedimiento son la dificultad técnica de cannular correctamente el corazón y la sensibilidad de la preparación ante pequeñas variaciones en el tratamiento enzimático. Cualquier interrupción del flujo de perfusión provoca un deterioro notable tanto en la calidad como en el rendimiento celular. Además, incluso pequeñas desviaciones en la concentración de enzimas o en el tiempo de digestión pueden afectar sustancialmente la viabilidad celular y la calidad de los registros electrofisiológicos posteriores. También debe considerarse la edad del animal. Aunque los corazones de peces mayores requieren concentraciones ligeramente más altas de enzimas y tiempos de digestión prolongados debido al mayor contenido de fibras de colágeno y fibroblastos2, los principios generales del aislamiento permanecen constantes, con variaciones en las concentraciones de enzimas y tiempos de exposición dentro de un 10% para lograr resultados óptimos.
Por consiguiente, un protocolo detallado y altamente reproducible de aislamiento enzimático es un requisito previo para avanzar en la investigación electrofisiológica sobre el envejecimiento cardíaco en modelos de peces. A pesar de ciertas similitudes morfológicas en dimensiones lineales, el aislamiento de cardiomiocitos de N. furzeri requiere varias modificaciones sustanciales en comparación con el protocolo para Danio rerio. El procedimiento clásico para aislar células del corazón de pez cebra implica sumergir el corazón intacto en una solución enzimática durante un período relativamente prolongado7,8,9. Aunque este enfoque produce células viables, puede ser excesivamente agresivo para el corazón de Nothobranchius y podría provocar una digestión enzimática excesiva. Este método garantiza un flujo estable de soluciones directamente hacia las cámaras cardíacas, permitiendo así una eliminación más eficiente de la sangre del corazón y posibilitando un tratamiento enzimático más preciso y suave. En este artículo se describe una metodología perfeccionada para aislar miocitos cardíacos viables y adecuados para el registro mediante parche de membrana (patch clamp) a partir de N. furzeri, abordando los ajustes clave necesarios para asegurar grabaciones electrofisiológicas de alta calidad.
Protocolo
El estudio se realizó con N. furzeri de la cepa GRZ. Se utilizaron peces jóvenes sexualmente maduros de ambos sexos, con una edad de 1,5 a 2 meses (N = 19, masa corporal = 0,71 g ± 0,36 g), para registrar potenciales de acción y corrientes iónicas en cardiomiocitos ventriculares aislados. Los peces fueron criados y proporcionados por el Instituto A.N. Severtsov de Ecología y Evolución de la Academia Rusa de Ciencias. Los animales se mantuvieron en acuarios a 24 °C ± 1 °C bajo un ciclo de luz/oscuridad de 12 horas, en tanques de agua de 60 a 100 L. La densidad animal fue de 10 a 20 animales por tanque, de acuerdo con recomendaciones publicadas previamente10.
El principio del aislamiento de cardiomiocitos de N. furzeri se basa en el método clásico de aislamiento en peces descrito previamente y adaptado a peces pequeños11,12. Todos los experimentos se realizaron de acuerdo con la Guía para el Cuidado y Uso de Animales de Laboratorio (Institutos Nacionales de Salud de EE. UU.) y la Directiva 2010/63/UE de la Unión Europea. El protocolo experimental fue aprobado por el Comité de Bioética de la Universidad Estatal de Moscú Lomonosov (Solicitud №202-a, aprobada durante la reunión №169-d de la Comisión de Bioética celebrada el 27.02.2025). Los reactivos y el equipo utilizados se enumeran en la Tabla de Materiales.
1. Preparación de las soluciones
- Preparar el Ca2+solución de aislamiento libre de: 100 NaCl, 10 KCl, 1,2 KH (en mmol L-1)2PO4, 4 MgSO₄4, 50 taurina, 20 glucosa y 10 HEPES. Ajustar el pH a 6,9 con NaOH a temperatura ambiente (24 °C). Realice el aislamiento utilizando una solución salina a temperatura ambiente. No se requiere oxigenación de la solución durante el aislamiento.
NOTA: La solución de aislamiento puede almacenarse a 4 °C durante 3–4 días en un frasco de vidrio. - Preparar 3 mL de solución enzimática basada en el Ca2+-solución libre, que contiene 0,8 mg mL-1 colagenasa tipo 1A, 0,5 mg/mL-1 tripsina y 0,8 mg mL-1 albúmina sérica bovina (BSA). Añada las enzimas inmediatamente antes del procedimiento de aislamiento para preservar la actividad enzimática.
NOTA: Es posible que sea necesario ajustar las concentraciones de enzimas, ya que la actividad enzimática varía entre lotes. - Enfriar previamente 50-100 mL de agua del grifo en un refrigerador a +4 °C. El agua fría es necesaria para la analgesia en peces.
2. Preparación del sistema de aislamiento
- Fije dos jeringas de 10 mL a un soporte a una altura de aproximadamente 35 cm.
- Conecte tubos de silicona (d = 8 mm) a las jeringas y una sus extremos libres mediante una llave de tres vías.
- Llene un tubo con la solución de aislamiento libre de Ca2+ y el otro con la solución enzimática. Asegúrese de que no queden burbujas de aire en los tubos, ya que obstaculizan el flujo y reducen la calidad del aislamiento. Detenga el flujo.
- Llene una aguja dispensadora de 32 G con la solución libre de Ca2+ utilizando una jeringa de insulina de 1 mL para evitar burbujas de aire en la punta de la aguja.
- Conecte la aguja llena al extremo libre de la llave de tres vías.
- Utilizando masilla adhesiva, fije la aguja a una placa de Petri de 100 mm en posición paralela al plano inferior.
- Coloque la placa de Petri conectada al sistema de perfusión bajo el microscopio estereoscópico y sujétela con las pinzas del portaobjetos y la masilla adhesiva (Figura 1A).
3. Disección y aislamiento del corazón
- Prepare los instrumentos quirúrgicos: dos pares de tijeras y pinzas microquirúrgicas oftálmicas, y una bandeja de disección con cuatro agujas médicas.
- Saque el agua del grifo previamente enfriada del refrigerador y sumerja rápidamente el pez. Espere hasta que dejen de moverse las cubiertas branquiales.
ADVERTENCIA: Confirme la cesación del movimiento opercular para asegurar una analgesia adecuada antes de continuar. - Retire el pez del agua, colóquelo en la bandeja de disección con el lado dorsal hacia arriba y corte la médula espinal con las tijeras oftálmicas.
- Gire el pez sobre su dorso y fíjelo a la bandeja con agujas. Clave la cabeza, la cola y los opérculos, manteniendo los opérculos sujetos hacia atrás en una posición completamente abierta para obtener más espacio.
- Realice una incisión transversal del peritoneo. Extienda la incisión longitudinalmente hasta el eje principal del cuerpo, elevando suavemente la piel lejos de los órganos viscerales con pinzas. Continúe hasta el margen de la mandíbula inferior y fije los bordes de la piel a la izquierda y a la derecha (Figura 1B).
- Localice el ventrículo y el bulbo arterial. Sujete el bulbo arterial con pinzas lo más lejos posible del ventrículo y levántelo suavemente fuera del cuerpo. Sin soltar las pinzas, corte caudalmente al ventrículo para mantenerlo intacto.
- Transfiera el corazón aislado a la placa de Petri bajo el microscopio estereoscópico. Fije la punta de la cánula en el ventrículo colocándola primero en el bulbo arterial y luego pasándola cuidadosamente a través de la válvula aórtica sin dañar el tejido circundante. La cannulación exitosa puede lograrse en > 90% de los corazones.
- Fije el bulbo arterial a la cánula con una ligadura (Figura 1C).
NOTA: Un cabello humano (d = 50–70 µm) sirve bien como ligadura, ya que el hilo de sutura estándar es demasiado grueso para el pequeño corazón.
4. Aislamiento de cardiomiocitos
- Abra la llave de paso de tres vías para permitir el flujo desde el cilindro que contiene la solución libre de Ca2+. Cuando se realiza correctamente, el ventrículo se llena de solución y se expande. El caudal se estableció en 43 µL min-1.
- Elimine con tijeras microquirúrgicas los restos del atrio y del seno venoso sin dañar las paredes ventriculares.
- Perfunda el corazón durante 10–12 min mientras supervisa un flujo uniforme. Presione suavemente el tubo de silicona para administrar un pulso transitorio de solución que expanda las trabéculas ventriculares y elimine la sangre residual. El lavado exitoso se indica por el paro cardíaco y la cesación del flujo de eritrocitos bajo el microscopio estereoscópico.
- Cambie la llave de paso para dirigir la solución enzimática hacia el ventrículo. Perfunda durante 4–6 min. Confirme visualmente el tratamiento enzimático por la pérdida de integridad de la pared ventricular y la liberación de pequeños fragmentos miocárdicos.
ADVERTENCIA: Evite tomar muestras o transferir el perfusado a un microscopio invertido para su examen, ya que esto podría provocar pérdida o daño mecánico del material celular e interrumpir la supervisión continua de la calidad de la perfusión. Es preferible confiar en los signos de aislamiento exitoso descritos anteriormente, que son claramente visibles bajo un microscopio binocular. - Agregue una pequeña alícuota (300–400 µL) de solución libre de Ca2+ a una placa de cultivo tisular de 35 mm. Corte el ventrículo del bulbo arterial y transfiéralo al recipiente.
- Minuce el ventrículo con tijeras finas y luego triture suavemente el tejido pipeteando repetidamente con una micropipeta de 100 µL equipada con una punta cortada.
- Transfiera la suspensión celular a un tubo de 1500 µL. Examine una alícuota bajo un microscopio invertido con baja ampliación (10×). Estime visualmente la densidad de cardiomiocitos alargados y estriados en el campo de visión. Si el campo está congestionado, con muchas células alargadas superpuestas (>50 por campo 10×), agregue solución libre de Ca2⁺ para reducir la densidad celular y evitar una acumulación excesiva en la cámara de registro. Deje que las células sedimenten a 4 °C durante 40–50 min antes del registro.
NOTA: Las células pueden mantenerse a 4 °C durante el período de sedimentación; úselas para los registros dentro de las 8 h posteriores al aislamiento.
5. Grabaciones mediante parche en célula completa
- Prepare las soluciones extracelular e intracelular para las diferentes corrientes iónicas y grabaciones de potenciales de acción enumeradas en la Tabla 1.
- Prepare pipetas de parche a partir de capilares de vidrio borosilicato de pared delgada (sin filamento) en un extractor vertical y llénelas con solución intracelular. La resistencia de la pipeta llenada debe ser de 2,0–3,0 MΩ para todas las configuraciones de grabación.
- Llene el depósito de perfusión con la solución extracelular del baño y purgue las líneas para eliminar todas las burbujas de aire antes de colocar las células en la cámara de grabación.
- Agregue un pequeño volumen (30–40 µL) de la suspensión de cardiomiocitos aislados a la cámara de grabación con fondo de vidrio y permita que las células sedimenten durante 5–10 min.
- Conecte la pipeta al cabezal amplificador. Bajo guía microscópica, baje la pipeta hacia el cardiomiocito objetivo con el micromanipulador hasta que la punta haga contacto con la membrana, lo cual se observa como un leve hundimiento y un aumento en la resistencia de la pipeta.
- Aplique succión negativa suave para establecer un sello de alta resistencia (GΩ), que generalmente se forma en unos pocos segundos.
- Establezca el potencial de mantenimiento en -80 mV. Ruptura la membrana mediante una serie de pulsos breves de succión. Tras establecer la configuración de célula íntegra, minimice los transitorios capacitivos y compense la capacitancia celular y la resistencia en serie (de acceso) utilizando los circuitos de compensación del amplificador.
- Compense estas corrientes capacitivas utilizando los controles de Capacitancia celular y Resistencia en serie del amplificador. Ajuste el control de Capacitancia celular para minimizar el transitorio capacitivo principal, luego ajuste el control de Resistencia en serie para reducir el sobrepico residual hasta que esté ampliamente cancelado y la corriente basal sea plana.
- Acepte únicamente células con una resistencia de acceso estimada tras la compensación de ≤10–12 MΩ para la grabación de potenciales de acción y corrientes iónicas. Proceda a grabar potenciales de acción o corrientes iónicas, agregando los bloqueadores específicos enumerados en la Tabla 2 antes de la grabación cuando sea necesario.
- Grabe utilizando un software de adquisición de parche que permita configurar protocolos de estimulación personalizados para cada corriente objetivo. Los protocolos de bloqueo de voltaje utilizados en este estudio se muestran en la Figura 2.
Resultados
Este protocolo produce cardiomiocitos ventriculares individuales con forma de varilla a partir de N. furzeri, adecuados para registros de parche en modo célula completa de alta resolución. Un aislamiento exitoso se evalúa primero por la morfología celular y la calidad del sello, y luego se confirma funcionalmente mediante la capacidad de registrar potenciales de acción estables y cada una de las corrientes iónicas principales con la dependencia esperada respecto al voltaje y con amplitud adecuada. Los registros representativos que se muestran a continuación se obtuvieron de ejemplares jóvenes de N. furzeri y definen los valores de referencia que indican una célula sana y bien sellada. Las desviaciones respecto a estos parámetros suelen indicar un aislamiento subóptimo y se describen junto con cada criterio.
Morfología celular y formación del sello
Los cardiomiocitos ventriculares viables de N. furzeri presentan un aspecto alargado y en forma de varilla, con un sarcolema liso y morfológicamente intacto (Figura 3). En algunas células, se podía distinguir una débil estriación transversal al microscopio óptico, aunque no se resolvía de manera constante en todas las células; por lo tanto, se utilizaron la membrana lisa e intacta y la morfología alargada y en forma de varilla como criterios principales para seleccionar las células destinadas a la grabación. Tales células forman fácilmente un sello de alta resistencia (>1 GΩ) y toleran la ruptura de la membrana. En contraste, las células redondeadas, contraídas, granulosas o hinchadas son signos de sobredigestión o daño mecánico: estas células sellan mal, se deterioran rápidamente y deben descartarse. Una célula sana mantiene un potencial de membrana en reposo estable y muestra una fuga mínima a un potencial de mantenimiento de -80 mV.
Características de la grabación mediante parche con electrodo de vidrio
Se realizaron grabaciones mediante el método de tira con parche en célula completa a 22–24 °C utilizando un amplificador de tira con parche. Las señales se muestrearon a 10 kHz y se filtraron con paso bajo a 1–2 kHz. La ganancia de salida (α) se ajustó a ×0.5 para optimizar la resolución de la señal en el digitalizador. La resistencia en serie se compensó entre un 70 % y un 80 %; con retardo de 10 µs. Las grabaciones se descartaron si la resistencia de acceso estimada superaba los 10–12 MΩ o variaba más de aproximadamente un 10 % durante la grabación. Para las grabaciones de potenciales de acción y corrientes iónicas, no se aplicó sustracción lineal de la fuga.
Se excluyeron las células del análisis si cumplían alguno de los siguientes criterios: potencial de membrana en reposo menos negativo que −70 mV en modo de fijación de corriente; incapacidad para formar un sello estable de gigaseal (>1 GΩ); resistencia de acceso >10–12 MΩ tras la compensación; disminución rápida de las corrientes iónicas durante la grabación; daño morfológico (aspecto redondeado, granular o hipercontraído).
Potenciales de acción (control positivo de viabilidad)
Los potenciales de acción registrados en modo de fijación de corriente proporcionan la evaluación más directa de la viabilidad eléctrica de un cardiomiocito aislado. Induzca los potenciales de acción mediante pulsos de corriente despolarizante de 1 ms (0,4–1 nA, ~30 % por encima del umbral). Establezca la frecuencia de estimulación en 0,3 Hz. Registre los potenciales de acción después de ~5 min, una vez que la forma de onda alcance un estado estable y constante. En un cardiomiocito bien aislado de N. furzeri joven, el potencial de membrana en reposo (RMP) es estable y cercano a -85 mV (Figura 4B). El potencial de acción sobrepasa aproximadamente hasta +30 mV, mostrando claramente una fase ascendente todo-o-nada (Figura 4A). Las características representativas del potencial de acción incluyen un APD90 de ~530 ms, un APD50 de ~460 ms y una velocidad máxima de la fase ascendente (dV/dtmax) de ~50 V s-1. Un RMP despolarizado (menos negativo que aproximadamente -70 mV), un sobrepico reducido o ausente, una velocidad de la fase ascendente disminuida o la incapacidad de mantener disparos repetitivos con amplitud y duración estables en la mayoría de los casos indica una célula dañada o mal sellada, que no puede utilizarse para evaluar las características del potencial de acción.
Corriente rápida de sodio (INa)
La corriente rápida de sodio subyace al ascenso del potencial de acción y es un marcador sensible de la integridad de la membrana y de la calidad del clamp. Utilizando las soluciones basadas en Cs+ de la Tabla 1, se registra INa como una corriente entrante de gran magnitud que se activa e inactiva rápidamente (Figura 5A). En miocitos jóvenes sanos, INa se vuelve detectable cerca de -60 mV, alcanza una densidad máxima de aproximadamente -13 pA pF−1 a unos -30 mV y se invierte cerca de +20 mV (Figura 5B). La constante de tiempo de inactivación disminuye de ~8 ms a -50 mV a ~2 ms a -10 mV, y el voltaje de media inactivación se sitúa cerca de -70 mV13 (Figura 5C,D). Una amplitud sustancialmente reducida de la corriente máxima, un potencial de inversión desplazado o mal definido, o una cinética de activación/inactivación más lenta y distorsionada indican un control de voltaje inadecuado (error por resistencia en serie) o una integridad de la membrana comprometida, más que el aislamiento en sí mismo.
Corrientes de calcio (ICaL y ICaT)
Grabado con las soluciones de corriente de calcio (Tabla 1), los cardiomiocitos de N. furzeri muestran una corriente de calcio entrante neta con dos componentes. La corriente comienza a activarse aproximadamente a -60 mV, lo que indica un componente de tipo T (ICaT), además de la corriente predominante de tipo L (ICaL), y alcanza una densidad máxima de aproximadamente -7 pA pF−1 entre -10 mV y 0 mV (Figura 6B). La identidad de los componentes se confirma farmacológicamente: 10 µM de nifedipina bloquean parcialmente la corriente, mientras que 100 µM producen una inhibición casi completa (Figura 6A). Es importante señalar que una concentración de 100 µM de nifedipina se utilizó únicamente en experimentos de control específicos para verificar que la corriente residual tras 10 µM de nifedipina es completamente sensible a concentraciones más altas y, por tanto, puede identificarse como ICaT. Para grabaciones rutinarias estándar, 50 µM son suficientes para bloquear completamente la corriente neta ICa. El componente ICaL se define como la corriente evocada desde un potencial de mantenimiento de -50 mV, y el ICaT se obtiene como la diferencia entre la corriente registrada desde -90 mV y el ICaL aislado (Figura 6C,D). Una corriente entrante claramente resuelta, sensible a la nifedipina, con voltajes de activación y de corriente máxima descritos, indica canales de calcio bien conservados.
Corrientes de potasio rectificadoras tardías (IKr y IKs)
La presencia de corrientes salientes de potasio confirma que la maquinaria repolarizante permanece funcionalmente intacta tras el aislamiento. Bajo las condiciones farmacológicas (Tabla 2), la despolarización hasta -40 mV y valores superiores provoca una corriente saliente en todas las células sanas. Se distinguen dos componentes mediante bloqueadores selectivos: el rectificador lento retardado (IKs), sensible al cromanol 293B (20 µM), y el rectificador rápido retardado (IKr), sensible a E4031 (1 µM) (Figura 7A,B). En miocitos de peces jóvenes, IKs, así como IKr, alcanzan una densidad de aproximadamente 1 pA pF−1 a potenciales fuertemente despolarizados (Figura 7C,D). La presencia de ambos componentes del rectificador retardado, que desempeñan un papel fundamental en la repolarización ventricular humana pero contribuyen menos en los modelos estándar de roedores14, sirve como una validación clave de que la célula registrada es un miocito ventricular de N. furzeri con corrientes repolarizantes intactas.
Corriente rectificadora interna de fondo (IK1)
La corriente rectificadora entrante de fondo establece el potencial de membrana en reposo y se evalúa convenientemente mediante un protocolo de rampa de voltaje desde +60 hasta -120 mV (Figura 7E). En una célula sana, IK1 se invierte cerca de -80 mV, lo cual es consistente con el PMR medido en modo de fijación de corriente. A potenciales positivos respecto al potencial de inversión, IK1 presenta una protuberancia característica hacia afuera, con un pico de varios pA pF−1 (Figura 7F). Un potencial de inversión muy alejado de -80 mV o una fuga de base elevada indican un sello deficiente o una membrana dañada.
En conjunto, se considera que una preparación es exitosa cuando produce células alargadas con forma de varilla, con membranas lisas e intactas que forman sellos de gigaohmios y muestran la forma de onda del potencial de acción de referencia y las firmas de corriente descritas anteriormente. Obtener varias de estas células a partir de un solo corazón confirma que la disociación enzimática ha preservado tanto la integridad de la membrana como el conjunto completo de canales iónicos cardíacos necesarios para estudios electrofisiológicos posteriores.
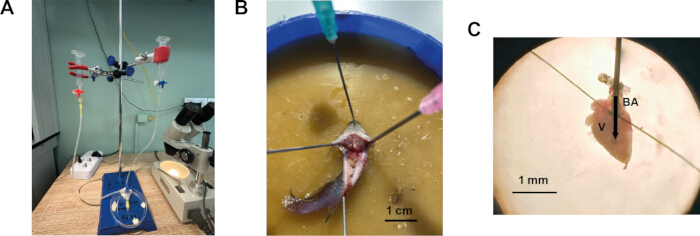
Figura 1: Procedimiento para el aislamiento de cardiomiocitos ventriculares del corazón de N. furzeri. (A) Sistema modificado para el aislamiento de cardiomiocitos en peces pequeños. (B) Pez fijado en una bandeja de disección, con la cara ventral hacia arriba, y el peritoneo inciso transversal y longitudinalmente. (C) Corazón de N. furzeri canulado y fijado para la perfusión. BA – bulbo arterioso, V – ventrículo. La flecha indica la dirección del flujo de la solución hacia el ventrículo. Haga clic aquí para ver una versión más grande de esta figura.
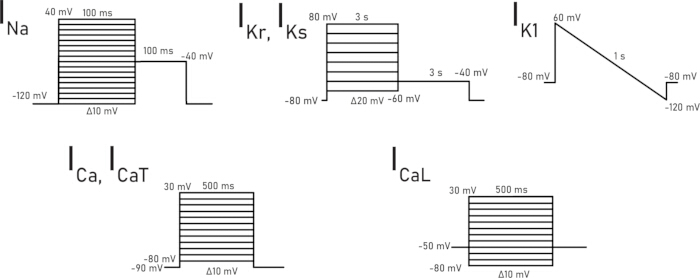
Figura 2: Protocolos de bloqueo de voltaje utilizados para registrar cada corriente iónica específica. Haga clic aquí para ver una versión más grande de esta figura.
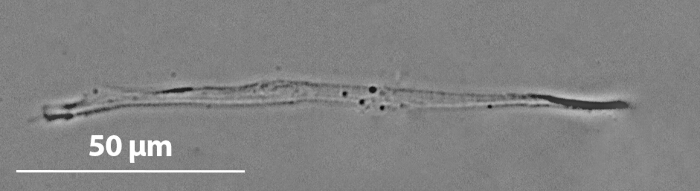
Figura 3: Microfotografía representativa de un cardiomiocito ventricular de N. furzeri joven. Haga clic aquí para ver una versión más grande de esta figura.
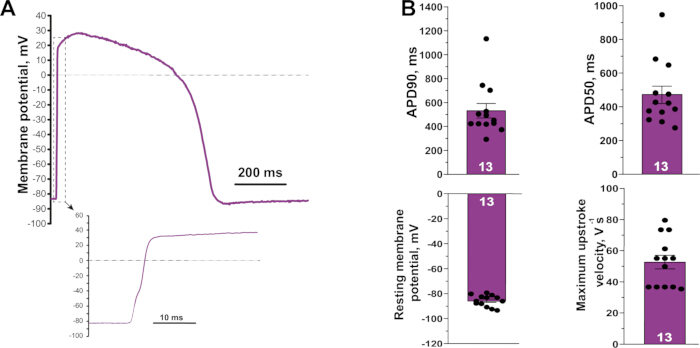
Figura 4: Potencial de acción representativo registrado en un cardiomiocito ventricular de un ejemplar joven de N. furzeri. (A) Forma de onda del potencial de acción. El recuadro muestra la rápida fase de ascenso en una escala de tiempo expandida. (B) Características del potencial de acción medidas en miocitos jóvenes aislados (potencial de membrana en reposo, APD50, APD90 y velocidad máxima de ascenso). (N = 7, n = 13). Los valores se expresan como media ± EEM. Haga clic aquí para ver una versión ampliada de esta figura.
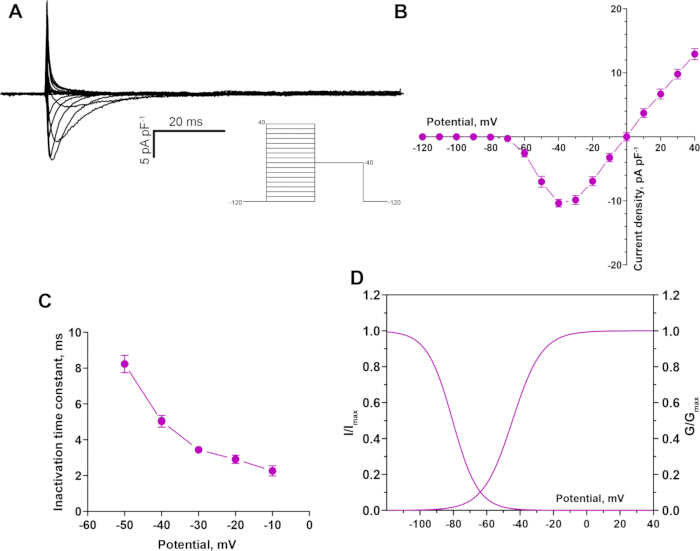
Figura 5: Corriente rápida de sodio (INa) registrada de un cardiomiocito ventricular joven de N. furzeri. (A) Registro representativo de la INa. (B) Relación corriente-voltaje para la INa, que se activa cerca de -60 mV con un pico cerca de -30 mV. (C) Dependencia del voltaje de la constante de tiempo de inactivación. (D) Curvas de activación e inactivación en estado estacionario. (N = 5, n = 11). Los valores se representan como media ± EEM. Haga clic aquí para ver una versión más grande de esta figura.
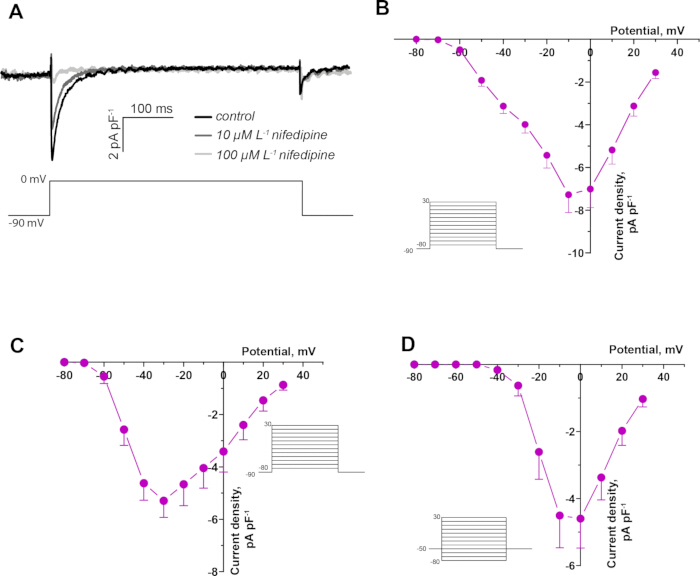
Figura 6: Corrientes de calcio en un cardiomiocito ventricular joven de N. furzeri. (A) Registro representativo de la corriente neta de calcio en condiciones de control y en presencia de 10 µM y 100 µM de nifedipina en un cardiomiocito ventricular joven de N. furzeri. (B) Relación corriente-voltaje para la corriente neta de calcio, que se activa cerca de -60 mV con un pico cerca de -10 mV (N = 5, n = 11). (C) Relación corriente-voltaje para el componente de tipo T (ICaT) (N = 3, n = 6). (D) Relación corriente-voltaje para el componente de tipo L (ICaL) (N = 5, n = 7). Los valores se representan como media ± EEM. Haga clic aquí para ver una versión más grande de esta figura.
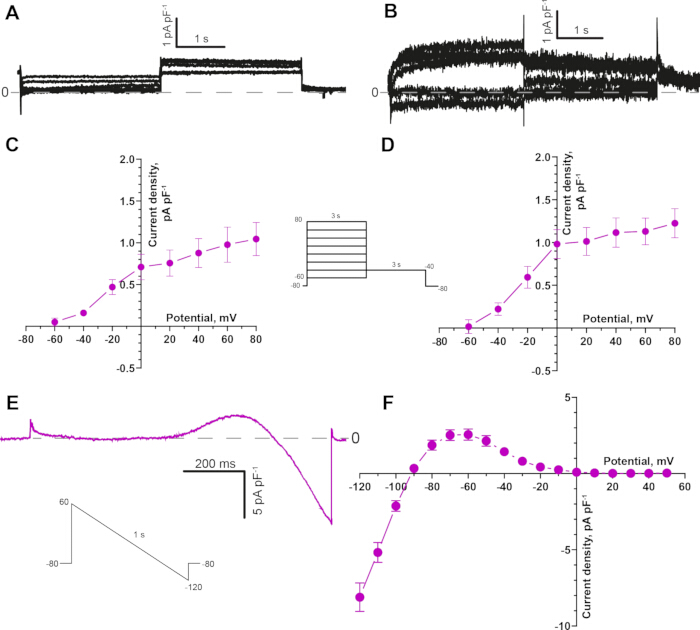
Figura 7: Corrientes de potasio en jóvenes N. furzeri cardiomiocitos ventriculares. (A) Registro representativo de la corriente lenta retardada rectificadora (IKs), aisladas en presencia de E4031 (1 µM) para bloquear IKr. (B) Registro representativo de la corriente rectificadora lenta rápida (IKr), aislada en presencia de cromanol 293B (20 µM) para bloquear IKs. (C) Relación corriente-voltaje para IKs actual (N = 5, n = 9). (D) Relación corriente-voltaje para IKr actual (N = 5, n = 10). (E) Representativo IK1 registrado con un protocolo de rampa de voltaje descendente desde +60 mV hasta -120 mV. (F) Relación corriente-voltaje para IK1, invirtiendo cerca de -80 mV (N = 5, n = 18). Los valores se representan como media ± M.E.B. Haga clic aquí para ver una versión más grande de esta figura.
| Nombre de la solución | Reactivo y concentración (mM) |
| Solución extracelular para potencial de acción y corrientes de potasio | 150 NaCl, 3 KCl, 1,2 MgCl2, 1,8 CaCl2, 10 glucosa, 10 HEPES; pH 7,4 ajustado con NaOH |
| Solución intracelular para potencial de acción y corrientes de potasio | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0,03 Na2GTP y 10 HEPES; pH 7,2 ajustado con KOH |
| Solución extracelular para corriente de sodio | 20 NaCl, 123 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucosa y 10 HEPES; pH 7,2 ajustado con CsOH |
| Solución intracelular para corriente de sodio | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP y 15 TEA; pH 7,2 ajustado con CsOH |
| Solución extracelular para corriente de calcio | 150 NaCl, 3 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucosa y 10 HEPES; pH ajustado a 7,2 con NaOH |
| Solución intracelular para corriente de calcio | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP y 15 TEA; pH 7,2 ajustado con CsOH. |
Tabla 1: Composición de las soluciones extracelular e intracelular para el registro mediante parche adherido de potenciales de acción y corrientes iónicas.
| Corriente de registro | Concentración del bloqueador (μM) | |
| 1. | Potencial de acción | No se requieren bloqueadores |
| 2. | IKr | 50 Nifedipina, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipina, 1 E4031 |
| 4. | IK1 | 50 Nifedipina, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipina |
| 6. | ICaT | 1 Tetrodotoxina |
| 7. | ICaL | 1 Tetrodotoxina |
Tabla 2: Bloqueadores farmacológicos añadidos a las soluciones extracelulares para la grabación selectiva de una corriente iónica determinada.
Discusión
Un aislamiento exitoso de cardiomiocitos ventriculares viables de N. furzeri representa un avance metodológico que permite la caracterización electrofisiológica directa de la remodelación cardíaca relacionada con la edad a nivel celular. Esta resolución es esencial para identificar los mecanismos iónicos específicos que subyacen a la disfunción cardíaca relacionada con la edad, los cuales no pueden distinguirse únicamente mediante preparaciones de órgano o corazón completo. El estudio de cardiomiocitos nativos proporciona una visión directa de cómo el envejecimiento altera propiedades electrofisiológicas fundamentales, incluyendo corrientes iónicas y características del potencial de acción.
Varios pasos en el presente protocolo son críticos para obtener cardiomiocitos de alta calidad, adecuados para el registro mediante parche de membrana, a partir de N. furzeri. En primer lugar, la actividad enzimática varía entre lotes, por lo que las concentraciones de colagenasa y tripsina deben ajustarse para cada preparación. La sobredigestión provoca daño en la membrana y pérdida de la función de los canales iónicos, mientras que la subdigestión produce pocos células e impide un contacto estable entre la pipeta y la membrana. Las células aisladas conservan una morfología alargada y en forma de varilla, con un sarcolema liso e intacto, lo que indica la preservación de la integridad celular durante el aislamiento; en algunas células, también puede observarse una débil estriación sarcomérica bajo el microscopio óptico. Esta preservación es fundamental para obtener datos electrofisiológicos confiables, ya que las células dañadas a menudo muestran alteraciones en la función de los canales iónicos y propiedades de la membrana comprometidas. En segundo lugar, el pequeño tamaño del corazón de N. furzeri representa un desafío técnico que requiere una optimización cuidadosa del aislamiento enzimático y una disección manual precisa, y el rendimiento celular por corazón es menor que en preparaciones de mamíferos. Además, una perfusión inconsistente o fugas del corazón canulado son también algunos de los problemas más comunes que pueden ocurrir durante el procedimiento. Practique la canulación en varios corazones para desarrollar un ángulo y profundidad de enfoque consistentes. Asegúrese de que la punta de la aguja esté libre de burbujas de aire y de que el bulbo arterial esté atado firmemente sin cortar el tejido. Asimismo, antes de proceder al registro, confirme que las células tengan forma de varilla, con una membrana lisa e intacta (en algunas células puede ser visible una leve estriación). Las células redondeadas o granulares deben descartarse. Verifique que todas las soluciones se hayan preparado recientemente y que el pH se haya ajustado correctamente. Asegúrese de que la resistencia de la pipeta esté dentro del rango recomendado (2,0–3,0 MΩ). Durante el registro, revise los parámetros del amplificador descritos anteriormente; la resistencia de acceso después de la compensación no debe exceder los 10–12 MΩ; el potencial de reposo de la membrana es menos negativo que −70 mV en modo de fijación de corriente, y la célula forma un sello gigaseal estable.
No obstante, el protocolo proporciona de forma confiable células de alta calidad adecuadas para registros de patch clamp y posiblemente otras aplicaciones, estableciendo a N. furzeri como un modelo práctico del envejecimiento cardíaco celular. Dado que N. furzeri ofrece ventajas claras frente a los modelos mamíferos tradicionales para estudios de envejecimiento cardíaco. Al ser el vertebrado de vida más corta que puede criarse en cautividad, permite realizar estudios longitudinales del envejecimiento cardíaco en plazos prácticos, en comparación con los modelos de ratón que requieren de 18 a 24 meses para alcanzar edades biológicas similares15. A pesar de su corta longevidad, muestra características clave del envejecimiento cardíaco en vertebrados, incluyendo remodelación electrofisiológica, duración del potencial de acción conservada con velocidad de ascenso reducida, y la subregulación de corrientes iónicas importantes6.
Comparación con los enfoques existentes de aislamiento de cardiomiocitos.
El aislamiento enzimático de cardiomiocitos ventriculares viables es un requisito bien establecido para la electrofisiología a nivel de célula individual en una amplia gama de especies. En mamíferos, el enfoque considerado estándar consiste en la perfusión retrógrada a través de la aorta del corazón intacto con una solución libre de calcio, seguida de una solución que contiene enzimas, típicamente colagenasa y proteasas, bajo presión y temperatura controladas. Esta estrategia permite una distribución uniforme de las enzimas a través de la vasculatura coronaria, una eliminación eficiente de la sangre y una disociación relativamente suave del miocardio, obteniéndose así grandes cantidades de miocitos con forma alargada adecuados para grabaciones de alta resolución mediante la técnica de "patch-clamp"16,17.
En los peces teleósteos, sin embargo, la organización anatómica del corazón y la ausencia de un sistema arterial coronario comparable al de los mamíferos requieren modificaciones importantes. En el pez cebra, uno de los modelos de peces pequeños más utilizados en la investigación cardiovascular, el aislamiento exitoso de cardiomiocitos ventriculares se basa en la digestión del corazón intacto en una solución enzimática durante un período relativamente prolongado8,9. En estos protocolos, el corazón extraído se transfiere directamente a una gota o pequeño volumen de solución enzimática, donde se incuba a temperatura ambiente o a una temperatura adecuada para la especie, seguido de una trituración mecánica para liberar células individuales. Se ha demostrado que este enfoque produce cardiomiocitos viables y estriados que permiten la grabación de corrientes iónicas principales11.
A pesar de su utilidad, la estrategia de digestión por lotes presenta varias limitaciones cuando se aplica a corazones muy pequeños o particularmente frágiles. Primero, la exposición enzimática es menos controlada: las capas externas del ventrículo están expuestas a una concentración efectiva de enzima más alta durante un tiempo más prolongado que las capas internas, lo que puede provocar una digestión heterogénea y una mezcla de células subdigestadas y sobredigestadas. Segundo, la inmersión prolongada en la solución enzimática aumenta el riesgo de sobredigestión, especialmente cuando las partidas de enzimas varían en actividad o cuando el corazón es excepcionalmente pequeño. Tercero, el lavado de la sangre depende principalmente de la difusión pasiva y del enjuague manual suave, lo que puede ser insuficiente para limpiar completamente los espacios luminosos estrechos de un ventrículo de teleósteo diminuto.
Se mantuvieron los principios generales del tratamiento sin calcio, la digestión enzimática y la trituración suave. Sin embargo, el estudio modificó la administración de las soluciones mediante la canulación del bulbo arterioso y la perfusión directa del lumen ventricular. Este enfoque permite al investigador lavar la sangre de los espacios ventriculares antes de la digestión, cambiar entre soluciones sin tener que trasladar el corazón y detener el tratamiento enzimático cuando la pared ventricular comienza a soltarse. Estas modificaciones son particularmente importantes para el corazón pequeño y delicado de N. furzeri, en el cual la inmersión prolongada en solución enzimática puede provocar una digestión excesiva y una calidad celular reducida.
Aplicaciones futuras
El método de aislamiento aquí presentado abre varias vías para investigaciones futuras. En primer lugar, permite la caracterización sistemática de los cambios dependientes de la edad en la morfología del potencial de acción y en la densidad, cinética y dependencia del voltaje de las corrientes iónicas en los cardiomiocitos de N. furzeri, complementando las recientes descripciones moleculares e histológicas del envejecimiento cardíaco en esta especie2,3,4,5. En segundo lugar, el protocolo puede combinarse con herramientas farmacológicas para evaluar cómo intervenciones que modulan la longevidad o el período de salud afectan la electrofisiología cardíaca a nivel celular individual. En tercer lugar, los cardiomiocitos aislados de N. furzeri pueden utilizarse en aplicaciones más allá de los registros mediante parche-apertura, incluyendo análisis moleculares (qPCR, RNA-seq, proteómica) de los cambios relacionados con la edad en la expresión de canales iónicos y modificaciones postraduccionales, inmunocitoquímica y obtención de imágenes de alta resolución de la organización sarcomérica. Por último, el marco metodológico descrito aquí puede adaptarse a otros modelos teleósteos pequeños con tamaño y anatomía cardíaca similares, ampliando así la utilidad de N. furzeri como modelo traslacional para la investigación del envejecimiento cardíaco.
Divulgaciones
Los autores declaran que no tienen intereses financieros en conflicto.
Agradecimientos
Este trabajo fue financiado por el Fondo Ruso para la Ciencia (Concesión No. 22-14-00075). Los autores agradecen a Andrei Nikiforov su ayuda en la cría y mantenimiento de la población de Nothobranchius furzeri utilizada en este estudio.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Jeringa de insulina de 1 mL | Med Aim | 939863 | |
| Jeringas de 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| Placa de Petri de 100 mm | SARSTEDT | 83.3902 | |
| Pipeta micrométrica de 100 μL | Thermo Scientific | 4640040 | |
| Placa de cultivo tisular de 35 mm | SPL LIFE SCIENCES | 11035 | |
| Llave de paso de tres vías para infusión | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| Tubo de 500 μL | Eppendorf | EP0030124537-500EA | |
| Punta de 5-200 μL | Deltalab | 200009 | |
| Amplificador | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Capilares de vidrio borosilicato | Sutter Instrument | B150-110-10 | |
| Albúmina de suero bovino | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Colagenasa tipo 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Aguja dispensadora (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glucosa | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Microscopio invertido | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| Micromanipulador | RWD | MM-500 | |
| Pinzas microquirúrgicas oftálmicas | CILITA | F-111T | |
| Tijeras microquirúrgicas oftálmicas | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Nifedipino | Sigma-Aldrich | N7634 | |
| Sistema de perfusión | Biotechnologies | Bio_4_p | |
| Extractor de pipetas | Narishige Group | PC-10 | |
| Tubos de silicona (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Soporte | NV-lab | 00000034085 | |
| Microscopio estereoscópico | Labkompleks LCC | 10557 | |
| Taurina | Acros Organics | 166545000 | |
| Cloruro de tetraetilamonio (TEA) | Merck | 822148 | |
| Tetrodotoxina | Tocris Bioscience | 1078 | |
| Tripsina | Sigma-Aldrich | T0303 | |
| Software WinWCP | University of Strathclyde | - | V5.7.5 |
Referencias
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Reimpresiones y permisos
Este artículo ha sido publicado
Video próximamente