La vidéo démontre la purification et la concentration de particules virales à partir d'un liquide allantoïque clarifié, recueilli auprès d'œufs de poulet embryonnés infectés par un virus. Elle présente une série d'étapes de filtration et de séparation, notamment la filtration en profondeur, la filtration tangentielle et l'ultracentrifugation en gradient de densité, afin d'isoler des virus intacts. La fraction riche en virus est ensuite dialysée pour éliminer par diffusion les sels résiduels et les composants du gradient, puis concentrée à l'aide d'une solution hypertonique par osmose. Le résultat est une préparation virale purifiée à haut titre, adaptée à une utilisation expérimentale.
Article de méthode
Purification du virus à partir du liquide allantoïde d'œufs de poule embryonnés
71 vues
⸱
31 août 2026
Dans cet article
Résumé
Protocole
1. Amplification du virus de la maladie de Newcastle (NDV) à l'aide d'œufs de poule embryonnés spécifiquement exempts d'agents pathogènes
- Inoculation d'œufs de poulet embryonnés spécifiques sans pathogènes (SPF)
REMARQUE : Habituellement, huit douzaines d'œufs de poulet embryonnés SPF sont utilisées pour produire un lot de virus de la maladie de Newcastle (NDV) de qualité in vivo. Commandez une ou deux douzaines d'œufs supplémentaires pour compenser les dommages survenus pendant le transport ainsi que la variabilité de la viabilité.- Après réception des œufs de poulet embryonnés SPF, incubez-les dans une couveuse à œufs à 37 °C et 60 % d'humidité pendant 9 jours. Assurez-vous que la couveuse est réglée pour basculer/faire pivoter automatiquement les œufs toutes les heures.
REMARQUE : Les œufs peuvent être conservés à température ambiante jusqu'à 24 h ou à 4 °C jusqu'à 72 h ; toutefois, cela peut réduire la viabilité de l'embryon. - Après 8 à 11 jours d'incubation (idéalement au jour 9), examinez les œufs à la lumière (transillumination) pour déterminer la viabilité de l'embryon. Recherchez un réseau vasculaire en forme de toile (Figure 1A) et des mouvements embryonnaires comme indicateurs d'embryons viables. Éliminez les œufs ne présentant pas ces caractéristiques (Figure 1B).
- Sur les œufs viables, marquez au crayon le point d'interface entre le sac aérien et l'embryon avec un « X » (Figure 1A). Assurez-vous que ce site d'injection ne perforera pas le réseau vasculaire. Replacez les œufs marqués dans la couveuse pendant la préparation de l'inoculum.
- Calculez la quantité de virus nécessaire pour injecter tous les œufs de poulet embryonnés SPF. Assurez-vous que chaque œuf reçoit 100 unités formant des plaques (PFU) de virus dans un volume de 100 µL ; diluez le virus dans une solution saline tamponnée au phosphate (PBS) à une concentration de 1 × 10³ PFU/mL. Préparez un supplément de 20 % de l'inoculum pour compenser les imprécisions lors de l'administration du virus.
- À l'aide d'un chiffon antistatique, nettoyez le dessus des œufs marqués avec une solution d'iode à 10 % diluée dans de l'éthanol à 70 %. Attendez environ 1 à 2 minutes pour que la solution sèche.
- Percez délicatement la coquille à l'aide d'une paire de pinces stériles et pointues. Désinfectez les pinces dans de l'éthanol à 70 % entre chaque œuf.
- À l'aide d'une seringue de 1 mL et d'une aiguille de 25 G, injectez 100 µL de l'inoculum préparé à l'étape 1.1.4 dans la cavité chorioallantoïdienne (Figure 1C). Approchez avec l'aiguille à un angle proche de 90° par rapport à l'œuf. Insérez l'aiguille juste au sommet de la membrane chorioallantoïdienne.
- Après l'inoculation, recouvrez le site de perforation avec du vernis à ongles et replacez les œufs dans la couveuse. Assurez-vous que le mode basculement est activé pendant les 24 heures suivant l'inoculation.
- Vérifiez la viabilité des œufs 24 heures après l'inoculation. Éliminez les œufs morts qui ne présentent pas de réseau vasculaire dans la membrane chorioallantoïdienne ni de mouvement embryonnaire (Figure 1B).
REMARQUE : Ces œufs sont morts en raison du processus d'inoculation et non à cause du NDV. - Replacez les œufs dans la couveuse, avec le mode basculement désactivé, afin d'éviter la contamination du liquide allantoïdien par les protéines de l'œuf.
- Vérifiez les œufs toutes les 12 à 24 heures comme décrit à l'étape 1.1.9 pour identifier les œufs morts. Placez les œufs qui meurent après 24 heures suivant l'inoculation à 4 °C pour minimiser l'autolyse. Récoltez le liquide allantoïdien dans un délai de 2 à 12 heures après refroidissement.
- Incubez les œufs pendant au moins 72 heures.
REMARQUE : Si vous propagez une souche mésonégénique de NDV, la durée d'incubation optimale est de 60 à 72 heures, car des périodes d'incubation prolongées peuvent nuire au processus de purification en raison de la réduction de la clarté du liquide allantoïdien. Ce problème est moins important lors de la propagation de souches lentogéniques de NDV, car elles mettent beaucoup plus de temps à tuer l'embryon. - À l'issue de la période d'incubation appropriée, transférez les œufs restants à 4 °C pendant 2 à 12 heures avant la récolte du liquide allantoïdien.
- Après réception des œufs de poulet embryonnés SPF, incubez-les dans une couveuse à œufs à 37 °C et 60 % d'humidité pendant 9 jours. Assurez-vous que la couveuse est réglée pour basculer/faire pivoter automatiquement les œufs toutes les heures.
- Récolte du liquide allantoïdien contenant le NDV
- Transférez les œufs refroidis dans la cabine de sécurité biologique. Nettoyez le dessus des œufs avec de l'éthanol à 70 %.
- Utilisez des pinces stériles et des ciseaux chirurgicaux pour briser la partie apicale de l'œuf où se trouve le sac aérien.
- Retirez la coquille pour révéler la membrane chorioallantoïdienne (Figure 1D).
- Percez délicatement la membrane et retirez-la pour exposer la cavité allantoïdienne (Figure 1E). Veillez à ne pas percer accidentellement le sac vitellin, car cela compromettrait l'œuf.
- Utilisez des pinces effilées pour saisir l'embryon et ouvrir le sac embryonnaire.
REMARQUE : Le liquide à l'intérieur du sac embryonnaire contient également du NDV. - Appuyez sur l'embryon avec les pinces et recueillez le liquide allantoïdien à l'aide d'une pipette serologique de 10 mL.
- Conservez le liquide allantoïdien sur de la glace dans des tubes coniques de 15 mL jusqu'à clarification.
REMARQUE : Si le liquide allantoïdien est jaune, le sac vitellin a été compromis et le liquide allantoïdien doit être éliminé. - Centrifugez les tubes coniques contenant le liquide allantoïdien à 1 500 × g pendant 10 minutes à 4 °C.
- Point d'arrêt : Aliquotez le liquide allantoïdien clarifié dans des tubes coniques de 50 mL et conservez-les à -80 °C pour une conservation à long terme (par exemple, semaines à mois), en ajoutant du saccharose au fluide pour obtenir une concentration finale de 5 % afin de protéger le virus des effets néfastes des cycles de congélation-décongélation. Alternativement, pour une conservation à court terme (par exemple, 1 à 3 jours), supplémentez le liquide allantoïdien avec du saccharose (5 % final) ou avec un tampon Mannitol-Lysine (ML) 3× (15 % Mannitol, 3 % Lysine) pour obtenir une concentration finale de 1× (5 % Mannitol, 1 % Lysine) avant stockage à 4 °C.
2. Purification du VND à partir du liquide allantoïque
- Filtration de profondeur du liquide allantoïque
- Conserver le liquide allantoïque clarifié à -80 °C et le décongeler à 4 °C la nuit précédant la purification.
- Dans une hotte de sécurité biologique, installer le tuyau et la pompe péristaltique comme indiqué dans la Figure 2.
- Si ce n’est pas déjà fait, combiner le liquide allantoïque avec du tampon ML 3× pour obtenir une concentration finale de 1×.
- Avant de fixer le filtre de profondeur, stériliser le tuyau en faisant circuler 50 mL d’hydroxyde de sodium (NaOH) 0,5 M à travers le système vers un récipient de déchets.
- Rincer le tuyau en faisant passer 100 mL d’eau stérile de qualité moléculaire à travers le système et dans le récipient de déchets.
REMARQUE : Comme le NaOH inactivera le VND, il est essentiel de bien rincer les lignes avant d’introduire le liquide allantoïque contenant le virus. - Amorcer le système en faisant circuler 50 mL de PBS, puis arrêter la pompe lorsqu’il reste environ 5 mL de PBS dans le tube.
- Fixer un filtre de profondeur ayant une capacité de rétention de 1-3 µm au tuyau, puis retirer le deuxième bouchon du côté apical du filtre pour purger l’air. Commencer à faire circuler 50 mL supplémentaires de PBS à travers le système.
- Dès que le PBS commence à s’écouler par l’orifice de purge en haut du filtre, fermer l’orifice et continuer à faire circuler le PBS dans les lignes.
REMARQUE : La présence de petites bulles d’air est acceptable, mais si de grandes quantités d’air sont présentes, il faudra purger à nouveau le filtre comme décrit aux étapes 2.1.7 et 2.1.8. - Arrêter la pompe lorsqu’il reste environ 5 mL de PBS dans le tube.
- Remplacer le récipient de déchets par un nouveau récipient stérile de collecte et commencer à faire circuler le liquide allantoïque à travers le filtre de profondeur.
REMARQUE : La pression ne doit pas dépasser 10 psi, car cela provoquerait une cisaillement du virus. La pression peut être ajustée en modifiant le débit de la pompe. Si la pression commence à dépasser 10 psi et que le débit ne peut plus être réduit, un nouveau filtre de profondeur doit être utilisé. Dans ce cas, les étapes 2.1.6 à 2.1.8 doivent être répétées avant de reprendre l’écoulement du liquide allantoïque. - Une fois que tout le liquide allantoïque a traversé le filtre, faire circuler 50 mL de tampon ML 1× dans les lignes afin de maximiser la récupération du virus.
- Collecter le liquide jusqu’à ce que les lignes soient à sec. Conserver le virus pendant la nuit ou jusqu’à 36 h à 4 °C.
REMARQUE : Une fois le virus filtré par profondeur, poursuivre le processus de purification dans les 36 h suivant la filtration. - Détacher le filtre de profondeur et désinfecter les tuyaux en faisant circuler 100 mL de NaOH 0,5 M et 400 parties par million (ppm) d’eau de Javel préchauffée à 42 °C à travers le système avant de le stocker dans du NaOH 0,5 M.
- Filtration tangentielle pour la concentration du VND
- Assembler les composants de la cassette comme illustré dans la Figure 3A dans une hotte de sécurité biologique.
REMARQUE : Le collecteur et la plaque d’extrémité doivent être lavés avec un détergent et séchés avant utilisation. Les joints en silicone sont réutilisables et doivent être conservés dans du NaOH 0,5 M avec la cassette. - Installer le système de filtration tangentielle (TFF) (également appelée filtration en flux tangentiel) en configuration « ouverte » (Figure 3B).
- Si la cassette est utilisée pour la première fois, assembler la cassette TFF en configuration d’élution et la rincer avec 100 mL d’eau stérile de qualité moléculaire (Figure 3C).
- Lorsqu’il reste seulement 5 mL d’eau dans le réservoir, interrompre la pompe et modifier la configuration du système TFF en configuration fermée (Figure 3D).
- Ajouter 100 mL de NaOH 0,5 M et 400 ppm d’eau de Javel préchauffée à 42 °C dans le réservoir et faire circuler la solution pendant 30 à 60 min.
- Interrompre l’écoulement et remettre le système TFF en configuration d’élution, puis reprendre l’écoulement pour éliminer la solution de nettoyage.
- Lorsqu’il reste environ 5 mL dans le réservoir, interrompre la pompe et ajouter 100 mL d’eau stérile de qualité moléculaire pour rincer le système.
- Lorsqu’il reste environ 5 mL dans le réservoir, interrompre la pompe et placer le système TFF en configuration ouverte (Figure 3B). Poursuivre à l’étape 2.2.3.
- Stériliser la cassette et les tuyaux en faisant circuler 100 mL de NaOH 0,5 M à travers le système à l’aide de la pompe péristaltique. Veiller à ce que la pression ne dépasse pas 30 psi afin de préserver l’intégrité de la cassette.
- Interrompre la pompe lorsqu’il reste environ 5 mL de NaOH 0,5 M dans le réservoir.
- Ajouter 100 mL d’eau stérile de qualité moléculaire dans le réservoir et reprendre la circulation du fluide à travers la cassette. Agiter le réservoir pour rincer complètement les parois et éviter l’inactivation du virus. Répéter l’étape de rinçage du réservoir.
- Lorsqu’il reste environ 5 mL d’eau stérile de qualité moléculaire dans le réservoir, interrompre la pompe.
- Ajouter 100 mL de PBS dans le réservoir, en agitant pour s’assurer que l’eau stérile de qualité moléculaire est complètement rincée des parois. Reprendre l’écoulement du liquide à travers la cassette.
- Lorsqu’il reste environ 5 mL dans le réservoir, interrompre la pompe, ajouter le liquide allantoïque préalablement filtré par profondeur dans le réservoir, puis reprendre l’écoulement de la pompe.
- Surveiller le manomètre 1 (Figure 3B) pour s’assurer qu’il ne dépasse pas 10 psi afin d’éviter le cisaillement du virus. Utiliser conjointement la vitesse de la pompe péristaltique et des pinces en C pour augmenter l’élution vers les déchets.
REMARQUE : La combinaison de la vitesse de la pompe péristaltique et des pinces en C entraîne une augmentation de la pression. - Lorsqu’il reste 50 à 100 mL de liquide allantoïque dans le réservoir, interrompre la pompe pour effectuer un échange de tampon en ajoutant 150 à 200 mL de tampon ML 1×.
- Reprendre l’écoulement de la pompe, en surveillant à nouveau le manomètre 1 (Figure 3B) pour s’assurer qu’il ne dépasse pas 10 psi.
- Lorsqu’il reste 5 à 10 mL dans le réservoir, interrompre la pompe.
- À l’aide de deux pinces en C, fermer les deux lignes de déchets comme indiqué dans la Figure 3C.
- Déconnecter la ligne de rétention alimentant le réservoir et l’insérer dans un tube conique de 50 mL (Figure 3C).
- Reprendre l’écoulement de la pompe, en s’arrêtant lorsque quelques gouttes de liquide restent dans le réservoir.
- Retirer les pinces en C des lignes de déchets et reconnecter la ligne d’alimentation de rétention au réservoir (Figure 3B).
- Ajouter 20 à 25 mL de tampon ML 1× et reprendre l’écoulement de la pompe jusqu’à ce qu’il reste environ 5 mL dans le réservoir.
- Répéter les étapes 2.2.13 à 2.2.16.
REMARQUE : Une troisième élution peut être réalisée en répétant les étapes 2.2.17 et 2.2.13 à 2.2.16 pour augmenter le rendement viral. Toutefois, la majorité du virus est présente dans les deux premières élutions. - Une fois les élutions terminées, placer le virus sur de la glace ou à 4 °C.
- Pour nettoyer les lignes, configurer le système en boucle fermée (Figure 3D), les lignes de déchets alimentant à nouveau le réservoir, comme illustré dans la Figure 3D.
- Procéder au nettoyage du système en ajoutant 250 mL de NaOH 0,5 M et 400 ppm d’eau de Javel préchauffée à 42 °C.
- Faire circuler la solution de nettoyage à travers le système toute la nuit.
REMARQUE : Lors de la recirculation de la solution de nettoyage, si la pompe fonctionne à une vitesse de 50 mL/min, une pression d’environ 5 psi devrait être observée. Si la pression dépasse cette valeur, la cassette est sale, la solution de nettoyage doit être remplacée et le processus répété. - Éluer la solution de nettoyage en dirigeant les deux lignes de déchets et la ligne de rétention vers un contenant de déchets.
- Ajouter 400 à 500 mL d’eau stérile dans le réservoir et la faire circuler à travers le système vers les récipients de déchets.
- Lorsqu’il reste environ 5 mL dans le réservoir, interrompre la pompe et ajouter 100 à 200 mL de NaOH 0,5 M dans le réservoir, en agitant la solution pour rincer les parois du récipient.
- Lorsque le réservoir est presque vide, répéter l’étape 2.2.23 deux fois supplémentaires.
- Démonter le dispositif TFF, en conservant la cassette TFF et les joints dans un petit volume de NaOH 0,5 M dans un sac en plastique refermable à 4 °C.
REMARQUE : Les tuyaux peuvent être stockés à température ambiante, immergés dans du NaOH 0,5 M.
- Assembler les composants de la cassette comme illustré dans la Figure 3A dans une hotte de sécurité biologique.
- Ultracentrifugation sur gradient de densité d’iodixanol
- Allumer l’ultracentrifugeuse et la régler pour prérefroidir à 4 °C. Prérefroidir également le rotor souhaité à 4 °C (voir le Tableau des matériaux).
REMARQUE : Les rotors doivent être conservés à 4 °C. - Utiliser la solution stock d’iodixanol à 60 % (concentration au moment de l’achat) pour préparer des solutions à 40 %, 20 % et 10 % en les diluant avec du PBS et du tampon ML 3× pour obtenir une concentration finale de ML tampon à 1×.
- Dans un tube d’ultracentrifugation de 13,2 mL, à fond mince et ouvert, superposer respectivement 0,5 mL, 2,5 mL et 2,5 mL des solutions d’iodixanol à 40 %, 20 % et 10 % (Figure 4A).
REMARQUE : Incliner le tube d’ultracentrifugation sur le côté et expulser lentement la solution réduit considérablement le risque de mélange des couches du gradient. La séparation entre chaque couche doit être visible, avec un « halo » observable entre chaque couche du gradient. - Utiliser un stylo-feutre pour marquer les interfaces entre les différentes couches du gradient.
- Superposer 6 à 6,5 mL du virus éluté issu de la procédure TFF sur le gradient de densité. Ajouter le virus soigneusement, comme décrit à l’étape 2.3.3, afin de ne pas perturber le gradient de densité.
- Placer les tubes d’ultracentrifugation dans les inserts du rotor à bille (voir le Tableau des matériaux) en utilisant une balance à plateau ouvert pour équilibrer les inserts à 0,01 g près. Utiliser du PBS ou un éluant viral supplémentaire pour compenser les différences de poids.
- Une fois les tubes équilibrés, boucher les tubes et les charger dans le rotor.
- Centrifuger pendant 1,5 h à 125 000 × g à 4 °C.
REMARQUE : Cette étape peut être effectuée pendant la nuit si une ultracentrifugeuse dotée d’une fonction de démarrage différé est disponible. - Après l’ultracentrifugation, retirer les tubes à l’aide d’une pince stérile. Rechercher la bande cible, une large bande située entre les gradients à 10 % et 20 % (Figure 4B).
- Suspendre le tube au-dessus d’un bécher à l’aide d’un support universel.
- Fixer une aiguille de 18 G × 1,5 pouce à une seringue de 5 mL et percer le côté du tube d’ultracentrifugation.
REMARQUE : Le tube doit être percé légèrement en dessous de la bande cible, l’aiguille orientée vers le haut avec le biseau vers le haut, de sorte qu’elle pénètre dans la bande cible. - Étendre lentement le piston pour prélever la bande cible.
REMARQUE : Déplacer l’aiguille à l’intérieur de la bande cible pour maximiser la quantité de virus extraite. Veiller à ne pas mélanger d’autres bandes ou débris avec la bande cible, et éviter de prélever un excès de solution, car cela augmenterait le nombre de cassettes de dialyse nécessaires. - Une fois la bande cible extraite, retirer l’aiguille et laisser le reste de la solution s’écouler dans le bécher de déchets. Dispenser la bande cible dans un tube conique de 50 mL jusqu’à ce que toutes les bandes de tous les autres tubes d’ultracentrifugation aient été extraites.
- Répéter les étapes 2.3.10 à 2.3.13 jusqu’à ce que toutes les bandes cibles aient été extraites de tous les tubes d’ultracentrifugation.
- Approche alternative pour l’extraction des bandes cibles décrite aux étapes 2.3.10 à 2.3.13
- Retirer lentement le liquide recouvrant la bande cible à l’aide d’une pipette. Une fois arrivé à la bande cible, l’extraire à l’aide de la pipette et conserver le virus dans un tube conique de 50 mL.
REMARQUE : Cette méthode permet de réutiliser les tubes d’ultracentrifugation.
- Retirer lentement le liquide recouvrant la bande cible à l’aide d’une pipette. Une fois arrivé à la bande cible, l’extraire à l’aide de la pipette et conserver le virus dans un tube conique de 50 mL.
- Allumer l’ultracentrifugeuse et la régler pour prérefroidir à 4 °C. Prérefroidir également le rotor souhaité à 4 °C (voir le Tableau des matériaux).
- Élimination de l’iodixanol de la solution virale
REMARQUE : La bande contenant le VND apparaît à une densité d’iodixanol comprise entre 15 % et 16 %. La concentration d’iodixanol dans la solution peut être déterminée en mesurant l’absorbance à 340 nm par rapport à une courbe étalon. Cette étape peut être omise, car aucun effet indésirable ni toxicité aiguë n’ont été observés lorsque des solutions d’iodixanol à cette concentration ont été administrées à des souris C57BL/6.- Préhumidifier une cassette de dialyse de 0,5 à 3 mL avec une limite de poids moléculaire de 10 kDa en la plongeant dans du PBS pendant 1 min.
REMARQUE : La membrane de dialyse doit passer d’un aspect lisse à un aspect ridé ou bosselé. Si le volume de virus extrait dépasse 10 mL, utiliser deux cassettes de dialyse de 0,5 à 3 mL ou une cassette de dialyse de 5 à 12 mL. - Selon le cas, utiliser une seringue de 5 ou 10 mL et une aiguille obtuse de remplissage de 18 G × 1,5 pouce pour prélever le virus du tube conique de 50 mL.
- Utiliser la seringue pour pénétrer dans la cassette de dialyse, en prenant soin de ne pas percer la membrane, puis injecter le virus.
REMARQUE : La cassette de dialyse peut être tournée pour ajuster la position de la poche d’air à l’intérieur. La poche d’air doit être éliminée avant de retirer l’aiguille de la cassette. - Remplir un bécher de 1 L avec du PBS 1× stérile, y placer un barreau aimanté et la cassette de dialyse, puis couvrir. Incuber à 4 °C avec agitation douce.
REMARQUE : Utiliser de la mousse de polystyrène extrudé et un élastique pour fixer la cassette de dialyse afin qu’elle flotte dans le PBS. La cassette peut gonfler légèrement en raison du tampon ML. - Après 1 à 2 h, remplacer par du PBS 1× frais et continuer l’incubation à 4 °C pendant 8 à 10 h supplémentaires avec une légère agitation.
REMARQUE : Cette étape peut également être effectuée pendant la nuit. - Remplacer à nouveau par du PBS 1× frais et incuber à température ambiante pendant 1 à 2 h.
- Préhumidifier une cassette de dialyse de 0,5 à 3 mL avec une limite de poids moléculaire de 10 kDa en la plongeant dans du PBS pendant 1 min.
- Concentration de la solution virale
- Retirer la cassette de dialyse du tampon de dialyse (Figure 4C) et la placer dans un petit sac en plastique refermable. Ajouter 15 à 25 mL de polyéthylène glycol à 40 % de 20 000 Da de manière à ce que la cassette de dialyse soit complètement immergée.
- Incuber à température ambiante avec agitation. Vérifier périodiquement le volume de virus dans la cassette à l’aide d’une seringue de 5 ou 10 mL et d’une aiguille obtuse de remplissage de 18 G × 1,5 pouce.
REMARQUE : Le temps nécessaire pour concentrer le virus varie selon le volume initial et le volume final souhaité. En général, le volume final souhaité se situe entre 1 et 1,5 mL, quel que soit le volume initial de liquide allantoïque. Lors de la vérification du volume, veiller à ne pas utiliser le même orifice, car cela compromettrait l’intégrité de l’orifice et pourrait entraîner un mélange de la solution de polyéthylène glycol et du virus. - Avant de retirer le virus concentré de la cassette de dialyse, rincer brièvement la cassette dans du PBS 1× et remplir une aiguille obtuse de remplissage de 18 G × 1,5 pouce avec de l’air.
- Insérer la seringue remplie d’air dans la cassette de dialyse et appuyer sur le piston. Tourner l’appareil de manière à pouvoir retirer le virus concentré sans extraire l’air introduit.
- Dispenser le virus concentré dans un tube conique de 50 mL, en notant le volume prélevé.
- À l’aide de la même seringue et aiguille, injecter une quantité appropriée de saccharose à 60 % dans la cassette de dialyse afin que, combiné au virus précédemment retiré, il donne une concentration finale de 5 % de saccharose.
- Utiliser les doigts gantés pour masser la membrane afin de détacher les particules virales résiduelles qui pourraient y adhérer, en prenant soin de ne pas l’endommager. Retirer une partie de l’excès d’air dans la cassette de dialyse pour faciliter le détachement.
- Combiner ce rinçage avec le virus déjà présent dans le tube conique de 50 mL.
REMARQUE : Le virus est maintenant en présence de 5 % de saccharose et prêt à être fractionné en aliquots de 20 µL, 50 µL, 100 µL ou 200 µL et stocké à -80 °C. Alternativement, pour un stockage à long terme, le VND peut être lyophilisé et conservé à 4 °C comme décrit à la section 2.6.
Résultats
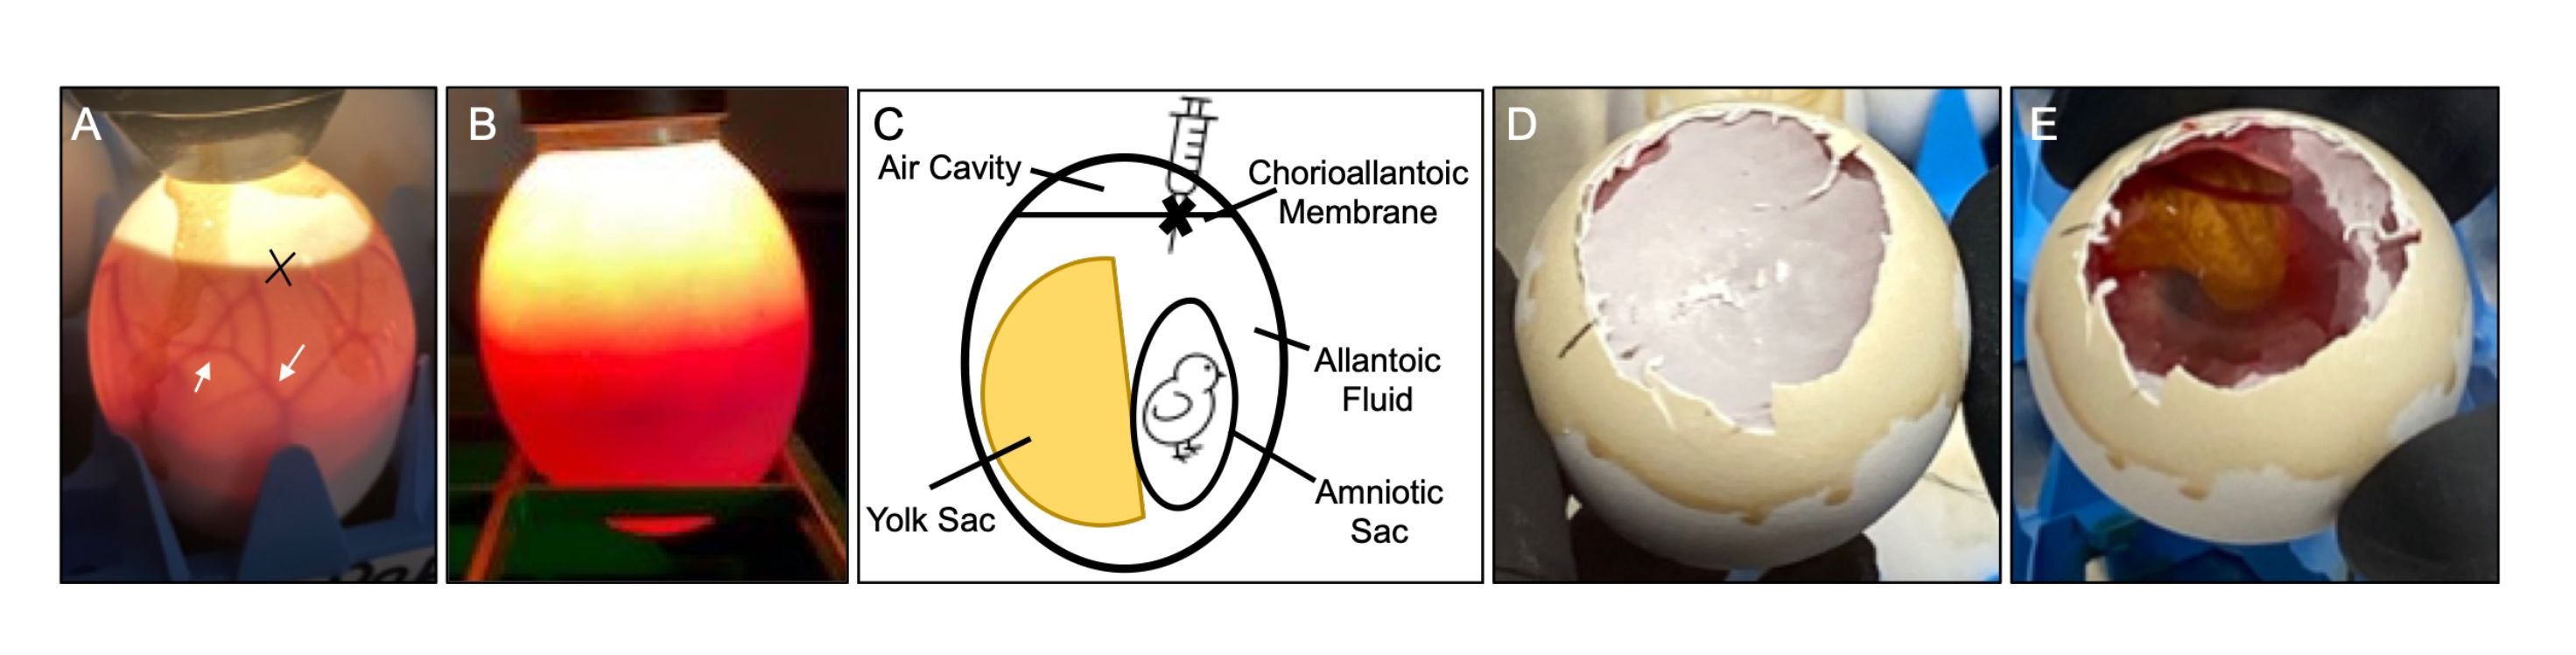
Figure 1 : Infection et récolte du VND à partir d'œufs de poulet embryonnés spécifiquement exempts d'agents pathogènes. (A) Un réseau vasculaire en forme de toile (flèches) doit être visible après 9 jours d'incubation, ainsi que des mouvements de l'embryon. Le symbole « X » indique l'interface entre la membrane chorioallantoïdienne et la cavité d'air, et l'endroit où le trou doit être réalisé pour l'inoculation de l'œuf. (B) Image montrant un embryon mort. Remarquez l'absence du réseau vasculaire en toile. L'absence de mouvement de l'embryon sera également observée. (C) Schéma des composants d'un œuf de poulet embryonné, indiquant les emplacements de la cavité d'air, du sac vitellin, du sac amniotique, de la membrane chorioallantoïdienne et du liquide allantoïdien. (D) Retrait de la coquille pour exposer la membrane chorioallantoïdienne. (E) Illustre l'aspect que doivent avoir le liquide allantoïdien et l'embryon après l'ouverture de la membrane chorioallantoïdienne. Abréviation : NDV = virus de la maladie de Newcastle.
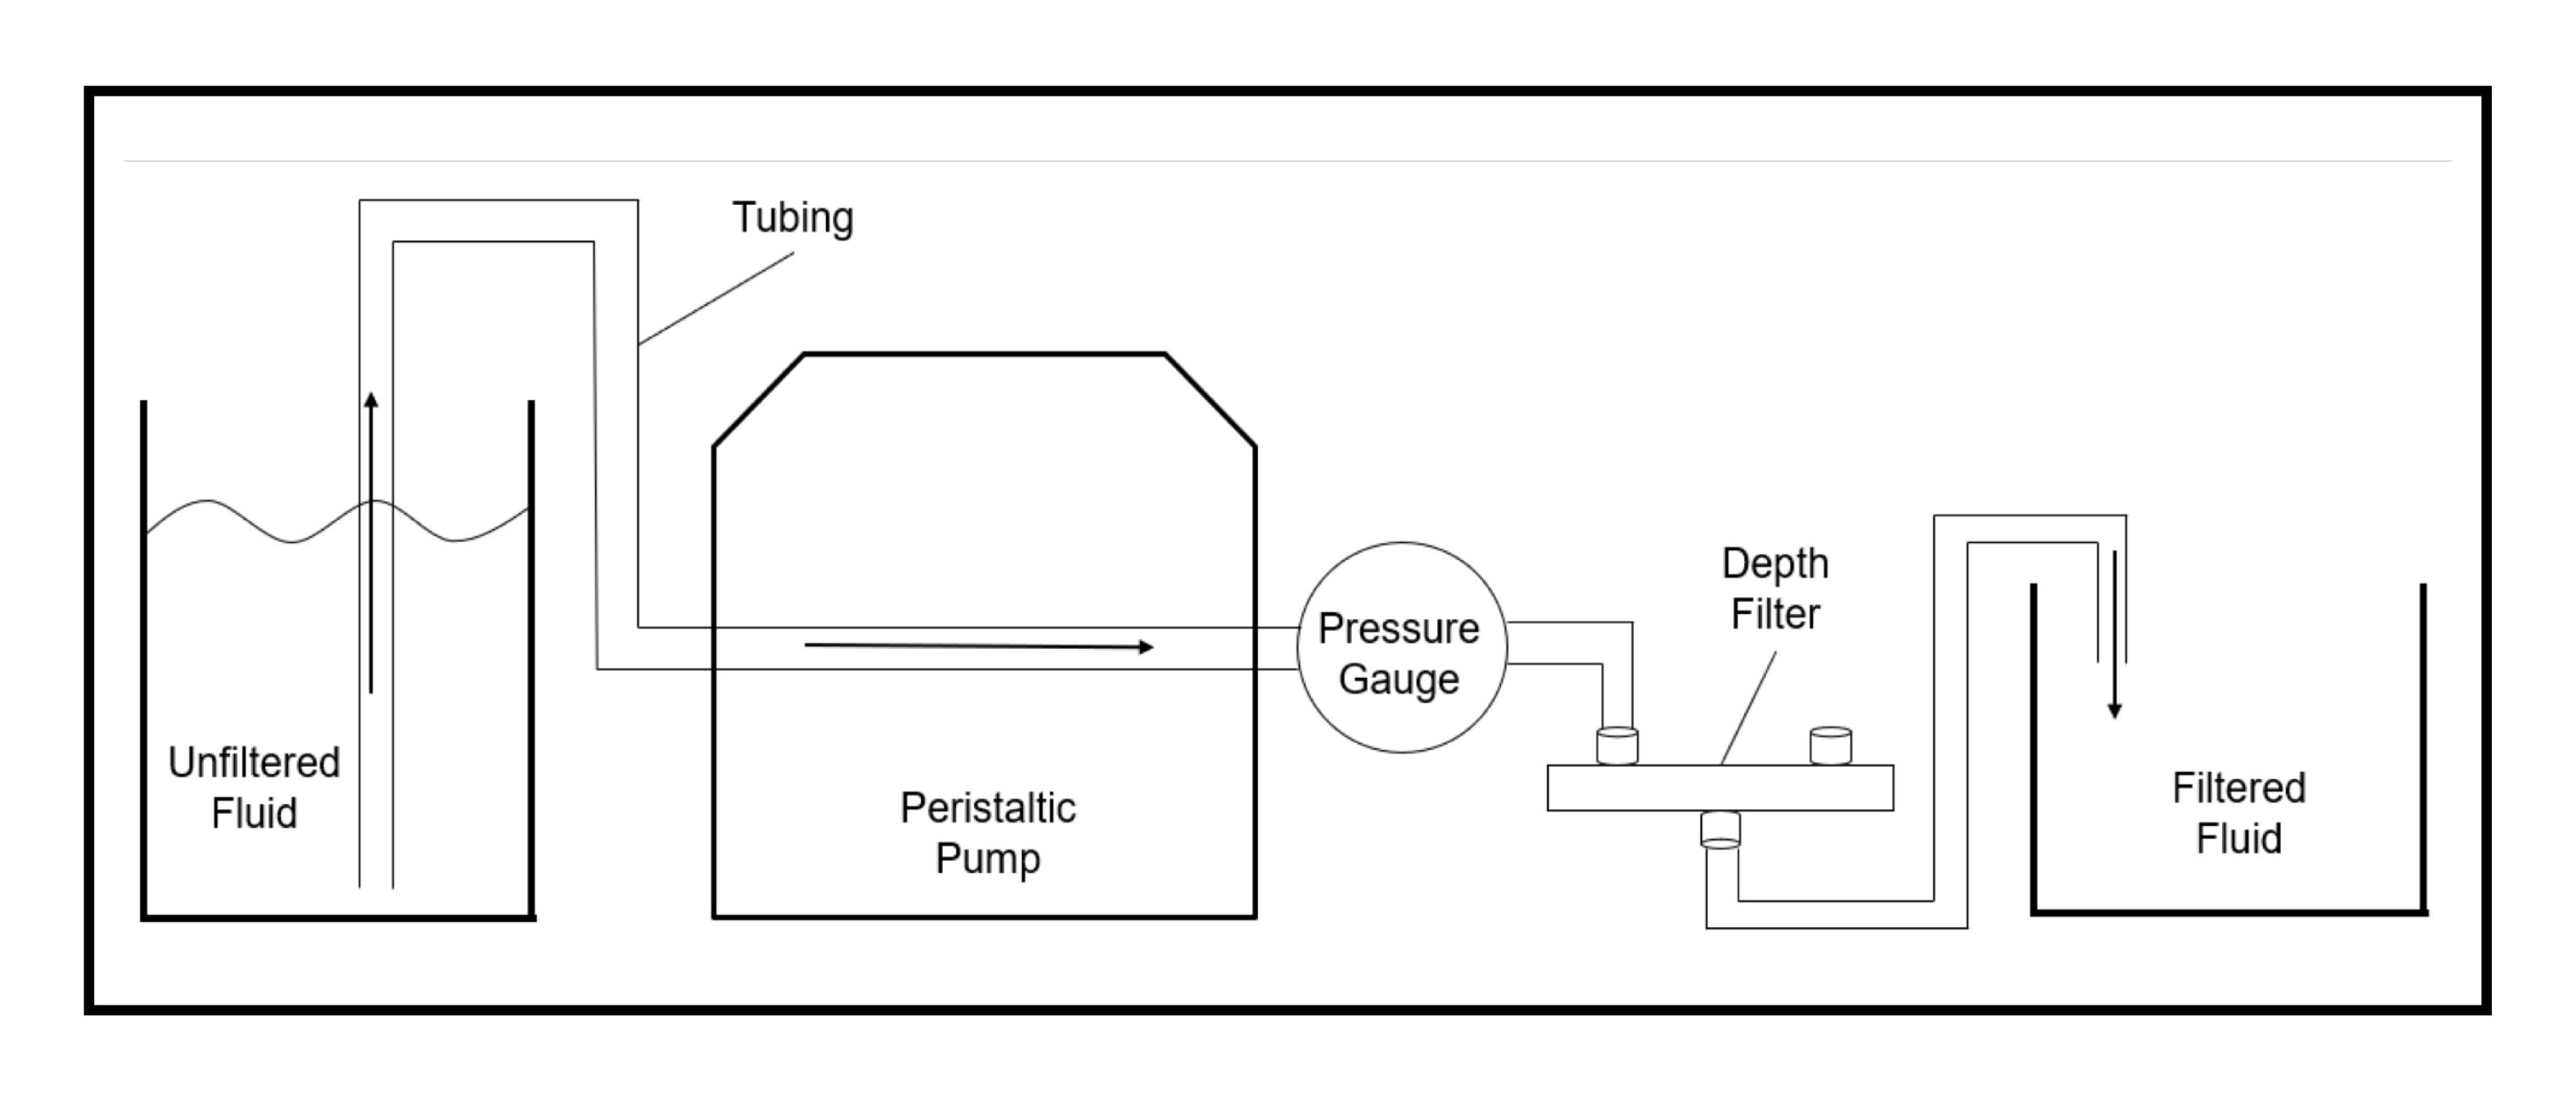
Figure 2 : Schéma décrivant l'assemblage général de l'appareil utilisé pour la filtration en profondeur. Veillez à installer le manomètre en amont du filtre en profondeur.
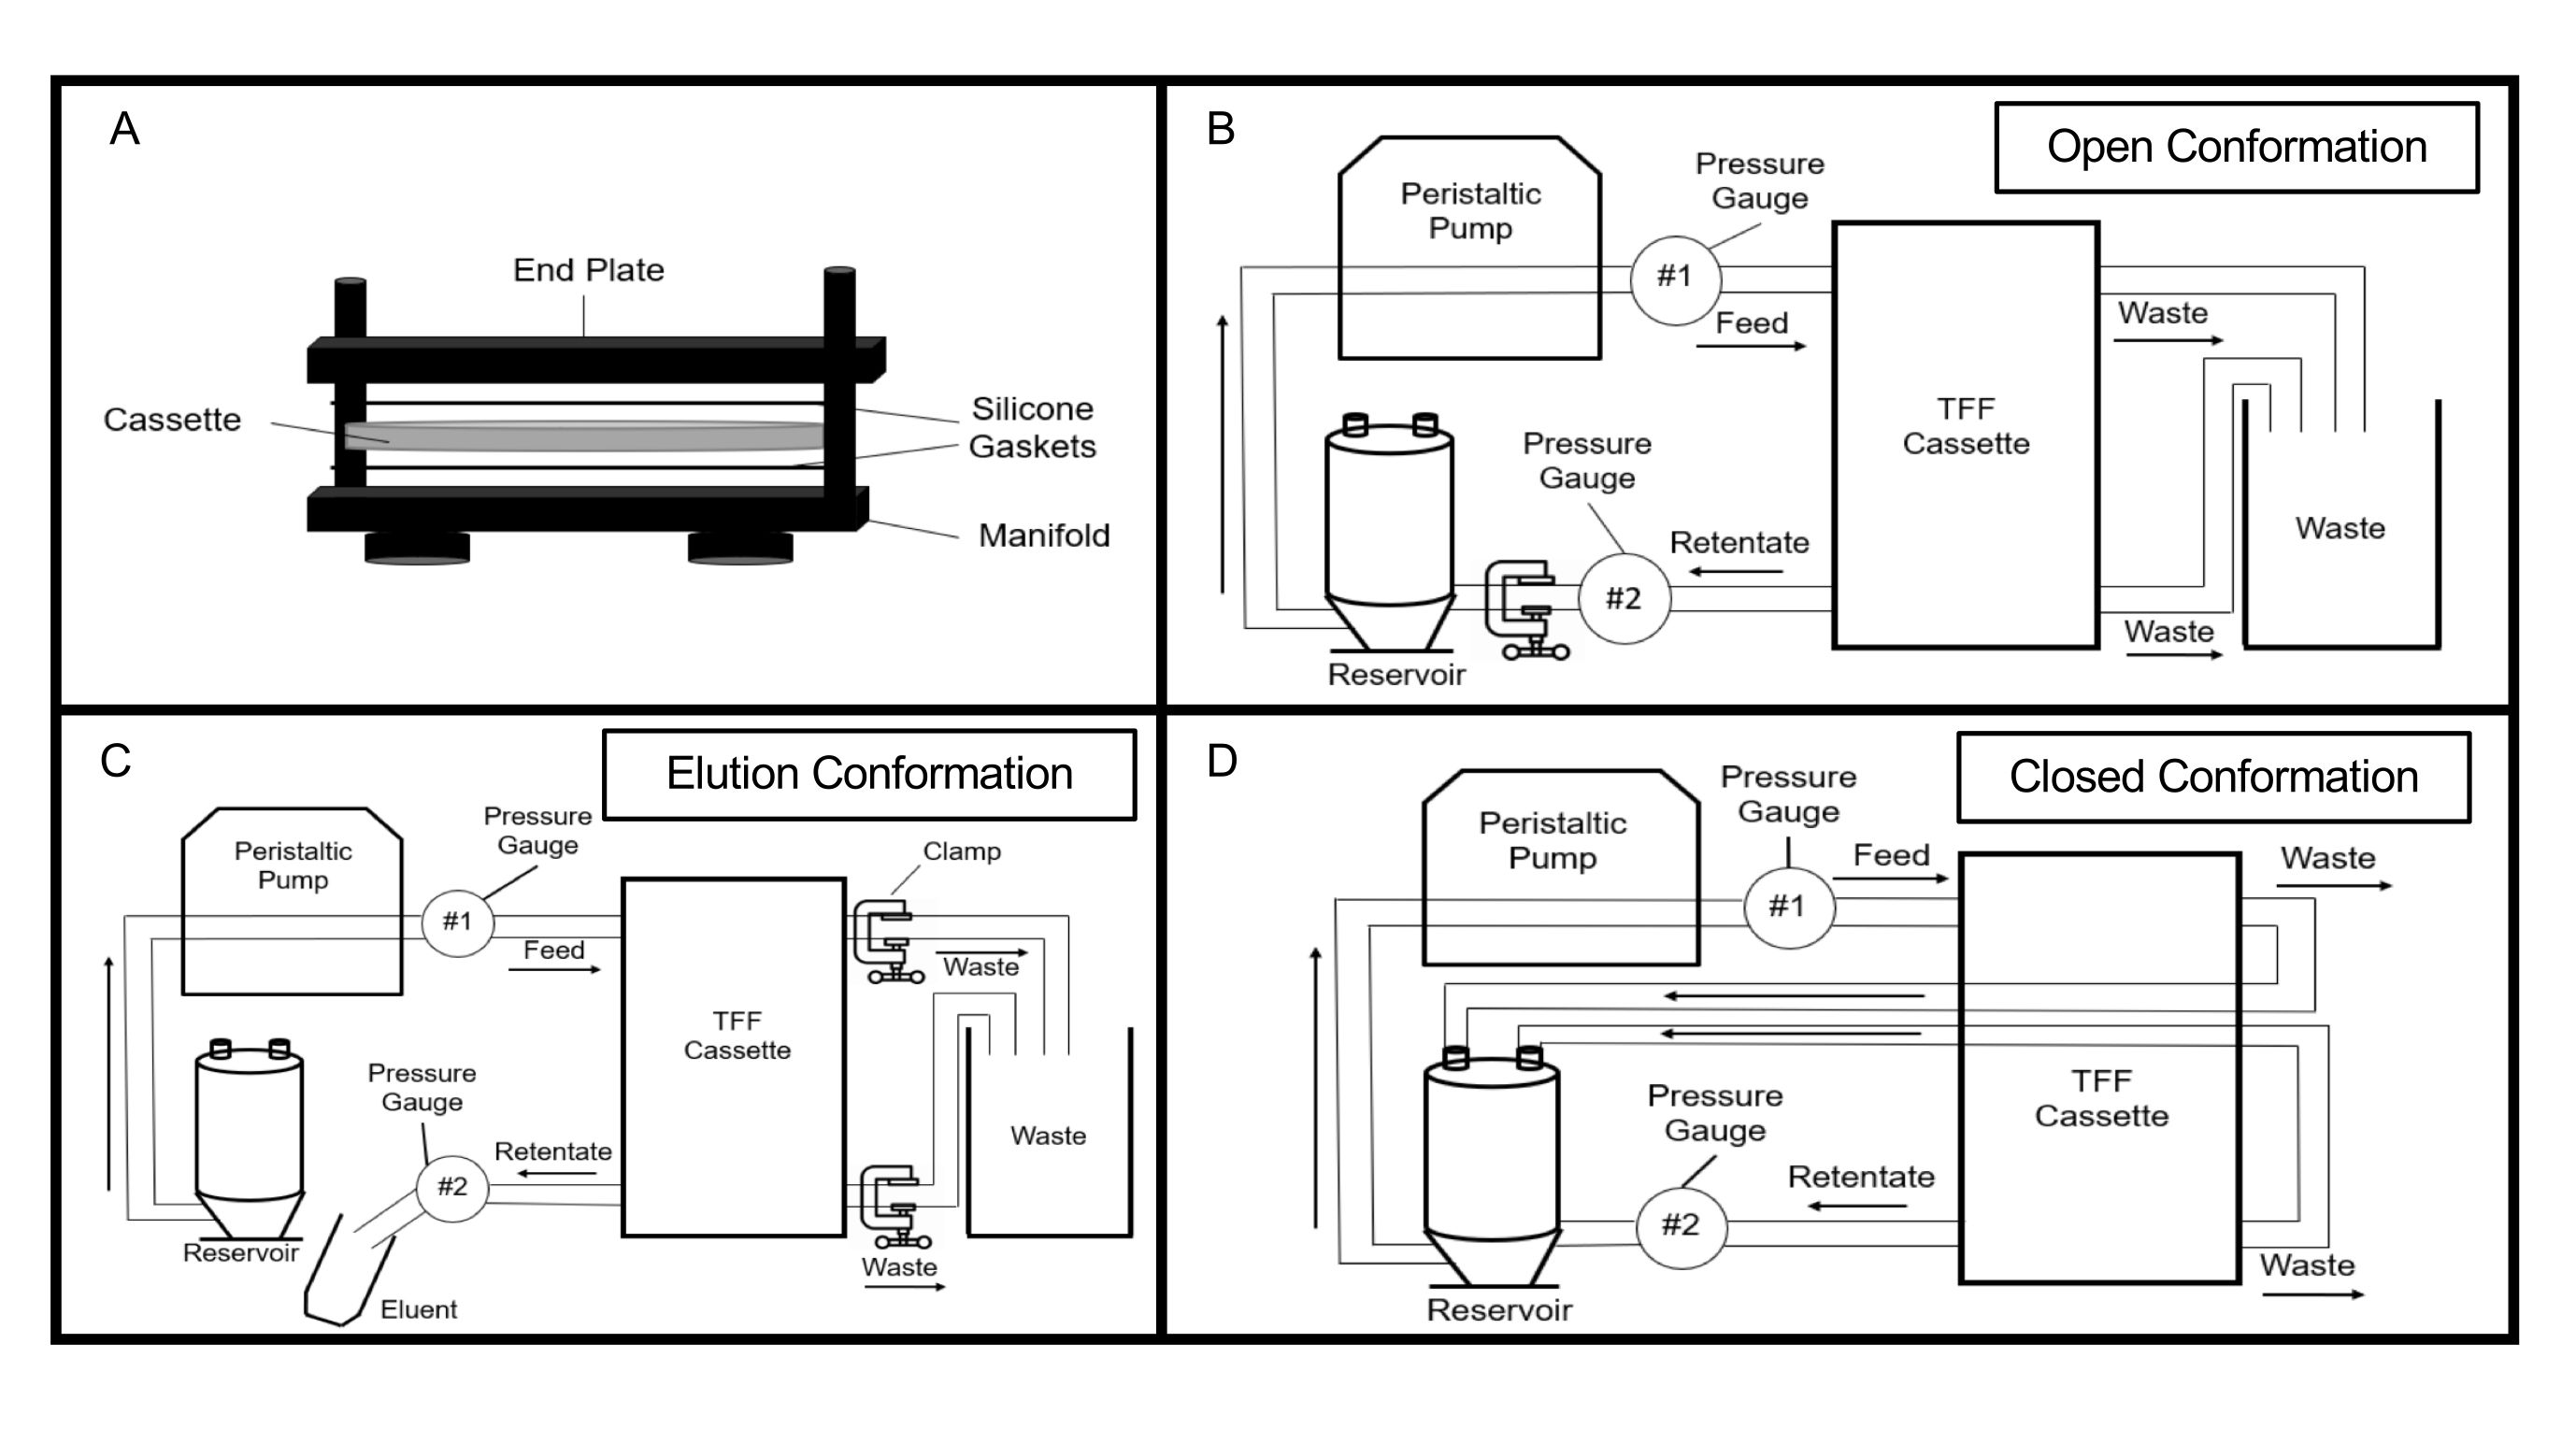
Figure 3 : Installation de la filtration tangentielle en flux dans ses différentes configurations. Les flèches indiquent le sens de l'écoulement du fluide. (A) Illustration du montage de la cassette de filtration tangentielle. (B) Schéma du système de filtration tangentielle en configuration « ouverte », utilisée lors de la purification et de la concentration du fluide. (C) Schéma du dispositif de filtration tangentielle lors de l'élution du fluide hors du système, comme utilisé pour l'élution du virus et de la solution de nettoyage. (D) Schéma du système de filtration tangentielle en configuration « fermée », utilisée lors du nettoyage du système de filtration tangentielle. Abréviation : TFF = filtration tangentielle en flux.
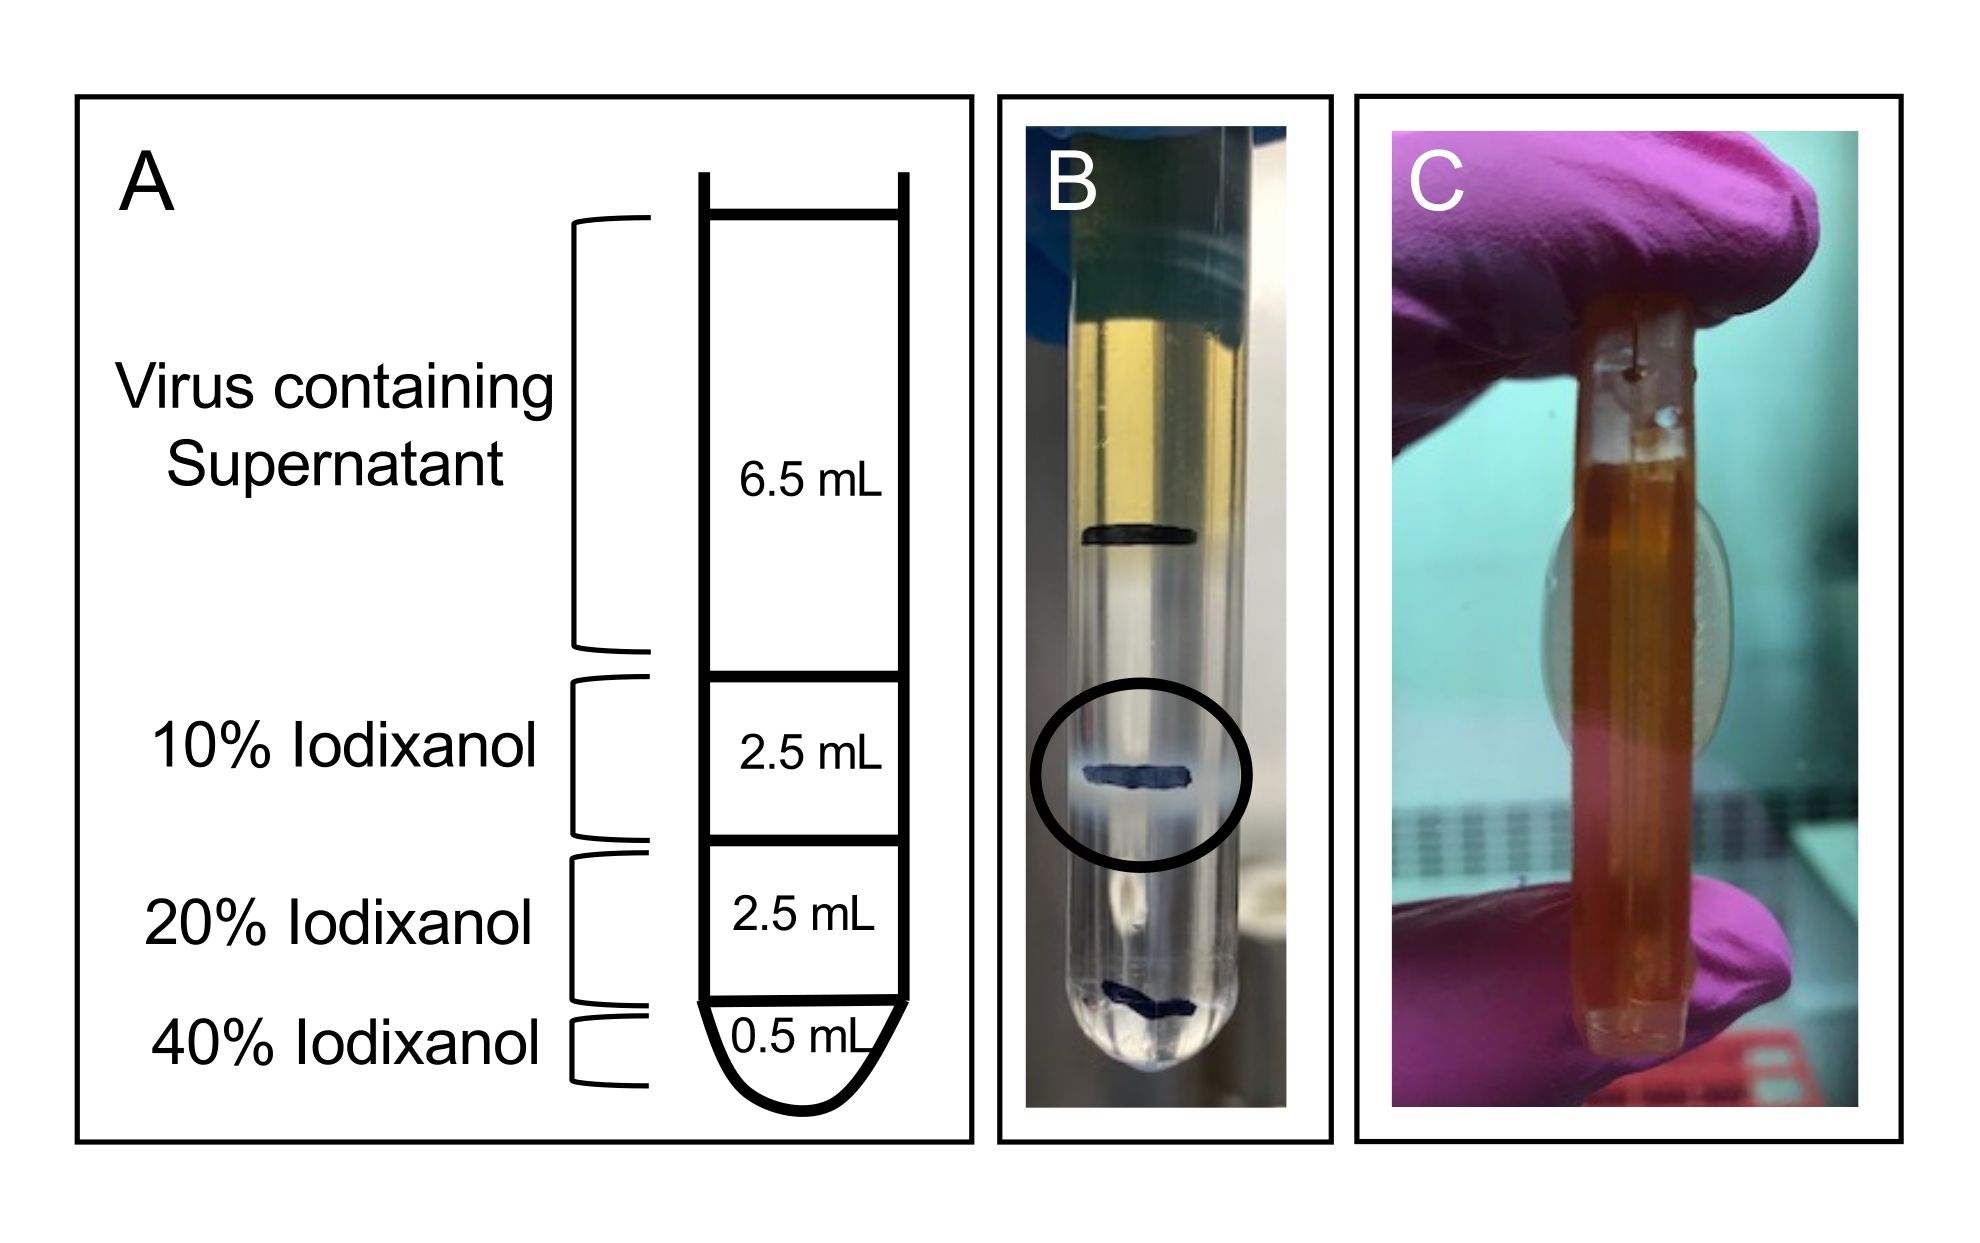
Figure 4 : Ultracentrifugation en gradient de densité et dialyse du virus concentré provenant de la TFF. (A) Schéma montrant la composition du gradient de densité à l'iodixanol. (B) Profil de bandes virales après ultracentrifugation du virus produit à l'aide du tampon ML au cours du processus de purification. La bande principale contenant le virus est indiquée par une ellipse noire. (C) Taille typique d'une cassette de dialyse chargée avec 10 mL de virus préparé par un gradient d'iodixanol à la fin de la procédure de dialyse. Abréviation : TFF = filtration tangentielle ; ML = mannitol-lysine.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Seringue de 1 mL à embout conique | BD | 309659 | |
| Seringue de 10 mL à raccord Luer-Lok | BD | 302995 | |
| Solution de povidone iodée à 10 % | LORIS | 109-08 | |
| Tubes coniques de 15 mL | Thermo-Fisher | 14955240 | |
| Aiguille émoussée de remplissage, 18G x 1 1/2 po | BD | 305180 | |
| Aiguille Precision Glide, 18G x 1 1/2 po | BD | 305196 | |
| Aiguille de 25 G x 5/8 po | BD | 305122 | |
| Seringue de 5 mL à raccord Luer-Lok | BD | 309646 | |
| Acide acétique, glacial | Thermo-Fisher | A38-212 | |
| Agarose | Froggabio | A87-500G | |
| Alexa-Fluor 488 anti-souris conjugué à la chèvre | Invitrogen | A11001 | |
| Centrifugeuse Allegra X-14 | Beckman Coulter | B08861 | |
| Persulfate d'ammonium | BioRad | 161-0700 | |
| Eau de Javel (5 %) | Thermo-Fisher | 36-102-0599 | |
| Pince à extrémité large et non dentelée | Thermo-Fisher | 09-753-50 | |
| Bleu de bromophénol | Sigma-Aldrich | 114405-25G | |
| Support de cassette Centramate | PALL | CM018V | |
| ChemiDoc XRS+ | BioRad | 1708265 | |
| Incubateur numérique Sportsman 1502 pour œufs | Berry Hill | 1502W | |
| D-Mannitol | Sigma-Aldrich | M4125-500G | |
| Transilluminateur pour œufs (candélabre) | Berry Hill | A46 | |
| Éthanol (70 %) | Thermo-Fisher | BP82031GAL | |
| Raccords en té femelle filetés, en nylon, 1/8 po NPT(F) | Cole-Parmer | 06349-50 | |
| Kit d'humidité | Berry Hill | 3030 | |
| Iodixanol | Sigma-Aldrich | D1556 | Solution aqueuse stérile d'iodixanol à 60 % (p/v) |
| Chlorhydrate de L-lysine | Sigma-Aldrich | 62929-100G-F | |
| Raccords mâle et femelle Luer-Lok à filetage national de 1/8 po (NPT) | Cole-Parmer | 41507-44 | |
| Motoréducteur numérique Masterflex L/S | Cole-Parmer | RK-07522-20 | Pompe péristaltique avec affichage numérique |
| Tête de pompe Masterflex L/S Easy Load pour tubulure de précision | Cole-Parmer | RK-07514-10 | |
| Tubulure en silicone Masterflex (platiné) L/S 16 | Cole-Parmer | 96420-16 | Silicone biopharmaceutique, vulcanisé au platine |
| Cassette membranaire Omega LV Centramate, 100K | PALL | OS100T02 | |
| Ultracentrifugeuse Optima XE-90 | Beckman Coulter | A94471 | |
| Solution PBS 10X | Thermo-Fisher | BP399-20 | |
| Poly(éthylène glycol), Mn moyen 20 000 | Sigma-Aldrich | 81300-1KG | |
| Cassette de dialyse Slide-a-lyzer (renforcée), 10 000 MWCO, 0,5-3 mL | Thermo-Fisher | 66380 | |
| Hydroxyde de sodium (perles) | Thermo-Fisher | S318-10 | |
| Œufs spécifiques sans pathogènes | CFIA | NA | Le fournisseur varie selon l'emplacement |
| Saccharose | Thermo-Fisher | S5-3 | |
| Filtre de profondeur Supracap 50 | PALL | SC050V100P | |
| Ciseaux chirurgicaux | Thermo-Fisher | 08-951-5 | |
| Rotateur Sw41Ti | Beckman Coulter | 331362 | Utilisé aux étapes 2.3.1, 2.3.6 et 2.3.7 du protocole |
| Rotateur SX4750 | Beckman Coulter | 369702 | |
| Adaptateur SxX4750 pour tubes à fond conique | Beckman Coulter | 359472 | |
| Tubes d'ultracentrifugation transparents à paroi mince (9/16 po x 3 1/2 po) | Beckman Coulter | 344059 | |
| Pince à tube vissable | PALL | 88216 | |
| Manomètres utilitaires | Cole-Parmer | 68355-06 |
