Somitogenèse est un processus de développement rythmique que spatialement modèles les axes de corps d'embryons de vertébrés. Auparavant, nous avons développé des lignes de poisson zèbre transgénique qui utilisent journalistes fluorescentes pour observer les gènes cycliques qui animent ce processus. Ici, nous avons la culture dispersés cellules de ces lignes et l'image de leurs oscillations dans le temps in vitro.
Article de méthode
Génération d'dispersée présomitique mésoderme cultures cellulaires pour l'imagerie de la segmentation Horloge poisson zèbre dans des cellules individuelles
Dans cet article
Résumé
Résumé
La segmentation est un processus morphogénétique périodique et séquentielle chez les vertébrés. Cette formation rythmique des blocs de tissus appelées somites le long de l'axe du corps est la preuve d'un oscillateur en motif génétique de l'embryon en développement. Chez le poisson zèbre, l'horloge segmentation conduite intracellulaire est composé de membres de la famille des facteurs de transcription Son / Hes organisé en boucles de rétroaction négative. Récemment, nous avons généré des lignes de reporter fluorescentes transgéniques pour le gène de HER1 cyclique qui récapituler le modèle spatio-temporel des oscillations dans le mésoderme présomitique (PSM). L'utilisation de ces lignes, nous avons développé un système de culture in vitro qui permet l'analyse en temps réel de segmentation des oscillations d'horloge dans des cellules individuelles, isolées PSM. En enlevant le tissu PSM à partir d'embryons transgéniques et en dispersant ensuite les cellules de régions oscillant sur des boîtes à fond de verre, nous avons généré des cultures adaptées à l'imagerie time-lapse de signal de fluorescence deles cellules d'horloge individuels. Cette approche fournit un cadre expérimental et conceptuel pour la manipulation directe de l'horloge de segmentation avec seule cellule de résolution sans précédent, permettant à ses propriétés de cellule-autonome et au niveau des tissus à distinguer et disséqués.
Introduction
La formation périodique des segments le long de l'axe du corps vertébrés, ou somitogenèse, est la preuve d'un oscillateur spatiale et temporelle dans l'embryon en développement. Le mécanisme de contrôle favorisée somitogenèse est décrit conceptuellement par une «horloge et front d'onde" modèle 1, dans lequel le "horloge" constitué d'oscillateurs cellulaires, maintenant pensé pour être intracellulaire conduit par l'expression rythmique d'un ensemble de gènes cycliques 2, met hors de la formation des somites du mésoderme présomitique (PSM). Comme l'embryon se développe, une maturation "front d'onde" dans le PSM se déplace de concert avec le tissu régressant vers la partie postérieure, le ralentissement et d'arrêt des oscillateurs cellulaires lors de son passage 3. Ensemble, ce système spatio-temporelle dynamique est appelée l'horloge de segmentation. Les approches actuelles pour étudier la segmentation horloge durée de trois niveaux croissants d'organisation de l'oscillateur génétique dans des cellules individuelles à e de couplage localesà se produit entre les cellules et enfin à la réglementation mondiale de l'information de position dans le tissu collectif PSM 4.
Des études antérieures suggèrent que la segmentation oscillateur cellulaire autonome chez le poisson zèbre se compose de gènes et de protéines à partir de la transcription de ses / hes factorfamily, qui sont pensés pour former une boucle de rétroaction négative par la répression de la transcription 5-7. La voie de signalisation Delta / Notch synchronise oscillations entre les cellules voisines et régule la période collective de la population 8-10. molécules de signalisation FGF produites dans le bourgeon caudal semblent construire un gradient dans le PSM poisson zèbre, et sont ainsi émis l'hypothèse de contribuer à ralentir et arrêter cellules oscillant dans la partie antérieure 11. Jusqu'à présent, les rôles fonctionnels de chacune de ces molécules dans somitogenèse ont été étudiés par mutation génétique, l'injection de morpholino, choc thermique sur-expression, et antagoniste médicament traitéstiment de pièces d'horlogerie et de la signalisation entre les cellules 5,7,10,12. L'utilisation de ces perturbations, une fonction d'horloge de segmentation a été déduite à partir de la description au niveau du tissu de défauts somites et de la perte d'oscillations uniformes dans l'expression de gènes cycliques tels que HER1, her7, delta et C. Cependant, la quasi-totalité de ces données sont à partir d'embryons fixes et ne parviennent pas à capturer avec précision les changements qui sont inhérents à la fonction dynamique de l'horloge de segmentation. Plus récemment, plusieurs embryons imagerie time-lapse a révélé les premiers mutants avec la période de l'oscillateur modifiée, mais ces observations ont également été réalisés au niveau de 7,13 de tissu. Ainsi, le comportement de l'oscillateur cellulaire autonome hypothèse pendant somitogenèse n'a pas été observée.
Instantanés statiques de somitogenèse donnent une image incomplète parce que, fondamentalement, le processus est piloté par un système oscillant. Des travaux antérieurs dans des cellules de souris et de poussins a montré que les niveaux de transcriptionet l'élévation de la protéine et de l'automne, mais l'échantillonnage d'une oscillation d'environ 2 h toutes les 30 ou 45 min restreint nécessairement les données collectées et donc les conclusions qui peuvent être tirées 14,15. Etude d'autres oscillateurs biologiques, plus particulièrement, les horloges circadiennes, s'est éloignée de mesures mises en scène de l'expression génique et protéique de surveillance en temps réel à l'aide fluorescent et journalistes bioluminescentes 16,17. Ces outils sont essentiels pour démontrer les propriétés d'horloge des cellules individuelles 18. Un journaliste de bioluminescence du gène cyclique Hes1 a été développé et brièvement caractérisé dans les cellules de PSM de souris simples 19. La période moyenne et la variance ont été calculées pour un petit nombre de cellules, montrant que les oscillations persistent pendant plusieurs cycles in vitro. Cependant, ces études n'ont pas abordé quantitativement la stabilité et la robustesse de la fréquence et de l'amplitude de l'oscillateur, si les cellules peuvent entrer spontanément ou oscillations de sortie,et comment les cellules maintiennent leurs relations de phase. En outre, les effets de molécules de signalisation présents dans l'embryon sur l'horloge de la cellule-autonome n'ont pas été directement testées. Par conséquent, ces propriétés fondamentales de l'oscillateur à une seule cellule restent totalement inconnu.
Nous avons récemment développé des lignes de poissons transgéniques à l'aide de BAC recombineering 20 à conduire Vénus (YFP) journalistes de fluorescence de HER1 expression 30. Ces lignes exploiter les indices de réglementation du locus chromosomique intact dans lequel ils sont intégrés et récapitulent la dynamique temporelle et répartition spatiale des HER1. Cette découverte permet la surveillance en temps réel de l'expression génique dans l'embryon de poisson zèbre développement in vivo. Pour étudier les propriétés fondamentales des oscillations de cellules autonomes et la façon dont cette expression est régulée au cours du temps, nous avons récemment développé une méthode fiable pour isoler et enregistrer à partir de cellules PSM in vitro. Ce protocol décrit la façon dont nous avons utilisé nos lignes de journaliste transgéniques pour produire des cultures de cellules dispersées, à partir de laquelle nous pouvons caractériser les oscillations de l'horloge de segmentation poisson zèbre dans des cellules individuelles. Nous pouvons ainsi aborder les questions en suspens dans le domaine qui n'étaient pas accessibles à l'analyse statique ou niveau des tissus, ainsi que de manipuler directement l'horloge de segmentation au niveau d'une seule cellule avec des molécules de signalisation et les inhibiteurs.
Protocole
1. Avant Dissection
- Le jour avant la dissection, obtenir des embryons à partir d'une incross de paires de poisson zèbre hétérozygotes pour l'allèle transgénique.
- Levez embryons dans un milieu E3 sans bleu de méthylène à 28 ° C jusqu'à ce stade de blindage (6 heures après la fécondation).
- embryons de transfert en milieu E3 sans bleu de méthylène à 20 o CO / N. À 20 o C, les embryons se forment 1 somite par heure une fois qu'ils atteignent le stade bourgeon caudal. Après 17-20 h O / N à 20 ° C, les embryons doivent être à 5 à 8 somites stade le lendemain matin au début du protocole de dissection.
- Assembler des outils et des réactifs nécessaires pour la dissection.
- Pipette en verre poli au feu pour le transfert d'embryons et de tissus
- Paire de pinces fines pour l'élimination de chorions à partir d'embryons
- Sylgard revêtu plat de 35 mm pour la dissection - Verser polymère Sylgard dans un récipient plat de 35 mm et guérir O / N à 37 ° C, un Faire la dissection et l'aideune pointe d'aiguille pour enlever une petite quantité de polymère durci. Le plat peut être nettoyé et réutilisé par la suite.
- Aiguisé, aplaties outils de fil de tungstène pour la manipulation des tissus PSM
- Micro-scalpel pour découper des morceaux souhaités de PSM à la culture
- Plat en plastique de 35 mm pour la trypsine incubation
- Milieu L15 contenant du sérum bovin fœtal à 10%
- Solution de trypsine / EDTA 0,25%
- Sigmacoted conseils gel chargement de dispersion
- Des boîtes de Petri en plastique contenant du milieu E3 sans bleu de méthylène.
- Couvrir le plat d'imagerie à fond de verre avec le substrat Fibronectin1 (10 pg / ml dans du PBS). Laissez plat sur le banc de manteau lors de la dissection.
- Utilisez stéréoscope avec des filtres de fluorescence appropriées pour identifier et d'embryons transgéniques sorte positives (stade 5 à 8 somites).
- Identifier les embryons transgéniques en examinant le mésoderme présomitique (PSM) pour l'expression sous la YFP canal de fluorescence (Figure 1A). Fluorescence shoULD être visible dans la région de la dernière somite formé au bourgeon caudal. Sélectionner des embryons avec brillants signal; 25% de la progéniture devraient être embryons homozygotes portant deux copies du transgène. Le nombre d'embryons identifiés nécessaires varie en fonction de l'expérience. Une pièce de bourgeon caudal disséqué donnera mille cellules, en moyenne. Typiquement, quelques embryons positifs supplémentaires sont utiles en cas des erreurs sont commises lors de la dissection.
- Utiliser la lumière transmise en tant que référence de position pour distinguer l'autofluorescence quelconque, en particulier dans la cellule de jaune d'oeuf, à partir de signaux.
- Transfert d'embryons positifs dans un plat en plastique de Petri contenant un milieu séparé E3 sans bleu de méthylène.
2. PSM Dissection et dispersion
- Préparer embryons pour la dissection.
- Sous un microscope de dissection, à l'aide de pinces fines, retirer délicatement le chorion de l'embryon dans le milieu E3. Veillez à ne pas endommager l'embryon ou perturber la cellule jaune.
- Remplissez Sylgard revêtu dissection plat avec du milieu L15 avec du sérum. En utilisant des pinces ou un autre outil plat, d'éliminer les bulles d'air de la surface de la Sylgard.
- Transfert d'embryons dechorionated l'aide de la pipette en verre poli au feu à la boîte de dissection.
- En utilisant les outils de fil, déplacez tous les embryons d'un côté de la boîte de dissection.
- Disséquer PSM partir d'un seul embryon.
- Orienter un seul embryon, sur sa face latérale dans le petit puits réalisés dans la couche Sylgard à l'intérieur de la coupelle de dissection (figure 1B).
- Utilisation de la micro-scalpel, tranche par l'embryon et les cellules jaune juste en avant le cerveau postérieur et par le pôle ventral de l'embryon (figure 1B, parsemée ligne rouge).
- Retirez la pièce antérieure de l'embryon du puits, l'éloignant du côté de la boîte, puis utilisez les outils de fil à gratter restants granules de cellules de jaune de la partie postérieure, y compris le PSM.
- Une fois le jaune a été grattée, les aplatir et orienter le PSM avec l'extrémité antérieure s'éloignant de l'expérimentateur et le postérieur tourné vers l'expérimentateur (figure 1C).
- Si la couche mince de l'ectoderme n'a pas retiré par ce point, utiliser les outils de fil à peler loin du haut du tissu PSM.
- Utilisation de la micro-scalpel couper le bourgeon caudal, la pointe la plus postérieure de la PSM-delà de la fin de la notochorde, loin du reste du tissu (figure 1C, parsemée ligne rouge). NOTE: D'autres morceaux de tissu de la PSM, par exemple antérieur PSM plus proche de la dernière somite formé, peut également être pris en culture, en fonction de la question expérimentale.
- Déplacer la pièce de bourgeon caudal à un coin de la boîte éloigné de la zone de dissection. Utiliser les outils de fil pour dégager les débris et les tissus de l'embryon non désiré à partir du champ de dissection.
- Répéter l'opération avec l'autre embryon.
- Pièces piscine de bourgeon caudal de multiples embryos, selon le nombre de cellules sera requis pour l'expérience. En moyenne, un seul morceau de tissu bourgeon caudal donne mille cellules.
- Remplissez plat vide en plastique de 35 mm avec un petit volume de trypsine-EDTA.
- Utilisation de la pipette en verre poli au feu, transférer des morceaux de bourgeon caudal de dissection plat dans un plat contenant de la trypsine / EDTA. Incuber les morceaux de bourgeon caudal à la trypsine / EDTA pendant 20 min à température ambiante.
- Alors que le tissu est incubé dans de la trypsine, enlever la solution Fibronectin1 de l'antenne d'imagerie à fond de verre.
- Laver la solution de verre 3 fois avec de l'eau MilliQ. Utilisez le vide pour éliminer chaque lavage et assurer le plat est complètement sec.
- Disperser des morceaux de bourgeon caudal en milieu d'imagerie.
- Introduire à la pipette 100 ul de milieu L15 avec du sérum dans le plat d'imagerie.
- En utilisant une pointe de gel revêtu, retirez les morceaux de bourgeon caudal de la trypsine / EDTA dans un volume aussi faible que possible.
- Pipeter les morceaux de bourgeon caudal dans le milieu dans l'plat d'imagerie. Introduire à la pipette les morceaux de haut en bas plusieurs fois de les faire éclater et suspendre les cellules dans le milieu. Veillez à ne pas introduire de bulles d'air. Vérifiez amas de cellules sous le microscope et disperser plus que nécessaire.
- Laisser les cellules dispersées dans la suspension de s'installer sur le verre Fibronectin1 revêtu pendant 20 min à température ambiante.
- Ajouter un petit volume de milieu L15 supplémentaire dans le sérum aux cellules avant de commencer la formation d'image. Prenez soin de ne pas perturber les cellules sédentaires.
- Compte tenu de la question expérimentale, ajouter une supplémentaire ou des traitements médicamenteux à la culture.
3. Imagerie des cellules dispersées PSM
- Mettre en place plat d'imagerie dans la chambre de la température sur la time-lapse imagerie microscope. Régler chambre Warner à la température désirée pour l'expérience. Laisser plat à s'équilibrer pendant au moins 30 minutes avant le début de l'acquisition de l'image. Température recoupement avec sonde de température externe placé dans le plat, si nécessaire. NOTE: En raison dela relation entre la température et le taux de somitogenèse 21 de contrôle de température stable est essentiel pour des mesures précises de la période dans les cellules PSM simples.
- Acquérir les images de test dans le canal de fluorescence pour vérifier que le temps et le gain exposition fournissent une large gamme dynamique des intensités sans saturation pour assurer un bon signal pour les niveaux de bruit. Une image typique de fluorescence acquis de cellules dispersées générés par nos lignes en utilisant ce protocole nécessite 400 ms et 40 ms pour une image lumineuse transmise avec une caméra EMCCD fonctionnant à un gain EM de 85 ans. De plus, le gain de préampli et de la vitesse de lecture de la appareil photo sont également essentiels pour maximiser signal sur bruit.
- En utilisant le canal de lumière transmise, choisir des champs de cellules pour l'acquisition time-lapse.
- Exécutez time-lapse protocole d'acquisition de la longueur de temps désirée.
- Acquérir une image de fluorescence par un champ de lumière transmise et. REMARQUE: Réglez un intervalle entre ro d'acquisitiononds qui permettra de saisir la dynamique temporelle sans photo-blanchiment sur l'imagerie prolongée ou toxicité induire dans les cellules. Ce protocole utilise un intervalle de 2 min.
- Vérifiez time-lapse set-up de temps en temps pendant l'enregistrement pour s'assurer que les cellules restent au foyer, pas d'erreurs de logiciel ou de matériel, etc
4. Traitement de l'image des Acquis de time-lapse Films
- Ouvrir un fichier film pour un champ acquis dans un logiciel de traitement d'image. REMARQUE: Fidji a été utilisée pour tous les traitements dans ce protocole.
- Scission transmis lumière et de fluorescence cadres d'un champ à créer 2 piles d'images.
- Suivre une seule cellule dans le canal de lumière transmise.
- Placez un retour sur investissement circulaire (région d'intérêt) autour de la cellule sélectionnée dans la première image dans le canal de lumière transmise. REMARQUE:.. Seules les cellules qui sont en bonne santé 1 à la fin de l'enregistrement, 2 ne se déplacent pas en dehors du champ, et 3 n'entrent pas en contact avec d'autres CE.lls sont suivis.
- Enregistrer un retour sur investissement au bout de quelques cadres au gestionnaire de ROI. Suivre cellule jusqu'à ce que la dernière image.
- Mesurer l'intensité en utilisant les régions d'intérêt enregistrées sur le canal de fluorescence.
- Sélectionnez la pile de fluorescence et avec le ROI sauvegardé, utilisez le cercle personnalisé interpolateur plug-in et macro pour mesurer l'intensité de la cellule suivi dans le temps.
- Vérifier la trace de la sortie de la macro. Si la trace de rendre compte qualitativement les caractéristiques de la fluorescence time-lapse, exporter les valeurs à une feuille de calcul Excel.
- Sauvegardez la liste de retour sur investissement pour la cellule.
- Répéter le suivi dans le canal de mesure et transmis dans le canal de fluorescence pour les autres cellules dans le champ.
- Répétez toutes les étapes des champs complémentaires de l'expérience.
Résultats
Ce protocole produit des cultures de cellules dispersées, viables, simples PSM pour l'imagerie time-lapse de signal de fluorescence (Figure 2). Notre génère un transgène reporter dont le cycle de production et de la dégradation qui se produit avec des dynamiques similaires à la protéine de gène endogène et dans l'embryon, de l'ordre d'une demi-heure. En raison de son chiffre d'affaires rapide, le signal YFP dans des cellules individuelles doit être détecté rapidement pour minimiser la décoloration et avec une résolution temporelle de saisir les caractéristiques de chaque cycle d'oscillation. En outre, compte tenu de l'obscurité relative du signal, de la culture et d'acquisition conditions ont été soigneusement réglées pour assurer des résultats sensibles et robustes. Nous avons trouvé les éléments suivants comme étant important dans la création de cultures de cellules optimales PSM pour l'imagerie:. 1 Un substrat ECM utilisé pour le revêtement des boîtes de culture à fond de verre. 2. L'addition de sérum à la dissection et moyen de formation d'image. 3. Dissection de PSM à partir d'embryons identifiés pris après l'accouplement HETEpaires rozygous, dont la progéniture potentiellement mener deux copies du transgène. 4. Acquisition de l'image au sein d'une plage de grossissement optimale, en utilisant un objectif NA élevé pour assurer une capture efficace du signal de fluorescence. 5. Illumination avec une source de lumière à semi-conducteurs à minimiser les fluctuations d'intensité qui pourraient contribuer au bruit de fond. 6. Détection de signal avec une caméra EM-CCD très sensible à maximiser la lecture du signal.
Cultures sous-optimaux contenir des cellules qui ne restent pas arrondi et en bonne santé tout au long de l'enregistrement. Nous émettons l'hypothèse que notre substrat ECM, un fragment de fibronectin1 poisson zèbre maintient les cellules dans un état PSM-comme indifférencié, en comparaison à d'autres substrats couramment utilisés comme poly-lysine ou de la laminine. D'autres substrats ont provoqué les cellules testées pour aplatir sur le verre et la perte de signal fluorescent oscillant au cours de l'enregistrement. Nous avons également constaté que l'addition de sérum au milieu au cours de la dissection, la dispersion,et l'enregistrement n'est pas seulement importante pour étancher la trypsine utilisée pour la dissociation, mais également l'intensité de fluorescence au-dessus de fond, probablement due à l'amélioration augmente la viabilité des cellules. Afin d'assurer la capture de signal optimal à partir de cellules uniques, nous avons utilisé un objectif 40x spécialement conçu pour l'imagerie de fluorescence (Zeiss plan NeoFluor série) avec une grande ouverture numérique. Nous avons également constaté qu'une source de lumière à semi-conducteurs fourni un éclairage plus stable que les lampes à mercure traditionnels, ce qui est essentiel pour minimiser les fluctuations de fond qui contribuent à des images bruitées. Ces modifications sont importantes pour assurer des résultats solides.
En utilisant ce protocole, nous attendons les cultures dans lesquelles la majorité des cellules dans un domaine donné sont fluorescentes à un moment donné pendant l'enregistrement. Nous constatons que les cellules fluorescentes restent généralement arrondie et sont parfois assez mobiles lors des enregistrements. Quelques cellules, notamment les cellules fluorescentes, peuvent devenir apoptotique au cours de l'enregistrement. Ces cellules sont exclus de toute unenalyse. Nous excluons également les cellules qui entrent en contact avec d'autres cellules ou des déplacements à l'extérieur du champ de vision. En moyenne, on constate une réduction de 12% du nombre de cellules par champ à la fin de l'enregistrement de 10 heures, telle que mesurée en comptant le nombre de cellules saines dans le canal de lumière transmise. Cette perte comprend à la fois la mort des cellules et les cellules qui se sont déplacés hors du champ. Compte tenu de ces réserves, nous pouvons, en moyenne, la piste 5 cellules fluorescentes par champ qui restent viables et visibles, et habituellement enregistrer 6 champs par état. Par exemple, une expérience de 4 conditions aura 24 champs de totaux acquis et typiquement d'environ 30 cellules suivis par état. Dans des conditions classiques d'imagerie avec du milieu L15 contenant 10% de sérum bovin foetal, nous constatons que les cellules PSM (n = 101 cellules à partir de 4 répétitions expérimentales) peuvent produire entre 2 et 7 sommets, avec la moyenne et l'écart-type de 3 ± 1 pics (2 -3 cycles). Le nombre de crête médiane, ainsi que les 25% percentile, est deux pics et les 75% percentile is 3 pics. Grâce à notre suivi et l'analyse semi-automatique, nous pouvons générer rapidement intensité de fluorescence sur les traces de temps pour les cellules individuelles PSM, avec une trace de cellules représentant de la figure 2C. Ces premières traces peuvent ensuite être utilisés pour effectuer des mesures quantitatives de propriétés des cellules PSM oscillants, tels que la fréquence, l'amplitude, le nombre de cycles, et le moment des pics.
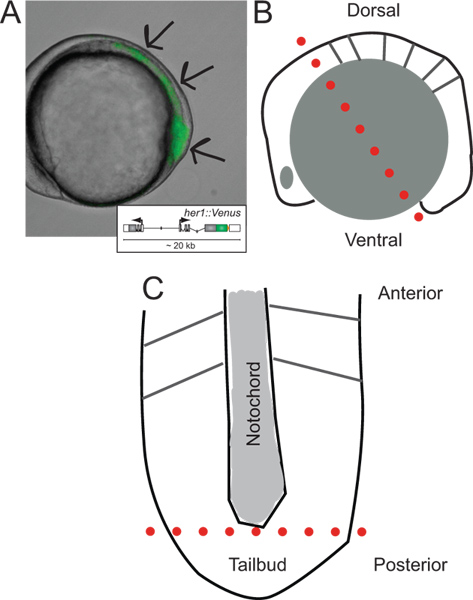
Figure 1. Identification des embryons transgéniques et les schémas de leur dissection. (A) Vue latérale d'un embryon de poisson zèbre transgénique exprimant YFP fluorescence à ~ étape 5 somites. L'image est une superposition de la lumière transmise et le canal de fluorescence. Les flèches indiquent les zones de signaux à partir de la pointe de l'bourgeon caudal, tout au long de la PSM, vers le l ast formé somites. Encart montre un schéma du transgène rapporteur (pour plus d'informations sur le développement et le comportement in vivo référer à Soroldoni et al. 30. (B) Schéma de vue latérale de l'embryon avant la première coupe lors de la dissection. Pointillé ligne rouge indique la première coupe fait à travers le cerveau postérieur, si la cellule jaune juste derrière le bourgeon caudal. (C) Vue schématique d'aplatie PSM après le retrait de granules de jaune et de la couche épidermique, orienté selon son axe antéro-postérieur. pointillé ligne rouge indique la deuxième coupe pour enlever le bout du bourgeon caudal pour la dispersion et de la culture. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
07fig2.jpg "/>
Figure 2. Des images représentatives et les traces d'une seule cellule dans une culture de PSM dispersé. (A) Montage de transmettre des images en lumière d'une seule cellule PSM dans un enregistrement time-lapse de 6 h. A noter que la cellule reste arrondie et en bonne santé tout au long de l'enregistrement. (B) correspondant montage des images de fluorescence à partir d'une seule cellule PSM. Les pics d'intensité de la cellule sont numérotés au cours de l'enregistrement. (C) Intensité moyenne mesurée au cours du temps à partir d'un retour sur investissement placé sur cette cellule. Les valeurs sont prises à partir de chaque image d'un film avec un taux de un pour 2 min à l'aide du plug-in cercle d'interpolation et macro personnalisée écrite à Fidji cadre. Pics d'intensité sont de nouveau numérotés au long de la trace. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
Discussion
Pour étudier un processus cellulaire qui a lieu au cours du développement embryonnaire, les biologistes utilisent généralement une approche dans le contexte de l'ensemble de l'embryon. Toutefois, pour bien comprendre comment une seule cellule se comporte dans un laps de temps de développement, une méthode pour examiner et perturber des cellules individuelles dans l'isolement est également très bénéfique. En générant des cultures de cellules PSM dispersés à l'aide embryons de poisson zèbre transgénique, nous avons maintenant un outil pour étudier directement le caractère autonome de la cellule d'oscillations génétiques dans segmentation horloge de manière quantitative. Il est possible de mesurer la dynamique des oscillations dans notre rapporteur fluorescent dans des centaines de cellules sous une variété de conditions.
La période d'observation de cellules isolées en culture est plus longue que la période de somitogenèse dans l'embryon intact. Nous observons que l'explantation de PSM intacte dans la culture présente également des oscillations plus lentes que l'embryon intact (données non présentées), suggérant that la période plus longue observée dans des cellules isolées n'est pas simplement dû aux dommages causés par la dispersion. Un temps variable et l'amplitude est observée dans la plupart de nos séries chronologiques seule cellule. La source de cette variabilité est inconnu, mais devrait révéler des détails importants sur les circuits de régulation de l'allure de l'horloge de segmentation.
Avec cette méthode, nous pouvons étudier les composantes génétiques de la segmentation au niveau cellulaire, et d'aborder des questions qui sont difficiles à examiner dans l'ensemble embryon. Par exemple, par l'addition contrôlée de molécules de signalisation connus trouvés dans l'embryon en développement pour nos cultures, nous pouvons examiner leurs effets sur l'oscillateur cellulaire unique PSM dans un test robuste et reproductible. Notre système de culture de PSM ouvre la porte à une évaluation rigoureuse de quels facteurs, seuls ou en combinaison promouvoir oscillations dans ces cellules, les facteurs qui inhibent ces oscillations, et de tester l'interaction entre ces molécules. Avec ces outils en main, nous visons àévaluer les modèles existants de somitogenèse qui sont basés sur les données au niveau des tissus publiés, ainsi que les résultats de l'utilisation dans des cellules individuelles pour générer des prédictions qui peuvent être testées dans l'ensemble embryon.
À notre connaissance, c'est la première poisson zèbre protocole de culture de cellules primaires pour aiguë enregistrement time-lapse de la fluorescence dans des cellules individuelles; le développement et le raffinement de ce protocole est sans aucun doute possible. D'autres protocoles utilisent souvent des embryons de poisson zèbre pour générer des lignées cellulaires stables qui peuvent être transfectées avec les reporters et utilisés pour l'imagerie à long terme de 27 à 29. Alors que des lignées stables sont utiles pour l'imagerie d'un processus qui n'est pas liée au calendrier de développement, tels que l'horloge circadienne, la question de la segmentation embryonnaire nécessite imagerie immédiate tandis que les cellules sont encore dans leur oscillatoire, l'état d'ancêtre. Une fois les cellules s'arrêtent oscillant, ils supposent un sort de cellule différenciée, et quand dans le tissu, serait incorporé dans un somite. Il est possible que le droit ou les facteurs présents in vitro nous pourrions générer des lignes de culture de cellules de poisson zèbre PSM-comme qui resteraient oscillant, permettant de façon significative observations à plus long terme, plusieurs perturbations successives, ou criblage à haut débit.
Nous nous attendons à ce que cette méthode de préparation des cultures primaires de cellules dispersées pour l'imagerie time-lapse est bien adapté pour l'étude d'un processus cellulaire qui se produit dans un laps de temps de développement qui n'est pas accessible à l'aide de lignées cellulaires stables de poisson zèbre. L'isolement de types de cellules distinctes dans des stades de développement distincts à partir des lignes transgéniques rapporteuses appropriées, soit par l'intermédiaire de la dissection ou par FACS après dissociation embryonnaire, pourrait fournir des cellules de départ. Certains optimisation des conditions de culture, guidés par l'origine embryonnaire des cellules, peut être nécessaire. En combinant ce protocole flexible et sensible à la collecte de plus en plus rapidement de poisson zèbre transgéniquelignes, nous espérons faciliter un développement in vitro approche de biologie à qui est complémentaire aux méthodes génétiques et embryologiques classiques.
Déclarations de divulgation
Contributions des auteurs:
ABW a développé et affiné la dispersion, de la culture, de l'imagerie et des protocoles de suivi de la cellule. DS a généré des lignées transgéniques et a supervisé la conception de la fluorescence microscope temps de déchéance utilisé dans ce protocole. AO pionnier premières expériences de validation de principe de dissocier l'image et les cellules de PSM dans la culture. JS a écrit l'outil de plugin cercle d'interpolation à Fidji utilisé pour mesurer l'intensité de fluorescence de films time-lapse. ABW et ACO a écrit le manuscrit.
Remerciements
Ce travail a été soutenu par une bourse EMBO à long terme (ABW), une Fondation scientifique international de bourses de recherche postdoctorale nationale (ABW), la Max Planck Gesellschaft (ABW, DS, JS, ACO), une bourse FOUILLES-BB (AO), et le Conseil européen de la recherche au titre du septième programme-cadre Communautés européennes STG-207634 (DS, ACO). Nous remercions Ravi Desai des commentaires utiles sur le manuscrit. Nous tenons également à remercier le centre de l'expression des protéines MPI-CBG pour la production du fragment poisson zèbre Fibronectin1, le personnel de l'établissement de poissons MPI-CBG pour les soins et l'entretien de nos lignes de pêche et l'installation de microscopie optique MPI-CBG pour le soutien de l'imagerie.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Microscope à épifluorescence | Olympus Modèle | : SZX16 | |
| Microscope à épifluorescence | X-cite Illumination | Series : 120Q | |
| Microscope de dissection | Olympus Modèle | : SZX12 | |
| Pince fine n° 55 | Outils de science fine | 11295-51 | |
| Pipettes de transfert en verre | Assistent | 567/2 | |
| Boîtes de Pétri en plastique de 35 mm | Greiner | 627102 | |
| Boîtes de Pétri en plastique de 60 mm Boîtes de Pétri en plastique | Greiner | 628102 | |
| Sylgard Polymère | SASCO | 266727 | |
| Outils de manipulation | Fabriqués en interne | Pour la description des outils de manipulation Réf. 22 | |
| Couteau microchirurgical | World Precision Instruments | 500249 | |
| L15 moyen | Invitrogen | 57322 | |
| Pénicilline/streptomyocine | PAA | P11-010 | |
| Sérum fœtal bovin | Invitrogen | 257322 | |
| 0,05 % trypsine / 0,02 % EDTA | PAA | L11-004 | |
| Conseils de chargement de gel | Fisher Scientific | 253188 | |
| Sigmacote | Sigma Aldrich | 254589 | |
| Ensemble de micropipettes | Gilson International | F167300 | |
| Poisson zèbre Fibronectine1 Fragment de 70 kD | Installation de protéine | Généré en interne à partir d’une construction basée sur des travaux précédemment publiés Réf. 23-25 | |
| Boîtes d’imagerie à fond de verre | Mattek (à puits unique) | P35G-1.5-14-C | |
| Boîtes d’imagerie à fond en verre | Greiner (CellView -multi-puits) | 262502 | |
| Milieu E3 sans bleu de méthylène | Fabriqué en interne | D’après The Zebrafish Book, 5e éd. Réf. 26 | |
| Pipettes de transfert en plastique | Ratiolab | 260011 | |
| Warner Chambre de chauffage/refroidissement | Warner Instruments | TC-324B/344B | |
| Caméra EM-CCD | Andor | Modèle : iXOn 888 | |
| Microscope à fluorescence grand champ avec jeu | de filtres VénusModèle Zeiss | : Axiovert 200M | |
| Microscope à fluorescence grand champ avec jeu de | NeoFluor 40x, NA 0,75 | ||
| Microscope à fluorescence grand champ avec jeu de filtres Vénus | Lumencor Light Engine | Modèle : Spectra X | |
| Microscope à fluorescence grand champ avec jeu de filtres Vénus | BrightLine HC 575/15 | F39-575 |
Références
- Cooke, J., Zeeman, E. C. A clock and wavefront model for control of the number of repeated structures during animal morphogenesis. J Theor Biol. 58, 455-476 (1976).
- Oates, A. C., Morelli, L. G., Ares, S. Patterning embryos with oscillations: structure, function and dynamics of the vertebrate segmentation clock. Development. 139, 625-639 (2012).
- Dequeant, M. L., Pourquie, O. Segmental patterning of the vertebrate embryonic axis. Nat Rev Genet. 9, 370-382 (2008).
- Oates, A. C., Gorfinkiel, N., Gonzalez-Gaitan, M., Heisenberg, C. P. Quantitative approaches in developmental biology. Nat Rev Genet. 10, 517-530 (2009).
- Oates, A. C., Ho, R. K. Hairy/E(spl)-related (Her) genes are central components of the segmentation oscillator and display redundancy with the Delta/Notch signaling pathway in the formation of anterior segmental boundaries in the zebrafish. Development. 129, 2929-2946 (2002).
- Lewis, J. Autoinhibition with transcriptional delay: a simple mechanism for the zebrafish somitogenesis oscillator. Curr Biol. 13, 1398-1408 (2003).
- Schroter, C., Oates, A. C. Segment Number and Axial Identity in a Segmentation Clock Period Mutant. Curr Biol. 20, 1254-1258 (2010).
- Riedel-Kruse, I. H., Muller, C., Oates, A. C. Synchrony dynamics during initiation, failure, and rescue of the segmentation clock. Science. 317, 1911-1915 (2007).
- Ozbudak, E. M., Lewis, J. Notch signalling synchronizes the zebrafish segmentation clock but is not needed to create somite boundaries. PLoS Genet. 4, e15(2008).
- Herrgen, L., et al. Intercellular Coupling Regulates the Period of the Segmentation Clock. Curr Biol. 20, 1244-1253 (2010).
- Sawada, A., et al. Fgf/MAPK signalling is a crucial positional cue in somite boundary formation. Development. 128, 4873-4880 (2001).
- Giudicelli, F., Ozbudak, E. M., Wright, G. J., Lewis, J. Setting the tempo in development: an investigation of the zebrafish somite clock mechanism. PLoS Biol. 5, e150(2007).
- Herrgen, L., Schroter, C., Bajard, L., Oates, A. C. Multiple embryo time-lapse imaging of zebrafish development. Methods Mol Biol. 546, 243-254 (2009).
- Hirata, H., et al. Oscillatory expression of the bHLH factor Hes1 regulated by a negative feedback loop. Science. 298, 840-843 (2002).
- Maroto, M., Dale, J. K., Dequeant, M. L., Petit, A. C., Pourquie, O. Synchronised cycling gene oscillations in presomitic mesoderm cells require cell-cell contact. Int J Dev Biol. 49, 309-315 (2005).
- Reppert, S. M., Weaver, D. R. Coordination of circadian timing in mammals. Nature. 418, 935-941 (2002).
- Welsh, D. K., Imaizumi, T., Kay, S. A. Real-time reporting of circadian-regulated gene expression by luciferase imaging in plants and mammalian cells. Methods Enzymol. 393, 269-288 (2005).
- Soroldoni, D., Oates, A. C. Live transgenic reporters of the vertebrate embryo's Segmentation Clock. Curr Opin Genet Dev. 21, 600-605 (2011).
- Masamizu, Y., et al. Real-time imaging of the somite segmentation clock: revelation of unstable oscillators in the individual presomitic mesoderm cells. Proc Natl Acad Sci USA. 103, 1313-1318 (2006).
- Soroldoni, D., Hogan, B. M., Oates, A. C. Simple and efficient transgenesis with meganuclease constructs in zebrafish. Methods in molecular biology. 546, 117-130 (2009).
- Schroter, C., et al. Dynamics of zebrafish somitogenesis. Dev Dyn. 237, 545-553 (2008).
- Picker, A., Roellig, D., Pourquie, O., Oates, A. C., Brand, M. Tissue micromanipulation in zebrafish embryos. Methods in molecular biology. 546, 153-172 (2009).
- Mould, A. P., et al. Identification of multiple integrin beta1 homologs in zebrafish (Danio rerio). BMC Cell Biol. 7, 24(2006).
- Mould, A. P., Koper, E. J., Byron, A., Zahn, G., Humphries, M. J. Mapping the ligand-binding pocket of integrin alpha5beta1 using a gain-of-function approach. Biochem J. 424, 179-189 (2009).
- Zhao, Q., Liu, X., Collodi, P. Identification and characterization of a novel fibronectin in zebrafish. Exp Cell Res. 268, 211-219 (2001).
- Westerfield, M. In The zebrafish book : a guide for the laboratory use of zebrafish (Brachydanio rerio). , (1993).
- Vallone, D., Santoriello, C., Gondi, S. B., Foulkes, N. S. Basic protocols for zebrafish cell lines: maintenance and transfection. Methods Mol Biol. 362, 429-441 (2007).
- Carr, A. J., Whitmore, D. Imaging of single light-responsive clock cells reveals fluctuating free-running periods. Nat Cell Biol. 7, 319-321 (2005).
- Whitmore, D., Foulkes, N. S., Sassone-Corsi, P. Light acts directly on organs and cells in culture to set the vertebrate circadian clock. Nature. 404, 87-91 (2000).
- Soroldoni, D., et al. A Doppler effect in embryonic pattern formation. Science. 345, DOI. 222-225 (1126).
Réimpressions et autorisations
