Le trafic membranaire implique le transport des protéines de la membrane plasmique vers l’intérieur de la cellule (c’est-à-dire l’endocytose), suivi du trafic vers les lysosomes pour la dégradation ou vers la membrane plasmique pour le recyclage. Les méthodes décrites dans cet article sont conçues pour étudier l’endocytose et le recyclage des protéines de la membrane plasmique.
Article de méthode
Les tests de protection du L-glutathion à base cellulaire pour étudier l’endocytose et le recyclage des protéines de la membrane plasmique
Dans cet article
Résumé
Résumé
Le trafic membranaire implique le transport des protéines de la membrane plasmique vers l’intérieur de la cellule (c’est-à-dire l’endocytose), suivi du trafic vers les lysosomes pour la dégradation ou vers la membrane plasmique pour le recyclage. Les tests de protection cellulaire du L-glutathion peuvent être utilisés pour étudier l’endocytose et le recyclage des récepteurs protéiques, des canaux, des transporteurs et des molécules d’adhésion localisés à la surface cellulaire. Le dosage endocytaire nécessite le marquage des protéines de surface cellulaire avec une biotine imperméable à la membrane cellulaire contenant une liaison disulfure et l’ester N-hydroxysuccinimide (NHS) à 4 ºC - une température à laquelle le trafic membranaire ne se produit pas. L’endocytose des protéines membranaires plasmiques biotinylées est induite par l’incubation à 37 ºC. Ensuite, la température est à nouveau abaissée à 4 ºC pour arrêter le trafic endocytaire et la liaison disulfure de la biotine attachée de manière covalente aux protéines qui sont restées au niveau de la membrane plasmique est réduite avec le L-glutathion. À ce stade, seules les protéines endocytosées restent protégées du L-glutathion et restent donc biotinylées. Après la lyse cellulaire, les protéines biotinylées sont isolées à l’aide d’agarose streptavidine, éluée à partir d’agarose, et la protéine biotinylée d’intérêt est détectée par western blot. Au cours de l’essai de recyclage, après la biotinylation, les cellules sont incubées à 37 °C pour charger les vésicules endocytaires avec des protéines biotinylées et la liaison disulfure de la biotine attachée de manière covalente aux protéines restantes au niveau de la membrane plasmique est réduite avec du L-glutathion à 4 °C comme dans l’essai endocytaire. Ensuite, les cellules sont incubées à nouveau à 37 °C pour permettre aux protéines biotinylées des vésicules endocytaires de se recycler dans la membrane plasmique. Les cellules sont ensuite incubées à 4 ºC, et la liaison disulfure de la biotine attachée aux protéines recyclées dans les membranes plasmiques est réduite avec le L-glutathion. Les protéines biotinylées protégées du L-glutathion sont celles qui n’ont pas été recyclées dans la membrane plasmique.
Introduction
Toutes les cellules vivantes traitent l’information en transportant des marchandises, telles que des ligands extracellulaires, des micro-organismes, des nutriments, des protéines transmembranaires et des lipides de la membrane plasmique vers les vésicules endocytaires (c’est-à-dire l’endocytose). Un processus réciproque appelé recyclage équilibre l’endocytose et renvoie une grande partie de la membrane et de la cargaison internalisées à la surface de la cellule. L’équilibre entre l’endocytose et le recyclage contrôle la composition de la membrane plasmique et fournit aux cellules des informations qui ont été résolues dans le temps et l’espace. L’endocytose et le recyclage sont les régulateurs principaux de diverses fonctions cellulaires telles que l’absorption et le métabolisme des nutriments, le développement, la prolifération, la différenciation et la polarité, la reprogrammation, la migration, l’adhésion et la migration cellulaires, la cytokinèse et la neurotransmission1-3. Les voies endocytaires et de recyclage sont très dynamiques et hautement coordonnées et permettent aux cellules de retourner l’équivalent de la membrane plasmique entière 1 à 5 fois par heure.
Les tests de protection du L-glutahione basés sur les cellules sont utiles pour étudier l’endocytose et le recyclage des protéines transmembranaires, y compris les récepteurs, les canaux, les transporteurs et les molécules d’adhésion dans les cellules épithéliales et non épithéliales4-8. Nous avons précédemment étudié l’endocytose et le recyclage du régulateur de la conductance transmembranaire de la fibrose kystique (CFTR) dans les cellules épithéliales des voies respiratoires humaines et les cellules HEK2939-15. Les tests basés sur la biotinylation décrits dans le manuscrit sont optimisés pour l’examen de l’endocytose et du recyclage dans des cellules épithéliales cultivées dans des conditions polarisantes sur des supports de croissance semi-perméables. Ces protocoles peuvent être modifiés pour étudier l’endocytose et le recyclage des protéines dans les cellules épithéliales cultivées dans des boîtes de culture de tissus plastiques ou dans des cellules non épithéliales. Les figures 1 et 2 contiennent des exemples d’essais endocytaires et de recyclage dans des cellules épithéliales et non épithéliales.
Les dosages endocytaires sont effectués comme décrit précédemment9-15. Les cellules sont cultivées sur des supports de croissance semi-perméables enrobés de collagène11,14. Alternativement, les cellules peuvent être cultivées dans des boîtes de culture de tissus en plastique recouvertes de collagène10,15. Les cellules sont refroidies rapidement à 4 °C pour arrêter le trafic membranaire et les protéines de la membrane plasmique sont marquées à 4 °C avec une biotine imperméable à la membrane cellulaire. Biotin réagit avec ε-amine de résidus de lysine et la liaison disulfure est clivable thiol. Après la biotinylation, les cellules sont incubées à 37 °C pour induire le trafic de protéines et charger les vésicules endocytaires pendant 2,5, 5,0, 7,5 ou 10 min. Par la suite, les cellules sont refroidies à 4 °C et la liaison disulfure de la biotine attachée de manière covalente aux protéines de la membrane plasmique est réduite avec le L-glutathion (GSH). À ce stade du protocole, seules les protéines qui ont été endocytosées à partir de la membrane plasmique sont protégées contre le GSH et restent donc biotinylées. Les cellules restant à 4 °C après la biotinylation sans incubation à 37 °C ou le traitement au GSH serviraient à déterminer la quantité de CFTR biotinylée au temps zéro. Les cellules restant à 4 °C après la biotinylation sans incubation à 37 °C mais avec un traitement au GSH serviraient à déterminer l’efficacité de la réduction des liaisons disulfure. À la suite des traitements décrits ci-dessus, les cellules sont lysées, les protéines biotinylées sont isolées par l’agarose streptavidine, éluées dans le tampon d’échantillon SDS et séparées par SDS-PAGE. La protéine d’intérêt est détectée dans les échantillons biotinylés par western blot. La quantité de protéines biotinylées à 4 °C au temps zéro (sans le réchauffement de 37 °C) est considérée comme 100 %. La quantité de protéines restant biotinylées après un traitement au GSH à 4 ºC est considérée comme un bruit de fond et est soustraite de la quantité de protéines restant biotinylées après le réchauffement à 37 ºC à différents moments. L’endocytose des protéines est calculée après soustraction du bruit de fond et est exprimée en pourcentage de protéines biotinylées à chaque point temporel après le réchauffement à 37 ºC par rapport à la quantité de protéines biotinylées présentes au temps zéro.
Les tests de recyclage sont effectués comme décrit précédemment11,16. Les cellules sont cultivées sur des supports de croissance semi-perméables enrobés de collagène11. Alternativement, les cellules peuvent être cultivées sur des boîtes de culture de tissus en plastique recouvertes de collagène13. Les cellules sont réchauffées à 37 °C après la biotinylation pour charger les vésicules endocytaires avec des protéines biotinylées. Le moment de la première incubation à 37 ºC est déterminé par le moment où l’endocytose de la protéine d’intérêt atteint son maximum pendant l’augmentation linéaire du signal endocytaire. Le temps est spécifique à la protéine et peut dépendre du type de cellule et des conditions de culture cellulaire. D’après notre expérience, l’endocytose CFTR a atteint son maximum à 5,0 ou 7,5 min13,14 (Figures 1 et 2). Par la suite, les cellules sont immédiatement refroidies à 4 °C et la liaison disulfure de la biotine attachée aux protéines de la membrane plasmique est réduite avec le GSH. Ensuite, les cellules sont soit lysées pour déterminer la quantité de protéine endocytosée d’intérêt, soit réchauffées à nouveau à 37 °C pendant différentes périodes de temps pour permettre à la protéine d’intérêt biotinylée endocytosée de se recycler dans la membrane plasmique. Les cellules sont ensuite refroidies à nouveau à 4 °C, et la liaison disulfure sur la biotine attachée aux protéines recyclées dans les membranes plasmiques est réduite avec du GSH. Le recyclage de la protéine d’intérêt est déterminé à partir de la différence entre la quantité de protéines biotinylées après le premier et le deuxième traitement au GSH.
La faisabilité des tests endocytaires et de recyclage dépend de plusieurs facteurs. Tout d’abord, la formation de monocouches cellulaires est une condition préalable et les cellules qui ne forment pas de monocouche ou ne se développent pas en tant que multicouches ne conviennent pas aux tests décrits dans ce manuscrit. Deuxièmement, l’abondance de la protéine d’intérêt à la surface de la cellule et la présence d’un anticorps permettant de détecter la protéine par western blot sont essentielles. Nous recommandons que l’abondance de la protéine à l’état d’équilibre soit d’abord déterminée dans les lysats de cellules entières (WCL). Troisièmement, la capacité à biotinyler la protéine de surface cellulaire spécifique doit être testée. La biotine se fixe aux résidus de lysine. Ainsi, l’efficacité de la biotinylation dépend en partie du nombre de résidus de lysine dans le domaine extracellulaire de la protéine. En conséquence, nous recommandons de cribler la séquence protéique pour déterminer si des résidus de lysine sont présents dans le(s) domaine(s) extracellulaire(s). Tous les résidus de lysine du domaine extracellulaire peuvent ne pas être également accessibles à la biotine en raison du repliement des protéines. Par conséquent, une biotinylation de la protéine à l’état d’équilibre, suivie d’un western blot, devrait être effectuée non seulement pour déterminer l’abondance de la protéine à l’état d’équilibre à la surface de la cellule, mais aussi pour examiner la faisabilité des essais basés sur la biotinylation pour la protéine d’intérêt.
Ce protocole est optimisé pour l’examen de l’endocytose et du recyclage du CFTR de type sauvage dans les cellules épithéliales des voies respiratoires humaines CFBE41o- cultivées sur des supports de croissance semi-perméables de 24 mm dans l’interface air-liquide9,10,13-15. CFTR se polarise dans le domaine de la membrane apicale ; Ainsi, le protocole décrit la biotinylation du domaine de la membrane apicale. La biotinylation du domaine de la membrane basolatérale sera nécessaire pour étudier l’endocytose et le recyclage des protéines polarisantes à la membrane basolatérale. Le protocole de dosage endocytaire décrit dans ce manuscrit comporte 6 conditions : Biotinylé uniquement (BT = temps zéro ; échantillon a) ; contrôle du GSH (GSH ; échantillon b) ; et les points de temps endocytaires de 2,5, 5,0, 7,5 ou 10 minutes (échantillons c ; Tableau 1). Le nombre et/ou la durée des points temporels endocytaires dans le protocole peuvent être modifiés au besoin.
Le test de recyclage est effectué après avoir déterminé le moment où l’endocytose de la protéine d’intérêt atteint son maximum lors de l’augmentation linéaire du signal endocytaire. Ce point temporel sera utilisé pour charger les vésicules endocytaires avec la protéine d’intérêt avant d’induire le recyclage. Le temps dépend des protéines et peut différer selon les types de cellules et les conditions de culture15. Nous avons précédemment établi que l’endocytose de CFTR atteignait un plateau à 7,5 minutes dans les cellules épithéliales des voies respiratoires humaines CFBE41o- exprimant de manière stable CFTR15. En revanche, l’endocytose de CFTR a atteint un plateau à 5,0 minutes dans les cellules HEK293 exprimant de manière stable CFTR13. Le protocole d’essai de recyclage décrit dans ce manuscrit comporte 5 conditions : Biotinylé uniquement (BT = temps zéro ; échantillon a) ; contrôle du GSH (GSH ; échantillon b) ; Endocytose de 5,0 min (Endo ; échantillon c), endocytose de 5,0 min suivie des points de temps de recyclage de 2,5 ou 5,0 min (Rec ; échantillons d ; Tableau 2). Le nombre et/ou la durée des points de temps de recyclage dans le protocole peuvent être modifiés si nécessaire.
Protocole
1. Cellules d’ensemencement
- Prétraiter les filtres de 24 mm avec 10 % de collagène I (préparer 10 % de collagène I dans un milieu essentiel minimal (MEM), couvrir toute la surface du filtre avec la solution de collagène, incuber sous la lumière UV à température ambiante pendant 30 min, et dans un incubateur de culture cellulaire à 37 ºC pendant 1 heure, aspirer l’excès de collagène après l’incubation).
- Préparez un milieu de culture cellulaire (MEM gazé avec du CO2 pendant 20 min, 10 % de sérum de veau fœtal (FBS), 50 U/ml de pénicilline, 50 U/ml de streptomycine, 2 mM de L-glutamine, 0,5 μg/ml de puromycine)
- Amorcez des cellules CFBE41o- sur six filtres de 24 mm pour l’endocytose et le recyclage, respectivement, à 1 x 10⁶/filtre.
- Retirer le milieu apical le lendemain de l’ensemencement et nourrir quotidiennement du côté basolatéral seulement.
- Nourrir avec un milieu antibiotique négatif de sélection 24 heures avant l’expérience. Effectuer l’expérience dans des cellules CFBE41o- 6 à 10 jours après l’ensemencement.
2. Préparations avant l’expérience (similaire pour le test d’endocytose et de recyclage)
- Installez un espace de paillasse dans la chambre froide. Les tests endocytaires et de recyclage doivent être effectués dans la chambre froide, sauf pour l’incubation à 37 °C. Les plaques contenant les filtres de 24 mm doivent être placées directement sur la paillasse de la chambre froide.
- Allumez l’incubateur à 37 ºC.
- Préparez 500 ml de PBS++ à pH 8,2 (solution saline tamponnée au phosphate de Dulbecco (PBS), 1 mM de chlorure de magnésium et 0,1 mM de chlorure de calcium, pH 8,2) et conservez 250 ml à 37 °C dans un incubateur et 250 ml à 4 °C dans la chambre froide.
- Remplissez les puits dans une plaque à 6 puits avec du PBS++, pH 8,2, 37 °C et conservez-les dans l’incubateur à 37 °C.
- Remplissez les puits dans une autre plaque à 6 puits avec du PBS++, pH 8,2, 4 °C et conservez-le dans la chambre froide à 4 °C.
- Préparez 100 ml de PBS++, pH 8,6 à 4 °C et conservez-le dans la chambre froide.
- Préparez de la biotine contenant la liaison disulfure et l’ester NHS à une concentration de 0,8 mg/ml dans du PBS++, pH 8,2, 4 °C dans les 30 minutes suivant l’étape de biotinylation (le volume du tampon de biotine doit couvrir complètement toute la surface du filtre) ; nous recommandons un filtre de 1,5 ml/24 mm.
- Préparez 100 ml de tampon GSH dans de l’eau, pH 8,6 et laissez refroidir à 4 ºC (75 mM de chlorure de sodium, 1 mM de chlorure de magnésium et 0,1 mM de chlorure de calcium, 50 mM de GSH, 80 mM d’hydroxyde de sodium et 10 % de FBS). Le GSH et l’hydroxyde de sodium doivent être ajoutés juste avant l’expérience. Vérifiez le pH et ajustez-le à 8,6 ; L’hydroxyde de sodium neutralise les groupes carboxyle et déprotone la moitié des résidus de cystéine dans le glutathion. Il est fortement tamponné au pKa de cette cystéine, qui est de 8,64. (Préparez le même volume de tampon GSH pour le test de recyclage).
- Préparer 50 ml de tampon de lyse, pH 8,2 et maintenir à 4 °C (25 mM HEPES, pH 8,2, 1 % (v/v) Triton X-100, 10 % (v/v) de glycérol) ; ajouter un cocktail complet d’inhibiteurs de protéase par 50 ml de tampon de lyse et laisser refroidir à 4 ºC ; vérifier le pH après l’ajout de Complete car une baisse du pH peut se produire.
- Préparez le tampon d’échantillons Laemli avec 100 mM DTT.
- Préparez 1 tampon de coulée (100 ml de tampon de coulée, 900 ml d’eau).
- Préparez 1x tampon de transfert et laissez refroidir à 4 ºC (100 ml de tampon de transfert 10x sans dodécylsulfate de sodium (SDS), 200 ml de méthanol, 700 ml d’eau).
3. Dosage endocytaire
CFTR se polarise dans le domaine de la membrane apicale ; ainsi, le protocole décrit la biotinylation du domaine de la membrane apicale. La biotinylation du domaine de la membrane basolatérale sera nécessaire pour étudier l’endocytose des protéines se polarisant à la membrane basolatérale.
Flux de travail : Biotinylation des protéines de surface cellulaire à 4 ºC → Réchauffement à 37 ºC pour charger les vésicules endocytaires avec des protéines biotinylées → Refroidissement à 4 ºC pour arrêter le trafic endocytaire → Réduction de la liaison disulfure dans la biotine attachée aux protéines qui sont restées à la surface cellulaire → Lyse cellulaire → Isolement des biotinylés (i.e. endocytosées) avec de l’agarose streptavidine → Élution de protéines biotinylées à partir d’agarose streptavidine → Électrophorèse des protéines et transfert western.
- Sortez la plaque contenant six filtres de 24 mm (tableau 1 : échantillons a-c) de l’incubateur de culture cellulaire et transférez-la rapidement sur la plaque remplie de PBS++ froid (4 ºC), pH 8,2 sur glace.
- Laissez PBS++ déborder de la surface apicale pour couvrir rapidement toute la surface. Apportez l’assiette sur de la glace dans la chambre froide et placez-la sur le plan de travail.
- Retirez rapidement PBS++ en retournant la plaque en maintenant les filtres en place pour éviter qu’ils ne tombent. Ajouter ~2 ml de PBS++ sur les côtés apical et basolatéral.
- Lavez les filtres avec ~2 ml de PBS++ froid, pH 8,2 3x pendant 2 min. Aspirez le lavage d’un côté à la fois, apical ou basolatéral et ajoutez du PBS++ frais, pH 8,2 d’un côté à la fois.
- Aspirez le dernier lavage et ajoutez 1 ml de PBS++, pH 8,2 sur le côté basolatéral. Ajouter 1,5 ml de tampon de biotine sur la face apicale et incuber dans l’obscurité pendant 30 min. Évitez de renverser les tampons du côté controlatéral.
- Aspirez le tampon de biotine par le côté apical et lavez avec du PBS++, pH 8,2 3x pendant 2 min.
- Réservez dans une autre plaque deux filtres (Tableau 1 : échantillons a et b), ajoutez ~2 ml de PBS++, pH 8,2 sur le côté apical et basolatéral et conservez dans la chambre froide. Conservez les 4 filtres restants dans une seule plaque (Tableau 1 : échantillons c) et ajoutez ~2 ml de PBS++ pH 8,2 sur les côtés apical et basolatéral de chaque filtre. Placez l’assiette sur de la glace et apportez-la sur la paillasse à côté de l’incubateur à 37 ºC.
- Transférez rapidement les filtres de la glace à la plaque dans l’incubateur à 37 ºC rempli de PBS++ pH 8.2 préchauffé et incubez un filtre avec précision pendant 2,5, 5.0, 7.5 ou 10 min, couvrant toute la surface de chaque filtre avec du PBS++ pH 8.2 chaud.
- Pendant l’incubation, remplissez complètement quatre puits dans la plaque sur de la glace avec du PBS++ froid (4 ºC) pH 8,2.
- Après le temps d’incubation indiqué, retournez chaque filtre pour égoutter le PBS++ chaud (37 ºC), pH 8,2 et transférez-le dans la plaque sur de la glace. Ajoutez du PBS++ froid, pH 8,2 pour déborder du côté apical et couvrir rapidement toute la surface de chaque filtre.
- Après avoir transféré les filtres sur de la glace, apportez la plaque dans la chambre froide et placez-la sur la paillasse.
- Aspirez le PBS++ des deux côtés dans tous les filtres (échantillons a-c) et remplissez le côté basolatéral avec 1 ml de PBS++ pH 8,6. Ajouter 1,5 ml de PBS++ pH 8,6 sur la face apicale du filtre a (Tableau 1 : échantillon a).
- Réduire la liaison disulfure de la biotine attachée aux protéines de la membrane apicale avec le tampon GSH (pH 8,6) dans les filtres b et c (Tableau 1 : échantillon b et c).
- Ajoutez 1,5 ml de tampon GSH sur le côté apical, incubez pendant 15 minutes et répétez six fois.
- Conservez 1 ml de PBS++ pH 8,6 sur le côté basolatéral. Évitez de renverser le tampon du côté basolatéral.
- Après avoir terminé la procédure 3.15, laver brièvement tous les filtres (Tableau 1 : échantillons a, b et c) avec PBS++ pH 8.2 2x, aspirer le lavage par le côté apical et basolatéral et régler la plaque avec les filtres à un angle de 45° pour vidanger à nouveau tout le lavage et l’aspiration.
- Placez la plaque à plat sur la paillasse et ajoutez 500 μl de tampon de lyse sur la face apicale de chaque filtre et incubez dans la chambre froide en agitant pendant 15 min.
- Grattez les cellules avec un policier en caoutchouc et recueillez-les dans un tube Eppendorf de 1,5 ml.
- Essorage à 14 000 x g pendant 10 min à 4 °C.
- Transférez les surnageants dans des tubes frais de 1,5 ml et jetez les granulés. Les surnageants sont maintenant appelés lysats à cellules entières (WCL).
- Ajouter 100 μl de tampon d’échantillon Laemli avec DTT à 50 μl de WCL (10 % de l’ensemble de la WCL) et incuber à 37 °C pendant 30 min (échantillons WCL).
- Préparez 200 μl d’aliquotes d’agarose à 50 % de streptavidine et retirez tout le tampon de lavage à l’aide d’une aiguille de 27 G fixée à une aspiration : laver 2 fois avec 1 ml de PBS, billes de granulés avec essorage pulsé entre les lavages ; laver une fois avec 1 ml de tampon de lyse pour équilibrer avant d’ajouter WCL ; sécher l’agarose par aspiration avant d’ajouter WCL.
- Incuber le reste de la WCL avec de l’agarose streptavidine lavée (porter le volume à 1,2 ml avec un tampon de lyse et tourner dans l’obscurité pendant au moins 2 heures ou O/N dans la chambre froide).
- Lavez trois fois les complexes protéiques de l’agarose streptavidine et de la protéine biotinylée avec 1 ml de tampon de lyse (le tampon de lyse n’a pas besoin de contenir Complete pendant le lavage), essorez l’agarose par impulsions entre les lavages et aspirez après le dernier lavage.
- Incuber les complexes protéiques streptavide, agarose-biotinylés avec 65 μl de tampon d’échantillon Laemli avec DTT à 85 °C pendant 5 min.
- Pulsez, essorez et collectez les complexes protéiques biotinylés élués.
- Chargez des gels à 7,5 % avec 40 μl d’échantillons WCL et le volume total des échantillons biotinylés (BT) par puits.
- Exécutez des gels à 120 V dans une FDS contenant un tampon de fonctionnement.
- Transférez les protéines sur une membrane PVDF à 90-95 V pendant 1,5 heure (jusqu’à <400 A) dans un tampon de transfert sans SDS.
- Bloquer dans du lait écrémé à 5 % dans du TBS-T à 0,1 % O/N. Éponger les deux membranes avec l’anticorps monoclonal anti-CFTR de souris CFF596 et un anticorps secondaire conjugué à HRP anti-souris de chèvre.
- Effectuer la chimiluminescence. Épongez les deux membranes avec un anticorps anti-ezrine ou anti-actine.
4. Essai de recyclage
Flux de travail : Biotinylation des protéines de surface cellulaire à 4 ºC → Réchauffement à 37 ºC pour charger les vésicules endocytaires avec des protéines biotinylées → Refroidissement à 4 ºC pour arrêter le trafic endocytaire → Réduction de la liaison disulfure dans la biotine attachée aux protéines qui sont restées à la surface cellulaire → Réchauffement à 37 °C pour permettre aux protéines biotinylées des vésicules endocytaires de se recycler à la surface cellulaire → Refroidissement à 4 ºC pour arrêter le trafic endocytaire → Réduction de la liaison disulfure dans la biotine attachée aux protéines qui ont été recyclées à la surface cellulaire → Lyse cellulaire → Isolement des protéines biotinylées (c’est-à-dire celles qui n’ont pas été recyclées) avec de l’agarose streptavidine → Élution de protéines biotinylées à partir de l’agarose streptavidine → Électrophorèse des protéines et transfert western.
- Biotinyler les protéines de surface apicale dans cinq filtres de 24 mm (tableau 2 : échantillons a-d) en suivant la procédure décrite dans le test endocytaire (sections 3.1-3.6).
- Dans la chambre froide, placez dans une nouvelle plaque deux filtres (Tableau 2 : échantillons a et b), ajoutez ~2 ml de PBS++, pH 8,2 sur le côté apical et basolatéral et conservez dans la chambre froide.
- Conservez les 3 filtres restants dans une seule plaque (Tableau 2 : échantillons c et d) avec ~2 ml de PBS++ pH 8,2 sur les côtés apical et basolatéral de chaque filtre. Placez la plaque avec les filtres c et d sur de la glace et amenez-la sur la paillasse à l’extérieur de l’incubateur à 37 ºC.
- Transférez rapidement les filtres de la plaque sur glace à la plaque remplie de PBS++ pH 8,2 préchauffé dans l’incubateur et conservez-les pendant 5,0 min.
- Pendant l’incubation, remplissez 3 puits de la plaque sur de la glace avec du PBS++ froid (4 ºC) pH 8,2.
- Transférer les filtres après l’incubation de 5,0 minutes à 37 ºC sur la plaque sur de la glace. Laissez le PBS++ froid pH 8,2 déborder du côté apical et couvrir rapidement toute la surface de chaque filtre.
- Apportez l’assiette sur de la glace dans la chambre froide et placez-la sur le plan de travail.
- Aspirez le PBS++ pH 8,2 des deux côtés des filtres a, b, c et d et ajoutez 1 ml de PBS++ pH 8,6 sur le côté basolatéral.
- Conservez les filtres a et b séparément des filtres c et d. Ajoutez 1 ml de PBS++ pH 8,6 sur la face apicale des filtres a et b.
- Réduire la liaison disulfure de la biotine restant à la surface de la cellule dans les filtres b, c et d en suivant la procédure décrite dans le dosage endocytaire (étapes 3.13-3.15).
- Lavez brièvement les filtres b, c et d avec PBS++ pH 8,2 2x et remplacez-les par du PBS++ frais, pH 8,2. Placez les filtres d dans une nouvelle plaque et apportez-les de la glace sur la paillasse à l’extérieur de l’incubateur à 37 ºC.
- Transférez rapidement les filtres de la plaque sur glace à la plaque de l’incubateur rempli de PBS++ préchauffé pH 8,2 et incubez un filtre avec précision pendant 2,5 ou 5,0 minutes, comme décrit ci-dessus aux étapes 4.4 à 4.9.
- Réduire la liaison disulfure dans la biotine attachée aux protéines de la membrane apicale avec le tampon GSH après la deuxième incubation à 37 ºC dans les filtres d comme décrit en 4.4, à l’exception que seulement trois incubations de 15 minutes avec le tampon GSH seront effectuées au cours de cette étape. Maintenez les filtres a, b et c dans le PBS++ pH 8,6 sur les côtés apical et basolatéral pendant cette étape.
- Pour la lyse cellulaire et le transfert Western, suivez les procédures décrites dans le test endocytaire (étapes 3.16 à 3.31).
Résultats
L'endocytose de la CFTR a été étudiée dans des cellules CFBE41o- cultivées sur des filtres revêtus de collagène (Figure 1). La CFTR biotinylée a été visualisée par immunobuvardage avec un anticorps monoclonal de souris, clone 596, et un anticorps secondaire anti-souris conjugué à la peroxydase de raifort, en utilisant un système de détection pour immunobuvardage suivi d'une chimiluminescence. La quantification de la CFTR biotinylée a été réalisée par densitométrie en utilisant des temps de pose situés dans la plage dynamique linéaire du film. L'endocytose de la CFTR a été calculée après soustraction du fond et exprimée en pourcentage de la CFTR biotinylée à chaque point temporel après réchauffement à 37 ºC par rapport à la quantité de CFTR biotinylée présente au temps zéro (Figures 1A et 1B). L'endocytose de la CFTR était linéaire entre 0 et 7,5 min. Les expériences pour lesquelles le fond de CFTR était >10 % ont été exclues en raison d'un traitement par le GSH inefficace (Figure 1D).
Le recyclage du CFTR a été étudié dans des cellules HEK293 cultivées dans des plaques de culture tissulaire revêtues de collagène (Figure 2). L'endocytose du CFTR était linéaire entre 0,0 et 5,0 min et atteignait un maximum au point temporel de 5,0 min (Figure 2A), ainsi les cellules ont été incubées à 37 ºC pendant 5,0 min afin de charger les vésicules endocytaires avec des protéines biotinylées, y compris le CFTR (Figures 2B et 2C). Le recyclage du CFTR endocyté a été calculé comme la différence entre la quantité de CFTR biotinylé après le premier et le second traitement au GSH.
Tableau 1. Essais d'endocytose.
| Endocytose | BT | GSH | Endo-2,5 | Endo-5,0 | Endo-7,5 | Endo-10,0 |
| Échantillon | a | b | c2,5 | c5,0 | c7,5 | c10,0 |
| Biotine | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2,5 min | 5,0 min | 7,5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Tableau 2. Essai de recyclage.
| Recyclage | BT | GSH | Endo-5 | Rec-2,5 | Rec-5,0 |
| Échantillon | a | b | c | d2,5 | d5,0 |
| Biotine | + | + | + | + | + |
| 1er 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 1er GSH | (-) | (-) | + | + | + |
| 2e 37 ºC | (-) | (-) | + | + | + |
| 2e GSH | (-) | (-) | (-) | 2,5 min | 5 min |
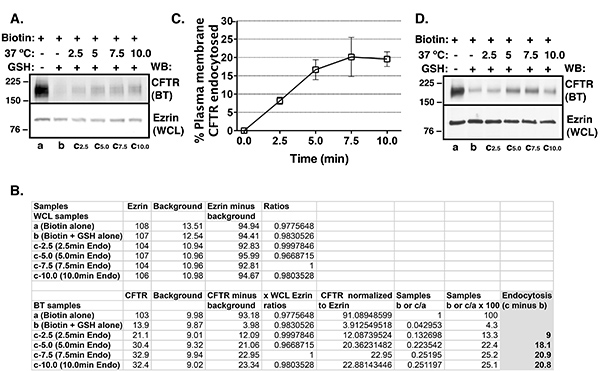
Figure 1. Résumé des tests d'endocytose réalisés pour déterminer l'endocytose de la CFTR dans les cellules CFBE41o-. Les cellules ont été cultivées sur des filtres revêtus de collagène. Des immunotransferts représentatifs (A), des valeurs représentatives de densitométrie (B) et un résumé des expériences (C) démontrant l'endocytose de la CFTR en fonction du temps. Une biotinylation sélective de la surface cellulaire suivie d'un immunotransfert a été utilisée pour déterminer l'abondance de la CFTR membranaire. L'abondance protéique a été quantifiée par densitométrie en utilisant des temps d'exposition situés dans la plage dynamique linéaire du film. Au temps zéro, la quantité de CFTR biotinylée (BT) a été considérée comme étant de 100 % (Tableau 1 : échantillon a). Au temps zéro, la quantité de CFTR BT restante après traitement par le GSH a été considérée comme un fond de CFTR (échantillon b ; veuillez noter qu'il s'agit d'un fond différent de celui soustrait de tous les échantillons, comme indiqué dans la Figure 1B). Le fond de CFTR était de 6,7 ± 0,9 % (moyenne ± E.M.S.) dans les expériences incluses pour l'analyse. Ce fond de CFTR a été soustrait de la CFTR BT après un réchauffement de 2,5, 5,0, 7,5 ou 10 min à 37 ºC (échantillons c moins échantillon b). L'endocytose de la CFTR a été exprimée en pourcentage de CFTR restant biotinylé aux points temporels de 2,5, 5,0, 7,5 ou 10 min, après soustraction du fond de CFTR. L'endocytose de la CFTR était linéaire entre zéro et 7,5 min. L'abondance d'eisrine dans le lysat total de cellules (WCL) a été utilisée comme témoin de chargement. 4 expériences par groupe. Les expériences dans lesquelles le fond de CFTR était >10 % ont été exclues en raison d'un traitement inefficace par le GSH (D). La quantité de CFTR biotinylée dans le témoin GSH (échantillon b) dans l'expérience exclue était de 14,5 %.
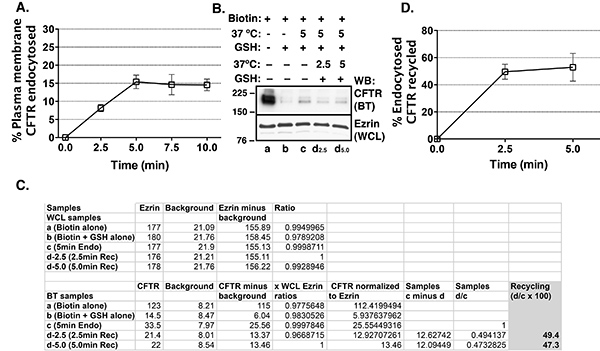
Figure 2. Résumé des tests d’endocytose et de recyclage réalisés dans des cellules HEK293 exprimant de façon stable CFTR. Les cellules ont été cultivées dans des plaques de culture tissulaire revêtues de collagène. Résumé des données démontrant que l’endocytose de CFTR était linéaire entre 0 et 5 min (A). Ainsi, dans les tests de recyclage, les vésicules endocytaires ont été chargées avec des protéines biotinylées (BT), y compris CFTR, en augmentant la température à 37 ºC pendant 5 min. L’abondance des protéines a été quantifiée par densitométrie en utilisant des expositions comprises dans la plage dynamique linéaire du film. Immunoblot représentatif (B), valeurs représentatives de densitométrie (C) et résumé des expériences (D) illustrant le recyclage de CFTR en fonction du temps. À l’instant zéro, la quantité de CFTR-BT a été considérée comme 100 % (Tableau 2 : échantillon a). À l’instant zéro, la quantité de CFTR-BT restante après traitement au GSH a été considérée comme un fond de CFTR (échantillon b ; veuillez noter qu’il s’agit d’un fond différent de celui soustrait de tous les échantillons, comme indiqué en C). Les expériences pour lesquelles le fond de CFTR était >10 % ont été exclues en raison d’un traitement inefficace au GSH. Les vésicules endocytaires ont été chargées avec des protéines BT, y compris CFTR, par incubation à 37 ºC pendant 5 min, suivie d’un traitement au GSH pour cliver la biotine des protéines restant à la membrane plasmique (échantillons c et d). La quantité de CFTR-BT après 5 min de chauffage à 37 ºC suivis du traitement au GSH représente le CFTR endocytosé (échantillon c). Après les 5 min de chauffage à 37 ºC et le premier traitement au GSH, les cellules ont été réchauffées à 37 ºC pendant 2,5 ou 5,0 min afin de permettre aux protéines endocytosées de recycler vers la membrane plasmique, et la biotine sur le CFTR recyclé a été éliminée par un second traitement au GSH (échantillons d). À ce stade, seul le CFTR qui n’a pas recyclé des endosomes vers la membrane plasmique est resté biotinylé (échantillons d). Le recyclage de CFTR a été calculé comme la différence entre le CFTR-BT après le premier traitement au GSH (échantillon c) et après le second traitement au GSH à 2,5 et 5,0 min (échantillons d), et a été exprimé en pourcentage du CFTR endocytosé. Le recyclage de CFTR était rapide et atteignait un maximum en 2,5 min. L’abondance d’ezyrine dans l’extrait total de cellules (WCL) a été utilisée comme témoin de chargement. Trois expériences par groupe.
Discussion
Le succès des tests endocytaires et de recyclage dépend de l’efficacité de la biotinylation de CFTR au niveau de la membrane plasmique. La biotine doit être préparée immédiatement avant l’utilisation car la fraction ester NHS s’hydrolyse facilement et devient non réactive. De plus, l’étape de biotinylation nécessite un contrôle strict de la température à 4 ºC pour arrêter le trafic de protéines. Si la température est élevée pendant l’étape de biotinylation au-dessus de 4 °C, le trafic des protéines peut se produire, entraînant la biotinylation de quantités variables de CFTR.
Le succès des tests endocytaires et de recyclage dépend également de la réduction efficace de la liaison disulfure dans le CFTR biotinylé restant au niveau de la membrane plasmique. La quantité de CFTR restant biotinylée après le traitement au GSH doit représenter <10 % du CFTR biotinylé total au temps zéro. Les expériences où la quantité de CFTR biotinylé est de >10 % dans l’échantillon témoin de GSH devraient être exclues. La figure 1D montre une expérience « ratée » où la quantité de CFTR biotinylée dans le témoin GSH était de 14,5 %. Une réduction insuffisante de la liaison disulfure dans le CFTR biotinylé peut être secondaire à un mauvais contrôle de la température pendant l’expérience. Si la température est élevée pendant le traitement au GSH au-dessus de 4 °C, un trafic de protéines peut se produire, et le CFTR biotinylé endocytosé à la suite de l’augmentation involontaire de la température augmentera le CFTR de fond. Par ailleurs, une réduction insuffisante de la liaison disulfure dans le CFTR biotinylé peut résulter d’une diminution de la demi-vie du GSH en solution aqueuse causée par l’oxydation dans l’air ou d’un pH inapproprié. Comme déterminé précédemment, le GSH reste fortement tamponné à un pH de 8,64. D’après notre expérience, six traitements de 15 minutes avec le tampon GSH ont réduit la liaison disulfure de plus de 90 %, plus efficacement qu’un traitement de 90 minutes.
La culture cellulaire nécessite une attention particulière. La biotine doit atteindre le domaine de la membrane plasmique dans les cellules intactes où la protéine d’intérêt est exprimée. Nous avons utilisé les tests endocytaires et de recyclage basés sur la biotinylation pour étudier l’endocytose et le recyclage des CFTR exprimés dans le domaine de la membrane apicale. Ces tests peuvent également être utilisés pour étudier le trafic endocytaire des protéines situées dans le domaine de la membrane basolatérale dans des cellules cultivées sur des supports de croissance semi-perméables. Les cellules épithéliales qui forment des multicouches ne conviennent pas à ces dosages, car les tampons de biotine et de GSH n’atteignent que la couche supérieure des cellules pour détecter les protéines de la membrane apicale ou la couche inférieure pour détecter les protéines de la membrane basale. Les cellules épithéliales cultivées sur du plastique peuvent être plus susceptibles d’être éliminées pendant les essais. La perte aléatoire de cellules au cours de l’expérience compromettra les résultats. Nous recommandons un examen périodique de l’intégrité de la monocouche au microscope dans des expériences où les cellules sont cultivées dans des boîtes de culture de tissus plastiques. L’enrobage de collagène des boîtes de culture tissulaire peut augmenter l’adhérence cellulaire.
Les échantillons de protéines biotinylées doivent être régulièrement testés pour détecter toute contamination par des protéines intracellulaires. La détection de protéines intracellulaires dans les échantillons de protéines biotinylées peut indiquer un lavage insuffisant des complexes protéiques biotinylés de l’agarose streptavidine après l’incubation avec WCL. Ainsi, la première étape consiste à augmenter l’efficacité du lavage. De plus, la présence de cellules dont l’intégrité de la membrane plasmique est compromise permettra l’accès de la biotine aux protéines intracellulaires. Le western blot pour une protéine exprimée exclusivement dans un compartiment intracellulaire tel que le réticulum endoplasmique pourrait être utilisé pour détecter la biotinylation des protéines intracellulaires. Alternativement, des protéines cytosquelettiques telles que l’actine ou l’ezrine peuvent être utilisées pour tester la contamination des échantillons de protéines biotinylées par des protéines intracellulaires. Les protéines du cytosquelette peuvent former des complexes avec les protéines transmembranaires et de petites quantités de protéines du cytosquelette peuvent être détectées dans les échantillons de protéines biotinylées. Cependant, d’après notre expérience, le rapport entre l’ezrine ou l’actine biotinylée/WCL est de <1:1 000 et ces protéines conviennent donc à la détermination de l’intégrité de la membrane cellulaire dans les tests basés sur la biotinylation.
La réaction de biotinylation peut être éteinte avec de la glycine ou du Tris pour éliminer le réactif de biotinylation n’ayant pas réagi, comme indiqué précédemment17. De plus, le GSH peut être éteint avec de l’iodoacétamide6. D’après notre expérience, le réactif de biotinylation n’ayant pas réagi et le GSH peuvent être éliminés efficacement par un lavage doux avec du PBS++ sans utiliser de réactifs de trempe.
Le choix de la streptavidine par rapport à la neutravidine agarose pour isoler les complexes protéiques biotinylés doit être déterminé au cas par cas. D’après notre expérience, l’agarose streptavidine permet d’isoler efficacement les complexes protéiques biotinylés avec une liaison minimale des protéines non biotinylées, contrairement à l’agarose neutravidine où la liaison non spécifique se produit à des niveaux qui interfèrent avec les résultats du test (observation non publiée).
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont pas d’intérêts financiers concurrents.
Remerciements
Cette étude a été soutenue par les subventions R01HL090767 des National Institutes of Health (NIH) des États-Unis, R01HL090767-02S1, P30 DK06010, et la subvention de la Fondation NepCure pour chercheur établi dans une nouvelle direction, (à A.S.-U.).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| CFBE41o- cellules | référence10,11,13,14,15 | ||
| HEK293 cellules | référence13 | ||
| Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-Glutamine | Cellgro | 25-005-CL | |
| Pénicilline | Sigma | P0781 | |
| Streptomycine | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol ; Collagène bovin ; La solution ; Réactifs | |||
| s Phosphate salin tamponné (PBS) | Gibco | 14190 | |
| Chlorure de calcium | Sigma | C3306 | |
| Chlorure | de magnésium Sigma | M2670 | |
| Chlorure de sodium | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Biotine | Pierce | 21331 | |
| L-Glutathion réduit (GSH) | Sigma | G6529 | |
| Résine de streptavidine-agarose | Thermo Fisher | 20353 | |
| Hydroxyde de sodium | Sigma | 224165 | |
| Sérum fœtal bovin ; | Gemini Bioscience | 100-106 | |
| Milli-Q eau Millipore | Advantage System | ||
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glycérol | FisherScientific | G33 | |
| Laemli Tampon d’échantillon | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | Sigma | 646563 | |
| Protéase Complète ; Cocktail inhibiteur | Roche | 1697498 | |
| Perles de streptavidine | Thermo Scientific | 20353 | |
| Chimiluminescence | Perkin Elmer | NEL104001EA | |
| Réactifs | |||
| Lait écrémé en poudre | Carnation | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Saline tamponnée au tris (SCT) | BioRad | 170-6435 | |
| Albumine sérique bovine (BSA) | Gibco | 15120 | |
| Primaire et secondaire ; | |||
| Anticorps anti-CFTR monoclonal de souris Western Blotting | |||
| 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin ; | |||
| Tampon de fonctionnement 10x | BioRad | 161-0772 | |
| Tampon de transfert 10x ;( sans FDS) | BioRad | 161-0771 | |
| Méthanol | Fisher | A4129 | |
| Compteur Coulter | Beckman Coulter | Z1Compteur | |
| Coulter Standard Cell ; Matériel | |||
| Hotte de culture cellulaire avec lumière | |||
| Fioles | |||
| Filtres Transwell-24mm | Corning | 3412 | |
| culture cellulaire de 4 cm | |||
| pH mètre | |||
| 15 ml et tubes coniques | |||
| de 50 ml1,5 ml Tubes | |||
| Policier | |||
| en caoutchouc Chambre | |||
| Seaux à glace et glace | |||
| 27 G Aiguilles | |||
| 37 º ; C Incubateur | |||
| Thermomètre | |||
| paillasse | |||
| Centrifugeuse | |||
| Équipement d’électrophorèse | |||
| Film de développement | |||
| GE Amersham | 28-9068-36 | ||
| Membrane | PVDFLogiciel Millipore | IPVH00010 | |
| ImageJ | NIH |
Références
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Réimpressions et autorisations
