Streptococcus pneumoniae est l'agent pathogène menant pneumopathies sévères acquis communautaire et responsable de plus de 2 millions de décès dans le monde. L'impact des facteurs bactériens impliqués dans la virulence de remise en forme ou peut être contrôlé en temps réel dans une pneumonie ou une bactériémie modèle de souris en utilisant des bactéries bioluminescentes aiguë.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Après en temps réel l'impact des facteurs de virulence contre le pneumocoque dans une souris modèle pneumonie aiguë avec bactéries bioluminescentes
Dans cet article
Résumé
Résumé
La pneumonie est l'un des principaux problèmes de santé dans les pays en développement et les pays industrialisés et est associée à une morbidité et une mortalité considérables. Malgré les progrès dans la connaissance de cette maladie, la disponibilité des unités de soins intensifs (USI), et l'utilisation d'agents antimicrobiens puissants et des vaccins efficaces, les taux de mortalité restent élevés 1. Streptococcus pneumoniae est le principal agent pathogène de la pneumonie communautaire (PAC) et l'une des causes les plus courantes de bactériémie chez l'homme. Cet agent pathogène est équipé d'un arsenal de adhésines de surface exposée et facteurs de virulence qui contribuent à la pneumonie et les maladies invasives à pneumocoques (IIP). L'évaluation du rôle in vivo de facteurs de forme physique ou virulence bactérienne est de la plus haute importance à démêler S. mécanismes de pathogénicité pneumoniae. Les modèles murins de la pneumonie, la bactériémie et la méningite sont utilisés pour déterminer l'impact des facteurs de pneumocoques à différents stades de l'infection. Ici, nous décrivons un protocole pour surveiller en temps réel la diffusion pneumocoque chez la souris après des infections par des bactéries bioluminescentes intrapéritonéale ou intranasale. Les résultats montrent la multiplication et la diffusion des pneumocoques dans les voies respiratoires inférieures et du sang, qui peut être visualisée et évaluée en utilisant un système d'imagerie et le logiciel d'analyse d'accompagnement.
Introduction
Infections des voies respiratoires causées par des virus ou des bactéries restent l'un des problèmes les plus courants cliniques acquis communautaires ou à travers le monde causant environ un tiers de tous les décès dans le monde. Les espèces bactériennes clés sont Haemophilus influenzae et Streptococcus pneumoniae 2. Cependant, ces espèces bactériennes sont habituellement des constituants communs de la flore naturelles respiratoires des voies. Ainsi chariot de bactéries est également certain risque de maladie invasive et en fonction de l'état immunitaire ou prédispositions des individus. La colonisation asymptomatique est déclenché pour les infections invasives. Streptococcus pneumoniae est le principal agent pathogène de la pneumonie communautaire (PAC) et l'une des causes les plus courantes de bactériémie chez les humains. Chez les individus sains S. pneumoniae (pneumocoque) sont souvent asymptomatiques colonisateurs et inoffensifs des voies respiratoires supérieures, où ils sont confrontés à des bactéries non pathogènesde la flore résidente, mais aussi par des agents pathogènes tels que Haemophilus spp. ou Staphylococcus aureus et la première ligne du système immunitaire humain de la défense. Les taux de portage sont les plus élevés chez les jeunes enfants (37%) et encore plus élevé dans les centres de soins de jour bondés (58%) 3-5. La population la plus jeune et les personnes âgées recevant le pneumocoque par la transmission par aérosol des transporteurs et des sécrétions naso-pharyngées 6, appartiennent à des groupes à haut risque et la vaccination à l'aide de l'un des vaccins antipneumococciques conjugués (de PCV10 ou PCV13 chez les enfants et 23-valent polysaccharide PPSV23 chez les adultes) Il est recommandé aux États-Unis (US) et de nombreux pays européens 4. Le PPSV23 couvre sérotypes responsables de ~ 90% des maladies pneumococciques bactériémiques aux États-Unis et en Europe, la prévention des maladies pneumococciques invasives ainsi efficacement (IPD) chez les adultes, tandis que les PCVs couvrent les sérotypes les plus fréquents chez les enfants. Par conséquent, IPD en raison de types de vaccins (VT) sont redusérotypes non vaccinaux ced mais présentant un potentiel de virulence élevée et résistance aux antibiotiques ont émergé 4,7-12. Le nasopharynx que le réservoir est le point de départ pour les pneumocoques se propager aux sinus ou des oreilles moyennes initiateurs infections locales dangereuses. Plus important encore, les pneumocoques se propager directement par la voie aérienne pour les bronches et les poumons entraînant mortelle PAC 4,13. Les infections pulmonaires sont souvent accompagnés de tissus et destruction de la barrière, permettant ainsi à l'agent pathogène de se propager dans le sang et provoquer IPD. Les incidences de la PAC et IPD sont les plus élevés chez les personnes immunodéprimées ou aux extrêmes de 4,13 ans. Les circonstances responsables de la conversion d'un commensal à un agent pathogène à haute virulence sont encore en discussion. Toutefois, outre l'évolution de la sensibilité de l'hôte et adaptation évolutive accompagnée de virulence plus élevée et l'augmentation des résistances aux antibiotiques ont été suggéré d'avoir un impact crucial sur pneinfections umococcal 14-16.
L'agent pathogène est doté d'une multiplicité d'adhésines médiatrices contact intime de cellules épithéliales des muqueuses. Après avoir surmonté le mucus des voies respiratoires, l'adhésion des pneumocoques à des cellules hôtes est facilitée par l'intermédiaire d'interactions directes des adhésines de surface exposée avec des récepteurs cellulaires et en exploitant des composants de la matrice extracellulaire ou des protéines sériques comme des molécules de pontage 4,17,18. Pathogènes polyvalents pneumocoques sont également équipées de facteurs impliqués dans l'évasion des mécanismes de défense immunitaire de l'hôte. En outre, ils ont la capacité de s'adapter à différents milieux d'accueil tels que les poumons, le sang et le liquide céphalo-rachidien (LCR), respectivement 5,17,19,20.
L'impact des facteurs bactériens sur les réponses de la pathogenèse et d'accueil inflammatoire est étudiée dans des modèles animaux expérimentaux de la pneumonie, la bactériémie, la méningite ou 21-25. En dépit d'être un agent pathogène humain, ces modèles sont nousll établi à déchiffrer tropisme pneumocoque de tissu, les mécanismes de virulence, ou protectivity de candidats vaccins contre le pneumocoque. Le fond génétique des souches de souris consanguines détermine la susceptibilité à pneumocoques. Des souris BALB / c infectées par voie intranasale les pneumocoques se sont révélés être résistants, alors que les souris CBA / Ca et SJL étaient plus sensibles contre les infections à pneumocoque 22. Cela implique que, comme pour les humains, la génétique et les mécanismes de défense de l'hôte de déterminer le résultat de l'infection. Par conséquent, des efforts supplémentaires sont nécessaires pour démêler locus de résistance dans le génome de la souris moins sensibles aux infections pneumococciques. Les résultats ont conduit à des changements in vivo dans des protocoles de virulence. Au lieu des souris BALB / c consanguines souvent utilisés dans le passé, les souches de souris consanguines très sensibles de CD-1/MF1 sont aujourd'hui souvent utilisées pour étudier l'effet de la virulence ou d'adaptation à pneumocoques perte de fonction de facteurs 26-28. En outre, la disponibilitédes pneumocoques bioluminescentes et techniques d'imagerie optique permet en temps réel bioluminescence bio-imagerie des infections. En pneumocoques la cassette du gène luxABCDE optimisé (plasmide Paul-A Tn 4001 luxABCDE Km r) a été inséré dans un site unique d'insertion du chromosome par mutagénèse par transposon. Pneumocoques Bioluminescent ont été employés pour évaluer l'atténuation de mutants pneumococciques virulence ou déficients en facteurs de remise en forme et de leur translocation d'un site anatomique dans un autre 26,28-31.
Ici, nous fournissons un protocole pour la bio-imagerie des infections à pneumocoque dans une pneumonie murine ou modèle de septicémie. L'amplification et la diffusion des pneumocoques chez des souris par voie intranasale bioluminescent ou infectées par voie intrapéritonéale peuvent facilement être contrôlées au cours du temps en utilisant un système d'imagerie optique et le même animal, à différents points dans le temps.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Les expériences d'infection animale décrites ici doivent être effectuées en stricte conformité avec la (par exemple le droit européen de la santé de la Fédération des animaux de laboratoire Sciences associations (FELASA)) locale et internationale guidelines et règlements pour l'utilisation d'animaux vertébrés. Les expériences doivent être approuvés par le Comité de protection des animaux institutionnels comité d'éthique local et. Toutes les expériences avec S. pneumoniae dans le laboratoire ou les infections animales sont réalisées dans un cabinet de biosécurité de classe II.
Une. Préparation de la Banque infectieuses de bioluminescentes Pneumocococi
- Préparer cultures stock pneumocoque dans un bouillon Todd-Hewitt additionné de 1% (p / v) d'extrait de levure et une concentration finale de 20% de glycérol pour la maintenance à 80 ° C.
- Plaque une petite quantité de stock de culture pneumocoque surgelés sur une plaque de gélose au sang et incuber les bactéries pour 10 heures à 37 ° C dans 5% de CO 2. Til plaque de gélose au sang contenant les antibiotiques appropriés, tels que la kanamycine (150 pg / ml) pour l'insertion du transposon de la cassette de gène dans le génome luxABCDE.
- Sous-cultiver une nouvelle colonie sur une nouvelle plaque de gélose au sang pour un maximum de 10 heures.
- Inoculer un milieu THY complété avec 10% (v / v) inactivé par la chaleur (30 min à 56 ° C) de sérum fœtal bovin (FBS) par des pneumocoques et de commencer la culture à une DO 600 de 0,05-0,07.
- Incuber les pneumocoques sans agitation à 37 ° C et 5% de CO2 jusqu'à ce que la culture atteint une DO600 de 0,35 à 0,40. Croissance prendra entre 3-4 heures.
- Récolte des pneumocoques par centrifugation à 3750 xg pendant 10 min et remettre en suspension les pneumocoques bioluminescent dans du tampon phosphate salin à pH 7,4 (PBS) supplémenté avec 0,5% de FBS.
- Ajuster l'inoculum à la concentration désirée dans PBS/10% de FBS. La dose dépend de l'infection par la souche pneumococcique utilisé et l'arrière-plan génétique du microe. Pour infecter consanguine souris CD-1 par voie intranasale avec S. pneumoniae D39 lux la dose d'infection doit être ajustée à 1 x 10 7 CFU dans une suspension de 20 ul supplémenté avec 90 parts de la hyaluronidase. Ne pas secouer ou vortex pneumocoques, car cela va déclencher autolyse.
- Vérifier la concentration d'inoculum par étalement des dilutions en série 10 de pliage sur une gélose au sang et le dénombrement des colonies après culture pendant une nuit à 37 ° C dans 5% de CO 2.
- Vérifier la bioluminescence de l'inoculum à pneumocoques en mesurant la bioluminescence en utilisant un système d'imagerie optique.
2. Intranasale et l'infection par voie intrapéritonéale des souris avec bioluminescentes pneumocoques
- Utilisez la souris consanguine de femmes dans l'âge de 7-10 semaines pour la pneumonie aiguë et modèle de septicémie. Le poids de ces souris devrait se situer entre 20 à 30 g.
- Anesthésier les souris par injection intraperitoneale de kétamine et de xylazine. Préparer un mélange de 1,0 mgkétamine et de xylazine 0,1 mg dans 100 ul de 0,9% stérile (p / v) de chlorure de sodium pour les souris ayant un poids corporel de 20 g. Ceci est cohérent avec une dose de 50 mg / kg de poids corporel de la kétamine et 5 mg / kg de poids corporel pour la xylazine. Pour être précis, peser souris avant l'injection de l'anesthésique.
- Injecter le mélange dans la cavité intrapéritonéale et placer les animaux dans la cage jusqu'à ce que les anesthésiques agissent et les animaux sont narcose. La respiration de souris va devenir très lent et régulier. Les souris doivent être entièrement narcotisé, de sorte que l'inoculation intranasale et l'inhalation de la suspension bactérienne ne donneront pas lieu à des éternuements et, par conséquent, une perte d'inoculum. Ceci peut être évalué par le pincement de la souris à la fin de leur queue, une souris entièrement narcotisé manquera de réactivité.
- Prendre doucement une souris narcose et maintenez la souris entre les doigts et le pouce avec le nez en position verticale (figure 1).
- Utiliser une pipette avec de longues pointes étroites (Gel LoaderConseils) et déposez-les pneumocoques bioluminescentes dans plusieurs petites gouttelettes sur les narines (10 pl / narine) de la souris 26-29. La souris involontairement inhaler les bactéries. Maintenez la souris 1-2 min verticale et observer si la souris éternue ou maintient l'inoculum.
- Infecter vieux 7-10 semaines souris CD-1 par voie intranasale avec une dose d'infection de 1 x 10 7 et 7,5 x 10 7 pneumocoques de souche D39 et TIGR4, respectivement, afin de contrôler l'infection en temps réel. La limite de détection pour le système sans aucune absorption par le tissu de l'hôte est de 1 x 10 6 bactéries bioluminescentes.
- Infecter des souris par voie intrapéritonéale (IP) afin d'évaluer la virulence et BioImage de pneumocoques dans un modèle de sepsis infection de la souris. Utilisation de 5 x 10 3 CFU dans 100 ul de la souche D39 et 1 x 10 4 de la souche TIGR4. Souris ne sont pas anesthésiés en utilisant le routage IP.
- Inoculer les souris de contrôle avec du PBS.

Figure 1. Infection intranasale de souris CD-1 avec S. pneumoniae. Cliquez ici pour agrandir l'image .
3. Visualisation pneumocoque diffusion dans le poumon et sang en utilisant le système d'imagerie
La diffusion de l'image pneumocoques après infection par voie intranasale des souris CD1 femelles non consanguines en temps réel en utilisant un système d'imagerie in vivo dans.
- Allumez le système d'imagerie et lancer le logiciel d'analyse d'image situé sur l'ordinateur preconfigurated.
- Le système d'imagerie et initialise automatiquement la caméra CCD est refroidi thermoélectriquement à 90 ° C avant d'être actif.
- Les réglages et binning dépendent du nombre de souris mesuréen même temps et sur la puissance du signal de bioluminescence. Le champ de vision (FOV) pour surveiller la bioluminescence des animaux est variable et le grossissement varie entre un champ de vision de 22,5 cm pour mesurer cinq souris, et un champ de vision de 3,9 cm pour mesurer un simple clic ou parties de l'animal comme la poitrine ou la tête.
- Utilisez systématiquement un temps d'exposition de 1 min, un degré moyen de catégorisation, et un champ de vision de 22,5 cm (ensemble D). Tout d'abord, sélectionnez le mode d'imagerie de luminescence et puis définissez les paramètres d'imagerie.
- L'émission du signal peut dépendre de la souche bactérienne et de la souche de souris utilisée, et le pigment de la souris. Raser le thorax de la souris lors de l'utilisation, par exemple souris C57BL / 6, ce qui peut être avantageux lorsque l'imagerie du développement de la pneumonie chez ces souris.
- L'image des souris infectées à des intervalles de temps préalablement choisie. Mesurer la bioluminescence de la souris dans le modèle de pneumonie aiguë à des intervalles de temps de 8-12 heures au maximum. Surveillez aussi le bien-être des souris infectées par observing leur apparence, le comportement et la détermination de la perte de poids.
- Anesthésier les souris dans la chambre narcotique du système d'anesthésie de l'équipement de formation d'image avant que les mesures effectuées dans la chambre. Lancer inhalation d'un mélange d'isoflurane et de l'oxygène et attendre que les souris respirent lentement et régulièrement.
- Placer les animaux anesthésiés dans la chambre de formation d'image du système et conserver les souris dans la position couchée sur le dos. La caméra CCD sur le dessus de la chambre sera alors l'image de la voies respiratoires murin.
- Placez les animaux avec leur nez dans des tubes pour permettre l'inhalation des anesthésiques.
- L'isoflurane entrée dans la chambre de formation d'image par l'intermédiaire d'un tube à gaz est autorisé à maintenir une anesthésie.
- Pour activer la caméra CCD sur le dessus de la chambre et de commencer à l'imagerie optique de bioluminescence, appuyez sur "Acquire" dans le logiciel d'imagerie. Immédiatement une photographie de la souris dans la chambre fermée apparaît sur l'écran. Après une minute d' mesure d'une superposition des données de bioluminescence et la photo est affiché.
- Arrêtez l'anesthésie après la superposition d'image apparaît dans la fenêtre du logiciel et de mettre les souris de nouveau dans leurs cages.
- Les souris sont surveillés pour la récupération.
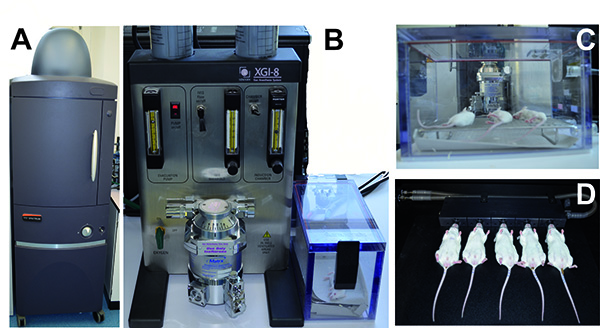
Figure 2. Anesthésie et la surveillance des souris infectées par des pneumocoques bioluminescente utilisant l'anesthésie IVIS et système IVIS du spectre, respectivement. A) Le système IVIS Spectre de formation d'image. B) Le système d'anesthésie IVIS avec la chambre d'incubation. C) de souris anesthésiées dans la chambre d'incubation . D) Souris situé dans la chambre d'imagerie IVIS spectre avec le nez inhalation de l'anesthésique._blank "> Cliquez ici pour agrandir l'image.
4. Quantification et l'évaluation de la bioluminescence des souris infectées avec des bioluminescentes S. pneumoniae
- Déterminer les intensités de bioluminescence des souris ou d'une région sélectionnée de la souris par la quantification de l'émission de photons totale (photons / seconde) en utilisant le logiciel d'analyse d'image.
- Utilisez les valeurs de l'émission de photons qui sont fournis dans une feuille de données Excel pour préparer un graphique. Depuis la variation des données est souvent élevé dans les souris groupés, générer un graphique boîte à moustaches pour voir les différences chez les souris infectées par les différentes souches de pneumocoques.
- Fournir les photons par souris ou encore les résultats que la moyenne de rayonnement (photons / sec / cm 2 / sr) d'une zone sélectionnée.
- Les données de mesure de ROI (région d'intérêt) en mode de photons peuvent être quantitativement comparés entre différents systèmes d'imagerie in vivo avec différents sont venusparamètres de ra, puisque les mesures en unités de rayonnement prennent automatiquement en compte les paramètres de l'appareil photo (par exemple le temps d'intégration, binning, f / arrêt, et le champ de vision).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
L'acquisition et l'utilisation de la méthionine est d'une importance centrale pour les pneumocoques pour se maintenir en forme dans leur créneau d'accueil 32,33. La méthionine transporteur ABC lipoprotéine est codé dans D39 par le SPD _ 0151 gènes (TIGR4: sp_0149) et nommé MetQ 32. Pneumocoques produire plus d'enzymes de biosynthèse de la méthionine (D39: Spd_0510 - Spd_0511; TIGR4 Sp_0585 - Sp_0586, Mete et METF). L'absence de méthionine dans un m...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Toutes les expériences menées sur des animaux doivent être approuvés par les autorités locales et les commissions d'éthique. Expériences in vivo d'infection dans la charge bactérienne dans les différents créneaux d'accueil des animaux infectés doit être déterminée à différents moments après l'infection. Dans ces conditions expérimentales, les animaux doivent être sacrifiés avant l'isolement des bactéries à partir du sang, du nasopharynx, lavage bronchoalvelar, ou d'organes...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n'ont rien à révéler.
Remerciements
La recherche dans le laboratoire a été financé par des subventions de la Deutsche Forschungsgemeinschaft (DFG HA 3125/3-2, 3125/4-2 DFG HA) et le ministère fédéral de l'Éducation et de la Recherche (BMBF) génomique d'infection médicale (FKZ 0315828A) à SH.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Bouillon Todd Hewitt | Carl Roth, Karlsruhe, Allemagne | X936.1 | ; |
| Extrait de levure | Carl Roth, Karlsruhe, Allemagne | 2363.2 | ; |
| Plaques de gélose au sang | Oxoid, Wesel, Allemagne | PB5039A | ; |
| Kanamycin | Carl Roth, Karlsruhe, Allemagne | T832.2 | ; |
| Érythromycine | Sigma-Aldrich,Taufkirchen, Allemagne | E6376 | ; |
| Sérum fœtal bovin (FBS) | Laboratoires PAA, Coelbe, Allemagne | A11-151 | ; |
| Souris CD-1, femelle | Charles River, Sulzfeld, Allemagne | CD1SIFE06W08W | souris CD-1 femelles, âgées de six à huit semaines |
| Ketamin 500 mg, Curamed solution injectable | Schwabe-Curamed, Karlsruhe, Allemagne | . | |
| Rompun 2 %, solution d’injection | Bayer Animal Health, Monheim, Allemagne | ; | |
| BD Plastipak 1 ml seringues | Becton Dickinson, Heidelberg, Allemagne | 300015 | seringues stériles Luer-Lok avec aiguille |
| Gel Loader Tips | PeqLab | 81-13790 | Mµ ; ltiFlex Tips |
| Hyaluronidase | Sigma-Aldrich | H3884-100mg | Hyaluronidase Type IV-S de Bovin |
| test Oxygen | Air Liquide, Dü ; sseldorf, Allemagne | M1001L50R2A001 | ; |
| Isoflurane | Baxter, Unterschleiß ; heim, Allemagne | ; | |
| pGEM-T Easy | Promega, Mannheim, Allemagne | ; | |
| Oligonucléotides ; | Eurofins MWG, Ebersberg, Allemagne | ; | |
| Qiaprep Spin Midiprep Kit ; | Qiagen, Hilden, Allemagne | 27104 | ; |
| Kit de purification d’ADN PCR | Qiagen, Hilden, Allemagne | 28106 | ; |
| Logiciel Living Image 4.1 | Caliper Life Sciences/PerkinElmer, Rodgau, Allemagne | ; | |
| XGI-8 Système d’anesthésie gazeuse | Caliper Life Sciences/PerkinElmer, Rodgau, Allemagne | ; | |
| Système d’imagerie spectrale IVIS·nbsp ; | Caliper Life Sciences/PerkinElmer, Rodgau, Allemagne | ; | |
| Biophotomètre | Eppendorf AG, Hambourg, Allemagne | ; |
Références
- Niederman, M. S., et al. Guidelines for the management of adults with community-acquired pneumonia. Diagnosis, assessment of severity, antimicrobial therapy, and prevention. Am. J. Respir. Crit. Care Med. 163, 1730-1754 (2001).
- WHO, The global burden of disease: 2004 update. World Health Organization. , (2008).
- Bogaert, D., et al. Colonisation by Streptococcus pneumoniae and Staphylococcus aureus in healthy children. Lancet. 363, 1871-1872 (2004).
- Gamez, G., Hammerschmidt, S. Combat pneumococcal infections: adhesins as candidates for protein-based vaccine development. Curr. Drug Targets. 13, 323-337 (2012).
- Mook-Kanamori, B. B., Geldhoff, M., vander Poll, T., Dvan de Beek, D. Pathogenesis and pathophysiology of pneumococcal meningitis. Clin. Microbiol. Rev. 24, 557-591 (2011).
- Musher, D. M. How contagious are common respiratory tract infections. N. Engl. J. Med. 348, 1256-1266 (2003).
- Brueggemann, A. B., Pai, R., Crook, D. W., Beall, B. Vaccine escape recombinants emerge after pneumococcal vaccination in the United States. PLoS Pathog. 3, (2007).
- Munoz-Almagro, C., et al. Emergence of invasive pneumococcal disease caused by nonvaccine serotypes in the era of 7-valent conjugate vaccine. Clin. Infect. Dis. 46, 174-182 (2008).
- Whitney, C. G. Impact of conjugate pneumococcal vaccines. Pediatr. Infect. Dis. J. 24, 729-730 (2005).
- Whitney, C. G., et al. Decline in invasive pneumococcal disease after the introduction of protein-polysaccharide conjugate vaccine. N. Engl. J. Med. 348, 1737-1746 (2003).
- Lynch, J. P. 3rd, Zhanel, G. G. Streptococcus pneumoniae: epidemiology and risk factors, evolution of antimicrobial resistance, and impact of vaccines. Curr. Opin. Pulm. Med. 16, 217-225 (2010).
- Singleton, R. J., et al. Invasive pneumococcal disease caused by nonvaccine serotypes among Alaska native children with high levels of 7-valent pneumococcal conjugate vaccine coverage. JAMA. 297, 1784-1792 (2007).
- Dockrell, D. H., Whyte, M. K., Mitchell, T. J. Pneumococcal pneumonia: mechanisms of infection and resolution. Chest. 142, 482-491 (2012).
- Lieberman, T. D., et al. Parallel bacterial evolution within multiple patients identifies candidate pathogenicity genes. Nat. Genet. 43, 1275-1280 (2011).
- Yang, J., Tauschek, M., Robins-Browne, R. M. Control of bacterial virulence by AraC-like regulators that respond to chemical signals. Trends Microbiol. 19, 128-135 (2011).
- Young, B. C., et al. Evolutionary dynamics of Staphylococcus aureus during progression from carriage to disease. Proc. Natl. Acad. Sci. U.S.A. 109, 4550-4555 (2012).
- Kadioglu, A., Weiser, J. N., Paton, J. C., Andrew, P. W. The role of Streptococcus pneumoniae virulence factors in host respiratory colonization and disease. Nat. Rev. Microbiol. 6, 288-301 (2008).
- Voss, S., Gamez, G., Hammerschmidt, S. Impact of pneumococcal microbial surface components recognizing adhesive matrix molecules on colonization. Mol. Oral Microbiol. 27, 246-256 (2012).
- Koppe, U., Suttorp, N., Opitz, B. Recognition of Streptococcus pneumoniae by the innate immune system. Cell. Microbiol. 14, 460-466 (2012).
- Paterson, G. K., Mitchell, T. J. Innate immunity and the pneumococcus. Microbiology. 152, 285-293 (2006).
- Gerber, J., et al. A mouse model of Streptococcus pneumoniae meningitis mimicking several features of human disease. Acta Neuropathol. 101, 499-508 (2001).
- Gingles, N. A., et al. Role of genetic resistance in invasive pneumococcal infection: identification and study of susceptibility and resistance in inbred mouse strains. Infect. Immun. 69, 426-434 (2001).
- Holmes, A. R., et al. The pavA gene of Streptococcus pneumoniae encodes a fibronectin-binding protein that is essential for virulence. Mol. Microbiol. 41, 1395-1408 (2001).
- Koedel, U., Klein, M., Pfister, H. W. New understandings on the pathophysiology of bacterial meningitis. Curr. Opin. Infect. Dis. 23, 217-223 (2010).
- Medina, E. Murine model of pneumococcal pneumonia. Methods Mol. Biol. 602, 405-410 (2010).
- Hartel, T., et al. Impact of glutamine transporters on pneumococcal fitness under infection-related conditions. Infect. Immun. 79, 44-58 (2011).
- Hermans, P. W., et al. The streptococcal lipoprotein rotamase A (SlrA) is a functional peptidyl-prolyl isomerase involved in pneumococcal colonization. J. Biol. Chem. 281, 968-976 (2006).
- Jensch, I., et al. PavB is a surface-exposed adhesin of Streptococcus pneumoniae contributing to nasopharyngeal colonization and airways infections. Mol. Microbiol. 77, 22-43 (2010).
- Kadioglu, A., et al. Pneumococcal protein PavA is important for nasopharyngeal carriage and development of sepsis. Mol. Oral Microbiol. 25, 50-60 (2010).
- Orihuela, C. J., Gao, G., Francis, K. P., Yu, J., Tuomanen, E. I. Tissue-specific contributions of pneumococcal virulence factors to pathogenesis. J. Infect. Dis. 190, 1661-1669 (2004).
- Francis, K. P., et al. Visualizing pneumococcal infections in the lungs of live mice using bioluminescent Streptococcus pneumoniae transformed with a novel gram-positive lux transposon. Infect. Immun. 69, 3350-3358 (2001).
- Basavanna, S., et al. The effects of methionine acquisition and synthesis on Streptococcus pneumoniae growth and virulence. PLoS One. 8, (2013).
- Hartel, T., et al. Characterization of central carbon metabolism of Streptococcus pneumoniae by isotopologue profiling. J. Biol. Chem. 287, 4260-4274 (2012).
- Hammerschmidt, S., et al. The host immune regulator factor H interacts via two contact sites with the PspC protein of Streptococcus pneumoniae and mediates adhesion to host epithelial cells. J. Immunol. 178, 5848-5858 (2007).
- Voss, S., et al. The choline-binding protein PspC of Streptococcus pneumoniae interacts with the C-terminal heparin-binding domain of vitronectin. J. Biol. Chem. , (2013).
- Cartwright, K. Pneumococcal disease in western Europe: burden of disease, antibiotic resistance and management. Eur. J. Pediatr. 161, 188-195 (2002).
- vander Linden, M., Al-Lahham, A., Nicklas, W., Reinert, R. R. Molecular characterization of pneumococcal isolates from pets and laboratory animals. PLoS One. 4, (2009).
- Brehm,, et al. Sequence of the adenine methylase gene of the Streptococcus faecalis plasmid pAM beta 1. Nucleic Acids Res. 15, 3177 (1987).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
