L’objectif de ce protocole est d’utiliser des titrages redox surveillés par résonance paramagnétique électronique (EPR) pour identifier différents cofacteurs de Saccharomyces cerevisiae Nar1. Les titrages redox offrent un moyen très robuste d’obtenir des potentiels médians de différents cofacteurs actifs redox dans les enzymes et les protéines.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
EPR surveillé Redox titrage des cofacteurs de
Dans cet article
Résumé
Résumé
Résonance paramagnétique électronique (RPE) surveillée titrages redox sont une méthode puissante pour déterminer le potentiel milieu de cofacteurs dans les protéines et d'identifier et de quantifier les cofacteurs dans leur état redox détectable.
La technique est complémentaire de l'électrochimie directe (voltamétrie) approche, car il ne offre pas d'informations sur les taux de transfert d'électrons, mais ne établit l'état des cofacteurs redox identité et dans la protéine à l'étude. La technique est largement applicable à ne importe quelle protéine contenant une résonance paramagnétique électronique (RPE) cofacteur détectable.
Un titrage typique nécessite 2 ml avec une concentration de protéine du cofacteur dans la plage de 1 à 100 uM. La protéine est titré avec un réducteur chimique (dithionite de sodium) ou l'oxydant (ferricyanure de potassium) pour poises l'échantillon à un certain potentiel. Un fil de platine et une électrode de référence Ag / AgCl sont reliés à un voltmètre pour mesurer le potentiel de la solution de protéine. Un ensemble de 13 médiateurs redox différentes est utilisé pour équilibrer entre les cofacteurs redox de la protéine et les électrodes. Les échantillons sont prélevés à différents potentiels et les spectres résonance paramagnétique électronique, caractéristiques pour les différents cofacteurs redox dans la protéine, sont mesurés. Le tracé de l'intensité du signal par rapport au potentiel de l'échantillon est analysée en utilisant l'équation de Nernst, afin de déterminer le potentiel du point milieu cofacteur.
Introduction
Il est frappant de constater que les procédés chimiques les plus fondamentaux maintien de la vie sur cette planète, la photosynthèse, fixation de l'azote et de la respiration, sont catalysées par de grands complexes de protéines contenant un large éventail de cofacteurs redox organiques et inorganiques. Il a été estimé qu'environ 30% de toutes les protéines contiennent un ou plusieurs cofacteurs métalliques. 1,2 Identifier et caractériser les cofacteurs redox peuvent être établies par électrochimie directe (par exemple, le film protéines voltamétrie) ou titrages redox. Les deux techniques sont complémentaires dans leur nature et leur applicabilité. Voltampérométrie propose détermination rapide du potentiel du point milieu et de la cinétique de transfert d'électrons de cofacteurs qui peuvent réagir avec une surface d'électrode. 3,4 Habituellement, cela fonctionne bien pour des protéines de transfert d'électrons, tels que le cytochrome c ou ferrédoxine. Et il fonctionne parfois pour des protéines plus complexes qui ont été immobilisés sur une surface d'électrode. La connaissance détaillée de lanature des cofacteurs dans la protéine doit être disponible, comme le voltamogramme ne donnera aucune information directe sur l'identité du cofacteur. Titrages redox sont plus laborieux à exécuter et exigent des quantités mg de protéine. Toutefois, ils fournissent des informations sur le potentiel point médian et l'identité du cofacteur. 5 En outre, dans un seul titrage plusieurs cofacteurs dans une protéine peuvent être contrôlées.
Le principe d'un titrage redox est que la protéine active redox ou une enzyme est chimiquement réduite ou oxydée. Afin de se assurer que les cofacteurs réagissent avec les médiateurs réducteur ou oxydant redox sont utilisés. Ces médiateurs redox réagissent également avec une électrode de sorte que le potentiel de la solution peut être mesurée. Les médiateurs agissent comme un tampon redox et se équilibrent entre les cofacteurs dans la protéine et l'électrode. Après chimiquement brandissant le potentiel à la valeur désirée, un échantillon est prélevé et rapidement congelés dans de l'azote liquide à AWAit une analyse plus approfondie des techniques spectroscopiques. Spectroscopie RPE est particulièrement utile à cet égard car il peut être utilisé pour mesurer quantitativement centres métalliques paramagnétiques ou des radicaux organiques.
Le titrage redox peut être effectué dans deux directions: de bas en haut ou de haut en bas potentiel milieu. Le choix dépend de la stabilité des cofacteurs l'étude. Souvent, il est sage de commencer à faible potentiel et ajouter oxydant par paliers successifs à augmenter le potentiel. Cela se appelle un titrage oxydatif et est décrite ici. Ici, nous montrons le titrage redox de l'amas fer-soufre contenant des protéines Nar1 de Saccharomyces cerevisiae. Cette protéine est impliquée, probablement une protéine d'échafaudage, dans le cytosolique fer-soufre pôle biosynthétique machines (CIA voie). 6,7
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1. Préparation de l'installation et Solutions
- Préparer la solution tampon contenant 100 mM de Tris, 250 mM de NaCl et 10% de glycerol à pH 8,5. Purger le tampon par rinçage avec de l'argon. Introduire le tampon dans une chambre anaérobie.
- Diviser le tampon en deux portions. Pour une partie (tampon A) ajouter 1 mM de DL-dithiothréitol (DTT, M 154,25 g / mol) et 1 mM de L-cystéine. L'autre partie (tampon B) ne contient pas d'agents de réduction.
- Préparer des solutions oxydantes et de réducteur. Ajouter 1 ml de solution de 2, 20 et 200 mM de ferricyanure de potassium (FIC, M 329,26 g / mol) et de dithionite de sodium (SD, M 174,11 g / mol) dans du tampon B. anaérobie
- Préparer médiateur mélange comme suit:
- Ajouter 160 uM de chacun des médiateurs redox suivants et 50 mM de NaCl au tampon B: N, N, N ', N' tétraméthyl-p-phenylendediamine (TMPD, M 237,17 g / mol, E '0 0,276 V) , 2,6-dichloro indophénol(DCIP, M 290,08 g / mol, E '0 0,217 V), l'éthosulfate de phénazine (PSE, M r 334,4 g / mol, E' 0 0,055 V), bleu de méthylène (M r 319,85 g / mol, E ' 0,011 0 V), résorufine (M r 235,17 g / mol, E '0 -0,051 V), Indigodisulphonate (M r 466,35 g / mol, E' 0 -0,125 V), le 2-hydroxy-1,4-naphtaquinone ( M r 174,15 g / mol, E '0 -0,145 V), d'anthraquinone-2-sulfonate (M r 328,28 g / mol, E' 0 -0,225 V), phénosafranine (M r 322,8 g / mol, E '0 -0,252 V), la safranine O (M r 350,84 g / mol, E '0 -0,280 V), rouge neutre (M r 288,8 g / mol, E' 0 -0,340 V), benzyl viologène (M r 409,4 g / mol, E '0 -0,350 V), et viologène de méthyle (M r 257,16 g / mol, E' 0 -0,440 V).
- Envelopper la bouteille dans une feuille d'aluminium pour protéger le médiateurs de la lumière.
- Préparer 10 mg / ml S. cerevisiae des protéines Nar1 angine marqués (181 uM, M r 55,2 kDa) dans le tampon A. express S. cerevisiae Nar1 dans E. coli en tant que protéine streptococcique marqués en utilisant un vecteur d'expression pET24a. Purifier la protéine dans une chambre anaérobie utilisant des milieux de chromatographie de Strep-Tactin (IBA) et on purifie en utilisant un système de purification de protéine comme purificateur Akta (GE Healthcare).
- Préparer la configuration redox de titrage dans une chambre anaérobie comme suit:
- Raccorder une électrode de référence Ag / AgCl et une électrode en fil de platine dans le récipient de titrage. Reliez les deux électrodes à un voltmètre qui peut mesurer des mV jusqu'à V.
- Insérez un petit barreau d'agitation.
- Placer le récipient de titrage ci-dessus d'un agitateur magnétique.
- Remplir le récipient de titrage avec du tampon B, médiateur solution de mélange et la solution de protéine à jusqu'à 2 ml, ce est à dire à des concentrations finales de protéine de 72 uM et 38 uM de chaquemédiateur. Remarque: en fonction de la concentration en protéine et le médiateur requis concentrations les quantités des trois solutions doit être ajusté.
- Agiter pendant 30 min et basculer sur le voltmètre.
- Préparer 10 propres tubes quartz EPR de verre. Introduire les tubes dans la chambre anaérobie.
- Remplir un petit (environ 200 ml) de Dewar d'azote liquide à l'azote liquide.
2. Effectuez titrage redox
- Attendez jusqu'à ce que le potentiel de la solution est stable. Note: Dans la pratique, cela signifie que le potentiel dérive inférieure à 1 mV par minute.
- Notez le potentiel donné par le voltmètre.
- Dessinez le premier échantillon de 200 pi et les injecter dans un tube EPR.
- Boucher le tube avec un bouchon en caoutchouc et retirer le tube de la chambre anaérobie.
- Congeler le tube dans l'azote liquide comme suit: Attention! Ceci doit être fait lentement, sinon le tube va se rompre.
- Insérez d'abord le tip du tube dans l'azote liquide.
- Attendez jusqu'à ce qu'un sifflement se fait entendre. Remarque: Cela peut prendre jusqu'à 10 secondes.
- Introduire lentement le reste du tube de telle sorte que la partie d'échantillon est complètement immergé.
- Ajouter une petite aliquote de 1 à 2 pi de la solution 2 mM SD à la solution dans le récipient de titrage pour abaisser le potentiel de la solution à -0,6 V.
Note: Si plus de 10 pi doit être ajoutée, passer à la solution 20 mM. Comme il est très difficile de Poise à une valeur potentielle spécifique, les valeurs réelles enregistrées sur le voltmètre sont écrites et utilisées pour construire la courbe de titrage. - Dessinez un échantillon tel que décrit dans l'étape 2.3 à 2.5.
- Notez le potentiel réel donné par le voltmètre.
- Ajouter oxydant jusqu'à ce que le potentiel a augmenté de circa 50 mV. Commencer par addition d'une petite quantité aliquote de 1 à 2 pi de la solution 2 mM FIC. Si plus de 10 pi doit être ajoutée, passer à la solution 20 mM.
- Notez how beaucoup des solutions a été ajoutée. Remarque: ce est nécessaire de corriger la dilution de l'échantillon au cours du titrage.
- Dessinez un échantillon tel que décrit dans les étapes 2.3 à 2.5.
- Notez le potentiel réel donné par le voltmètre.
- Répétez les étapes 2,9 et 2,12 jusqu'à ce que la gamme de potentiel de -0,6 V à 0,2 V a été couvert et tous les 10 tubes EPR sont remplis chacun avec 200 pi.
Remarque: Comme le volume avec chaque retrait est réduit le positionnement des électrodes peut être nécessaire d'ajuster avoir un bon contact avec la solution, sans ingérence de l'agitation. Il peut être difficile de mesurer le potentiel après retrait du dernier échantillon et donc le potentiel de cet échantillon peut être moins précise. - Eventuellement, stocker les échantillons congelés EPR dans l'azote liquide jusqu'à ce que les mesures EPR peuvent avoir lieu.
3. mesurer des échantillons de titration à l'aide EPR Spectroscopie et analyse des données
- EPR spectres rendu de la différenteéchantillons de titrage comme suit:
- Utilisation d'une pompe à vide poussé pour évacuer un cryostat à quartz à <10 -5 bar.
- Mettre sur le refroidissement de l'eau de l'aimant EPR. Ouvrez le débit d'air sec à travers la cavité EPR.
- Allumez l'alimentation de l'aimant et l'ordinateur de l'EPR.
- Exécuter un programme d'étalonnage de fréquence. Définissez les paramètres de mesure EPR. Branchez le cryostat à l'hélium liquide Dewar. Refroidir la cavité pour 9-16 K.
- Présentez l'échantillon EPR dans la cavité. Relever le spectre EPR.
- Identifier les différentes espèces EPR et d'utiliser le meilleur spectres de quantifier les signaux. Atteindre EPR quantification par double intégration des spectres et comparatif avec le spectre d'un cuivre externe solution standard mM CuSO 10 HCl 4/10 mM / 2 M NaClO 4. 8
- Faire la courbe de titrage comme suit:
- Tracer l'amplitude du signal EPR à un g-valeur qui est caractéristique de la paramagnétiques espèces d'intérêt par rapport au potentiel.
- Changez l'échelle de l'amplitude du signal EPR à un spins / échelle de la molécule en utilisant la quantification EPR de l'étape 3.2.
- Corriger l'amplitude du signal de chaque échantillon pour la dilution qui se est produit en raison des additions d'oxydant ou un agent réducteur.
- Corriger le potentiel du potentiel de l'électrode point médian de référence Ag / AgCl.
Remarque: L'électrode de référence Ag / AgCl (saturé avec KCl) a un potentiel médian de 0,194 V par rapport à l'électrode d'hydrogène standard (SHE) à 25 ° C. Par conséquent, si le potentiel sur le voltmètre indique environ -0,6 V, le potentiel par rapport à la SHE est -0,4 V.
- Monter le signal à l'équation de Nernst comme suit:
Pour une espèce qui est paramagnétique dans l'état réduit: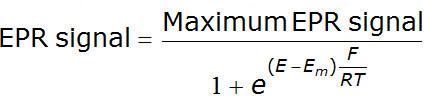
Pour une espèce paramagnétique dans l'oEtat xidized: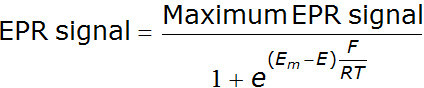
Pour une espèce qui est paramagnétique dans un état intermédiaire: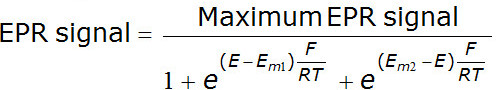
Ces équations sont valables pour des réactions d'oxydoréduction dans laquelle un électron est transféré, alors n = 1.
E = potentiel en Volts
E m = potentiel milieu en Volt
F = constante de Faraday = 96480 C · mol -1
R = constante des gaz = 8,314 J · K -1 · mol -1
T = Température en Kelvin
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Le titrage redox du cluster fer-soufre contenant des protéines Nar1 de Saccharomyces cerevisiae a abouti à l'identification de trois cofacteurs différents: Nar1: une grappe [3FE-4S], un centre [4Fe-4S] et un mononucléaires centre Fe (Figure 1) . Les signaux EPR sont caractérisés par leurs valeurs de g: pour la [3FE-4S] + g z 2,01, 2,00 g croisé (figure 1B); pour la [4Fe-4S] +, z g 2,02 g 1,93 y, x 1,82 g
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
La série de 13 médiateurs redox permet un équilibre redox dans la solution dans la gamme de -0,45 à 0,3 V par rapport à SHE (tableau 1 et figure 3). Bien au-dessus et en dessous de ces potentiels tous les médiateurs sont soit complètement réduits ou complètement oxydés et donc pas davantage l'équilibre redox avec les centres actifs de la protéine peuvent se produire. Ce est une notion importante, car parfois dans la littérature titrages redox sont effectuées avec seulement deux ou t...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs ne ont rien à divulguer.
Remerciements
Ce travail a été soutenu financièrement par une subvention de la combinaison études national de recherches néerlandais, Catalyse contrôlée par le design des produits chimiques (NRSC-catalyse) de la recherche. Dr HY Steensma et le Dr van Heusden GPH de l'Université de Leiden sont reconnus pour leur soutien à l'expression recombinante de S. cerevisiae Nar1.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Électrode de référence (Ag/AgCl) | Radiomètre | ||
| Chimie | Sigma-Aldrich | ||
| Spectromètre EPR | Bruker | ||
| N,N',N' -tétraméthyl-p-phénylendédiamine (TMPD) · ; (HCl)2 | 637-01-4 | ||
| 2,6-dichlorophénol indophénol (DCIP), sel | 620-45-1 | ||
| Éthosulfate de phénazine (PES) | 10510-77-7 | ||
| Bleu | 122965-43-9 | ||
| Résorufine, sel | 34994-50-8 | ||
| Indigodisulfonate (carmin d’indigo) | 860-22-0 | ||
| 2-hydroxy-1,4-naphtaquinone | 83-72-7 | ||
| Anthraquinone-2-sulfonate Na+ H2O | 153277-35-1 | ||
| Phénosafranine | 81-93-6 | ||
| Safranine O | 477-73-6 | ||
| Rouge | 553-24-2 | ||
| Benzyle viologène | 1102-19-8 | ||
| Méthyl viologène | 1910-42-5 |
Références
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
