Nous décrivons ici une méthode améliorée Transfert Luminescence Resonance Energy (LRET) où nous introduisons un site de clivage de protéase entre les sites de fluorophores donneur et accepteur. Cette modification permet d'obtenir des signaux de LRET spécifiques découlant de protéines membranaires d'intérêt, ce qui permet l'étude de protéines de la membrane sans la purification des protéines.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Luminescence Resonance Energy Transfer pour étudier les changements conformationnels dans des protéines membranaires exprimés dans les cellules de mammifères
Dans cet article
Résumé
Résumé
Transfert Luminescence Resonance Energy, ou LRET, est une technique puissante utilisée pour mesurer les distances entre deux sites dans les protéines dans la plage de distance de 10-100 Å. En mesurant les distances dans diverses conditions ligaturées, des changements conformationnels de la protéine peuvent être facilement évalués. Avec LRET, un lanthanide, le terbium plus souvent chélaté, est utilisé comme fluorophore donneur, offrant des avantages comme une durée de vie prolongée des donateurs seule émission, la possibilité d'utiliser plusieurs fluorophores accepteurs, et la possibilité de détecter sensibilisés émission accepteur comme un moyen facile pour mesurer le transfert d'énergie sans risque de détecter également le signal de donateurs seulement. Ici, nous décrivons une méthode pour utiliser LRET de protéines membranaires exprimés et testés sur la surface de cellules de mammifères intacts. Nous introduisons un site de clivage de protéase entre la paire de fluorophore LRET. Après l'obtention du signal d'origine LRET, le clivage en ce site élimine le signal de LRET spécifique de la protéine deintérêt qui nous permet de soustraire quantitativement le signal de fond qui reste après clivage. Cette méthode permet de plus physiologiquement mesures appropriées pour y être apportées sans la nécessité de purification de protéine.
Introduction
Transfert Luminescence Resonance Energy (LRET) est un dérivé de la technique 1 bien connu Fluorescence Resonance Energy Transfer (FRET). Similaires à FRET, LRET peut être utilisé pour mesurer les distances et les changements de distance entre les fluorophores donneur et accepteur attachés à des sites spécifiques sur la protéine d'intérêt dans la plage de 10 à 100 Å 3.1. Les principes de la LRET sont également similaires à FRET en ce que le transfert d'énergie de résonance se produit entre les deux fluorophores proximales quand le spectre d'émission du fluorophore donneur chevauche le spectre du fluorophore accepteur d'absorption. L'efficacité de ce transfert est liée à la distance entre les deux fluorophores par l'équation suivante:
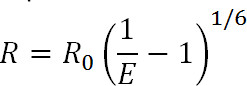 Eq. 1
où R est la distance entre les deux fluorophores, E est l'efficacité de salleéner- transfert, et R 0, discuté ci-dessous, est le rayon de Förster pour la paire de fluorophore, c'est à dire la distance à laquelle l'efficacité de transfert est semi-maximale. A partir de cette équation, on peut voir que l'efficacité est liée à la grandeur de la distance élevée à la puissance six inverse 1. C'est cette sixième dépendance de la puissance inverse qui permet de FRET et les mesures de lRet être extrêmement sensible, même à de faibles variations de distance quand près de la R 0 de la paire FRET. La capacité d'étiqueter les sites désirés sur des protéines ou d'autres macromolécules permet de prendre avantage de cette sensibilité pour surveiller les changements de conformation.
Par rapport à FRET, qui utilise des molécules classiques de colorants organiques, LRET offre des avantages supplémentaires. Dans LRET, au lieu d'utiliser un colorant organique comme le fluorophore donneur, un cation de la série des lanthanides, typiquement Tb 3 + ou Eu 3 +, on utilise 1,4-6. Fluorophores u tombentelon cette catégorie, par exemple, un chelate de terbium, sont également très polyvalent en ce qu 'ils peuvent être utilisés avec une large gamme de fluorophores accepteurs. Cette flexibilité est rendue possible parce que les spectres d'émission des lanthanides chélatés contient de multiples pics d'émission tranchants, ce qui permet une seule espèce de fluorophore donneur pour être utilisé avec une grande variété de fluorophores accepteurs. Ainsi, l'émission de l'accepteur sensibilisés peut être détectée sans aucune crainte de contamination purge par du donneur émission 5. L'expérimentateur choisit l'accepteur spécifique sur la base de la distance attendue entre les deux fluorophores (Figure 1 et Tableau 1). Dans ces fluorophores lanthanides chélatés, l'ion métallique est chélaté par une molécule qui contient un groupe d'antennes qui sensibilise le lanthanide normalement peu absorbant à l'excitation ainsi qu'un groupe fonctionnel bioréactif pour attacher l'ion à un groupe fonctionnel spécifique de la macromolécule 1, 5,6. Once excité, lanthanides se détendre à l'état du sol par la libération de photons avec un taux de décroissance de l'ordre de la milliseconde. Parce que la décroissance n'est ni une relaxation singulet à singlet ni un triplet de détente à singulet, l'émission de photons peut pas correctement être appelé fluorescence ou phosphorescence, mais il est plus correct appelé luminescence 1. La longue décadence de lanthanides luminescence contribue grandement à des mesures de durée de vie. Les mesures de durée de vie peuvent ensuite être utilisées pour déterminer l'efficacité par la relation suivante:
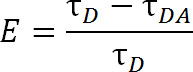 Eq. 2
où E est l'efficacité du transfert, τ D est la durée de vie du donneur (lanthanide chélaté) lorsque ne participant pas au transfert d'énergie, et τ DA est la durée de vie du donneur en participant à un transfert d'énergie de l'accepteur. Avec LRET, τ DA peut aldonc être mesurée par la durée de vie de l'émission de l'accepteur sensibilisés parce que la durée de vie de terbium est d'autant plus grande qu'un fluorophore accepteur organique. L'accepteur émet avec la même durée de vie que son incitation excitation (donneur lanthanides), et une contribution à la vie de la propre vie de fluorescence intrinsèque de l'accepteur est relativement négligeable. En mesurant l'émission sensibilisés plutôt que l'émission des bailleurs de fonds, nous éliminons également la nécessité de garantir un étiquetage exactement un ratio de 1: 1 de donneur à accepteur. Les protéines peuvent être étiquetés au lieu simultanément avec les deux accepteur et fluorophores donneurs. Une population hétérogène marqué va entraîner, mais protéines marquées double donateurs n'émettra pas dans la longueur d'onde de l'accepteur et protéines marquées double-accepteur ne sera pas excité. En outre, la distance entre fluorophores devrait être la même, quelle que soit la cystéine place un fluorophore donné attache à, en particulier lors de l'utilisation des lanthanides isotropes comme un donneur, de sorte que le need pour spécifier un site donné pour recevoir soit le donneur ou accepteur est inutile. Intensité peut être affectée avec une population hétérogène, mais doit encore être plus que suffisant pour être détecté.
Lors de la planification d'expériences, le choix des fluorophores doit être dicté par la valeur de R 0 de la paire ainsi que la plage de distance étant mesurée attendue. La valeur de R 0 est défini par l'équation suivante:
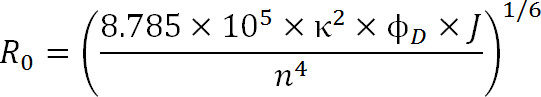 Eq. 3
où, R 0 est le rayon de Förster en angströms, κ 2 est le facteur d'orientation entre les deux colorants (généralement supposés être 2/3), φ D est le rendement quantique du donneur, J est le chevauchement spectral intégrale entre le donateur spectre d'émission et le spectre d'absorption de l'accepteur à M - 1cm -1 nm 4, et n est l'indice de réfraction du milieu 1.
Notre laboratoire a ajouté une modification de la technique de la LRET classique par introduction d'un site de reconnaissance de protéase entre les sites donneurs et accepteurs d'étiquettes sur la protéine est sondé. Cette modification permet d'investigation dans les systèmes non purifiés tels que les cellules de mammifères entiers 7. Cette technique est particulièrement utile lors de l'utilisation en tant que sites cystéines pour l'étiquetage, étant donné que dans le procédé de marquage avec des colorants de maléimide conjugués qui se lient à des groupes sulfhydryle de cystéine, d'autres protéines sur les cellules qui possèdent des résidus cysteine sont aussi marquées. Toutefois, en incluant des sites de clivage de la protéase de la protéine d'intérêt et la mesure des durées de vie avant et après clivage, l'expérimentateur peut quantitativement soustraire le signal d'arrière-plan après le clivage de la protéase à partir du signal brut. Cette soustraction isole le signal spécifique découlant de la protéine d'intérêt (figureure 2). Utilisation de la modification décrite ci-dessus, LRET peut être utilisé pour mesurer les changements de distance entre le donneur de chélate de terbium, et la sonde à un accepteur de la protéine, et ainsi de surveiller les changements de conformation de l'état physiologique à proximité de la protéine sans la nécessité d'une purification.

Figure 1.Le spectres d'absorption et d'émission de terbium chélaté en noir, ainsi que d'un accepteur représentant, Alexa 488, en rouge. Notez les multiples pics d'émission et la forte, la gamme d'émission étroit pour chaque pic de terbium chélate. Ce schéma permet de terbium à être utilisé avec une variété de fluorophores accepteurs et facilite la mesure de l'émission sensibilisée à l'intérieur de ces gammes, où le terbium montre pas d'émission. Le pic d'émission de terbium à 486 nm recouvre assez bien avec l'un bsorption pic de l'Alexa 488, ce qui permet un transfert d'énergie de résonance de se produire entre les deux fluorophores. Une longueur d'onde de 515 nm est un excellent choix pour détecter l'émission sensibilisée pour cette paire comme il est dans la vallée entre les pics d'émission de terbium, et tout près de Alexa 488 émissions pic de 520 nm. Notez que pour près de la pointe de l'accepteur, bien que souhaitable, n'est pas nécessaire-565 nm est encore capable de détecter Alexa 488 émissions sans détecter aussi terbium émission.
| Fluorophore accepteur | R 0 (Å) | longueur d'onde d'émission (nm) |
| Atto 465 | 36 | |
| Fluorescéine | 45 | 515 |
| Alexa 488 | 46 | 515 |
| Alexa 680 | 52 | 700 |
| Alexa 594 | 53 | 630 |
| Alexa 555 | 65 | 565 |
| 65 | 575 |
Tableau 1 La liste des fluorophores accepteurs couramment utilisés pour LRET utilisant terbium chélate comme donneur 11. Les valeurs de R 0 sont mesurées lorsque le donneur et accepteur sont liés au domaine de liaison de l'agoniste des récepteurs AMPA soluble. Il est idéal pour mesurer la valeur R 0 nouveau pour chaque nouveau système étudié.

Figure 2: Une vue d'ensemble de la méthode de propagation à longue distance présenté. (A) Le récepteur AMPA est une protéine de membrane qui subit des changements conformationnels sur liaison de ligand. Le ligand bi-coque en forme dedomaine nding est entouré ici en rouge. (B) Le domaine de liaison au ligand de l'AMPA lorsqu'il n'est pas lié à la protéine existe dans une conformation ouverte (à gauche). Lorsqu'il est lié à un ligand glutamate, la protéine se ferme autour de son ligand (à droite). En plaçant des fluorophores dans les sites probants sur le LBD, la nature de ce changement de conformation peut être considérée comme la distance entre les fluorophores modifications, qui seront ensuite affecter la durée de vie de fluorescence. (C) Lorsque des cellules entières d'étiquetage, de marquage à la fois la protéine d'intérêt ainsi que les protéines de la membrane de fond peut se produire (à gauche). Après clivage de la protéase, le signal LRET de la protéine d'intérêt va disparaître en raison de la libération d'un fragment soluble, laissant intact le signal de fond (à droite). Ce signal d'arrière-plan peut alors être soustraite du signal brut.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1 Créer la construction contenant la protéine d'intérêt
Cloner le gène exprimant la protéine d'intérêt dans un vecteur approprié. Utilisation des vecteurs tels que la série ou pcDNA pRK5 comme ils sont bien adaptés pour l'expression dans des systèmes de mammifères, comme les cellules HEK293 et CHO.
2 Sélectionnez les sites sur la protéine à être associés avec les fluorophores
- Choisir des sites d'étiquetage qui sont capables de réfléchir possibles changements conformationnels dans la protéine. Si possible, utiliser une structure cristalline de la protéine ou d'une protéine homologue pour aider à faire cette détermination. S'il n'y a pas de structure de cristal disponible, utiliser un logiciel en ligne pour prédire la structure possible de la protéine et donc de recevoir un aperçu des sites appropriés.
- Choisir les résidus tels que les chaînes latérales des résidus sont choisis surface exposée et accessible pour les fluorophores de sorte que la protéine peut être marquée.
- Choisir résidusne sont pas critiques pour la fonction des protéines, par exemple des sites qui ne sont pas impliquées dans la liaison du ligand.
- Dans l'introduction de la mutation de cysteine, donner la préférence à des sites qui sont similaires, par exemple la serine, qui pourraient causer une perturbation minimale de la structure de la protéine.
- Après avoir choisi les sites de marquage, faire des mutations de sorte que la protéine ne donne LRET destinés à partir de ces sites. Utiliser des protocoles de mutagenèse dirigée standard pour muter loin cystéines non-liaison disulfure qui pourraient se lier à maléimide conjugués des marqueurs fluorescents. Ne pas muter loin cystéines liaison disulfure et enterrés, cystéines libres, car ils ne doivent pas réagir avec des colorants fluorescents dans la forme repliée de la protéine.
- Introduire les résidus de cysteine dans les sites souhaités en faisant des mutations ponctuelles à l'aide de protocoles de mutagenèse dirigée standard.
- Inclure un site de clivage de la protéase qui peut cliver spécifiquement une des cystéines de la protéine. Si l'séquence protéique permet, d'introduire le site de la mutation conservative de la protéine à une thrombine (séquence de reconnaissance LVPRGS) ou le facteur Xa (IDGR de séquence de reconnaissance ou IEGR) à proximité de la séquence de cysteine introduit et accessible au clivage de la protéase; autrement la séquence tétra-ou hexa-peptide peut être introduit dans son ensemble. Choisir le site de telle sorte que lors du clivage de l'un des résidus cysteine introduits dissocie du reste de la protéine dans certains cas, cela peut nécessiter deux sites de clivage flanquant une cystéine mutée.
3 Testez l'expression et la fonctionnalité de la protéine
- Effectuer un transfert de Western pour confirmer l'expression de la protéine mutée.
- Effectuer un essai fonctionnel de la protéine de sorte que les mutations ont modifié la fonction de la protéine que très peu, voire pas du tout, d'éviter l'étude des changements conformationnels de la protéine dysfonctionnelle.
NOTE: Depuis toutes les protéines ont des fonctions différentes, il n'y a pas simple f test unctional qui est utilisé spécifiquement pour LRET; cependant, quelques exemples de dosages comprennent les dosages enzymatiques fonctionnelles d'activité pour des enzymes, des dosages de liaison de ligand pour des récepteurs, et des études électrophysiologiques de canaux ioniques.
4 Sélectionnez les fluorophores à être utilisé
Sélectionnez fluorophores sur la base de la plage de distance devrait être mesurés tels que la gamme se situe entre 0.5-1x la R 0 de la paire de fluorophore.
NOTE: Cela permet une soustraction plus facile de l'arrière-plan, ce qui a généralement beaucoup plus longues durées de vie. Par exemple, si la plage de distance attendue mesurée est d'environ 35 Å, une paire de fluorophore approprié d'utiliser serait chélate de terbium comme donneur et Alexa 594 comme accepteur, parce que le R 0 pour cette paire est de 53 Å (tableau 1).
5. exprimer la protéine par transitoirement transfection de la quantité requise de cellules de mammifères
ntent "> transfecter transitoirement la protéine d'intérêt dans les cellules de mammifères choisis à l'aide de l'un des réactifs de transfection communes Typiquement, utilisez quatre plats de 10 cm par expérience de propagation à longue distance pour les lignées cellulaires HEK et CHO;. Toutefois, ce montant peut varier en fonction de l'expression des protéines , la stabilité, etc. permettre aux cellules d'exprimer la protéine de 36 à 48 heures avant la récolte.6. Etiqueter les protéines
- Détacher les cellules de la boîte de culture. Détacher les cellules HEK par pipetage simplement tampon contre le fond de la boîte. Détacher les cellules CHO avec un racleur de cellules, de rincer les médias avec un tampon extracellulaire.
- Recueillir les cellules par centrifugation à 1 100 g pendant 3 min. Utilisez les mêmes paramètres de centrifugeuses pour la collecte de cellules après l'étiquetage, ainsi que, après les lavages suivants.
- Suspendre les cellules dans 3 ml de tampon extracellulaire, puis ajouter les fluorophores donneur et accepteur dans des quantités équimolaires jusqu'à une concentration finale de 100 à 300 nM. Incuber sur un agitateur fou 1 heure à température ambiante.
- Laver ces cellules marquées 3-4x avec un tampon extracellulaire de supprimer fluorophores non liés, puis suspendre ces cellules dans un tampon extracellulaire (généralement 2 ml) pour les mesures de lRet.
- Comme contrôle, identifier un ensemble séparé de cellules avec seulement fluorophore donneur (chélate de terbium) sans addition d'un quelconque fluorophore accepteur.
REMARQUE: Les données de ces expériences donateurs seule est nécessaire de compléter l'analyse. Ces expériences peuvent être réalisées sur les mêmes ou différents jours. - Encore une fois, procéder à la validation fonctionnelle, cette fois avec la protéine mutante marqué, comme le processus d'étiquetage peut également interférer avec la fonction selon le site utilisé pour le marquage.
NOTE: Ces expériences peuvent être réalisées sur les mêmes ou différents jours.
7 Mettre en place l'expérience de propagation à longue distance
- Placer les cellules remises en suspension dans une cuve en quartz avec un volume minimum de 1 ml.
- Allumez l'ordinateur et l'instrument et régler les paramètres de la datun programme d'acquisition en conséquence.
- Régler la longueur d'onde d'excitation de la gamme d'absorption du fluorophore donneur (330-340 nm fonctionne bien pour chélate de terbium).
- Réglez la longueur d'onde d'émission de façon appropriée, en gardant à l'esprit que l'émission de l'accepteur varie en fonction de l'accepteur utilisé. Surtout, sélectionnez une longueur d'onde de détection qui ne mesure que l'émission de l'accepteur et n'inclut aucune purge travers de l'émission du donneur. Par exemple, utiliser une longueur d'onde de 565 nm pour Alexa 555 comme accepteur Tableau 1. Pour les mesures de donateurs seule, dans laquelle la protéine a été marquée uniquement par le donneur, mais sans accepteur, utiliser une longueur d'onde de 545 nm pour la mesure de terbium chélate émission.
- Réglez la longueur de la détection d'émission soit au moins trois fois la durée de vie de LRET attendu à ce que des mesures à long durée de vie ne sera pas manquée.
- Effectuer l'analyse. Ne au moins trois scans de 99 balayages pour assurer la cohérence des résultats. Enregistrer eRésultats de la e sous forme de fichier texte (* txt).
- Pour mesurer les changements de conformation d'une protéine à l'égard de différentes conditions (comme l'ajout d'un ligand), modifier ces conditions et effectuer à nouveau au moins trois scans de 99 balayages chacun sur le même échantillon dans cette nouvelle condition. Si l'étude des effets du glutamate sur la conformation des récepteurs du glutamate, par exemple, ajouter glutamate à 1 mM dans le même échantillon numérisé à l'étape 7.3, puis relancez la numérisation.
- Ajouter jusqu'à cinq unités de la protéase appropriée et prendre analyses continuellement jusqu'à ce que le clivage est terminée et aucun autre changement est vu dans la vie de trois balayages successifs. Habituellement, le clivage est complet en deux à trois heures. Si un Xa site de clivage du facteur est utilisé pour clivage de la protéase, par exemple, ajouter 3 pi de facteur Xa à l'échantillon, et de numériser toutes les 30 minutes pendant 3 heures.
8 Analyser les données obtenues
- Ouvrir le logiciel d'analyse de données.
- Chargez la durée de vie de fluorescencedonnées à l'aide d'importation ASCII pour ouvrir les fichiers texte. Charger toutes les répétitions ainsi que les dernières mesures de fond, en un seul fichier.
- La moyenne des données de toutes les analyses pour chaque condition expérimentale pour obtenir les données finales. Pour ce faire, sélectionnez les colonnes qui contiennent les essais individuels, puis sous le menu Données dans la barre de menu, cliquez sur Statistiques sur les lignes pour afficher les intensités moyennes de fluorescence des essais, ainsi que l'écart type et l'erreur-type.
- Tracer les valeurs moyennes en tant que graphique linéaire avec l'intensité de fluorescence sur l'axe des ordonnées et la durée de vie en microsecondes sur l'axe des X pour créer une courbe qui représente la durée de vie de l'émission sensibilisée de l'accepteur. Changer l'axe Y de la parcelle à une échelle logarithmique, pour permettre une meilleure visualisation des données.
- Répétez l'étape 8.3 sur les données de mesure de référence, la moyenne des balayages finaux qui montrent un chevauchement indiquant le clivage complet.
- Afficher les données de base sur la moyennemême parcelle qui contient les données brutes en moyenne. Pour ce faire, ouvrez la boîte de dialogue Contrôle des couches se trouve sous le menu Plot. Ensuite, transférez les données contenant le fond signifie dans la liste des matières de la couche.
- Alignez les données de base moyenne des données brutes moyennes. Pour ce faire, utilisez la fonction mathématique simple dans le menu Math pour multiplier ou diviser les données de base selon les besoins jusqu'à la fin de la queue de l'arrière-plan se superpose à la fin de la queue des données brutes.
NOTE: En cette fin de queue, la durée de vie de la protéine d'intérêt aurait déjà complètement décru à; ce qui est alignée sur le fond est simplement le signal présent à la fois avant et après clivage par la protéase. - Soustraire le signal de fond aligné à partir du signal initial de LRET brut, de nouveau en utilisant la fonction mathématique simple.
- Monter les données à une décroissance exponentielle (exponentielles simples ou multiples, selon les sites et la conception expérimentale).
- Réglez la limite de début de mise en place pour commencer après la finde l'impulsion laser. Utilisez cette même startpoint pour tous les accessoires de la courbe ultérieures.
- Dans la boîte de dialogue de fonction d'ajustement Choisir, sélectionnez décroissance exponentielle de manière à s'adapter à la vie à l'équation suivante pour une seule décroissance exponentielle:
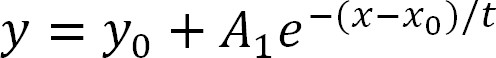 Eq. 4
où y représente l'intensité de fluorescence, y 0 représente l'intensité d'arrière-plan en raison du bruit du système, A 1 est l'intensité du signal, t est la durée de vie de fluorescence, x est le temps, et x 0 est le décalage de temps. - Fixer X 0 à 0, commencer la fonction d'ajustement, et ajuster les données.
REMARQUE: Si l'expérience est conçue pour avoir uniquement des signaux provenant d'une paire de sites, les données obtenues devraient facilement être adapté par une seule décroissance exponentielle 8. Le résidu de l'ajustement est une bonne méthode pour déterminer la qualité de l'ajustement et si la durée de vie de décroissance supplémentaires sont requiréd.
- Utiliser les durées de vie obtenues à partir des données pour calculer la distance entre les fluorophores à l'aide de l'équation de Förster (un réarrangement des équations 1 et 2 ci-dessus):
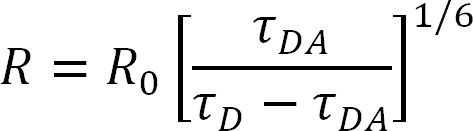 Eq. 5
NOTE: Toutes les variables sont comme mentionné ci-dessus avec τ DA ayant été mesurée comme la durée de vie accepteur d'émission sensibilisée. De plus amples détails et des exemples sur les mesures de R 0 et R peuvent être trouvés ailleurs 7,9,10. - Recommencer l'expérience et l'analyse de données d'au moins trois fois pour assurer la reproductibilité. Incohérence entre les répétitions individuelles de la même mesure remet en question la validité des données; utiliser des expériences de contrôle supplémentaires ou des répétitions. Calculer les erreurs de mesure grâce à la connexion Gustave analyse d'erreur calculatrice (mis au point par le Dr Thomas Huber) ou un système similaire qui se propage l'erreur dans lecrises de la vie.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Une mesure de la LRET succès avec un donneur de lanthanide doit avoir une durée de vie que donneur dans la plage de temps en millisecondes. La durée de vie d'émission de LRET sensibilisée pour la protéine marqué avec le donneur et l'accepteur seront notablement plus courte, avec une durée de vie de l'ordre de la microseconde après soustraction de fond Figure 3. Protéase résultats de clivage par une augmentation de la durée de vie qui doit devenir stable dans le temps ( c'est à dire plus le chan...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
LRET est une technique puissante qui permet aux scientifiques de mesurer des distances entre des domaines au sein d'une seule protéine, ainsi qu'entre les sous-unités d'une protéine multimérique. En tant que tel, LRET est bien adapté à l'examen des changements de conformation et la dynamique des protéines ou d'autres macromolécules. Le protocole ci-dessus devrait permettre au laboratoire bien équipé pour tester facilement leurs hypothèses; Cependant, il existe de nombreuses sources d'erreurs qui ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n'ont rien à divulguer.
Remerciements
Ce travail a été financé par les Instituts nationaux de la santé Grant GM094246, l'American Heart Association Grant 11GRNT7890004, et la National Science Foundation Grant MCB-1110501.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| LanthaScreen Thiol Reactive Tb Chelate | Life Technologies | PV3579 | |
| Accepteur fluorophore-Fluorescéine-5-Maléimide | Life Technologies ; | F-150 | Le choix de l’accepteur dépend de l’expérience spécifique |
| Accepteur fluorophore-Alexa Fluor 488 C5 Maleimide | Life Technologies ; | A-10254 | Le choix de l’accepteur dépend de l’expérience spécifique |
| Accepteur fluorophore-Alexa Fluor 555 C2 Maleimide | Life Technologies ; | A-20346 | Le choix de l’accepteur dépend de l’expérience spécifique |
| Accepteur fluorophore-Alexa Fluor 594 C5 Maleimide | Life Technologies ; | A-10256 | Le choix de l’accepteur dépend de l’expérience spécifique |
| Accepteur fluorophore-Alexa Fluor 680 C2 Maleimide | Life Technologies ; | A-20344 | Le choix de l’accepteur dépend de l’expérience spécifique Le |
| QuantaMaster 3-SS | Photon Technology | doit avoir une excitation pulsée avec la capacité de mesurer les durées de vie dans la gamme des millisecondes | |
| FluoreScan 2.0 | Photon Technology International | Data Acquisition Software utilisé dans le manuscrit. Logiciel fourni avec l’instrument de fluorescence | |
| Origin 8.6 | OriginLab | Origin est le logiciel d’analyse de données utilisé dans le protocole. Peut utiliser d’autres logiciels d’analyse de données similaires | |
| Cuvette à quartz | Starna Cells, Inc | 3-Q-10 | |
| Stir bar ; | Produits Bel-Art | F37119-0007 | Utilisé en cuvette pour maintenir les cellules en suspension. Peut utiliser n’importe quelle barre d’agitation qui s’adapte à la cuvette |
Références
- Selvin, P. R. Principles and biophysical applications of lanthanide-based probes. Annual Review of Biophysics and Biomolecular Structure. 31, 275-302 (2002).
- Stryer, L., Haugland, R. P. Energy transfer: a spectroscopic ruler. Proceedings of the National Academy of Sciences of the United States of America. 58, 719-726 (1967).
- Stryer, L. Fluorescence energy transfer as a spectroscopic ruler. Annual Review of Biochemistry. 47, 819-846 (1978).
- Selvin, P. R., Hearst, J. E. Luminescence energy transfer using a terbium chelate: improvements on fluorescence energy transfer. Proceedings of the National Academy of Sciences of the United States of America. 91, 10024-10028 (1994).
- Chen, J., Selvin, P. R. Thiol-reactive luminescent chelates of terbium and europium. Bioconjugate Chemistry. 10, 311-315 (1999).
- Ge, P., Selvin, P. R. Thiol-reactive luminescent lanthanide chelates: part 2. Bioconjugate Chemistry. 14, 870-876 (2003).
- Gonzalez, J., Rambhadran, A., Du, M., Jayaraman, V. LRET investigations of conformational changes in the ligand binding domain of a functional AMPA receptor. Biochemistry. 47, 10027-10032 (2008).
- Ramaswamy, S. S., Maclean, D. M., Gorfe, A. A., Jayaraman, V. Proton mediated conformational changes in an Acid Sensing Ion Channel. J. Bio. Chem. 288, (2013).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Conformational changes at the agonist binding domain of the N-methyl-D-aspartic acid receptor. The Journal of Biological Chemistry. 286, 16953-16957 (2011).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Subunit arrangement in N-methyl-D-aspartate (NMDA) receptors. The Journal of Biological Chemistry. 285, 15296-15301 (2010).
- Kokko, T., Kokko, L., Soukka, T. Terbium(III) chelate as an efficient donor for multiple-wavelength fluorescent acceptors. Journal of Fluorescence. 19, 159-164 (2009).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
