L’enregistrement des courants Ca2+ au niveau de la membrane frontale de libération présynaptique est essentiel à une compréhension précise de l’entrée de Ca2+ et de la libération des neurotransmetteurs. Nous présentons une dissociation aiguë de la moelle épinière de la lamproie qui produit des axones réticulospinaux isolés fonctionnels, permettant l’enregistrement directement à partir de la membrane frontale de libération des terminaisons présynaptiques individuelles.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Aiguë de dissociation de la lamproie réticulo axones pour permettre l'enregistrement de la sortie de visage membrane des terminaux présynaptiques fonctionnels individuels
Dans cet article
Résumé
Résumé
La transmission synaptique est un processus extrêmement rapide. potentiel d'action entraînée afflux de Ca2 + dans la terminaison présynaptique, à travers les canaux calciques voltage-dépendants (VGCCs) situés dans la membrane de la face de sortie, est le déclencheur de la fusion des vésicules et la libération de neurotransmetteurs. Cruciale pour la rapidité de la transmission synaptique est la synchronisation spatiale et temporelle entre l'arrivée du potentiel d'action, VGCCs et le mécanisme de libération de neurotransmetteur. La possibilité d'enregistrer directement des courants Ca2 + de la membrane de presse du visage de terminaux présynaptiques individuels est indispensable pour une compréhension précise de la relation entre présynaptique Ca2 + et la libération de neurotransmetteurs. L'accès à la membrane libération présynaptique visage pour l'enregistrement électrophysiologique n'est pas disponible dans la plupart des préparations et Ca 2 + présynaptique entrée a été caractérisé en utilisant des techniques d'imagerie et MeasureMe courant macroscopiquents - techniques qui n'ont pas une résolution temporelle suffisante pour visualiser Ca l'entrée. La caractérisation de VGCCs directement à terminaisons présynaptiques simples n'a pas été possible dans les synapses centrales et a jusqu'ici été atteint avec succès que dans la synapse de type calice du ganglion ciliaire poussin et dans les calices de rat. Nous avons abordé ce problème avec succès dans la synapse réticulo géant de la lamproie de la moelle épinière par le développement d'une préparation très dissociés de la moelle épinière qui donne axones réticulospinaux isolés avec des terminaux présynaptiques fonctionnelles dépourvues de structures post-synaptiques. Nous pouvons fluorescence étiqueter et identifier les terminaux présynaptiques individuels et les cibler pour l'enregistrement. Utilisation de cette préparation, nous avons caractérisé VGCCs directement à la face de sortie de terminaux présynaptiques individuels en utilisant l'immunohistochimie et d'électrophysiologie approches. Ca2 + courants ont été enregistrés directement à la libération visage membrane oterminaisons présynaptiques individuels f, le premier enregistrement à effectuer au niveau des synapses centrales.
Introduction
La transmission synaptique est un processus extrêmement rapide et précise. Action éventuelle invasion de la terminaison présynaptique conduit à l'ouverture de VGCCs situés dans la membrane de presse du visage, l'augmentation résultante présynaptique Ca2 + agissant comme déclencheur pour la fusion des vésicules et la libération de neurotransmetteurs 1. Toutes ces étapes se produisent dans des centaines de microsecondes 2, et donc nécessitent un couplage spatial serré de VGCCs à la fusion des vésicules machines 3. Présynaptiques flux de Ca2 + ont été caractérisées principalement par imagerie approches utilisant des colorants sensibles 4 de Ca. L'incorporation de Ca2 + tampons qui modulent Ca2 + dans les neurones présynaptiques a été utilisée pour caractériser la relation entre indirectement calcium présynaptique et la neurotransmission 3. En outre, la modulation de la concentration de Ca2 + libre présynaptique par uncaging Ca2 + 5 ou enregistrement macroscopic courants de Ca2 + ont été utilisés en conjonction avec les mesures de fusion et / ou la libération des vésicules; telles que les mesures de capacité 6 ou post-synaptiques réponses 2 pour répondre à la même question. Cependant, la caractérisation de Ca2 + courants directement à la face de sortie, la section spécialisée de la membrane présynaptique où dépolarisation de la membrane est traduit en Ca2 + courants de déclenchement fusion des vésicules synaptiques et la libération de neurotransmetteurs, fait partie intégrante de l'obtention d'une mesure précise de la Ca2 + exigence de fusion des vésicules synaptiques. En outre, la capacité à caractériser directement Ca2 + courants à terminaisons présynaptiques individuels, couplé permet avec des mesures simultanées précises de la fusion des vésicules et la libération d'une explication précise de la relation de synchronisation entre l'évolution dans le temps du potentiel d'action, présynaptique Ca2 courant, la fusion des vésicules et la libération. L'accès à la membrane de presse de visagen'est pas disponible dans la plupart des terminaisons présynaptiques en raison de fermer l'apposition par les dendrites post-synaptiques. Cette inaccessibilité a été un obstacle majeur dans la caractérisation des VGCCs car elle empêche des mesures directes de courant dans les terminaux présynaptiques individuels. La caractérisation directe de présynaptiques Ca2 + courants dans les terminaux présynaptiques individuels a donc pas été possible dans les synapses centrales et n'a été atteint que dans deux terminaux présynaptiques de type calyceal; calice de type synaptique des poussin ganglion ciliaire 7-10 et rat calices 11,12. Dans tous les autres terminaux présynaptiques dont la synapse réticulo géant dans la lamproie moelle épinière 13, le manque d'accès à la membrane libération présynaptique visage a nécessité l'utilisation d'approches indirectes telles que Ca de l'imagerie pour étudier présynaptiques flux de Ca2 +.
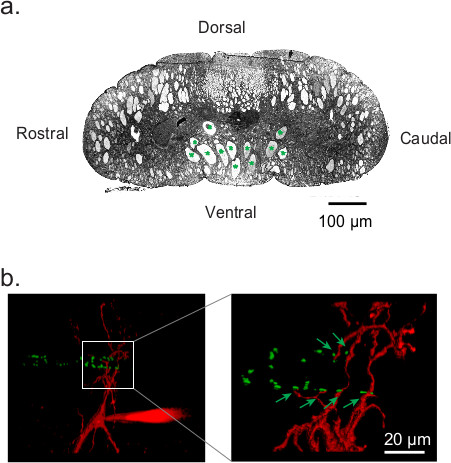 Figure 1 lamproie géante synapse réticulo. (A) Section de la lamproie de la moelle épinière pour indiquer l'orientation dorso-ventral. Axones réticulospinaux sont marqués avec astérisque vert. (B) la reconstruction 3-D de la synapse réticulo dans la lamproie moelle épinière montrant axone présynaptique réticulo faire de nombreux contacts en d'Passant (indiqués par des flèches vertes) sur le neurone post-synaptique 13. Terminaisons présynaptiques ont été marquées avec Alexa Fluor 488 hydrazide phalloïdine conjuguée (vert), alors que le neurone post-synaptique a été rempli avec Alexa Fluor 568 hydrazide (rouge).
Lamproie géants axones réticulospinaux, situés dans la région ventrale de la moelle épinière parallèle à la rostrale-caudale axe Figure 1a, forme multiple en contacts synaptiques sur les neurones Passant de lacorne ventrale de la moelle 14 Figure 1b 13. Cellules entières macroscopique Ca2 + courants ont été enregistrés à partir des axones réticulospinaux dans la moelle épinière intacte 13,15. Cependant, les tentatives précédentes aveugles à la mesure directe de Ca2 + courants dans les axones réticulospinaux à la lamproie moelle épinière intacte en utilisant la technique de patch-clamp cellule attachée se sont révélées inefficaces 13 en raison du manque d'accès à la membrane libération présynaptique de visage grâce à des processus post-synaptiques opposées Figure 1b. La membrane de la face de presse a été préalablement rendu accessible en enlevant le neurone post-synaptique 11, la perturbation mécanique de la synapse 12 avant l'enregistrement ou le traitement enzymatique associée à la dissociation mécanique 16. Compte tenu de l'organisation complexe de la moelle épinière, il s'avérerait extrêmement difficile d'identifier le neurone post-synaptique et retirer mécaniquement ou perturber ee synapse. Par conséquent, nous avons décidé d'utiliser un traitement enzymatique 17 suivie par dissociation mécanique.
En utilisant cette approche, nous avons développé une préparation très dissociés de la lamproie de la moelle épinière qui donne viables axones réticulospinaux isolés avec des terminaux présynaptiques fonctionnelles dépourvues de tout processus post-synaptiques, fournissant ainsi un accès illimité aux terminaisons présynaptiques individuels. En collaboration avec un microscope standard inversé et l'imagerie de fluorescence, il nous permet d'identifier et de cibler les terminaux présynaptiques par fluorescence identifié individuels, avec une pipette de patch contenant une solution d'enregistrement qui isole Ca2 + courants figure 4C et la figure 4d, pour l'enregistrement en utilisant Cell- attaché technique voltage-clamp. Ca2 + courants ont été enregistrés directement sur la membrane de presse du visage présynaptique des terminaisons présynaptiques individu Figure 4f. Il s'agit d'une significant percée dans le domaine de la transmission synaptique, car il est le premier enregistrement à effectuer au niveau des synapses centrales.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1 Préparation de la poly-D-lysine de bromhydrate
- Préparer 1 mg / ml de bromhydrate de poly-D-lysine dans 0,1 M de tampon borate (pH 8,5).
- Aliquote et conserver à -20 ° C.
Revêtement 2 Poly-lysine de Lamelles
Remarque: effectuer toutes les étapes de nettoyage et de revêtement dans une chambre à flux laminaire.
- La place des lamelles dans une boîte de Pétri contenant acide chlorhydrique 1 N (HCl) pendant 2 heures.
- Aspirer HCl et rincer à l'éthanol à 70% (EtOH) 2-3x.
- Laisser EtOH à 70% pendant 1 heure.
- Aspirer EtOH à 70% et rincer à 100% EtOH 2-3x.
- Laisser EtOH à 100% pendant 2 heures. Aspirer tout EtOH.
- Sécher avec du papier filtre et l'air sec pendant quelques secondes.
- Lieu O N en 1 mg ml de solution / / poly-lysine.
- Rincer lamelles de lendemain avec Millipore 4-5x de l'eau.
- Air poly-lysine sec revêtu lamelles sur des rouleaux de verre dans une boîte de Petri propre.
- Pour immunohistochemistry, utiliser 35 x 10 mm boîte de Petri couvercles. Préparer Sylgard (polydimethylsilioxane, PDMS) bordée plats en versant PDMS (élastomère et de l'agent de durcissement 10: 1 en poids) dans le plat à une épaisseur de 0,3 cm et laisser reposer à 30 ° CO / N. Une fois que cela a pris, coupez les en 2 cm par 1 cm incrustés dans les PDMS. Nettoyer et enduire le médaillon de poly-lysine suivant les mêmes étapes comme mentionné ci-dessus pour lamelles.
- Magasin lamelles et des plats revêtus de poly-lysine couverts à l'intérieur de la chambre à flux laminaire jusqu'à utilisation (jusqu'à 2 semaines, mais d'atteindre de meilleurs résultats adhésives en préparant régulièrement tous les 3-4 jours).
- Préparer un bloc de PDMS, de la broche de la moelle épinière dans le trancheur de tissu vibrant. Mélange élastomère et un élastomère B de 1: 1 en poids. Verser dans un plat de 100 x 15 mm Petri et laisser reposer O / N à 30 ° C. Coupez un morceau rectangulaire des PMDS et il colle à la plaque de base de tranchage en utilisant de la colle époxy. Laisser sécher la colle fixant les PDMS en place et couper plusieurs sections minces à la surface pour obtenir un platsurface à la broche sur le tissu.
3. aiguë dissociation de la lamproie de la moelle épinière à un rendement isolé axones réticulo
- Anesthésier un ammoecoete ou adulte lamproie (Petromyzon marinus) avec tricaïne méthanesulfonate (MS-222; 100 mg / L). Ajouter anesthésique dans l'eau, dans un gobelet en plastique recouvert par un couvercle, contenant la lamproie à être sacrifié.
- Décapiter lamproie dans le froid (4 ° C) de la solution de Ringer de la composition suivante (en mM): 130 NaCl, 2,1 KCl, 2,6 CaCl2, 1,8 MgCl 2, 4 HEPES, 4 dextrose (pH 7,6, l'osmolarité de 270 mOsm) et retirer le corps muscles de la paroi afin d'exposer la surface dorsale de la moelle épinière.
- Retirer méninges primitiva de la face dorsale de la moelle épinière à l'aide de pinces fines. Ne retirez pas ventrale méninges primitiva à ce stade.
- Couper la moelle épinière dans 1 cm de long morceaux.
- Epingler un morceau de la moelle épinière à l'aide de fines broches insectes, face dorsale vers le haut, sur un PDMS bordée trancher pla de basete (voir 2.12) dans une chambre de trancheuse de tissu vibrant contenant la solution de Ringer glacée.
- Retirer une partie centrale de la colonne dorsale de la moelle épinière par découpage le long de l'axe rostro-caudal de la lame, laissant les sections intactes de la colonne dorsale de la rostrale et caudale extrémités pour servir de poignées pendant le processus de dissociation figure 2a et la figure 2b. Utilisez le plus lent réglage de la vitesse qui permet le découpage et un réglage de la profondeur qui élimine seulement la colonne dorsale de quitter le sous-jacent colonne axone réticulo Figure 2b en bon état.
- Incuber tranches pièces de la moelle épinière à la température ambiante pendant 45 min dans un cocktail de 1 mg / protéase ml (type XIV de Streptomyces griseus) et 1 mg / ml de collagénase préparé (type IA de Clostridium histolyticum) dans la solution de Ringer (adapté de El Manira & Bussières 1997 17).
- Pièces de la moelle épinière Pin enzyme traitée à l'aide de broches fines dans un PDMS alignés boîte de Petri containing froid (4 ° C) la solution de Ringer.
- Retirer ventrale méninges primitiva avec des pinces fines.
- Couper les secteurs latéraux de la moelle épinière avec une lame de scalpel au milieu de la partie dorsale en tranches quittant la colonne centrale des axones intacts réticulo dans la moelle épinière figure 2d.
- Déposer une goutte d'huile d'immersion sur la lentille.
- Placer la lamelle de poly-lysine recouvert (figure 3a, la pièce supérieure, rectangle rouge) dans la fente de la chambre d'enregistrement Figure 3 et appliquer de la graisse à vide à tous les bords (espace entre les rectangles rouge et bleu sur la figure 3a, pour faciliter un joint d'étanchéité. Vis le haut en place. Placer la chambre dans l'encart sur la plate-forme d'enregistrement.
- Ajouter la solution de Ringer dans la chambre d'enregistrement en utilisant une pipette Pasteur.
- Raccorder le tuyau d'écoulement de sortie de la bouteille sous pression contenant une solution antigel à la tubulure d'entrée du dispositif de refroidissement thermoélectrique. Connectez le output tube du dispositif de refroidissement thermoélectrique à l'extrémité d'entrée de la chemise de refroidissement externe et l'extrémité de sortie du réservoir de la figure 3b.
- Placer un morceau de la moelle épinière à la fois dans la chambre d'enregistrement et séparer en douceur le maintien de la moelle épinière le long de la lamelle couvre-objet à tout moment à l'aide de pinces recouvertes de téflon sont isolés jusqu'à ce que les axones figure 2e et 2f figure.
- Amener la température de la solution d'enregistrement à 10 ° C par passage de la pression (de l'azote gazeux est repoussé dans le flacon) solution antigel (par déplacement), par l'intermédiaire du dispositif de refroidissement thermoélectrique, à travers la chemise de refroidissement externe de la chambre d'enregistrement figure 3b.
- Autoriser les axones de récupérer pendant 1 heure après la dissociation à 10 ° C.
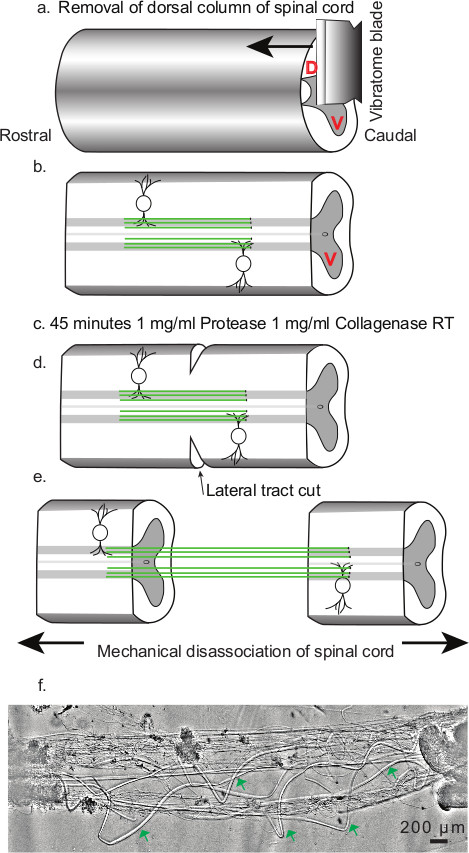
(A) Retrait de la colonne dorsale. La flèche indique la direction de découpe du tissu. Les cornes dorsales sont marquées par l'alphabet D (couleur de police rouge), tandis que les cornes ventrales de l'alphabet V (couleur de police rouge). (B) la colonne dorsale enlevé dans la partie centrale de la moelle épinière exposer les axones réticulospinaux (lignes vertes ). Les cornes ventrales, qui restent intactes après le processus de découpage, sont marqués par l'alphabet V (couleur de police rouge). (C) de traitement de 45 min avec la protéase et de la collagénase enzymes de cocktail (1 mg / ml). (D) Le découpage des voies latérales de la moelle épinière; indiquant la position, la direction et l'ampleur de coupe latérale. (e) de dissociation mécanique de la moelle épinière. Les flèches indiquent la position de la pince et la direction de la force de séparation lors de la dissociation. (F) Representatiexemple de préparation de l'axone réticulo dissocié ve. Les flèches vertes marquent régions d'axones réticulospinaux très dissociés sans processus post-synaptiques.
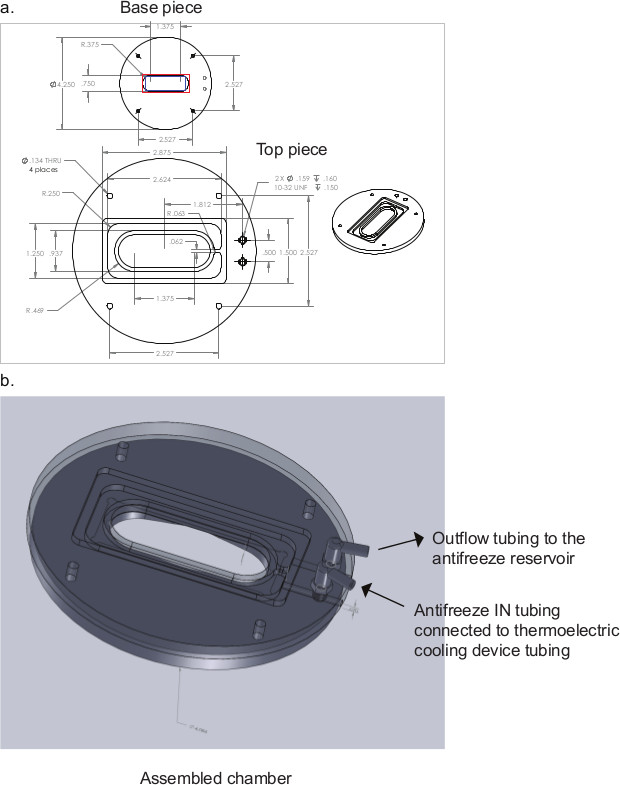
Figure 3 Schéma de la chambre pour des expériences d'électrophysiologie de l'enregistrement. Dimensions fournies sont en pouces. Rectangle rouge montre la basepiece schéma (a) indique le positionnement de la lamelle dans la rainure de la lamelle dans la basepiece. La région entre le rectangle rouge et bleu, représenté sur le schéma de basepiece (a) est l'endroit où la graisse à vide élevé est appliqué. (B) représente la chambre d'enregistrement assemblée.
4. étiquetage et d'identification des terminaux présynaptiques avec FM 1-43
- Étiqueter terminaisons présynaptiques, en incorporant FM 1-43 en vesicles pendant synaptique exo-endocytose en haute dépolarisation K +. Perfuser préparation avec 5 uM FM 1-43 (dans 5 ml de solution de Ringer contenant mM KCl 30).
- Perfuser préparation avec 1 mg / ml Advasep-7 (dans 5 ml de solution de Ringer) pour éliminer le colorant FM excès) 18.
- Perfuser préparation avec la solution de Ringer pendant 15 min au lavage de colorant Remant et la Advasep.
- Image avec 100 X lentille à immersion d'huile (NA 1,25) sur un microscope inversé à fluorescence, en conjonction avec une caméra CCD numérique et l'acquisition d'images microgestionnaire de logiciel, en utilisant des protocoles d'imagerie de fluorescence standard.
- Identifier les terminaisons présynaptiques marquées par fluorescence à cibler pour l'enregistrement de la figure 4c et figure 4d.
5. immunohistochimie de isolés axones réticulo
- Remplissez plat encadré (section Protocole 2.10.) Avec bivalent-ion (Ca2 + et Mg 2 +) libreLa solution de Ringer.
- Fabriquer pipettes de patch dans une micropipette extracteur P-87. Placer une petite quantité de suture de la colle à une extrémité de l'insert de poly-lysine à l'aide d'une pipette de patch (1,5 mm de verre de diamètre externe) et d'aspiration (en utilisant un tube de silicone 0,89 mm de diamètre intérieur avec une pointe de la micropipette fixé à l'extrémité d'aspiration).
- Effectuer dissociations en utilisant la même procédure que mentionné dans la section du protocole 3 de la figure 2. Placez une extrémité de la moelle épinière sur la colle de suture et appuyez doucement avec une pince pour la faire adhérer fortement à la surface. Placer une goutte de colle suture à l'autre extrémité de l'insert et étirer doucement jusqu'à ce que la moelle épinière et les axones sont dissociés adhérer l'extrémité libre de la moelle épinière en le faisant glisser doucement sur la colle de suture. Fixer en place par un pressurage doux vers le bas avec la pince.
- Bourse bivalent libérer la solution de Ringer avec la solution de Ringer régulière par perfusion.
- Autoriser les axones de récupérer pendant 20 min après dissociation à 10 ° C.
- Fixer les axones dissociés dans du paraformaldéhyde 4% (PFA) {préparé dans le tampon phosphate salin (PBS, (mM) NaCl 137, KCl 2,7, Na 2 HPO 4 10, KH 2 PO 4 1,8, pH 7,4)} pendant 20 min. Filtre PFA solution avant l'utilisation par passage à travers un filtre seringue de 0,2 uM.
- Laver le PFA en perfusant 0,1 M de glycine (dans du PBS) pendant 10 min.
- Incuber à 0,1% de Triton-X (dans du PBS) pendant 10 min.
- Laver en perfusant du PBS pendant 20 min.
- Bloc avec 5% de lait écrémé (dans du PBS) pendant 6 heures à 4 ° C.
- Ajouter à anticorps primaire à CCAGV d'intérêt (dilution 1: 200 dans du PBS) et incuber pendant 20 heures à 4 ° C.
- Laver en perfusant du PBS pendant 20 min.
- Bloc avec 5% de lait écrémé (dans du PBS) pendant 10 min à 4 ° C.
- Ajouter à un anticorps secondaire (1: 400 de dilution en PBS) et incuber dans l'obscurité pendant 2 heures à 4 ° C.
- Laver par perfusion avec du PBS pendant 20 min.
- Bloquer avec 1% de sérum bovin Albumin (dans du PBS) pendant 20 min.
- Ajouter à Alexa Fluor 488 phalloïdine (5 unités / ul concentration de travail; mère préparée dans du méthanol 200 unités / ml).
- Laver par perfusion avec du PBS pendant 20 min.
- Image à l'aide 100X eau lentille à immersion sur microscope confocal.
6. électrophysiologique d'enregistrement
- Fabriquer pipettes de patch en verre aluminosilicate (résistance à la pipette 2-5 MQ) dans un extracteur micropipette P-87. Conception pipette en patch de telle sorte que la pointe de pipette comprend diamètre de terminaison présynaptique entier.
- PDMS patch manteau pipettes par trempage de la pipette de patch sous 50-60 psi de pression dans PDMS 23 (joindre un tube en silicone, 0,89 mm de diamètre intérieur, relié à une bouteille de gaz d'azote, à l'extrémité arrière de la pipette de patch) et séchez-les avec une chaleur pistolet. Alternativement, manteau manuellement la pipette avec PDMS, l'application de revêtement à proximité de la pointe que possible, sous un microscope composé.
- Feu pipettes de patch vernis à l'aide d'un microforge (un filament de platine sur mesure monté sur la scène d'un microscope composé).
- Identifier les axones isolés montrant terminaisons présynaptiques marqués par microscopie de fluorescence.
- Remplir solution d'enregistrement (conçu pour isoler des courants de Ca2 +, 10 mM de CaCl 2 ou BaCl 2 90 mM en tant que porteur de charge, tampon HEPES pH 7,6, osmolarité de 270 mOsm) dans la pipette de patch à l'aide d'une seringue.
- Insérez la pipette en patch dans le porte-pipette et position au-dessus de bain en utilisant un manipulateur MP225 motorisé. Abaissez doucement la pipette de patch dans le bain et la position contre la face d'un terminal présynaptique fluorescence identifié.
- Avancer la pipette de patch lentement jusqu'à ce que le contact est établi avec la membrane. A ce stade, de réaliser un joint d'étanchéité par gigaohm douce bouche d'aspiration à travers un tube relié au support de pipette.
- Pour atteindre les niveaux de bruit de fond extrêmement bas requises pour l'enregistrement monocanal Ca2 + courants, utiliser un Axopatch 200B avec un headstage refroidi pour les enregistrements. Les données d'échantillon à 20-50 kHz et le filtre à l'aide d'un filtre de Bessel 5 kHz. Effectuer l'acquisition de données en utilisant un Axograph X.
- Utilisez un protocole étape standard, par incréments de 10 mV comme stimulus. Intégrer une pré-impulsion dans le protocole précédant le protocole de l'étape, pour assurer activation maximale des canaux de Ca. Intégrer une mV étape 10 de fuite dans le protocole de l'étape de post-analyse soustraction des courants de fuite.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Ce protocole donne de dissociation sains et fonctionnels axones réticulospinaux isolés dépourvus de post-synaptique projections Figure 2f, mais qui conservent néanmoins des terminaisons présynaptiques fonctionnels capables de vésicule synaptique évoquée exo-endocytose et la figure 4c et figure 4d. Les articles des régions isolées des axones réticulospinaux peuvent être clairement identifiés en microscopie optique d'être clair, d'autres procédés neuronaux permettant un a...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Notre protocole de dissociation est importante en cédant axones réticulospinaux isolés dépourvus de post-synaptique projections Figure 2f, mais qui conservent néanmoins fonctionnelle présynaptique bornes Figure 4c et figure 4d. L'absence de processus post-synaptiques qui s'opposent à la terminaison présynaptique permet l'accès de l'enregistrement direct sur la membrane libération présynaptique visage dans les terminaux présynaptiques simples, auparavant ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont pas d’intérêts financiers concurrents ou d’autres conflits d’intérêts à divulguer.
Remerciements
Ce travail a été soutenu par NINDS, RO1NS52699 et MH84874 à SA.
Nous tenons à remercier le Dr Dave Featherstone (Département des sciences biologiques, Université de l’Illinois à Chicago) de nous avoir fourni la colle à suture utilisée dans le travail d’immunohistochimie. Nous remercions Michael Alpert pour ses commentaires et sa relecture du manuscrit.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 0,2 et micro ; m Filtre à seringue | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Lamelles Fisherbrand | 12545J | ||
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 Chèvre conjuguée anti-lapin Anticorps secondaire | Invitrogen/Life Technologies | A21070 | |
| Antigel | Prestone | ||
| Acide borique | Sigma-Aldrich | B7660 | |
| Albumine sérique bovine | Sigma-Aldrich | A7906 | |
| Source lumineuse à champ vif | Dolan-Jenner | Fiberlite 180 | |
| Chlorure de calcium | Sigma Aldrich | C4901 | |
| Collagénase de type IA de Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| Couvercle | Fisher-Scientific | 12-545-J | |
| Dextrose | Sigma-Aldrich | D9559 | |
| Caméra CCD numérique | Hamamatsu | C8484-03G01 | |
| Pince à dissection Fine | Science Tools | 91150-20 | |
| Pince à dissection | Fine Science Tools | 11251-20 | |
| Microscope de dissection | Leica Biosystems Leica | MZ 12 | |
| Ciseaux de dissection | Fine Science Tools | 15025-10 | |
| Ciseaux de dissection fine | Fine Science Tools | 91500-09 | |
| Ciseaux de dissection ultra fins | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Glycine | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Graisse sous vide poussé | Dow-Corning | ||
| Acide chlorhydrique | Fisherbrand | SA-56-500 | |
| Huile d’immersion | Fisher-Scientific | M2000 | |
| Réservoir d’azote gazeux de qualité industrielle | Praxair | UN1066 | |
| Épingles à insectes | Outils scientifiques fins | 26002-10 | |
| Colle de suture liquide | Braun Veterinary Cair Division | 8V0305 | La colle à suture que nous avons utilisée dans nos expériences nous a été fournie par un autre laboratoire. Il n’est plus fabriqué. Nous nous sommes procuré une colle de suture histoacryle pour une utilisation future auprès d’Aesculap (Ts1050071FP) |
| Chlorure | de magnésium Sigma-Aldrich | M2670 | |
| Méthanol | Sigma-Aldrich | 154903 | |
| Lait écrémé en poudre | Technologie de signalisation cellulaire | 9999S | |
| P-87 Extracteur de micropipette | Sutter Instruments | ||
| Paraformaldéhyde | Sigma-Aldrich | P6148 | |
| Pompe à perfusion | Cole-Palmer | Masterflex C/L | |
| Boîte de Pétri 100 x 15 mm | Fisher-Scientific | 875712 | |
| Boîte de Pétri 35 x 10 mm | Fisher-scientific | 875712 | |
| Bromhydrate de poly-D-lysine | Sigma-Aldrich | P1024 | MW > 300 000 |
| Chlorure de potassium | Sigma-Aldrich | P9333 | |
| Phosphate de potassium monobasique | Sigma-Aldrich | P5379 | |
| Anticorps primaires Canal calcique de type R | Alomone Labs | ACC-006 | |
| Protéase de type XIV de Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| Lames de scalpel | World Precision Instruments ; | 500240 | |
| Schot Duran Bouteille à pression | Fisher-Scientific | 09-841-006 | |
| Tube en silicone pour l’application de colle | Cole-Palmer | 07625-26 | |
| Plaque de base de tranchage | Leica Biosystems | 14046327404 | |
| Chambre de tranchage | Leica Biosystems | 14046230132 | |
| Chlorure de sodium | Sigma-Aldrich | S7653 | |
| Hydroxyde de sodium | S8045 | ||
| sodium | Sigma-Aldrich | B3545 | |
| SYLGARD® ; 160 | Pour préparer, mélanger l’élastomère A et l’élastomère B 10:1 en poids | ||
| Sylgard 184 Kit élastomère silicone | Dow Corning | SYLGARD® ; 184 ; | Pour préparer, mélanger l’élastomère et l’agent de durcissement 10:1 en poids |
| Pince revêtue de téflon | Fine Science Tools | 11626-11 | |
| Méthanesulfonate de tricaïne | Sigma-Aldrich | A5040 | |
| Lames de vibratome | World Precision Instruments ; | LAMES Lampe | |
| au xénon | Nikon |
Références
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
