La question de savoir comment les organismes de réglementation et des états de la chromatine chromatine affecte le génome in vivo est essentielle à notre compréhension de la façon dont les premières décisions du destin cellulaire sont faites dans l'embryon en développement. ChIP-Seq-la méthode la plus populaire pour étudier les caractéristiques de la chromatine au niveau-est globale définie ici pour les embryons de xénope.
Article de méthode
Snapshot échelle du génome des régulateurs de la chromatine et les États dans
Dans cet article
Résumé
Résumé
Le recrutement des régulateurs de la chromatine et l’attribution d’états de la chromatine à des loci génomiques spécifiques sont essentiels aux décisions relatives au destin cellulaire et à la formation des tissus et des organes au cours du développement. La détermination des emplacements et des niveaux de ces caractéristiques chromatiniennes in vivo fournira des informations précieuses sur la régulation spatio-temporelle des éléments génomiques et soutiendra les aspirations à imiter le développement des tissus embryonnaires in vitro. La méthode la plus couramment utilisée pour le profilage à l’échelle du génome et à haute résolution est l’immunoprécipitation de la chromatine suivie d’un séquençage de nouvelle génération (ChIP-Seq). Ce protocole décrit comment les embryons riches en vitellus tels que ceux de la grenouille Xenopus peuvent être traités pour les expériences ChIP-Seq, et il offre des lignes de commande simples pour l’analyse post-séquençage. En raison de la grande efficacité avec laquelle le protocole extrait les noyaux des tissus fixés au formaldéhyde, la méthode permet une mise à l’échelle facile pour obtenir suffisamment de matériel ChIP pour le profilage à l’échelle du génome. Notre protocole a été utilisé avec succès pour cartographier diverses protéines de liaison à l’ADN telles que les facteurs de transcription, les médiateurs de signalisation, les composants de la machinerie de transcription, les modificateurs de la chromatine et les modifications post-traductionnelles des histones, et pour cela à divers stades de l’embryogenèse. Enfin, ce protocole devrait être largement applicable à d’autres organismes modèles et non modèles à mesure que de plus en plus d’assemblages de génomes deviennent disponibles.
Introduction
Les premières tentatives de caractérisation des interactions protéine-ADN in vivo ont été signalées il y a environ 30 ans dans le but de comprendre la transcription génique médiée par l’ARN polymérase chez les bactéries et chez la mouchedes fruits 1,2. Depuis lors, l’utilisation de l’immunoprécipitation pour enrichir les caractéristiques distinctes de la chromatine (ChIP) a été largement adoptée pour capturer les événements de liaison et les états de la chromatine avec une efficacité élevée3. Par la suite, avec l’émergence de puissantes technologies de microarrays, cette méthode a conduit à la caractérisation des paysages de chromatine à l’échelle du génome4. Plus récemment, le profilage de la chromatine est devenu encore plus complet et à haute résolution, car des millions de matrices d’ADN co-immunoprécipité peuvent désormais être séquencées en parallèle et cartographiées sur le génome (ChIP-Seq)5. Alors qu’un nombre croissant d’assemblages de génomes sont disponibles, ChIP-Seq est une approche attrayante pour en savoir plus sur la régulation du génome qui sous-tend les processus biologiques.
Ici, nous fournissons un protocole pour effectuer ChIP-Seq sur des embryons riches en vitellus tels que ceux de la grenouille Xenopus. Des ébauches des génomes des deux espèces de Xenopus largement utilisées, X. tropicalis et X. laevis, ont maintenant été publiées par l’International Xenopus GenomeConsortium 6. Les embryons des espèces de Xenopus partagent de nombreuses caractéristiques souhaitables qui facilitent et permettent l’interprétation des études de la chromatine à l’échelle du génome, y compris la production d’un grand nombre d’embryons de haute qualité, la grande taille des embryons eux-mêmes et leur développement externe. De plus, les embryons se prêtent à des manipulations classiques et nouvelles telles que le traçage de la lignée cellulaire, l’hybridation in situ en monture entière, la surexpression de l’ARN et la technologie d’inactivation médiée par TALEN/CRISPR.
Le protocole suivant s’appuie sur les travaux de Lee et al., Blythe et al. et Gentsch et al. 7-9. En bref, les embryons de xénope sont fixés au formaldéhyde au stade de développement d’intérêt pour lier de manière covalente (réticulation) les protéines à leur ADN génomique associé. Après l’extraction nucléaire, la chromatine réticulée est fragmentée pour concentrer le séquençage ultérieur sur des sites spécifiques de liaison ou de modification génomique, et pour minimiser les contributions des séquences d’ADN flanquantes. Par la suite, les fragments de chromatine sont immunoprécipités avec un anticorps de grade ChIP pour enrichir ceux contenant la protéine d’intérêt. L’ADN co-immunoprécipité est extrait de la protéine et purifié avant de créer une banque indexée (extrémités appariées) pour le séquençage de nouvelle génération (NGS). À la fin, des lignes de commande simples sont proposées pour l’analyse post-séquençage des données ChIP-Seq.
Protocole
REMARQUE: Tous les travaux Xenopus respecte pleinement les animaux au Royaume-Uni (Scientific Procedures) __gVirt_NP_NN_NNPS<__ loi de 1986 mis en œuvre par l'Institut national de la MRC pour la recherche médicale.
1. Préparations
- Estimer le nombre d'embryons requis pour l'expérience de puce (voir la discussion).
- Préparer les solutions suivantes qui sont stockés à température ambiante: 500 ml de 10x modification Ringers de Marc (ROR) sans EDTA, pH ajusté à 7,5 et stérilisé à l'autoclave (1 M de NaCl, 20 mM de KCl, 20 mM de CaCl2, mM MgSO 4 10, 50 mM d'HEPES pH 7,5) 10, 1 ml de tampon d'élution SDS (50 mM Tris-HCl pH 8,0, 1 mM d'EDTA, 1% SDS) et 1 ml de tampon de charge 5x ADN (0,2% Orange G, 30% de glycerol, 60 mM d'EDTA pH 8,0).
- Préparer les solutions suivantes qui sont stockées à 4 ° C: 50 ml de tampon HEG (50 mM de HEPES-KOH pH 7,5, EDTA 1 mM pH 8,0, 20% de glycerol), 500 ml de tampon d'extraction E1 (50 mM de HEPES-KOH pH 7,5, 150 mM de NaCl, 1 mM EDTA. 10% de glycerol, 0,5% d'Igepal CA-630, 0,25% de Triton X-100), E2 (10 mM Tris-HCl pH 8,0, NaCl 150 mM, EDTA 1 mM, EGTA 0,5 mM) et E3 (10 mM de Tris-HCl pH 8,0, NaCl 150 mM, EDTA 1 mM, 1% d'Igepal CA-630, 0,25% de Na-désoxycholate, 0,1% de SDS), 500 ml de tampon RIPA (50 mM de HEPES-KOH pH 7,5, 500 mM de LiCl, 1 mM d'EDTA , 1% d'Igepal CA-630, 0,7% de désoxycholate de Na) et 50 ml de tampon TEN (10 mM Tris-HCl pH 8,0, EDTA 1 mM, NaCl 150 mM).
- Note et découper un tube de 15 ml de polystyrène conique à la marque de 7 ml. Utilisez ce tube pour contenir des extraits nucléaires en cours de traitement par ultrasons.
- Pour l'analyse post-séquençage, utiliser un ordinateur multicœur d'exploitation Unix-style avec au moins 8 Go de RAM et 500 Go d'espace disque libre. Installez le logiciel suivant localement dont la plupart sont utilisés à la ligne de commande: FastQC, Illumina CASAVA-1.8 filtre de qualité, Bowtie 11, samtools 12, Homer 13, MACS2 14, IGV 15,16, Grappe3 17, Java TreeView, BLAST + 18, et b2g4pipe 19. Vérifiez les instructions d'installation et les exigences pour compilateurs et des logiciels tiers.
- Construisez un indice Bowtie pour aligner à court NGS lit au génome de Xenopus. Un exemple est montré ici pour le X. tropicalis génome v7.1 (Novembre 2011), qui peut être téléchargé sous forme de fichier FASTA (de genome.fa) à partir du serveur ftp Xenbase (/ pub / Génomique / JGI). Déplacez le fichier FASTA le sous-répertoire d'index de Bowtie.
- Utilisez la ligne de commande suivante (ici après le caractère prompt>) pour générer des fichiers d'index xenTro7:
> Bowtie-build /path/to/bowtie/index/genome.fa xenTro7
> Export BOWTIE_INDEXES = / path / to / papillon / index /
- Utilisez la ligne de commande suivante (ici après le caractère prompt>) pour générer des fichiers d'index xenTro7:
- Télécharger le fichier de l'annotation des gènes (GTF) depuis le navigateur UCSC Genome ou le site miroir sur le serveur NIMR pour les dernières versions du génome (de genomes.nimr.mrc.ac.uk) via Outils / Table Browser. Utilisez le fichier génome FASTA et le fichier de GTF pour personnaliser HOMER pour Xenopus (par exemple, X. tropicalis génome v7.1, - nommer xenTro7).
- Vous pouvez également utiliser des paquets pré-construits Homer certaines anciennes versions du génome de Xenopus.
> LoadGenome.pl -name xenTro7 -org nulle -fasta /path/to/genome.fa -gtf path / to / genes.gtf
- Vous pouvez également utiliser des paquets pré-construits Homer certaines anciennes versions du génome de Xenopus.
- Créez une piste de génome (.genome de fichier) pour le navigateur de génome IGV en téléchargeant un fichier FASTA indexée (genome.fa avec le fichier genome.fa.fai dans le même dossier) et le fichier d'annotation (de genes.gtf). Créer un index génome d'échafaudage (de genome.fa.fai) pour le génome de Xenopus comme suit:
> Samtools faidx /path/to/genome.fa - Utilisez BLAST + pour passer Gene Ontology (GO) termes de plusieurs espèces modèles (humain, souris, poisson zèbre, mouche des fruits et de levure) sur les gènes de Xenopus comme suit:
- Télécharger toutes les séquences codantes (CDS) en un seul fichier FASTA (de cds.fa) depuis le navigateur UCSC Genome via Outils/ Navigateur de table et mise à jour BLAST + avec la base de données BLAST pré-formaté de protéines non redondantes (nr):
> Update_blastdb.pl nr - Recherche pour l'homme (txid9606), souris (txid10090), le poisson-zèbre (txid7955), la mouche des fruits (txid7227) et la levure (txid4932) protéines à partir du site NCBI via sa fonction de recherche avancée (http: //www.ncbi.nlm.nih. gov / protéines / avancé) et envoyer la liste GI résultante (identificateur de séquence) (de sequence.gi.txt) à l'ordinateur.
- Attribuer gènes de Xenopus aux protéines les plus similaires dans la liste en exécutant GI BLASTx avec un certain attendre (E) de la valeur seuil (ici 10 -20). Assurez-vous que le format de sortie est xml (5 -outfmt départ privé blastx_results.xml). Faire usage de fils de gagner du temps (-num_threads) qui sont en corrélation avec le nombre de cœurs disponibles informatiques.
> Blastx -db / path / to / nr -gilist /path/to/sequence.gi.txt -query / chemin / to / cds.fa -evalue 1e-20
-outfmt 5 départ privé /path/to/blastx_results.xml -num_threads [# fils] - Ouvrez le fichier b2gPipe.properties du dossier b2g4pipe avec un éditeur de texte et mettre à jour les propriétés à Dbacces.dbname = b2go_sep13 et Dbacces.dbhost = publicdb.blast2go.com base de données. B2g4pipe Exécuter dans le dossier d'installation.
> Java -cp Xmx1000m *: ext / *: es.blast2go.prog.B2GAnnotPipe -in /path/to/blastx_results.xml
Résultats départ privé / xenTro7 -prop b2gPipe.properties -v -annot
NOTE: Ce extraits du programme GO termes pour chaque explosion a frappé et les affecte à des gènes correspondants (Xenopus xenTro7.annot). Les réglages de base de données plus à jour peuvent être trouvés sous Outils / Paramètres généraux / Paramètres DataAccess de l'application Blast2GO Java Web Start (voir 9.11.1).
- Télécharger toutes les séquences codantes (CDS) en un seul fichier FASTA (de cds.fa) depuis le navigateur UCSC Genome via Outils/ Navigateur de table et mise à jour BLAST + avec la base de données BLAST pré-formaté de protéines non redondantes (nr):
2. chromatine réticulation
- Fertiliser les œufs de xénope, de la gelée et de la culture embryons selon des protocoles standards 20.
- Transférer les embryons dejellied (2500 X. laevis ou 10 000 X. tropicalis maximum) au stade de développement d'intérêt à un 8 ml d'échantillon flacon en verre avec bouchon et lavez-les brièvement une fois avec 0,01x ROR.
- Fixer les embryons avec 1% de formaldéhyde dans 0,01x ROR (par exemple, ajouter 225 pi de 36,5 à 38% de formaldéhyde à 8 ml 0,01x MMR) pour 15 à 40 min à température ambiante (voir la discussion pour le moment de fixation et le nombre d'embryons requis par expérience puce).
NOTE: Le formaldéhyde est corrosif et très toxique. Il est dangereux en cas de contact oculaire et de la peau, l'indigestion, et l'inhalation. Utilisez la hotte lors de l'ajout de formaldéhyde dans le flacon. - Arrêtez la fixation par lavage brièvement les embryons trois fois avec MMR de 0,01x froid. Ne laissez pas les os Embry prendre contact avec la surface du liquide parce que la tension de surface provoque leur rupture.
- Aliquoter les embryons dans 2 ml microtubes sur la glaceavec un maximum de 250 embryons par tube, qui occupent un volume d'environ 250 pi (X. tropicalis) ou 600 pi (X. laevis) avant l'éclosion.
- Pipette éloigner autant que possible 0,01x ROR. Passer l'étape suivante si vous continuez immédiatement à l'article 3.
- Equilibrer embryons dans 250 pi de tampon HEG froid. Une fois que les embryons se sont installés au fond du tube retirer autant de liquide que possible et enclenchez-gel dans l'azote liquide. Stocker à -80 ° C.
3. Extraction chromatine
NOTE: L'extraction suivante de la chromatine réticulé à partir d'embryons de Xenopus fonctionne plus efficacement avec les temps de fixation indiqués à l'étape 2.3 et de 50 à 80 X. tropicalis ou 25 à 40 X. laevis embryons par ml de tampon d'extraction E1, E2 et E3. Chaque étape d'extraction est répétée deux fois de sorte que le volume calculé de tampon est nécessaire. Pour upscaling, utiliser plusieurs 2 ml microcentriFuge tubes ou tubes de 50 ml de centrifugeuses. Garder les échantillons et des tampons sur la glace lors de l'extraction de la chromatine.
- Supplément volumes adéquats de marges E1, E2 et E3 avec 1 mM de DTT et de comprimés d'inhibiteur de protease. Si vous effectuez ChIP avec un anticorps phospho-spécifique, d'autres tampons de compléter avec mM de NaF 5 et 2 mM Na 3 VO 4.
- Homogénéiser embryons fixes avec E1 par pipetage de haut en bas. homogénats de centrifuger dans une centrifugeuse réfrigérée (4 ° C) à 1000 g pendant 2 min (5 min ou en cas d'utilisation de tubes de 50 ml). Aspirer le surnageant et tous les lipides attachés à la paroi.
- Remettre en suspension des pastilles dans E1. Garder les échantillons sur la glace pendant 10 min. Centrifugeuse et rejets surnageants comme dans l'étape 3.2.
- Reprendre pellets en E2. Centrifugeuse et rejets surnageants comme dans l'étape 3.2.
- Répétez l'étape 3.4, mais gardez échantillons sur la glace pendant 10 min avant centrifugation.
- Reprendre pellets en E3. Garder les échantillons sur la glace pendant au moins 10 min. Centrifugeuse et jeter susurnageants comme dans l'étape 3.2.
NOTE: A ce stade, les remises en suspension devraient être assez transparent. Les détergents anioniques dans E3 extraire les noyaux réticulés en rendant plus des plaquettes de jaune restant solubles. - Remettre en suspension et la piscine de pellets de noyaux réticulés (normalement de couleur brune des granules pigmentaires insolubilisées) dans un volume total de 1 ml de l'E3. Diluer l'échantillon avec E3 à 2 ou 3 ml se il apparaît très visqueux et difficile à pipette. Garder sur la glace ou à 4 ° C à passer à l'étape 4 sur le même jour ou le lendemain. Snap-gel dans de l'azote liquide et conserver à -80 ° C pour une utilisation ultérieure.
4. chromatine fragmentation
REMARQUE: La sonication est utilisé à la fois pour solubiliser et à cisailler la chromatine réticulé. Voici les paramètres pour exécuter le Misonix Sonicator 3000 équipé d'un micro-pointe conique 1/16 pouces et son enceinte. Si vous utilisez d'autres sonicateurs, suivre les recommandations des fabricants pour cisaillementréticulé ou utiliser chromatine 6 à 12 W pendant 4 à 8 min au total.
- Transférer l'échantillon nucléaire de l'étape 3.7 dans un tube sur mesure pour sonication (étape 1.4). Conserver l'échantillon refroidi pendant la sonication en ayant le tube relié à un bêcher en plastique de 800 ml rempli avec de l'eau glacée par une pince du thermomètre courte.
- Placer le bécher sur une prise de laboratoire. Ajuster la prise de sorte que la micropointe de sonication est immergée dans l'échantillon à environ les deux tiers de la profondeur du volume et centré sans toucher la paroi du tube.
- Soniquer l'échantillon pendant 7 min au total, interrompu toutes les 30 secondes avec 1 min pauses. Régler la puissance à 1,0. Démarrez le traitement par ultrasons et augmenter immédiatement le réglage de puissance (normalement 2-4) pour atteindre une lecture de 9-12 W. Mettre en pause immédiatement si l'échantillon commence à mousser. Repositionner tube et redémarrer lorsque la mousse a complètement disparu.
- Transférer la chromatine cisaillé en pré-réfrigérés 1,5 ml microtubes et tournent à pleine vitesse (> 15,000 x g) pendant 5 min à 4 ° C.
- Transférer le surnageant de pré-réfrigéré 1,5 ml microtubes. Recueillir 50 pi du surnageant (contenant idéalement la chromatine d'environ 400 000 ou plusieurs noyaux) de visualiser le degré de fragmentation de la chromatine (section 5). Utilisez le reste du surnageant pour Chip (article 6).
- Conserver les échantillons à 4 ° C pour un maximum de un jour. Échantillons Snap-gel que aliquotes (un par expérience Chip) dans l'azote liquide pour le stockage à long terme à -80 ° C.
5. Imaging chromatine fragmentation
- Ajouter 50 ul de tampon d'élution SDS, 4 ul de NaCl 5 M et 1 pi de proteinase K (20 ug / ul) à 50 ul de surnageant provenant de l'étape 4.6.
- Incuber pendant 6-15 h (O / N) dans un four réglé hybridation à 65 ° C.
- Purifier l'ADN en utilisant un kit de purification PCR commerciale. Si nécessaire, utilisez 3 M d'acétate de sodium (pH 5,2) pour ajuster le pH tel que recommandé par le fabricant. Eluer laADN deux fois avec 11 ul de tampon d'élution (Tris-HCl 10 mM, pH 8,5).
- Ajouter 0,4 pl de RNase A (20 ug / ul) et 5 pi de tampon de charge ADN 5x avant d'exécuter l'ensemble de l'échantillon le long d'une bp 100 et une échelle d'ADN de 1 kb sur un gel d'agarose à 1,4% par électrophorèse. Pour des résultats optimaux, gel de tache avec une solution de coloration acide nucléique sécurité après électrophorèse.
6. Immunoprécipitation de la chromatine
NOTE: Dans cette section, la faible utilisation de rétention 1,5 ml microtubes et au moins 1 ml de tampon indiquée par tube pour laver les billes magnétiques pendant 5 min à 4 ° C. Avant de retirer le tampon des perles, laissez les tubes dans le rack magnétique pour 20 à 30 secondes chaque fois ou jusqu'à ce que la solution est claire.
- Transfert 10-30 ul du surnageant (cisaillée de la chromatine) de l'étape 4.6 dans un nouveau tube pour être utilisé plus tard comme échantillon d'entrée, qui correspond à environ 1% de la chromatine totale utilisée pour la puce. Conserver à 4° C jusqu'à ce que des échantillons d'éclats sont prêts pour inverser liens croisés.
- Transférer la chromatine reste dans un nouveau tube. Pour les expériences ChIP-qPCR nécessitant un contrôle d'anticorps, distribuer des volumes égaux de la chromatine à deux tubes.
- Ajouter l'anticorps ChIP qualité (ou le contrôle d'anticorps correspondant) à la chromatine. A titre indicatif, utiliser environ 1 ug d'anticorps par un million de cellules exprimant l'épitope d'intérêt.
- Pour estimer avec plus de précision la quantité d'anticorps nécessaire par l'expérience de la puce, exécuter la même puce avec différentes quantités d'anticorps (par exemple, 0,25 pg, 1 pg et 2,5 ug) et de comparer le rendement à négative et positive loci de contrôle par Chip-qPCR (voir l'article 10). Comme un contrôle de l'anticorps, utiliser du sérum normal de la même espèce d'isotype et animales hôte que l'anticorps.
- Incuber sur un agitateur (10 rpm) O / N à 4 ° C.
- Laver une quantité suffisante de billes magnétiques anticorps E3 compatible avec une fois pendant 5 minutes unt 4 ° C. Chèque les spécifications du fabricant pour la capacité de liaison d'anticorps des billes (habituellement 5 à 20 ul de billes lie 1 ug d'anticorps IgG).
- Ajouter billes lavées à l'anticorps chromatine pré-incubées. En outre incuber sur un agitateur (10 rpm) pendant 4 heures.
- Laver Perles quatre fois (Chip-qPCR) ou dix fois (Chip-Seq) avec le tampon de RIPA pré-réfrigérés, puis une fois avec le tampon de pré-réfrigérée TEN.
- Ne effectuer cette étape si l'exécution d'une expérience de ChIP-Seq.
- Remettre en suspension lavé perles dans 50 pi de tampon TEN par tube. Piscine toutes les perles d'une expérience à puce unique de les transférer à une nouveau tube. Utiliser la grille magnétique et réfrigérée (4 ° C) centrifugation à 1000 x g pour recueillir des billes au fond du tube. Jeter autant de liquide que possible sans perturber le culot de perles.
- Bande de matériau de ChIP en remettant en suspension les perles dans les perles 50 à 100 ul de tampon d'élution SDS et vortles exage en continu avec un Thermomixer (1000 rpm) pendant 15 min à 65 ° C. Après cela centrifugeuse à pleine vitesse (> 15 000 xg) pendant 30 secondes. Transférer le surnageant (Chip éluat) dans un nouveau tube.
- Répétez la dernière étape et de combiner les éluats de puce.
7. chromatine inverse de réticulation et de purification d'ADN
- Ajouter suffisamment de tampon d'élution SDS à l'échantillon d'entrée (étape 6.1) pour atteindre le volume de l'échantillon de puce, qui est de 100 à 200 pi (étape 6.10). Compléter les deux échantillons de copeaux et d'entrée avec 1/20 volume de 5 M de NaCl. Incuber les échantillons pendant 6 à 15 heures (O / N) à 65 ° C dans un four à hybridation.
- Ajouter 1 volume de tampon TE et la RNase A à 200 ug / ml. Incuber pendant 1 heure à 37 ° C.
- Ajouter la proteinase K à 200 ug / ml. Incuber pendant 2 à 4 heures à 55 ° C.
- Purifier l'ADN par phénol: chloroforme: extraction de l'alcool isoamylique suivie par précipitation à l'éthanol comme précédemment décrit neuf. Pour ChIP-Seq, ajouter 32pi de tampon d'élution (10 mM Tris-HCl, pH 8,5) pour dissoudre le culot d'ADN. Laisser les échantillons sur de la glace pendant 30 min pour se assurer que l'ADN est complètement dissous.
NOTE: Commercial kits de purification de PCR ont récupération de l'ADN plus faible, mais sont plus pratiques, et peuvent être utilisés pour les échantillons ChIP-qPCR. - Pour ChIP-Seq, déterminer la concentration de 1 pl de l'ADN de la puce et entrée à l'aide des méthodes basées fluorométrie. Suivez les instructions du fabricant et assurez-vous que la concentration de l'ADN se inscrit dans la gamme de détection fiable de la fluorimètre.
8. ChIP-Seq Bibliothèque Construction et validation
NOTE: Les méthodes actuelles pour la préparation de la bibliothèque d'ADN permettent la construction des bibliothèques de haute complexité pour NGS 1-2 ng. Au détriment d'une certaine complexité, les bibliothèques peuvent être fabriqués à partir aussi peu que 50 pg de l'ADN (voir le tableau de matériaux spécifiques / Équipement). Utilisez la même quantité d'ADN à la fois pour la puce et bibliothèque d'entrée. En bref, pour make indexées (jumelé-end) bibliothèques ChIP-Seq, Chip et l'ADN d'entrée doivent être fin réparé, ligaturé à des adaptateurs spéciaux (voir le tableau des matériaux spécifiques / équipement), la taille-sélectionné et amplifié par PCR.
- Suivez les directives du fabricant pour faire bibliothèques ChIP-Seq. Voir la discussion pour d'autres recommandations.
- Éluer chaque bibliothèque dans 12 pi de tampon d'élution et déterminer la concentration de 1 pi de chaque bibliothèque de puce et entrée en utilisant un fluorimètre. Expect concentrations de 5 à 25 ng / ul. Envisager de réduire le nombre de cycles de PCR (moins de 18 cycles) si les concentrations sont plus élevées que 25 ng / ul.
REMARQUE: Une quantification exacte est essentielle pour obtenir des résultats optimaux END. Bibliothèques avec des concentrations aussi faibles que 1 ng / ul après 18 cycles de PCR peuvent être séquencés, mais souvent sont d'une complexité inférieure. - Utilisez une pi de bibliothèque pour déterminer la distribution de taille des fragments et pour vérifier toute contamination adaptateur dimère (bande autour de 120 pb) par cbase hip-électrophorèse capillaire. Répéter la purification d'immobilisation réversible de phase solide avec un ratio perles-à échantillon de 1: 1 (au lieu de 1,6: 1) si la bibliothèque contient des dimères de l'adaptateur.
- Effectuer qPCR sur validé loci de contrôle positif et négatif (voir la section 10) pour vérifier si les tendances d'enrichissement d'ADN similaires sont observées avant et après la préparation bibliothèque. Soumettre bibliothèques approuvées de contrôle de qualité pour séquençage.
9. Analyse post-séquençage et visualisation de données
NOTE: De nos jours, NGS est souvent réalisée par en interne ou installations de séquençage commerciales (voir la discussion pour certaines directives END). La sortie standard sont des fichiers uniques ou multiples gzip FASTQ (*) .fastq.gz stockage millions de séquençage lit. Normalement, multiplexé lit sont déjà séparés en fonction de leur index et chaque lecture contient un identificateur de séquence et un score de contrôle de la qualité (Phred + 33 pour Illumina 1.8+) pour chaque basappel e. Cette approche ne est ici que l'un des nombreux moyens comment analyser les données de l'END. Le lecteur est invité à vérifier si l'une des lignes de commande suivantes nécessitent des changements que ce domaine progresse rapidement et les mises à jour se produisent régulièrement.
- Concaténer des FASTQ gzip et vérifier la qualité des données de séquençage en utilisant le script FastQC. Exécutez ce et la plupart des commandes suivantes à la fois pour la puce et le séquençage de l'entrée des données (Exemples présentés pour Chip) de la borne:
> Cat /path/to/*.fastq.gz> ChIP.fastq.gz
> Fastqc ChIP.fastq.gz
REMARQUE: Les données brutes du séquençage réussi d'une bibliothèque de ChIP-Seq-grande complexité doivent passer la plupart des tests. Les échecs proviennent principalement de pistes de séquençage pauvres et artefacts expérimentaux tels que l'amplification par PCR biaisé ou de contamination de l'adaptateur. Un certain degré de duplication (redondance) est attendu comme redondante lit peut représenter de bonne foi l'enrichissement de l'ADN 21. Cependant, on peut restreindre tard balises lecture - l'extrémité 5 'ou lit - une par paire de bases afin d'éliminer toute redondance lit sans affecter la sensibilité de détection de pics (étape 9.4) 21. - Les données de séquençage de pré-processus pour éliminer la contamination de l'adaptateur (homerTools garniture -3 ) permettant une non-concordance de (-mis 1). Les 20 premières bases de l'adaptateur (indexé) (5 'à 3') proximale au fragment d'ADN d'intérêt lors de la ligature (montré pour adaptateur énumérés dans le tableau des matériaux spécifiques / équipement).
> Gzip -cd ChIP.fastq.gz | fastq_illumina_filter -vn> ChIP.fastq
> homerTools garnitures -3 GATCGGAAGAGCACACGTCT -mis 1 -min 36 ChIP.fastq
REMARQUE: La suppression de lit filtrée (-N) ne est nécessaire que par défaut dans les fichiers générés par Illumina FASTQ 1,8. Omettre la commande fastq_illumina_filter (ie,. '| Fastq_illumina_filter -vn')si une version plus ancienne que 1,8 généré l'identificateur de séquence. - Alignez pré-traitée lit au génome de référence (xenTro7) en utilisant Bowtie. Ne conserver que mappé unique lit (-m 1) en utilisant les paramètres par défaut, à savoir maximales deux décalages dans les 28 premières bases et un Phred + 33 score total de la qualité de toutes les différences par lecture de l'alignement 70. Rapport maximale au format SAM (-S) . Augmenter le nombre de mégaoctets par fil (--chunkmbs) si la mémoire de morceau est épuisé:
> Papillon -m 1 -S -p [# fils] --chunkmbs [par exemple 200] xenTro7 ChIP.fastq.trimmed> ChIP.sam
NOTE: Bowtie attend Phred + 33 scores de qualité par défaut. Incluez l'option - phred64-QUALIFICATIONS si le fichier a été généré avec FASTQ Phred + 64 scores de qualité par Illumina âgés de plus de 1,8. - Utilisez deux commandes de Homère à transformer l'alignement (SAM) déposer dans un fichier Bigwig (de .bw):
> MakeTagDirectory ChIP / -single -tbp une ChIP.sam
> MakeUCSCfile ChIP /-bigWig / path / to / genome.fa.fai -fsize 1E20 -norme 1E7 -o ChIP.bw
REMARQUE: La transformation nécessite l'indice d'échafaudage (de genome.fa.fai) du génome de référence (étape 1.8). Voici le profil est limitée à un tag par paire de bases (-tbp 1) et normalisée à 10 millions de lit (1E7 -norme). Bigwig est l'un des format préféré de visualiser dynamiquement les profils de la chromatine avec un navigateur génome tels que IGV (étape 9.12). - Déterminer la distribution d'étiquettes (puce -d /) au repère génomiques (par exemple, +/- 10 kb avec 25 bacs de pb, -si ze 20000 -hist 25) comme le début de la transcription (TSS, exemple montré ici) et la fin ( TTS) sites. Exécutez le annotatePeaks.pl Homer de script perl avec annotations Xenopus xenTro7 (étape 1.7):
> AnnotatePeaks.pl tss xenTro7 -size 20000 -hist 25 -d ChIP /> ChIP_tagDensity.tss - Trouver pics significatifs de l'enrichissement d'ADN entre la puce(-t ChIP.sam) et entrée (Input.sam -c) dans le X. tropicalis génome utilisant MACS2 avec un FDR coupure de 1% (0,01 q) et fragments d'ADN (après sonication) de 200 pb (= --bw 200) pour la construction de modèles. Ajouter la --broad du pavillon de cette ligne de commande si elle attendait une large distribution de la fonction de la chromatine d'intérêt telles que les marques des histones ou de l'ARN polymérase.
> Macs2 callpeak -t ChIP.sam -c -f Input.sam SAM Chip -g 1.4376e9 -q 0,01 --bw = 200
NOTE: La taille effective du X. tropicalis assemblage du génome v7.1 est d'environ 1437600000 pb (de 1.4376e9 -g). MACS2 génère un fichier LIT (ChIP_peaks.bed) enrôlement sommets avec leurs emplacements génomiques. - Comparez plusieurs profils chromatine sous forme d'un cluster heatmap:
- Créer une matrice de distribution d'étiquette à partir de répertoires de densité de tag d'intérêt (-d ChIP / other_ChIP /) à pics MACS2 (par exemple, +/- 1 kb avec 25 bacs de pb, -size 2000 -hist 25 -ghist):
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -size 2000 -hist 25 -ghist -d ChIP / other_ChIP /> ChIP.matrix - Utilisation de l'interface utilisateur graphique de Grappe3 de transférer le fichier ChIP.matrix et regrouper hiérarchiquement ces densités de balise sur la base de la distance euclidienne minimale au centre de gravité le plus proche. Ouvrez le fichier CTD généré en Java TreeView de visualiser le regroupement.
- Créer une matrice de distribution d'étiquette à partir de répertoires de densité de tag d'intérêt (-d ChIP / other_ChIP /) à pics MACS2 (par exemple, +/- 1 kb avec 25 bacs de pb, -size 2000 -hist 25 -ghist):
- Trouver roman et motifs de liaison déjà connus, qui sont enrichies lors des sommets de pointe +/- 100 pb (-size 200). Utilisation annotatePeaks.pl occurrences à la carte à motifs et de tracer des densités de motif:
> FindMotifsGenome.pl ChIP_peaks.bed xenTro7 ChIP_motifs / -size 200 -p [# fils]
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -m motif1.motif> ChIP_peaks.motif1
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -m motif1.motif -size 800 -hist 25> motif1.density
NOTE: Le script INFE findMotifsGenome.plrs l'enrichissement de la comparaison choisis au hasard à des séquences de gènes centrée fond. Le roman motif le plus enrichi est enregistré sous motif1.motif dans le format d'une matrice de poids de position. Le lecteur est invité à confirmer ces résultats avec d'autres méthodes de novo de découverte de motifs tels que cisFinder 22 et 23 MEME. - Annoter sommets en calculant leur distance au gène le plus proche et en déterminant leur taux de lecture normalisée à 400 pb (fenêtres -size 400):
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -SIZE 400 -d ChIP / input /> ChIP_peaks.genes - Résumer la sortie en utilisant la commande awk suivante pour répertorier le nombre (N), l'emplacement et le nombre normalisé de lecture de l'individu (R) et tous les sommets (LR) par le plus proche (cible) gène.
> Awk 'BEGIN {FS =' t '} $ 7> = -5,000 && $ 7 <= 1000
{[$ 8] N + = 1; R [$ 8] = + $ 9; LR [$ 8] = LR [$ 8] ", &# 39; $ 7 '(' $ 9 ')'} END {for (i in N)
{Print i ' t' N [i] ' t' R [i] ' t' substr (LR [i], 2)}} 'ChIP_peaks.genes> ChIP_peaks.summary
REMARQUE: Le nombre après $ se réfère au nombre de colonne, qui peuvent avoir besoin de modifier pour se adapter le fichier ChIP_peaks.genes créé à l'étape précédente. Cet exemplaire de script filtre les pics au-delà de 5 kb en amont et en aval de 1 kb du TSS. 7 $, 8 $ et $ 9 référer à la distance à la TSS, l'identifiant du gène et le nombre normalisé de lecture par crête, respectivement. - Effectuer l'analyse des termes de GO enrichies entre les gènes cibles comme suit:
- Lancer l'interface utilisateur graphique de Blast2GO partir de la ligne de commande via Java Web Start (javaws) 19.
> Javaws http://blast2go.com/webstart/blast2go1000.jnlp - Suivez les instructions des développeurs de télécharger l'annotationdéposer des gènes de Xenopus (xenTro7.annot) que générée en 1.9.4 et un fichier plat de gènes cibles identifiés. Assurez-vous que les mêmes identificateurs de gènes sont utilisés dans les deux fichiers.
- Lancer l'interface utilisateur graphique de Blast2GO partir de la ligne de commande via Java Web Start (javaws) 19.
- Visualisez les profils de la chromatine en ajoutant Bigwig (ChIP.bw, Input.bw) et les fichiers de LIT (ChIP_peaks.bed) dans IGV que des pistes. Données complètent avec un ARN-Seq pistes si disponible pour le même stade de développement. Enregistrer les résultats sous une session.
- Utilisez programmation plates-formes R (www.r-project.org) ou MATLAB pour manipuler davantage et visualiser les données que produit ci-dessus. Alternativement, tracer de petits ensembles de données avec Excel.
10. ChIP-qPCR pour les essais puce et Confirmant ChIP-Seq
- Utiliser la plate-forme en ligne Primer3 pour concevoir des amorces qui entourent approximativement 100 pb de l'ADN à 60 ° C (T m) pour les deux loci de commande (PEAK-spécifiques) et négatives positives. Confirmer la spécificité amorce en utilisant in silico Recherche PCR mis en œuvre dans le navigateur UCSC Genome.
- Créer une courbe standard 8-point de dilutions au tiers à partir d'environ 1% entrée ou utiliser le 2 - Méthode ΔΔC (T) 8,24 pour la quantification de l'enrichissement de l'ADN.
- Exécuter PCR en temps réel en triple techniques pour tous les échantillons, à savoir, la puce, le contrôle et, le cas échéant, des échantillons de la courbe standard.
- Plot ADN enrichissement comme le pourcentage d'ADN d'entrée ou en tant que rapport de la puce par rapport à l'échantillon de contrôle à deux loci de contrôle positifs et négatifs.
Résultats
Des résultats équivalents à ceux présentés ici sont attendus si le protocole est bien exécuté et l'anticorps en cours d'utilisation est de qualité ChIP qualité (voir la discussion). Ce protocole permet l'extraction des noyaux d'embryons de Xenopus fixés au formaldehyde et le cisaillement efficace de la chromatine par sonication (figure 1A-C). Chromatine rasé montre une distribution asymétrique des fragments d'ADN principalement allant de 100 à 1000 pb et un pic entre 300 et 500 pb (figure 1C). Un minimum de 50 pg d'ADN immunoprécipité est tenu de faire avec succès un jumelé fin bibliothèque de ChIP-Seq indexées avec des inserts d'ADN de taille similaire (figure 2A). La bibliothèque devrait être largement dépourvue de dimères de l'adaptateur, qui peut être vu sur le électrophérogramme à environ 120 pb.
Après séquençage par synthèse, pré-traitée lit sont mappés au génome (figure 2B, C). Dans une expérience réussie avec X. embryons tropicalis, normalement 50 à 70% de mono-lit extrémité de 40 pb peut être mappée de manière unique à l'ensemble du génome de v7.1 avec au maximum deux mésappariements. Bien entrée lit aligner uniformément sur tout le génome, l'alignement de la puce à lit résultats enrichissement spécifique brin qui flanquent la fonction de la chromatine d'intérêt. Ce est parce que tous les fragments sont séquencés de l'extrémité 5 '(figure 2C) 25. Extension de l'alignement à la lecture de la direction à une taille moyenne de fragment produit des profils précis pour les éléments de la chromatine simples tels que les événements de liaison du facteur de transcription. Ces occupations d'ADN apparaissent comme des pics lorsque visualisée dans IGV ou tout autre navigateur compatible génome. Appelants pointe comme MACS sont utilisés pour déterminer l'emplacement de ces pics (figure 3A). De cette façon, des dizaines de milliers de sites de liaison ont été déterminées dans le X. tropicalis génome pour T-box facteurs de transcription tels que Vegt 26. ChIP-qPCR expéments devraient confirmer l'enrichissement locale trouvée par ChIP-Seq (figure 3B).
expériences de ChIP-Seq permettent d'explorer les caractéristiques de l'ensemble du génome de caractéristiques de la chromatine. Par exemple, calculer la répartition de lecture sur les éléments génomiques telles que le démarrage de la transcription et de sites de terminaison peut mettre en évidence les préférences contraignantes spatiales autour de gènes (figure 3C). De même, un heatmap des distributions de lecture à des endroits de pointe est utilisé pour comparer différentes caractéristiques de la chromatine à l'échelle du génome entier (Figure 3D). Certains facteurs de transcription se lient séquence d'ADN spécifiquement. De novo analyse de motif de pics sous-jacentes de l'ADN génomique peut récupérer ce genre d'information, y compris les motifs de co-enrichi de co-facteurs potentiels (Figure 3E). La grande majorité des gènes cibles montrent ADN occupation à un plus bas plutôt que niveau plus élevé (figure 3F). Cette fonctionnalité sans échelle semble être assez fréquent chez les trfacteurs de anscription et suggère que seule une petite fraction de gènes cibles sont directement réglé avec pertinence biologique 27,28. L'analyse des termes de GO enrichis ou d'autres attributs tels que l'expression différentielle des gènes cibles peut en outre révéler un aperçu de la fonction biologique de la fonction de la chromatine dans l'embryon de Xenopus (figure 3G).
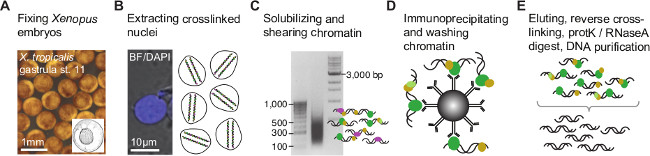
Figure 1. La chromatine procédure d'immunoprécipitation pour les embryons de Xenopus. (A) Les embryons sont le formaldéhyde-fixe au stade de développement de l'intérêt pour lier de manière covalente (réticulation) des protéines associées à l'ADN génomique. Lors de l'extraction nucléaire (B), la chromatine réticulé est fragmentée pour affiner l'ADN génomique de liaison ou les sites de modification de la chromatine en minimisant le DN d'accompagnementUne séquence (C). Par la suite, les fragments de chromatine sont immunoprécipités avec un anticorps ChIP de qualité pour enrichir ceux contenant l'épitope d'intérêt (D). L'ADN de co-immunoprécipitée est enlevé la protéine et purifié (E) avant de créer la banque de fragments de puce pour NGS (Figure 2). Se il vous plaît cliquer ici pour voir une version plus grande de cette figure.
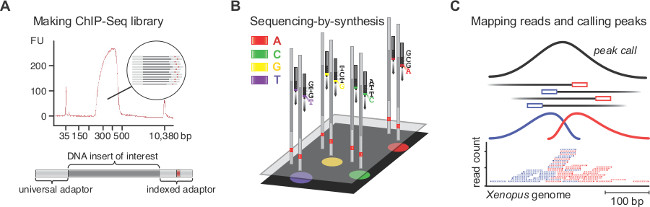
Figure 2. Préparation de la bibliothèque ChIP-Seq, le séquençage par synthèse, la cartographie et les appels de pointe. (A) Le électrophérogramme affiche une bonne bibliothèque de ChIP-Seq avec des modèles d'ADN de 250 à 450 pb. Ces modèles comportent l'insert d'ADN d'intérêt flanquée par le universel (58 pb) et la (63 pb) indexé adaptateur (B). Des millions de grappes, avec chaque groupe contenant des modèles identiques, sont la base séquencée par la base, en présence des quatre nucléotides possédant réversible, fluorophore distincte et propriétés de terminaison identiques. Images fluorescentes sont traitées en temps réel pour appeler bases correspondantes, qui sont finalement assemblés en lit. (C) ne lit que cette carte unique pour le génome de Xenopus sont conservés. Comme tous les fragments sont séquences à partir de l'extrémité 5 ', la mise en correspondance de résultats en lit ChIP pics spécifiques à brin qui flanquent la fonction de la chromatine d'intérêt. Ainsi, les appelants pointe détectent l'enrichissement qui provient immunoprécipitation et d'étendre le lit à une longueur moyenne des fragments de localiser avec précision les caractéristiques de la chromatine. Se il vous plaît cliquer ici pour voir une version plus grande de cette figure.

Figure 3. Un exemple d'analyse post-séquençage et la visualisation de données au moyen du facteur T-boîte de zygotique transcription Vegt (zVegT). Tous lire chiffres indiqués ici sont normalisés à 10 millions cartographié de façon unique et non redondant lectures. (A) Extrait du profil de l'ensemble du génome de zVegT obligatoire dans X. Les embryons de tropicalis (stade 11 à 12,5 après Nieuwkoop et Faber 29). Chaque pic, un carambolage de lit étendu, représente un site de liaison. Ces pics sont appelés par MACS2 avec un taux de fausse découverte (FDR) de moins de 1%. Chaque gène MESP montre liaison zVegT très proximale et en amont, mais seulement mespa et mespb sont exprimés à ce stade (données d'ARN-Seq 30). (B) le taux d'occupation de l'ADN de zVegT tel que déterminé par ChIP-qPCR à plusieurs loci (y compris un non région liØe 0,5 kb en amont du β-actine) confirm l'enrichissement spécifique trouvée par ChIP-Seq. Comparer les résultats pour mespa avec un pic appelé (barre rouge) dans (A). Le taux d'occupation de l'ADN est visualisé en tant que pourcentage de l'entrée à la fois, la puce avec l'anticorps Vegt (polyclonal de lapin d'isotype IgG) et la puce avec l'anticorps de contrôle (IgG de lapin normal). Les barres d'erreur reflètent l'écart type de deux répétitions biologiques. (C) metagene analyse montre liaison zVegT préférentiel (balises binned plus de 25 pb) au promoteur par rapport à toute autre région génomique autour et au sein des organes de gènes. (D) Heatmap montre k-moyenne cluster niveaux (k = 5) d'occupation d'ADN (tags binned plus de 25 pb) et du zVegT Smad2 / Smad3 (données de la puce-Seq 31) par rapport à toutes les régions zVegT-liés au stade de la gastrula. Le heatmap est log 2 basé et centré à 5 étiquettes par pb. (E) De novo analyse de motif découvre le motif de liaison canonique T-box facteur de transcription dans 38% des zVegT-régions à destination si le score de motif sous-jacent est normalisée à un taux de découverte de 5% dans les séquences de fond. La carte de densité montre plus haut enrichissement pour le motif T-box dans le centre de sites de liaison zVegT, alors que le motif de liaison Smad2 / Smad3 canonique est peu enrichi. (F) de l'histogramme montre les taux d'occupation de l'ADN de zVegT, qui sont calculées pour chaque gène cible de tous les pics (+/- 200 pb) entre 5 kb en amont [-]. et 1 kb en aval [+] de sites de départ de transcription correspondant (G) Top 300 gènes avec plus hauts niveaux d'occupation de l'ADN au sein de -5 kb et 1 kb sont enrichi pour les processus biologiques du développement embryonnaire précoce. Ceux-ci vont termes sont en ligne avec la fonction putative de zVegT. Le FDR est basée sur un test exact de Fisher bilatéral et corrigé pour les tests multiples. Se il vous plaît cliquer ici pour voir une version plus grande de cette figure.
Discussion
Notre protocole décrit comment faire et d'analyser les profils de la chromatine génome entier à partir d'embryons de xénope. Il couvre toutes les étapes à partir de protéines de réticulation pour les loci endogènes in vivo pour traiter des millions de lectures représentant des sites génomiques enrichies en silico. Depuis nombre croissant de projets de génome sont disponibles, ce protocole devrait être applicable à d'autres organismes modèles et non-modèle. La partie expérimentale la plus importante, qui établit ce protocole en dehors du travail précédente 8,31,33,34, est la procédure post-fixation pour extraire des noyaux réticulés. Il facilite efficace solubilisation de la chromatine et cisaillement et upscaling facile. Ensemble, avec des rendements améliorés de préparation bibliothèque ce protocole permet la construction de bibliothèques ChIP-Seq haute complexité de la moitié aux deux millions de cellules exprimant l'épitope de la chromatine associée d'intérêt. Pour les expériences ChIP-qPCR, quelques dix mille de ces cellules sont normalement assezde vérifier pour l'enrichissement de l'ADN à peut-être six loci génomiques distincts. Ces chiffres sont des estimations prudentes, mais peut varier selon le niveau d'expression de protéines, la qualité d'anticorps, l'efficacité et l'accessibilité épitope de réticulation. Comme un guide, un seul embryon de Xenopus contient environ 4000 cellules au stade mi-blastula (8,5 après Nieuwkoop et Faber 29), 40 000 cellules à la fin du stade gastrula (12) et 100 000 cellules au stade de bourgeon caudal tôt (20).
Le temps de fixation exacte pour immunoprécipitation efficace doit être déterminée empiriquement par Chip-qPCR (article 10). En général, plus temps de fixation sont nécessaires si l'expérience implique X. laevis embryons, premiers stades de développement, et des propriétés de liaison d'ADN faibles (ou indirects). Cependant, il ne est pas recommandé de fixation Xenopus embryons plus de 40 min, ou le traitement de plus d'embryons que indiqué (section 3), la chromatine cisaillement devient moins efficace. Il est important de ne pasà utiliser toute la glycine après fixation que cette étape commune pour trempe formaldéhyde peut faire l'extraction nucléaire à partir d'embryons jaune riche très difficiles. Actuellement, la raison de cela ne est pas connue. Il est concevable que le produit d'addition formaldéhyde-glycine réagit en outre avec des groupes amino ou 35 résidus d'arginine N-terminale.
L'anticorps est la clé de toute expérience de la puce et des contrôles suffisants doivent être menées pour montrer sa spécificité pour l'épitope d'intérêt (voir les lignes directrices par Landt et al. 36). Si aucun anticorps ChIP qualité est disponible, l'introduction de protéines de fusion de marquage épitopique correspondant peut être une alternative légitime que ces protéines peuvent occuper endogène sites de liaison 37. Dans ce cas, les embryons non-injecté sont les meilleurs à utiliser comme contrôle négatif plutôt que d'une puce avec du sérum non spécifique. Cette stratégie peut également être appliquée si la protéine d'intérêt est exprimée à faibles niveaux résultant de la mauvaise récupération des enriADN CHED.
Comme pour la fabrication de bibliothèques ChIP-Seq, en raison de la faible quantité d'ADN en cours d'utilisation, il est recommandé d'opter pour des procédures qui réduisent le nombre d'étapes de nettoyage et de combiner des réactions de garder toute perte d'ADN au minimum. Les adaptateurs et les amorces doivent être compatibles avec le séquençage multiplex et la plate-forme NGS (voir le tableau de matériaux spécifiques / Équipement). Si l'on utilise des adaptateurs en Y (contenant de longs bras simple brin), il est essentiel d'effectuer une pré-amplifier la bibliothèque de trois à cinq cycles de PCR avant inserts d'ADN grandeur de sélection (par ex., 100 à 300 pb) par électrophorèse sur gel. Extrémités simple brin causent des fragments d'ADN de migrer hétérogène. Essai fonctionne avec différentes quantités d'ADN d'entrée (par exemple, 0,1, 0,5, 1, 2, 5, 10 et 20 ng) sont recommandés pour déterminer le nombre total de cycles de PCR (inférieur ou égal à 18 cycles) nécessaire pour effectuer une taille Sélectionnée bibliothèque de 100 à 200 ng. Réduire le nombre de cycles de PCR rend le séquençage de Redundant lit moins probable. Phase solide perles d'immobilisation sont réversibles bonne nettoyage réactifs de récupérer efficacement l'ADN d'intérêt et fiable retirez les cartes gratuites et des dimères de ligature et les réactions PCR.
En termes de nombre, le type et la durée de lit, autour de 20 à 30 millions seule fin lit de 36 pb est suffisant pour la plupart des expériences de ChIP-Seq pour couvrir l'ensemble du génome de Xenopus avec la profondeur suffisante. Les machines de l'END les plus fréquentes sont régulièrement capables de répondre à ces critères. Cependant, il peut être avantageux d'augmenter le nombre de lectures si un larges distributions de lit est prévu, comme observé avec les modifications des histones, plutôt que des pics nets. Pour de nombreuses expériences de ChIP-Seq, 4-5 bibliothèques différemment indexées peuvent être regroupées et séquencées dans un flux voie de cellule en utilisant un haute performance NGS machine. Parfois est également conseillé de prolonger la durée de lecture et la séquence deux extrémités de la matrice d'ADN (jumelé-end) pour augmenter cartographiabilité wpoule analyse chromatine au sein des régions génomiques répétitives.
Ce protocole a été appliqué avec succès à une large variété de fonctions de la chromatine tels que les facteurs de transcription, des médiateurs de signalisation et des modifications des histones post-traductionnelles. Cependant, les embryons acquérir un degré croissant d'hétérogénéité cellulaire dans l'élaboration de profils de la chromatine et deviennent plus difficiles à interpréter. Des mesures prometteuses ont été faites chez Arabidopsis et Drosophila aux paysages chromatine tissus spécifiquement profil en extrayant cellulaires noyaux spécifiques de type 38,39. Notre protocole comprend une étape d'extraction nucléaire, qui pourrait ouvrir la voie à tissu-spécifique ChIP-Seq dans d'autres embryons.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont pas d’intérêts financiers concurrents.
Remerciements
Nous remercions Chris Benner pour l’implémentation du génome de X. tropicalis (xenTro2, xenTro2r) dans HOMER et le laboratoire Gilchrist pour les discussions sur l’analyse post-séquençage. G.E.G et J.C.S. ont été soutenus par le Wellcome Trust et sont maintenant soutenus par le Conseil de recherches médicales (numéro de programme U117597140).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Micro-embout conique 1/16 pouce | Qsonica | 4417 | Ce micro-embout est compatible avec le Sonicator 3000 de Misonix et le Q500/700 de Qsonica. |
| Flacon d’échantillon en verre de 8 ml avec bouchon Wheaton | 224884 | Flacons d’échantillons en verre transparent de 8 ml pour échantillons aqueux avec bouchons à vis doublés de caoutchouc phénolique de taille 15-425. | |
| Adaptateur | , par exemple adaptateur universel IDT ou Sigma | NA | TruSeq,
AATGATACGGCGACCACCGAG ATCTACACTCTTTCCCTACAC GACGCTCTTCCGATC*T. Adaptateur indexé TruSeq, P-GATCGGAAGAGCACACGTC TGAACTCCAGTCAC ‐ ; NNNNNNN‐ ; ATCTCGTATGCCGTCT TCTGCTT*G. *, groupe phosphate de liaison phosphorothioate à 5' fin. NNNNNNN, index (voir le Guide de préparation des échantillons TruSeq ChIP pour la séquence d’ADN). Commandez des adaptateurs HPLC purifiés. Les adaptateurs peuvent être préparés en combinant des quantités équimolaires (chaque 100 µ ; M) de l’adaptateur universel et de l’adaptateur indexé et en les refroidissant lentement de 95 ° ; C à température ambiante. Utilisez 1,5 pmol par ng d’ADN d’entrée. Conserver à -20 ° ;C. |
| b2g4pipe (logiciel) | Blast2GO | non commercial | http://www.blast2go.com/data/blast2go/b2g4pipe_v2.5.zip |
| BLAST+ (logiciel) | Camacho et al. | non commercial | http://blast.ncbi.nlm.nih.gov/Blast.cgi?PAGE_TYPE=BlastDocs& ; DOC_TYPE=Télécharger |
| Bowtie (logiciel) | Langmead et al. | non commercial | http://bowtie-bio.sourceforge.net/index.shtml |
| cisFinder (logiciel) | Sharov et al. | non commerciale | http://lgsun.grc.nia.nih.gov/CisFinder/ |
| Puce pour électrophorèse capillaire | Agilent Technologies | 5067-1504 | Chargez cette puce avec 1 µ ; l ADN pour le contrôle de la qualité des bibliothèques. Conserver à 4 °C. |
| Système d’électrophorèse capillaire sur puce | Agilent Technologies | G2940CA | Le BioAnalyzer Agilent 2100 est utilisé pour vérifier la qualité des banques ChIP-Seq. Maintenir les réactifs à 4 &°C. |
| Kit de préparation de la banque ChIP-Seq (KAPA Hyper Prep Kit) | KK8504 | Kapa Biosystems | contient un mélange d’enzymes de réparation d’extrémité et de queue A, un tampon de réparation d’extrémité et de queue A, une ligase d’ADN, un tampon de ligature, un mélange d’amorces d’amplification de bibliothèque KAPA HiFi HotStart ReadyMix (2X) et un mélange d’amorces d’amplification de bibliothèque KAPA (10X) (voir également amorces PCR). Les adaptateurs ne sont pas inclus. Conserver à -20 ° ;C. |
| Kit de préparation de banque ChIP-Seq (alternative, ThruPLEX-FD Prep Kit) | Le kit Rubicon Genomics | R40048 | utilise ses propres adaptateurs de boucle de tige et amorces. Ce kit élimine les étapes de purification intermédiaires et est aussi sensible que le kit KAPA Hyper Prep. Conserver à -20 ° ;C. |
| Cluster3 (software) | de Hoon et al. | non commercial | http://bonsai.hgc.jp/~mdehoon/software/cluster |
| FastQC (logiciel) | Simon Andrews | http://www.bioinformatics.babraham.ac.uk/projects/fastqc non commercial | |
| Technologies de vie | fluorimètre | Q32866 | Fluorimètre Qubit 2.0 |
| de la vie | réactifs du fluorimètre | Q32851 | Le kit fournit un réactif de dosage concentré, un tampon de dilution et des étalons d’ADN pré-dilués pour le fluorimètre Qubit. Stocker les étalons d’ADN à 4 ° ; C, tamponner et colorant à température ambiante. |
| Formaldéhyde | Sigma | F8775-4X25ML | Solution de formaldéhyde, pour la biologie moléculaire, 36,5-38 % dans H2O, stabilisée avec 10-15 % de méthanol. Conserver à température ambiante. ATTENTION : Le formaldéhyde est corrosif et hautement toxique. |
| Gel (E-Gel EX agarose, 2 %) | life technologies | G4010 | Gel prémoulé avec 11 puits, format ouvrant. Laissez une voie vide entre l’échelle et la bibliothèque pour éviter la contamination croisée. Conservez les gels à température ambiante. |
| Système d’électrophorèse sur gel | G6465 | Kit combiné E-Gel iBase et E-Gel Safe Imager pour la sélection de la taille des bibliothèques ChIP-Seq. | |
| Kit d’extraction de gel | Qiagen | 28706 | Conservez tous les réactifs à température ambiante. Utilisation 500 & micro ; l de tampon QG pour 100 mg de tranche de gel d’agarose à 2 % pour extraire l’ADN. Utilisez les colonnes MinElute (du kit de purification PCR MinElute) pour éluer l’ADN deux fois. |
| HOMER (logiciel) | Chris Benner | http://homer.salk.edu/homer/index.html non commercial | |
| Four d’hybridation | Techne | FHB1D | Hybridizer HB-1D |
| IGV (logiciel) | Robinson et al. | non commercial | http://www.broadinstitute.org/igv/home |
| Filtre de qualité Illumina CASAVA-1.8 (logiciel) | Assaf Gordon | non commercial | http://cancan.cshl.edu/labmembers/gordon/fastq_illumina_filter |
| Java TreeView (logiciel) | Alok Saldanha | non commercial | http://jtreeview.sourceforge.net |
| Laboratory jack | Edu-Lab | CH0642 | Cette prise est utilisée pour élever l’échantillon dans l’enceinte sonore pour la sonication. |
| Échelle, 100 pb | New England BioLabs | N3231 | Conserver 1x solution à température ambiante. Stocker le stock à -20 °C. |
| Échelle, 1 kb | New England BioLabs | N3232 | Conservez 1x solution à température ambiante. Stocker le stock à -20 °C. |
| Tubes de microcentrifugation à faible rétention de 1,5 ml | technologies de vie | AM12450 | tubes de microfuge antiadhésifs sans RNase, 1,5 ml |
| MACS2 (logiciel) | Tao Liu | non commercial | https://github.com/taoliu/MACS |
| Perles magnétiques | life technologies | 11201D | Ces Dynabeads sont des billes superparamagnétiques avec des IgG de mouton polyclonaux de mouton purifiés par affinité liés de manière covalente à la surface de la bille. Conserver à 4 °C. |
| Perles magnétiques | life technologies | 11203D | Ces Dynabeads sont des billes superparamagnétiques avec affinité purifiée polyclonale de mouton IgG anti-lapin liées de manière covalente à la surface de la bille. Conserver à 4 °C. |
| 10001D | Ces Dynabeads sont des billes superparamagnétiques avec la protéine A recombinante liée de manière covalente à la surface de la bille. Conserver à 4 °C. | ||
| 10003D | Ces Dynabeads sont des billes superparamagnétiques avec la protéine G recombinante liée de manière covalente à la surface de la bille. Conserver à 4 °C. | ||
| Magnetic rack | life technologies | 12321D | DynaMag-2 |
| aimant MEME | Bailey et al. | non commercial | http://meme.nbcr.net/meme/ |
| Na3VO4 | New England BioLabs | P0758 | L’orthovanadate de sodium (100 mM) est un inhibiteur général couramment utilisé pour les protéines phosphotyrosyl phosphatases. Conserver à -20 ° ;C. |
| Le | fluorure de sodium (500 mM) est couramment utilisé comme inhibiteur général des phosphoséryl et des phosphothréonylphosphatases. Conserver à -20 ° ;C. | ||
| Machine NGS | Illumina | SY-301-1301 | Genome Analyzer IIx |
| Machine NGS (haute performance) | Illumina | SY-401-2501 | HiSeq |
| Sérum normal (contrôle des anticorps) | Santa Cruz Biotechnology | sc-2028 | Utilisation comme contrôle pour les anticorps IgG polyclonaux de chèvre dans les expériences ChIP-qPCR. Conserver à 4 °C. |
| Sérum normal (contrôle des anticorps) | Santa Cruz Biotechnology | sc-2025 | Utilisation comme contrôle des anticorps IgG polyclonaux de souris dans les expériences ChIP-qPCR. Conserver à 4 °C. |
| Sérum normal (contrôle des anticorps) | Santa Cruz Biotechnology | sc-2027 | Utilisation comme contrôle des anticorps IgG polyclonaux de lapin dans les expériences ChIP-qPCR. Conserver à 4 °C. |
| Solution de coloration des acides nucléiques | iNtRON | 21141 | Utilisez la solution de coloration des acides nucléiques RedSafe à 1:50 000. Conserver à température ambiante. |
| Orange G | Sigma | O3756-25G | Sel disodique d’acide 1-phénylazo-2-naphtol-6,8-disulfonique. Conserver à 4 °C. |
| Amorces PCR | , par exemple IDT ou Sigma | Amorces pour enrichir les fragments d’ADN ligaturés par adaptateur par PCR : AATGATACGGCGACCACCGA*G et CAAGCAGAAGACGGCATACGA*G, liaison phosphorothioate. Apprêts conçus par Ethan Ford. Combinez les apprêts à 5 et micro ; M chacun. Utilisation 5 & micro ; l dans un 50 µ ; l Réaction PCR. Conserver à -20 ° ;C. | |
| Kit de purification PCR MinElute ; | Qiagen | 28006 | pour la purification des échantillons de test ChIP-qPCR et de cisaillement. Stocker les colonnes de spin MinElute à 4 ° ; C, tous les autres tampons et tubes de collecte à température ambiante. |
| Phénol :chloroforme :alcool isoamylique (25:24:1, pH 7,9) | technologies de vie | AM9730 | Phénol :Chloroforme :IAA (25:24:1) est prémélangé et fourni à pH 6,6. Utilisez le tampon alcalin Tris fourni pour augmenter le pH à 7,9. Conserver à 4 °C. ATTENTION : l’alcool phénol :chloroforme :isoamylique est corrosif, hautement toxique et combustible. |
| Primer3 (logiciel) | Steve Rozen & Helen Skaletsky | non commercial | http://biotools.umassmed.edu/bioapps/primer3_www.cgi |
| comprimés inhibiteurs de protéase | Roche | 11836170001 | cOmplete, Mini, sans EDTA. Utiliser 1 comprimé pour 10 ml. Conserver à 4 °C. |
| Comprimés inhibiteurs de protéase | Roche | 11873580001 | complets, sans EDTA. Utiliser 1 comprimé pour 50 ml. Conserver à 4 °C. |
| Protéinase K | life technologies | AM2548 | protéinase K solution (20 & micro ; g/µ ; l). Stocker à -20 ° ;C. |
| RNase A | technologies de la vie | 12091-039 | RNase A (20 & micro ; g/µ ; l). Conserver à température ambiante. |
| Rotator | Stuart | SB3 | Rotator SB3 |
| SAMtools (logiciel) | Li et al. | non commercial | http://samtools.sourceforge.neta |
| Perles d’immobilisation réversibles en phase solide | Beckman Coulter | A63882 | Les billes Agencourt AMPure XP sont utilisées pour minimiser la contamination des dimères d’adaptateur dans les bibliothèques ChIP-Seq. Conserver à 4 °C. |
| Sonicator 3000 | Misonix/Qsonica | De nouveaux modèles sont maintenant disponibles. Q125, Q500 ou Q700 conviennent tous au cisaillement de la chromatine réticulée. | |
| Enceinte acoustique | Misonix/Qsonica | en option : suivez les recommandations du fabricant pour obtenir l’enceinte acoustique appropriée. | |
| Thermomixeur | eppendorf | 22670000 | Thermomélangeur pour 24 tubes de 1,5 ml. Contrôle précis de la température à partir de 4 ° ; C au-dessus de la température ambiante à 99 °C. |
Références
- Gilmour, D. S., Lis, J. T. Detecting protein-DNA interactions in vivo: distribution of RNA polymerase on specific bacterial genes. Proc Natl Acad Sci U S A. 81 (14), 4275-4279 (1984).
- Gilmour, D. S., Lis, J. T. In vivo interactions of RNA polymerase II with genes of Drosophila melanogaster. Mol Cell Biol. 5 (8), 2009-2018 (1985).
- Solomon, M. J., Larsen, P. L., Varshavsky, A. Mapping protein-DNA interactions in vivo with formaldehyde: evidence that histone H4 is retained on a highly transcribed gene. Cell. 53 (6), 937-947 (1988).
- Ren, B., et al. Genome-wide location and function of DNA binding proteins. Science. 290 (5500), 2306-2309 (2000).
- Johnson, D., Mortazavi, A., Myers, R., Wold, B. Genome-wide mapping of in vivo protein-DNA interactions. Science. 316 (5830), 1497-1502 (2007).
- Hellsten, U., et al. The genome of the Western clawed frog Xenopus tropicalis. Science. 328 (5978), 633-636 (2010).
- Lee, T. I., Johnstone, S. E., Young, R. A. Chromatin immunoprecipitation and microarray-based analysis of protein location. Nature Protocols. 1 (2), 729-748 (2006).
- Blythe, S. A., Reid, C. D., Kessler, D. S., Klein, P. S. Chromatin immunoprecipitation in early Xenopus laevis embryos. Dev Dyn. 238 (6), 1422-1432 (2009).
- Gentsch, G. E., Smith, J. C. Investigating physical chromatin associations across the Xenopus genome by chromatin immunoprecipitation. Cold Spring Harb Protoc. 2014 (5), (2014).
- Ubbels, G. A., Hara, K., Koster, C. H., Kirschner, M. W. Evidence for a functional role of the cytoskeleton in determination of the dorsoventral axis in Xenopus laevis eggs. J Embryol Exp Morphol. 77, 15-37 (1983).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biol. 10 (3), R25(2009).
- Li, H., et al. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Heinz, S., et al. Simple combinations of lineage-determining transcription factors prime cis-regulatory elements required for macrophage and B cell identities. Mol Cell. 38 (4), 576-589 (2010).
- Zhang, Y., et al. Model-based analysis of ChIP-Seq (MACS). Genome Biol. 9 (9), R137(2008).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Thorvaldsdottir, H., Robinson, J. T., Mesirov, J. P. Integrative Genomics Viewer (IGV): high-performance genomics data visualization and exploration. Brief Bioinform. 14 (2), 178-192 (2013).
- Imoto, S., Nolan, J., Bioinformatics Miyano, S. 20 (9), 1453-1454 (2004).
- Camacho, C., et al. BLAST+: architecture and applications. BMC Bioinformatics. 10, 421(2009).
- Conesa, A., et al. Blast2GO: a universal tool for annotation, visualization and analysis in functional genomics research. Bioinformatics. 21 (18), 3674-3676 (2005).
- Sive, H., Grainger, R., Harland, R. Early development of Xenopus laevis: A laboratory manual. , Cold Spring Harbor Laboratory Press. Cold Spring Harbor, New York. (2000).
- Chen, Y., et al. Systematic evaluation of factors influencing ChIP-seq fidelity. Nat Methods. 9 (6), 609-614 (2012).
- Sharov, A. A., Ko, M. S. H. Exhaustive search for over-represented DNA sequence motifs with CisFinder. DNA Res. 16 (5), 261-273 (2009).
- Bailey, T. L., et al. MEME SUITE: tools for motif discovery and searching. Nucl Acids Res. 37 (2), W202-W208 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Park, P. J. ChIP-seq: advantages and challenges of a maturing technology. Nat Rev Genet. 10 (10), 669-680 (2009).
- Gentsch, G. E., et al. In vivo T-box transcription factor profiling reveals joint regulation of embryonic neuromesodermal bipotency. Cell Rep. 4 (6), 1185-1196 (2013).
- Barabasi, A. L., Oltvai, Z. N. Network biology: understanding the cell's functional organization. Nat Rev Genet. 5 (2), 101-113 (2004).
- Biggin, M. D. Animal transcription networks as highly connected, quantitative continua. Dev Cell. 21 (4), 611-626 (2011).
- Nieuwkoop, P. D., Faber, J. Normal table of Xenopus laevis (Daudin): a systematical and chronological survey of the development from the fertilized egg till the end of metamorphosis. , Garland. New York & London. (1994).
- Akkers, R. C., et al. A hierarchy of H3K4me3 and H3K27me3 acquisition in spatial gene regulation in Xenopus embryos. Dev Cell. 17 (3), 425-434 (2009).
- Yoon, S. J., Wills, A. E., Chuong, E., Gupta, R., Baker, J. C. HEB and E2A function as SMAD/FOXH1 cofactors. Genes Dev. 25 (15), 1654-1661 (2011).
- Jallow, Z., Jacobi, U. G., Weeks, D. L., Dawid, I. B., Veenstra, G. J. Specialized and redundant roles of TBP and a vertebrate-specific TBP paralog in embryonic gene regulation in Xenopus. Proc Natl Acad Sci U S A. 101 (37), 13525(2004).
- Buchholz, D. R., Paul, B. D., Shi, Y. -B. Gene-specific changes in promoter occupancy by thyroid hormone receptor during frog metamorphosis. Implications for developmental gene regulation. J Biol Chem. 280 (50), 41222-41228 (2005).
- Wills, A. E., Guptaa, R., Chuonga, E., Baker, J. C. Chromatin immunoprecipitation and deep sequencing in Xenopus tropicalis and Xenopus laevis. Methods. 66 (3), 410-421 (2014).
- Metz, B., et al. Identification of formaldehyde-induced modifications in proteins: reactions with model peptides. J Biol Chem. 279 (8), 6235-6243 (2004).
- Landt, S. G., et al. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Res. 22 (9), 1813-1831 (2012).
- Mazzoni, E. O., et al. Embryonic stem cell-based mapping of developmental transcriptional programs. Nat Methods. 8 (12), 1056-1058 (2011).
- Deal, R. B., Henikoff, S. A simple method for gene expression and chromatin profiling of individual cell types within a tissue. Dev Cell. 18 (6), 1030-1040 (2010).
- Bonn, S., et al. Tissue-specific analysis of chromatin state identifies temporal signatures of enhancer activity during embryonic development. Nat Genet. 44 (2), 148-156 (2012).
Réimpressions et autorisations
