Nous présentons ici un protocole à la tuberculose humaine de modèle dans un poisson-zèbre adulte à l’aide de son naturel pathogène Mycobacterium marinum. Extraits ADN et l’ARN des organes internes du poisson-zèbre infecté peuvent servir à révéler que le total mycobactériens charge dans le poisson et les réponses immunitaires de l’hôte avec le qPCR.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Modélisation de la tuberculose chez Mycobacterium marinum adultes infectés poisson zèbre
Dans cet article
Résumé
Résumé
Mycobacterium tuberculosis est actuellement la plus meurtrière pathogène humain causant des infections 10,4 millions et 1,7 millions de décès chaque année. L’exposition à cette bactérie provoque un spectre large de la maladie chez les humains, allant d’une infection stérilisée à une maladie mortelle activement progresse. La forme la plus courante est la tuberculose latente, qui est asymptomatique, mais a le potentiel pour réactiver en une maladie fulminante. Poisson zèbre adulte et son naturel pathogène Mycobacterium marinum ont récemment prouvé un modèle il y a lieu d’étudier le spectre large de la maladie de la tuberculose. Ce qui est important, latence spontanée et réactivation ainsi que des réponses immunitaires adaptatives dans le cadre des infections à mycobactéries peuvent être étudiées dans ce modèle. Dans cet article, nous décrivons des méthodes pour l’infection expérimentale de poisson-zèbre adulte, la collection des organes internes pour l’extraction des acides nucléiques pour la mesure des charges mycobactériennes et réponses immunitaires hôte par PCR quantitative. L’in-house-développé, M. marinum -essai de qPCR spécifique est plus sensible que les méthodes traditionnelles de placage car il détecte également les ADN des mycobactéries non-divisant, dormants ou morts récemment. Comme l’ADN et l’ARN sont extraites de la même personne, il est possible d’étudier les relations entre l’état du malade et l’expression génique hôte et du pathogène. Le modèle de poisson-zèbre adulte pour la tuberculose se présente donc comme un système hautement applicable non mammifères in vivo pour étudier les interactions hôte-pathogène.
Introduction
Poisson zèbre (Danio rerio) est un modèle animal largement utilisé dans la recherche biomédicale et c’est un modèle accepté pour la biologie des vertébrés commun. Le poisson-zèbre a été adapté à de nombreux domaines de recherche modélisation des maladies humaines et troubles allant du cancer1 et2 de la maladie cardiaque aux maladies infectieuses et immunologiques de plusieurs bactéries 3 et infections virales4 , 5. en outre, le développement ex utero des embryons de poisson-zèbre a rendu le poisson-zèbre un modèle populaire en biologie du développement6 et toxicologie7,8.
Dans de nombreux domaines de recherche, y compris la biologie de l’infection, les larves de poisson zèbre optiquement transparent sont couramment utilisés. Les premières cellules immunitaires apparaissent dans les 24 h après la fécondation (hpf), lorsque les macrophages primitifs sont détectés9. Les neutrophiles sont les cellules immunitaires prochaines à apparaître environ 33 hpf10. Les larves de poisson zèbre sont donc réalisables pour étudier les premiers stades de l’infection et le rôle de l’immunité innée en l’absence de cellules immunitaires adaptatives11. Cependant, le poisson-zèbre adult avec ses entièrement fonctionnelle du système immunitaire adaptatif fournit une couche supplémentaire de complexité pour les expériences d’infection. Les lymphocytes T peuvent être détectées autour de 3 jours après la fécondation,12, et les cellules B sont capables de produire des anticorps fonctionnels par 4 semaines après la fécondation13. Le poisson-zèbre adult a tous les principaux homologues du système immunitaire inné et adaptatif chez les mammifères. Les principales différences entre les immune systems de poissons et les humains sont trouvent dans les isotypes d’anticorps ainsi que dans l’anatomie des tissus lymphoïdes. Le poisson-zèbre a anticorps seulement trois classes14, alors que les humains ont cinq15. En l’absence de la moelle osseuse et les ganglions lymphatiques, les organes lymphoïdes primaires chez les poissons sont les reins et le thymus16 et la rate, le rein et l’intestin servent dans les organes lymphoïdes secondaires17. Malgré ces différences, avec son arsenal complet immunitaire des cellules innées et adaptatives, le poisson-zèbre adult est un modèle très applicable, facile à utiliser, non-mammifère pour les études sur les interactions hôte-pathogène.
Le poisson-zèbre a dernièrement été créé comme un modèle possible d’étudier la tuberculose18,19,20,21,22. La tuberculose est une maladie aéroportée causée par Mycobacterium tuberculosis. Selon l’Organisation mondiale de la santé, la tuberculose due à1,7 million de décès en 2016 et est la principale cause de décès par un pathogène unique dans le monde entier23. Souris24,25, les lapins26 et les primates non humains,27 sont que des modèles l’animal plus connu dans la recherche de la tuberculose mais chaque visage leurs limites. Le modèle primate non humain de M. tuberculosis infection ressemble à la maladie humaine plus étroitement, mais à l’aide de ce modèle est limité en raison de considérations éthiques graves. Autres modèles animaux sont entravés par la spécificité de l’hôte de M. tuberculosis qui influe sur la pathologie de la maladie. Probablement le plus gros problème dans la modélisation de la tuberculose est la gamme large des résultats infection et la maladie dans la maladie humaine : la tuberculose est une maladie très hétérogène, allant de la stérilisation immunité aux infections latentes, active et réactivées28 , qui peut être difficile à reproduire et à modeler de façon expérimentale.
Mycobacterium marinum est un proche parent de M. tuberculosis avec protéines orthologues ~ 3 000 avec 85 % d’acides aminés identité29. M. marinum infecte naturellement le poisson-zèbre, produisant des granulomes, les maîtres mots de la tuberculose, dans ses organes internes19,30. Contrairement à d’autres modèles animaux utilisés en recherche de la tuberculose, zebrafish produit beaucoup de progéniture, il nécessite seulement un espace limité et surtout, il est neurophysiologically le modèle de la tuberculose vertébrés moins avancé disponible. En outre, l’infection de M. marinum provoque une infection latente, une maladie active ou même stérilisation des infections à mycobactéries chez le poisson zèbre adulte, étroitement imitant le spectre des issues des maladies de la tuberculose humaine19, 31 , 32. nous décrivons ici les méthodes pour le modèle de la tuberculose expérimentale du poisson-zèbre adulte en injectant M. marinum dans la cavité abdominale et à l’aide de la PCR quantitative pour mesurer les charges mycobactériennes et les réponses immunitaires de poisson-zèbre échantillons de tissus.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Toutes les expériences de poisson-zèbre ont été approuvés par le Conseil d’expérimentation animale en Finlande (ESAVI/8245/04.10.07/2015). Méthodes sont exécutées conformément à la Loi (497/2013) et le décret gouvernemental (564/2013) sur la protection des animaux utilisés à des fins scientifiques ou éducatives en Finlande.
1. mise en culture de Mycobacterium marinum
Remarque : Comme Mycobacterium marinum est un agent pathogène susceptible de causer des infections superficielles chez l’être humain, trouver les directives locales pour la sécurité personnelle et d’élimination des déchets biohazard avant de commencer à travailler avec cette bactérie.
- M. marinum sur un 7 H 10 la culture plaque additionné de 10 % OADC (albumine, dextrose, acide oléique, catalase) enrichissement et 0,5 % v/v de glycérol à 29 ° C pendant au moins 5 jours. Maintenir M. marinum cultures en prenant des bactéries fraîches du congélateur toutes les deux semaines et le transfert sur une plaque de nouveau toutes les deux semaines.
NOTE : M. marinum est un pathogène de poissons naturels qui infectent les espèces aquatiques et il est important de prendre des précautions, ne pas de contaminer les stocks de poisson-zèbre avec les bactéries. Zebrafish infecté et éléments contaminés par des bactéries doivent être distincte des installations d’élevage. - Utiliser une anse à inoculation stérile 1 µL aseptiquement transférer une anse de M. marinum masse bactérienne dans un flacon de culture cellulaire contenant 10 mL de 7 H 9 moyenne avec 10 % un enrichissement ADC (albumine, dextrose, catalase), polysorbate 80 et 0,2 0,2 % v/v % v/v de glycérol. Culture pour 3 à 4 jours à environ un OD600 (densité optique) de 0,7 à 29 ° C dans l’obscurité sans agitation. Laisser le bouchon desserré ou utilisez un bouchon filtre, permettant l’échange suffisamment de gaz.
Remarque : Le Polysorbate 80 est ajouté au milieu pour empêcher l’agrégation des bactéries. En outre, exposition à la lumière conduit à des modifications phénotypiques dans des colonies bactériennes (p. ex., les changements de couleur du blanc au jaune). Pour éviter cela, maintenir les cultures dans l’ignorance. - Mesurer la valeur de600OD avec un spectrophotomètre. Diluer la culture liquide à une OD600 de 0,07 – 0,09 et continuer la mise en culture pendant 2 jours à 29 ° C dans l’obscurité sans agitation. Laisser le bouchon desserré.
Remarque : Pendant ces deux jours, la suspension bactérienne atteindra une OD600d’environ 0,5 correspondant à une phase logarithmique précoce.
2. préparation de la Solution bactérienne pour infecter le poisson-zèbre adulte
- Transférer la suspension bactérienne dans une grande cuvette stérile ou un tube de 15 mL et placez-le dans l’obscurité à température ambiante pendant 15 min permettre des touffes plus importants à régler.
- Transférer le haut de la page 5-7 mL de la suspension dans un tube propre ou une cuvette et mesurer l' OD600. Utilisez cette phase supérieure de la suspension pour les infections.
- Prélever 1 mL de culture de M. marinum dans un nouveau tube et centrifuger pendant 3 min à 10 000 x g. Retirez le surnageant et Resuspendre le culot dans 1 mL de PBS stérile 1 x.
- Diluer jusqu'à atteindre la concentration bactérienne désirée à l’aide de stérile 1 x PBS avec 0,3 mg/mL rouge de phénol comme traceur. Diviser la suspension diluée en trois parties aliquotes.
Remarque : Utilisez un prédéterminé de l’OD600 vs UFC (unités formatrices de colonie) / courbe µL pour estimer la dilution requise pour obtenir le nombre voulu de bactéries dans l’injection de 5 µL volume34. La corrélation entre OD600 et la concentration de la suspension bactérienne doit être validé avant de commencer les expériences réelles de l’infection. Réserver deux semaines pour la collecte de ces données de validation. - Lentement à l’aide d’une seringue de 1 mL, tirez la suspension à travers un G 27 aiguille x 3. Pour chaque aliquote, effectuez cette étape juste avant l’utilisation.
Remarque : Ne pas utiliser la même solution bactérienne pendant plus de 2 h.
3. expérimentale M. marinum Infection par Injection intrapéritonéale
- Déposer une goutte de 5 µL de la solution diluée bactérienne sur un morceau de pellicule de parafilm et tirez la goutte dans une aiguille de l’insuline 30 G.
- Utilisez 5 – 8 mois-vieux poisson sauvage et rag1−/−hu1999 mutant pour l’expérience. Anesthésier adult poisson zèbre dans l’eau du réservoir avec 0,02 % 3-aminobenzoïque acide éthyl ester (pH 7,0). Positionner la face ventrale du poisson vers le haut dans une fente sur une mousse plastique humide.
Remarque : Rag-/- poissons mutants ne sont pas en mesure de subir une recombinaison somatique et de produire des cellules T et B fonctionnelles. - Injecter l’aiguille entre les nageoires pelviennes à un angle de 45° environ. Garder l’ouverture de l’aiguille vers le haut pour observer que toute l’ouverture est à l’intérieur de la cavité abdominale. Injecter lentement la suspension bactérienne et retirer délicatement l’aiguille.
Remarque : dans le cas où le traceur rouge fuit hors le poisson après injection, exclure les poissons de l’expérience. - Immédiatement après l’injection, transférer les poissons dans un réservoir de récupération avec frais de réservoir d’eau.
- Prendre des échantillons de la suspension bactérienne sur 7H 10 plaques toutes les 15 min de l’aliquote dans utilisation bactérienne et incuber les bactéries à 29 ° C pendant 5 jours et vérifier la dose de l’infection par comptage des colonies sur les plaques.
- Vérifier le bien-être du poisson régulièrement et euthanasier des poissons présentant des symptômes de l’infection avec plus de 0,02 % concentration de l’ester éthylique de l’acide 3-aminobenzoïque (pH 7,0).
NOTE : Environ, 7 % du poisson-zèbre adult infecté par 34 ± 15 UFC et 30 % de poisson-zèbre infectés par 2029 ± 709 UFC aura eu des symptômes de 8 semaines19. Les symptômes peuvent inclure la nage anormale, absence de réponse au toucher, haletant, oedème ou de gaspiller observables. - Maintenir le poisson-zèbre selon la commune de normes35.
4. perception des organes internes
- Euthanasier le poisson-zèbre avec une surdose de 3-aminobenzoïque l’ester éthylique de l’acide (plus de 0,02 % concentration, pH 7.0) dans le réservoir d’eau.
- Insérer une broche postérieure pour les rayons branchiostèges et l’autre par le biais de la queue de virer le poisson sur la plate-forme.
- Ouvrir la cavité abdominale ensemble avec un scalpel et recueillir les organes internes à l’aide d’une petite cuillère et pincettes sharp à composition non limitée. Commencez du cœur et le long de la colonne vertébrale vers l’arrière pour détacher tous les organes internes en un seul bloc.
Remarque : N’oubliez pas de collecter tous les tissus rénaux en grattant le long de la colonne vertébrale avec la cuillère. - Enfin, utiliser des pinces pour détacher le tube digestif à côté du cloaque et transférer les organes dans un tube d’homogénéisation de 1,5 mL avec six perles en céramique de 2,8 mm. Placer immédiatement sur la glace sèche pour geler l’échantillon. L’échantillon peut être stocké à-80 ° C jusqu'à homogénéisé.
- Rincer les instruments avec l’éthanol à 70 % entre les individus.
5. homogénéisation et RNA extraction d’un bloc d’orgue.
Remarque : La méthode est modifiée par les protocoles de l’Université de Stanford36.
- Ajouter la solution de thiocyanate-phénol de guanidine utilisée pour l’extraction des acides nucléiques (Table des matières) sur le dessus de l’échantillon à un volume total de 1 500 µL. s’assurer que l’échantillon couvre un maximum de 10 % du volume total.
ATTENTION : Le volume prévu des tissus récoltés est solution Guanidine 100 µL. sulfocyanure-phénol contient toxique et irritant composés et exige des vêtements protecteurs, gants en nitrile et travailler sous une hotte. Ne pas combiner avec eau de Javel car cela provoquerait la formation de gaz toxiques. Lire la fiche signalétique (FS) avant utilisation. - Homogénéiser les échantillons à l’aide un homogénéisateur PerLE-battre 3 fois pour 40 s à 3 200 tr/min. Cool sur la glace pendant 30 s entre les cycles. Laisser agir les échantillons homogénéisés dans un bain-marie pendant 9 min.
- Centrifuger les échantillons à 12 000 x g pendant 10 min à 4 ° C et se déplacent de 1 000 µL de l’homogénat défrichée dans un tube de microcentrifuge frais.
- Ajouter 200 µL de chloroforme, mélanger immédiatement au Vortex pendant 15 s et incuber pendant 2 min à température ambiante.
ATTENTION : Le chloroforme est un toxique et irritant composé par inhalation, ingestion ou mis en contact avec la peau ou les yeux. Utiliser des équipements de sécurité nécessaires pour la protection personnelle et travailler sous une hotte. Lire la fiche signalétique (FS) avant utilisation. - Centrifuger à 12 000 g pendant 15 min à 4 ° C pour séparer les phases aqueuses et organiques.
- Soigneusement, transférer 500 µL de la phase supérieure dans un tube frais pour éviter de contaminer l’ARN. Retirer et jeter le reste de la phase aqueuse (~ 100 µL) et stocker l’interphase et la phase organique à 4 ° C pour l’extraction de l’ADN.
Remarque : La phase supérieure contient de l’ARN. - Ajouter 500 µL de propanol-2 et mélanger immédiatement au Vortex pendant 15 à s. Incuber pendant 10 min à température ambiante à précipiter l’ARN.
- Centrifuger à 12 000 g pendant 10 min à 4 ° C à l’ARN de granule. Retirez le surnageant de pipetage.
- Ajouter 1 mL d’éthanol 75 % et vortexer pendant 10 s.
Remarque : Le protocole peut être suspendu ici, et les échantillons maintenus toute la nuit à 4 ° C. - Centrifuger à 7 500 x g pendant 5 min à 4 ° C. Retirez le surnageant de pipetage.
- Répétez les étapes de lavage 5.9 – 5.10. Retirez le surnageant soigneusement en pipettant également, et le culot de laisser sécher à l’air sous une hotte.
- Dissoudre le culot de RNA dans 500 µL d’eau exempte de nucléase et garder les échantillons sur la glace. Mesurer les concentrations avec un spectrophotomètre microvolume ou avec équipement équivalent. Magasin l’ARN à-80 ° C.
6. purification des extraits de poisson-zèbre et ADN mycobactérien
- Préparer un tampon arrière-extraction (BEB) en dissolvant 118,2 g du thiocyanate de guanidine (concentration finale 4 M), 3,68 g de citrate de sodium (concentration finale de 50 mM) et 30,29 g de Tris base libre (concentration finale de 1 M) dans 120 mL d’eau exempte de nucléase (ce qui peut besoin en remuant pendant la nuit). Ajouter l’eau exempte de nucléase pour un volume total final de 250 mL et filtre pour stériliser la solution.
Remarque : Cette mémoire tampon peut être stocké à température ambiante pendant 6 mois. Ne pas combiner BEB avec eau de Javel comme ils réagissent pour produire des gaz toxiques tels que le chlorure d’hydrogène et d’acide cyanhydrique. - Utilisez l’interphase et la phase organique de l’échantillon pour extraire l’ADN mycobactérien. Ajouter 500 μl de BEB dans chaque tube. Mélanger longuement pendant 10 min en le retournant à la température ambiante.
- Centrifuger les tubes à 12 000 x g pendant 30 min à température ambiante et transvaser avec soin 500 µL de la phase aqueuse supérieure contenant l’ADN dans un nouveau tube.
- Ajouter 400 ml de 2-propanol. Mélanger en retournant et incuber pendant 10 min à température ambiante.
- Centrifuger les échantillons à 12 000 x g pendant 15 min à 4 ° C. Une pastille contenant l’ADN doit être visible à ce stade. Retirer délicatement le surnageant de pipetage.
- Ajouter 800 μL d’éthanol à 70 %. Laver le culot par inversion. Ne pas vortex les échantillons à ce stade, car l’ADN génomique se décompose facilement.
- Centrifuger les échantillons à 12 000 x g pendant 15 min à 4 ° C et retirer le surnageant de pipetage. Répéter le lavage de l’éthanol (étapes 6.6 et 6.7).
- Éliminer l’éthanol de pipetage soigneusement. Laissez que sécher à l’air les échantillons pour les 5 à 10 min. dissoudre le culot dans 200 μL d’eau exempte de nucléase.
- Mesure des concentrations d’ADN avec un spectrophotomètre microvolume ou avec équipement équivalent. L’ADN peut être stocké à 4 ° C ou à-20 ° C pour le stockage à long terme.
7. quantitative PCR pour mesurer les charges mycobactériennes
- Préparer des mélanges de réaction qPCR avec no-ROX (carboxy-X-rhodamine) contre le M. marinum espaceur interne transcrit (ITS) entre 16 s-23 s ITS selon les instructions du fabricant avec des amorces MMITS1 (tableau 1). Déposer le mélange de la réaction et dégustez les dilutions comme des doublons sur une plaque de 96 puits pour qPCR. Inclure une série de dilution standard d’ADN d’une quantité connue de bactéries pour chaque série.
Remarque : Les attendus M. marinum charge par poisson peut varier de 0 UFC à 1 000 000 UFC à 4 wpi. L’analyse de qPCR peut être également réalisée avec autres kits de qPCR mais la température de recuit pour les amorces doit être ré-optimisé. - Sceller la plaque avec un film optiquement transparent et centrifuger la plaque à 2 000 x g pendant 2 min à 4 ° C.
- Exécutez le programme de qPCR indiqué dans le tableau 2.
- À l’aide de la courbe d’étalonnage, calculer le nombre de bactéries dans l’échantillon de poissons entiers.
8. DNase traitement des échantillons d’ARN
- Pour supprimer toute trace restant possibles de l’ADN génomique de l’ARN, réalisent DNase I traitement. Décongeler les échantillons d’ARN sur la glace.
Remarque : Veillez à utiliser uniquement des solutions et équipement sans RNase et essuyer la surface de travail et des pipettes avec un réactif de décontamination, éliminer les RNases (Table des matières) avant de commencer à travailler. Porter une blouse à manches longues et des gants pour protéger vos échantillons. - Préparer 10 μL DNase I mélanges de réaction sur la glace selon les instructions du fabricant. Mélanger 1 μL de la DNase I, 1 μL de mémoire tampon DNase 10 x et 8 μL d’ARN goûter comprenant un maximum de 1 µg d’ARN.
- Doucement, mélanger les réactions (aucune agitation) et incuber 30 min à 37 ° C.
- Avant inactivation par la chaleur, ajouter 1 µL de 50 mM EDTA dans chaque échantillon de 10 µL. Si il n’est pas ajouté d’EDTA, l’ARN va subir une dégradation chimique lorsqu’il est chauffé.
- Incuber pendant 10 min à 65 ° C à chaleur-inactiver DNase I. continuer directement à la synthèse de cDNA ou stocker l’ARN imprégnées de DNase à-80 ° C.
9. synthèse de cDNA
- Garder tous les réactifs et des échantillons sur la glace et de préparer les mélanges de réaction selon les instructions du fabricant. Pour un mélange de réaction 5 μL, incluent 1 μL de Reverse Transcription Master Mix, 3 μL d’eau exempte de nucléase et 1 μL de DNase traitement RNA.
- Mélanger délicatement les réactions de la transcriptase inverse et tourner brièvement le tube, si nécessaire.
- Placer les échantillons dans une machine PCR et utiliser le programme indiqué dans le tableau 3.
- Diluer l’ADNc dans de l’eau exempte de nucléase pour qPCR à une concentration maximale de 2,5 ng/μL, si nécessaire. ARNC peut être conservé à-20 ° C.
10. mesure de l’Expression des gènes de poisson-zèbre par PCR Quantitative
- Préparer un mélange maître qPCR sur la glace selon les instructions du fabricant et les protéger de la lumière. Utiliser les amorces a présenté dans le tableau 1.
Remarque : Pour calculer le giron de l’induction pour chaque gène, mesurer l’expression également auprès d’un échantillon de référence commun extrait 6 zebrafish sain. - Préparer les répétitions de chaque échantillon et pipeter les mélanges de réaction sur une plaque de qPCR. Sceller la plaque avec un film optiquement transparent et centrifuger la plaque à 2 000 x g pendant 2 min à 4 ° C avant de commencer la course.
- Exécutez le qPCR programme illustré dans le tableau 4 avec la température de recuit selon la paire d’amorces utilisées (tableau 1).
- Analyser le ratio d’expression de gène par rapport à un gène de ménager (loopern437) avec la méthode ΔCt à l’aide de l’équation :
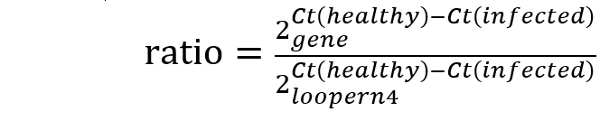
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
L’agent pathogène du poisson naturel Mycobacterium marinum infecte les organes internes du poisson-zèbre et produit une infection systémique avec granulomes visibles sur le plan histologique,19. Poisson zèbre adulte sont infectés par M. marinum par injection intrapéritonéale. L’ADN et l’ARN sont extraits, et la charge mycobactérienne est mesurée par quantitative polymerase chain reaction (qPCR) en utilisant l’ADN comme modèle. Les grandes lignes d...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Nous décrivons ici une application qPCR pour mesurer les charges mycobactériennes de l’ADN extrait de tissus de poisson-zèbre adultes infectés expérimentalement. Cette application est issue des amorces conçues autour de la 16 s-23 s rRNA espaceur interne transcrit séquence40. La charge totale de mycobactéries dans un échantillon de poisson est estimée à l’aide d’une courbe d’étalonnage préparée à partir d’ADN extrait un nombre connu de mycobactéries cultivées et en supposant qu’une bactérie a une ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Ce travail a été soutenu par le finlandais culturel Fondation (H.L.), Tampere tuberculose Foundation (H.L., L.-M.V., M.M.H., député), Fondation de l’Association finlandaise de lutte contre la tuberculose (Suomen Tuberkuloosin Vastustamisyhdistyksen Säätiö) (Chambre des lords, M.M.H., député), Sigrid Jusélius Foundation (M.P), Emil Aaltonen Foundation (M.M.H.), Jane et Aatos Erkko Foundation (M.P) et Académie de Finlande (M.P). Leena Mäkinen, Hanna-Leena Piippo et Jenna Ilomäki sont reconnus pour leur assistance technique. Les auteurs reconnaissent le laboratoire de poisson-zèbre de Tampere pour leur service.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Mycobacterium marinum | American Type Culture Collection | ATCC 927 | |
| Middlebrock 7H10 agar | BD, Thermo Fisher Scientific | 11799042 | |
| Middlebrock OADC enrichment | BD, Thermo Fisher Scientific | 11718173 | |
| Middlebrock 7H9 medium | BD, Thermo Fisher Scientific | 11753473 | |
| Middlebrock ADC enrichment | BD, Thermo Fisher Scientific | 11718173 | |
| Tween 80 | Sigma-Aldrich | P1754 | |
| Glycérol | Sigma-Aldrich | G5516-500ML | |
| Spectrophotomètre GENESYS20 | Thermo Fisher Scientific | ||
| Comprimés de solution saline tamponnée au phosphate (PBS) | Sigma-Aldrich | P4417-50TAB | |
| Rouge phénolique | Sigma-Aldrich | P3532 | |
| Aiguille 27 G | Henke Sass Wolf | 4710004020 | |
| 1 mL seringue | Henke Sass Wolf | 4010.200V0 | |
| Omnican 100 30 G Aiguille à insuline | Braun | 9151133 | |
| 3-aminobenzoïque ester éthylique (pH 7,0) | Sigma-Aldrich | A5040 | |
| 1,5 mL tube d’homogénéisation | Qiagen | 13119-1000 | |
| Perles en céramique de 2,8 mm | Qiagen | 13114-325 | |
| Éthanol, ETAX Aa | Altia | ||
| 2-propanol | Sigma-Aldrich | 278475 | |
| Chloroforme | VWR | 22711.290 | |
| Thiocyanate de guanidine | Sigma-Aldrich | G9277 | FW 118,2 g/mol |
| Citrate | de sodiumSigma-Aldrich | 1613859 | FW 294.1 g/mol |
| Tris (base libre) | Sigma-Aldrich | TRIS-RO | FW 121.14 g/mol |
| Réactif TRI | Centre de recherche moléculaire | TR118 | thiocyanate-phénol de guanidine |
| Solution PowerLyzer24 Homogénéisateur | Qiagen | ||
| Sonicator m08 | Finnsonic | ||
| Nanodrop 2000 | Thermo Fisher Scientific | ||
| SENSIFAST No-ROX SYBR, Green Master Mix | Bioline | BIO-98005 | |
| qPCR Plaque 96 puits | BioRad | HSP9601 | |
| Film optiquement transparent | BioRad | MSB1001 | |
| C1000 Thermocycleur avec système en temps réel CFX96 | BioRad | ||
| RNase AWAY | Thermo Fisher Scientific | 10666421 | réactif de décontamination éliminant les RNases |
| DNase I | Thermo Fisher Scientific | EN0525 | |
| Transcription inverse Master Mix | Fluidigm | 100-6298 | |
| SsoFast Eva Green master mix | BioRad | 172-5211 |
Références
- Zhao, S., Huang, J., Ye, J. A fresh look at zebrafish from the perspective of cancer research. Journal of Experimental & Clinical Cancer Research. 34, 80(2015).
- Bournele, D., Beis, D. Zebrafish models of cardiovascular disease. Heart failure reviews. 21 (6), 803-813 (2016).
- Torraca, V., Mostowy, S. Zebrafish Infection: From Pathogenesis to Cell Biology. Trends in cell biology. 28 (2), 143-156 (2018).
- Varela, M., Figueras, A., Novoa, B. Modelling viral infections using zebrafish: Innate immune response and antiviral research. Antiviral Research. 139, 59-68 (2017).
- Goody, M. F., Sullivan, C., Kim, C. H. Studying the immune response to human viral infections using zebrafish. Developmental and comparative immunology. 46 (1), 84-95 (2014).
- Thisse, C., Zon, L. I. Organogenesis--heart and blood formation from the zebrafish point of view. Science. 295 (5554), 457-462 (2002).
- Eimon, P. M., Rubinstein, A. L. The use of in vivo zebrafish assays in drug toxicity screening. Expert Opinion on Drug Metabolism & Toxicology. 5 (4), 393-401 (2009).
- Sukardi, H., Chng, H. T., Chan, E. C. Y., Gong, Z., Lam, S. H. Zebrafish for drug toxicity screening: bridging the in vitro cell-based models and in vivo mammalian models. Expert Opinion on Drug Metabolism & Toxicology. 7 (5), 579-589 (2011).
- Wittamer, V., Bertrand, J. Y., Gutschow, P. W., Traver, D. Characterization of the mononuclear phagocyte system in zebrafish. Blood. 117 (26), 7126-7135 (2011).
- Harvie, E. A., Huttenlocher, A. Neutrophils in host defense: new insights from zebrafish. Journal of leukocyte biology. 98 (4), 523-537 (2015).
- Yoshida, N., Frickel, E., Mostowy, S. Macrophage-Microbe interactions: Lessons from the Zebrafish Model. Frontiers in Immunology. 8, 1703(2017).
- Langenau, D. M., et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proceedings of the National Academy of Sciences of the United States of America. 101 (19), 7369-7374 (2004).
- Lewis, K. L., Del Cid, N., Traver, D. Perspectives on antigen presenting cells in zebrafish. Developmental and comparative immunology. 46 (1), 63-73 (2014).
- Hu, Y., Xiang, L., Shao, J. Identification and characterization of a novel immunoglobulin Z isotype in zebrafish: Implications for a distinct B cell receptor in lower vertebrates. Molecular immunology. 47 (4), 738-746 (2010).
- Danilova, N., Bussmann, J., Jekosch, K., Steiner, L. A. The immunoglobulin heavy-chain locus in zebrafish: identification and expression of a previously unknown isotype, immunoglobulin Z. Nature immunology. 6 (3), 295-302 (2005).
- Zapata, A., Diez, B., Cejalvo, T., Frias, C. G., Cortes, A. Ontogeny of the immune system of fish. Fish & shellfish. 20 (2), 126-136 (2006).
- Traver, D., Paw, B. H., Poss, K. D., Penberthy, W. T., Lin, S., Zon, L. I. Transplantation and in vivo imaging of multilineage engraftment in zebrafish bloodless mutants. Nature immunology. 4 (12), 1238-1246 (2003).
- Hammaren, M. M., et al. Adequate Th2-Type Response Associates with Restricted Bacterial Growth in Latent Mycobacterial Infection of Zebrafish. Plos Pathogens. 10 (6), e1004190(2014).
- Parikka, M., et al. Mycobacterium marinum Causes a Latent Infection that Can Be Reactivated by Gamma Irradiation in Adult Zebrafish. PLoS Pathog. 8 (9), 1-14 (2012).
- Tobin, D. M., et al. Host Genotype-Specific Therapies Can Optimize the Inflammatory Response to Mycobacterial Infections. Cell. 148 (3), 434-446 (2012).
- Lesley, R., Ramakrishnan, L. Insights into early mycobacterial pathogenesis from the zebrafish. Current opinion in microbiology. 11 (3), 277-283 (2008).
- Berg, R. D., Ramakrishnan, L. Insights into tuberculosis from the zebrafish model. Trends in molecular medicine. 18 (12), 689-690 (2012).
- World Health Organization. WHO Global tuberculosis report 2017. , Available from: http://www.who.int/tb/publications/global_report/en/ (2017).
- Ordonez, A. A., et al. Mouse model of pulmonary cavitary tuberculosis and expression of matrix metalloproteinase-9. Disease Models & Mechanisms. 9 (7), 779-788 (2016).
- Kramnik, I., Beamer, G. Mouse models of human TB pathology: roles in the analysis of necrosis and the development of host-directed therapies. Seminars in Immunopathology. 38 (2), 221-237 (2016).
- Manabe, Y. C., et al. The aerosol rabbit model of TB latency, reactivation and immune reconstitution inflammatory syndrome. Tuberculosis. 88 (3), 187-196 (2008).
- Pena, J. C., Ho, W. Monkey Models of Tuberculosis: Lessons Learned. Infection and immunity. 83 (3), 852-862 (2015).
- Cadena, A. M., Fortune, S. M., Flynn, J. L. Heterogeneity in tuberculosis. Nature Reviews Immunology. 17 (11), 691-702 (2017).
- Stinear, T. P., et al. Insights from the complete genome sequence of Mycobacterium marinum on the evolution of Mycobacterium tuberculosis. Genome research. 18 (5), 729-741 (2008).
- Swaim, L. E., Connolly, L. E., Volkman, H. E., Humbert, O., Born, D. E., Ramakrishnan, L. Mycobacterium marinum infection of adult zebrafish causes caseating granulomatous tuberculosis and is moderated by adaptive immunity. Infection and immunity. 74 (11), 6108-6117 (2006).
- Myllymaki, H., Bauerlein, C. A., Ramet, M. The Zebrafish Breathes new Life into the Study of Tuberculosis. Frontiers in Immunology. 7, 196(2016).
- Luukinen, H., et al. Priming of Innate Antimycobacterial Immunity by Heat-killed Listeria monocytogenes Induces Sterilizing Response in Adult Zebrafish Tuberculosis Model. Disease Models and Mechanisms. 11, (2018).
- Sar, A. M., Abdallah, A. M., Sparrius, M., Reinders, E., Vandenbroucke-Grauls, C., Bitter, W. Mycobacterium marinum strains can be divided into two distinct types based on genetic diversity and virulence. Infection and immunity. 72 (11), 6306-6312 (2004).
- Madigan, M., Martinko, J. Brock Biology of Microorganisms. , (2016).
- Nüsslein-Volhard, C., Dahm, R. Zebrafish:a practical approach. , Oxford University Press. Oxford. (2002).
- Anonymous Stanford University Protocols. , Available from: http://med.stanford.edu/labs/vanderijn-west/Protocols.html (2018).
- Vanhauwaert, S., et al. Expressed Repeat Elements Improve RT-qPCR Normalization across a Wide Range of Zebrafish Gene Expression Studies. Plos One. 9 (10), e109091(2014).
- Hammaren, M. M., et al. Adequate Th2-Type Response Associates with Restricted Bacterial Growth in Latent Mycobacterial Infection of Zebrafish. Plos Pathogens. 10 (6), e1004190(2014).
- Oksanen, K. E., et al. An adult zebrafish model for preclinical tuberculosis vaccine development. Vaccine. 31 (45), 5202-5209 (2013).
- Roth, A., Fischer, M., Hamid, M. E., Michalke, S., Ludwig, W., Mauch, H. Differentiation of phylogenetically related slowly growing mycobacteria based on 16S-23S rRNA gene internal transcribed spacer sequences. Journal of clinical microbiology. 36 (1), 139-147 (1998).
- Rajararna, M. V. S., Ni, B., Dodd, C. E., Schlesinger, L. S. Macrophage immunoregulatory pathways in tuberculosis. Seminars in immunology. 26 (6), 471-485 (2014).
- Vynnycky, E., Fine, P. The natural history of tuberculosis: the implications of age-dependent risks of disease and the role of reinfection. Epidemiology and infection. 119 (2), 183-201 (1997).
- Cobat, A., et al. Two loci control tuberculin skin test reactivity in an area hyperendemic for tuberculosis. Journal of Experimental Medicine. 206 (12), 2583-2591 (2009).
- Delogu, G., Goletti, D. The Spectrum of Tuberculosis Infection: New Perspectives in the Era of Biologics. Journal of Rheumatology. 41, 11-16 (2014).
- Abel, L., et al. Genetics of human susceptibility to active and latent tuberculosis: present knowledge and future perspectives. Lancet Infectious Diseases. 18 (3), E75(2018).
- Guryev, V., et al. Genetic variation in the zebrafish. Genome research. 16 (4), 491-497 (2006).
- Brown, K. H., et al. Extensive genetic diversity and substructuring among zebrafish strains revealed through copy number variant analysis. Proceedings of the National Academy of Sciences of the United States of America. 109 (2), 529-534 (2012).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
