Le présent protocole décrit l’injection intracérébroventriculaire (ICV) de poissons zèbres adultes avec de la 6-hydroxydopamine neurotoxique (6-OHDA) au niveau du diencéphale ventral (Dn) et l’évaluation de la déficience et de la récupération ultérieure du comportement de nage après la llésion à l’aide du test en cuve ouverte, qui est accompagné d’une analyse à l’aide d’un logiciel de suivi vidéo.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Évaluation locomotrice du modèle de la maladie de Parkinson à base de poisson zèbre adulte induit par la 6-hydroxydopamine
Dans cet article
Résumé
Résumé
Les limites des traitements actuels pour retarder la perte neuronale dopaminergique dans la maladie de Parkinson (MP) augmentent le besoin de thérapies alternatives qui peuvent restaurer ces neurones. Beaucoup d’efforts sont actuellement dirigés vers une meilleure compréhension de la neurorégénération à l’aide de modèles précliniques in vivo . Cette capacité de régénération pour l’auto-réparation est cependant inefficace chez les mammifères. Les animaux non mammifères comme le poisson-zèbre sont ainsi apparus comme un excellent modèle neurorégénératif en raison de sa capacité à s’auto-renouveler continuellement et à avoir une homologie cérébrale proche de celle des humains. Dans le cadre de l’effort visant à élucider les événements cellulaires impliqués dans la neurorégénération in vivo, nous avons établi le modèle de à base de poisson zèbre adulte induit par la 6-hydroxydopamine (6-OHDA). Ceci a été réalisé grâce à la micro-injection intracérébroventriculaire (ICV) optimisée de 99,96 mM 6-OHDA pour ablation spécifique des neurones dopaminergiques (DpN) dans le diencéphale ventral (Dn) du cerveau du poisson-zèbre. L’immunofluorescence a indiqué plus de 85 % de l’ablation de la DpN au troisième jour après la llésion et la restauration complète de la DpN au site lésionné 30 jours après la lèse. La présente étude a déterminé l’altération et la récupération subséquente du comportement de nage du poisson-zèbre après une lésion en utilisant le test en plein champ à travers lequel deux paramètres, la distance parcourue (cm) et la vitesse moyenne (cm / s), ont été quantifiés. La locomotion a été évaluée en analysant les enregistrements des poissons individuels de chaque groupe (n = 6) à l’aide d’un logiciel de suivi vidéo. Les résultats ont montré une réduction significative (p < 0,0001) de la vitesse (cm / s) et de la distance parcourue (cm) du poisson zèbre lésionné 3 jours après la lèse par rapport au simulacre. Le poisson-zèbre lésionné a montré une récupération complète du comportement de nage 30 jours après la lèse. Les résultats actuels suggèrent que le poisson-zèbre adulte sectionné au 6-OHDA est un excellent modèle de qualité reproductible pour faciliter l’étude de la neurorégénération dans la MP. Des études futures sur les mécanismes sous-jacents à la neurorégénération ainsi que sur les facteurs intrinsèques et extrinsèques qui modulent le processus pourraient fournir des informations importantes sur les nouvelles stratégies de traitement de remplacement cellulaire contre la MP.
Introduction
La maladie de Parkinson (MP), une maladie caractérisée distinctement par la rigidité musculaire, les tremblements au repos et la bradykinésie, est la maladie neurologique qui connaît la croissance la plus rapide au monde1,2. Le risque et la prévalence de la MP augmentent rapidement avec l’âge, en particulier chez les personnes âgées de 50 ans et plus3. L’étiologie et la pathogenèse de la MP restent jusqu’à présent mal comprises. Cela a souvent laissé l’apparition précoce de la MP non diagnostiquée. À l’heure actuelle, le manque de dopamine et la perte de neurones dopaminergiques (DpN) chez les patients atteints de MP sont fortement liés à la manifestation de symptômes moteurs4. Capitalisant sur cette relation, plusieurs traitements ont été conçus soit pour agir directement comme remplacement de la dopamine (c.-à-d. la lévodopa), soit pour compenser la perte de DpN (c.-à-d. stimulation cérébrale profonde). Bien que ces traitements apportent des avantages symptomatiques, ils ne modifient pas l’évolution de la maladie5. Compte tenu de cette faiblesse importante, une thérapie de remplacement cellulaire a été proposée. L’efficacité de cette approche est toutefois incohérente compte tenu des défis de la préparation du greffon, du contrôle de la croissance cellulaire et de l’instabilité du phénotype. La thérapie de remplacement cellulaire, qui avait soulevé des préoccupations éthiques, pose également le risque d’induire des tumeurs cérébrales et des réactions immunitaires indésirables6,7.
Les limites des stratégies thérapeutiques actuelles ont conduit à mettre davantage l’accent sur la régénération de la DpN en tant qu’approche potentielle dans le traitement de la MP. La régénération de la DpN ou neurorégénération est apparue comme l’une des percées prometteuses dans la prise en charge de la MP, non seulement en raison de son potentiel en tant que nouvelle méthode thérapeutique, mais aussi en tant que moyen de comprendre le mécanisme de la maladie8, 9. L' Cette approche se concentre sur la restauration de la fonction neuronale par la différenciation, la migration et l’intégration des cellules progénitrices existantes dans les circuits lésionnés10. Afin d’explorer davantage la neurorégénération, diverses études in vivo ont été entreprises. Il a été constaté que les vertébrés tels que les mammifères, les amphibiens et les reptiles génèrent de nouvelles cellules cérébrales après une blessure11,12. Chez les vertébrés, les mammifères sont plus recherchés étant donné leur ressemblance génétique avec les êtres humains. Les mammifères, cependant, présentent une capacité réparatrice limitée et médiocre dans le système nerveux central (SNC) qui peut durer jusqu’à l’âge adulte après une lésion cérébrale13. En général, les mammifères ne sont pas adaptés en tant que modèles animaux pour comprendre la neurorégénération étant donné que le faible nombre de neurones produits ne sera pas suffisant pour restaurer les circuits neuronaux endommagés observés dans la MP. En tant que tel, le modèle basé sur le téléostéen, en particulier chez le poisson-zèbre, est grandement favorisé pour son taux de prolifération élevé, sa capacité à s’auto-renouveler continuellement et son homologie cérébrale proche des humains14,15.
Le poisson-zèbre est le plus souvent utilisé pour étudier les troubles du mouvement dans PD16. Le modèle à base de poisson-zèbre est généralement induit par des neurotoxines, qui comprennent la 1-méthyl-4-phényl-1,2,3,6-tétrahydropyridine (MPTP) et la 6-hydroxydopamine (6-OHDA)17. Bien qu’efficaces pour induire une perte spécifique de DpN et une diminution des niveaux de dopamine, les modèles basés sur mpTP n’imitent pas étroitement les conditions de la MP car la perte de DpN ne se limite pas uniquement au SNC18. L’incapacité du 6-OHDA à traverser la barrière hémato-encéphalique a limité ses effets sur les changements cellulaires et fonctionnels dans le cerveau lorsqu’il est administré par voie intracrânienne par opposition à intramusculaire19. L’administration périphérique de 6-OHDA a entraîné une réduction globale des niveaux de dopamine dans tout le système nerveux20. Alors que l’administration de 6-OHDA dans le liquide céphalo-rachidien a provoqué une ablation de DpN dans tout le CNS21, ce qui n’imite pas la condition comme on le voit dans où la perte de DpN se produit spécifiquement à la substantia nigra du cerveau humain. L’administration de 6-OHDA par ICV, au contraire, a spécifiquement induit une ablation significative de DpN dans la zone de Dn ventral dans le cerveau du poisson zèbre, qui ressemblait beaucoup à substantia nigra22. Fait intéressant, la récupération de la DpN a été rapportée 30 jours après la lésion induite par 6-OHDA et ces neurones ont survécu au cours de la vie23,24. La récupération fonctionnelle de la DpN a été démontrée par une évaluation locomotrice de la distance parcourue (cm) et de la vitesse moyenne (cm/s) à l’aide du modèle PD22 à base de poisson zèbre adulte induit par 6 OHDA.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
La présente étude a été approuvée par le Comité de la recherche et de l’éthique animales (CARE), Universiti Technologi MARA (UiTM) [N° de référence : UiTM CARE 346/2021, en date du 7 mai 2021].
REMARQUE: Les protocoles publiés22,25,26 pour l’élevage standard et l’entretien du modèle de poisson zèbre adulte à lésion 6-OHDA ont été utilisés. Des expériences ont été menées sur des poissons-zèbres mâles adultes (Danio rerio) âgés de plus de cinq mois avec une longueur normalisée de 3,2 à 3,7 cm.
1. Entretien du poisson-zèbre et préparations de micro-injection pré-ICV
- Maintenir le poisson dans un réservoir d’eau aérée à une température contrôlée de 28 ± 1,0 °C. Pour l’élevage et l’entretien du poisson-zèbre, utilisez de l’eau distillée minéralisée avec du sel de mer commercial (1 g/L) tout au long de l’expérience27.
- Hébergez un maximum de 25 poissons par aquarium de 45 L ou un poisson par 1,8 L d’eau et exposez-les à un horaire de 14 h de lumière et de 10 h de photopériode sombre. Nourrissez les poissons au moins deux fois par jour avec des granulés de nourriture complétés par des vers lyophilisés.
- Préparer une solution mère concentrée de méthanesulfonate de tricaïne (MS-222) en dissolvant 2,5 g de MS-222 et 5 g de bicarbonate de sodium dans 250 mL d’eau distillée. Diluer 2 mL de solution mère pour produire 200 mL de solution d’anesthésie de travail.
- Préparer 99,96 mM de 6-OHDA en dissolvant d’abord 0,2 mg d’acide ascorbique dans 1 mL de NaCl filtré stérile à 0,9 % p/v. Filtrer la solution avec un filtre de 0,2 micron avant d’ajouter 25 mg de 6-OHDA sous forme de poudre dans la solution. Préparer la solution fraîche avant chaque injection et la conserver dans l’obscurité à 4 °C.
ATTENTION : Portez l’équipement de protection individuelle approprié (c.-à-d. gants, blouse de laboratoire et masque facial) et appliquez les bonnes pratiques de laboratoire lorsque vous manipulez les produits chimiques. Toutes les manipulations des produits chimiques doivent être effectuées dans une armoire de biosécurité.
2. Anesthésie et injection de VCI de poisson-zèbre
- Jeûnez le poisson pendant 24 h pour éviter les régurgitations pendant l’anesthésie. Anesthésier le poisson en l’immergeant dans un récipient contenant 0,01 % p/v de solution de MS-222 pendant environ 1 min ou jusqu’à ce que tout mouvement musculaire visible cesse.
- Placez le poisson anesthésié sur une éponge imbibée d’eau placée sous un stéréomicroscope et mouillez le poisson régulièrement.
- Identifiez la position d’injection en fonction de l’intersection entre la suture métopique (SEP), la suture coronale (CS) et la suture sagittale (SS) qui relie le crâne frontal et pariétal du cerveau du poisson-zèbre.
- Faites un petit trou de 1,0 mm2 à l’aide d’une aiguille pointue de 27 G dans le crâne guidée par la position anatomique spécifique sur le crâne du poisson-zèbre (Figure 1A, B).
- Abaissez l’injecteur microcapillaire à un angle de 60° jusqu’à ce qu’il atteigne une profondeur de 1 200 μm du toit crânien du crâne du poisson-zèbre (Figure 1C). Appuyez sur la limite Z pour fixer la position.
- Réglez la pression d’injection initiale à 4000 hPa et la pression de compensation à 10 hPa. Réglez la durée de l’injection à 0,3 s. Réduire l’intensité de l’injection à chaque injection ultérieure.
- Injecter 0,5 μL de 99,96 mM de neurotoxine 6-OHDA (ou 0,9 % p/v de solution saline pour le groupe témoin simulé) et laisser reposer la microcapillaire pendant 20 s. Continuez à mouiller le poisson avec de l’eau distillée tout au long du processus d’injection pour éviter le dessèchement.
- Retirez lentement le microcapillaire et réanimez le poisson sous l’eau distillée courante. Placez le poisson dans un réservoir de récupération isolé et éliminez toute distraction pouvant perturber le processus de récupération.
- Rincer le microcapillaire avant la prochaine injection pour éliminer le blocage et s’assurer que l’intensité de l’injection est suffisante pour obtenir le volume souhaité de 0,5 μL de 6-OHDA.
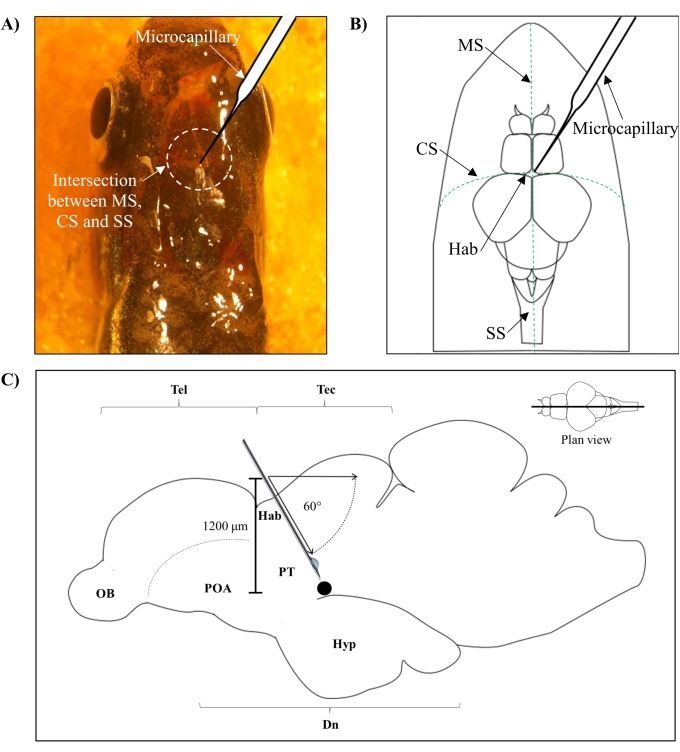
Figure 1 : Site d’injection de la neurotoxine, 6-OHDA. (A) Le point d’entrée microcapillaire est guidé par l’intersection entre la suture métopique (SEP), la suture coronale (CS) et la suture sagittale (SS) qui relie le crâne frontal et pariétal du cerveau du poisson zèbre (vue plan). (B) Un dessin schématique (vue plan) du crâne et du cerveau du poisson-zèbre montre le microcapillaire, qui est abaissé directement au-dessus de l’habenula (Hab), et son point d’entrée à l’intersection entre les hémisphères. (C) Un dessin schématique (section sagittale) du cerveau du poisson-zèbre montre l’angle d’injection et la profondeur de pénétration. Le point noir représente le site lésionné situé au-dessus de la zone ciblée, le diencéphale ventral. Abréviations: 6-OHDA: 6-hydroxydopamine, CS: suture coronale, Dn: diencéphale, Hab: habenula, Hyp: hypothalamus, MS: suture métopique, OB: bulbe olfactif, POA: zone préoptique, PT: tubercule postérieur, SS: suture sagittale, Tec: tectum et Tel: télencéphale. Veuillez cliquer ici pour voir une version agrandie de cette figure.
3. Évaluation locomotrice
NOTE: L’évaluation locomotrice du poisson-zèbre (n = six / groupe; simulacre vs lésion) a été évaluée individuellement via le test en cuve ouverte en utilisant les protocoles établis28,29 au troisième jour et au jour 30 post-lésion 6-OHDA.
- Enregistrement vidéo
- Placez le réservoir expérimental (longueur 20 cm, largeur 11,5 cm, hauteur 13 cm) avec ses parois recouvertes de papier blanc sur une plate-forme surélevée (Figure 2A).
- Éclairez le réservoir par le bas à l’aide d’une source lumineuse. Remplissez le réservoir avec de l’eau distillée (80% -90% plein) et maintenez la température à 28 ± 1,0 ° C. Mesurez la température à l’aide d’un thermomètre et régulez-la à l’aide d’un chauffe-aquarium commercial.
- Après un minimum de 2 minutes d’acclimatation, enregistrez le comportement de nage des poissons à partir d’une vue de plan sur le plan 2dimensionnel (2D) de l’arène expérimentale à l’aide d’une caméra vidéo pendant 5 minutes (Figure 2B). Pour éviter toute incohérence dans le comportement de nage du premier et du dernier lot d’enregistrements, ne dépassez pas l’acclimatation de 10 min30.
- Analysez les vidéos à l’aide d’un logiciel de suivi vidéo avec le protocole open-tank pour l’acquisition de la distance parcourue (cm) et de la vitesse moyenne (cm/s) de chaque sujet.
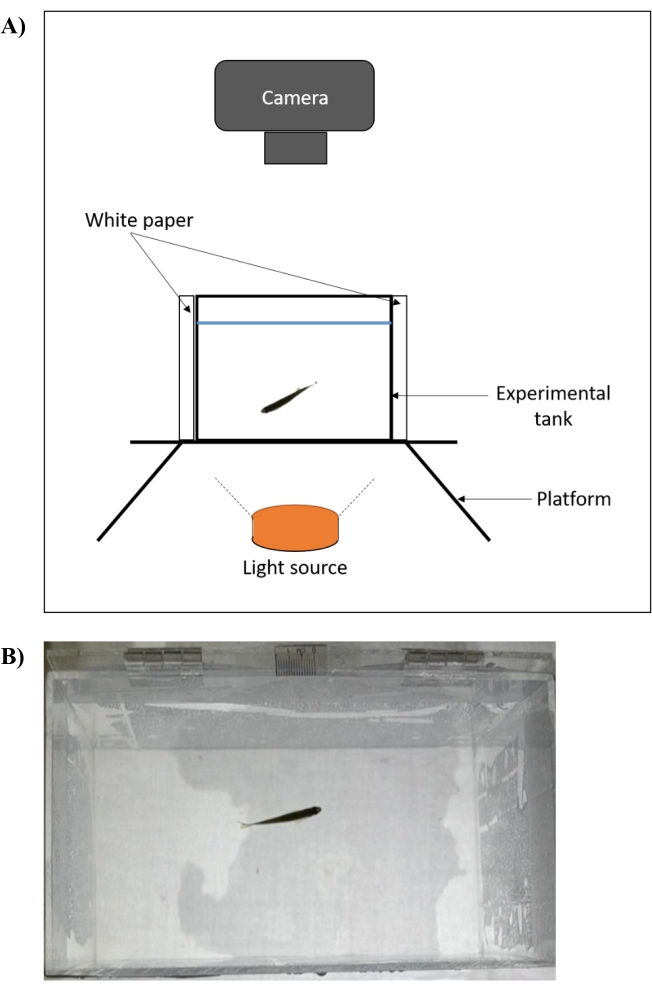
Figure 2 : Installation expérimentale d’un essai en aquarium ouvert pour l’évaluation du comportement locomoteur du poisson-zèbre. (A) Le réservoir expérimental (vue de face) est placé sur une plate-forme surélevée éclairée par le bas. Les quatre parois du réservoir sont recouvertes de papier blanc et les enregistrements sont capturés axialement. La température est mesurée à l’aide d’un thermomètre et régulée à 28 ± 1,0 °C à l’aide d’un chauffe-aquarium commercial. (B) Capture d’écran (vue plan) de l’enregistrement vidéo capturé à l’aide de la configuration. Veuillez cliquer ici pour voir une version agrandie de cette figure.
- Analyse des données
- Double-cliquez sur l’icône pour ouvrir le logiciel de suivi vidéo. Cliquez sur l’onglet Fichier et sélectionnez Créer une nouvelle expérience vide. Cela permettra à l’utilisateur de personnaliser les paramètres de l’expérience en fonction des objectifs de l’enquête.
- Cliquez sur l’onglet Protocole , sélectionnez Sources vidéo, puis cliquez sur Ajouter une nouvelle source vidéo. Cliquez sur la liste déroulante disponible et sélectionnez l’option Fichier vidéo . Cela invitera la fenêtre contextuelle de navigation de fichier à partir de laquelle les enregistrements vidéo d’intérêt peuvent être sélectionnés.
- Cliquez sur le sous-onglet Appareil et sélectionnez l’icône Rectangulaire pour configurer l’appareil. Faites glisser l’icône rectangulaire pour couvrir toute l’arène expérimentale. Réglez la barre d’échelle en conséquence et entrez la valeur numérique de la mesure d’échelle utilisée dans la longueur de la section de la règle. La présente expérience a utilisé une échelle de 10 mm pour l’essai en réservoir ouvert.
- Définissez la couleur de l’animal en sélectionnant Les animaux sont plus sombres que l’arrière-plan de l’appareil. Laissez les autres options disponibles dans Suivi aux paramètres par défaut prédéfinis.
- Dans le sous-onglet Zones , cliquez sur l’appareil dessiné précédemment. Cette zone est définie comme la zone standard dont la position est la même pour tous les tests.
- Sélectionnez les options suivantes sous Planification des tests et rapport de données de test : Durée du test, Distance totale parcourue et Vitesse moyenne. Les autres tests disponibles sur la liste sont facultatifs et dépendent de l’intérêt d’enquête du chercheur.
- Dans l’onglet Expérience , affectez les animaux en fonction de leur groupe de test en tapant le nom du groupe dans la section Nom et le nombre d’animaux par groupe dans la section Nombre d’animaux .
- Basculez vers l’onglet Tests pour exécuter l’expérience. Cliquez sur l’icône Démarrer le test et attendez que toutes les vidéos soient analysées.
- Dans l’onglet Résultats , cliquez sur l’icône Afficher le rapport pour afficher les données locomotrices sous forme de rapport texte.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
La présente expérience a évalué les changements dans le comportement de nage du poisson zèbre adulte après la micro-injection de CICV avec 6-OHDA. La raison de l’utilisation de la 6-OHDA comme neurotoxine de choix était due à son incapacité à traverser la barrière hémato-encéphalique, ce qui a produit une ablation spécifique et ciblée de la DpN dans la zone du diencéphale ventral d’intérêt (Dn)16. La sous-population DpN présente ici une ressemblance anatomique avec la sous-population DpN dans la s...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Les présents travaux ont démontré avec succès l’évaluation locomotrice du modèle établi de à base de poisson zèbre adulte induit par 6-OHDA. L’ensemble de l’expérience comportait trois étapes principales : les préparations de micro-injection pré-ICV, la micro-injection ICV du poisson-zèbre et l’évaluation locomotrice. Afin d’assurer la récupération saine du poisson-zèbre adulte après la procédure de micro-injection ICV et de bons résultats expérimentaux, certaines bonnes pratiques pour chaque étape ont été recommandées d...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs ne déclarent aucun conflit d’intérêts.
Remerciements
Ce travail a été soutenu par le ministère de l’Enseignement supérieur de Malaisie dans le cadre du programme de subventions à la recherche fondamentale [600-IRMI/FRGS 5/3 (033/2019)].
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Materials | |||
| 6-Hydroxydopamine (6-OHDA) | Sigma-Aldrich, Missouri, États-Unis | 162957 | |
| Acide ascorbique | Thermo Fisher Scientific, Californie, États-Unis | FKC#A/8882/53 | |
| Pipette pasteur jetable, 3 mL | Thermo Fisher Scientific, Californie, États-Unis | FB55348 | |
| Tube de microcentrifugation, 0,2 mL | Eppendorf, Hambourg, Allemagne | 30124332 | |
| Belle fiole conique, 100 mL | Evergreen Engineering & Resources, Semenyih, Malaisie | SumYau0200 | |
| Solution saline tamponnée au phosphate (PBS) | Sigma-Aldrich, Missouri, États-Unis | P4417 | |
| Bicarbonate de sodium | Sigma-Aldrich, Missouri, États-Unis | S5761 | |
| Chlorure de sodium | Merck, Darmstadt, Allemagne | 106404 | |
| Stéréomicroscope | Nikon, Tokyo, Japon | SMZ745 | |
| Tricaïne méthanesulfonate (MS-222) | Sigma-Aldrich, Missouri, États-Unis | E10521 | |
| Equipment | |||
| ANY-maze | software Stoelting Co., Illinois, USAversion | 7.0 ; logiciel de suivi vidéo | |
| Cubis II Micro Lab Balance | Sartorius, Gö ; ttingen, Allemagne | Micro-injecteur SE 2 | |
| FemtoJet IV | Eppendorf, Hambourg, Allemagne | 5192000035 | |
| Femtotip II, capillaire d’injection stérile | Eppendorf, Hambourg, Allemagne | 5242957000 | |
| micromanipulateur InjectMan 4 | Eppendorf, Hambourg, Allemagne | 5192000027 | |
| Lampe portable LED | MR. DIY, Selangor, Malaisie | 9023251 | 20 mAh |
| PELCO Pro Superalloy, offset, pointes fines | Ted Pella, Californie, USA | 5367-12NM | |
| Chauffage d’aquarium Shanda | Aquarium Yek Fong, Selangor, Malaisie | SDH-228 | |
| Thermomètre | Sera Precision, Heinsberg, Allemagne | 52525 | |
| Caméra vidéo | Nikon, Tokyo, Japon | D3100 |
Références
- Dorsey, E. R., et al. regional, and national burden of Parkinson's disease, 1990-2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurology. 17 (11), 939-953 (2018).
- Maserejian, N., Vinikoor-Imler, L., Dilley, L. Estimation of the 2020 global population of Parkinson's Disease (PD). Movement Disorder Council. 35 (1), 198(2020).
- Hirsch, L., Jette, N., Frolkis, A., Steeves, T., Pringsheim, T. The Incidence of Parkinson's Disease: A Systematic Review and Meta-Analysis. Neuroepidemiology. 46 (4), 292-300 (2016).
- Przedborski, S. The two-century journey of Parkinson disease research. Nature Review Neuroscience. 18 (4), 251-259 (2017).
- Cookson, M. R. Disease-Modifying Targets in Neurodegenerative Disorders. , Academic Press. Ch. 6 157-174 (2017).
- Jamebozorgi, K., et al. Cellular and molecular aspects of Parkinson treatment: Future therapeutic perspectives. Molecular Neurobiology. 56 (7), 1-13 (2018).
- Parmar, M., Grealish, S., Henchcliffe, C. The future of stem cell therapies for Parkinson disease. Nature Review Neuroscience. 21 (1), 1-13 (2020).
- Foltynie, T. Can Parkinson's disease be cured by stimulating neurogenesis. Journal of Clinical Investigation. 125 (3), 978-980 (2015).
- Winner, B., Winkler, J. Adult neurogenesis in neurodegenerative diseases. Cold Spring Harbour Perspect Biology. 7 (4), 021287(2015).
- Huang, C., et al. Nerve guidance conduits from aligned nanofibers: improvement of nerve regeneration through longitudinal nanogrooves on a fiber surface. ACS Applied Materials & Interfaces. 7 (13), 7189-7196 (2015).
- Alunni, A., Bally-Cuif, L. A comparative view of regenerative neurogenesis in vertebrates. Development. 143 (5), 741-753 (2016).
- Dietz, V., Schwab, M. E. From the rodent spinal cord injury model to human application: promises and challenges. Journal of Neurotrauma. 34 (9), 1826-1830 (2017).
- La Rosa, C., Bonfanti, L. Brain plasticity in mammals: An example for the role of comparative medicine in the neurosciences. Frontiers in Veterinary Science. 5 (274), 1-8 (2018).
- Ferretti, P., Prasongchean, W. Neural Stem Cells in Development, Adulthood and Disease. , Springer. 1-21 (2015).
- Vijayanathan, Y., et al. Adult endogenous dopaminergic neuroregeneration against Parkinson's Disease: Ideal animal models. Neurotoxicity Research. 39 (2), 504-532 (2021).
- Vaz, R. L., Outeiro, T. F., Ferreira, J. J. Zebrafish as an animal model for drug discovery in Parkinson's disease and other movement disorders: a systematic review. Frontier Neuroscience. 9, 347(2018).
- Nie, S., et al. Small molecule TrkB agonist deoxygedunin protects nigrostriatal dopaminergic neurons from 6-OHDA and MPTP induced neurotoxicity in rodents. Neuropharmacology. 99, 448-458 (2015).
- Schober, A. Classic toxin-induced animal models of Parkinson's disease: 6-OHDA and MPTP. Cell Tissue Research. 318 (1), 215-224 (2004).
- Betarbet, R., Sherer, T. B., Greenamyre, J. T. Animal models of Parkinson's disease. Bioessays. 24 (4), 308-318 (2002).
- Anichtchik, O. V., Kaslin, J., Peitsaro, N., Scheinin, M., Panula, P. Neurochemical and behavioural changes in zebrafish Danio rerio after systemic administration of 6-hydroxydopamine and 1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine. Journal of Neurochemistry. 88 (2), 443-453 (2004).
- Fiametti, L. O., Correa, C. N., Castro, L. M. d Peptide profile of zebrafish brain in a 6-OHDA-induced Parkinson model. Zebrafish. 18 (1), 55-65 (2021).
- Vijayanathan, Y., et al. 6-OHDA-lesioned adult zebrafish as a useful Parkinson's disease model for dopaminergic neuroregeneration. Neurotoxicity Research. 32 (3), 496-508 (2017).
- Caldwell, L. J., et al. Regeneration of dopaminergic neurons in adult zebrafish depends on immune system activation and differs for distinct populations. Journal of Neuroscience. 39 (24), 4694-4713 (2019).
- Zupanc, G. K., Hinsch, K., Gage, F. H. Proliferation, migration, neuronal differentiation, and long-term survival of new cells in the adult zebrafish brain. Journal of Comparative Neurology. 488 (3), 290-319 (2005).
- Lawrence, C. The husbandry of zebrafish (Danio rerio): a review. Aquaculture Research. 269 (1-4), 1-20 (2007).
- Reed, B., Jennings, M. Guidance on the Housing and Care of Zebrafish Danio rerio. Royal Society for the Prevention of Cruelty to Animals (RSPCA). , 7-53 (2011).
- Avdesh, A., et al. Regular care and maintenance of a zebrafish (Danio rerio) laboratory: an introduction. Journal of Visualized Experiments: JoVE. (69), e4196(2012).
- Altenhofen, S., et al. Tebuconazole alters morphological, behavioral and neurochemical parameters in larvae and adult zebrafish (Danio rerio). Chemosphere. 180, 483-490 (2017).
- Bridi, D., Altenhofen, S., Gonzalez, J. B., Reolon, G. K., Bonan, C. D. Glyphosate and Roundup alter morphology and behavior in zebrafish. Toxicology. 392, 32-39 (2017).
- Wright, D., Krause, J. Repeated measures of shoaling tendency in zebrafish (Danio rerio) and other small teleost fishes. Nature Protocols. 1 (4), 1828-1831 (2006).
- Pienaar, I. S., Götz, J., Feany, M. B. Parkinson's disease: insights from non-traditional model organisms. Progress in Neurobiology. 92 (4), 558-571 (2010).
- Becker, T., Becker, C. G. Axonal regeneration in zebrafish. Current Opinion in Neurobiology. 27, 186-191 (2014).
- Collymore, C., Tolwani, A., Lieggi, C., Rasmussen, S. Efficacy and safety of 5 anesthetics in adult zebrafish (Danio rerio). Journal of the American Association for Laboratory Animal Science. 53 (2), 198-203 (2014).
- Katz, E. M., et al. The stability and efficacy of tricaine methanesulfonate (MS222) solution after long-term storage. Journal of the American Association for Laboratory Animal Science. 59 (4), 393-400 (2020).
- Thiele, S. L., Warre, R., Nash, J. E. Development of a unilaterally-lesioned 6-OHDA mouse model of Parkinson's disease. Journal of Visualized Experiments: JoVE. (60), e3234(2012).
- Neiffer, D. L., Stamper, M. A. Fish sedation, analgesia, anesthesia, and euthanasia: considerations, methods, and types of drugs. Institute for Laboratory Animal Research. 50 (4), 343-360 (2009).
- Barbosa Júnior, A., et al. Zebrafish Protocols for Neurobehavioral Research. 66, Springer. 323-330 (2012).
- Cocchiaro, J. L., Rawls, J. F. Microgavage of zebrafish larvae. Journal of Visualized Experiments: JoVE. (72), e4434(2013).
- Stewart, A., et al. Modeling anxiety using adult zebrafish: a conceptual review. Neuropharmacology. 62 (1), 135-143 (2012).
- Sykes, D. J., Suriyampola, P. S., Martins, E. P. Recent experience impacts social behavior in a novel context by adult zebrafish (Danio rerio). PLOS ONE. 13 (10), 0204994(2018).
- Collymore, C., Tolwani, R. J., Rasmussen, S. The behavioral effects of single housing and environmental enrichment on adult zebrafish (Danio rerio). Journal of the American Association for Laboratory Animal Science. 54 (3), 280-285 (2015).
- Grossman, L., et al. Characterization of behavioral and endocrine effects of LSD on zebrafish. Behavioural Brain Research. 214 (2), 277-284 (2010).
- Stewart, A., et al. Homebase behavior of zebrafish in novelty-based paradigms. Behavioural Processes. 85 (2), 198-203 (2010).
- Abozaid, A., Tsang, B., Gerlai, R. The effects of small but abrupt change in temperature on the behavior of larval zebrafish. Physiology and Behavior. 227, 113169(2020).
- Sekhar, M., Singh, R., Bhat, A., Jain, M. Feeding in murky waters: acclimatization and landmarks improve foraging efficiency of zebrafish (Danio rerio) in turbid waters. Biology Letters. 15 (7), 1-5 (2019).
- Valcarce, D. G., Martínez-Vázquez, J. M., Riesco, M. F., Robles, V. Probiotics reduce anxiety-related behavior in zebrafish. Heliyon. 6 (5), 03973(2020).
- Tunbak, H., Vazquez-Prada, M., Ryan, T. M., Kampff, A. R., Dreosti, E. Whole-brain mapping of socially isolated zebrafish reveals that lonely fish are not loners. eLife. 9, 55863(2020).
- Shams, S., Seguin, D., Facciol, A., Chatterjee, D., Gerlai, R. Effect of social isolation on anxiety-related behaviors, cortisol, and monoamines in adult zebrafish. Behavioral Neuroscience. 131 (6), 492-504 (2017).
- Burghardt, G. M., et al. Perspectives - Minimizing observer bias in behavioral studies: A review and recommendations. Ethology. 118 (6), 511-517 (2012).
- Kalueff, A. V., et al. Towards a comprehensive catalog of zebrafish behavior 1.0 and beyond. Zebrafish. 10 (1), 70-86 (2013).
- Franco-Restrepo, J. E., Forero, D. A., Vargas, R. A. A review of freely available, open-source software for the automated analysis of the behavior of adult zebrafish. Zebrafish. 16 (3), 223-232 (2019).
- Beal, M. F. Parkinson's disease: a model dilemma. Nature. 466 (7310), 8-10 (2010).
- Jha, U., Thirumalai, V. Neuromodulatory selection of motor neuron recruitment patterns in a visuomotor behavior increases speed. Current Biology. 30 (5), 788-801 (2020).
- Reimer, M. M., et al. Dopamine from the brain promotes spinal motor neuron generation during development and adult regeneration. Developmental Cell. 25 (5), 478-491 (2013).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
