Ce protocole décrit le flux de travail pour le marquage métabolique des cellules sénescentes et non divisées avec SILAC pulsé, l’analyse par spectrométrie de masse non ciblée et un calcul rationalisé des demi-vies des protéines.
Article de méthode
Mesure des taux de renouvellement des protéines dans les cellules cultivées sénescentes et non divisées avec marquage métabolique et spectrométrie de masse
Dans cet article
Résumé
Résumé
De plus en plus de preuves ont montré que l’accumulation de cellules sénescentes dans le système nerveux central contribue à des troubles neurodégénératifs tels que les maladies d’Alzheimer et de Parkinson. La sénescence cellulaire est un état d’arrêt permanent du cycle cellulaire qui se produit généralement en réponse à une exposition à des stress sublétaux. Cependant, comme d’autres cellules non divisées, les cellules sénescentes restent métaboliquement actives et remplissent de nombreuses fonctions qui nécessitent des demandes transcriptionnelles et translationnelles uniques et des changements généralisés dans les protéomes intracellulaires et sécrétés. Comprendre comment la synthèse des protéines et les taux de désintégration changent pendant la sénescence peut éclairer les mécanismes sous-jacents de la sénescence cellulaire et trouver des voies thérapeutiques potentielles pour les maladies exacerbées par les cellules sénescentes. Cet article décrit une méthode d’évaluation à l’échelle du protéome des demi-vies protéiques dans les cellules non divisées en utilisant le marquage isotopique stable pulsé par les acides aminés en culture cellulaire (pSILAC) en combinaison avec la spectrométrie de masse. pSILAC implique le marquage métabolique de cellules avec des versions stables contenant des isotopes lourds d’acides aminés. Couplé aux approches modernes de spectrométrie de masse, pSILAC permet de mesurer le renouvellement protéique de centaines ou de milliers de protéines dans des mélanges complexes. Après marquage métabolique, la dynamique de renouvellement des protéines peut être déterminée en fonction de l’enrichissement relatif des isotopes lourds en peptides détectés par spectrométrie de masse. Dans ce protocole, un flux de travail est décrit pour la génération de cultures de fibroblastes sénescents et de fibroblastes quiescents arrêtés de manière similaire, ainsi qu’un cours temporel simplifié de marquage pSILAC ponctuel unique qui maximise la couverture des taux de renouvellement des protéines prévus. En outre, un pipeline est présenté pour l’analyse des données de spectrométrie de masse pSILAC et le calcul convivial des taux de dégradation des protéines à l’aide de feuilles de calcul. L’application de ce protocole peut être étendue au-delà des cellules sénescentes à toutes les cellules cultivées non divisées telles que les neurones.
Introduction
La sénescence a d’abord été identifiée comme un état d’arrêt indéfini de la croissance présenté par les cellules primaires cultivées après avoir atteint l’épuisement réplicatif1. Il a depuis été démontré que la sénescence peut survenir en réponse à de nombreuses insultes cellulaires, y compris les stress génotoxiques, mitochondriaux et oncogènes, entre autres2. Alors que la sénescence a plusieurs rôles physiologiquement importants, tels que la suppression des tumeurs et la cicatrisation des plaies, l’accumulation de cellules sénescentes pendant le vieillissement est associée à une foule d’effets délétères sur la santé3, y compris plusieurs conditions neurodégénératives 4,5,6. La sénescence cellulaire se produit dans plusieurs types de cellules cérébrales, y compris les neurones 7,8,9,10, les astrocytes11, la microglie12 et les précurseurs oligodendrocytes13, et contribue à la neurodégénérescence et au dysfonctionnement cognitif. Il a été démontré que les oligomères bêta-amyloïdes, l’une des caractéristiques de la maladie d’Alzheimer14, accélèrent la sénescence neuronale 13,15,16. Une prévalence accrue de cellules sénescentes a également été associée à la maladie de Parkinson17, en particulier en raison de facteurs de stressenvironnementaux 11,18. Il est important de noter que l’élimination sélective des cellules sénescentes dans les modèles précliniques prolonge la durée de vie et atténue une multitude de maladies liées à l’âge 3,5,12 et améliore les déficits cognitifs 8,11,12,13. Les cellules sénescentes sont ainsi apparues comme des cibles thérapeutiques prometteuses pour le traitement de nombreuses affections liées à l’âge.
Une grande partie de l’effet néfaste des cellules sénescentes est causée par le phénotype sécrétoire associé à la sénescence (SASP), un mélange complexe de molécules bioactives sécrétées par les cellules sénescentes qui peuvent provoquer une inflammation locale, une angiogenèse, la destruction de la matrice extracellulaire et la propagation de la sénescence dans les tissus environnants 19,20,21 . Le SASP représente également un phénomène biologique intéressant de sénescence car il nécessite un effort transcriptionnel et translationnel considérable lors d’un état d’arrêt du cycle cellulaire. En fait, il a été démontré que les cellules sénescentes présentent des diminutions de la biogenèsedes ribosomes 22,23,24 qui devraient réduire la synthèse des protéines. Au lieu de cela, les cellules sénescentes traduisent de manière robuste certaines protéines, en particulier les facteurs SASP, et influencent le métabolisme des tissus environnants25. Ainsi, il y a un intérêt considérable à comprendre comment les cellules sénescentes subissant un arrêt permanent du cycle cellulaire continuent de maintenir l’homéostasie des protéines tout en exprimant de manière robuste les facteurs SASP et d’autres protéines sélectionnées.
Cette méthode décrit comment utiliser la spectrométrie de masse et le marquage isotopique stable pulsé par des acides aminés en culture cellulaire (pSILAC) pour mesurer globalement les demi-vies des protéines dans les cellules sénescentes à l’échelle du protéome. Dans le SILAC traditionnel, les cellules cultivées sont complètement marquées métaboliquement avec des isotopes lourds et légers non radioactifs d’acides aminés pour l’analyse en aval de l’abondance des protéines. Cette méthode a déjà été appliquée pour évaluer les changements d’abondance de manière globale et quantitative dans le SASP des fibroblastes cultivés26. Dans pSILAC, les cellules sont également marquées métaboliquement avec une impulsion d’isotope lourd qui suit le pré-marquage avec un isotope léger, puis récoltées à un ou plusieurs intervalles de temps. Les taux d’incorporation de l’isotope lourd par rapport à l’isotope léger préexistant sont ensuite utilisés pour calculer les taux de renouvellement relatif des protéines. Généralement, les isotopes de l’arginine et de la lysine sont utilisés parce que la trypsine se fend à ces résidus; ainsi, tous les peptides issus de la digestion standard contiendront potentiellement l’étiquette lourde. Les paires de peptides qui ne diffèrent que par la présence ou l’absence de lysine lourde ou d’arginine sont chimiquement identiques et peuvent être différenciées et quantifiées par un spectromètre de masse. Après l’analyse par spectrométrie de masse, les peptides peuvent être identifiés comme nouvellement synthétisés ou préexistants en fonction de la présence ou de l’absence de l’étiquette isotopique dans les identifications peptidiques résultantes. Les taux de renouvellement des protéines peuvent ensuite être déterminés en ajustant le rapport entre les peptides lourds (13 C-15N) et légers (12 C-14N) pour une protéine donnée et les modèles cinétiques pour la croissance exponentielle ou la désintégration27,28. pSILAC a été utilisé dans plusieurs comparaisons des taux de renouvellement des protéines 29,30,31,32 et est actuellement la méthode la plus complète et la plus efficace pour la mesure des demi-vies des protéines.
Ce protocole détaille la préparation de cellules sénescentes en parallèle avec des cellules quiescentes arrêtées de croissance similaires en culture, suivie d’un marquage métabolique avec pSILAC. Les cellules sont ensuite récoltées, homogénéisées en lysats et traitées pour l’acquisition et l’analyse par spectrométrie de masse. Les données obtenues par spectrométrie de masse sont ensuite utilisées pour déterminer les demi-vies des protéines à l’aide d’une méthode quantitative simplifiée utilisant un seul point temporel et des calculs de demi-vie effectués dans une feuille de calcul. En utilisant cette approche, les estimations des demi-vies des protéines peuvent être mesurées d’une manière complète et quantitative qui est plus authentique aux conditions cellulaires non perturbées que les protocoles qui utilisent des bloqueurs de la synthèse ou du renouvellement des protéines.
Protocole
1. Préparation des cellules quiescentes et des cellules rendues sénescentes par exposition aux rayonnements ionisants (RI)
REMARQUE: La sénescence cellulaire et la quiescence peuvent être induites à l’aide de plusieurs méthodes, comme décrit en détail ailleurs 33,34,35. Les stimuli utilisés pour induire la sénescence et la quiescence peuvent dépendre du type de cellule d’intérêt et de la question biologique étudiée. Les cellules utilisées dans cette étude sont disponibles dans le commerce.
- Décongeler les fibroblastes diploïdes humains IMR-90 (~1 x 10⁶ cellules) d’un cryovial et les plaquer dans 20 mL de DMEM complété par 10% de sérum fœtal bovin (FBS) (tableau 1) sur une plaque de 150 mm.
- Cultiver les cellules dans des conditions physiologiques d’oxygène (3% O2, 5% CO2, 37 °C) et étendre les cultures dans des milieux contenant 10% de FBS jusqu’à ce que suffisamment de répliques pour les cellules quiscentes et sénescentes aient été établies (au moins 3-5 répliques sont recommandées par condition).
REMARQUE: La culture de cellules à l’oxygène physiologique (3%) est idéale pour les cellules fibroblastiques humaines primaires, mais les conditions de culture appropriées pour d’autres types de cellules peuvent varier et doivent être déterminées au cas par cas. - Générer des cellules sénescentes en exposant les cellules proliférantes à 15 gris (Gy) de rayonnement ionisant (IR).
REMARQUE : L’intensité de l’exposition aux rayonnements peut varier selon le type de cellule. Alors que 15 Gy est utilisé ici, 10 Gy est également une dose de rayonnement couramment utilisée pour les fibroblastes; d’autres cellules, telles que les monocytes, peuvent nécessiter une dose aussi faible que 5 Gy. La dose est généralement déterminée empiriquement en pesant la viabilité par rapport à l’induction de sénescence.- Exposez les cellules à une confluence de 40% à 60% à l’IR dans des milieux contenant 10% de FBS.
- Après l’exposition IR, passez à un nouveau support contenant 10% de FBS.
- Changez de support (20 mL, contenant 10% de FBS) tous les 2 jours pendant 8 jours.
REMARQUE: Les cellules sont exposées à l’IR à faible confluence parce que les cellules traitées par IR se développeront en culture avant de cesser de croître. Dans cette expérience, les cellules n’ont pas été divisées lors de l’établissement de la sénescence, et bien qu’elles soient devenues plus confluentes, elles présentaient toujours des marqueurs cellulaires sénescents à la récolte. Dans les fibroblastes, le phénotype sénescent se développe dans les 7-10 jours.
- Générer des cellules témoins au repos en changeant les milieux des cellules proliférantes plaquées en milieux contenant 0,2 % de FBS (famine sérique) (tableau 1).
- Continuer à cultiver des cellules qui seront utilisées pour le contrôle de la quiescence dans des milieux contenant 10% de FBS jusqu’au jour 4 après que les cellules sénescentes ont été exposées à l’IR, en se divisant si nécessaire.
- Le jour 4 après l’IR, changez le milieu des cellules quiescentes en 20 mL de milieu contenant 0,2 % de FBS (tableau 1) et continuez à croître pendant 6 jours supplémentaires, en changeant de milieu tous les 2 jours.
REMARQUE: Même dans les milieux contenant 0,2% de FBS, les fibroblastes continueront à croître quelque peu et peuvent sembler confluents à la fin de la récolte. En règle générale, visez à collecter des cellules quiescentes lorsqu’elles ont atteint une confluence similaire à celle des cultures de cellules sénescentes.
2. Marquage des cellules pour le SILAC pulsé et la récolte des lysats
- Changez le milieu sur les cellules sénescentes et quiescentes (12 plaques) en SILAC Light (tableau 1) et cultivez pendant 2 jours.
REMARQUE: Cet étiquetage aide à réduire le bruit de fond car il y a une faible abondance naturelle de 13C et 15N. Cette étape peut être sautée dans des conditions limitant les réactifs, mais entraînera une légère surestimation de la synthèse de nouvelles protéines. - Remplacer le milieu par SILAC DMEM (tableau 1) pour le marquage métabolique.
REMARQUE: Les milieux SILAC DMEM sont spécialement formulés pour contenir des isotopes purement légers ou lourds de l’arginine et de la lysine pour le marquage métabolique. Elles ne doivent pas être remplacées par des formulations DMEM standard aux sous-étapes 2.2.1 ou 2.2.2.- Pour trois plaques sénescentes et trois plaques de repos, remplacer le support par 30 mL de SILAC Light (Tableau 1) et cultiver pendant 3 jours sans changer de support.
- Pour un minimum de trois plaques sénescentes et trois plaques de repos, remplacez le support par 30 mL de SILAC Heavy (Tableau 1) et cultivez pendant 3 jours sans changer de support.
REMARQUE: Il existe une option à ce stade pour récolter immédiatement ce qui sera les cellules marquées à la lumière, plutôt que de les étiqueter pendant 3 jours supplémentaires. Pour un seul point temporel, il est préférable d’étiqueter les cellules lourdes et marquées légèrement pendant la même période que dans ce protocole afin de minimiser les effets de lot.
- Détachez les cellules des plaques de culture en ajoutant 5 mL de réactif de trypsine préchauffé à chaque plat et en incubant pendant 5 min à 37 °C.
- Remettre en suspension les cellules détachées dans 5 mL du même milieu utilisé pour la culture (SILAC Light ou SILAC Heavy) à un volume total de 10 mL.
- Récolter les cellules pour l’extraction des lysats et la validation des marqueurs de sénescence.
- Pour chaque suspension, aliquoter 0,6 x 10⁶ cellules dans 2 mL de milieu contenant 0,2 % de FBS dans une boîte à 6 puits (deux plats, un pour les cellules cultivées SILAC Light et un pour les cellules de culture SILAC Heavy) et placer à 37 °C pour une incubation nocturne.
REMARQUE: Ces plaques (sous-étape 2.5.1) seront utilisées pour la détection de l’activité de la β-galactosidase (SA-βGal) associée à la sénescence (étape 3.1). - Pour chaque suspension, aliquote 1 x 10⁶ cellules dans un tube de microcentrifugation et tourner vers le bas dans une centrifugeuse de table à pleine vitesse pendant 1 min. Retirer le surnageant et remettre la pastille en suspension dans 1 mL de phénol; à cette étape, l’ARN peut être entièrement purifié comme décrit dans le manuel du fournisseur de phénol ou stocké à long terme à -80 °C.
ATTENTION : Le phénol est corrosif et doit être manipulé exclusivement dans une cagoule avec des gants et une blouse de laboratoire.
REMARQUE: L’ARN extrait sera utilisé pour la détection des ARNm codant pour les facteurs SASP à l’aide de la transcription inverse (RT) suivie d’une analyse PCR quantitative (q) en temps réel (RT-qPCR) (étape 3.2). Un autre test fiable pour l’induction de la sénescence est un test pour l’incorporation de 5-éthynyle dihydroxy uridine (EdU), qui indique la présence de cellules proliférantes. L’absence de prolifération peut être utilisée pour confirmer la quiescence et la sénescence. - Transférer les cellules restantes dans la glace et tourner vers le bas à 300 x g et 4 °C.
- Pour chaque suspension, aliquoter 0,6 x 10⁶ cellules dans 2 mL de milieu contenant 0,2 % de FBS dans une boîte à 6 puits (deux plats, un pour les cellules cultivées SILAC Light et un pour les cellules de culture SILAC Heavy) et placer à 37 °C pour une incubation nocturne.
- Retirer le surnageant et laver les cellules deux fois dans 1 mL de PBS froid pour éliminer la contamination par les milieux/trypsine et les protéines exogènes du sérum bovin fœtal du milieu de culture.
- Faites tourner à nouveau les cellules, retirez le surnageant et procédez à la lyse.
- Remettre en suspension les granulés cellulaires dans 150 μL de tampon de lyse de bicarbonate d’ammonium de 8 M 50 mM fraîchement préparé (tableau 1) et mélanger en pipetant de haut en bas.
- Sonicate les lysats dans un sonicateur à eau pendant 2,5 min avec 30 s marche/arrêt à puissance moyenne à 4 °C.
- Transférer les lysats dans un bloc chauffant préchauffé à 95 °C et dénaturer pendant 4 min.
- Faites tourner les lysats; Les lysats peuvent maintenant être stockés à -80 °C ou utilisés immédiatement pour la quantification.
- Faire un stock de 30 μL de dilutions 1:10 pour chaque lysat dans le tampon de lyse.
- Mesurez la concentration en protéines avec le kit de dosage BCA à l’aide d’une courbe standard préparée dans 1/10x Lysis Buffer dilué dans ddH2O. Les lysats peuvent maintenant être stockés à -80 °C indéfiniment.
3. Validation de la sénescence par l’activité de la β-Galactosidase (SA-βGal) associée à la sénescence et analyse RT-qPCR des ARNm associés à la sénescence
REMARQUE : Le matériel de départ de ces étapes est collecté à l’étape 2.5
- À partir des plaques de 6 puits qui ont été mises en place à la sous-étape 2.5.1, analysez les cellules pour l’activité SA-βGal à l’aide du kit de coloration Senescence β-Galactosidase en suivant le protocole du fabricant. Visualisez la coloration sous un champ lumineux avec la couleur activée, comme décrit précédemment36.
REMARQUE: SA-βGal est quantifié en comparant le pourcentage de cellules positives (couleur bleue visible) dans des conditions de contrôle sénescentes par rapport à des conditions de contrôle au repos. Un minimum de 70% des cellules doivent être SA-βGal positives pour une confirmation réussie de la sénescence. Les cellules témoins au repos doivent être moins de 10 % positives pour le SA-βGal. - Extraire l’ARN de la suspension de phénol (sous-étape 2.5.2) et analyser à l’aide de la RT-qPCR pour détecter des niveaux accrus d’ARNm codant pour les facteurs SASP (IL6, CXCL8, IL1B), les marqueurs du cycle cellulaire (CDKN2A/p16, CDKN1A/p21) et d’autres indicateurs de sénescence (perte de LMNB1 et de PCNA).
REMARQUE: L’ARN est instable et doit donc être manipulé avec de l’équipement sans RNase, des gants frais et sur de la glace, sauf indication contraire dans le protocole.- À partir d’une suspension de phénol, ajouter 200 μL de chloroforme pour 1 mL de phénol et faire tourner à 12 000 x g pendant 15 min à 4 °C.
- Retirer délicatement la phase aqueuse et ajouter 1:1 volume d’isopropanol, 15 μg de co-précipitant de glycogène, puis incuber à 4 °C pendant 10 min pour précipiter l’ARN.
- Après incubation, pastiller l’ARN par centrifugation à 12 000 x g pendant 20 min à 4 °C suivi d’un lavage à 75% EtOH égal à 1 volume de phénol utilisé. Remettre en suspension l’ARN dans 50 μL d’eau distillée sans nucléase; L’ARN peut être stocké à -80 °C indéfiniment.
- Aux échantillons d’ARN, ajouter 38 μL d’eau distillée sans nucléase, 10 μL de tampon de réaction 10x DNAse et 2 μL de DNase I suivis d’un mélange.
REMARQUE: La génération d’un mélange commun de tous les réactifs de la sous-étape 3.2.3 multipliée par le nombre d’échantillons à traiter pour une distribution égale aux échantillons est la meilleure pratique. - Incuber des échantillons d’ARN traités à la DNase I à 37 °C pendant 30 min.
- Retirer la DNase des échantillons à l’aide de 1 volume d’un mélange phénol/chloroforme/alcool isoamylique (25:24:1) en vortexant et en filant à la vitesse maximale dans une centrifugeuse de table pendant 5 min; l’ARN sera contenu dans la phase aqueuse.
- Répétez les sous-étapes 3.2.2 et 3.2.3 pour précipiter l’ARN. Remettre en suspension dans 20 μL d’eau distillée sans nucléase; L’ARN peut être stocké à -80 °C indéfiniment.
- Générer de l’ADNc à partir d’ARN purifié en incubant 0,5-1,0 μg d’ARN purifié avec 200 U de transcriptase inverse, des amorces aléatoires de 100 pMol et 10 mM d’un mélange de dNTP dans 1x tampon de réaction fourni avec la transcriptase inverse; incuber pendant 10 min à 25 °C, puis pendant 30 min à 50 °C, avec une dernière étape d’inactivation à 85 °C pendant 5 min.
- Analyser l’ADNc de l’étape RT (sous-étape 3.2.3) des cellules témoins et sénescentes au repos à l’aide d’une analyse PCR quantitative (q) en temps réel pour évaluer le niveau de marqueurs d’ARNm connus pour être augmentés (CDKN2A/p16, CDKN1A/p21, IL1B, IL6 et CXCL8 aRNm) ou diminués (ARNm LMNB1 et PCNA ) avec sénescence comme décrit ailleurs. L’ARNm ACTB , codant pour la protéine d’entretien ménager β-Actine, est souvent un bon ARNm pour normaliser les différences dans le matériau d’entrée. Les amorces utilisées se trouvent dans le tableau 2.
REMARQUE : L’analyse RT-qPCR relative dépend d’hypothèses d’efficacité de liaison égale entre les paires d’amorces cibles et une paire d’amorces de référence. Ces hypothèses devraient être testées pour les nouveaux ensembles d’amorces, comme détaillé ailleurs37. De plus, les marqueurs de référence doivent être constants entre les types de cellules comparés, et plusieurs options supplémentaires pour les cellules sénescentes ont déjà été identifiées38.
4. Digestion de la trypsine en solution
REMARQUE: À partir de ce moment, il est essentiel d’utiliser des tampons, des solvants et des produits chimiques de qualité spectrométrie de masse pour éviter les interférences d’impuretés lors de l’analyse par spectrométrie de masse. Tous les tampons doivent être composés d’ingrédients adaptés à l’analyse par spectrométrie de masse en tandem par chromatographie liquide, y compris l’eau et l’acétonitrile. Reportez-vous au Tableau des matériaux pour obtenir une liste des produits chimiques et des solvants appropriés.
- Aliquote 50 μg de chaque échantillon de protéine dans de nouveaux tubes et porter à des volumes égaux avec Lysis Buffer.
- À chaque échantillon, ajoutez la TNT à une concentration finale de 20 mM pour réduire les liaisons disulfures.
- Incuber les échantillons à 37 °C pendant 30 min en les agitant, puis laisser refroidir les échantillons à température ambiante (RT, ~10 min).
- Ajouter l’iodoacétamide à une concentration finale de 40 mM pour alkyler irréversiblement les groupes sulfhydryle qui ont été réduits à l’étape précédente. Incuber les échantillons à TA dans l’obscurité pendant 30 min.
- Diluer chaque échantillon à moins de 1 M d’urée avec un tampon composé de 50 mM de bicarbonate d’ammonium. Vérifiez si le pH est d’environ 8 en pipetant une petite quantité d’échantillon sur des bandelettes de pH.
- Ajouter 1 μg de trypsine à chaque échantillon pour 50 μg de protéine de départ, ou à un rapport trypsine/protéine de 1:50, en masse, si vous digérez une quantité de protéines différente. Par exemple, 3 μg de trypsine seraient ajoutés pour la digestion de 150 μg de protéines.
- Incuber les échantillons pendant la nuit à 37 °C en agitant pour digérer les protéines en peptides.
- Ajouter l’acide formique à 1%, en volume, de chaque échantillon pour éteindre la digestion des protéines.
REMARQUE: L’expérience peut être mise en pause ici. Congeler les échantillons à -80 °C et passer à l’étape suivante à une date ultérieure si nécessaire.
5. Nettoyage des échantillons avec extraction en phase solide (SPE)
REMARQUE: Ce protocole d’extraction en phase solide nécessite des cartouches d’extraction en phase solide et une configuration de collecteur à vide. D’autres protocoles équivalents d’extraction en phase solide (SPE) peuvent être effectués à la discrétion du chercheur avant l’analyse par spectrométrie de masse.
- Préparez-vous pour spe en plaçant des cartouches d’extraction en phase solide sur un collecteur à vide, en utilisant une cartouche d’extraction pour chaque échantillon.
REMARQUE: Reportez-vous aux directives du fabricant pour la quantité de sorbant à utiliser dans le protocole SPE. Pour 50 μg d’échantillons peptidiques, il est recommandé d’utiliser des cartouches de sorbant de 10 mg. - Conditionnez chaque cartouche SPE en ajoutant 800 μL de tampon d’élution SPE (tableau 1) et utilisez l’aspiration sous vide pour aspirer le solvant à travers la cartouche.
- Répétez l’étape 5.2.
- Équilibrez chaque cartouche en ajoutant 800 μL de tampon de lavage SPE (tableau 1) et utilisez l’aspiration sous vide pour aspirer le tampon à travers les cartouches.
- Répétez l’étape 5.4 deux fois de plus pour un total de trois fois.
- Chargez les échantillons de peptides dans des cartouches SPE et utilisez l’aspiration sous vide pour prélever des échantillons à travers les cartouches.
REMARQUE: À ce stade, les peptides sont liés au sorbant à l’intérieur des cartouches. - Lavez chaque cartouche avec SPE Wash Buffer et utilisez l’aspiration sous vide pour aspirer le tampon à travers les cartouches.
- Répétez l’étape 5.7 deux fois de plus pour un total de trois lavages.
- Avant l’étape d’élution, disposez les tubes de collecte dans le collecteur à vide sous chaque cartouche, en assurant soigneusement l’alignement entre les tubes de collecte et les cartouches.
- Pour éluer les peptides, ajoutez 800 μL de tampon d’élution SPE à chaque cartouche et élutez les peptides dans des tubes de collecte avec aspiration sous vide.
- Répétez l’étape 5.10 avec 400 μL de tampon d’élution SPE.
- Retirez les échantillons de peptides du collecteur à vide et séchez-les complètement dans un concentrateur à vide (le séchage prend environ 3 h).
REMARQUE: L’expérience peut être mise en pause ici. Congeler les échantillons à -80 °C et continuer à une date ultérieure si nécessaire.
6. Analyse par spectrométrie de masse par acquisition dépendante des données (DDA)
- Remettre en suspension les échantillons peptidiques à une concentration de 400 ng/μL dans un tampon composé de 0,2 % d’acide formique dans l’eau.
- Pour aider à la re-solubilisation des peptides, vortex les échantillons pendant 5 min. Ensuite, soniquez les échantillons pendant 5 min dans un sonicateur au bain-marie.
- Granulés tous les matériaux insolubles en centrifugant des échantillons à 15 000 x g pendant 15 min à 4 °C. Transférer les surnageants peptidiques dans des flacons de SEP.
- Ajoutez les étalons peptidiques de temps de rétention indexé (iRT) de votre choix à chaque échantillon à une concentration de 1:30 iRT:échantillon, par volume.
- Soumettre les échantillons pour analyse protéomique à l’aide de la spectrométrie de masse en tandem par chromatographie liquide (LC-MS/MS).
- Utilisez les paramètres LC-MS/MS recommandés pour l’analyse non ciblée par l’installation de spectrométrie de masse. Des exemples de paramètres d’analyse sont présentés à la figure 3, configurés pour l’analyse sur un spectromètre de masse Orbitrap couplé à un système de chromatographie nano liquide en mode nano-flux. Voici un exemple de protocole.
- Charger 1 μg (5 μL) de chaque échantillon sur une colonne piège (1 cm de long x 100 μm de diamètre) et les laver avec du solvant de chargement (tableau 1) à un débit de 10 μL/min pendant 5 min.
- Chargez les échantillons sur une colonne analytique (50 cm de long x 100 μm de diamètre) avec un débit de 400 nL/min.
- Éluez les peptides sur un gradient linéaire de 90 min avec un solvant organique (0,2 % d’acide formique et 99,8 % d’acétonitrile) et un solvant inorganique (0,2 % d’acide formique dans 99,8 % d’eau), allant de 5 % à 35 % de solvant organique.
- Acquérir des données de spectrométrie de masse en mode dépendant des données avec un cycle continu de scans d’enquête MS1 (résolution de 60 000, cible AGC 3e6, temps d’accumulation maximal de 100 ms et plage de masse de 400 à 1 600 m/z) suivi de 20 scans MS2 dépendants des données (résolution de 15 000, cible AGC 1e5, temps d’injection maximal de 25 ms et fenêtres d’isolation de largeur de 1,6 m/z) avec fragmentation HCD (énergie de collision normalisée de 27 %).
- Après l’acquisition de tous les échantillons par MS, importez les fichiers bruts de spectrométrie de masse dans un outil logiciel d’analyse protéomique par spectrométrie de masse pour l’identification et la quantification des zones de pic peptidique.
REMARQUE: Pour l’identification des peptides et des protéines dans cette expérience, l’outil de recherche de la base de données Mascot a été utilisé avec la base de données de séquence de protéome humain UniProt révisée (ID de protéome: UP000005640). Les paramètres de recherche suivants ont été spécifiés dans Mascot :- Quantification : SILAC K+8 R+10 [MD] Enzyme : Trypsine/p Modification fixe : carbamidométhyle (C)
- Modifications variables : acétyle (protéine N-terme), Gln->pyro-Glu (N-terme Q), Oxydation (M), Étiquette:13C(6)15N(2) (K), Étiquette:13C(6)15N(4) (R)
- Tolérance à la masse peptidique: 10 ppm
- Tolérance de masse du fragment: 0,08 Da
- Nombre maximal de décolletés manqués: 2
- Tous les paramètres non spécifiés étaient par défaut
- Quantifier les zones de pic peptidique pour les peptides lourds et légers dans l’outil logiciel de quantification du protéome. Pour la quantification des zones de pic dans cette expérience, la plate-forme logicielle gratuite et open source Skyline a été utilisée39,40. Exporter les zones de pic peptidiques lourdes et légères pour l’estimation des demi-vies des protéines.
7. Calcul des demi-vies protéiques
- Ouvrez le classeur d’analyse SILAC (tableau 3) dans la première feuille nommée 1) Données brutes et collez les ID UniProt, les noms de gènes, les zones de pic lourd et les zones de pic léger dans les colonnes indiquées (SH = Senescent-Heavy, SL = Senescent-Light, CH = Control (quiescent)-Heavy, CL = Control (quiescent)-Light).
- Ouvrez les feuilles 2 à 4 et assurez-vous que les colonnes UniProt ID et Gene correspondent au nombre de protéines identifiées à partir de l’analyse (ces expériences ont identifié 841 protéines). Le reste des colonnes se remplira automatiquement de données après avoir été déplacées pour couvrir les protéines identifiées.
- Ouvrez la quatrième feuille nommée 4) Analyse et supprimez les lignes où les colonnes G et H indiquent que l’échantillon est hors de portée; conservez les lignes lues à portée. Le tracé du volcan dans la cinquième feuille sera automatiquement rempli.
Résultats
Ce protocole décrit une méthode pour comparer globalement les demi-vies des protéines entre les cellules témoins sénescentes et non divisées, au repos, en utilisant pSILAC et des points temporels minimaux. Ce protocole détaille la génération de cellules sénescentes et quiescentes en culture, le marquage métabolique des cellules avec des isotopes stables de l’arginine et de la lysine sur 3 jours, la quantification des abondances relatives d’isotopes peptidiques lourds et légers par spectrométrie de masse, et un calcul simple et accessible des demi-vies des protéines à l’aide de formules de tableur (Figure 1). Cette méthode est très flexible et peut être adaptée à de nombreux types et conditions cellulaires.
Dans le cadre de la génération de cellules sénescentes pour ce protocole, deux méthodes de validation de la sénescence sont utilisées : les cellules SA-βGal-positives visualisées par microscopie et les niveaux accrus de marqueurs sénescents quantifiés à l’aide de l’analyse RT-qPCR. La mesure des marqueurs sénescents devrait permettre de distinguer clairement les cellules quiescentes et les cellules sénescentes pour que les comparaisons des deux populations de cellules soient considérées comme valides. Pour l’activité SA-βGal, les cellules sénescentes doivent apparaître en bleu tandis que les cellules témoins au repos n’ont pas ou très peu de couleur (Figure 2A). Ce test peut être quantifié en comptant les cellules positives colorées en bleu en pourcentage du nombre total de cellules, puis en comparant le taux de positivité en pourcentage entre les cellules témoins au repos et les cellules sénescentes. Il est important que ce protocole soit effectué en même temps pour la comparaison des deux états cellulaires; L’activité de SA-βGal repose sur le pH de la solution de coloration, de sorte que les résultats peuvent varier considérablement d’un essai à l’autre et doivent être considérés comme une mesure qualitative.
L’analyse RT-qPCR des marqueurs sénescents montrera des niveaux élevés d’ARNm codant pour les facteurs SASP (IL6, CXCL8, IL1B) et les inhibiteurs du cycle cellulaire (CDKN2A/p16, CDKN1A/p21) dans la plupart des modèles sénescents. Bien qu’une certaine variation soit attendue en fonction du type de cellule, de l’état de culture et de l’inducteur sénescent 41,42, la plupart des cellules sénescentes présentent des niveaux plus élevés d’IL6, de CXCL8 et d’ARNm CDKN1A/p21 par rapport aux cellules témoins au repos; à l’inverse, les niveaux d’ARNm LMNB1 et PCNA, codant pour les marqueurs de prolifération, devraient être faibles ou absents dans les cellules sénescentes par rapport aux cellules au repos (figure 2B). Pris ensemble, un pourcentage significatif de positivité SA-βGal et l’expression attendue d’un panel de marqueurs d’ARNm associés à la sénescence sont suffisants pour confirmer l’induction de la sénescence dans une expérience.
Le traitement des échantillons de protéines pour l’analyse par spectrométrie de masse consiste en une digestion en solution (2 jours) et une extraction en phase solide (4-6 h). Pour effectuer une analyse protéomique non ciblée, les peptides résultants sont soumis à une analyse LC-MS/MS à l’aide de l’acquisition dépendante des données (DDA). Sur les instruments Orbitrap, une méthode DDA peut être spécifiée dans l’éditeur de méthode du logiciel de spectrométrie de masse. Les réglages du spectromètre de masse utilisés dans cette étude sont illustrés à la figure 3A. Les paramètres de chromatographie liquide peuvent également être spécifiés dans l’éditeur de méthode. Pour cette étude, un gradient linéaire de 90 minutes avec une phase organique croissante (acétonitrile) a été utilisé (figure 3B). Après une acquisition réussie, le courant ionique total (TIC) doit contenir un signal intense pendant la partie à gradient linéaire de la méthode (Figure 3C). Ce protocole décrit un exemple de protocole sur un instrument Orbitrap, mais le calcul des demi-vies des protéines peut être effectué sur des données obtenues à partir de n’importe quel spectromètre de masse collecté en mode DDA, qui est disponible sur plusieurs types d’instruments (par exemple, Orbitraps et instruments à temps de vol) et fournisseurs. Les paramètres d’acquisition seront propres au type et à la configuration de l’instrument utilisé, et il est recommandé d’utiliser les paramètres suggérés par l’installation de spectrométrie de masse. Cette méthode est également compatible avec les méthodes non-DDA (SRM, PRM, DIA), à condition que les zones de pic chromatographique quantitative pour les pics lourds et légers puissent être extraites des fichiers de données brutes et saisies dans les formules de tableur.
Les fichiers bruts de spectrométrie de masse sont recherchés avec l’un des nombreux outils de recherche de base de données protéomiques disponibles pour identifier les peptides et les protéines. Par exemple, cette étude a utilisé le moteur de recherche Mascot43. Pour obtenir des zones de pic chromatographique pour la quantification de peptides lourds et légers, les résultats de recherche de la base de données sont importés dans un logiciel protéomique capable de zones de pic chromatographique telles que Skyline39,40. L’examen des chromatogrammes ioniques extraits des peptides (Figure 4) révélera la proportion relative de signaux peptidiques lourds et légers. Une proportion plus faible de signal peptidique lourd par rapport au signal peptidique léger dans les cellules sénescentes indique un taux de renouvellement des protéines plus lent (Figure 4A), et un signal peptidique lourd plus élevé par rapport à la lumière indique un taux de renouvellement protéique plus rapide (Figure 4B). Les échantillons non marqués doivent montrer peu ou pas de signal peptidique lourd. Tout signal peptidique lourd apparent dans les échantillons non marqués est considéré comme un bruit de fond et sera soustrait lors des calculs finaux. La quantification des zones de pic chromatographique pour les peptides légers et lourds pour toutes les conditions de traitement et d’étiquetage doit être exportée pour le calcul ultérieur des taux de renouvellement des protéines et l’analyse statistique.
En utilisant l’analyse ponctuelle unique, la quantification des demi-vies des protéines est simple à effectuer et peut être effectuée facilement dans des feuilles de calcul. Dans le tableau 3, les demi-vies de 695 protéines identifiées à partir de l’analyse par spectrométrie de masse ont été calculées. À partir des abondances d’isotopes lourds et légers au niveau des protéines pour chaque protéine dans les échantillons (entrée pour la fiche technique brute 1 ), un pourcentage d’isotope lourd (appelé ratio, R) est ensuite automatiquement calculé sur la feuille intitulée 2) Rapport H | H + L. À cette étape, le R des échantillons lourds marqués est normalisé en soustrayant le R des échantillons non marqués pour produire un R final pour les triplicates quiescents et sénescents. Étant donné que les échantillons non marqués ne doivent pas contenir d’isotope lourd ajouté de manière exogène, ils sont utilisés pour éliminer le signal de fond. À partir de R, le kdeg (taux de rotation) est calculé à l’aide de la formule suivante:
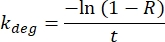
La demi-vie (H, en jours) est déterminée pour chaque protéine dans le contrôle au repos et les triplicates sénescents (feuille intitulée 3) Demi-vie (jours)) en utilisant la formule suivante:

Ces demi-vies sont ensuite moyennées parmi les triplicates quiescents et sénescents pour générer une demi-vie moyenne quiescente et sénescente pour chaque protéine ainsi qu’une valeur p. Les demi-vies calculées sont ensuite filtrées pour les valeurs négatives, ce qui se produit lorsque le signal lourd des cellules marquées par la lumière (l’arrière-plan) est supérieur au signal lourd des cellules marquées lourdement. Ce filtrage a permis d’identifier 707 protéines de 841 avec des demi-vies valides pour les résultats présentés ici.
La demi-vie est ensuite rapportée comme un rapport log2 de cellules de contrôle sénescentes sur les cellules témoins au repos (log2FC) et tracée dans une placette de volcan (Figure 5). Par exemple, en regardant la feuille d’analyse 5), on peut voir que la protéine du récepteur de la thrombine II (F2R) de la coagulation a une demi-vie dans les cellules quiescentes de 0,51 jour (colonne B) et une demi-vie dans les cellules sénescentes de 1,07 jour (colonne C) qui a donné un log2FC d’environ 1,06 (colonne D) avec une valeur de p de 0,001.
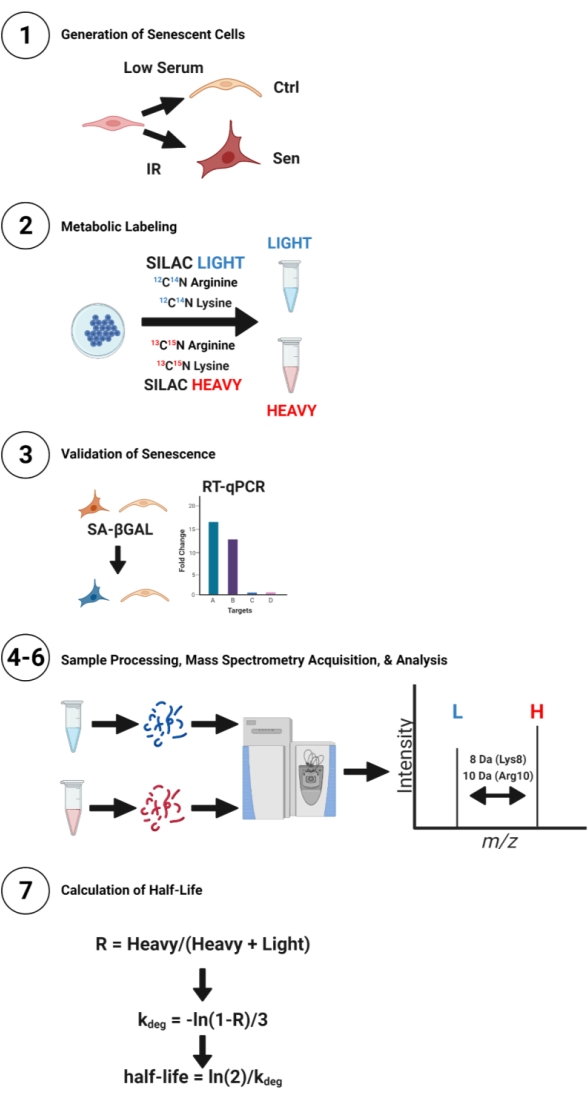
Figure 1 : Diagramme du flux de travail pSILAC pour les cellules de contrôle sénescentes et au repos. Les fibroblastes IMR-90 humains ont été utilisés pour préparer des cultures cellulaires quiescentes (à faible teneur en sérum) ou sénescentes (IR) pour comparer les demi-vies des protéines. Les cellules ont ensuite été marquées avec des milieux SILAC Light ou SILAC Heavy avec de l’arginine isotopique et de la lysine pendant 3 jours. Les lysats ont été extraits des cellules, digérés, dessalés et analysés à l’aide de la spectrométrie de masse. Les pics isotopiques peptidiques lourds et légers correspondent respectivement aux peptides nouvellement synthétisés et préexistants. Les demi-vies ont été calculées à l’aide d’une équation de désintégration exponentielle. Veuillez cliquer ici pour voir une version agrandie de cette figure.
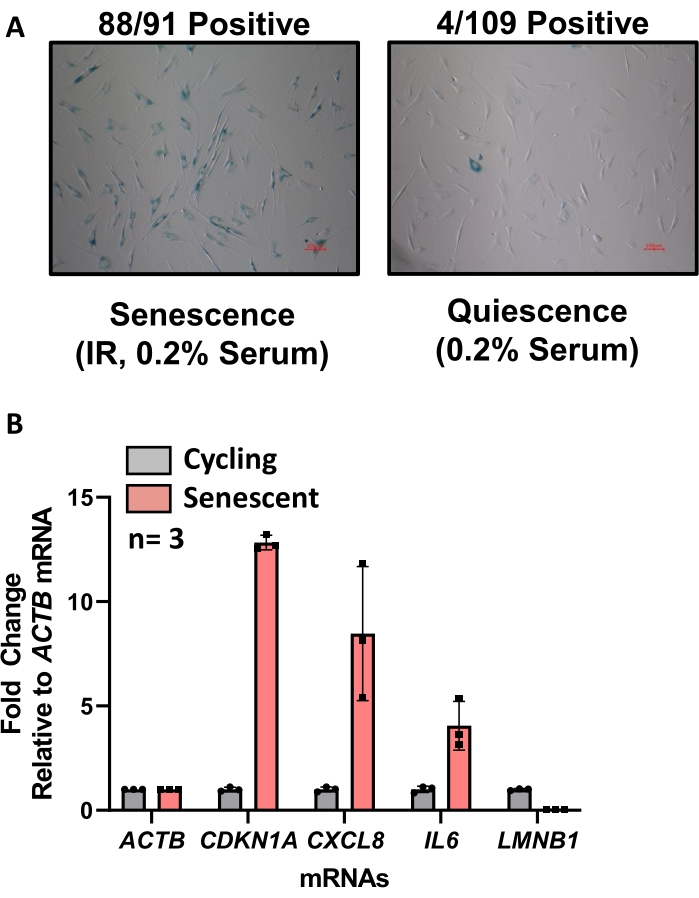
Figure 2 : Validation des phénotypes sénescents à l’aide d’analyses SA-βGal et RT-qPCR. (A) Les cellules sénescentes et quiescentes sont replaquées au moment de la récolte dans une plaque à 6 puits et colorées pour SA-βGal à l’aide du kit de coloration SA-βGal. La couleur bleue dans le corps cellulaire est positive pour la sénescence. Les images sont prises en fond clair avec une couleur à un grossissement de 10x, un marqueur de taille en rouge. (B) Analyse RT-qPCR comparant des cellules sénescentes (rouges) et des cellules cycliques (grises) d’une expérience sans rapport. L’augmentation des niveaux d’ARNm CDKN1A/p21, CXCL8 et IL6 est révélatrice de la sénescence, tout comme la diminution des niveaux d’ARNm LMNB1. Veuillez cliquer ici pour voir une version agrandie de cette figure.
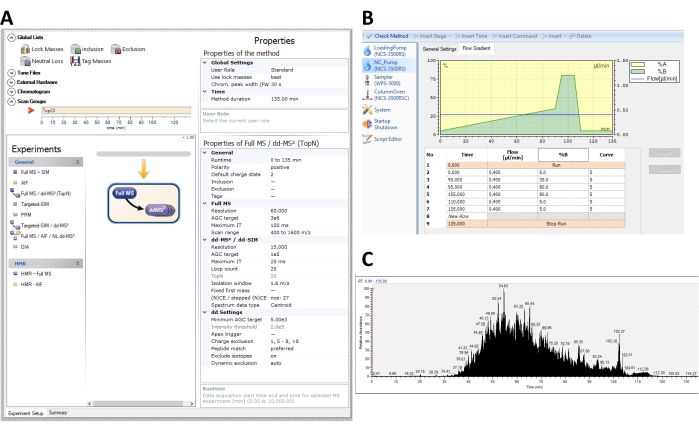
Figure 3 : Méthodes représentatives pour les balayages d’acquisition dépendante des données (DDA) et le gradient de chromatographie liquide des cultures pSILAC sur le spectromètre de masse Q-Exactive HF orbitrap. (A) Paramètres d’instrument recommandés dans le logiciel de l’instrument pour l’analyse dépendante des données des lysats de cellules entières d’une expérience pSILAC. (B) Exemples de paramètres de la méthode du gradient d’écoulement par chromatographie liquide. Les peptides sont élués sur un gradient linéaire de 90 min allant de 5 % à 35 % de tampon B (0,2 % d’acide formique et 99,8 % d’acétonitrile), suivi d’un lavage de 10 min avec 80 % de tampon B, et de 25 min d’équilibrage avec 5 % de tampon B. (C) Un chromatogramme d’ions total représentatif (TIC) d’une acquisition par spectrométrie de masse de peptides de fibroblastes IMR-90 acquis avec les réglages spécifiés. Veuillez cliquer ici pour voir une version agrandie de cette figure.
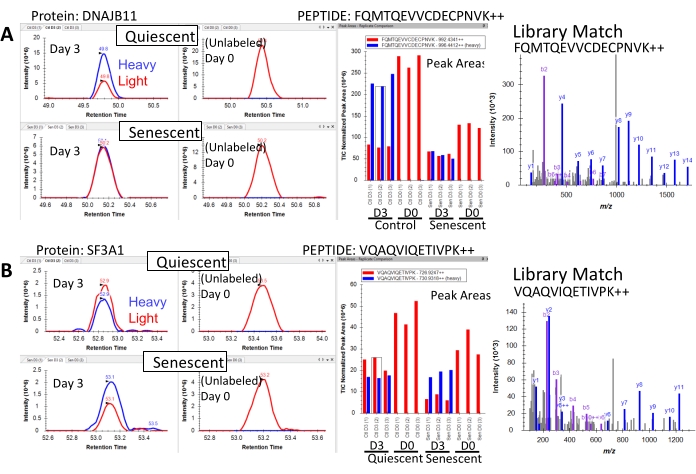
Figure 4 : Chromatogrammes ioniques extraits représentatifs de peptides dont le renouvellement a été modifié pendant la sénescence. (A) Zones de pic chromatographique du peptide FQMTQEVVCDECPNVK++ de la protéine DnaJ homologue de la sous-famille B membre 11 (DNAJB11) dans les cellules sénescentes et non sénescentes. Après 3 jours de SILAC, les cellules sénescentes incorporent moins d’isotopes lourds dans ce peptide par rapport aux cellules quiescentes (non sénescentes), comme indiqué par une réduction de la zone de pointe du peptide contenant des isotopes lourds (bleu) par rapport au peptide léger (rouge), indiquant que ce peptide a réduit le renouvellement dans les cellules sénescentes. (B) Zones de pic chromatographique du peptide VQAQVIQETIVPK++ de la sous-unité 1 du facteur d’épissage 3a de la protéine dans les cellules sénescentes et non sénescentes. Après 3 jours de SILAC, les cellules sénescentes incorporent une proportion plus élevée d’isotopes lourds dans ce peptide par rapport aux cellules quiescentes (non sénescentes), comme indiqué par une réduction de la zone de pointe du peptide contenant des isotopes lourds (bleu) par rapport au peptide léger (rouge), indiquant que ce peptide a augmenté le renouvellement dans les cellules sénescentes. Les conditions non marquées (jour 0) ne montrent aucune incorporation d’isotope lourd pour les deux peptides, comme prévu. Veuillez cliquer ici pour voir une version agrandie de cette figure.
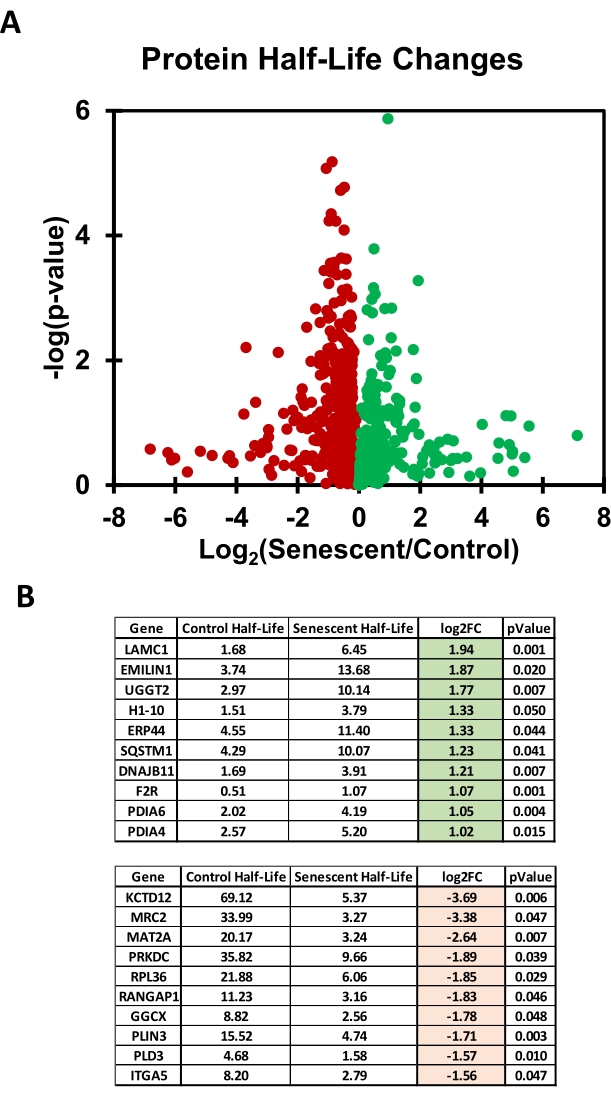
Figure 5 : Comparaison des demi-vies protéiques dans les cellules sénescentes et quiescentes déterminées à partir du marquage pSILAC. (A) Diagramme volcano affichant le rapport log2 de sénescente / témoin (quiescent) pour chacune des 695 protéines identifiées; dans cette expérience, les milieux de marquage légers et lourds ne contenaient ni glucose ni rouge phénol. (B) Tableaux montrant les 10 principales protéines ayant le plus de demi-vies augmentées ou diminuées dans les cellules quiescentes par rapport aux cellules sénescentes (gauche et droite, respectivement). Veuillez cliquer ici pour voir une version agrandie de cette figure.
Tableau 1 : Supports et tampons utilisés dans ce protocole. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 2 : Amorces RT-qPCR utilisées dans ce protocole. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 3 : Cahier d’analyse SILAC pour le calcul des demi-vies des protéines, des changements de plis et des tests t. Veuillez cliquer ici pour télécharger ce tableau.
Discussion
pSILAC est une technique puissante qui permet la quantification globale des taux de renouvellement des protéines dans de multiples conditions cellulaires. Cet article détaille l’utilisation de pSILAC pour comparer les demi-vies protéiques globales entre les cellules sénescentes et quiescentes, y compris les instructions pour la préparation des cellules sénescentes et quiescentes, le marquage et la récolte SILAC et, finalement, l’analyse à l’aide de la spectrométrie de masse DDA. De plus, un test en deux étapes est décrit pour la validation du phénotype de sénescence à l’aide de l’analyse SA-βGal et RT-qPCR d’un panel d’ARNm codant pour des protéines associées à la sénescence. En plus de la validation de la sénescence avec les deux approches décrites, une troisième validation de la sénescence peut être effectuée après une analyse par spectrométrie de masse en recherchant des changements dans les marqueurs de sénescence connus entre les cellules sénescentes et quiescentes au niveau protéomique. Les protéines associées à la sénescence qui devraient être élevées comprennent p16, p21 et BCL2, entre autres, décrites ailleurs44,45. Dans le protocole décrit ci-dessus, les rayonnements ionisants ont été utilisés pour l’induction de la sénescence et de la famine sérique pour les cellules quiescentes. Pour l’induction de la sénescence, il existe de multiples options disponibles et il existe une hétérogénéité substantielle parmi elles 41,42,46. Actuellement, il n’existe aucune méthode sénescente considérée comme la « plus physiologique », de sorte que le choix de l’inducteur sénescent est largement basé sur le contexte de l’expérience. Cependant, les expériences dans le but d’énoncer un phénomène général sur la sénescence sont recommandées pour utiliser au moins deux inducteurs sénescents différents. Discuter de la gamme des paradigmes de sénescence dépasse le cadre de cet article, mais certaines méthodes courantes pour induire la sénescence comprennent le déclenchement de dommages à l’ADN (IR, doxorubicine, épuisement réplicatif), l’expression de protéines oncogènes (HRAS, BRAF) et la perturbation de la fonction mitochondriale2.
En plus du choix de l’inducteur sénescent, le choix des cellules témoins est une considération tout aussi importante. Les cellules sénescentes sont, par définition, en arrêt de croissance indéfini, de sorte qu’une comparaison avec d’autres cellules arrêtées par croissance est souvent choisie. Pour pSILAC, les cellules arrêtées par cycle cellulaire sont généralement préférables car elles ne se répliquent pas et sont donc plus faciles à utiliser pour les calculs de demi-vie des protéines47. Cependant, étant donné que les cellules cultivées conservent souvent certaines cellules en division, il est important que les méthodes utilisées pour induire l’arrêt du cycle cellulaire produisent une réponse aussi homogène que possible afin de minimiser les erreurs des cellules qui prolifèrent encore. Pour calculer les taux de dégradation des protéines pour les cellules cycliques à l’aide de pSILAC, il faut des calculs supplémentaires pour compenser la vitesse à laquelle les protéines sont diluées dans les cellules filles27. Cependant, l’arrêt de la croissance au repos lui-même n’est pas sans complications. Il existe deux méthodes générales pour arrêter le cycle cellulaire : la privation sérique et l’inhibition du contact48. Toutes les cellules ne peuvent pas être rendues au repos par inhibition de contact, bien qu’il ait été démontré que certains fibroblastes démontrent une quiescence après plusieurs jours de culture49. Cette méthode utilisait la privation de sérum parce qu’elle est plus couramment utilisée pour les comparaisons de cellules sénescentes, bien qu’elle nécessite que la cellule sénescente soit également privée de sérum pour des comparaisons précises. Le sérum active le complexe mTOR, et donc la privation de sérum a plusieurs effets en aval sur la cellule en plus de l’arrêt du cycle cellulaire50. Notamment, il a été démontré que les cellules sénescentes présentent un SASP réduit lors de la privation sérique ou de l’inhibition de mTOR51,52.
Un autre point important à considérer dans pSILAC est le nombre de points de temps à tester. Ce protocole a collecté des cellules à un seul point temporel (3 jours d’étiquetage léger ou lourd), ce qui simplifie considérablement l’analyse résultante. Le choix du point temporel doit être basé sur l’objectif de l’expérience. Pour l’analyse globale, 3 jours devraient capturer une majorité de protéines, bien que les demi-vies des protéines à courte durée de vie qui se renouvellent complètement dans les 3 jours (tout le signal lumineux est perdu) ne puissent pas être mesurées à ce stade. Inversement, les protéines à longue durée de vie avec très peu de renouvellement en 3 jours sont également difficiles à quantifier et apparaissent souvent comme ayant des demi-vies extrêmement importantes (de l’ordre de quelques semaines) qui ne sont généralement qu’une conséquence de très peu d’accumulation de signaux lourds. En raison de la relation non linéaire entre le rapport entre les signaux peptidiques lourds et légers et le pourcentage de protéines nouvellement synthétisées à des points temporels plus courts et plus longs, la quantification des demi-vies pourrait être améliorée en ajoutant des points de temps d’étiquetage supplémentaires. Pour les comparaisons relatives entre deux états cellulaires, comme dans ce protocole, une demi-vie approximative peut être suffisante, mais des points temporels supplémentaires peuvent être utilisés pour améliorer la précision quantitative.
Ce protocole décrit comment effectuer une analyse non ciblée du renouvellement des protéines basée sur le DDA. Cependant, les calculs du renouvellement des protéines peuvent être appliqués de manière générale à tout schéma d’acquisition capable de dériver l’abondance relative de paires de peptides lourds et légers. Par exemple, des méthodes basées sur MS2 telles que l’acquisition indépendante des données (DIA/SWATH) peuvent également être appliquées avec succès pour le calcul des taux de rotation53. En outre, des pipelines d’instrumentation et de logiciels autres que ceux décrits dans ce protocole peuvent être utilisés pour effectuer l’analyse DDA, l’identification des protéines et la quantification des protéines. Lorsque vous utilisez des plates-formes logicielles de quantification de protéines telles que Skyline pour extraire des zones de pic peptidique, il est conseillé d’inspecter manuellement les chromatogrammes ioniques extraits dans l’espace de travail du document, d’identifier les pics qui ont été intégrés par erreur et les pics non quantitatifs, et de conserver le document en conséquence. Une vaste collection de tutoriels est disponible en ligne pour Skyline (skyline.ms).
pSILAC représente l’une des méthodes les plus idéales pour la quantification globale des demi-vies protéiques dans les cellules cultivées en raison d’un multiplexage (couverture du protéome) et d’un débit supérieurs. Bien que pSILAC ne fournisse pas de taux directs de synthèse ou de dégradation, puisque le changement de signal léger et lourd est dû à une confluence de facteurs, pSILAC est très utile pour les comparaisons entre les conditions et les différents types de cellules. Les méthodes à faible débit se répartissent souvent en deux types: 1) traitement des cellules avec du cycloheximide pour bloquer la synthèse et la récolte des protéines à intervalles de temps après addition pour surveiller la désintégration, ou 2) traitement des cellules avec un inhibiteur de la désintégration des protéines et récolte à intervalles de temps après addition pour surveiller l’accumulation de protéines, déduisant ainsi les taux de désintégration des protéines. La limite des deux méthodes est que de tels traitements entraîneront inévitablement des changements substantiels dans la physiologie cellulaire. En revanche, pSILAC ne nécessite aucune intervention substantielle et n’a théoriquement aucun effet détectable sur la physiologie cellulaire puisque les acides aminés isotopiques ne diffèrent que d’un seul neutron de leurs homologues non isotopiques. Ainsi, la méthode décrite ici pour pSILAC représente un protocole simple pour la mesure globale des demi-vies protéiques les plus physiologiques dans les cellules non divisées.
Les altérations du renouvellement des protéines ont une relation étroite avec le vieillissement, les maladies liées à l’âge, la neurodégénérescence et la longévité54,55. Ce protocole décrit une méthode pour interroger ces relations en utilisant le marquage isotopique stable des acides aminés en culture cellulaire pour mesurer les taux de renouvellement des protéines dans les cellules de sénescence. Cependant, de nombreuses méthodes analogues existent pour effectuer des études dans le contexte du vieillissement et de la neurodégénérescence in vivo chez des organismes entiers tels que les souris. En effet, ces études ont souligné l’importance de mesurer les taux de renouvellement des protéines dans le contexte des maladies liées à l’âge 56,57,58,59.
Dans cette étude, les protéines ribosomiques et les protéines résidant dans le réticulum endoplasmique se sont distinguées comme deux catégories de protéines avec des demi-vies diminuées et augmentées dans les cellules sénescentes, respectivement. Bien qu’une analyse plus approfondie des niveaux d’état d’équilibre soit nécessaire pour tirer des conclusions définitives, ces résultats suggèrent en outre que les cellules sénescentes peuvent réguler de manière unique la traduction par une diminution des demi-vies des protéines ribosomiques. À l’avenir, l’application d’approches de marquage des isotopes stables pour étudier la relation entre la sénescence cellulaire et la neurodégénérescence in vivo dans des modèles murins constituera une extension prometteuse de l’approche de marquage isotopique décrite par ce protocole.
Déclarations de divulgation
Les auteurs n’ont aucune divulgation.
Remerciements
Ce travail a été soutenu par les National Institutes of Health (NIH) et le Intramural Research Program (IRP), National Institute on Aging (NIA). N.B. a été soutenu par Longevity Impetus Grants et le programme de bourses de l’Office of Dietary Supplements (ODS). La figure 1 a été créée avec BioRender.com.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Acétonitrile (grade LC-MS) | Grainger | AH015 | |
| Bicarbonate d’ammonium | Millipore-Sigma | 9830 | |
| Antibiotique-Antimycotique (100x) | ThermoFisher | 15240062 | |
| BCA Assay Kit | ThermoFisher | 23227 | |
| Dithiothreotol (DTT) | Sigma | D9779 | |
| DMEM, haute glucose, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| Sérum de veau fœtal, certifié, inactivé par la chaleur | ThermoFisher | 10082147 | |
| Acide formique | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | césium pour cellules | |
| GlycoBlue | ThermoFisher | AM2238 | |
| Iodoacétamide (IAA) | Sigma | I1149 | |
| Fibroblastes pulmonaires primaires IMR-90 sensibles à | ATCC | CCL-186 | |
| iRT Kit (temps de rétention indexé) | Biognosys | Ki-3002-2 | Temps de rétention indexé Étalons peptidiques |
| Isopropanol | ThermoFisher | 423835000 | |
| Mascot | Matrix Science | Mascot Daemon 2.8 | Logiciel de recherche dans la base de données protéomique |
| Maxima Reverse Transcritase (200 U/µ ; L) | ThermoFisher | EP0742 | |
| MEM Solution d’acides aminés non essentiels (100x) | ThermoFisher | 11140050 | |
| Nano LC System | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB Solid Phase Extraction Cartirdges | Waters | 186000383 | |
| Orbitrap Spectromètre | de masse ThermoFisher | Q Exactive HF Orbitrap | |
| Phénol/Chloroforme/Alcool isoamylique (25:24:1), 100 mM EDTA, pH 8,0 | ThermoFisher | 327110025 | |
| Phosphate Buffered Saline (PBS) | ThermoFisher | 10010023 | |
| Pierce SILAC Protein Quantitation Kit (Trypsine) -DMEM | ThermoFisher | A33972 | |
| QuantStudio 6 Système de PCR en temps réel | ThermoFisher | ||
| Random Hexamer Primer | ThermoFisher | SO142 | |
| Sénescence &beta ;-Galactosidase Kit de coloration | cellulaire Signalisation cellulaire | 9860 | |
| Skyline | Université de Washington | Skyline-Daily v21.2.1.424 | Logiciel de protéomique qantitatif gratuit et open source. Disponible sur www.skyline.ms |
| Bain-marie Sonicateur | Branson | CPX-952-516R | |
| TRIzol Reacid | ThermoFisher | 15596018 | Désigné comme phénol dans le texte ; dangereux |
| TRYPle Express | ThermoFisher | 12605010 | |
| Trypsine (grade séquençant) | Promega | V5113 | |
| TURBO Dnase (2U/ uL) | ThermoFisher | AM2238 | |
| Urée | ThermoFisher | 29700 | |
| Eau (grade LC-MS) | Grainger | AH365 |
Références
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
Réimpressions et autorisations
