La naissance prématurée (accouchement < 37 semaines) est un problème de santé mondial urgent, avec des options de prévention et de traitement sous-optimales. Nous présentons un modèle murin d’accouchement prématuré induit par une infection bactérienne vaginale ascendante et décrivons comment analyser la morbidité et la mortalité néonatales qui en résultent.
Article de méthode
Modélisation de l’infection vaginale ascendante, de l’accouchement prématuré et de la morbidité néonatale chez la souris
Dans cet article
Résumé
Résumé
Les naissances prématurées continuent d’être l’une des principales causes de mortalité et de morbidité néonatales dans le monde, les traitements préventifs étant limités. Il y a un besoin impératif de
Des modèles animaux pertinents et reproductibles pour la traduction d’interventions innovantes
pour devenir une réalité. Il existe différents modèles murins de naissance prématurée. Cependant, ils ne récapitulent pas les morbidités néonatales humaines, y compris les changements neuropathologiques et les
lésions pulmonaires, qui sont des séquelles caractéristiques d’une infection ascendante et d’un accouchement prématuré. Nous avons caractérisé un modèle qui, à notre connaissance, est le seul qui imite le scénario humain où ces morbidités néonatales sont présentes suite à l’induction d’un accouchement prématuré par une bactérie vivante qui remonte du vagin. Cet article démontre l’administration intravaginale d’une souche bioluminescente d’Escherichia coli et détaille l’évaluation des résultats neuropathologiques et des lésions pulmonaires à l’aide de techniques d’immunohistochimie et d’histologie.
Introduction
La prématurité (TBP ; accouchement < 37 semaines) est le principal facteur de mortalité néonatale dans le monde 1,2. Représentant 11 % de toutes les naissances, il s’agit d’un problème de santé mondial majeur avec une étiologie complexe qui est mal comprise, ce qui rend difficile la prédiction et la prévention 3,4,5. Les survivants néonatals de la TBP peuvent présenter des résultats neurodéveloppementaux défavorables, notamment une paralysie cérébrale, des troubles respiratoires, tels que la dysplasie bronchopulmonaire (DBP), et des troubles gastro-intestinaux tels que l’entérocolite nécrosante (ECN)6,7,8. Par conséquent, il est urgent de disposer de modèles animaux cliniquement pertinents et reproductibles pour aborder les voies biologiques contribuant à la PTB et développer des interventions innovantes.
Il existe un certain nombre de mécanismes possibles sous-jacents à la TBP spontanée, tels que la sénescence déciduale, une rupture de la tolérance mère-fœtale, le stress, une courte longueur cervicale ou des lésions cervicales9. Cependant, au moins 40 % des PTB spontanés seraient associés à une infection microbienne10,11. Les microbes remontant du canal vaginal à travers le col de l’utérus jusqu’à l’utérus sont supposés et largement acceptés comme une voie d’infection courante en raison de la corrélation entre les microbes isolés du liquide amniotique et ceux résidant dans le microbiote vaginal 12,13,14. Les micro-organismes souvent associés à l’accouchement prématuré comprennent des espèces de Mycoplasma, d’Ureaplasma, de Fusobacterium et de Streptococcus, et la plupart des cas sont polymicrobiens15,16.
Les souris sont souvent utilisées pour modéliser la PTB, l’approche la plus courante étant l’administration de la toxine bactérienne lipopolysaccharide (LPS), qui peut être administrée par des voies intra-utérines, intrapéritonéales ou intra-amniotiques pour induire les niveaux d’inflammation nécessaires pour initier la parturition17. Cependant, le LPS ne modélise pas l’infection microbienne vivante et, surtout, les résultats néonatals ne peuvent pas être mesurés dans ces modèles, car le LPS induit la mort fœtale18. Au cours des dernières années, des modèles animaux d’infection bactérienne vaginale ascendante ont été mis au point, mais il a été difficile de récapituler à la fois l’accouchement prématuré et les résultats néonatals associés19,20,21,22,23,24.
Notre groupe a établi un nouveau modèle d’infection bactérienne vaginale ascendante, d’accouchement prématuré et de morbidité néonatale qui récapitule la physiopathologie de la PTB25 humaine. Ici, nous montrons comment évaluer la neuropathologie néonatale et les lésions pulmonaires chez les petits exposés à une infection vaginale ascendante maternelle par une souche pathogène d’Escherichia coli (E. coli) qui a été liée à la méningite néonatale humaine. Ce modèle offre une occasion unique d’explorer la physiopathologie de l’infection ascendante, ainsi que de fournir les moyens d’évaluer l’efficacité des interventions de travail prématuré dans l’amélioration des résultats néonatals.
Protocole
Les procédures ont été menées en vertu d’une licence du ministère de l’Intérieur du Royaume-Uni (PAD4E6357) conformément à la loi sur les procédures scientifiques animales (1986) et aux directives ARRIVE. La température (19-23 °C), l’humidité (~55 %) et les cycles lumière/obscurité de 12 h ont été étroitement contrôlés. Des souris femelles vierges C57BL/6 Tyrc-2J (âgées de 6 à 12 semaines) ont été accouplées pendant la nuit pendant 16 à 18 heures. La preuve de la présence du bouchon copulateur a été attribuée au jour embryonnaire (E) 0,5.
E. coli pathogène O18 :K1 (A192PP)26, une souche de A192 transmise par le rat (DSM. N° 10719)27, a été modifié pour contenir l’opéron lux (luxCDABE), provenant du symbiote nématode Photorhabdus Luminescens ATCC29999 (souche Hb), et comprenant une cassette de résistance à la kanamycine (Km2)28. Cette souche est classée dans le groupe de danger 2 par le Comité consultatif du gouvernement britannique sur les agents pathogènes dangereux (ACDP). Portez un équipement de protection individuelle (EPI) approprié et suivez les directives locales lors de la manipulation et de l’élimination d’agents biologiques.
1. Modèle murin d’infection bactérienne vaginale ascendante
- Préparation des cultures d’E. coli
- Préparez le bouillon Luria-Bertani (LB) en dissolvant la poudre dans de l’eau distillée (dH2O) pour obtenir une solution à 20 % et en autoclave. Une fois que le LB a refroidi à température ambiante, ajoutez 50 μg/mL de kanamycine. Conserver à 4 °C jusqu’à 1 semaine.
- Préparez une solution de gel pluronique F127 à 20 % en dissolvant le solide dans une solution saline stérile tamponnée au phosphate (PBS). Vortex pour mélanger et agiter à 4 °C pendant la nuit.
- Ajouter 10 ml de bouillon LB traité aux antibiotiques dans un contenant universel stérile de 30 ml. Retirer un stock de glycérol congelé d’E. coli du stockage à -80 °C. À l’aide d’une pointe de pipette stérile, grattez le stock de glycérol congelé d’E. coli pour enrober légèrement l’extrémité de l’embout et éjectez l’embout directement dans le bouillon LB. Fixez le récipient universel avec du parafilm, étiquetez-le comme présentant un risque biologique et placez-le dans un agitateur orbital pendant la nuit (200 tr/min) à 37 °C.
- Le lendemain matin, diluez la culture bactérienne à l’échelle 1:100 (0,1 mL de culture + 9,9 mL de bouillon LB frais) et retournez-la dans l’agitateur orbital pendant 1,5 à 3 h (200 tr/min à 37 °C), en vérifiant régulièrement la croissance de la culture en mesurant l’absorbance à 600 nm. Pipeter 100 μL de la culture en double dans une plaque transparente à fond plat de 96 puits. Mesurez l’absorbance sur un spectrophotomètre avec la correction de longueur de trajet activée. Un OD600 compris entre 0,5 et 0,7 signifie la phase médio-logarithmique de croissance.
- Lorsque la DO600 0,5-0,7 est atteinte (~108-9 unités formant colonies [UFC]), retirer 100 μL de la culture bactérienne et diluer dans 900 μL de PBS stérile. Centrifugez à 14 000 × g pendant 1 min pour laver la pastille bactérienne et retirer le bouillon LB. Retirer le surnageant, remettre en suspension la pastille bactérienne dans du PBS stérile et diluer 1:10 000 dans du PBS stérile (à 102-3 UFC).
- Désinfectez tous les embouts et contenants exposés à des bactéries avant de les éliminer.
- Anesthésie
- Sur E16.5, anesthésier des souris enceintes par inhalation d’isoflurane (5 % pour l’induction, 1,5 % pour le maintien en oxygène). Transférez le flux d’anesthésie puis l’animal vers le cône nasal, en plaçant la femelle en position couchée. Confirmer l’anesthésie par l’absence de réflexe de pincement des orteils et maintenir l’isoflurane au pourcentage minimum requis pour l’intervention.
ATTENTION : L’isoflurane est un irritant pour les yeux et la peau et toxique pour le système nerveux central. Portez un EPI approprié. Utilisez toujours un système de nettoyage. - Administrer 20 μL d’E. coli en phase médio-logarithmique (1 × 10,2-3 UFC en suspension dans du PBS stérile) ou du PBS stérile (témoin du véhicule) dans le vagin à l’aide d’une pointe de pipette stérile de 200 μL (figure 1). À l’aide d’une pointe de pipette fraîche et stérile de 200 μL, administrez 20 μL de gel Pluronic F127 à 20 % dans le vagin pour éviter les fuites bactériennes. À l’aide de gaze stérile, tamponnez de la poudre de quinine sur l’introït pour dissuader les souris de nettoyer la suspension bactérienne. Notez la date et l’heure du traitement.
REMARQUE : Les UFC utilisées étaient basées sur des expériences de titrage pour obtenir le phénotype souhaité (naissance prématurée avec des petits vivants). L’UFC peut être déterminée en effectuant des dilutions en série et un placage sur des plaques de gélose LB29. - Mettre les animaux en cage individuellement dans des cages ventilées individuellement (VCI) et leur permettre de se remettre de l’anesthésie avant de retourner dans la salle d’attente ; Indiquez clairement que la cage présente un risque biologique. Surveillez les animaux jusqu’à ce que leur comportement normal ait repris.
REMARQUE : Cette procédure ne devrait pas prendre plus de 5 minutes et les animaux devraient récupérer rapidement (dans les 2 à 5 minutes).
- Sur E16.5, anesthésier des souris enceintes par inhalation d’isoflurane (5 % pour l’induction, 1,5 % pour le maintien en oxygène). Transférez le flux d’anesthésie puis l’animal vers le cône nasal, en plaçant la femelle en position couchée. Confirmer l’anesthésie par l’absence de réflexe de pincement des orteils et maintenir l’isoflurane au pourcentage minimum requis pour l’intervention.
- Mesure des résultats gestationnels
- Installez la vidéosurveillance en fixant une caméra à l’extérieur de chaque cage pour surveiller les souris à la recherche de signes de parturition et d’accouchement. Consigner le temps écoulé jusqu’à l’accouchement en tant que nombre d’heures entre le moment de l’administration intravaginale d’E. coli ou de PBS (étape 1.2.2) et l’accouchement du premier petit.
- Notez le nombre de petits vivants ou morts au moment de la mise bas et calculez un pourcentage de survie par portée. Observez la mère et les petits tous les jours, en enregistrant la survie des petits jusqu’à 7 jours postnatals et en assurant la récupération des mères. Prenez d’autres mesures, telles que le poids et la longueur du chiot, pendant cette période.
REMARQUE : Les signaux de parturition comprennent un toilettage accru, des cercles et des étirements et des coups de pied dans les pattes arrière. Comme il s’agit d’une infection bactérienne vivante, les mères développeront des symptômes au fil du temps (généralement 24 heures après le traitement). La femelle devrait se remettre de l’infection, mais si elle présente toujours des symptômes d’infection après l’accouchement, n’a pas construit de nid ou n’a pas nourri ses petits au cours de la première journée, sacrifiez sans cruauté les animaux en utilisant les méthodes de l’annexe 1 (comme l’exposition au CO2 à une concentration croissante et la confirmation de la mort par luxation cervicale).
- Imagerie par bioluminescence
- Après l’inoculation bactérienne, imager les femelles à 24 h et 48 h pour suivre la propagation de l’infection, comme décrit ci-dessous. Imagez les petits le jour postnatal (P)0 jusqu’à P14 sans avoir besoin d’anesthésie.
- Après avoir ouvert le logiciel d’imagerie, cliquez sur Initialiser et attendez que l’appareil photo atteigne la température de fonctionnement (la barre de température deviendra verte et « verrouillera »). Cochez la case Imagerie luminescente et vérifiez que le filtre d’excitation est réglé sur Bloquer et que le filtre d’émission est réglé sur Ouvert.
- Anesthésier les femelles adultes par inhalation d’isoflurane (5 % pour l’induction, 1,5 % pour le maintien en oxygène). Placez les animaux en position couchée dans l’appareil d’imagerie par bioluminescence (avec une platine chauffée) tout en maintenant l’anesthésie aux souris. Sélectionnez Temps d’exposition automatique ou réglez manuellement le temps d’exposition (plage d’exposition : 1 min - 5 min). Après l’imagerie, retournez les animaux dans leurs cages pour qu’ils se remettent de l’anesthésie avant de les ramener dans la salle d’attente.
- Pour mesurer quantitativement la radiance des photons, sélectionnez les régions d’intérêt (ROI) sur les images de la souris et enregistrez les photons par seconde par centimètre carré par stéradian (photons∙(seconde-cm2)-1∙sr-1).
2. Analyses de tissus fœtaux et néonatals
- Prélèvement de tissus périnataux
- En E18.5, sacrifier la digue en l’exposant à une concentration croissante de CO2 et en confirmant la mort par luxation cervicale et effectuer une mini-laparotomie pour enlever l’utérus ; Ensuite, faites une incision dans l’utérus à l’aide de ciseaux.
- Si vous prélevez du liquide amniotique, faites une petite incision dans les membranes et recueillez le liquide à l’aide d’une pipette Pasteur ou d’une seringue sans aiguille.
- À l’aide d’une pince, tenez d’une main l’extérieur de l’utérus à l’endroit où le placenta est attaché et, avec des pinces incurvées de l’autre main, détachez doucement le placenta de la paroi interne de l’utérus en écartant les tissus, en guidant soigneusement le fœtus, avec les membranes et le placenta attachés, hors de l’utérus. Encore une fois, avec une pince dans chaque main, tenez doucement le placenta et saisissez et épilez les membranes à l’endroit où elles rencontrent le placenta (assurez-vous qu’elles se détachent proprement).
- Maintenant que les tissus sont séparés, prélevez les tissus gestationnels nécessaires (par exemple, l’utérus, le placenta, les membranes fœtales, le col de l’utérus et le vagin) et disséquez les tissus fœtaux (par exemple, le cerveau, les poumons et l’intestin).
- Congelez immédiatement les tissus sur de la glace sèche ou de l’azote liquide et/ou fixez les tissus dans du paraformaldéhyde (PFA ; 4 % dans du PBS).
- Conservez les mouchoirs congelés à -80 °C et fixez les mouchoirs pendant 24 à 48 h ; ensuite, conservez dans 30 % de saccharose à 4 °C.
ATTENTION : Le PFA est inflammable et peut provoquer une irritation des yeux, de la peau et des voies respiratoires. Préparez une solution à 4 % dans une enceinte de biosécurité et portez l’EPI approprié lors de la manipulation.
- Prélèvement de tissus postnatals
- Sur P7, anesthésier les petits à l’aide d’isoflurane (5 % pour l’induction, 1,5 % pour le maintien en oxygène).
- Effectuez une exsanguination et une perfusion tissulaire en incisant l’oreillette droite et injectez 10 ml de PBS dans le ventricule gauche. Décapitez la carcasse et retirez le cerveau et les poumons à l’aide de ciseaux et de pinces stériles. Traitez et stockez les tissus comme décrit ci-dessus.
REMARQUE : Les tissus congelés instantanés maternels et fœtaux peuvent être analysés pour détecter les facteurs inflammatoires et autres médiateurs par qPCR, ELISA et Western blot. Les protocoles de ces techniques sont facilement disponibles auprès des fabricants de réactifs ou dans d’autres publications 25,30,31.
- Cryosection des cerveaux fœtaux et néonatals
- À l’aide d’une lame, retirez le cervelet pour créer une surface plane et congelez le tissu sur de la glace sèche. Montez le tissu congelé sur le porte-échantillon à l’aide d’un composé à température de coupe optimale (OCT) et recouvrez le tissu d’une fine couche d’OCT. Laisser congeler (1 à 2 min).
- À l’aide d’un cryostat réglé à -20 °C, assurez-vous que le levier est verrouillé et chargez le porte-échantillon. Ajustez finement la position du tissu et verrouillez-le en place. Coupez le tissu et commencez à prélever des sections de tissu sur des microlames à partir de la fusion du corps calleux, en congelant immédiatement les sections sur de la glace sèche. Coupez 50 sections en série de 40 μm de chaque tissu.
ATTENTION : Soyez prudent avec la lame tranchante. - Stockez les sections congelées sur des microlames à -80 °C.
- Immunohistochimie
REMARQUE : Le protocole ci-dessous peut être utilisé pour identifier les astrocytes (protéine acide fibrillaire gliale ; GFAP), la microglie (allogreffe facteur inflammatoire 1 ; IBA-1) et les neutrophiles (membre G de la famille de l’antigène 6 des lymphocytes ; Ly6G). Vous trouverez des informations sur les anticorps dans Tableau 1.- Sélectionnez cinq sections par cerveau, espacées de 400 μm, qui permettront d’évaluer différentes régions du cerveau à des profondeurs variables du cerveau. Réhydratez les sections congelées avec une goutte de dH2O et étalez et dépliez le tissu à l’aide de deux pinceaux fins. Sécher le mouchoir sous un ventilateur pendant 20-30 min. À l’aide d’un stylo hydrophobe (PAP), dessinez soigneusement autour du tissu sans le toucher.
- Le jour 1, préparer du formaldéhyde (FA) à 4 % en ajoutant 5,4 mL de formaldéhyde dans 50 mL de tampon phosphate (PB) à 0,1 M pour une cuvette de 50 mL (capacité de 15 lames). Immerger les lames dans l’AF pendant 5 min pour fixer les cryosections, permettre l’adhérence aux lames, et immobiliser les antigènes.
ATTENTION : L’AF est inflammable et peut provoquer une irritation des yeux, de la peau et des voies respiratoires. Préparez une solution à 4 % dans une enceinte de biosécurité et portez un EPI approprié lors de la manipulation. - Préparez du sérum d’albumine bovine à 0,1 % en ajoutant 0,4 g de BSA à 400 ml de 0,1 M PB. Lavez les sections 2 fois en les immergeant dans 0,1 M PB, suivi d’un lavage dans BSA (~3 s par lavage). Stockez les diapositives dans
cuvettes contenant du BSA jusqu’à ce que nécessaire. - Préparez les chambres d’humidité en mouillant du papier de soie avec du dH2O et placez-les dans la chambre, en évacuant l’excès d’eau.
- Préparez du sérum de chèvre à 5 % (50 μL de sérum de chèvre dans 1 mL de 0,1 M PB). Séchez soigneusement la lame autour de la section du tissu avec du papier de soie, en vous assurant que le bord du stylo PAP est intact, puis appliquez 50 μL de la solution par section de tissu. Incuber dans la chambre d’humidité pendant 30 min.
- Retirez le sérum en tapotant la lame sur du papier de soie propre et ajoutez l’anticorps primaire dilué dans de la BSA (les anticorps et les dilutions sont présentés dans le tableau 1). Incuber toute la nuit à 4 oC.
- Le jour 2, incuber l’anticorps secondaire dans du sérum de souris (voir le tableau 1) pendant 30 minutes à 37 °C, puis l’ajouter à la BSA (dilution 1:100) (p. ex., 5 mL de BSA + 100 μL de sérum de souris + 50 μL d’anticorps secondaire).
- Lavez les lames 2x en les immergeant (~3 s) dans BSA puis une fois dans 0,1 M PB. Tenez les lames dans des cuvettes contenant du BSA et séchez la bordure autour de chaque section de tissu. Appliquer 50 μL de la solution d’anticorps secondaires par section de tissu et incuber pendant 1 h dans la chambre d’humidité.
- Préparez le complexe avidine-biotine (ABC) (dilution à 0,1 %) en ajoutant 10 μL de A et 10 μL de B dans 1 mL de 0,1 M de PB. Immergez (~3 s) les lames 2x dans BSA et une fois dans 0,1 M PB, puis placez les lames dans une cuvette contenant 0,1 M PB. Séchez les lames par tamponnage, appliquez 50 μL de solution ABC par lame et incubez pendant 1 h dans la chambre d’humidité.
- Préparez une solution de diaminobenzidine (DAB). Peser 25 mg de DAB par cuvette, dissoudre dans 50 mL de 10 mM de PB et filtrer avec du papier filtre n° 4.
ATTENTION : Le DAB est un danger pour la santé avec une mutagénicité et une cancérogénicité possibles des cellules germinales. Portez l’EPI approprié et jetez-le en toute sécurité. - Lavez les lames 3 x 3 s avec 10 mM PB et placez-les dans des cuvettes contenant 10 mM PB. Ajouter du peroxyde d’hydrogène (H2O2) à la solution DAB avant de verser immédiatement la solution dans des cuvettes fraîches (16,7 μL de H2O2 par cuvette). Déplacez les lames dans les cuvettes DAB et laissez agir ~3 min (maximum 5 min), tout en vérifiant constamment l’intensité de la coloration au microscope.
ATTENTION : H2O2 peut irriter les yeux, la peau et la gorge. Portez un EPI approprié. - Lavez les lames (3 s) une fois dans 10 mM PB et 2x dans dH2O et laissez sécher les lames. Immergez les lames sèches 3x dans du xylène. Appliquez une goutte de support de montage DPX sur une lamelle et placez-la sur la section du tissu, en prenant soin d’éviter les bulles d’air.
ATTENTION : Le xylène et le DPX sont inflammables et peuvent provoquer une irritation des yeux, de la peau et des voies respiratoires. Manipulez-le dans une enceinte de biosécurité et portez toujours des gants lors de la manipulation.
- Coloration Nissl
- Le jour 1, réhydrater et étaler le tissu en dH2O. Préparer 4 % d’AG en ajoutant 5,4 ml d’AF dans 50 ml de 0,1 M PB et utiliser immédiatement. Incuber les lames dans 4 % d’AF pendant la nuit.
- Le jour 2, déplacez les lames de 4 % de FA à 70 % d’éthanol (EtOH) et incubez pendant la nuit.
- Préparez la coloration Nissl en dissolvant 4 g de Cresyl Violet dans 40 mL de 100 % EtOH dans un tube conique fermé de 50 mL. Retourner pendant 15 min, ajouter la solution à 360 mL de dH2O chaud et mélanger sur une plaque agitatrice pendant 20 min. Filtrez la solution avant utilisation.
- Le jour 3, suivez la procédure de coloration décrite dans le tableau 2 et recouvrez les coupes de tissus avec du DPX.
- Marquage terminal de la désoxynucléotidyltransférase dUTP (TUNEL)
- Réhydrater et étaler le tissu en dH2O, puis incuber les lames à 4 % d’AF pendant 5 min. Déplacez les lames dans une solution de H2O2 et de méthanol (CH3OH) (1:10) et incubez pendant 15 min. Lavez les lames pendant 2 x 3 s dans 0,1 M PB et placez-les dans des cuvettes contenant 0,1 M PB.
- Préparez la solution de TUNEL sur de la glace selon les instructions du fabricant. Ajouter la solution aux lames (50 μL par section de tissu) et incuber dans une chambre d’humidité à 37 °C pendant 2 h.
- Après 1 h d’incubation, préparer la solution ABC comme décrit à l’étape 2.4.9 et incuber à température ambiante.
- Après 2 h, placez les lames dans la solution TUNEL STOP (300 mM de NaCl, 30 mM de citrate de sodium) pendant 10 min et plongez les lames à laver 3 x 3 s dans une solution de PBS de 10 mM. Incuber les lames dans la solution ABC pendant 1 h.
- Préparez du sulfate de cobalt (1,55 g de CoSO anhydre4 dans 100 mL de dH2O) et du chlorure de nickel hexahydraté (2,38 g de NiCl2·6H2O dans 100 mL de dH2O). Préparer une solution de DAB Co-Ni (10 mM PB + 25 mg DAB + 1 mL/100 mL de Co + 1 mL/100 mL de Ni). Filtrez la solution sous vide et conservez-la dans l’obscurité. Immédiatement avant de verser la solution DAB dans les cuvettes, ajoutez 16,7 μL de H2O2 par cuvette de 50 ml.
- Après 1 h, déplacez les lames dans les cuvettes DAB et incubez pendant ~3 min à température ambiante, en vérifiant constamment l’intensité de la coloration. Arrêtez la réaction en déplaçant les lames dans des cuvettes contenant 10 mM PB. Laver en immergeant 2 x 3 s dans dH2O et laisser sécher les sections de tissu avant de les recouvrir de DPX.
- Coloration à l’hématoxyline et à l’éosine (H&E)
- Réhydratez et étalez le tissu en dH2O et laissez les sections sécher à l’air.
- Immergez les lames dans de l’hématoxyline pendant 2 min.
ATTENTION : L’hématoxyline peut provoquer une irritation des yeux et de la peau. Portez un EPI approprié. - Rincez les lames à l’eau courante du robinet pendant 5 min, décolorez à l’alcool acide pendant 1 s et rincez à l’eau du robinet.
- Contre-coloration dans de l’éosine à 0,5 % (1,5 g dissous dans 300 mL d’EtOH à 95 %) pendant 30 s.
ATTENTION : L’éosine est inflammable et peut provoquer une irritation des yeux et de la peau. Préparez les solutions dans une enceinte de biosécurité et portez l’EPI approprié. - Déshydratez les sections de tissus dans un gradient d’EtOH : 50 %, 70 %, 95 % et enfin 100 % d’EtOH, chacun pendant 3 min. Déplacez les lames dans le xylène pendant 2 x 5 min. Lamelle avec DPX.
3. Évaluations histologiques et immunohistochimiques pour la neuropathologie et les lésions pulmonaires
REMARQUE : Les évaluations peuvent être effectuées sur les régions suivantes : cortex, cortex pyriforme, capsule externe, striatum, hippocampe et thalamus (figure 2). Pour les cerveaux E18.5, le corps calleux peut également être inclus car la différenciation des cellules n’est pas encore terminée et les cellules gliales n’ont pas migré vers toutes les régions du cerveau. L’évaluateur doit être insuté des groupes de traitement.
- Mort cellulaire TUNEL+
- À l’aide d’un microscope conventionnel, comptez les cellules positives pour la coloration TUNEL bilatéralement à un grossissement de 20x dans toutes les régions du cerveau (Figure 2).
- Évaluez trois champs optiques sélectionnés au hasard par région du cerveau et calculez le nombre moyen de cellules par région du cerveau.
- Évaluation morphologique de Nissl
- Capturez des images de tissus entiers à l’aide d’une caméra couleur à un grossissement de 1x et enregistrez-les sous forme de fichier TIFF ou dans tout autre format de votre choix. Importez les images dans ImageJ pour une analyse plus approfondie.
- Décrivez les régions cérébrales d’intérêt (p. ex., le cortex et l’hippocampe) et mesurez à l’aide de l’outil à main levée (figure 2).
- Pour obtenir la mesure tissulaire, appliquez la formule : (mm2 × 400 μm) = volume × 100 (révisé32).
- Indice de ramification microgliale
- À l’aide d’un microscope doté d’une grille carrée de 0,049 mm x 0,049 mm, à un grossissement de 40x, comptez le nombre de corps cellulaires IBA-1+ à l’intérieur de la grille (C) et le nombre moyen de branches traversant les lignes de la grille (B). Effectuez cette opération dans trois champs sélectionnés au hasard (voir la figure 3) pour chaque région du cerveau illustrée à la figure 2.
- Utilisez la formule (B2/ C) pour calculer l’indice de ramification microgliale.
- Luminosité optique pour l’intensité de coloration GFAP
- À l’aide du logiciel référencé (Table des matériaux) et d’une caméra couleur à un grossissement de 40x, capturez trois champs sélectionnés au hasard par région du cerveau (Figure 2). Appuyez sur Ctrl+H pour obtenir un histogramme affichant la moyenne et l’écart-type (ET). Notez les valeurs moyennes et SD dans une feuille de calcul. Capturez une image de contrôle du verre environnant uniquement (c’est-à-dire sans tissu) et enregistrez les valeurs moyennes et SD comme précédemment
- Utilisez la formule suivante pour calculer les valeurs de luminosité optique (OLV) dans une feuille de calcul :
OLV = (moyenne du verre − écart-type du verre) − (moyenne de [moyenne par image − écart type par image])
REMARQUE : Par exemple :
Verre environnant
Moyenne ± ET = 143,5 ± 8,56
Région du cerveau (p. ex., cortex)
1. 136,7 ± 10,6
2. 140,6 ± 10,4
3. 137,4 ± 11,3
OLV = (143,5 - 8,56) - (moyenne de [136,7 - 10,6], [140,6 - 10,4], [137,4 - 11,3])
VLO = 134,94 - 127,47
VLO = 7,47 - Faites la moyenne de chaque valeur par région, par animal, puis par groupe expérimental.
- Évaluations de la morphologie pulmonaire
- Capturez des sections H&E à un grossissement de 40x (trois champs optiques par diapositive, mesurez les espaces aériens par champ), enregistrez-les au format TIFF (ou équivalent) et importez des images dans ImageJ. Sélectionnez au hasard des champs représentatifs de l’ensemble de la section pulmonaire.
- À l’aide de l’outil à main levée, délimitez les espaces aériens et notez la mesure (figure 4A). Déterminez la moyenne de trois espaces aériens par champ, puis entre les trois champs par section et, enfin, entre les trois sections par échantillon.
- Afflux de neutrophiles dans les poumons
- Capturez des échantillons d’images à l’aide d’une caméra couleur à un grossissement de 40x, trois fois par section de tissu pulmonaire, et enregistrez le fichier original sous forme de fichier TIFF ou dans tout autre format de votre choix. Importez les images dans ImageJ et comptez manuellement les neutrophiles individuels dans trois champs du même poumon. Calculez la moyenne des neutrophiles par poumon.
Résultats
Ce protocole présente un modèle murin d’infection vaginale ascendante et décrit les méthodes d’évaluation de la neuropathologie néonatale et des résultats respiratoires. La procédure pour induire une infection vaginale ascendante doit être rapide (dans les 5 minutes) et les souris devraient se rétablir en quelques minutes. Les mères ont développé des symptômes d’infection après environ 24 h25. Cela comprend des mouvements lents, une piloérection et une posture voûtée. Le délai moyen d’accouchement chez les souris infectées était de 40,3 h après l’administration d’E. coli (moyenne du groupe témoin PBS 52,7 h), survenant le jour de E18.5 par rapport à l’accouchement à terme du groupe témoin PBS le E19.531. Le pourcentage de petits nés vivants par portée a été réduit (de 100 % à 71,4 %) avec l’infection, tout comme leur survie plus de 7 jours après la naissance (figure 5)25. Lorsque des bactéries bioluminescentes sont utilisées, l’imagerie peut suivre la propagation de l’infection chez les mères et les petits. Des bactéries ont été observées dans l’utérus, les membranes fœtales, le placenta et chez certains fœtus dans les 18 heures suivant l’administration (Figure 6), et les médiateurs inflammatoires, mesurés par qPCR et ELISA, ont été régulés à la hausse dans ces tissus, ainsi que dans les tissus périnataux des petits, tels que le cerveau, les poumons et l’intestin 25,29,31.
Une batterie d’évaluations neuropathologiques, telles que l’évaluation de la morphologie, de la mort cellulaire, de l’activation microgliale et de l’activation des astrocytes, a été réalisée sur les fœtus et les nouveau-nés à l’aide de l’histologie et de l’immunohistochimie 25,31,33. Le tissu pulmonaire peut également être évalué (Figure 4 et Figure 7). Une coloration positive pour TUNEL suggère une dégradation de l’ADN, un stade ultérieur de la mort cellulaire34. Nous constatons une augmentation significative de la coloration TUNEL dans le cortex, le cortex pyriforme, la capsule externe, l’hippocampe et le thalamus dans le cerveau des petits exposés à l’infection à E. coli pendant la grossesse (Figure 8A,B)31. Les cellules microgliales marquées IBA-1, les cellules immunitaires résidentes du cerveau, peuvent être classées en fonction de leur état morphologique, la ramification suggérant un phénotype au repos, tandis que les cellules activées et phagocytaires deviennent amiboïdes ou arrondies en forme35. Par conséquent, plutôt que de quantifier les cellules microgliales, nous présentons une stratégie pour évaluer leur phénotype comme indication de leur état. Nous constatons une augmentation des ramifications IBA1+ dans le cortex externe et le striatum des bébés E. coli, par rapport au groupe PBS (figures 8C et D)31. Les astrocytes réactifs marqués au GFAP, qui peuvent être associés à l’inflammation et aux lésions neurologiques, ont été augmentés dans le cortex pyriforme et la capsule externe chez les petits E. coli (figures 8E, F)31, 36, 37. La coloration de Nissl permet d’évaluer les modifications morphologiques grossières de la structure du cerveau ; Le violet de crésyle est une coloration histologique standard pour les neurones et marque à la fois les granules d’ARN extranucléaires et les noyaux cellulaires. Dans le groupe E. coli, nous constatons une réduction de l’épaisseur du cortex (Figure 9)31. De même, l’H&E, qui colorent respectivement le noyau et le cytoplasme des cellules, permet d’évaluer la morphologie pulmonaire (Figure 4)31. Nous constatons une augmentation des espaces aériens chez les souris exposées à E. coli, ainsi qu’une augmentation du nombre de neutrophiles Ly6G+, une indication d’inflammation (Figure 7)31.
Pour l’analyse des données, le délai de livraison a été analysé par un test t non apparié si les données étaient distribuées normalement. Pour les données en pourcentage pour les petits nés vivants, une transformation de racine carrée arcsinus a d’abord été nécessaire pour transformer une distribution de proportion (limitée par l’intervalle de 0 à 1) en une distribution normale, ce qui est l’une des conditions requises pour pouvoir effectuer un test t. La survie des petits a été analysée à l’aide d’un test de logarithme (Mantel-Cox). Pour l’histologie et l’immunohistochimie, on a utilisé soit le test U de Mann-Whitney, soit plusieurs tests t avec correction de Welsh, selon le type de données et leur distribution normale. Pour une puissance statistique suffisante, nous recommandons d’utiliser un minimum de cinq mères par groupe de traitement.
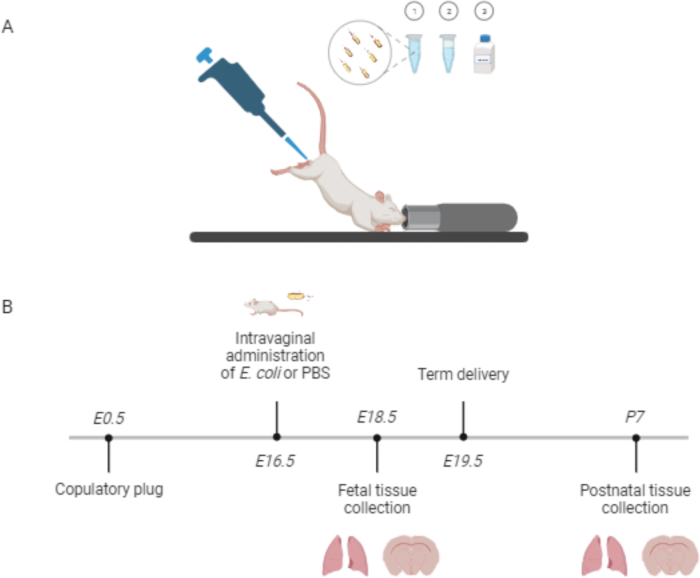
Figure 1 : Administration intravaginale d’Escherichia coli et calendrier de traitement pour induire une naissance prématurée et une morbidité néonatale chez la souris. (A) E. coli [1], suivi d’un gel pluronique F127 à 20 % [2], est administré dans le vagin de la souris à l’aide d’une pointe de pipette stérile de 200 μL. La poudre de quinine est ajoutée à l’introït [3]. (B) E. coli est libéré dans le vagin au 16,5e jour embryonnaire. Les tissus, tels que les poumons et le cerveau, peuvent être prélevés pendant la période fœtale ou néonatale. Abréviation : EN = jour embryonnaire N ; PN = jour postnatal N ; PBS = solution saline tamponnée au phosphate. Veuillez cliquer ici pour voir une version agrandie de cette figure.
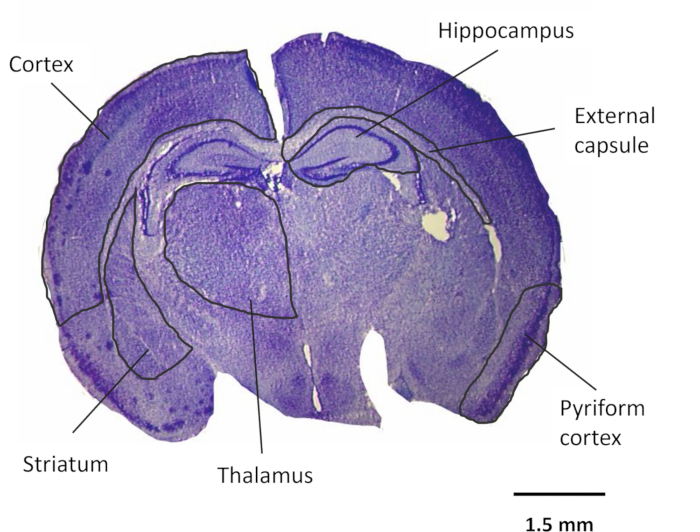
Figure 2 : Régions du cerveau évaluées pour la neuropathologie. Un exemple de coloration de Nissl du cerveau d’un petit nouveau-né et les régions qui pourraient être évaluées pour la neuropathologie. Toutes les régions du cerveau peuvent être évaluées pour TUNEL, IBA-1 et GFAP. Nous avons choisi d’évaluer la morphologie du cortex et de l’hippocampe à l’aide de Nissl. Grossissement : 1x. Barre d’échelle = 1,5 mm. Abréviations : TUNEL = marquage terminal de l’extrémité de l’encoche de la désoxynucléotidyl transférase dUTP ; IBA-1 = allogreffe facteur inflammatoire 1 ; GFAP = protéine acide fibrillaire gliale. Veuillez cliquer ici pour voir une version agrandie de cette figure.
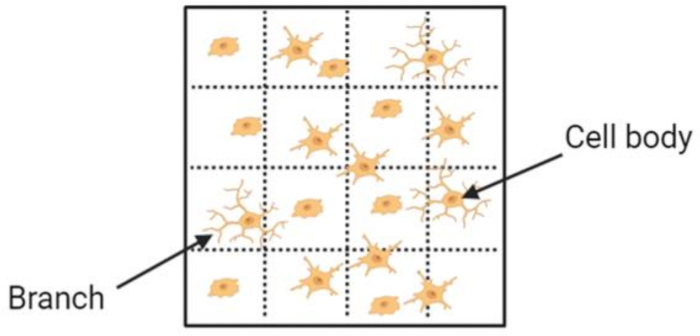
Figure 3 : Évaluation positive de la coloration et de l’indice de ramification de l’IBA-1. Pour quantifier l’indice de ramification des cellules IBA-1+, comptez le nombre de corps cellulaires dans la grille et le nombre moyen de branches traversant les lignes horizontales et verticales de la grille. Abréviation : IBA-1 = facteur inflammatoire d’allogreffe 1. Veuillez cliquer ici pour voir une version agrandie de cette figure.
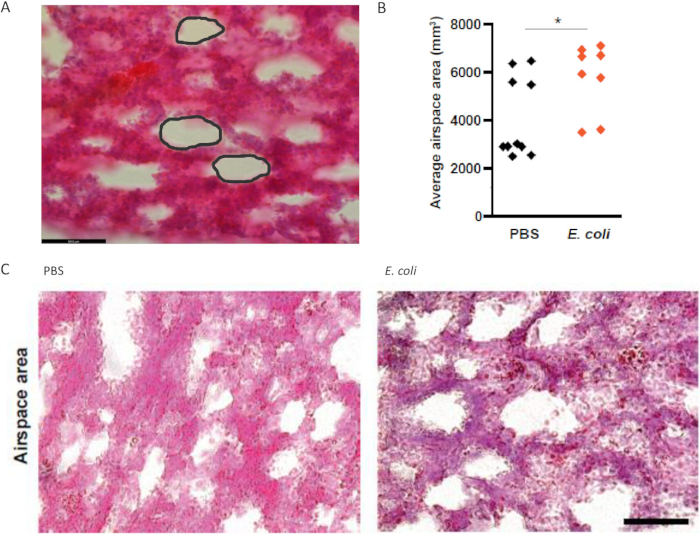
Figure 4 : Mesures de l’espace aérien dans les poumons des petits (coloration H&E). (A) Délimiter les espaces aériens et mesurer à l’aide de l’outil à main levée de l’ImageJ. (B) La surface moyenne de l’espace aérien est augmentée chez les petits exposés à E. coli par rapport au PBS. (C) Images H&E représentatives des poumons des petits exposés au PBS et à E. coli in utero. Grossissement : 40x. Barre d’échelle = 59,5 μm. Abréviations : H = hématoxyline ; E = éosine. n = 2 de 4 portées. *p < 0,05. Cette figure a été adaptée de Boyle et al.31. Veuillez cliquer ici pour voir une version agrandie de cette figure.
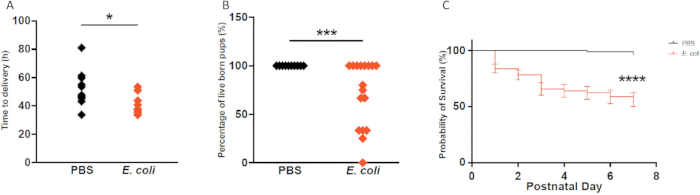
Figure 5 : Effets d’E. coli intravaginal sur le délai d’accouchement et la survie des petits. (A) Le délai avant l’accouchement est réduit en présence d’E. coli. (B) Le pourcentage de petits nés vivants est considérablement réduit et (C) la survie des petits est réduite chez les petits exposés à E. coli. Délai d’accouchement : n = 8 à 10 portées par groupe ; petits nés vivants : n = 10 à 17 portées par groupe ; Survie des petits : N = 10-12 portées par groupe. *p < 0,05, ***p < 0,001. Cette figure a été adaptée de Boyle et al.31. Veuillez cliquer ici pour voir une version agrandie de cette figure.
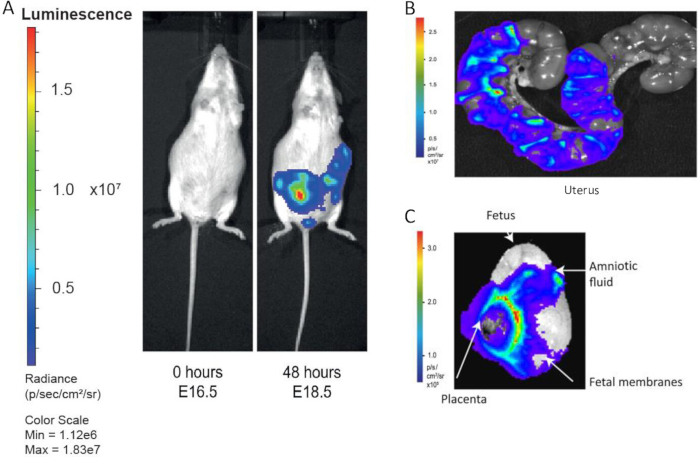
Figure 6 : Imagerie par bioluminescence pour surveiller la propagation d’E. coli. (A) E. coli bioluminescent monte du vagin dans les cornes utérines dans les 48 heures. (B) Les cornes utérines disséquées montrent une infection à E. coli dans les 18 heures, (C) tout comme le placenta et les membranes fœtales. Cette figure a été adaptée de Suff et al.25 et Boyle et al.31. Veuillez cliquer ici pour voir une version agrandie de cette figure.
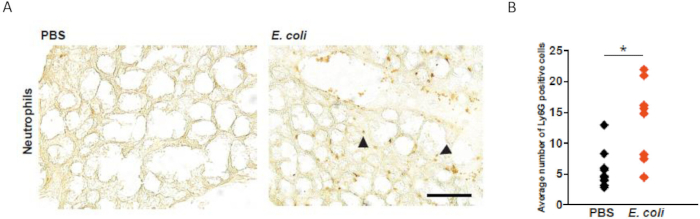
Figure 7 : Coloration Ly6G pour les neutrophiles dans les poumons fœtaux. (A) Coloration pour Ly6G (positifs : pointes de flèche), pour évaluer l’afflux de neutrophiles, chez les fœtus exposés au PBS et à E. coli. (B) Le nombre moyen de cellules Ly6G+ est significativement augmenté chez les fœtus d’E. coli. Grossissement : 40x. Barre d’échelle = 59,5 μm. n = 10 à partir de 5 portées par groupe. *p < 0,05. Abréviations : Ly6G = Lymphocyte antigen 6 complex locus G6D. Cette figure a été adaptée de Boyle et al.31. Veuillez cliquer ici pour voir une version agrandie de cette figure.
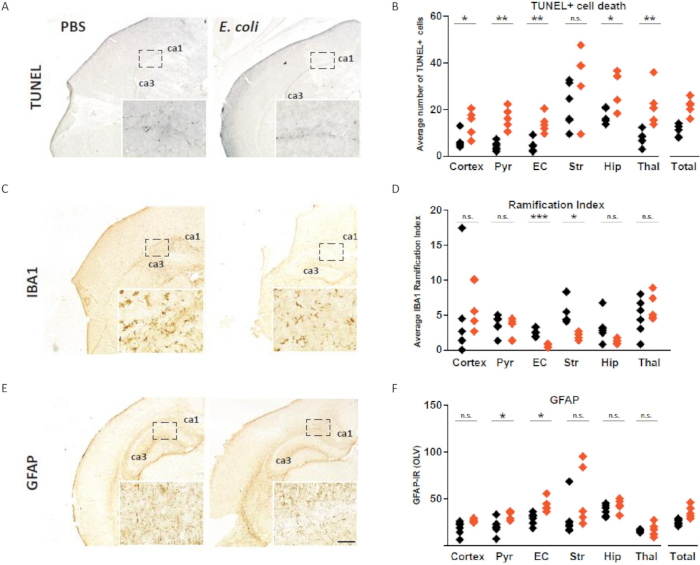
Figure 8 : Exemples de coloration TUNEL, IBA1 et GFAP. (A) Coloration TUNEL pour la mort cellulaire dans le cerveau postnatal du petit exposé au PBS ou à E. coli. (B) Le nombre moyen de cellules TUNEL+ est augmenté dans le cortex, le cortex pyriforme, la capsule externe, l’hippocampe et le thalamus. (C) Immunohistochimie IBA1 pour la microglie dans les groupes PBS et E. coli. (D) L’indice de ramification, en tant que mesure de l’activation de la microglie, est augmenté dans la capsule externe et le striatum chez les petits E. coli. (E) la coloration GFAP pour les astrocytes, (F) qui est augmentée dans le cortex pyriforme et la capsule externe chez les bébés E. coli. Barre d’échelle = 59,5 μm. Abréviations : GFAP = protéine acide fibrillaire gliale ; TUNEL = marquage terminal de l’encoche de la désoxynucléotidyl transférase dUTP ; Pyr = cortex pyriforme ; EC = capsule externe ; Str = striatum ; Hanche = hippocampe ; thal = thalamus ; total = toutes les régions ; CA = cornu ammonis ; OLV = valeurs de luminosité optique. Analyses immunohistochimiques : n = 5-7 de 5 portées par groupe. *p < 0,05, **p < 0,01, ***p < 0,001, n.s. - non significatif. Cette figure a été adaptée de Boyle et al.31. Veuillez cliquer ici pour voir une version agrandie de cette figure.
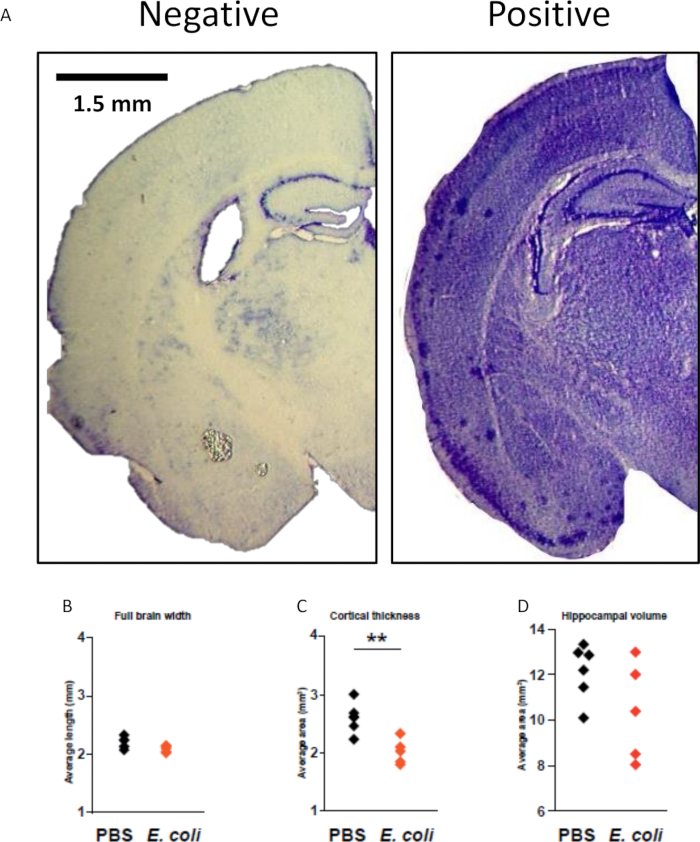
Figure 9 : Exemple de coloration Nissl positive et négative et d’évaluations morphologiques. (A) Coloration Nissl du cerveau postnatal du petit pour évaluer la structure et la morphologie des tissus. (B) Il n’y a pas d’impact sur la largeur du cerveau, mais (C) l’épaisseur corticale est réduite chez les petits exposés à E. coli. (D) Il n’y a pas de différence dans le volume de l’hippocampe. Grossissement : 1x. Barre d’échelle = 1,5 mm. n = 5-7 à partir de 5 portées par groupe. **p < 0,01. Cette figure a été adaptée de Boyle et al.31. Veuillez cliquer ici pour voir une version agrandie de cette figure.
| Anticorps primaire | Dilution | Anticorps secondaire/dilution | Dilution |
| Lapin anti-GFAP | 1:6000 | Chèvre anti-lapin | 1:100 |
| Lapin anti-IBA1 | 1:1000 | Chèvre anti-rat | 1:100 |
| Souris anti-Ly6G | 1:1000 | Chèvre anti-lapin | 1:100 |
Tableau 1 : Anticorps pour l’immunohistochimie.
| Pas | Réactif | Temps (min) |
| 1 | Coloration NISSL | 10 |
| 2 | Eau fraîche distillée | 2 |
| 3 | Eau fraîche distillée | 2 |
| 4 | 70 % d’EtOH | 2 |
| 5 | 90 % EtOH | 2 |
| 6 | 96 % EtOH | 2 |
| 7 | 96 % d’EtOH avec 3 à 5 gouttes d’acide acétique glacial | 2-5 (VÉRIFIEZ CONSTAMMENT) |
| 8 | 100 % EtOH | 2 |
| 9 | Isopropanol | 2 |
| 10 | Xylène | 2 |
| 11 | Xylène | 2 |
| 12 | Xylène | 2 |
Tableau 2 : Procédure Nissl.
Discussion
Ici, nous décrivons l’induction d’un nouveau modèle murin de naissance prématurée et de morbidité néonatale via l’ascension vaginale bactérienne. Nous avons choisi E. coli K1 car il s’agit d’une cause fréquente de septicémie et de méningite néonatales et se transmet verticalement de la mère au fœtus 38,39,40. La clé du succès de ce modèle est l’utilisation du gel thermosensible Pluronic, qui empêche la fuite de la suspension bactérienne du vagin, permettant à l’infection de s’établir et de remonter dans l’utérus. Comme ce modèle utilise des bactéries vivantes dérivées d’un isolat de septicémie, il est crucial de surveiller de près les barrages27. Si les animaux refusent de bouger ou de manger ou ne s’occupent pas de leurs petits (p. ex., négligent la nidification et l’alimentation), ils doivent être sacrifiés sans cruauté immédiatement.
La plupart du temps, les symptômes associés à l’infection se dissipent dans les 24 heures suivant l’accouchement. Il est également essentiel de savoir que les différents sérotypes d’E. coli et d’autres souches de bactéries auront des effets variables sur la durée de la gestation, l’étendue de l’infection ou de l’inflammation et l’issue néonatale. Nous suggérons d’effectuer des expériences de dosage préliminaires avec différentes UFC lors de l’utilisation de nouveaux sérotypes/souches bactériennes afin de déterminer la concentration minimale nécessaire pour le phénotype souhaité et de fixer des critères d’évaluation stricts sans cruauté pour prévenir la souffrance. Une extrême prudence doit être utilisée lors de l’administration d’un agent pathogène vivant ; Permettre à la littérature d’orienter l’utilisation appropriée de ces organismes lors de la modélisation de l’infection ascendante.
La souche de la souris est également importante, car leurs systèmes immunitaires diffèrent. Par exemple, le minutage et les UFC utilisés dans ce modèle n’ont pas les mêmes résultats lorsqu’ils sont effectués chez les souris C57BL/6. Nous avons choisi d’utiliser les souris C57BL/6 Tyrc-2J car les expériences sur le parcours temporel ont montré beaucoup plus d’infection dans cette souche par rapport à CD-1, BALB/c et C57BL/6. De plus, il existe des preuves que la fourrure noire éteint les signaux bioluminescents, ce qui est un résultat mesurable utile dans ce modèle29. Le jour de gestation optimal pour l’administration de bactéries peut également différer selon l’agent pathogène et la souche de souris. Il existe une énorme hétérogénéité dans les modèles précliniques de PTB ; Par conséquent, il est important de prendre en compte ces variables afin d’élaborer des résultats reproductibles17.
Une autre considération est la durée pendant laquelle les animaux sont exposés à l’anesthésie. Comme une exposition excessive pendant la gestation est associée à une neurotoxicité chez les petits, il est essentiel de réduire au minimum le temps passé sous anesthésie (par exemple, maximum 5 min) et de toujours inclure des témoins exposés au même environnement et traités avec une substance véhiculante 41,42,43. Les groupes de contrôle supplémentaires utiles pour ce modèle comprennent l’administration intravaginale non traitée de gel Pluronic uniquement et l’anesthésie uniquement.
L’immunohistochimie est largement utilisée comme outil expérimental pour identifier différentes protéines et cellules, et elle peut être utilisée pour caractériser la structure et la connectivité du cerveau. Ici, nous décrivons comment analyser les cellules clés du système nerveux central qui sont associées à la neuroinflammation et aux lésions neurologiques. Nous présentons également des méthodes d’évaluation de l’apoptose cellulaire et des colorations histologiques utiles pour mesurer la morphologie du cerveau et des poumons. Les considérations importantes pour assurer le succès de ces protocoles commencent par l’utilisation prudente du stylo PAP ; si le stylo PAP touche le tissu, la coloration échouera, mais si le paramètre est trop large, les sections pourraient se dessécher pendant la nuit. De même, la chambre d’humidité doit être maintenue humide pour éviter de dessécher les sections.
Lors de la réalisation de la coloration Nissl, l’étape de l’acide acétique glacial est la plus critique ; Les sections doivent être vérifiées en permanence. Lorsque les principales structures du cerveau deviennent visibles, les sections doivent être immédiatement déplacées dans l’EtOH pour arrêter la réaction. Nous avons choisi d’évaluer le cortex et l’hippocampe, car une réduction de l’épaisseur corticale et du volume de l’hippocampe a été rapportée chez les nouveau-nés prématurés humains et d’autres modèles animaux, mais d’autres régions ont pu être évaluées pour des changements morphologiques 44,45,46,47. Une attention particulière doit également être portée au développement de la coloration DAB. Cela doit être chronométré et maintenu cohérent entre les expériences.
L’analyse des données est la limitation la plus courante de l’immunohistochimie en raison de la difficulté à quantifier les résultats, qui sont souvent considérés comme subjectifs. Bien que l’analyse GFAP soit effectuée à l’aide de mesures de luminosité optiques assistées par ordinateur, une coloration incohérente peut affecter ces mesures. De plus, les évaluations de la morphologie du cerveau et des poumons impliquent des mesures manuelles à main levée reposant sur le jugement de l’observateur. Pour éviter toute incohérence, nous répétons ces évaluations deux fois et dans un court laps de temps. Pour réduire davantage tout biais, il est important que l’évaluateur soit aveugle aux groupes de traitement. Une faible immunoréactivité peut également être un facteur limitant. L’absence de signal pourrait suggérer que l’antigène d’intérêt est absent ou qu’elle pourrait être due à une défaillance du protocole. Pour résoudre ce problème, nous incluons un échantillon de tissu qui peut agir comme un contrôle positif lorsque cela est possible et répétons la procédure de coloration lorsque nous observons un signal faible ou absent pour nous assurer qu’il ne s’agit pas du résultat d’une erreur expérimentale.
En plus des protocoles décrits, des analyses immunologiques des tissus maternels, fœtaux et néonatals peuvent être effectuées par qPCR et ELISA. Nous avons observé une augmentation des niveaux inflammatoires d’ARNm et de protéines chez les animaux exposés à l’infection 25,31,48. Nous émettons l’hypothèse que la neuropathologie néonatale que nous démontrons histologiquement pourrait être le résultat d’une inflammation du cerveau, des poumons et de l’intestin du fœtus25,31. D’autres évaluations neuropathologiques que nous avons effectuées incluent la protéine basique de la myéline (MBP) pour étudier la myélinisation et la NeuN pour colorer les noyaux neuronaux25,31. De plus, d’autres marqueurs peuvent être évalués pour les neutrophiles et la microglie afin de mieux comprendre le phénotype et le comportement de ces cellules après une exposition à une infection in utero49,50. De plus, des tests comportementaux pourraient être effectués pour déterminer l’impact à long terme sur la progéniture.
Ce modèle n’est pas sans limites. Par exemple, nous observons des variations dans la pathologie entre et au sein des portées. Cela pourrait être le résultat de l’utilisation d’une bactérie vivante, où la propagation de l’infection ne peut pas être contrôlée. Par conséquent, le modèle et la portée de l’infection ascendante dans les cornes utérines varient et sont souvent asymétriques. Une autre limitation est la pathogénicité d’E. coli, qui peut parfois rendre les mères trop malades pour s’occuper de leurs petits. Les souris ne sont pas non plus le meilleur modèle de lésion pulmonaire, en raison de l’alvéologenèse qui a lieu après la naissance, plutôt que prénatale, commechez l’homme. Nous n’avons pas réussi à gonfler nos tissus pulmonaires lorsque les échantillons ont été prélevés, ce qui aurait pu avoir un impact sur nos résultats. Cependant, nos résultats sont cohérents avec les changements observés dans les modèles animaux de TPL néonatals52,53.
Ce modèle récapitule la condition humaine postulée selon laquelle l’infection bactérienne remonte du vagin vers l’utérus, stimulant ainsi l’accouchement précoce. À la suite de la publication initiale de ce modèle, d’autres ont reproduit ou produit des modèles similaires, ce qui souligne encore la reproductibilité et la pertinence de cette méthodologie19,54. De manière cruciale, ce modèle présente les morbidités courantes rencontrées par les nouveau-nés prématurés, là où d’autres modèles ont échoué. Cela pourrait être dû à l’utilisation d’une souche bactérienne spécifiquement associée à la septicémie néonatale. Le LPS, qui est le plus souvent utilisé pour induire le travail prématuré dans les modèles animaux, est mortel pour les petits, de sorte que les résultats néonatals ne peuvent pas être mesurés18. D’autres modèles d’infection ascendante ont également eu du mal à produire des petits survivants ou à démontrer une morbidité néonatale 19,20,21,22,23,24,55,56. Des modèles animaux cliniquement pertinents, comme celui que nous décrivons, sont fondamentaux pour comprendre la physiopathologie des naissances prématurées et pour développer des interventions novatrices qui amélioreront les résultats néonatals.
Déclarations de divulgation
Les auteurs n’ont pas de divulgations pertinentes.
Remerciements
Escherichia coli K1 A192PP-luxABCDE a été gracieusement offert par le professeur Peter Taylor, University College London. Les figures 1 et 3 ont été créées en BioRender.com. Cette recherche a été financée par la bourse de développement de carrière Wellcome Clinical Research 222970/Z/21/Z (N.S.), Action Medical Research et la subvention Borne GN2647 (N.S., S.N.W. et D.P.) ; et la subvention RG2365 pour le bien-être des femmes (A.K.B., N.S., M.H., S.N.W. et D.P.).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Anti-GFAP, lapin | Agilent Technologies | Z033429-2 | |
| Anti-IBA1, rabbit ; | Wako | 019-19741 | |
| Anti-Ly6G, souris | BioLegend | 127601 | |
| Caméra AVT-Horn 184 3CCD | Sony | ||
| Biotine-16-DUTP | Merck | 11093070910 | |
| Caches rectangulaires en verre borosilicate | FisherScientific | 12363128 | |
| Acétate de violette de crésyl | ThermoFisher Scientific | 405760100 | |
| Cryostat CM1900 | Leica | ||
| Cuvette en verre & nbsp ; | Merck | BR472700 | |
| Diaminobenzidine (DAB) | Generon | 40480004-3 | |
| Pinces disséquables, acier inoxydable, 10 cm, dentelées, courbes | World Precision Instruments Ltd | 15915 | |
| Pinces de dissection, acier inoxydable, 10 cm, dentelées, droites | World Precision Instruments Ltd | 15914 | |
| Ciseaux à disséquer, 10 cm de long, droits | World Precision Instruments Ltd | 14393 | |
| DPX ; | Merck | 100579 | |
| Éosine | Sigma-Aldrich | HT110116 | |
| Solution de formaldéhyde tamponnée à 4 % | Merck | 100496 | |
| Anticorps anti-IgG de la chèvre (H+L), biotinylé | Laboratoires Vector | BP-9100-50 | |
| Anticorps anti-IgG de chèvre (H+L), biotinylé | Laboratoires Vector | BA-9400-1.5 | |
| GraphPad Prism v.8 ; | Logiciel GraphPad | ||
| H2O2 | Sigma-Aldrich | 7722-84-1 | |
| Hématoxyline | Sigma-Aldrich | MHS16 | |
| ImageJ | Instituts nationaux de la santé | ||
| Isoflurane (IsoFlo) | Zoetis | 50019100 | |
| Système d’imagerie in vivo IVIS Lumina II / logiciel d’image vivante | Perkin Elmer/Revvity | ||
| Microdiapositives | VWR | ISO8037/I | |
| Optimas 6.51 ; | Media Cybernetics Inc. | ||
| Paraformélélidoïde | Sigma-Aldrich | 158127 | |
| Solution physiologique tamponnée phosphate (PBS) & nbsp ; | Thermo Fisher Scientific (Technologies de la vie) | 14190094 | |
| Pluronic F-127 & nbsp ; | Sigma-Aldrich | P2443 | |
| Quinine | Fournitures de laboratoire scientifique | Q0132 | |
| Stylo Pap barrière hydrophobe ReadyProbes | Thermo Fisher Scientific & nbsp ; | R3777 | |
| Hydroxyde de sodium | Honeywell | S8045 | |
| Phosphate de sodium monobasique anhydre | FisherScientific | BP329-1 | |
| Saccharose | Merck | S9378 | |
| Transferase terminale ; | Merck | 3333574001 | |
| KIT VECTASTAIN ABC-HRP, Peroxydase | Laboratoires Vector | PK-4000 | |
| Xylènes (grade histologique) ; | Sigma-Aldrich | 534056 |
Références
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
Réimpressions et autorisations
