Cette étude présente un test FRET ratiométrique simple et convivial pour la détection et l’évaluation quantitative de l’activité de la DNase, et démontre son application dans l’analyse d’une nucléase faible.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Évaluation de l’activité de la DNase par transfert d’énergie de résonance de fluorescence ratiométrique
Dans cet article
Résumé
Résumé
Le présent protocole décrit un test ratiométrique simple et sensible de transfert d’énergie par résonance de Förster (FRET) pour la détection et l’évaluation quantitative de l’activité de la DNase. Les mesures ratiométriques FRET utilisent le rapport entre les signaux d’émission donneur et accepteur. Le test détecte les cassures d’ADN simple brin à l’aide d’une oligosonde FRET 38 mères en forme d’agrafe et à double marqueur, utilisée comme capteur de clivage de l’ADN en temps réel. La principale application de l’approche décrite est l’évaluation quantitative des effets des conditions de réaction, telles que le pH, la température et la composition du tampon, sur l’activité de la DNase. En raison de sa capacité à détecter même un clivage mineur et lent de l’ADN, le test est particulièrement bien adapté à l’étude de l’activité nucléolytique faible nécessitant de longues périodes d’observation et à l’étude des effets du pH sur l’activité de la DNase. Ces avantages spécifiques de ce protocole FRET ratiométrique sont illustrés par son application à la détection et à l’analyse de l’activité DNase de l’inhibiteur de l’élastase leucocytaire (LEI).
Introduction
L’approche de fluorescence ratiométrique est une méthode analytique qui utilise des rapports de signaux de fluorescence au lieu de se fier uniquement à l’intensité d’un seul signal 1,2. L’avantage d’utiliser les rapports est qu’ils permettent un étalonnage interne et compensent de nombreux facteurs aléatoires, tels que les variations de concentrations d’échantillons et de sondes, les paramètres de l’instrument, etc. Cela améliore la précision et la sensibilité des sondes fluorescentes.
Dans le contexte spécifique des sondes de transfert d’énergie par résonance de Förster (FRET), le terme « ratiométrique » fait référence au fait que la mesure est basée sur le rapport de deux signaux d’émission de la paire de fluorophores donneurs et accepteurs FRET. Pour quantifier l’activité de l’analyte cible, les sondes FRET ratiométriques utilisent le rapport des intensités d’émission accepteur/donneur (ou, dans certains cas, le rapport donneur/accepteur inversé). Le rapport est directement lié à l’efficacité du FRET. Il fournit un mécanisme d’auto-normalisation qui minimise le bruit de fond et tient compte des variations des conditions d’éclairage et de la concentration de la sonde3.
Parmi les applications intéressantes récentes de la méthode ratiométrique, citons son utilisation dans les biocapteurs électrochimiques ratiométriques pour la détection de l’ADN tumoral circulant (ADNct)4,5, dans les bio-nanomachines browniennes alimentées par le mouvement pour la détection FRET de la phase phagocytaire de l’apoptose6, et pour le marquage FRET express et l’analyse de la clairance phagocytaire7. L’approche FRET ratiométrique décrite dans ce travail est utile pour l’évaluation quantitative de l’activité de la DNase. Les mesures de dosage sont basées sur les rapports des émissions de la paire FRET. En raison de sa capacité à détecter même un clivage mineur et lent de l’ADN, le test est particulièrement bien adapté à l’étude de l’activité nucléolytique faible nécessitant des périodes d’observation plus longues et aux expériences à différents niveaux de pH.
Ici, certains avantages spécifiques du test FRET ratiométrique sont illustrés par son application à l’étude de l’activité DNase d’un inhibiteur faible de l’élastase nucléasique-leucocytaire (LEI). Le rapport comprend un protocole détaillé avec des instructions étape par étape et une description de l’analyse des données ratiométriques.
Description de la sonde FRET ratiométrique
La sonde FRET ratiométrique est un oligo d’ADN 38 mères auto-complémentaire portant la paire FRET donneur-accepteur de FAM-TAM (fluorescéine-tétraméthylrhodamine). Sa séquence est 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. Le 38-mère auto-hybridant prend une conformation en forme d’agrafe, composée de deux épingles à cheveux connectées de 23 et 15 nucléotides, qui positionnent ses deux fluorophores à 23,8 Å l’un de l’autre. C’est nettement plus proche que le rayon de Förster pour cette paire, R0 = 55 Å8. Un tel positionnement correspond à un rendement très élevé de transfert d’énergie du donneur à l’accepteur7 : EFRET = 0,993477. En conséquence, lorsqu’elle est éclairée à la longueur d’onde d’excitation FAM (488 nm), la sonde FRET émet une fluorescence à la longueur d’onde d’émission de l’accepteur TAM (580 nm), tandis que l’émission FAM (525 nm) est supprimée.
La figure 1A montre la structure secondaire de la sonde prédite par UNAFold, avec de petites boucles aux deux sommets de l’épingle à cheveux en raison de l’obstacle stérique d’une courbure serrée. Le schéma de la détection des cassures d’ADN par la sonde FRET est présenté à la figure 1B. Il montre que la rupture de l’oligosonde par une DNase sépare sa paire FRET. Cette séparation produit des changements drastiques dans les spectres d’émission des deux fluorophores de la sonde. La figure 1C présente les spectres d’émission de la sonde avant et après son clivage et démontre que la scission de la paire FRET après le clivage de la sonde DNase II augmente l’émission du donneur à 525 nm (ID 525 nm) et diminue simultanément l’émission de l’accepteur à 580 nm (IA 580 nm). La figure 1D montre les rapports PAGE gel et FRET correspondant aux spectres d’émission. Le clivage de la sonde DNase II a produit deux larges bandes correspondant à des fragments de 12-16-mères FAM (vert) et de 20-24-mères TAM (rouge), indiquant des coupes aléatoires des 38-mères de chaque côté de T23 au voisinage de la zone de connexion entre les épingles à cheveux.
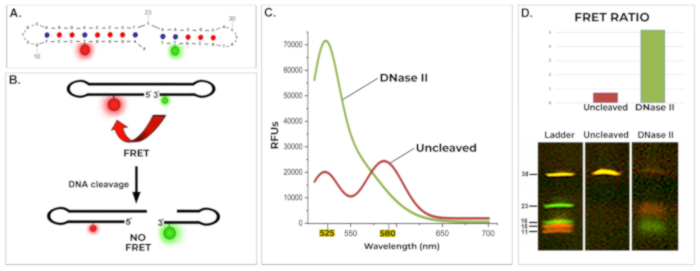
Figure 1 : Structure et fonctionnement de la sonde FRET ratiométrique. (A) Structure secondaire prédite de la sonde FRET générée par UNAFold. (B) Représentation schématique de la sonde FRET de travail. La sonde FRET ratiométrique est un oligonucléotide 38 mères en forme d’agrafe marqué avec un donneur et un accepteur FRET (FAM) à une distance FRET effective de 23,8 Å, assurant une efficacité FRET de >99 %. Le clivage de l’oligosonde par une DNase sépare la paire FRET, abolissant le FRET. (C) Spectres d’émission de la sonde FRET avant et après le clivage médié par la DNase II. Avant le clivage, l’émission de FAM est supprimée et l’émission de TAM est proéminente. Le clivage médié par la DNase sépare le FAM et le TAM, rétablissant l’émission FAM (pic de 525 nm) et abolissant l’émission TAM (chute de 580 nm). λexcitation = 488 nm. (D) Évaluation ratiométrique et électrophorétique de la sonde FRET avant et après clivage de la DNase II. Panneau supérieur : rapports FRET (RD/A = ID 525 nm / IA 580 nm), représentant une mesure quantitative de l’état de la sonde. Rouge : onculé ; vert : DNase II-clivé. Panneau inférieur : Gel PAGE dénaturant correspondant aux données fluorométriques. Le clivage de la DNase II donne des fragments marqués FAM (12-16 nt, vert) et des fragments marqués TAM (20-24 nt, rouge), indiquant un clivage près de la connexion entre les épingles à cheveux, flanquant T23. Le témoin Uncleaved montre une fluorescence jaune. Échelle : oligonucléotides marqués FAM et TAM correspondant aux segments 5′ et 3′ de la sonde 38-mer, avec des marqueurs fluorescents dans leurs positions d’origine. Conditions de réaction : tampon d’acétate de sodium de 10 mM (pH 5,2), sonde FRET de 1 pmol/μL, DNase II de 0,0033 U/μL, 24 h à 37 °C. RD/A = ID 525 nm/IA 580 nm ; λexcitation = 488 nm. UNAFanciennes conditions : sonde FRET 1 μM, 10 mM Na+, 0 mM Mg2+, 37 °C. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Si les modifications apportées aux différents spectres d’émission d’essai sont évidentes, les comparaisons quantitatives entre un grand nombre de spectres d’émission nécessitent un paramètre quantitatif plus convivial et plus compact. Ce rôle est joué par le rapport FRET. La méthode de fluorescence présentée appartient à un groupe d’approches ratiométriques qui s’appuient sur les rapports directs (à deux canaux) des émissions de fluorescence des membres de la paire FRET pour leurs évaluations quantitatives 2,9.
L’approche utilise le rapport des émissions donneur/accepteur (RD/A = ID 525 nm / IA 580 nm), qui est lié à l’efficacité FRET et caractérise quantitativement l’état du 38-mer (brisé ou intact). Le rapport ID / IA fournit un mécanisme d’auto-normalisation qui tient compte intrinsèquement des variations de facteurs tels que la concentration de la sonde, l’intensité de l’excitation et le photoblanchiment3. L’approche ne convient qu’aux sondes FRET dont le donneur et l’accepteur sont liés au sein de la même sonde, où leur rapport est connu et constant. Pour cette raison, l’approche n’a pas besoin de prendre en compte l’excitation directe de l’accepteur ou de la diaphonie du donneur2. La stœchiométrie donneur-accepteur fixe de la sonde garantit que les rapports d’émission donneur/accepteur ne sont pas affectés par ces variations et reflètent directement l’état de la sonde. En conséquence, le rapport entre les émissions donneurs-accepteurs fournit un paramètre quantitatif de clivage de l’ADN avec normalisation du signal intégrée 2,3.
Le test utilise le rapport ID / IA (plutôt que le rapport opposé IA / ID ) car ce rapport décrit l’arrêt du FRET après le clivage de la sonde et change donc dans la même direction que l’activité de la DNase, augmentant avec l’augmentation du clivage. Ceci est illustré par la figure 1D, qui montre le rapport FRET de la sonde ratiométrique et son électrophorèse PAGE avant et après son clivage par la DNase II, tous deux correspondant aux spectres de la figure 1C. Pour démontrer la commodité, l’économie de temps et la facilité d’utilisation du test FRET ratiométrique, il a été appliqué pour découvrir et étudier l’activité DNase d’un inhibiteur de l’élastase nucléase leucocytaire (LEI) faible.
LEI nucléases faibles
L’inhibiteur de la protéase LEI est naturellement métastable, c’est-à-dire topologiquement déséquilibré. Cette caractéristique est essentielle pour son mécanisme inhibiteur. Lorsque sa protéase cible clive la boucle du site réactif LEI (RSL), la molécule inhibitrice de la protéase subit un changement conformationnel drastique, étirant mécaniquement la protéase en une forme inactive10,11. Remarquablement, cela brise et distend également la molécule LEI elle-même et démasque un site DNase cryptique qui est recouvert dans son pli natif, convertissant ainsi le LEI en une endonucléase L-DNase II active (DNase II dérivée du LEI)11,12. Le site cryptique de la DNase peut également être exposé par la dénaturation et la rupture du LEI causées par son incubation nocturne à pH 2 dans l’acide sulfurique10,13. L’utilisation de ce test FRET pour étudier le LEI a démontré que des traitements de dénaturation chimique sévères et un clivage enzymatique ciblé ne sont pas strictement nécessaires pour démasquer l’activité nucléolytique latente du LEI.
L’application et le protocole présentés de l’approche FRET ratiométrique décrivent la découverte d’une faible activité DNase intrinsèquement présente dans un LEI normal et non dénaturé. La découverte de la capacité nucléolytique intrinsèque du LEI non autorisé et son analyse ont été possibles en raison de l’aptitude du test à de longues périodes d’observation à différents niveaux de pH acide.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Évaluation de l’activité de la DNase par transfert d’énergie de résonance de fluorescence ratiométrique
La méthode est adaptée à la détection et à l’analyse des propriétés nucléolytiques d’une protéine soluble. Pour examiner la dépendance au pH de la DNase étudiée, la procédure évalue simultanément l’activité de la DNase sur une gamme de valeurs de pH. La technique peut être utilisée pour étudier les activités des nucléases faibles et lentes. Les détails des réactifs et de l’équipement utilisés dans cette étude sont énumérés dans la table des matériaux.
1. Préparation des composants du mélange d’incubation pour le système d’évaluation fluorométrique
- Préparez les solutions tampons aux plages de pH souhaitées. Pour une plage de pH de 6,8 à 8,0, utilisez du Tris-HCl ou des tampons phosphate. Utilisez le tampon Tris-HCl pour les conditions de pH physiologiques (pH 7,2 à 8,0) en raison de sa stabilité et de son interférence minimale avec l’activité enzymatique.
REMARQUE : Les tampons phosphate conviennent à cette plage de pH, mais sont moins adaptés aux valeurs de pH plus élevées (>7,5) en raison de leurs limites de pouvoir tampon.
Pour un pH de 4,2 à 7,2, utilisez des tampons d’acétate ou de citrate. Le tampon d’acétate est efficace pour les conditions de pH plus basses, jusqu’à pH 4,2.
REMARQUE : Le tampon de citrate est utilisable à des valeurs de pH légèrement plus élevées (pH 5,6 à 7,2) et offre une bonne capacité tampon. Ces tampons conviennent à l’étude de l’activité de la DNase dans des conditions acides à neutres. L’étude présentée de l’activité nucléolytique du LEI a utilisé des tampons d’acétate de sodium de 10 mM avec un pH variant de 4,8 à 6,5. - Diluer l’échantillon de protéines à une concentration appropriée dans chaque solution tampon. Lorsque l’activité de l’échantillon est complètement inconnue, préparez une gamme de dilutions de la protéine. La dilution optimale dépend de l’intensité de l’activité de la DNase et doit être déterminée expérimentalement en testant plusieurs concentrations de protéines.
REMARQUE : L’étude présentée sur l’activité nucléolytique ultra-faible du LEI l’a utilisé à une concentration de 1 μM.- Vérifiez toujours le pH de la solution finale lors de l’utilisation de tampons hautement concentrés, car le pH des tampons concentrés peut changer lors de la dilution.
- Préparez la solution de sonde FRET ratiométrique dans de l’eau sans nucléase. Utilisez des concentrations de sonde FRET proches de 1 μM (1 pmol/μL). Évitez d’utiliser des concentrations de sonde très élevées.
Chauffez et refroidissez rapidement la solution de sonde avant l’application pour assurer une dissociation complète des paires de bases indésirables.
REMARQUE : L’étude présentée de l’activité nucléolytique du LEI a utilisé une concentration de 1 μM (1 pmol/μL) de sonde FRET dans de l’eau exempte de nucléases.
2. Induction de la réaction DNase à l’aide de la sonde FRET ratiométrique comme substrat
- Préparez trois puits dans une plaque de 96 puits pour chaque condition de pH à tester. Inclure trois puits supplémentaires, chacun pour les témoins positifs et négatifs.
- Dans chaque puits de la série de pH, combinez les éléments suivants :
70 μL d’eau sans nucléases
10 μL de tampon 10X (tampon de votre choix)
10 μL d’échantillon avec des protéines
10 μL de solution de sonde ratiométrique (concentration de matière première de 10 pmol/μL)
REMARQUE : L’étude présentée de l’activité nucléolytique du LEI à pH acide a utilisé le tampon 10X suivant : 100 mM Na Acétate pH 5,2 - Dans chaque puits de contrôle positif, combinez les éléments suivants :
79 μL d’eau sans nucléases
10 μL de tampon 10X DNase II (100 mM d’acétate de Na pH 5,2)
0,33 μL de DNase II (1 U/μL de stock)
10 μL de solution de sonde ratiométrique (concentration de matière première de 10 pmol/μL)
REMARQUE : Pour les études à pH acide, utilisez la DNase II comme témoin positif. Lors de l’évaluation de l’activité de la DNase près d’un pH de 7 (plus précisément de pH 6,5-8), passer à la DNase I et à son tampon associé (p. ex., 10 mM de Tris-HCl, 2,5 mM de MgCl2, 0,5 mM de CaCl2, pH 7,6) au lieu de la DNase II et du tampon d’acétate. - Dans chaque puits de contrôle négatif, ajoutez de l’eau sans nucléase à la place de l’échantillon de protéines.
- Dans chaque puits de la série de pH, combinez les éléments suivants :
- Induire la réaction de la DNase en ajoutant les solutions de sonde aux mélanges réactionnels contenant la protéine DNase à différentes valeurs de pH.
REMARQUE : Mélangez soigneusement tous les échantillons tout en évitant la formation de bulles. Pour les échantillons de DNase actifs, démarrez toutes les réactions aussi près que possible de la même manière. Pour les activités ultra-faibles, comme celles du LEI, un calendrier strict est moins critique.
REMARQUE : Pour assurer des temps d’incubation constants, en particulier lorsqu’il s’agit de nucléases actives, échelonnez l’ajout d’échantillons en fonction du temps requis pour chaque mesure. Par exemple, si chaque mesure prend 10 s, ajoutez le deuxième échantillon 10 s après le premier.
3. Incubation
- Incuber la DNase étudiée à l’aide de la sonde FRET ratiométrique à 37°C dans un bain-marie ou un incubateur à température régulée pendant différentes périodes. Utilisez plusieurs points temporels avec des intervalles d’échantillonnage réguliers pour évaluer avec précision les taux de renouvellement des enzymes et minimiser les artefacts. L’étude présentée de l’activité nucléolytique ultra-faible du LEI a utilisé des incubations de 24 heures pour enregistrer la réaction nucléolytique lente.
REMARQUE : Déterminez le temps d’incubation optimal dans les expériences préliminaires, car il dépend de la force de la DNase étudiée. Une nucléase active aurait besoin de très peu de temps pour terminer le clivage de la sonde, alors commencez par une incubation de 15 à 30 minutes. Si l’échantillon est trop concentré et que la réaction est trop rapide, la concentration en protéines doit être réduite. Si la protéine de l’échantillon est trop faible, le temps d’incubation peut augmenter au besoin.
4. Normalisation du signal aux mêmes conditions de pH
- Arrêtez toutes les réactions d’incubation en ajoutant 100 μL de 250 mM de Tris-HCL (pH 8,0). Cette étape égalise également le pH de tous les échantillons.
REMARQUE : L’étape d’égalisation du pH est importante lorsque l’on compare des réactions initiées dans différentes conditions de pH. La procédure assure une séparation complète des fragments de sonde, maximisant ainsi son signal basé sur FRET. De plus, l’émission de fluorophore FAM de la sonde est réduite à pH acide et est optimale à pH 8,0. Pour les échantillons ayant une force ionique supérieure à celle utilisée dans cette étude, une solution d’égalisation plus concentrée (>250 mM) et un pH plus élevé (>8,0) pourrait être nécessaire pour obtenir un ajustement efficace du pH.
REMARQUE : Le pH alcalin arrête efficacement l’activité des nucléases acides telles que le LEI, comme le démontre l’étude actuelle. Pour les nucléases neutres ou alcalines, des méthodes d’inactivation spécifiques appropriées doivent être identifiées et appliquées avant l’évaluation du signal.
5. Détection de signaux fluorométriques et calcul des rapports FRET
- Immédiatement après l’étape d’égalisation du pH, utilisez un spectrofluorimètre pour enregistrer les spectres d’émission des fluorophores donneur et accepteur. Effectuez des mesures directement dans la plaque à 96 puits en excitant le fluorophore donneur à 488 nm et en détectant simultanément les émissions à 525 nm (donneur) et 580 nm (signal accepteur dérivé du FRET).
- Utilisez les intensités de fluorescence enregistrées pour évaluer l’activité de la DNase dans chaque échantillon. Appliquer des méthodes statistiques appropriées pour analyser les données et en évaluer l’importance.
REMARQUE : Calculer le rapport FRET à l’aide de la formule : RFRET = Émission du donneur à 525 nm/Émission de l’accepteur à 580 nm. Dans ce test, le clivage de l’ADN perturbe le FRET en séparant les fluorophores, ce qui entraîne une augmentation de l’émission du donneur et une diminution de l’émission de l’accepteur. Ce décalage augmente le rapport FRET (RFRET), qui sert d’indicateur de l’activité de la DNase.
6. Vérification du clivage basée sur PAGE
- Vérifiez le clivage de la sonde FRET en effectuant une électrophorèse sur gel de polyacrylamide dénaturant (PAGE)14. La sonde FRET et ses produits de clivage sont marqués par fluorescence et visibles sans coloration supplémentaire.
REMARQUE : Dans l’étude représentative, le clivage médié par le LEI de la sonde FRET à 38 mères a été confirmé par dénaturation de PAGE (voir Figure 2). L’analyse a révélé que LEI a produit des fragments marqués 6-8-mer FAM et 15-16-mer TAM fragments, compatibles avec un clivage près des deux sommets de l’épingle à cheveux. Ce modèle différait du profil de fragment généré par DNase II.- Chargez 15 μL de chaque échantillon sur un gel PAGE dénaturant à 20 %.
- Faites fonctionner le gel pendant 1 h à 100 V.
- Acquérez des images en gel à l’aide d’un système de documentation équipé d’une caméra couleur haute résolution.
REMARQUE : Les images de l’étude représentative ont été capturées à l’aide d’un appareil photo reflex numérique.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Cette étude représentative met en évidence les avantages spécifiques de l’approche FRET ratiométrique pour l’étude des réactions enzymatiques lentes qui nécessitent de longues périodes d’observation. En particulier, l’application démontre la détection et l’analyse de l’activité DNase inhérente du LEI à l’aide d’un système FRET ratiométrique. Les résultats de cette étude sont présentés à la figure 2.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Cette étude démontre l’application de la FRET ratiométrique pour la détection et l’évaluation de l’activité de la DNase à l’aide d’un inhibiteur de l’élastase (LEI) faiblement nucléase - leucocytaire. Cette approche fournit une méthode pratique et quantitative pour évaluer les propriétés de la DNase des protéines et des biomolécules. Son protocole est simple et sa procédure d’analyse des données est directe et simple. Le test utilise une sonde FRET de 38 mers qui tolère de longues incuba...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Cette recherche a été financée par la subvention R01 GM148812 du National Institute of General Medical Sciences, NIH ; par des subventions R21 CA255979 du National Cancer Institute, NIH ; et des subventions R21 AG073887 et R21 AG071978 toutes deux du National Institute on Aging, NIH (toutes V.V.D.).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Plaque à 96 puits | Faucon | 353219 | |
| Sonde FRET d’ADN | L’ADN de l’IDT | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3' ; FAM &ndash ; Fluorescéine-dT ; ; TAM &ndash ; Tétraméthylrhodamine-dT. | |
| DNase II | Sigma Aldrich | D8764 | |
| Appareil photo reflex numérique EVOLT | Olympe | E500 | |
| Appareil d’électrophorèse sur gel avec alimentation électrique | Bio-Rad | ||
| LEI | Novoprotéine | CJ01 | |
| Système d’imagerie sur gel LiCOR | LiCOR | ||
| Eau sans nucléases | Invitrogen | 10977015 | |
| Gel PAGE pré-coulé | Invitrogen | EC68852 | |
| Solution tampon d’acétate de sodium pH 5,2 | Sigma Aldrich | S2899-100ML | |
| Spectrofluorimètre | Técan | Saffire 2 |
Références
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
