Nous présentons ici une étude établie dans l’iDiv Ecotron, des chambres de mésocosme terrestres avec des conditions environnementales contrôlées au-dessus et au-dessous du sol, pour étudier les effets indépendants et interactifs de l’histoire des plantes et de l’histoire du sol sur le fonctionnement écosystémique des communautés de prairies le long d’un gradient de diversité végétale.
Article de méthode
JenaTron - Une approche expérimentale pour étudier les effets de l’histoire des plantes et de l’histoire du sol sur le fonctionnement de l’écosystème des prairies
Dans cet article
Résumé
Résumé
La perte globale de biodiversité a motivé de nombreuses études qui font varier expérimentalement la richesse en espèces végétales et examinent les conséquences sur le fonctionnement des écosystèmes. De telles expériences montrent généralement une relation positive entre la biodiversité aérienne et souterraine et le fonctionnement des écosystèmes terrestres. De plus, cette relation tend à se renforcer au fil du temps, ce qui se traduit par une amélioration du fonctionnement des communautés végétales diversifiées et une réduction du fonctionnement des communautés végétales à faible diversité. On suppose que les différences dans l’assemblage des communautés multitrophiques et les interactions biotiques entre les communautés végétales à forte diversité et les communautés à faible diversité affectent la performance des plantes en modifiant la structure et la fonction de la communauté de consommateurs et en entraînant des réponses plastiques ou micro-évolutives des espèces végétales dans les communautés végétales. Pour résoudre cette interaction complexe de l’histoire de la communauté, nous avons séparé ces effets en histoire des plantes et du sol. L’histoire des plantes fait référence à toutes les réponses au niveau des plantes aux pressions de sélection abiotiques et biotiques passées subies dans leurs communautés, tandis que l’histoire des sols se rapporte à toutes les propriétés abiotiques et biotiques du sol développées en héritage des interactions plante-sol sous une diversité végétale variable. Nous avons mis en place une expérience de biodiversité dans un Ecotron, une installation de mésocosme terrestre qui permet de contrôler les conditions environnementales au-dessus et au-dessous du sol, afin de tester si le renforcement de la relation entre le fonctionnement de la biodiversité et de l’écosystème est dû à l’histoire du sol, à l’histoire des plantes ou à une combinaison des deux. Nous avons établi un gradient de diversité végétale composé de 1, 2, 3 et 6 espèces de plantes de prairie et l’avons imbriqué factoriellement avec l’histoire du sol et les traitements de l’histoire des plantes pour chaque niveau de richesse en espèces végétales. Les résultats représentatifs démontrent l’établissement réussi de traitements cibles dans l’expérience Ecotron, en observant les effets de l’histoire des plantes et du sol sur le développement initial et la croissance finale des plantes. De plus, nous fournissons une étude de cas pour l’analyse des données des variables de réponse individuelles. Nous décrivons les objectifs de recherche et les méthodes permettant d’évaluer de manière exhaustive les réponses multifonctionnelles aux traitements expérimentaux nécessaires pour finalement répondre à l’hypothèse globale.
Introduction
Au cours des trois dernières décennies, les préoccupations croissantes concernant la perte de biodiversité ont conduit à des recherches approfondies axées sur la manipulation expérimentale de la richesse des espèces végétales pour étudier son impact sur le fonctionnement des écosystèmes 1,2. Des études expérimentales ont démontré une relation positive entre la diversité végétale et le fonctionnement de l’écosystème1, qui tend à augmenter avec le temps 3,4,5,6,7,8,9. Il s’agit d’une constatation importante, car elle suggère que les résultats expérimentaux obtenus auprès de jeunes communautés récemment établies sous-estiment probablement les conséquences de la perte de biodiversité tout en soulignant l’importance de conserver les écosystèmes plus anciens et riches en espèces10.
Les changements dans les processus biotiques et abiotiques au fil du temps, qui ne peuvent être observés que dans des expériences à long terme, sont une explication possible des effets amplificateurs de la biodiversité sur le fonctionnement des écosystèmes. Une grande diversité végétale a été associée à une augmentation des concentrations de carbone et de nutriments dans le sol 3,9,11,12,13, à une complémentarité optimisée des ressources 3,8,14, à une meilleure différenciation des niches entre les plantes15, à l’accumulation de mutualistes à tous les niveaux trophiques10,16, et la diminution des menaces liées aux agents pathogènes et aux herbivores grâce à des mécanismes de régulation descendants plus stricts 17,18,19. À l’inverse, une faible diversité végétale a été associée à une pression sélective vers une augmentation des investissements dans les défenses des plantes et une utilisation moins efficace des ressources 10,20,21,22. Dans l’ensemble, on suppose que les différences dans l’assemblage des communautés multitrophiques et les interactions biotiques entre les communautés végétales à forte diversité et les communautés à faible diversité influencent la performance des plantes en modifiant la structure et la fonction des communautés de consommateurs, ainsi qu’en entraînant des changements plastiques ou micro-évolutifs des espèces végétales au niveau des communautés végétales 23,24,25,26. Pour résoudre l’interaction complexe de l’histoire de la communauté, ces effets ont été séparés en deux composantes importantes : l’histoire des plantes et l’histoire du sol. L’histoire des plantes fait référence à toutes les réponses des plantes aux pressions de sélection abiotiques et biotiques passées subies dans leurs communautés respectives, tandis que l’histoire des sols se rapporte à toutes les propriétés abiotiques et biotiques du sol développées à la suite des interactions plante-sol 23,24,27,28. Ces deux composantes sont de plus en plus reconnues comme des facteurs clés dans les effets à long terme sur la biodiversité 29,30,31.
Les études expérimentales sur le terrain fournissent des informations précieuses sur les effets à long terme de l’histoire du sol et des plantes dans des conditions environnementales réalistes et à grande échelle spatiale32,33. Cependant, les expériences sur le terrain sont soumises à divers facteurs externes non contrôlés, tels que les fluctuations météorologiques, les perturbations naturelles et les interactions avec d’autres organismes. En revanche, les expériences de microcosme à petite échelle, bien que limitées dans la capture de la complexité et de la dynamique des écosystèmes naturels, offrent un contrôle précis des facteurs abiotiques tels que la température, la lumière et l’eau34. Pour combiner les avantages des deux approches, de nouvelles installations expérimentales appelées « Ecotrons » ont vu le jour dans les années 1990 (par exemple, Ecotron à Silkwood, Royaume-Uni34 ; Ecotron à Montpellier, France35 ; Ecotron à Hasselt, Belgique36). Roy et al. (2021)37 définissent un Ecotron comme une installation expérimentale composée d’enceintes répliquées conçues pour accueillir des échantillons d’écosystème, permettant une simulation réaliste des conditions environnementales au-dessus et au-dessous du sol tout en facilitant la mesure simultanée et automatisée des processus écosystémiques. Ainsi, les écotrons permettent l’étude intégrée des processus écosystémiques complexes, des interactions multitrophiques et des fonctions écosystémiques. Ils peuvent héberger une variété d’organismes aériens et souterrains de plusieurs niveaux trophiques dans une grande série de chambres de mésocosme indépendantes, permettant un contrôle et une surveillance précis des conditions environnementales dans les systèmes aériens et souterrains37,38.
Dans cette étude, nous avons mis en place une expérience dans l’iDiv Ecotron38,39, appelée « expérience JenaTron » (Figure 1 et Figure 2), pour tester si les relations biodiversité-fonctionnement de l’écosystème (BEF) dans les communautés ayant différents niveaux de richesse en espèces végétales sont modulées par l’histoire du sol, l’histoire végétale partagée ou un effet combiné des deux. L’iDiv Ecotron est spécialement conçu pour les expériences multitrophiques sur la biodiversité, en se concentrant sur l’étude conjointe des interactions au-dessus et au-dessous du sol dans les écosystèmes terrestres 38,39,40. Il comprend 24 unités expérimentales identiques, appelées « écounités » (figures 2F, G), chacune capable d’accueillir jusqu’à quatre écosystèmes individuels dans des compartiments isolés (figure 2K), permettant la construction d’écosystèmes complexes et proches de la nature tout en minimisant l’impact de la variabilité environnementale. L’un des principaux avantages est la capacité d’établir de multiples répétitions de monolithes de sol intacts (figure 2A-C) dans des conditions environnementales contrôlées, ce qui permet de mesurer des processus écosystémiques complexes, y compris les effets de rétroaction plante-plante et plante-sol, qui sont souvent difficiles à saisir dans des expériences de microcosme à petite échelle38,39.
En Europe, les prairies semi-naturelles comptent parmi les écosystèmes terrestres les plus riches en biodiversité et les plus complexes, fournissant des services écosystémiques vitaux. Cependant, depuis le début du 20e siècle, ces prairies largement gérées sont confrontées à des menaces croissantes dues au changement d’utilisation des terres, ce qui en fait un centre clé pour la conservation de la biodiversité et la recherche. L’une des plus anciennes expériences de biodiversité au monde sur des prairies gérées de manière extensive est l’expérience d’Iéna32,33, située à Iéna, en Allemagne (50.951°N, 11.621°E, 139 m d’altitude ; site web : https://the-jena-experiment.de). Fondée en 2002, l’expérience étudie les relations entre la diversité des plantes des prairies et le fonctionnement de l’écosystème, en se concentrant particulièrement sur le cycle des nutriments et les interactions trophiques32,33. Pour l’installation de l’expérience JenaTron au sein de l’iDiv Ecotron, nous avons utilisé l’expérience basée sur les traits41 (TBE), un composant de l’expérience Jena initiée en 2010 et achevée en 2021. En 2022, 23 parcelles du TBE ont été sélectionnées pour établir un gradient de diversité végétale allant de une à six espèces, couvrant plus de 24 communautés végétales au sein de l’iDiv Ecotron. Ces communautés comprenaient six espèces de plantes des prairies, qui chevauchaient l’expérience principale de l’expérience d’Iéna et représentaient trois espèces de graminées (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) et trois espèces de plantes herbacées non graminoïdes (Leucanthemum vulgare agg., Plantago lanceolata L. et Ranunculus acris L. ; voir tableau 1 pour plus de détails sur la composition des espèces végétales et les répétitions pour chaque niveau de diversité végétale). Ces espèces, répandues et coexistant fréquemment dans les prairies européennes semi-naturelles, diffèrent en outre par leurs caractéristiques d’acquisition des ressources temporelles, ce qui les rend idéales pour des études approfondies de l’utilisation des ressources temporelles, telles que la phénologie des plantes41. Les 24 compositions végétales ont été attribuées au hasard à toutes les écounités (figure 1C), chaque écounité étant subdivisée en quatre compartiments pour tenir compte des combinaisons factorielles de l’histoire du sol et des traitements de l’histoire des plantes.
L’histoire du sol (figure 1A) a été établie en excavant un total de 96 monolithes de sol de l’expérience d’Iéna. Le sol du site est un sol de plaine inondable riche en nutriments classé Eutric Fluvisol, développé à partir de sédiments de rivière limoneux32,33. Des informations détaillées sur le pH du sol, les changements dans la texture du sol et la matière organique dans le profil de sol de l’expérience d’Iéna sont disponibles dans Lange et al. (2023)9. Sur les 96 monolithes, 48 ont été obtenus en excavant deux monolithes de chacune des 22 parcelles TBE, englobant des monocultures et des mélanges de deux et trois espèces. De plus, quatre monolithes ont été prélevés dans une parcelle de huit espèces, qui servira de mélange de six espèces dans l’expérience JenaTron. Chacun de ces 48 monolithes de sol (profondeur : 0,8 m ; diamètre : 0,5 m) abritait une communauté de résidence spécifique à la parcelle depuis 2010, représentant ainsi une histoire du sol spécifique à la communauté végétale (+SH). Les 48 monolithes restants ont été excavés à partir de quatre parcelles de sol nu qui étaient maintenues exemptes de végétation depuis le lancement de l’expérience d’Iéna en 2002, donc sans histoire de sol spécifique à la communauté végétale (-SH). De chacune des quatre parcelles à sol nu, 12 monolithes ont été excavés. Les deux traitements de l’histoire du sol (+SH ; -SH) ont été factoriellement combinés à deux traitements de l’histoire des plantes en plantant des plantes précultivées qui reflétaient la composition spécifique de la communauté végétale de l’encéphalite à une densité égale, avec des plantes individuelles espacées de 6 cm.
L’histoire des plantes (figure 1B) a été établie à l’aide de deux sources de graines distinctes pour chacune des espèces végétales sélectionnées dans le pool d’espèces de l’expérience d’Iéna : la première source était constituée de graines collectées sur des plantes qui avaient connu une histoire spécifique à la communauté depuis 2010, correspondant aux parcelles exactes de l’expérience basée sur les traits (TBE) à partir desquelles les monolithes de sol ont été excavés (+PH). Ces graines ont été récoltées de mai à septembre 2019 en fonction de la phénologie de floraison de l’espèce, en veillant à ce qu’un minimum de cinq individus par espèce et par parcelle aient été échantillonnés. Après la collecte, les graines ont été nettoyées et stockées à -20°C jusqu’au début de l’expérience JenaTron. La deuxième source de semences était constituée de graines obtenues auprès d’un fournisseur de semences commercial produisant des semences de provenances régionales. Ces graines ont été utilisées pour établir les parcelles TBE en 2010, représentant ainsi des plantes sans historique de sélection spécifique à la communauté dans le cadre de l’expérience d’Iéna (-PH) et ont été stockées à -20°C de 2010 jusqu’au début de l’expérience JenaTron. Les deux histoires des six espèces de plantes vivaces ont été pré-cultivées de février à mai 2022 dans quatre chambres de la serre de recherche iDiv située à Leipzig, en Allemagne (51.330°N, 12.393°E, 120 m d’altitude).
La combinaison factorielle de l’histoire du sol (SH) et de l’histoire de la plante (PH) à chaque niveau de richesse en espèces végétales a donné lieu à quatre traitements au sein de chacune des 24 écounités : (1) avec l’histoire du sol, avec l’histoire de la plante (+SH/+PH), (2) avec l’histoire du sol, sans l’histoire de la plante (+SH/-PH), (3) sans l’histoire du sol, avec l’histoire de la plante (-SH/+PH), et (4) sans l’histoire du sol, sans histoire de la plante (-SH/-PH ; Figure 1C). L’objectif principal de l’expérience JenaTron est d’examiner si le renforcement de la relation entre la biodiversité et le fonctionnement de l’écosystème est dû à l’histoire du sol, à l’histoire des plantes ou à une combinaison des deux. Nous émettons l’hypothèse que les communautés végétales ayant une histoire commune spécifique aux plantes et aux communautés de sol présenteront la relation BEF la plus forte, tandis qu’une exclusion expérimentale de l’histoire du sol, de l’histoire des plantes ou des deux peut avoir des effets néfastes sur les relations positives de la diversité végétale et du fonctionnement de l’écosystème. En fin de compte, si l’histoire du sol ou des plantes devait modifier la relation entre la richesse des espèces végétales et le fonctionnement de l’écosystème, cela constituerait une considération importante pour la conservation et la surveillance des communautés préservées localement et nouvellement restaurées.
Protocole
REMARQUE : Assurez-vous que l’équipement de protection individuelle approprié (p. ex., casques, gants, gilets, chaussures de sécurité, etc.) est fourni à toutes les étapes du protocole.
1. Sols : Préparation, excavation, installation
- Sources de sol, sélection et préparation des parcelles (février 2022)
- Sélectionnez deux sources de sol sur le site de terrain de l’expérience d’Iéna :
- Sélectionner 23 parcelles TBE qui ont abrité une communauté spécifique à la parcelle pendant 12 ans afin de couvrir un gradient de diversité végétale de 1, 2, 3 et 6 espèces. Désigner ces parcelles comme traitement JenaTron Experiment « avec historique du sol spécifique à la communauté végétale » (+SH).
- Sélectionner 4 placettes en terrain nu ayant les mêmes propriétés de sol que les placettes TBE (pH, teneur en sable, etc.), mais maintenues sans couvert végétal depuis 2002. Désigner ces parcelles comme traitements de l’expérience JenaTron « sans histoire spécifique à la communauté végétale » (-SH).
- Retirez délicatement les 5 cm supérieurs de terre de toutes les parcelles sélectionnées à l’aide d’une mini-pelle pour égaliser les conditions entre les traitements de l’historique du sol.
- Sélectionnez deux sources de sol sur le site de terrain de l’expérience d’Iéna :
- Excavation d’un monolithe de sol (mars 2022)
- Installez le dispositif d’extraction du monolithe sur chaque parcelle, montez un système de coupe sur un cylindre d’acier vide et insérez-le dans le dispositif d’extraction (figure 2A).
- Allumez l’appareil et le système de coupe tournera autour de la paroi extérieure du cylindre. Le système coupe une encoche dans le sol dans laquelle le dispositif d’extraction presse simultanément le cylindre en acier. En parallèle, à l’aide d’une mini-pelle, creusez une fosse sur le côté du cylindre d’acier (figure 2B).
- Une fois que le cylindre d’acier est complètement enfoui dans le sol, montez dans la fosse latérale et fixez le monolithe sur le bord inférieur du cylindre d’acier en montant une plaque inférieure temporaire et utilisez le dispositif d’extraction du monolithe pour le sortir de la fosse d’excavation (figure 2C).
- Démontez le système de coupe du cylindre en acier, montez une plaque supérieure temporaire sur le cylindre en acier, soulevez le monolithe à l’aide d’une suspension fixée à la mini-pelle et retournez-le.
- Installation du système d’aspiration d’eau (mars 2022)
- Démontez la plaque inférieure, retirez environ 5 cm de couche de sol à l’aide d’une truelle et rangez-la pour une utilisation ultérieure.
- Intégrez un anneau de sondes d’aspiration d’eau (8 bougies reliées à des tuyaux en polychlorure de vinyle [PVC]) dans de la poudre de quartz, humidifiez-la avec de l’eau déminéralisée (VE) et remplissez le fond du cylindre en acier avec la terre précédemment retirée.
- Connectez l’embout en PVC de l’anneau de la sonde d’aspiration d’eau à la plaque inférieure et boulonnez-le par la suite.
- Retournez le cylindre en acier avec la suspension de la mini-pelle à la verticale, étiquetez-le individuellement, scellez les ouvertures dans les parois du cylindre avec du ruban adhésif et enveloppez le cylindre dans une feuille de plastique pour la protéger pendant le transport.
- Transportez les monolithes de sol avec un camion jusqu’à l’iDiv Ecotron, situé à la station expérimentale du Centre Helmholtz pour la recherche environnementale (UFZ) à Bad Lauchstädt, en Allemagne (51.392°N, 11.876°E, 116 m d’altitude).
- Installation de capteurs de sol (avril 2022)
- Après le déballage, découpez des trous précis pour les capteurs horizontalement dans le monolithe de sol à l’aide d’une lame en acier personnalisée à l’aide des ouvertures de la paroi du cylindre à trois profondeurs différentes (9,5 cm, 21,5 cm et 43,5 cm).
- Placez les capteurs de sol dans les trous, utilisez une bûche de bois pour les amener dans la bonne position et boulonnez les ouvertures avec des bouchons d’étanchéité sur mesure.
- Installation des monolithes de sol dans les écounités (avril 2022)
- Soulevez avec précaution la partie technique et la partie supérieure de chaque EcoUnit de la partie inférieure (figure 2G). Transportez la partie inférieure vers les cylindres en acier abritant les monolithes de sol intacts équipés de capteurs de sol.
- Fixez chaque cylindre en acier à une suspension, soulevez-le à l’aide d’un chariot élévateur et montez un connecteur sur l’anneau de la bougie d’aspiration relié à la plaque inférieure.
- Soulever quatre monolithes de sol dans le contenant inférieur de chacune des 24 écounités (figure 2F), deux ayant le même historique du sol propre à la communauté végétale et deux n’ayant pas le même historique du sol propre à la communauté végétale (SH). Faites passer les câbles des capteurs de sol à travers les ouvertures du conteneur au sol.
- Fixez les cylindres en acier à la partie inférieure à l’aide de vis et connectez ensuite les anneaux de bougie d’aspiration d’eau de chaque cylindre au système d’aspiration d’eau de l’EcoUnit via le connecteur préalablement installé.
- Utilisez le chariot élévateur pour transporter le conteneur équipé des monolithes de terre dans un hall (24 m x 24 m).
- Replacez soigneusement les parties techniques et supérieures (avec les parois internes entre les sous-unités [figure 2K]) de chaque écounité sur la partie inférieure.
- Disposez les 24 écounités sur trois rangées, chacune composée de deux groupes de quatre écounités, formant un total de six blocs. Assurez-vous d’un entraxe de 6 m entre les blocs de chaque rangée et de 8,2 m entre les rangées. Dans chaque bloc, attribuez au hasard les quatre niveaux de diversité végétale (1, 2, 3 et 6) aux quatre écounités, en assurant une répartition uniforme des espèces dans toutes les écounités dans la mesure du possible.
2. Plantes : préparation et installation de culture
- Sélection des espèces et du matériel semencier
- Sélectionnez les six espèces végétales suivantes dans le pool d’espèces de l’expérience d’Iéna : Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) et Ranunculus acris L. (Ranunculaceae).
- Pour chaque espèce, choisissez du matériel semencier provenant de deux sources de semences différentes :
- Utilisez des graines de plantes qui poussaient sur les parcelles TBE de l’expérience d’Iéna depuis 2010 (avec historique de la plante, +PH).
- Utilisez le matériel semencier original qui a été utilisé pour lancer l’ECT en 2010 et qui provient d’un producteur de semences régional (sans historique de la plante, -PH).
- Préparation du substrat (février 2022)
- Prélever de la terre spécifique à la parcelle sur chacune des parcelles sélectionnées sur le site de terrain de l’expérience d’Iéna. Versez le sol dans des caisses en plastique de 20 L et conservez-le à 4 °C jusqu’à ce qu’il soit utilisé pour la culture des plantes.
- Tamisez chaque sol spécifique à la parcelle à travers une maille de 4 mm. Mélangez la terre des quatre parcelles au sol nu avant de les tamiser.
- Pour éliminer le biote indésirable, transférez le sable de quartz dans des récipients en acier inoxydable et chauffez-le dans une étuve de séchage pendant 4 h à 200 °C.
- Mélangez le sol spécifique à la parcelle et le sable quartzeux en volume dans un rapport de 3:1 et remplissez le mélange sol-sable dans des plaques multipots à l’aide d’une pelle en plastique (n = 152 au total).
- Étiquetez chaque plaque multipot individuellement et placez-les dans une serre avec un cycle jour-nuit de 16 h/18 °C et 8 h/12 °C, en maintenant une humidité modérée de 60 % à 70 % d’humidité relative (HR).
- Arrosez les plaques à la demande et gardez-les nues pendant deux semaines pour permettre aux banques de graines de terre de germer. Désherbez toutes les plaques deux fois pour éliminer les semis indésirables.
- Campagne de semis (mars-avril 2022)
- Déterminez l’ordre de semis en fonction du temps de germination spécifique à l’espèce comme suit :
- Semez R. acris 2 semaines avant d’autres herbes
- Semez P. lanceolata et L. vulgare 1 semaine avant les graminées A. odoratum, D. glomerata et H. lanatus.
- Semez toutes les espèces, à l’exception de R. acris, directement dans le substrat sol-sable spécifique à la parcelle (3:1) dans des plaques multipots avec deux ou trois graines par pot. Une fois la germination réussie, éclaircissez toutes les espèces en un seul semis à l’aide d’une pince à épiler en acier à ressort.
- Prétraiter les graines de R. acris dans des boîtes de Pétri sur du papier filtre humidifié avec une solution d’acide gibbérellique (1000 mg. L−1) pour rompre la dormance (figure 2D). Incuber les graines pendant 24 h.
- Transférer les graines de R. acris sur du papier filtre humidifié avec de l’eau déminéralisée (EV) jusqu’à la germination. Une fois que les graines atteignent le stade radiculaire, piquez les plants dans le substrat sol-sable spécifique à la parcelle (3:1) dans les plaques multi-pots préparées à l’aide d’une pince à épiler en acier à ressort.
- Arrosez tous les individus végétaux avec de l’eau déminéralisée à la demande et conservez-les dans la serre jusqu’au transport vers l’iDiv Ecotron (Figure 2E-H)
- Déterminez l’ordre de semis en fonction du temps de germination spécifique à l’espèce comme suit :
- Campagne de plantation (mai 2022)
- Concevoir des schémas de plantation individuels pour tous les monolithes de sol avec les caractéristiques suivantes :
- Assurer un nombre équilibré d’individus par espèce au sein des communautés végétales.
- Maintenez une distance de 6 cm entre chaque plant et son voisin.
- Répartissez aléatoirement le modèle de plantation entre les écounités, mais gardez-le constant dans les sous-unités.
- À l’aide d’un pochoir de plantation sur mesure, marquez la position exacte de chaque individu de plante sur les monolithes du sol. Utilisez des cure-dents en plastique de différentes couleurs pour le marquage, en attribuant une couleur spécifique à chaque espèce. Après le marquage, retirez le pochoir (Figure 2I).
- Plantez les plantes pré-cultivées sur tous les monolithes de sol en une semaine à l’aide de jardinières à bulbes de 4 cm de diamètre (5280 individus de plantes au total ; Figure 2J).
- Concevoir des schémas de plantation individuels pour tous les monolithes de sol avec les caractéristiques suivantes :
3. Déroulement de l’expérience
- Phase d’établissement de trois semaines (mai 2022) :
- Remplacer tous les individus qui n’ont pas survécu à la campagne de plantation dans les 2 semaines suivant la plantation initiale (n = 124 [2,35 %]).
- Allumez les lumières et réglez le régime d’éclairage sur un cycle jour-nuit de 16/8 h. Pour reproduire la durée régionale du jour à la fin du printemps et en été au début de l’expérience, simulez le crépuscule en atténuant les lumières de 100 % à 75 % d’intensité pendant une heure, puis à 0 % au cours de l’heure suivante (intensité de 100 % : ~370 μmol/(m²·s)). Simulez l’aube en inversant ce modèle de gradation.
- Égalisez l’humidité de la partie supérieure du sol à 20 % (± 3 %) en volume à l’aide d’un kit de mesure de l’humidité du sol.
- Régler l’irrigation initiale à 450 mL toutes les 12 h pour chaque sous-unité.
- Connectez des capteurs d’air et de sol pour surveiller la température et l’humidité tout au long de l’expérience.
- Phase expérimentale (juin-octobre 2022)
- En suivant la saisonnalité naturelle, raccourcissez la durée du jour d’une heure complète toutes les 2 semaines d’août à octobre pour tenir compte de la durée régionale des jours de la fin de l’été à l’automne.
- Augmentez l’irrigation initiale à 650 mL toutes les 12 h en juillet et à 750 mL toutes les 12 h en août, en ajustant les besoins en eau de la plante.
- Éliminez constamment les semis indésirables au stade du cotylédon à l’aide d’une pince à épiler pour maintenir la densité des plantes tout en minimisant les perturbations de la structure du sol.
- Conformément à la gestion standard des prairies extensives, effectuez deux récoltes de biomasse aérienne, en coupant les plantes à 3 cm au-dessus de la surface du sol avec des ciseaux.
Résultats
Pour fournir un premier aperçu de l’efficacité de cette approche dans l’essai des effets indépendants et interactifs de l’histoire des plantes et du sol sur les relations entre la biodiversité et le fonctionnement de l’écosystème, nous avons d’abord évalué des photographies de deux écounités représentatives après la phase d’établissement de 3 semaines de l’expérience Jenatron, où les effets du traitement sont rapidement devenus visibles (figure 3). Outre les différences spécifiques au traitement dans la hauteur et la couleur de la communauté végétale (Figure 3A), nous avons également reconnu des différences spécifiques au traitement dans la période de floraison de R. acris. Plus précisément, les plantes cultivées à partir de graines sans histoire végétale semblaient avoir une floraison plus précoce que les plantes cultivées à partir de graines ayant l’histoire végétale spécifique à la communauté de l’expérience d’Iéna (figure 3B).
Pour évaluer si les communautés nouvellement établies dans l’iDiv Ecotron reflètent fidèlement les communautés de terrain d’origine, une analyse comparative de la hauteur des plantes végétatives spécifiques à l’espèce a été effectuée comme indicateur du développement final de la plante entre l’expérience JenaTron et les parcelles TBE. Dans l’expérience JenaTron, la hauteur de la plante a été déterminée comme la valeur moyenne de la feuille végétative la plus élevée de trois individus par espèce végétale dans chacune des 24 communautés et combinaisons de traitement juste avant la première campagne de récolte fin juillet 2022. Dans la TBE, la hauteur végétative de la plante a été déterminée comme la valeur moyenne de la feuille végétative la plus élevée de trois individus par espèce végétale et par parcelle en juillet 2012. Les mesures de la hauteur des plantes de l’iDiv Ecotron présentent une forte corrélation avec celles des parcelles de terrain de l’expérience d’Iéna (figure supplémentaire 1).
Afin de fournir une étude de cas supplémentaire pour l’analyse des données, la hauteur végétative de la plante dans l’iDiv Ecotron a été étudiée plus en détail. Nous nous sommes concentrés sur des analyses au niveau des espèces et des communautés et avons testé si l’histoire des plantes, l’histoire du sol et la diversité des plantes influencent la croissance végétative des plantes. Pour cela, nous avons utilisé des modèles linéaires à effets mixtes (LMM) et résumé les résultats via ANOVA (somme des carrés de type I ; pour des résultats ANOVA détaillés, voir le tableau supplémentaire 1). Au niveau de la parcelle, les variables de réponse étaient la hauteur végétative moyenne de la plante et le coefficient de variation de la hauteur de la plante (CV = écart-type/moyenne 100). Les effets fixes comprenaient la diversité végétale (numérique), les traitements de l’histoire des plantes et du sol, et leurs interactions. Les effets aléatoires comprenaient l’EcoUnit imbriqué dans le bloc de hall Ecotron. Au niveau des espèces, nous avons également inclus les espèces et leur interaction avec la diversité végétale et les traitements de l’histoire en termes fixes. Les transformations des données (logarithme de la hauteur de la plante et racine carrée de la hauteur (CV) ont permis de s’assurer que les hypothèses du modèle étaient respectées. Les analyses ont été effectuées à l’aide de R (Version4.3.1)42 et du package nlme pour les LMM43. Les résultats ont montré des différences significatives entre les espèces dans la hauteur des plantes, les graminées étant plus hautes que les plantes herbacées non graminoïdes (figure 4, figure supplémentaire 2). Chez toutes les espèces, l’histoire du sol a eu un effet positif sur la hauteur de la plante (F(1,66) = 11,11, P = 0,001), tandis que l’histoire et la diversité de la plante n’ont pas eu d’impact significatif (F(1,66) = 0,22, P = 0,64 et F(1,17) = 1,52, P = 0,23, respectivement ; Figure 4). À l’échelle de la communauté, la diversité végétale n’a pas eu d’effet sur la hauteur (F(1,17) = 0,01, P = 0,91 ; Graphique 5A) mais une augmentation significative de la hauteur des plantes CV au sein des communautés (F(1,17) = 14,29, P = 0,002 ; Figure 5B). Aucun effet significatif de l’historique de la plante ou du sol n’a été observé sur la hauteur de la plante (F(1,68) = 0,55 ; P = 0,46 ; F(1,68) = 0,09, P = 0,76 ; Figure 5). Nous avons téléchargé les données et le script R dans la base de données de l’expérience d’Iéna (https://doi.org/10.25829/QN9R-J839).

Figure 1 : Mise en place de l’expérience JenaTron. (A) L’histoire du sol (SH) a été établie en excauvant 96 monolithes de sol intacts de l’expérience d’Iéna (JE), dont la moitié (n = 48) a été obtenue à partir de 23 parcelles qui abritaient une communauté spécifique à la parcelle pendant 12 ans (+SH), tandis que l’autre moitié (n = 48) a été obtenue à partir de quatre parcelles de sol nu maintenues sans végétation depuis le début de l’expérience d’Iéna en 2002 (-SH). (B) L’histoire des plantes (PH) a été établie à l’aide de deux sources de graines pour chacune des six espèces végétales : les graines récoltées sur des plantes cultivées depuis 2010 sur les mêmes parcelles, où les monolithes ont été exhumés dans l’expérience d’Iéna (+ PH), et les graines originales utilisées pour semer ces communautés sur le terrain en 2010 (-PH). (C) L’histoire des plantes et l’histoire du sol ont été croisées indépendamment pour chaque composition à différents niveaux de diversité végétale (1, 2, 3 et 6), ce qui a donné lieu à quatre traitements dans chaque écounité de l’iDiv Ecotron : (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH et (4) -SH/-PH. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 2 : L’iDiv Ecotron à la station de recherche du Centre Helmholtz pour la recherche environnementale (UFZ) à Bad Lauchstädt, Allemagne. (A) Équipement d’excavation de monolithe de sol sur le terrain, (B) Excavation de monolithe de sol sur le terrain, (C) Fosse d’excavation sur le terrain, (D) Préparation de matériel de semence de Ranunculus acris dans des boîtes de Petri sur du papier filtre humidifié avec une solution d’acide gibbérellique dans la serre, (E) Pré-culture de plantes avec un substrat de sol spécifique à la parcelle dans des plaques multi-pots dans la serre, (F) EcoUnits dans le hall de l’iDiv Ecotron, (G) Représentation schématique d’une unité expérimentale (« EcoUnit ») avec l’équipement technique (adapté d’Eisenhauer et al. (2019)23 et de Schmidt et al. (2021)38), (H) Plaques avec tous les individus à planter dans l’expérience JenaTron) après le transport vers l’iDiv Ecotron, (I) Marquage spécifique à l’espèce des positions de plantation de tous les individus végétaux sur un monolithe de sol réalisé à l’aide d’un pochoir de plantation, (J) Plantation d’individus végétaux sur un monolithe de sol à l’aide de jardinières à bulbes, (K) Quatre lysimètres dans une écounité à parois intérieures. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 3 : Deux représentants des 24 écounités, chacun abritant une communauté dans toutes les combinaisons de traitement de l’histoire des plantes et du sol. (A) Écounité avec un mélange de 3 espèces (A. odoratum, H. lanatus et P. lanceolata) avec des différences spécifiques au traitement dans la hauteur et la couleur de la végétation de la communauté. (B) Écounité avec une monoculture de R. acris, indiquant des différences de période de floraison en fonction de l’histoire de la plante. Veuillez cliquer ici pour voir une version agrandie de cette figure.
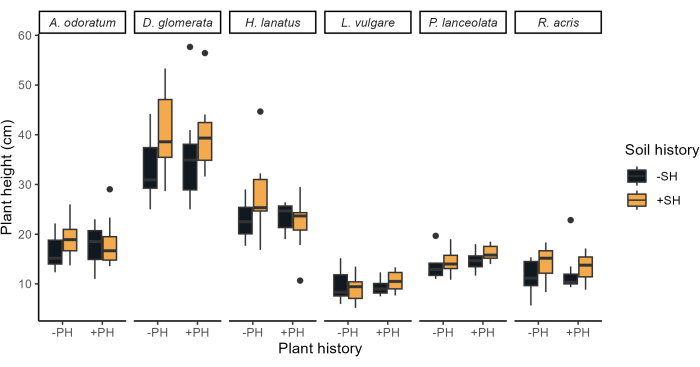
Figure 4 : Effets de l’histoire des plantes et du sol sur la hauteur végétative des six espèces de plantes des prairies avant la première récolte en juillet 2022. Les espèces sont classées par ordre alphabétique au sein de groupes fonctionnels (graminées suivies de plantes herbacées non graminoïdes). Les traitements de l’histoire des plantes (+PH/-PH) se trouvent sur l’axe des abscisses, et l’historique du sol (+SH/-SH) est codé par couleur (jaune/noir) dans les boîtes à moustaches. Veuillez cliquer ici pour voir une version agrandie de cette figure.
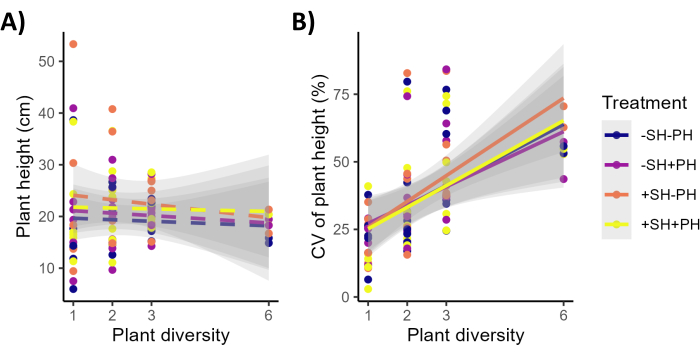
Figure 5 : Effets de la richesse en espèces sur la moyenne des communautés et la variation de la hauteur végétative des plantes. (A) Moyenne des communautés. (B) Variation de la hauteur végétative de la plante. (+PH/-PH) pour l’histoire de la plante, (+SH/-SH) pour l’histoire du sol. La variation de hauteur de la plante (CV) est indiquée par sous-unité. Les lignes pointillées représentent les effets non significatifs et les lignes continues représentent les effets significatifs sur la diversité végétale. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Tableau 1 Communautés végétales dans l’expérience JenaTron. Monocultures de toutes les espèces végétales sélectionnées (n = 6) ; mélanges de 2 espèces (n = 9) ; Mélanges de 3 espèces (n = 7) tous de compositions différentes ; et deux répliques identiques du mélange de 6 espèces (n = 2). Veuillez cliquer ici pour télécharger ce tableau.
Figure supplémentaire 1 : Hauteur moyenne des plantes de l’espèce. Hauteur moyenne des plantes des espèces dans les parcelles (A) de l’expérience JenaTron (juillet 2022) et sur le terrain (B) placettes TBE (juillet 2012). Seules les données du traitement avec l’historique des plantes et l’historique du sol ont été incluses dans le panneau A. Il existe une corrélation significative entre la hauteur de la plante dans l’expérience JenaTron et les parcelles de terrain (corrélation de Pearson r(49) = 0,45, p = 0,0008). Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 2 : Effets des traitements de l’histoire des plantes et du sol sur la hauteur végétative des six espèces végétales à différents niveaux de diversité végétale (RS). Les symboles de légende +PH et -PH représentent les traitements avec et sans historique des plantes, tandis que les symboles +SH et -SH signifient les traitements avec et sans historique du sol, respectivement. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1 : Résultats de l’ANOVA à partir de modèles linéaires à effets mixtes évaluant les effets de la diversité végétale (richesse en espèces), de l’histoire du sol et de l’histoire des plantes sur la hauteur des plantes au niveau de l’espèce et de la parcelle. Les valeurs F et p sont indiquées pour chaque terme. Remarque : numDF et denDF représentent le numérateur et le dénominateur en degrés de liberté pour chaque terme du modèle. Les valeurs p < 0,05 suggèrent un effet statistiquement significatif sur la hauteur de la plante. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2 : Mesures en surface et sous terre, variables de réponse et méthodes. Un éventail de mesures aériennes et souterraines, de variables de réponse et de méthodes menées dans le cadre de l’expérience JenaTron pour étudier les effets indépendants et interactifs de l’histoire des plantes et de l’histoire du sol sur les relations entre les BEF et les écosystèmes dans leur ensemble. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Avec l’expérience JenaTron, nous proposons une approche expérimentale complémentaire au sitede terrain 32,33 de l’expérience d’Iéna afin d’améliorer notre compréhension mécaniste des relations entre les BEF. L’expérience de terrain nous permet d’étudier les effets à long terme de l’histoire du sol et de l’histoire des plantes sur le fonctionnement de l’écosystème dans des conditions environnementales réalistes, avec de grandes parcelles non perturbées permettant des mesures répétées sur de nombreuses années. Les combinaisons sélectionnées au hasard d’espèces végétales à partir d’un grand nombre d’espèces le long d’un gradient de diversité végétale bien établi, allant des monocultures jusqu’à 60 espèces, aident à identifier les effets de diversité en excluant autant que possible les effets spécifiques à l’espèce32,33. Cependant, l’expérience de terrain, qui fait ici explicitement référence à l'« expérience ΔBEF » dans le cadre de l’expérience d’Iéna (pour plus de détails, voir Vogel et al. (2019)29), est limitée dans l’étude de l’histoire du sol et de l’histoire des plantes complètement indépendantes l’une de l’autre et des influences potentielles de divers facteurs externes, tels que les fluctuations météorologiques, les perturbations naturelles et les interactions avec d’autres organismes29. À ce stade, l’approche complémentaire de l’utilisation des expériences Ecotron entre au centre de la recherche BEF. Les expériences Ecotron représentent un lien important entre les expériences en microcosme à petite échelle et à court terme, qui n’étudient que quelques-unes, voire une seule, et réduisent ainsi la grande complexité des expériences sur le terrain ou même dans le monde réel34,38. Par conséquent, l’objectif principal des expériences Ecotron n’est pas d’imiter toute la complexité de la nature, mais plutôt de créer des écosystèmes simplifiés mais biologiquement significatifs. Cela permet de mieux comprendre de nombreux processus et interactions biologiques qui se produisent dansle monde réel, mais bien sûr pas tous. De plus, les systèmes fermés d’un Ecotron permettent d’étudier des flux et des processus, qui ne sont souvent pas facilement étudiés sur le terrain35.
Diverses modifications de la technique expérimentale ont été utilisées dans des études précédentes, soulignant l’adaptabilité significative de l’installation iDiv Ecotron. Par exemple, l’expérience « Insect Armageddon »44, menée en 2018, a consisté à reconfigurer les écounités en supprimant les parois intérieures au-dessus du sol et la dissection souterraine à l’aide de cylindres d’acier. Au lieu de cela, les conteneurs souterrains ont été entièrement remplis d’un mélange de sol et de sable, ce qui a facilité l’établissement de communautés de prairies comprenant 12 espèces végétales européennes sur une surface de sol de 1,5 m2 par écounité. Cette conception expérimentale a permis d’introduire deux niveaux d’abondance distincts d’invertébrés aériens, ce qui a permis aux chercheurs d’étudier les impacts du déclin de la biomasse des invertébrés sur les fonctions et les services écosystémiques au sein des écosystèmes de prairies d’Europe centrale. Un autre exemple illustratif est l’expérience « EcoLux », menée en 2020, qui a démontré une modification du régime lumineux pour étudier les effets de la pollution lumineuse nocturne sur la diversité et les performances des plantes45 ainsi que son influence sur les communautés et les fonctions du sol46. Pour l’avenir, le potentiel de modifications supplémentaires reste important. La prochaine expérience « ResCUE », prévue pour 2026, vise à examiner les relations entre la diversité végétale et la stabilité des écosystèmes dans des conditions climatiques extrêmes26. Cette expérience mettra en œuvre une sécheresse chaude standardisée, une condition environnementale difficile à reproduire dans des environnements naturels, en simulant une réduction des précipitations parallèlement à une augmentation des températures sur un gradient de diversité végétale de prairie établi dans l’iDiv Ecotron. L’étude se concentrera sur l’évaluation de la résistance et du rétablissement de multiples fonctions écosystémiques en réponse à l’événement climatique extrêmecontrôlé 26.
Cependant, l’utilisation des installations Ecotron pour faire le lien entre les expériences sur le terrain et les expériences en microcosme à petite échelle comporte également des limites, telles qu’une échelle spatiale encore relativement petite, un faible nombre de répétitions, une complexité biologique plus faible et le manque de représentation de la variabilité climatique naturelle37. De plus, l’installation iDiv Ecotron ne peut pas simuler toutes sortes de scénarios climatiques, tels que les hivers, ce qui limite sa capacité à étudier les plantes individuelles dans un cycle annuel réaliste sur plusieurs générations. Par conséquent, comme nous l’avons déjà mentionné, il est très important de considérer les études Ecotron comme des approches de recherche complémentaires qui doivent finalement être considérées en combinaison avec les résultats d’autres approches expérimentales37. Néanmoins, l’installation iDiv Ecotron nous offre l’occasion unique d’étudier des monolithes de sol intacts dans des conditions environnementales contrôlées, de croiser orthogonalement des plantes ayant des histoires spécifiques à différentes communautés végétales avec des sols ayant des histoires spécifiques à différentes communautés végétales et d’étudier leurs effets sur le fonctionnement de l’écosystème le long d’un gradient de diversité végétale, ce qui est difficile à réaliser dans des conditions de terrain23, 35. Planche à billets De plus, la technique permet d’étudier les plantes dans leur ensemble, à la fois au-dessus et au-dessous du sol, dans des conditions environnementales contrôlées, ce qui n’est pas facilement réalisable sur le terrain. Enfin, dans l’expérience JenaTron, les communautés végétales plantées (plutôt que semées) ont été établies pour assurer des densités totales égales de plantes, chaque espèce étant représentée dans des proportions égales. En revanche, dans les communautés semées, les espèces s’établissent souvent à des rythmes différents, et certaines espèces cibles peuvent ne pas s’établir complètement ou rester en très faible abondance.
Pour garantir la reproductibilité du protocole présenté, plusieurs étapes critiques doivent être méticuleusement prises en compte lors de l’exécution : (1) Excavation de monolithes de sol : L’un des principaux avantages de l’installation iDiv Ecotron est sa capacité à établir un nombre substantiel de réplicats de monolithes de sol intacts dans des conditions environnementales contrôlées. Pour garantir l’intégrité des monolithes de sol, il est essentiel de maintenir des conditions de terrain optimales pour l’extraction des monolithes de sol. Plus précisément, une humidité excessive du sol peut entraîner un compactage de la colonne de sol, tandis que les sols trop secs ou gelés peuvent entraîner la formation de fissures. Dans les cas où le monolithe est compromis en raison de ces facteurs, il doit être jeté, ce qui nécessite une répétition du processus d’excavation. (2) Sélection des espèces : Le protocole décrit utilise six espèces de plantes de prairie de l’EBT, qui ont été sélectionnées en fonction du chevauchement avec l’expérience principale, d’une représentation équilibrée des graminées et des plantes herbacées non graminoïdes, et de la possibilité d’étudier différentes stratégies d’utilisation des ressources (par exemple, la phénologie des plantes)41. Pour une expérience sur la biodiversité, six espèces représentent un faible nombre d’espèces, et la sélection d’autres espèces possédant d’autres combinaisons de traits pourrait conduire à des résultats expérimentaux différents et doit être soigneusement examinée. (3) Densité de plantes et proportions égales de toutes les espèces : Un avantage notable de la configuration de l’expérience JenaTron est que les communautés végétales sont établies avec des densités totales égales de plantes et que chaque espèce est représentée par le même nombre d’individus. Assurer une densité de plantation constante et des proportions de plantation égales est crucial pour la reproductibilité expérimentale, car cela évite les effets confondants associés à un établissement différentiel d’espèces individuelles. Par conséquent, un contrôle précis de la densité des plantes est essentiel pour préserver la conception expérimentale et garantir des résultats fiables.
Après avoir lancé l’expérience JenaTron en suivant le protocole en mettant l’accent sur la prise en compte des étapes les plus critiques mentionnées, des effets de traitement perceptibles sur la hauteur de la communauté végétale, la couleur et la période de floraison sont rapidement apparus. Des analyses comparatives ultérieures des hauteurs de plantes végétatives spécifiques à l’espèce entre JenaTron et TBE ont clairement confirmé que les communautés établies dans l’iDiv Ecotron ressemblent effectivement aux communautés d’origine sur le terrain. Afin de fournir une étude de cas pour l’analyse des données, nous avons analysé plus en détail la hauteur végétative de la plante dans l’expérience JenaTron. L’analyse de la hauteur des plantes végétatives spécifiques à chaque espèce dans le JenaTron a confirmé l’établissement réussi de toutes les espèces cibles et a révélé des différences significatives entre les espèces et les groupes fonctionnels. Ce résultat est attendu, car les graminées sont connues pour pousser plus haut que les autres groupes fonctionnels dans l’expérience d’Iéna47. Un effet positif significatif de l’histoire du sol a été détecté chez toutes les espèces, indiquant que les conditions préalables du sol façonnent la croissance des plantes dans l’Ecotron, potentiellement en raison des effets de rétroaction positifs des sols qui abritaient auparavant une communauté végétale (indépendamment du niveau de diversité) et de la rétroaction négative des sols exempts de végétation. Les propriétés biotiques et abiotiques de l’histoire du sol semblent différer, ce qui donne aux plantes des sols avec une histoire spécifique à la communauté végétale un avantage sur les plantes des sols sans cette histoire respective, car la hauteur des plantes joue un rôle important dans leur capacité à rivaliser pour la lumière et est donc un trait vital pour le gain de carbone48. En revanche, aucun effet significatif de l’histoire végétale spécifique à la communauté végétale sur la hauteur végétative moyenne n’a été trouvé, ce qui implique que les propriétés du sol peuvent avoir une influence plus forte que les sources de graines dans les conditions environnementales de l’Ecotron. Cependant, cette hypothèse doit être testée de manière holistique en étudiant la multitude de fonctions écosystémiques qui ont été mesurées dans l’expérience JenaTron.
Ni l’analyse spécifique à l’espèce ni à la communauté n’a fourni de preuve que la richesse en espèces affecte la hauteur végétative moyenne des plantes, contrairement aux résultats précédents de l’expérience sur le terrain, où la hauteur des plantes augmentait avec des espèces plus élevées49 probablement en raison d’une concurrence lumineuse plus forte47,50. Une plus grande complémentarité entre les espèces dans des communautés plus diversifiées peut conduire à des densités de plantes plus élevées51, ce qui pourrait améliorer davantage la croissance de la hauteur des plantes52. L’absence d’effets de la diversité végétale sur la hauteur des plantes dans l’expérience JenaTron pourrait donc être due à l’absence de variation de la densité des plantes dépendante de la biodiversité, ce qui indique l’importance potentielle de ce mécanisme pour les performances individuelles des plantes dépendantes de la diversité dans le monde réel52. Néanmoins, la richesse en espèces a eu un effet significatif sur la hauteur des plantes CV, suggérant que la diversité végétale augmente la complexité structurelle de la végétation, ce qui est cohérent avec les études liant la diversité à des canopées aériennes plus complexes 49,50,52,53,54.
L’ensemble des résultats confirme l’établissement réussi des traitements cibles de l’expérience JenaTron, fournissant un premier aperçu de l’efficacité de notre approche par la manifestation rapide d’effets thérapeutiques significatifs (Figure 3, Figure 4 et Figure 5). De plus, l’analyse comparative de la hauteur des plantes végétatives spécifiques à l’espèce indique que les communautés nouvellement établies dans l’iDiv Ecotron ressemblent effectivement aux observations originales sur le terrain. L’analyse détaillée de la hauteur végétative de la plante sert d’étude de cas pour l’analyse des données et la visualisation de variables de réponse uniques. Cependant, cette étude de cas met en évidence les limites de se concentrer sur une seule variable de réponse dans l’examen holistique de l’hypothèse globale, à savoir si le renforcement de la relation entre la biodiversité et le fonctionnement de l’écosystème au fil du temps est dû à l’histoire du sol, à l’histoire des plantes ou à une combinaison des deux. Cela souligne l’importance de notre approche hautement collaborative pour étudier les effets indépendants et interactifs de l’histoire des plantes et de l’histoire des sols sur les relations BEF23. Onze sous-projets de l’unité de recherche expérimentale d’Iéna (FOR 5000) ont travaillé en étroite collaboration dans le cadre de l’expérience JenaTron, mesurant un large éventail de variables de réponse dans divers domaines de recherche, tels que la microbiologie, l’écologie chimique, la phénologie, la détection proximale, la génétique, l’épigénétique, l’écologie des sols et la modélisation des réseaux trophiques. Cet effort d’intégration vise à (1) séparer les effets de l’histoire des plantes des effets de l’histoire du sol sur plusieurs niveaux trophiques et fonctions écosystémiques, (2) étudier les effets spécifiques aux espèces végétales et aux interactions à tous les niveaux de richesse des espèces végétales, et (3) explorer les mécanismes sous-jacents des relations BEF23(Tableau supplémentaire 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Des remerciements exceptionnels vont à L. Boockmann, T. Meier, N. Naderi et L.-M. Walter pour leur soutien en tant qu’assistants de recherche pendant toute la durée de l’expérience JenaTron. Un grand merci à tous les employés de l’Umwelt-Geräte-Technik GmbH (UGT) pour leur coopération professionnelle et chaleureuse lors de l’excavation du monolithe de sol dans le cadre de l’expérience d’Iéna. Nous tenons également à remercier C. Lauterwasser, H.-C. Schulz et R. Widuwils pour leur soutien à l’UGT dans l’excavation de monolithes de sol. Un grand merci au personnel technique de l’expérience d’Iéna S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze et H. Scheffler pour leur soutien sur le terrain et leur aide diligente lors de la campagne de plantation à l’iDiv Ecotron. Nous sommes reconnaissants à I. Merbach et au personnel technique de la station de recherche du Centre Helmholtz pour la recherche environnementale (UFZ) à Bad Lauchstädt, en particulier à O. Bednorz et K. Kirsch, pour leur soutien vital. Nous tenons à remercier A.Q. Barth et R. Altmann pour leur excellente collaboration dans la serre iDiv. Un grand merci à S. Haenzel, A. Lochner et A. Zeuner pour leur aide indispensable dans l’administration, l’organisation et le travail de laboratoire. Nous remercions les boursiers Mercator J. Cavender-Bares, F. Isbell, L. Mommer et K. Mueller, ainsi que l’proche collaborateur B. Schmid et les chercheurs principaux U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth et J. Wolf pour leur importante contribution à la conception, à la conception et à la réalisation de l’expérience JenaTron. Enfin, nous remercions la Fondation allemande pour la recherche (DFG) pour son soutien financier (FOR 5000) ainsi que le Centre allemand pour la recherche intégrative sur la biodiversité (iDiv, financé par la Fondation allemande pour la recherche [DFG-FZT 118, 202548816]), l’Université de Leipzig, l’Université Friedrich Schiller d’Iéna et l’Institut Max Planck de biogéochimie d’Iéna pour leur soutien financier et logistique.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Jardinière à bulbes ;( 4 cm de diamètre) | Kent & | Quincaillerie | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ source=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE ; |
| Connecteur bougie d’aspiration | Umwelt Gerä ; te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Bac de culture ;( sans drainage) | Bonsaï-magasin | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html ; |
| Eau déminéralisée (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Ruban adhésif | Quincaillerie | T-Rex | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE ; |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Boîtes en plastique (20 L) | Emballage Auer | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Papier filtre (150 mm de diamètre) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 ; |
| Chariot élévateur | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Acide gibbérellique ;( 90 %) ; | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 ; |
| Pichets doseurs ;( 3000 mL) | Hü ; | quincaillerie | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ ; |
| Pichets doseurs ;( 5000 mL) | Hü ; | quincaillerie | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ ; |
| Tamis métalliques (mailles de 4 mm) ; | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ ; |
| Mini-pelle | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Bacs à mortier ;( 90 L) | Quincaillerie | Gripline | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ ; |
| Assiettes multipots (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 ; |
| Boîtes de Pétri (150 mm de diamètre) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 ; |
| Pochoir de plantation (sur mesure) | UFZ | n.a. ; | Pochoir de plantation fabriqué par l’atelier du Centre Helmholtz pour la recherche environnementale (UFZ), Leipzig, Allemagne, spécialement pour la plantation des cylindres métalliques iDiv Ecotron. |
| Feuille de plastique | Cargo Point | quincaillerie | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ ; |
| Pelles en plastique | Hü ; | quincaillerie | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ ; |
| Pulvérisateur à pression (1500 mL) | Bü ; rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 ; |
| Poudre | de quartz Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Sable de quartz HQS (taille 0,3 - 0,8 mm) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 ; |
| Bouchons d’étanchéité | Umwelt Gerä ; te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Matériel de semences | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Kit de mesure de l’humidité du sol (ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Extraction de monolithe de sol dispositif | Umwelt Gerä ; te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Capteurs de sol ;( SMT-100) ; | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target ; |
| Pince à épiler en acier à ressort (105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 ; |
| Lame en acier inoxydable (sur mesure) | UFZ | n.a.Lame | en acier inoxydable fabriquée par l’atelier du Centre Helmholtz pour la recherche environnementale (UFZ), Bad Lauchstä ; dt, Allemagne, spécifiquement pour l’insertion de capteurs de sol dans les cylindres métalliques iDiv Ecotron. |
| Cylindre en acier inoxydable | Umwelt Gerä ; te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Étiquettes autocollantes (12 cm x 2 cm) ; | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Suspension | Umwelt Gerä ; te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Plaque supérieure/inférieure temporaire | Umwelt Gerä ; te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Cure-dents ; | Bü ; roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096A8AA& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONm05 Iwo-CRoCfWsQAvD_BwE |
| Quincaillerie | Trowel | Kaufmann | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| Camion ; | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term& gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& vehicle Type=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& pickupYe ar=2024& pickupMonth=12& prise en charge Jour=11& abandonAnnée=2024& dropoff Mois=12& dropoffDay=18& pickup Heure=10& pickupMinute=00& dépose Heure=18& dépôtMinute=00& conducteur Âge=26& countryOfResidence=DE |
| Pince à épiler | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| Sondes d’aspiration d’eau | Umwelt Gerä ; te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Bois pour le journal de capteur | Konsta | hardware store | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Références
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Réimpressions et autorisations
