Ce protocole fournit une description complète d’une méthode permettant l’enregistrement simultané des signaux calciques provenant des neurones et des astrocytes à travers plusieurs régions cérébrales liées à la mémoire et démontre son application dans un paradigme d’apprentissage et de comportement mémoire.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Une méthode de photométrie à fibres bicolores pour enregistrer l’activité astrocyte-neurone dans plusieurs régions cérébrales lors de l’apprentissage et des comportements de mémoire
Dans cet article
Résumé
Résumé
L’apprentissage et la mémoire dépendent de manière cruciale de la coordination entre les neurones et les astrocytes à travers les régions réparties du cerveau. Les astrocytes modulent la transmission synaptique et l’excitabilité neuronale, contribuant ainsi à l’encodage et à la consolidation de l’information dans les circuits liés à la mémoire. Les corrélations intra- et interrégionales entre astrocytes et neurones sont cruciales pour comprendre la mémoire et les troubles cognitifs. Cependant, la surveillance simultanée de l’activité astrocytique et neuronale dans plusieurs régions pendant le comportement mémoire reste techniquement un défi. Ici, une méthode est présentée facilitant l’enregistrement simultané de ces signaux calciques provenant des astrocytes et des neurones dans plusieurs régions liées à la mémoire. Cette stratégie combine des indicateurs de calcium génétiquement codés à double couleur spécifiques à la cellule (GECI), un système de photométrie de fibres multicanales, et un suivi comportemental synchronisé pour assurer un suivi en temps réel de l’activité neuronale et astrocytaire dans le cortex préfrontal médial (mPFC), la région CA1 hippocampique et le cortex entorhinal médial (MEC). Les résultats représentatifs démontrent une dynamique coordonnée du calcium entre les régions et les types cellulaires lors de la tâche de reconnaissance d’objets. Cette méthode fournit un cadre expérimental reproductible et efficace pour étudier les interactions astrocyte–neurone sous-jacentes aux processus d’apprentissage et de mémoire.
Introduction
L’apprentissage et la mémoire sont des processus cognitifs fondamentaux qui impliquent l’acquisition, le stockage et la récupération d’informations, essentiels à la formation de comportements adaptatifs. Ces processus sous-tendent une variété de fonctions complexes, telles que la navigation spatiale, la reconnaissance d’objets, l’association contextuelle et la prise de décision. De plus, les maladies dysfonctionnelles cognitives, notamment la maladie d’Alzheimer, les maladies cognitives liées à l’âge et les traumatismes crâniens, présentent des anomalies dans la formation de lamémoire 1,2,3. Par conséquent, une compréhension complète des bases neuronales de l’apprentissage et de la mémoire nécessite d’élucider l’interaction dynamique entre différents types cellulaires. Cette interaction se produit à l’intérieur et à travers ces régions lors de l’encodage et de la récupération de l’information.
Traditionnellement, on pensait que la formation de la mémoire était principalement déterminée par l’activité neuronale. Cependant, des recherches approfondies ont démontré que les astrocytes régulent significativement l’encodage, la consolidation et la récupération de l’information. Ils y parviennent en modulant la transmission synaptique, régulant l’excitabilité neuronale, libérant des gliotransmetteurs et fournissant un soutienmétabolique 4,5,6,7,8. Les astrocytes interagissent dynamiquement avec les neurones, et la communication bidirectionnelle est collectivement appelée « réseau astrocyte-neurone »9,10,11. Par conséquent, comprendre les interactions coordonnées entre les astrocytes et les neurones est crucial pour comprendre les mécanismes cellulaires et de réseau de l’apprentissage et de la mémoire.
L’apprentissage et la mémoire dépendent de l’intégration dynamique de l’information à travers plusieurs régions du cerveau. Les interactions entre astrocytes et neurones ne se limitent pas aux microcircuits locaux mais s’étendent à travers les régions cérébrales distribuées impliquées dans la mémoire, notamment le cortex préfrontal médial (mPFC), la région CA1 hippocampique et le cortex entorhinal médial (MEC). Le mPFC a été impliqué dans la consolidation de la mémoire et la régulation de la mémoire à long terme ; CA1 est au cœur de l’encodage et de la réactivation épisodique de la mémoire ; et le MEC sert de centre d’intégration spatiale et multimodale de l’information, fournissant des informations essentielles au circuithippocampe-cortical 12,13,14,15,16. Les preuves accumulées suggèrent que les astrocytes de ces régions participent à des dynamiques coordonnées interrégionales avec les neurones, jouant des rôles clés dans le flux d’information et les transitions d’état pendant l’apprentissage et la mémoire17,18.
Bien que la reconnaissance de la fonction synergique des astrocytes et des neurones dans le traitement de la mémoire ait augmenté, un défi technique important demeure de surveiller simultanément l’activité calcique dans les astrocytes et les neurones à travers plusieurs régions cérébrales associées à la mémoire lors du comportement des animaux en mouvement libre. L’imagerie à deux photons offre une imagerie à haute résolution spatiale mais est limitée par la profondeur et la fixation de la tête19,20 ; L’électrophysiologie multicanal permet des enregistrements à haute résolution temporelle mais manque de spécificité de type cellulaire et ne peut pas distinguer les signaux calciques astrocytiques. Ainsi, une méthode a été développée permettant d’enregistrer simultanément les signaux calciques astrocytaires et neuronaux à travers plusieurs régions cérébrales liées à la mémoire chez des souris en mouvement libre. Les indicateurs de calcium génétiquement codés (GECI) rapportent des changements conformationnels intracellulaires de la dynamique de Ca2+ à Ca 2+ dépendants de CaM/M13 qui modulent la fluorescence des fluorophores génétiquement codés. Les approches GECI bicolores exploitent des indicateurs spectralement séparables, tels que des capteurs de calcium verts et rouges, ainsi que des promoteurs spécifiques à chaque type cellulaire pour permettre l’enregistrement simultané de l’activité astrocytaire et neuronale de Ca2+ dans la même région cérébrale. En combinant des GECI bicolores spécifiques à chaque type cellulaire (GCaMP6f et jRGECO1a) et un système de photométrie multi-canal à fibres, la surveillance en temps réel de l’activité calcique dans les neurones et astrocytes dans les mPFC, CA1 et MEC a été réalisée. De plus, en prenant la nouvelle tâche de reconnaissance d’objets (NOR) comme exemple, la dynamique coordonnée du calcium entre les régions cérébrales et les types cellulaires dans les tâches d’apprentissage a été démontrée. Cette méthode est un protocole reproductible, fiable et évolutif pour étudier l’activité de l’ensemble astrocyte-neurone à travers les régions cérébrales pendant l’apprentissage et la mémoire.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Toutes les expériences animales ont été approuvées par le Comité de soins et d’utilisation des animaux de la Troisième Université Médicale Militaire (Approbation d’éthique animale n° : AMUWEC20230126) et ont été menées conformément au Guide de la Troisième Université Militaire pour le Soins et l’Utilisation des Animaux de Laboratoire afin d’assurer un traitement éthique des animaux. Les réactifs et l’équipement utilisés sont listés dans le tableau des matériaux.
Pour garantir la sécurité de l’expérimentateur, toutes les procédures expérimentales impliquant des animaux vivants et des vecteurs viraux étaient réalisées en portant des vêtements de protection, des gants stériles et un masque. Tous les instruments étaient soigneusement stérilisés avant utilisation, et les surfaces expérimentales nettoyées avec 70 % d’éthanol avant et après chaque expérience. Les matériaux restants ont été éliminés conformément aux réglementations institutionnelles sur l’élimination des déchets. Tous les réactifs et équipements étaient manipulés pour éviter le contact direct avec la peau ou les yeux.
1. Préparation animale et manipulation virale
- Des C57BL/6 souris de 4 mois (des deux sexes) dans un cycle clair/sombre de 12 heures avec un accès improvisé à la nourriture et à l’eau.
- Dégelez des aliquotes d’AAV5-GfaABC1D-GCaMP6f ou AAV9-hSyn-jRGECO1a sur glace à 0–4 °C juste avant l’utilisation.
- Connectez une micropipette en verre tiré (diamètre de pointe 15–25 μm) à une seringue et montez-la sur une pompe à microinjection.
- Placez la souris sur une plateforme chirurgicale stérile et désinfectez tous les instruments avec 70 % d’éthanol.
2. Injection virale stéréotaxique
REMARQUE : Une stratégie d’injection virale en deux étapes a été utilisée dans cette étude. Dans les conditions expérimentales actuelles, cette stratégie peut être mise en œuvre de manière fiable et stable, et le schéma d’expression résultant est cohérent avec le profil de promoteur spécifique à chaque type cellulaire attendu.
- Première chirurgie : injection AAV5-GfaABC1D-GCaMP6f (Titre : 7 ×10 12 vg/mL) pour les astrocytes
- Induire une anesthésie avec 3 % d’isoflurane dans une chambre, puis maintenir l’anesthésie avec 0,8 % à 1,2 % d’isoflurane via un cône nasal (selon les protocoles approuvés par l’institution).
- Maintenez la température corporelle à 37–38 °C à l’aide d’une bouillotte et appliquez une pommade ophtalmique pour éviter la dessiccation cornéenne.
- Enlevez les poils du cuir chevelu et désinfectez soigneusement la peau. Faites une incision médiane pour révéler la surface du crâne.
- Placez la tête dans l’instrument stéréotaxique, ajustez les points de suture bregma et lambda sur le même plan horizontal, puis ajustez encore le cadre pour garantir que les points de 2 mm latéraux au bregma de chaque côté soient de niveau.
- Identifier les coordonnées stéréotaxiques à l’aide d’un atlas cérébral de souris, avec le bregma comme point de référence.
mPFC : AP +1,8 mm, ML +0,3 mm, DV −3,0 mm
CA1 : AP −2,1 mm, ML +1,6 mm, DV −1,2 mm
MEC : AP −4,5 mm, ML −2,9 mm, DV −2,0 mm - Percez une craniotomie circulaire de 0,6 mm (diamètre) au-dessus de chaque site, gardez la dure-mère humide et intacte après avoir ouvert le crâne.
- Injectez le virus GCaMP6f dans la seringue à 5 nL/s et installez la seringue dans le bras stéréotaxique.
- Baissez lentement la pipette, injectez 150 nL à 0,6 nL/s, maintenez pendant 8 minutes, puis retirez à 0,1 mm/s. Répétez cette procédure pour toutes les régions.
- Scellez l’incision avec de l’adhésif tissulaire et laissez 2 semaines pour l’expression virale.
- Chirurgie secondaire : injection de neurones pour les neurones AAV9-hSyn-jRGECO1a (Titre : 1 × 10¹³ vg/mL).
REMARQUE : L’opération a été réalisée 14 jours après la première injection virale.- Induire et maintenir l’anesthésie comme décrit ci-dessus (Étape 2.1.1).
- Maintenez la température corporelle et protégez les yeux.
- Rouvrez le cuir chevelu le long de la ligne médiane et nivelez le crâne.
REMARQUE : Le crâne a été nivelé en alignant le bregma et le lambda dans le même plan horizontal. - Débris tissulaires clairs aux mêmes endroits que les fenêtres de craniotomie de la première chirurgie, exposant la dure-mère intacte.
- Ajustez les coordonnées en utilisant le bregma comme point de référence, effectuez des injections strictement aux mêmes coordonnées et profondeurs que celles décrites précédemment.
- Remplissez le virus jRGECO1a à 5 nL/s et installez la seringue.
- Injectez 150 nL à 0,6 nL/s, maintenez pendant 8 minutes, puis retirez lentement. Répétez cette procédure pour toutes les régions et laissez 3 semaines pour l’expression virale.
3. Implantation multisite de la sonde de photométrie à fibres
REMARQUE : Effectuez immédiatement après l’injection de jRGECO1a.
- Installez la virole en fibre optique dans un support stéréotaxique.
- Positionnez la fibre (1,25 mm de ferrol, 200 μm de carotage, NA 0,39) 100–150 μm au-dessus de la profondeur d’injection virale :
mPFC : AP +1,8 mm, ML +0,3 mm, DV −2,9 mm
CA1 : AP −2,1 mm, ML +1,6 mm, DV −1,1 mm
MEC : AP −4,5 mm, ML −2,9 mm, DV −1,9 mm - Scellez la craniotomie avec de la colle tissulaire et fixez la ferrulle avec du ciment dentaire.
4. Enregistrement de photométrie fibre multicanal
REMARQUE : Pour garantir une expression stable et complète des deux indicateurs calciques, une photométrie à fibre optique multicanal a été réalisée trois semaines après la deuxième injection virale pour enregistrement.
- Habituez les souris au système de fibres et en arène une fois par jour pendant trois jours.
- Après 3 semaines d’expression virale, anesthésiez brièvement la souris avec 3 % d’isoflurane.
- Connectez une extrémité de la fibre optique intégrée au système d’acquisition de photométrie de la fibre.
- Réglez la lumière d’excitation à deux longueurs d’onde : 470 nm et 560 nm.
- Réglez la fréquence d’acquisition à 30 Hz.
- Reliez les trois branches à l’autre extrémité de la fibre regroupée à trois régions cérébrales : canal 1 à mPFC, canal 2 à CA1, canal 3 à MEC.
- Placez les souris dans un espace ouvert d’une longueur latérale de 50 cm et laissez libre exploration.
- Après 10 minutes, déconnectez la fibre et ramenez les souris dans leurs cages à la maison.
- Enregistrement de la photométrie fibre lors de la tâche Nouvelle Reconnaissance d’Objets
REMARQUE : Nettoyez la plateforme et les objets avec 75 % d’éthanol avant chaque essai.- Placez deux objets identiques dans des quadrants opposés en diagonale.
- Reliez le faisceau de fibres dans un état légèrement anesthésié.
- Laissez les souris explorer les objets pendant 10 minutes, puis ramenez-les dans des cages sans enlever la fibre.
- Effectuer l’enregistrement de la photométrie de fibres lors du nouveau test de reconnaissance d’objet chez la souris.
REMARQUE : Excluez l’essai si les artefacts de mouvement sont excessifs pour des données d’enregistrement stables.- Ajustez les lasers de stimulation :
470 nm pour GCaMP6f (astrocytes)
560 nm pour jRGECO1a (neurones) - Enregistrer les signaux calciques à 30 Hz, synchronisés avec le suivi vidéo à 30 Hz. Positionner une diode laser dans l’image vidéo (en dehors du champ visuel de la souris) lors de l’acquisition pour servir de marqueur temporel.
- Dix minutes après la phase d’apprentissage, remplacez un objet par un objet nouveau et reposez la souris pour 10 minutes d’exploration pendant l’enregistrement.
- Déconnectez la fibre avec une ferrole en céramique et ramenez les souris dans les cages domestiques.
- Ajustez les lasers de stimulation :
5. Traitement et analyse des données
REMARQUE : Classez un transitoire de Ca2⁺ dans les enregistrements de photométrie à fibre comme un signal authentique uniquement si son amplitude dépasse trois fois l’écart-type de la bande de bruit21, 22, 23. Protocole 24 du test de reconnaissance d’objets (NORT)24:D affine les interactions entre objets comme des événements où les souris entrent en contact physique avec l’objet, soit en le piquant, soit en le reniflant avec leur nez. Pour la quantification du signal, définissez la ligne de base comme le signal moyen pendant la fenêtre de -2 à -1 s (relative au début de l’interaction à t=0). Régler la fenêtre d’analyse péri-événement pour qu’elle s’étende de 2 s avant à 4 s après l’initiation de chaque interaction avec l’objet, en suivant les protocoles établis.
- Importez les traces de fluorescence dans un logiciel d’analyse.
REMARQUE : Le traitement du signal de fluorescence a été réalisé à l’aide d’un logiciel d’analyse propriétaire, suivant les flux de travail standard de photométrie sur fibre. Le logiciel lui-même n’est pas open source et ne peut pas être partagé. Pour des considérations méthodologiques générales concernant le traitement du signal de photométrie à fibres, voir les rapports méthodologiquesrécents 25. - Effectuer la correction de base et aligner les signaux calciques sur le début de la tâche NOR en utilisant la vidéo synchronisée.
- Convertir ΔF/F en scores Z pour des comparaisons inter-régions et à double couleur9 :
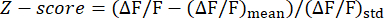
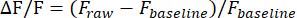
REMARQUE :
(ΔF/F)moyenne : moyenne de ΔF/F.
(ΔF/F)STD : écart-type de ΔF/F.
F raw : intensité de fluorescence brute.
F base : intensité de fluorescence de base (moyenne sur une période de base prédéfinie). - Quantifiez des métriques telles que la surface sous la courbe (AUC) pour les réponses des astrocytes et du calcium neuronal lors de l’exploration d’objets nouveaux versus d’objets familiers.
6. Vérification histologique après enregistrement
- Anesthésiez la souris avec une overdose de pentobarbital jusqu’à ce que la perte totale des réflexes soit confirmée.
- Effectuer une perfusion transcardique avec solution saline normale, suivie de paraformaldéhyde (PFA) à 4 %.
- Disséquez soigneusement le cerveau puis fixez-le après 4 % de PFA à 4 °C pendant 12 à 24 heures.
- Transférez le cerveau à 30 % de saccharose dans le PBS à 4 °C jusqu’à ce que le tissu s’enfonce pour la cryoprotection.
- Immergez le cerveau dans un composé à température de coupe optimale, congelez-le, puis coupez les coupes coronales (épaisseur de 40 μm) à l’aide d’un cryostat.
- Effectuer une coloration par immunofluorescence pour vérifier l’expression virale et le placement des fibres.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Sur la base du protocole décrit ci-dessus, un enregistrement multi-site double couleur a été réalisé ciblant les mPFC, CA1 et MEC de souris C57 âgées de 4 mois. Dans la présente étude, nous avons mis en œuvre une stratégie d’injection virale en deux étapes pour introduire séquentiellement ces deux indicateurs. Dans nos conditions expérimentales, cette stratégie peut être mise en œuvre de manière fiable et stable, et le schéma d’expression résultant est cohérent avec le profil de promoteu...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Dans cette étude, une méthode a été développée pour l’enregistrement simultané de l’activité calcique astrocytaire et neuronale dans plusieurs zones cérébrales sensibles à la mémoire de la souris lors de l’apprentissage et des comportements liés à la mémoire. Contrairement à l’imagerie à régionunique 28 ou aux techniques électrophysiologiques, l’enregistrement synchrone multi-région capture des dynamiques coordonnées à travers des réseaux mémoire distribués, s’avé...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Aucun conflit d’intérêts, financiers ou autre, n’est déclaré par les auteurs.
Remerciements
Mme Jia Lou est reconnue pour son assistance technique, et Sai Te Xin Si (outil IA) est reconnu pour son aide à la révision linguistique. Ce travail a reçu le soutien de la Fondation nationale des sciences naturelles de Chine (subvention n° 82371485, 82588301, 32400932) et de la Fondation des sciences naturelles de Chongqing, Chine (subvention n° CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | Se connecte à une micropipette pour l'injection virale |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | Expression spécifique des astrocytes GCaMP6f |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | Indicateur de calcium neurospécifique décalé vers le rouge |
| Pommade oculaire et nasale Bepanthen | Bepanthen | MA0008 | Prévient le dessèchement de la cornée |
| Fibres optiques groupés avec gaines en céramique | Inper | BFO-1x3-W1.25 | Connecte les fibres implantées au système de photométrie |
| Caméra | Mind Vision | MV-SUA502C-T | Vidéos comportementales synchronisées avec les signaux calciques |
| Ciment dentaire | NISSIN | Super-Bond C&B | Utilisé pour fixer les bagues au crâne |
| Support de bague | Inper | SCH-1.25 | Tient fermement la bague en céramique pendant l'implantation |
| Vaporisateur d'isoflurane & système d'anesthésie | RWD Life Science | R510-29 | Pour l'induction et le maintien de l'anesthésie |
| Système de photométrie multicanaux | RWD Life Science | R821 | Pour l'enregistrement en double couleur |
| Logiciel OFRS | RWD Life Science | Analyser les signaux calciques enregistrés | |
| Fibres optiques | RWD Life Science | R-FOC-BL200C-39N | Implantés dans la région cérébrale cible |
| Instrument stéréotaxique | RWD Life Science | 68801 | Utilisé pour l'injection virale précise et l'implantation de fibres |
| Pompe à seringue | KD Scientific | 788130 | Délivre le virus à des débits contrôlés |
| Colle pour tissus | 3M Animal Care Products | 1469SB Vetbond | Pour la fermeture des incisions |
Références
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
