Ce protocole décrit la génération et la caractérisation phénotypique d'un modèle murin C57BL/6N-Cracdem1(c.538-83 to c.3352+255 del) à l'aide de la technologie CRISPR/Cas9 afin d'étudier le rôle de CRACD dans le remodelage cardiaque après un infarctus du myocarde.
Article de méthode
Génération et caractérisation phénotypique d'un modèle murin déficient pour Cracd, conçu à l'aide de CRISPR/Cas9, pour l'étude du remodelage post-infarctus du myocarde
Dans cet article
Résumé
Résumé
Myocardial infarction (MI) remains a major cause of morbidity and mortality worldwide. This protocol describes a method for generating and characterizing a Cracd-deficient mouse line on the C57BL/6N background using CRISPR/Cas9 technology. Zygotes were co-injected with Cas9 mRNA, a gRNA construct, and a donor template designed to generate a 3153-bp genomic deletion. The edited allele was confirmed by PCR genotyping and Sanger sequencing. To assess the functional role of CRACD in post-MI remodeling, Cracd-deficient and wild-type (WT, C57BL/6N) mice underwent MI induced by permanent ligation of the left anterior descending coronary artery. On postoperative day 7, cardiac function and left ventricular wall motion were assessed using transthoracic echocardiography and speckle-tracking strain imaging, followed by histopathological evaluation with H&E and Masson's trichrome staining. Representative results showed that Cracd-deficient mice exhibited reduced ventricular dilation and preserved systolic function compared to WT controls. This protocol provides a reliable experimental platform for mechanistic studies of CRACD in cardiac pathophysiology.
Introduction
L'infarctus du myocarde (IM) demeure l'une des principales causes de morbidité et de mortalité dans le monde, contribuant ainsi à un fardeau important pour la santé cardiovasculaire mondiale.1Le pronostic à long terme après un infarctus du myocarde est principalement déterminé par le processus de remodelage du ventricule gauche (VG).2, qui implique une dilatation ventriculaire, un amincissement de la paroi et une fibrose interstitielle3,4, qui sont des facteurs clés de la progression vers l'insuffisance cardiaque (IC). L'incidence mondiale de l'IC résultant du remodelage cardiaque post-infarctus aggrave encore la charge de la maladie cardiovasculaire.5Malgré ces observations cliniques bien établies, des études systématiques utilisant des modèles in vivo sensibles et reproductibles afin d'évaluer le rôle de gènes spécifiques dans le remodelage post-infarctus sont actuellement absentes. Aucun protocole ne combine à ce jour un modèle d'invalidation génétique par CRISPR/Cas9 avec un imagerie de déformation cardiaque avancée pour évaluer un régulateur du cytosquelette tel que CRACD. Ainsi, une méthode permettant une manipulation génétique précise et un phénotypage cardiaque à haute résolution est urgemment nécessaire.
Le régulateur de la dynamique de l'actine inhibant la protéine de capuchon (CRACD), également connu sous le nom de KIAA1211, est un régulateur de la polymérisation de l'actine principalement localisé dans le cytosol et jouant un rôle essentiel dans la dynamique du cytosquelette6. Il régule positivement la polymérisation de l'actine en se liant aux protéines de capuchon de l'actine (CAPZA1, CAPZA2, CAPZB) et en les empêchant de se fixer aux extrémités pointues des filaments d'actine7. Dans les tissus épithéliaux, CRACD joue un rôle crucial dans le maintien de la morphologie cellulaire et de la transduction du signal en préservant l'intégrité du cytosquelette d'actine8,9. Dans les cellules tumorales, sa régulation anormale est associée à une augmentation de la métastase et de la prolifération cellulaires6,10. Le rôle de CRACD dans le cœur n'est pas encore entièrement compris. Des études sur le transcriptome cardiaque et des interventions expérimentales montrent que l'expression du gène Cracd répond au stress pathologique et pourrait réguler des gènes liés à la dynamique du cytosquelette lors du remodelage ventriculaire9,11. De plus, sa protéine inhibitrice CapZ est étroitement associée à la pathologie cardiaque : la phosphorylation de CapZ régule la croissance des myofibrilles lors de l'hypertrophie induite par la phényléphrine12. Nos recherches antérieures indiquent qu'une diminution modérée de CRACD confère une protection contre les lésions myocardiques et préserve la contractilité des myofilaments après une ischémie aiguë13. Ces résultats suggèrent que CRACD pourrait jouer un rôle dans le remodelage ventriculaire maladaptatif après un infarctus du myocarde (IM). Toutefois, des études systématiques in vivo de perte de fonction visant à déterminer si le déficit en Cracd module le remodelage post-IM font défaut, principalement en raison de l'absence d'un protocole validé étape par étape permettant de générer et de phénotyper une souris déficiente en Cracd soumise à un stress ischémique.
Plusieurs approches existent pour générer des souris knock-out constitutives. La recombinaison homologue traditionnelle dans les cellules souches embryonnaires (ES) est précise mais coûteuse, longue (12 à 18 mois) et limitée à certaines souches de souris14. La mutagenèse par ENU (N-éthyl-N-nitrosourée) produit des mutations ponctuelles aléatoires nécessitant des rétrocroisements et des séquençages intensifs15. En revanche, CRISPR/Cas9 présente des avantages pratiques distincts pour cette étude : (i) l'injection directe dans les zygotes réduit la durée à 4 à 6 mois ; (ii) elle permet la suppression d'un fragment génomique important (3153 pb) afin d'assurer une perte complète de fonction ; (iii) elle fonctionne directement sur le fond génétique C57BL/6N sans conversion de souche ; et (iv) elle évite l'utilisation d'un marqueur de sélection, minimisant ainsi les interférences transcriptionnelles non voulues. Par conséquent, CRISPR/Cas9 constitue le choix le plus efficace pour générer une lignée déficiente en Cracd, adaptée au phénotypage cardiovasculaire de routine. Cette technologie est largement utilisée pour réaliser des études précises in vivo de perte de fonction16,17.
L'imagerie de déformation par suivi de speckle est une technique de post-traitement qui suit le déplacement des speckles acoustiques naturels au sein du myocarde image par image, permettant ainsi le calcul de paramètres de déformation myocardique tels que la déformation (changement fractionnel de longueur) et la vitesse de déformation (taux de déformation)18. Contrairement à l'échocardiographie en mode M conventionnel ou en deux dimensions, qui fournit des indices fonctionnels globaux (fraction d'éjection, raccourcissement fractionné, diamètre interne du ventricule gauche) et est relativement insensible aux anomalies régionales du mouvement pariétal, l'imagerie de déformation permet de quantifier la fonction contractile segmentaire. Ceci est particulièrement important au cours de la période post-infarctus précoce, où l'hypéricinésie compensatoire des segments non infarcis peut préserver la fraction d'éjection globale malgré une dysfonction régionale significative. Le suivi de speckle présente plusieurs avantages par rapport aux critères d'évaluation classiques : il fournit des mesures de déformation et de vitesse de déformation segmentaires, ainsi que des données de déplacement et de vitesse, permettant ainsi de détecter des modifications subcliniques subtiles19 ; il peut identifier une dyssynchronie et des déficits contractiles précoces avant qu'un remodelage irréversible n'intervienne ; et il explore directement la sous-endocarde, la couche la plus vulnérable à l'ischémie20. Dans cette étude, CRACD est un régulateur du cytosquelette qui pourrait influencer la contractilité des myofibrilles au niveau microscopique. Des mesures conventionnelles basées sur la cavité pourraient facilement manquer de tels effets mécaniques locaux. Ainsi, l'intégration de l'analyse par suivi de speckle dans ce protocole améliore la capacité à détecter les effets protecteurs précoces de la déficience en Cracd. Par conséquent, l'incorporation du suivi de speckle dans ce protocole fournit un outil sensible et quantitatif pour évaluer le remodelage post-infarctus, notamment durant la première semaine suivant l'infarctus du myocarde, lorsque la dilatation précoce et la dysfonction contractile apparaissent21,22.
Ce protocole est conçu pour les chercheurs étudiant l'impact fonctionnel d'une délétion génique spécifique sur le remodelage post-infarctus aigu (7 jours) à l'aide d'une combinaison de souris knock-out constitutif et d'imagerie à haute résolution. Il convient aux études génératrices d'hypothèses dans lesquelles la perte globale du gène cible est acceptable et où le critère principal d'évaluation est la fonction systolique précoce ainsi que les modifications structurelles. Toutefois, plusieurs limites doivent être prises en compte. Premièrement, la souris déficiente pour Cracd est un knock-out global ; par conséquent, les effets cardioprotecteurs observés ne peuvent pas être attribués exclusivement à la perte de CRACD dans les cardiomyocytes, car des contributions systémiques peuvent également jouer un rôle. Des études futures utilisant des stratégies de knock-out conditionnel seront nécessaires afin d'obtenir une délétion spécifique au cœur. Deuxièmement, le protocole se concentre sur un seul point temporel (jour 7) et ne prend pas en compte le remodelage chronique ni la progression vers l'insuffisance cardiaque. Des études longitudinales allant au-delà de la phase aiguë seront requises. Troisièmement, l'analyse par suivi de taches (speckle-tracking) exige des images de haute qualité (bords endocardiques bien définis) et un logiciel dédié, qui ne sont pas toujours disponibles dans toutes les plateformes techniques. Malgré ces limites, le protocole offre une plateforme solide et reproductible pour la caractérisation fonctionnelle initiale de gènes impliqués dans le remodelage cardiaque post-infarctus.
Cette étude visait à utiliser le système CRISPR/Cas9 pour générer et valider un modèle murin déficient pour Cracd (C57BL/6N-Cracdem1 (c.538-83 à c.3352+255 del)) afin d'explorer l'impact de la déficience en Cracd sur le remodelage cardiaque post-infarctus du myocarde (IM) et sur le mouvement de la paroi ventriculaire. Un infarctus du myocarde a été induit chez des souris de type sauvage (WT, C57BL/6N) et chez des souris déficientes en Cracd, et des évaluations complètes ont été réalisées une semaine après l'IM. Les évaluations comprenaient des paramètres échocardiographiques conventionnels, une analyse de la déformation par suivi de taches (speckle-tracking), ainsi qu'une évaluation histopathologique. Nous nous sommes particulièrement concentrés sur la phase précoce post-IM (jour 7) afin de capturer les événements initiaux de remodelage et de déterminer si la déficience en Cracd affecte la dilatation ventriculaire et la fonction systolique durant la phase aiguë de l'infarctus. Les résultats obtenus devraient fournir des informations précieuses sur le rôle de CRACD dans la modulation du remodelage cardiaque délétère après un infarctus du myocarde.
Protocole
Toutes les expériences sur les animaux ont été approuvées par le comité institutionnel de soins aux animaux et d'utilisation de l'Institut de biotechnologie de Guangdong (numéro d'approbation : IACUC2025179). L'étude a utilisé 20 souris SPF déficientes en Cracd et 20 souris WT appariées par âge et poids. Toutes les souris avaient 10 à 12 semaines et pesaient entre 20 et 25 g. Tous les animaux mâles ont été élevés dans un établissement accrédité par l'AAALAC (numéro de licence : SYXK (Yue) 2016-0122) à l'Institut de biotechnologie de Guangdong (Institut de surveillance des animaux de laboratoire du Guangdong). L'environnement d'élevage était maintenu à une température de 22 à 25 °C et une humidité relative de 50 à 70 %, sous un cycle lumineux de 12 heures de clarté et 12 heures d'obscurité.
1. Génération de souris déficientes en Cracd à l'aide de CRISPR/Cas9
- Utiliser la technologie d'édition génique CRISPR/Cas9 pour générer des souris déficientes en Cracd sur un fond génétique C57BL/6N. Supprimer la séquence génomique de c.538-83 à c.3352+255 (partiellement intron 5 à intron 6) du gène Cracd par réparation dirigée par homologie.
REMARQUE : Le gène murin Cracd (NCBI RefSeq : NM_001163793.1 ; Ensembl : ENSMUSG00000036377) est situé sur le chromosome 5 et contient 9 exons, avec le codon de départ ATG dans l'exon 2 et le codon d'arrêt TAA dans l'exon 9. - Concevoir la séquence du vecteur d'ARN guide (gRNA) et de l'oligonucléotide donneur (avec la séquence cible encadrée par des séquences homologues de 120 pb de chaque côté).
- Se connecter au site web du NCBI, sélectionner la fonction Primer-BLAST et concevoir des amorces PCR pour le génotypage.
- Coller le numéro de séquence de référence du NCBI pour Cracd (NM_001163793.1) dans le champ modèle PCR, préciser la plage d'exons à amplifier, puis cliquer sur « Obtenir les amorces » pour récupérer plusieurs paires d'amorces candidates destinées à la détection par PCR des allèles délétés et sauvages.
- Concevoir des ARN guides uniques (gRNA) ciblant des sites encadrant l'intervalle de délétion prévu dans le gène Cracd.
- Sélectionner quatre séquences de gRNA (20 nt en amont du PAM) à l'aide d'outils en ligne de conception CRISPR.
- Pour minimiser les effets hors cible potentiels, évaluer les gRNA candidats avec CRISPRater et sélectionner les deux séquences optimales (incluant le PAM NGG).
REMARQUE : Exemples de séquences sélectionnées :
gRNA-A1 : CGGCGCTCTTAACATCCAGAGGG (score : 0,71)
gRNA-A2 : CCCTTCAGTCTGGGTAGTAGAGG (score : 0,71)
Accepter les gRNA ayant un score CRISPRater ≥ 0,5. Pour la validation in vitro, accepter les gRNA ayant une efficacité de clivage > 50 % dans un kit de détection de l'efficacité cible Cas9/gRNA.
- Concevoir un oligonucléotide donneur simple brin pour favoriser une jonction efficace des points de cassure prévus. Exemple de séquence donneur : TTAACCATCAACGGGCCGCTGCAAGGGCTGCTGT
GTCTATA CTCAGGACCACCTGCCCTCTAGAGGCAGGAAGGT
AGAGTTCCAAGCTCTGCTGTGCTAGGTTAAATGCAACTTAACATC. - Co-injecter l'ARNm Cas9, le gRNA et l'oligonucléotide donneur dans des œufs fécondés afin de générer des souris déficientes en Cracd. Préparer l'ARNm Cas9 et le gRNA par transcription in vitro.
- Préparation du gRNA.
- Transcrire les gRNA in vitro à partir de matrices d'ADN en utilisant le kit de transcription MEGAshortscript™ T7 (voir Tableau du matériel) selon le protocole du fabricant.
- Purifier les gRNA transcrits à l'aide d'un kit de purification d'ARN (voir Tableau du matériel) et les éluire dans de l'eau exempte de RNase.
- Évaluer l'activité de clivage du gRNA à l'aide d'un kit de détection de l'efficacité cible Cas9/gRNA in vitro (voir Tableau du matériel).
- Effectuer toutes les étapes de préparation de l'ARN sur de la glace en utilisant des consommables exempts de RNase (embouts de pipette, tubes, eau). Garder les échantillons d'ARN sur de la glace en tout temps pour éviter la dégradation.
- Pour réaliser le test de clivage : mélanger le gRNA transcrit (25 ng/µL) avec la protéine Cas9 recombinante (50 ng/µL) et un fragment d'ADN amplifié par PCR contenant la séquence cible (50 ng).
- Incuber la réaction à 37 °C pendant 30 min.
- Analyser les produits sur un gel d'agarose à 2 % pour visualiser les bandes non clivées et clivées.
- Calculer l'efficacité de clivage comme le rapport entre l'intensité de la bande clivée et l'intensité totale (bande clivée + bande non clivée).
- Accepter les gRNA ayant une efficacité de clivage > 50 %.
- Préparation de l'ARNm Cas9.
- Dégeler les réactifs du kit T7 ARCA mRNA (voir Tableau du matériel).
- À température ambiante, combiner 10 µL de mélange 2× ARCA/NTP, 1 µL d'ADN matrice, 2 µL de mélange de polymérase ARN T7 et de l'eau exempte de nucléase jusqu'à un volume final de 20 µL.
- Mélanger soigneusement, centrifuger brièvement dans une microcentrifugeuse (5 s à 5000 × g), puis incuber à 37 °C pendant 30 min.
- Éliminer l'ADN matrice en ajoutant 2 µL de DNase I (1 U/µL), bien mélanger, puis incuber à 37 °C pendant 15 min pour obtenir l'ARNm Cas9. Ajouter éventuellement 1 µL d'inhibiteur de RNase (40 U/µL) (voir Tableau du matériel) à la réaction pour prévenir la dégradation de l'ARN.
- Effectuer toutes les étapes sur de la glace avec des consommables exempts de RNase. Garder l'ARNm Cas9 sur de la glace jusqu'à son utilisation.
- Induire une hyperovulation chez des souris femelles C57BL/6N âgées de 4 semaines par injection intrapéritonéale de 5 UI de gonadotrophine chorionique de jument enceinte (PMSG), suivie 48 h plus tard par 5 UI de gonadotrophine chorionique humaine (hCG).
PRÉCAUTION : La PMSG et l'hCG sont des hormones pouvant provoquer une sensibilisation cutanée. Porter des gants et jeter les aiguilles dans un conteneur pour objets tranchants. - Environ 14 à 18 h après l'injection d'hCG, euthanasier les souris femelles C57BL/6N et une souris mâle C57BL/6N âgée de 8 à 12 semaines par dislocation cervicale. Collecter les ovocytes dans les trompes des femelles et le sperme dans la queue de l'épididyme du mâle.
PRÉCAUTION : L'euthanasie doit être effectuée conformément aux directives institutionnelles. La dislocation cervicale ne doit être réalisée que par du personnel formé. - Capaciter le sperme dans un milieu de capacitation (voir Tableau du matériel).
- Ajouter un petit volume de suspension de spermatozoïdes aux ovocytes pour la fécondation in vitro et co-cultiver pendant 3 à 4 h à 37 °C afin d'obtenir des zygotes fécondés.
- Diluer le gRNA transcrit et l'ARNm Cas9 dans de l'eau exempte de RNase jusqu'à des concentrations de travail (généralement 25 ng/µL pour le gRNA et 50 ng/µL pour l'ARNm Cas9), ainsi que l'oligonucléotide donneur à 10 ng/µL.
- Micro-injecter 1 à 2 pL du mélange dans le cytoplasme de zygotes fécondés à l'aide d'un système de micro-injection (voir Tableau du matériel).
- Identifier les zygotes sains par la présence de deux pronoyaux distincts et d'un globule polaire intact sous un stéréomicroscope.
- Transplanter 300 zygotes fécondés sains dans les trompes de souris femelles pseudogestantes ayant été accouplées avec des mâles vasectomisés.
REMARQUE : Cela permet d'obtenir 2 souris fondateurs positives (F0). - Utiliser de l'eau exempte de RNase et des conditions glacées lors de la dilution pour préserver l'intégrité de l'ARN.
- Identifier les souris F0 par génotypage PCR à partir de biopsies de queue (voir section 1.6).
- Accoupler les fondateurs F0 avec des souris WT pour produire une descendance hétérozygote F1, afin d'obtenir la transmission germinale de la délétion.
- Accoupler entre elles des souris F1 hétérozygotes pour produire des souris F2 homozygotes déficientes en Cracd.
- Préparation du gRNA.
- Génotypage par réaction en chaîne par polymérase (PCR)
REMARQUE : Le protocole suivant utilise un kit commercial TIANamp Genomic DNA Kit (voir Tableau du matériel). Le tampon GL est le tampon de lyse, le tampon GB est le tampon de liaison, et les tampons WA et WB sont des tampons de lavage.- Placer environ 2 à 5 mm de tissu de queue de souris dans un tube microcentrifuge contenant 180 µL de tampon GL, 20 µL de protéinase K (solution mère à 20 mg/mL) et 10 µL de RNase A (solution mère à 10 mg/mL).
- Incuber l'échantillon à 56 °C pendant toute une nuit pour digérer le tissu.
- Centrifuger le tube à 13800 × g pendant 2 min à température ambiante pour former un culot de débris tissulaires, puis transférer le surnageant dans un nouveau tube.
- Ajouter 200 µL de tampon GB et 200 µL d'éthanol à 100 % au surnageant, bien mélanger, puis appliquer le mélange sur une colonne de centrifugation placée dans un tube de collecte.
- Centrifuger à 13800 × g pendant 2 min à température ambiante et jeter le flux passant.
- Ajouter 500 µL de tampon WA à la colonne, centrifuger à 13800 × g pendant 1 min à température ambiante et jeter le flux passant.
- Ajouter soigneusement 700 µL de tampon WB (tampon de lavage contenant de l'éthanol, pré-mélangé avec de l'éthanol à 100 %) à la colonne de centrifugation, centrifuger à 13800 × g pendant 1 min à température ambiante et jeter le flux passant.
- Appliquer le tampon WB sur la paroi interne de la colonne pour éliminer les sels résiduels.
- Répéter l'étape 1.6.5 une fois, puis transférer la colonne dans un nouveau tube de collecte et centrifuger à 13800 × g pendant 2 min à température ambiante pour sécher la membrane et éliminer l'éthanol résiduel.
- Placer la colonne dans un nouveau tube microcentrifuge de 1,5 mL. Ajouter 50 à 200 µL d'eau stérile ou de tampon d'élution (préchauffé à 65 °C) au centre de la membrane, puis incuber pendant 5 min.
- Centrifuger la colonne à 13800 × g pendant 2 min à température ambiante pour éluire l'ADN.
- Pour augmenter le rendement en ADN, réappliquer le flux passant sur la membrane ou ajouter 50 à 200 µL supplémentaires d'eau stérile, puis incuber pendant 5 min.
- Effectuer une centrifugation finale à 13800 × g pendant 2 min.
REMARQUE : S'attendre à un rendement en ADN de 50 à 200 ng/µL à partir du tissu de queue ; un rapport A260/A280 de 1,8 à 2,0 indique un ADN pur.
- Placer environ 2 à 5 mm de tissu de queue de souris dans un tube microcentrifuge contenant 180 µL de tampon GL, 20 µL de protéinase K (solution mère à 20 mg/mL) et 10 µL de RNase A (solution mère à 10 mg/mL).
- Génotypage par PCR multiplex utilisant trois amorces dans une seule réaction.
- Concevoir trois amorces pour distinguer les génotypes WT, hétérozygote et homozygote dans une seule réaction PCR : amorce F1 en sens (5’-CAGAAGTCATAGCAGCAAGGCAG-3’, se lie en amont de la délétion), amorce F2 en sens (5’-GAGGGAATTGAGAGGGAGCC-3’, se lie à l'intérieur de la région délétée, présente uniquement dans l'allèle WT) et amorce R1 en antisens (5’-GCCAATTTAGCTGCTTCAAATGTTC-3’, amorce commune en aval de la délétion).
REMARQUE : L'allèle ciblé produit un amplicon de 421 pb (F1 + R1) uniquement lorsque la délétion est présente ; l'allèle WT produit un amplicon de 357 pb (F2 + R1) uniquement lorsque l'allèle intact est présent. - Préparer la réaction PCR dans un volume total de 25 µL contenant 50 à 100 ng d'ADN génomique, 0,2 µM de chaque amorce (F1, F2 et R1), 200 µM de dNTP, 1,5 mM de MgCl₂ et 1 U de polymérase Taq DNA (voir Tableau du matériel).
- Utiliser le programme thermocyclage suivant : dénaturation initiale à 95 °C pendant 3 min ; 35 cycles de dénaturation à 95 °C pendant 15 s, d'hybridation à 60 °C pendant 15 s et d'élongation à 72 °C pendant 25 s ; et une élongation finale à 72 °C pendant 5 min.
- Séparer les produits PCR par électrophorèse sur gel d'agarose à 1–2 % (120 V, 30 min) dans du tampon TAE 1×.
- Interprétation du génotype selon le profil des bandes : le WT montre uniquement une bande de 357 pb (F2+R1) ; l'hétérozygote montre les deux bandes de 421 pb (F1+R1) et 357 pb (F2+R1) ; l'homozygote montre uniquement une bande de 421 pb (F1+R1).
- Concevoir trois amorces pour distinguer les génotypes WT, hétérozygote et homozygote dans une seule réaction PCR : amorce F1 en sens (5’-CAGAAGTCATAGCAGCAAGGCAG-3’, se lie en amont de la délétion), amorce F2 en sens (5’-GAGGGAATTGAGAGGGAGCC-3’, se lie à l'intérieur de la région délétée, présente uniquement dans l'allèle WT) et amorce R1 en antisens (5’-GCCAATTTAGCTGCTTCAAATGTTC-3’, amorce commune en aval de la délétion).
2. Établissement du modèle d'infarctus du myocarde
- Anesthésier les souris par inhalation d'isoflurane à 3 % (administré dans de l'oxygène à 100 % à 1 L/min), les placer en position dorsale sur une plateforme chirurgicale, et confirmer une anesthésie profonde par l'absence de réflexe de retrait podal.
PRÉCAUTION : L'isoflurane est un anesthésique volatil. L'utiliser uniquement dans un endroit bien ventilé ou sous une hotte afin d'éviter toute inhalation. - Réaliser une intubation oro-trachéale à l'aide d'une gaine de cathéter intraveineux de calibre 20. Appliquer un onguent ophtalmique sur les deux yeux pour prévenir le dessèchement cornéen pendant l'intervention chirurgicale.
- Connecter le tube à un ventilateur mécanique après une intubation réussie afin de maintenir la ventilation et l'anesthésie avec 2 % d'isoflurane.
REMARQUE : Une intubation réussie est confirmée par des mouvements thoraciques visibles synchronisés avec le ventilateur.
- Connecter le tube à un ventilateur mécanique après une intubation réussie afin de maintenir la ventilation et l'anesthésie avec 2 % d'isoflurane.
- Épiler la région antérieure du thorax à l'aide d'une crème dépilatoire. Désinfecter la zone chirurgicale en appliquant de l'iodopovidone et de l'alcool à 70 % en effectuant plusieurs passages circulaires, en partant du centre vers l'extérieur.
- Après une exposition complète de la peau, pratiquer une incision de 1 à 1,5 cm dans la paroi thoracique gauche entre les espaces intercostaux 2 et 3 afin d'ouvrir la cavité thoracique.
- Inciser le péricarde pour bien exposer le cœur.
PRÉCAUTION : Les interventions chirurgicales doivent être réalisées dans des conditions stériles. Utiliser des équipements de protection individuelle (EPI) appropriés, notamment des gants et un masque chirurgical.
- En utilisant le bord inférieur de l'oreillette gauche comme repère, passer une aiguille de suture non traumatique 7–0 sous l'artère coronaire antérieure descendante (LAD) à environ 2–3 mm en aval de son origine.
- Introduire l'aiguille à une profondeur d'environ 0,5 à 1 mm et serrer lentement le ligature afin d'éviter une déchirure du myocarde.
- Confirmer une occlusion réussie en observant la pâleur (blanchiment) de la paroi antérieure du ventricule gauche en aval du site de ligature, dans les 30 secondes suivant la ligature.
- Dans les témoins soumis à une chirurgie factice (sham), ouvrir la cavité thoracique et passer la suture sous l'artère coronaire sans nouer le fil.
- Après avoir établi le modèle, suturer successivement les côtes (suture résorbable 4-0, point simple interrompu) et la peau (suture résorbable 4-0, point continu) pour fermer la cavité thoracique. Retirer le tube endotrachéal une fois que la souris a repris une respiration spontanée stable.
- Placer les souris sur un tapis chauffant (37 °C) jusqu'à ce qu'elles reprennent complètement connaissance.
- Administrer une analgésie postopératoire (par exemple, buprénorphine 0,05–0,1 mg/kg, par voie sous-cutanée, toutes les 12 h pendant 48 h) conformément aux directives institutionnelles du comité IACUC, et surveiller attentivement l'état de santé postopératoire pendant plusieurs jours.
REMARQUE : Surveiller les signes de détresse (posture voûtée, pelage hérissé, mobilité réduite, perte de poids > 20 %).
- Administrer une analgésie postopératoire (par exemple, buprénorphine 0,05–0,1 mg/kg, par voie sous-cutanée, toutes les 12 h pendant 48 h) conformément aux directives institutionnelles du comité IACUC, et surveiller attentivement l'état de santé postopératoire pendant plusieurs jours.
- Mortalité et critères d'exclusion.
- Enregistrer le nombre de souris décédées dans les 7 premiers jours suivant la chirurgie d'infarctus du myocarde.
REMARQUE : Dans un groupe typique, s'attendre à un taux de mortalité d'environ 10 à 20 % au 7e jour postopératoire, sans différence significative entre les souris WT et celles déficientes en Cracd. Les causes fréquentes de décès incluent un infarctus étendu menant à une insuffisance cardiaque aiguë, un saignement chirurgical ou un pneumothorax. Exclure toute souris présentant une arythmie persistante (fréquence cardiaque < 350 bpm) ou des signes de détresse sévère (par exemple, posture voûtée, pelage hérissé, perte de poids > 20 %) des analyses échocardiographiques et histologiques ultérieures. Chez les souris soumises à une chirurgie factice (sham), la mortalité devrait être < 5 %.
- Enregistrer le nombre de souris décédées dans les 7 premiers jours suivant la chirurgie d'infarctus du myocarde.
3. Évaluation échocardiographique
- Préparation des animaux et anesthésie
- Allumez le système d'imagerie par ultrasons haute résolution pour petits animaux (voir Tableau des matériaux) ainsi que son plateau chauffant intégré.
- Assurez-vous que le transducteur haute fréquence approprié est solidement fixé à l'appareil selon les instructions du fabricant. Réglez la température du plateau chauffant à 37 °C et laissez-la se stabiliser.
- Placez les souris dans une chambre d'induction et anesthésiez-les avec 3 % d'isoflurane dans l'oxygène (1–2 L/min) jusqu'à disparition du réflexe de retrait podal. Transférez les souris anesthésiées sur la plateforme chauffante en position dorsale.
- Continuez l'anesthésie avec 1–1,5 % d'isoflurane délivré par un embout nasal, en ajustant la dose pour maintenir la fréquence cardiaque entre 450 et 550 battements par minute.
- Appliquez une pommade ophtalmique sur les deux yeux afin d'éviter le dessèchement cornéen.
- Rasez la région thoracique, appliquez uniformément une crème dépilatoire pendant une durée maximale de 3 minutes, puis retirez soigneusement la crème dépilatoire à l'aide d'un tampon de gaze humide.
- Rincez doucement la peau avec du sérum physiologique tiède si nécessaire, puis séchez la zone. Fixez des électrodes ECG cutanées aux membres à l’aide de gel conducteur aux points de contact, et maintenez-les en place avec du ruban adhésif.
REMARQUE : Vérifiez la stabilité de l'ECG et de la fréquence cardiaque comprise entre 450 et 550 bpm avant de procéder à l'imagerie par ultrasons.
- Allumez le système d'imagerie par ultrasons haute résolution pour petits animaux (voir Tableau des matériaux) ainsi que son plateau chauffant intégré.
- Acquisition d'images d'échocardiographie conventionnelle
- Placez la souris en position horizontale dorsale sur le plateau chauffant, avec une légère inclinaison vers la gauche si nécessaire pour optimiser l'imagerie cardiaque.
- Appliquez une quantité généreuse de gel de couplage pour ultrasons préchauffé sur la région précordiale gauche dépourvue de poils, en évitant les bulles d'air.
- Placez délicatement le transducteur sur la paroi thoracique à la position parasternale gauche. Ajustez son orientation de manière à ce que la marque d'index soit dirigée vers l'épaule droite de la souris, puis affinez l'angle et la pression pour optimiser la qualité de l'image.
- Passez en mode B (imagerie bidimensionnelle), puis ajustez la profondeur, la zone de focalisation et la fréquence d'images pour obtenir une vue claire en long-axe parasternal du ventricule gauche. Une qualité d'image acceptable nécessite une visualisation nette de la bordure endocardique sans zones de perte de signal.
- Lorsque la fréquence cardiaque est stabilisée (450–550 bpm), enregistrez trois séries distinctes de séquences ciné en mode B en long-axe parasternal, chacune comprenant au moins 3 à 5 cycles cardiaques consécutifs.
- Enregistrez chaque séquence en appuyant sur « Cine Store », puis stockez des images fixes représentatives à l’aide de « Frame Store ».
- À partir de la vue en long-axe, faites pivoter le transducteur de 90° dans le sens horaire pour obtenir une vue en court-axe au niveau médian des papillaires.
- Enregistrez trois séries distinctes de séquences ciné en mode B en court-axe (chacune avec ≥ 3–5 cycles).
- Activez le mode M, positionnez le curseur perpendiculairement au septum interventriculaire et à la paroi postérieure, puis enregistrez trois tracés distincts en mode M.
REMARQUE : Les tracés en mode M acceptables doivent présenter des bords endocardiques bien définis tout au long du cycle cardiaque.
- Utilisez le logiciel VevoLab 3.2.0 (voir Tableau des matériaux) pour mesurer les paramètres suivants à partir des tracés en mode M selon la méthode « leading-edge » de l'American Society of Echocardiography : épaisseur du septum interventriculaire en diastole et en systole (IVSd, IVSs), diamètre interne du ventricule gauche en diastole et en systole (LVIDd, LVIDs), et épaisseur de la paroi postérieure du ventricule gauche en diastole et en systole (LVPWd, LVPWs).
- Calculez la fraction d'éjection (FE) et la fraction de raccourcissement (FR) du ventricule gauche à l’aide de la formule de Teichholz : FE (%) = [(LV Vold - LV Vols) / LV Vold] × 100, LV Vold = ((7 / (2,4 + LVIDd)) × LVIDd3), LV Vols = ((7 / (2,4 + LVIDs)) × LVIDs3), FR (%) = [(LVIDd – LVIDs) / LVIDd] × 100.
REMARQUE : Pour chaque souris, les mesures ont été moyennées à partir de trois cycles cardiaques consécutifs par enregistrement en mode M, puis la moyenne a été calculée à partir de trois enregistrements distincts, ce qui donne un total de 9 mesures par paramètre et par souris.
- Calculez la fraction d'éjection (FE) et la fraction de raccourcissement (FR) du ventricule gauche à l’aide de la formule de Teichholz : FE (%) = [(LV Vold - LV Vols) / LV Vold] × 100, LV Vold = ((7 / (2,4 + LVIDd)) × LVIDd3), LV Vols = ((7 / (2,4 + LVIDs)) × LVIDs3), FR (%) = [(LVIDd – LVIDs) / LVIDd] × 100.
- Placez la souris en position horizontale dorsale sur le plateau chauffant, avec une légère inclinaison vers la gauche si nécessaire pour optimiser l'imagerie cardiaque.
- Analyse de la déformation par suivi de taches (speckle-tracking)
- Réalisez l'analyse par suivi de taches à l’aide du logiciel dédié (module VevoStrain dans VevoLab 3.2.0).
- Ouvrez une séquence ciné claire en mode B en long-axe parasternal, sélectionnez « Vevo Strain » pour accéder au mode d'analyse de la déformation, conservez uniquement les cycles cardiaques complets, puis choisissez « Long Axis ».
- Tracez manuellement la bordure endocardique sur l'image correspondant à la fin-diastole. Une fois la bordure endocardique tracée, le logiciel génère automatiquement une bordure épicardique (ajustez si nécessaire). Lancez ensuite l'analyse de la déformation et activez la fonction « toggle contour/vector/orbit line/B mode » pour visualiser la trajectoire du mouvement.
- Évaluez la qualité du suivi à l’aide du maillage codé par couleurs : il doit apparaître en vert, suivre étroitement les bords endocardique et épicardique sans à-coups, et se déplacer de manière synchrone avec la contraction et la relaxation du myocarde. Si ce n’est pas le cas, corrigez manuellement les bords et relancez l'analyse.
- Activez l’« analyse du temps pour atteindre le pic » afin de diviser le ventricule gauche en six segments (antérieur basal, antérieur médian, antérieur apical, postérieur apical, postérieur médian, postérieur basal), chaque couleur représentant un segment individuel. Une fois un suivi satisfaisant obtenu, exportez les données relatives aux paramètres de mouvement pariétal : vitesse (cm/s), déplacement (cm), déformation (%) et vitesse de déformation (1/s), tant pour la composante longitudinale que radiale.
REMARQUE : Si la qualité du suivi reste insuffisante après trois tentatives d'acquisition (par exemple, courbes de déformation irrégulières ou impossibilité de visualiser des trajectoires de mouvement claires), excluez la souris de l'analyse de la déformation.
- Réalisez l'analyse par suivi de taches à l’aide du logiciel dédié (module VevoStrain dans VevoLab 3.2.0).
4. Analyse histopathologique
- Après l'échocardiographie, administrer une dose létale d'isoflurane à des souris profondément anesthésiées et appliquer une méthode physique secondaire (par exemple, la dislocation cervicale) conformément aux directives institutionnelles.
- Ouvrir la cavité thoracique, prélever rapidement les cœurs et les rincer délicatement dans du sérum physiologique tamponné au phosphate (PBS) froid.
ATTENTION: L'euthanasie doit être réalisée conformément aux protocoles approuvés par l'institution.
- Ouvrir la cavité thoracique, prélever rapidement les cœurs et les rincer délicatement dans du sérum physiologique tamponné au phosphate (PBS) froid.
- Tranchez les cœurs, retirez les gros vaisseaux et sectionnez-les transversalement de l'apex à la base en 2 à 3 tranches (d'environ 2 à 3 mm d'épaisseur).
- Immerger les tranches de tissu dans du paraformaldéhyde à 4 % dans du PBS et les fixer à 4 °C pendant 12 à 24 h.
REMARQUE: Utiliser un rapport volumétrique de fixateur par rapport au tissu d'au moins 10:1.
ATTENTIONLe paraformaldéhyde est toxique et suspecté d'être cancérigène. Manipulez-le sous hotte chimique et portez des équipements de protection individuelle adaptés (gants, blouse de laboratoire, lunettes de sécurité). Éliminez les déchets de paraformaldéhyde comme déchets chimiques dangereux conformément aux directives institutionnelles.
- Immerger les tranches de tissu dans du paraformaldéhyde à 4 % dans du PBS et les fixer à 4 °C pendant 12 à 24 h.
- Déshydrater le tissu dans une série progressive d'éthanol (50 %, 70 %, 80 %, 95 %, 100 % d'éthanol, 1 h chacun), les dégraisser au xylène (2 changements, 30 min chacun), les inclure dans la paraffine et les couper en sections de 4–5 µm épaisseur à l'aide d'un microtome.
REMARQUE: Les sections doivent être exemptes de plis et de déchirures.
ATTENTION: Le xylène est inflammable et toxique. Utilisez-le uniquement sous une hotte aspirante et évitez tout contact avec la peau. Collectez les déchets de xylène dans un contenant désigné et éliminez-les comme déchets chimiques dangereux. - Déparaffiniser les coupes dans le xylène (2 changements, 5 à 10 minutes chacun), puis les réhydrater à l’aide d’une série descendante d’éthanol (100 %, 95 %, 80 %, 70 %, 3 minutes chacun) jusqu’à l’eau.
- Les colorer en utilisant l'hématoxyline-éosine standard (H&E)& ;E) (voir Table des matériels) et les protocoles de la trichromie de Masson (voir Table des matériels).
ATTENTIONLe xylène est toxique. Utilisez-le uniquement sous une hotte aspirante et évitez tout contact avec la peau. Éliminez les déchets de xylène comme matière dangereuse.
- Les colorer en utilisant l'hématoxyline-éosine standard (H&E)& ;E) (voir Table des matériels) et les protocoles de la trichromie de Masson (voir Table des matériels).
- Examiner les sections colorées au microscope optique (voir Table des matériels).
- Pour l'analyse quantitative, acquérir des images numériques à 4×, 20×, et 40× grossissement à l'aide d'une caméra numérique fixée au microscope. Mesurer la taille de l'infarctus et la zone fibrotique à l'aide d'ImageJ.
REMARQUE: Taille de l'infarctus (%) = (surface de l'infarctus / surface totale du VG) × 100 ; teneur en collagène (%) = (surface colorée en bleu / surface myocardique totale) × 100.
- Pour l'analyse quantitative, acquérir des images numériques à 4×, 20×, et 40× grossissement à l'aide d'une caméra numérique fixée au microscope. Mesurer la taille de l'infarctus et la zone fibrotique à l'aide d'ImageJ.
Résultats
Generation of Cracd-deficient mice
A heritable mouse model carrying a targeted deficiency in the Cracd gene was generated using CRISPR/Cas9-mediated genome editing (Figure 1A, Figure 1B). To distinguish WT, heterozygous, and homozygous genotypes, a multiplex PCR was performed using three primers (F1, F2, R1) in a single reaction. Mice homozygous for the deletion (Cracd‑deficient) displayed only the 421 bp band, WT mice showed only the 357 bp band (Figure 1C). Sanger sequencing of genomic DNA from Cracd-deficient mice confirmed the predicted deletion in the target gene compared to WT controls (Figure 1D). Western blot analysis further demonstrated a marked reduction in CRACD protein levels in cardiac tissues from Cracd-deficient mice compared with WT controls (Figure 1E). Together, these data confirm the successful establishment of the Cracd-deficient mouse line.
Echocardiography
Echocardiographic assessment on postoperative day 7 revealed pronounced pathological cardiac remodeling in WT mice after MI (WT-MI) compared with sham-operated controls (Figure 2A). The WT-MI group showed thinning of the interventricular septum (Figure 2B, C), significant left ventricular (LV) dilation as reflected by increased LVIDd (Figure 2D) and LVIDs (Figure 2E), and thinning of the posterior wall (Figure 2F, G). These structural alterations were associated with a pronounced decline in global systolic function, as demonstrated by significantly reduced EF (Figure 2H) and FS (Figure 2I). In contrast, Cracd-deficient mice displayed a cardioprotective phenotype following MI. LV dilation was significantly attenuated, with notably smaller LVIDd and LVIDs compared with the WT-MI group. Furthermore, these mice exhibited improved systolic thickening of the posterior wall and maintained significantly higher EF and FS values. These findings indicate that Cracd deficiency effectively attenuates post-infarction LV dilation and preserves global systolic function.
Speckle-tracking strain analysis
Left ventricular myocardial motion and deformation were further evaluated by speckle‑tracking echocardiography using only parasternal long‑axis views (Figure 3A). To ensure data reliability, we defined pragmatic criteria for acceptable output based on the capabilities of the VevoStrain software. Acceptable strain analysis required: (i) a clear parasternal long‑axis view with endocardial borders visible throughout the cardiac cycle; (ii) a stable heart rate between 450–550 bpm during acquisition; (iii) after automatic tracking, the colour‑coded mesh (activated via “toggle contour/vector/orbit line/B mode”) had to closely follow the endocardial and epicardial borders without jerking or losing contact; and (iv) strain curves had to be smooth, show consistent waveforms across segments, and lack sudden spikes or arrhythmic interruptions. Suboptimal output—most commonly erratic strain curves or inability to visualise clear motion trajectories—led to manual adjustment of endocardial or epicardial contours and re‑analysis. If quality remained poor after three attempts, the mouse was excluded. Using these criteria, we obtained reliable strain data in WT‑MI mice and Cracd‑deficient MI mice.
Compared with the sham group, WT-MI mice exhibited significantly reduced radial velocity (Figure 3B) and longitudinal velocity (Figure 3C), as well as radial displacement (Figure 3D) and longitudinal displacement (Figure 3E), indicating impaired global myocardial motion. The absolute values of radial strain (Figure 3F), radial strain rate (Figure 3G), longitudinal strain (Figure 3H), and longitudinal strain rate (Figure 3I) were also markedly decreased, reflecting severely compromised regional myocardial deformation and function. In contrast, Cracd-deficient mice showed significant improvement in these parameters. Compared with the WT-MI group, they displayed better recovery of radial and longitudinal displacements. Furthermore, radial velocity, radial strain, and radial strain rate were maintained at higher levels, while longitudinal strain and longitudinal strain rate were significantly improved. These results suggest that Cracd deficiency not only preserves global systolic function but also enhances regional LV myocardial deformation after MI.
The speckle‑tracking imaging analysis also included visualization of segmental strain distribution and cardiac motion trajectories. Parasternal long‑axis B‑mode images with segmented six regions (BA, MA, AA, AP, MP, BP) and color gradient mapping are displayed in Figure 4A. Cardiac motion trajectories, time‑to‑peak curves for radial and longitudinal strain, parametric distribution maps of strain synchrony, and three‑dimensional reconstructions are presented in Figure 4B. These data further support the functional improvements observed in Cracd‑deficient mice.
Histological examination
To assess the protective effect of Cracd deficiency against MI, histopathological examination was performed on heart sections from WT and Cracd-deficient mice at 7 days post-MI using H&E and Masson's trichrome staining. Whole‑heart longitudinal sections are shown in Figure 5A, with quantitative analysis of infarct size and collagen content presented in Figure 5B and Figure 5C, respectively. High‑magnification views of the infarct zone, border zone, and remote zone are displayed in Figure 5D. In WT-MI hearts, H&E staining showed pronounced left ventricular wall thinning and a well-demarcated infarct zone. Within the infarct region, extensive inflammatory cell infiltration, myocardial necrosis, and marked fibrosis with scar formation were observed. In the border zone, inflammatory infiltration, myocardial necrosis, fibrosis and cardiomyocyte hypertrophy were evident, while the remote zone displayed prominent hypertrophic changes. Corresponding Masson's trichrome staining further demonstrated extensive interstitial fibrosis within both the infarct and border zones of WT hearts following MI. In contrast, Cracd-deficient mice exhibited substantially attenuated pathological alterations, including reduced wall thinning, diminished inflammatory infiltration and myocardial necrosis, less pronounced cardiomyocyte hypertrophy, and markedly decreased interstitial fibrosis compared with WT-MI hearts. These histological findings indicate that Cracd deficiency mitigates post-infarction myocardial damage and adverse remodeling.
Successful protocol execution should yield: (i) a well‑demarcated infarct zone with extensive collagen deposition in WT-MI hearts; (ii) clear cellular morphology without staining artifacts; and (iii) significantly attenuated pathology in Cracd‑deficient MI hearts. Although infarct size may vary with ligation precision, the genotype‑dependent difference is a reliable indicator of successful performance.
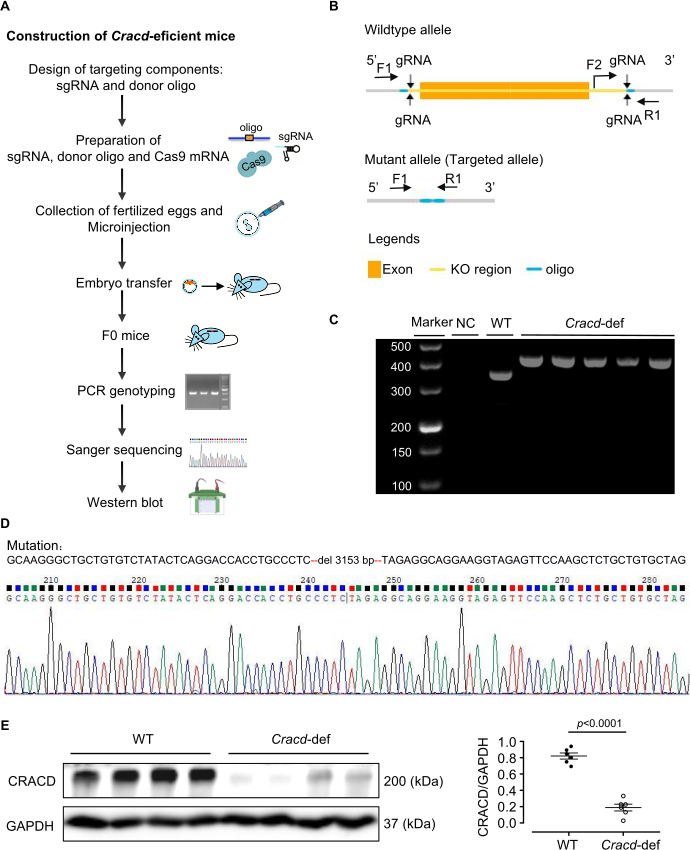
Figure 1: Generation of Cracd-deficient mice. (A) Construction of Cracd-deficient mice. (B) Schematic of the Cracd gene modification strategy. (C) PCR genotyping of tail genomic DNA. WT mice show a single 357 bp band, while homozygous (Cracd‑deficient) mice show a single 421 bp band. (D) Sanger sequencing of genomic DNA confirmed the predicted deletion in the Cracd locus of deficient mice compared to WT controls. (E) Western blot analysis showed significantly reduced CRACD protein levels in the hearts of Cracd-deficient mice compared to WT controls. n = 6 mice per group. Data are presented as mean ± SEM. Statistical significance was calculated with a two-tailed unpaired Student's t-test. Please click here to view a larger version of this figure.
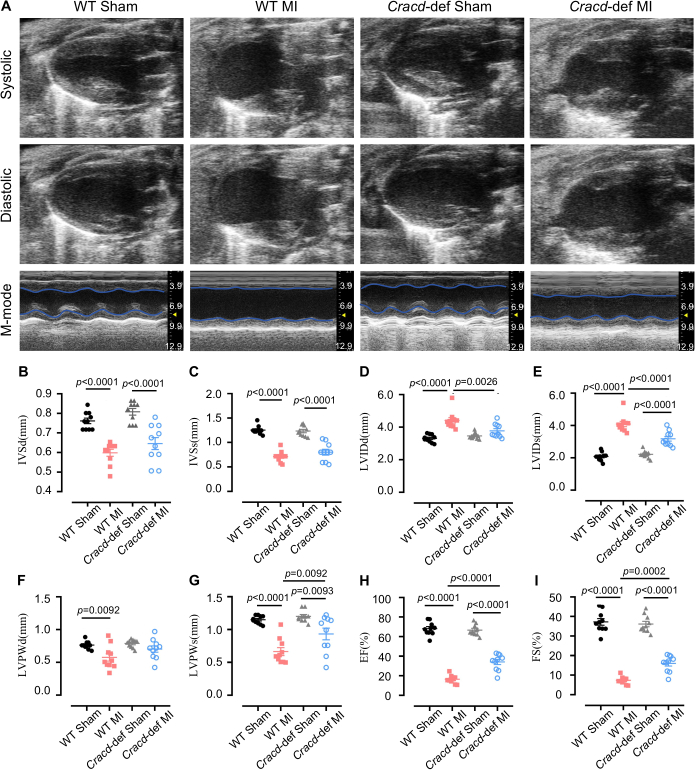
Figure 2: Echocardiographic assessment of cardiac function. (A) Representative B-mode and M-mode echocardiographic images of mouse hearts at diastole and systole. Quantitative analysis of (B) interventricular septum thickness at diastole (IVSd) and (C) systole (IVSs), (D) left ventricular internal diameter at diastole (LVIDd) and (E) systole (LVIDs), (F) left ventricular posterior wall thickness at diastole (LVPWd) and (G) systole (LVPWs), (H) ejection fraction (EF), and (I) fractional shortening (FS). n = 10 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
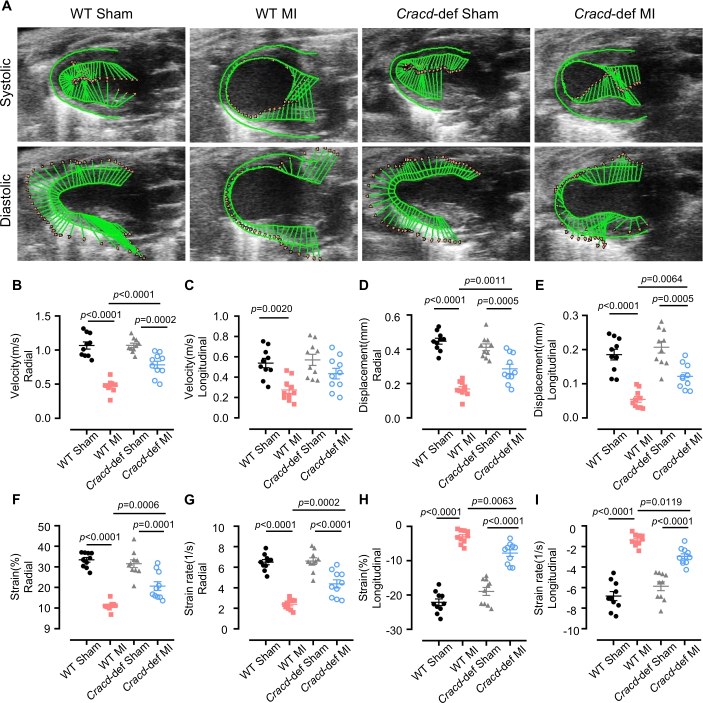
Figure 3: Speckle-tracking strain analysis. (A) Representative images of left ventricular wall motion and deformation at diastole and systole. Quantitative analyses of the following parameters: (B) radial velocity, (C) longitudinal velocity, (D) radial displacement, (E) longitudinal displacement, (F) radial strain, (G) radial strain rate, (H) longitudinal strain, and (I) longitudinal strain rate. n = 10 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
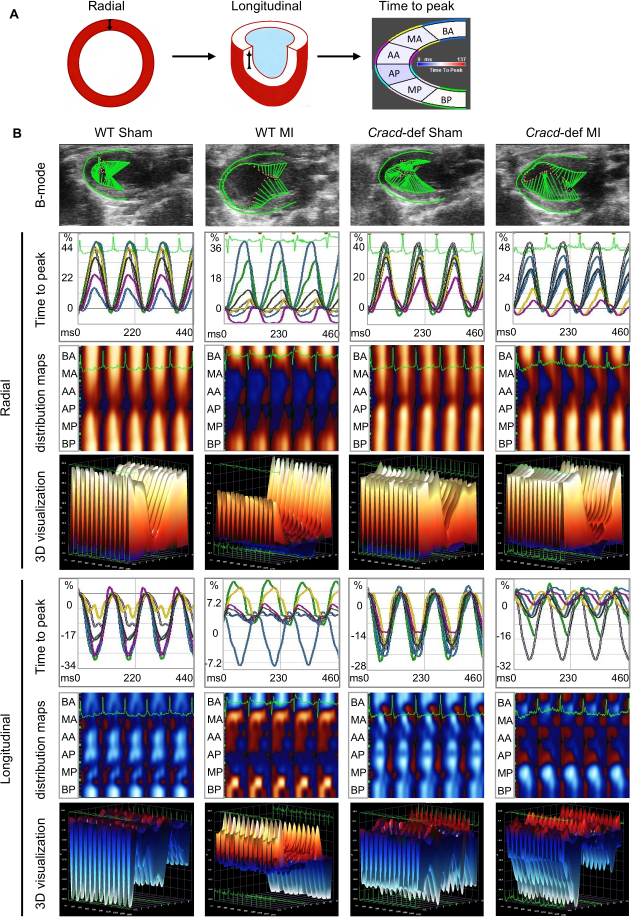
Figure 4: Speckle-tracking imaging in WT-Sham, WT-MI, Cracd-deficient Sham, and Cracd-deficient MI groups at 7 days post-MI. (A) Parasternal long‑axis B‑mode images. Left ventricular wall was segmented into six regions: BA (basal anterior), MA (mid anterior), AA (apical anterior), AP (apical posterior), MP (mid posterior), and BP (basal posterior). Color gradient from blue to red represents increasing strain magnitude. (B) Cardiac motion trajectories; time-to-peak curves for radial and longitudinal strain values along with corresponding peak times. Parametric distribution maps of strain synchrony (blue/red indicate direction: radial – away from/toward center; longitudinal – away from/toward apex). White dots = highest velocity regions, black dots = lowest velocity. Three-dimensional reconstructions (X: time, Y: spatial position, Z: strain magnitude). Please click here to view a larger version of this figure.
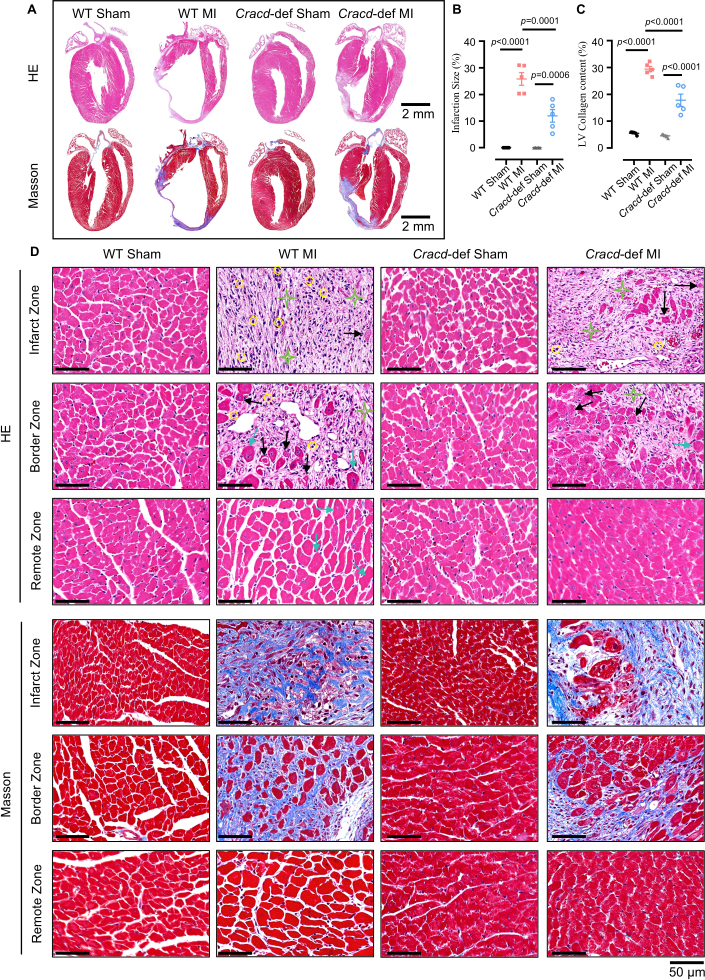
Figure 5: Histopathological analysis of cardiac remodeling after MI. (A) Whole-heart longitudinal sections with H&E and Masson's trichrome staining. Scale bars: 2 mm. (B) Quantitative analysis of infarct size and (C) collagen content. (D) High‑magnification views of infarct zone (IZ), border zone (BZ), and remote zone (RZ). H&E: yellow circles = inflammatory infiltration; black arrows = myocardial necrosis; green stars = fibrosis; blue arrows = hypertrophy. Masson’s trichrome: blue indicates collagen deposition. Scale bar: 50 μm. n = 5 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
Discussion
Dans cette étude, nous avons généré une souris déficiente pour Cracd à l'aide de CRISPR/Cas9 et mis en place un protocole pour la phénotyper après un infarctus du myocarde (IM) en utilisant l'échocardiographie conventionnelle, l'imagerie par corrélation de taches (speckle-tracking strain imaging) et l'histologie. Le protocole a permis d'obtenir des souris knock-out avec une perte confirmée de la protéine CRACD. Les souris déficientes pour Cracd présentaient une dilatation ventriculaire moindre, une meilleure fraction d'éjection (EF) et une fibrose réduite par rapport aux témoins de type sauvage (WT) après l'IM, confirmant ainsi l'utilité du modèle pour l'étude du remodelage cardiaque.
La réussite de ce modèle dépend de plusieurs étapes critiques. La conception du gRNA et sa validation in vitro influencent directement l'efficacité de l'édition des zygotes23. Nous utilisons CRISPick ou Benchling pour sélectionner des gRNAs ayant des scores CRISPRater ≥ 0,5, puis nous testons l'efficacité de clivage à l'aide d'un essai Cas9/gRNA in vitro. Seuls les gRNAs présentant un clivage > 50 % sont microinjectés. La ligature adéquate de l'artère interventriculaire antérieure (LAD) est tout aussi cruciale : la suture 7‑0 doit passer à 2–3 mm de l'origine de la LAD, à une profondeur de 0,5–1 mm, afin d'éviter de percer le ventricule droit (trop profond) ou de ne pas occlure le vaisseau (trop superficiel) ; le blanchissement immédiat de la paroi antérieure confirme l'occlusion. Le contrôle de la fréquence cardiaque pendant l'échocardiographie est également essentiel24 ; maintenir une fréquence de 450–550 bpm en ajustant l'isoflurane (généralement 1–2 %) améliore la reproductibilité des mesures conventionnelles et des mesures de déformation. Enfin, pour l'analyse par suivi de taches (speckle-tracking), l'évaluation visuelle du maillage codé en couleurs est indispensable25. Le maillage doit suivre les contours du myocarde sans à-coups ; sinon, un affinage manuel est nécessaire ; si la qualité reste médiocre après trois tentatives, la souris est exclue.
Même lorsque le protocole est suivi méticuleusement, certaines difficultés techniques peuvent survenir. Un dépannage systématique permet de résoudre la plupart d'entre elles. De faibles taux de transmission germinale (inférieurs à 10 %) indiquent généralement une mauvaise intégration de l'oligonucléotide donneur ou une activité faible de la gRNA26. Par conséquent, augmenter la concentration de l'oligo donneur à 20 ng/µL, allonger les bras d'homologie à 120–200 pb et vérifier à nouveau l'efficacité de coupure de la gRNA (> 50 %) peut améliorer la transmission. Une mortalité élevée après l'IM (supérieure à 30 %) est souvent due à un pneumothorax, à des saignements ou à une grande infarctus27. Ainsi, maintenir les souris sous oxygène continu jusqu'à leur réveil et utiliser un tapis chauffant pour conserver la température corporelle réduit nettement les taux de mortalité. Si la paroi antérieure ne devient pas pâle après la ligature, l'artère coronaire antérieure (LAD) a probablement été mal identifiée ou le point de suture est trop superficiel. Dans ce cas, localiser à nouveau la LAD (un vaisseau rouge vif en diagonale) et repasser l'aiguille à une profondeur de 0,5–1 mm, parfois à l'aide d'un microscope de dissection, permet de résoudre ce problème. En cas de mauvaise qualité du suivi par speckle, les causes habituelles sont une fréquence d'images trop basse, des contours flous ou des artefacts de mouvement28. En conséquence, augmenter la fréquence d'images, régler finement le gain, corriger manuellement le tracé endocardique et rejeter les cycles présentant des arythmies sont des mesures efficaces.
Outre ces considérations opérationnelles, la méthode présente des limites évidentes. Le gène Cracd est inactivé de manière globale, de sorte que CRACD est absent dans tous les tissus. Par conséquent, la protection observée ne peut pas être attribuée exclusivement aux cardiomyocytes, car des contributions systémiques peuvent également jouer un rôle. Un knockout conditionnel serait nécessaire pour distinguer les rôles spécifiques à chaque type cellulaire. Une autre limitation réside dans le seul point temporel analysé, au jour 7 ; ainsi, rien n'est connu sur le remodelage chronique. Par conséquent, des points temporels ultérieurs (4 ou 8 semaines) devraient être ajoutés pour des études à long terme. La reproductibilité dépend aussi de la qualité des images : tous les systèmes d'échographie ne permettent pas d'obtenir des limites endocardiques nettes, et l'expérience de l'opérateur est un facteur déterminant. Il est donc recommandé qu'une personne professionnellement formée réalise toutes les interventions chirurgicales et mesures.
Étant donné ces limites, il est utile de comparer notre approche à d'autres stratégies permettant d'étudier la fonction des gènes dans le remodelage post-infarctus. La modulation génique par AAV et les oligonucléotides antisens (ASO) sont deux alternatives courantes29,30. L'AAV9 permet une surexpression ou une inhibition transitoire spécifique du cœur sans nécessiter de croisement, mais sa limite d'emballage (~4,7 kb), son efficacité de transduction variable et ses effets hors cible en sont des inconvénients31. En revanche, notre modèle d'invalidation par CRISPR/Cas9 offre une perte de fonction permanente et complète, ce qui est avantageux pour les études à long terme. Les ASO permettent une inhibition réversible, dépendante de la dose et à début rapide, ce qui les rend adaptés aux interventions aiguës ; toutefois, ils nécessitent des administrations répétées et manquent de spécificité tissulaire32. Par conséquent, l'invalidation constitutive décrite ici est la mieux adaptée aux découvertes initiales et au phénotypage chronique.
Enfin, ce protocole peut être facilement étendu au-delà du CRACD. Le même flux opératoire — la génération de souris invalidées par CRISPR/Cas9 combinée à l'échocardiographie, à l'imagerie par corrélation de speckle (strain imaging) et à l'histologie — permet d'évaluer n'importe quel gène candidat dans le remodelage post-infarctus du myocarde. Le cadre de phénotypage s'adapte également à d'autres modèles de maladies cardiovasculaires, tels que la constriction aortique transverse (surcharge de pression) ou les lésions d'ischémie-reperfusion. De plus, les échantillons tissulaires obtenus grâce à ce protocole peuvent être utilisés pour des analyses multi-omiques (transcriptomique, protéomique, métabolomique) afin de révéler les mécanismes moléculaires sous-jacents. Le modèle déficient pour Cracd peut servir d'outil pour les tests pharmacologiques : les composés dont on soupçonne qu'ils agissent via la voie CRACD peuvent être évalués. Ainsi, ce protocole constitue une plateforme adaptable à un large éventail d'études mécanistiques et translationnelles en recherche cardiovasculaire.
Déclarations de divulgation
Les auteurs déclarent qu'ils n'ont aucun intérêt concurrentiel.
Remerciements
Ce travail a été soutenu par la Guangdong Basic and Applied Basic Research Foundation (2023A1515011278), le projet autofinancé de l'Institut de recherche en biotechnologie de la province du Guangdong (GDBRI-ZL202602) et l'échange et la coopération académiques Chine-Canada sur les modèles et la pathogenèse des maladies cardiovasculaires (MS202500058).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| ACRISPR/Cas9 | |||
| Solution de chlorure de Trizma | Sigma-Aldrich, USA | T2663 | Utilisée pour la préparation du tampon d'extraction d'ADN |
| Protéinase K | Sigma-Aldrich, USA | 539480 | Utilisée pour la digestion de la queue de souris |
| Green Taq Mix | Vazyme, Chine | P131 | Utilisée pour l'amplification par PCR |
| Agarose | BioFroxx, Allemagne | 1110GR500 | Utilisée pour l'électrophorèse sur gel d'ADN à une concentration de 1–2 % |
| Marqueur d'ADN | Thermo Scientific, USA | SM0242 | Utilisé comme échelle d'ADN pour la détermination de la taille des produits de PCR |
| Kit TIANamp d'extraction d'ADN génomique | Tiangen Biotech, Chine | DP304 | Utilisé pour l'extraction d'ADN génomique à partir de tissu de queue de souris |
| Kit de transcription MEGAshortscript™ T7 | Thermo Scientific, USA | AM1354 | Utilisé pour la transcription in vitro de l'ARN guide (gRNA) |
| Kit de purification d'ARN | Zymo Research, USA | R1016 | Utilisé pour la purification de l'ARN guide transcrit |
| Kit de criblage BeyoCRISPR™ sgRNA | Beyotime, Chine | D8412S | Utilisé pour l'évaluation in vitro de l'activité de clivage de l'ARN guide |
| Inhibiteur de RNase | NEB, USA | M0314 | Utilisé pour prévenir la dégradation de l'ARN pendant la transcription in vitro |
| TaKaRa Taq | Takara Bio, Japon | R001A | Utilisé pour le génotypage par PCR de l'ADN de la queue de souris |
| Milieu de préincubation des spermatozoïdes FERTIUP® pour souris : PM | Cosmo Bio, Japon | KYD-002-EX | Utilisé pour la capacitation des spermatozoïdes avant la fécondation in vitro |
| Kit T7 ARCA mRNA | NEB, USA | E2060 | Utilisé pour la transcription in vitro de l'ARN messager de Cas9 |
| Gonadotrophine sérique de jument enceinte | MCE, USA | 9002-70-4 | Utilisée pour l'hyperovulation, administrée par injection intrapéritonéale |
| Gonadotrophine chorionique humaine | ProSpec, Israël | HOR-250 | Utilisée pour induire l'ovulation, administrée par injection intrapéritonéale |
| Eau sans RNase | Aladdin, Chine | R665526 | Utilisée pour la dissolution de l'ARN et la préparation des réactions de PCR |
| Amorces | Sangon Biotech, Chine | / | Utilisées pour le génotypage |
| Chirurgie | |||
| Isoflurane | RWD Life Science, Chine | R510-22-10 | Utilisé pour l'induction et le maintien de l'anesthésie pendant la chirurgie |
| Crème dépilatoire | Veet, France | 1000207 | Appliquée sur la région thoracique pour éliminer le pelage avant la chirurgie et l'échographie |
| Fil de suture 7-0 | Lingqiao, Chine | LQ7022380206 | Utilisé pour la ligature permanente de l'artère coronaire antérieure descendante (LAD) |
| Fil de suture 4-0 | Lingqiao, Chine | LQ4022380412 | Utilisé pour la fermeture de l'incision cutanée après la chirurgie |
| Ventilateur d'anesthésie | Harvard Apparatus, USA | Tabletop | Utilisé pour délivrer l'isoflurane et assister la respiration |
| Ventilateur pour petit animal | Taimeng, Chine | HX-101E | Utilisé pour fournir une ventilation en pression positive pendant la chirurgie à cœur ouvert |
| Plaque chauffante à température constante | TigerGene, USA | TG-TP-GS | Utilisée pour maintenir la température corporelle de la souris pendant la chirurgie et la récupération |
| Écarteur costal | Shenzhen Huayon Biotech, Chine | LN-18-4101 | Utilisé pour écarter les côtes et exposer le cœur pour la ligature de l'artère LAD |
| Ciseaux | Shenzhen Huayon Biotech, Chine | 18-0551 | Utilisés pour réaliser les incisions cutanées et couper les tissus |
| Microscope stéréoscopique | Nikon, Japon | SMZ 745 | Utilisé pour fournir une vue agrandie pendant la chirurgie de ligature de l'artère LAD |
| Pince à aiguille microscopique | Shenzhen Huayon Biotech, Chine | 18-2211 | Utilisée pour manipuler l'aiguille fine de suture 7-0 sous microscope |
| Produits chimiques et réactifs | |||
| Agents de couplage ultrasonore | Tianjin Jinya Technology Development, Chine | TM-100 | Appliqués sur le thorax pour l'échocardiographie, assurent un bon contact de la sonde |
| Paraformaldéhyde | Sigma-Aldrich, USA | V900894 | Utilisé pour la fixation du tissu cardiaque après prélèvement |
| Xylène | Macklin, Chine | 1330-20-7 | Utilisé pour l'élimination de la paraffine et la clarification des tissus avant coloration |
| Hématoxyline | Sigma-Aldrich, USA | H3136 | Colorant nucléaire, utilisé dans la coloration HE |
| Éosine | Sigma-Aldrich, USA | E4009 | Colorant cytoplasmique, utilisé dans la coloration HE |
| Ponceau S | Sigma-Aldrich, USA | P3504 | Utilisé dans la coloration de Masson pour la coloration du cytoplasme |
| Acide phosphomolybdique | Sigma-Aldrich, USA | 221856 | Utilisé dans la coloration de Masson comme mordant et pour la différenciation |
| Solution de bleu d'aniline | Sigma-Aldrich, USA | 415049 | Utilisée dans la coloration de Masson pour la coloration des fibres de collagène (en bleu) |
| Anticorps anti-CRACD | Absea, Chine | KC-35356 | Anticorps primaire pour la détection de la protéine CRACD par Western Blot, dilution 1:2000 |
| Anticorps anti-GAPDH | CST, USA | 2118S | Anticorps de contrôle de chargement pour Western Blot, dilution 1:5000 |
| Éthanol | Macklin, Chine | 64-17-5 | Utilisé pour la déshydratation et la préparation des réactifs (concentrations 70 %, 80 %, 95 %, 100 %) |
| Équipements de laboratoire | |||
| Centrifugeuse Sorvall™ Legend™ Micro 17 | Thermo Scientific, USA | 75002541 | Utilisée pour la préparation courante des échantillons |
| Cycleur thermique pour PCR | Bio-Rad Laboratories, USA | 1861096 | Utilisé pour l'amplification de l'ADN |
| Système de microinjection | Eppendorf, Allemagne | 5193000020 | Utilisé pour la microinjection des réactifs CRISPR/Cas9 dans les zygotes |
| Système d'imagerie Vevo 2100 | VisualSonics, Canada | Vevo2100 | Système d'imagerie à haute fréquence pour l'évaluation non invasive de la fonction et de la structure cardiaques après infarctus du myocarde |
| Microscope optique | Leica, Allemagne | DM2500 | Utilisé pour l'observation des coupes cardiaques colorées à l'HE et à la Masson |
| Logiciels d'analyse | |||
| ImageJ | National Institutes of Health, USA | / | Utilisé pour l'analyse d'images, y compris la mesure des surfaces, la quantification de signaux et le traitement des images histologiques (colorations HE et Masson) |
| VevoLab 3.2.0 / VevoStrain | VisualSonics, Canada | / | Logiciel VevoLab pour l'analyse de la fonction cardiaque ; module VevoStrain utilisé pour l'analyse de la déformation myocardique afin d'évaluer la performance cardiaque après infarctus du myocarde |
| GraphPad Prism 8 | GraphPad Software, USA | / | Utilisé pour l'analyse statistique et la préparation des graphiques |
Références
- Fauconnier J, Meli AC, Thireau J, Roberge S, Shan J, Sassi Y, et al. Ryanodine receptor leak mediated by caspase-8 activation leads to left ventricular injury after myocardial ischemia-reperfusion. Proc. Natl. Acad. Sci. U. S. A. 2011;108(32):13258-63.
- Cohn JN, Ferrari R, Sharpe N. Cardiac remodeling-concepts and clinical implications: a consensus paper from an international forum on cardiac remodeling. J Am Coll Cardiol. 2000.
- Liu D, Tian X, Liu Y, Song H, Cheng X, Zhang X, et al. CREG ameliorates the phenotypic switching of cardiac fibroblasts after myocardial infarction via modulation of CDC42. Cell Death Dis. 2021;12(4).
- Contessotto P, Pandit A. Therapies to prevent post-infarction remodelling: from repair to regeneration. Biomaterials. 2021;275.
- Zhu R, Sun H, Yu K, Zhong Y, Shi H, Wei Y, et al. Interleukin-37 and dendritic cells treated with interleukin-37 plus troponin I ameliorate cardiac remodeling after myocardial infarction. J Am Heart Assoc. 2016;5(12).
- Chang Y, Zhang J, Huo X, Qu X, Xia C, Huang K, et al. Substrate rigidity dictates colorectal tumorigenic cell stemness and metastasis via CRAD-dependent mechanotransduction. Cell Rep. 2022;38(7).
- Seo Y, Jang J, Ko KP, Zou G, Huang Y, Zhang S, et al. Actin dysregulation induces immune evasion via oxidative stress-activated PD-L1 in gastric cancer. bioRxiv. 2024.
- Kim B, Zhang S, Huang Y, Ko KP, Jung YS, Jang J, et al. CRACD loss induces neuroendocrine cell plasticity of lung adenocarcinoma. Cell Rep. 2024;43(6).
- Jung YS, Wang W, Jun S, Zhang J, Srivastava M, Kim MJ, et al. Deregulation of CRAD-controlled cytoskeleton initiates mucinous colorectal cancer via β-catenin. Nat Cell Biol. 2018;20(11):1303-14.
- Liu Z, Cao H, Shi Y, Yang R. KIAA1211 plays an oncogenic role in human non-small cell lung cancer. J Cancer. 2019;10(26):6747-53.
- Snider PL, Snider E, Simmons O, Lilly B, Conway SJ. Analysis of uncharacterized mKiaa1211 expression during mouse development and cardiovascular morphogenesis. J Cardiovasc Dev Dis. 2019;6(2).
- Lin YH, Warren CM, Li J, McKinsey TA, Russell B. Myofibril growth during cardiac hypertrophy is regulated through dual phosphorylation and acetylation of the actin capping protein CapZ. Cell Signal. 2016;28(8):1015-24.
- Yang FH, Pyle WG. Reduced cardiac CapZ protein protects hearts against acute ischemia-reperfusion injury and enhances preconditioning. J Mol Cell Cardiol. 2012;52(3):761-72.
- Tong C, Huang G, Ashton C, Wu H, Yan H, Ying QL. Rapid and cost-effective gene targeting in rat embryonic stem cells by TALENs. J Genet Genomics. 2012;39(6):275-80.
- Cordes SP. N-ethyl-N-nitrosourea mutagenesis: boarding the mouse mutant express. Microbiol Mol Biol Rev. 2005;69(3):426-39.
- Cong L, Ran FA, Cox D, Lin S, Barretto R, Habib N, et al. Multiplex genome engineering using CRISPR/Cas systems. Science. 2013;339(6121):819-23.
- Kanke KL, Rayner RE, Bozik J, Abel E, Venugopalan A, Suu M, et al. Single-stranded DNA with internal base modifications mediates highly efficient knock-in in primary cells using CRISPR-Cas9. Nucleic Acids Res. 2024;52(22):13561-76.
- Mihos CG, Liu JE, Anderson KM, Pernetz MA, O'Driscoll JM, Aurigemma GP, et al. Speckle-tracking strain echocardiography for the assessment of left ventricular structure and function: a scientific statement from the American Heart Association. Circulation. 2025;152(10).
- Garg PK, Biggs ML, Kizer JR, Shah SJ, Psaty B, Carnethon M, et al. Glucose dysregulation and subclinical cardiac dysfunction in older adults: the Cardiovascular Health Study. Cardiovasc Diabetol. 2022;21(1).
- Asanuma T, Fukuta Y, Masuda K, Hioki A, Iwasaki M, Nakatani S. Assessment of myocardial ischemic memory using speckle tracking echocardiography. JACC Cardiovasc Imaging. 2012;5(1):1-11.
- Chong SY, Zharkova O, Yatim SMJM, Wang X, Lim XC, Huang C, et al. Tissue factor cytoplasmic domain exacerbates post-infarct left ventricular remodeling via orchestrating cardiac inflammation and angiogenesis. Theranostics. 2021;11(19):9243-61.
- Hung CL, Verma A, Uno H, Shin SH, Bourgoun M, Hassanein AH, et al. Longitudinal and circumferential strain rate, left ventricular remodeling, and prognosis after myocardial infarction. J Am Coll Cardiol. 2010;56(22):1812-22.
- Labuhn M, Adams FF, Ng M, Knoess S, Schambach A, Charpentier EM, et al. Refined sgRNA efficacy prediction improves large- and small-scale CRISPR-Cas9 applications. Nucleic Acids Res. 2018;46(3):1375-85.
- Wu J, Bu L, Gong H, Jiang G, Li L, Ma H, et al. Effects of heart rate and anesthetic timing on high-resolution echocardiographic assessment under isoflurane anesthesia in mice. J Ultrasound Med. 2010;29(12).
- Voigt JU, Pedrizzetti G, Lysyansky P, Marwick TH, Houle H, Baumann R, et al. Definitions for a common standard for 2D speckle tracking echocardiography: consensus document of the EACVI/ASE/Industry Task Force to standardize deformation imaging. J Am Soc Echocardiogr. 2015;28(2):183-93.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29).
- Gao E, Lei YH, Shang X, Huang ZM, Zuo L, Boucher M, et al. A novel and efficient model of coronary artery ligation and myocardial infarction in the mouse. Circ Res. 2010;107(12):1445-53.
- Rösner A, Barbosa D, Aarsæther E, Kjønås D, Schirmer H, D'Hooge J. The influence of frame rate on two-dimensional speckle-tracking strain measurements: a study on silico-simulated models and images recorded in patients. Eur Heart J Cardiovasc Imaging. 2015;16(10):1137-47.
- Argiro A, Bui Q, Hong KN, Ammirati E, Olivotto I, Adler E. Applications of gene therapy in cardiomyopathies. JACC Heart Fail. 2024;12(2):248-60.
- Micheletti R, Plaisance I, Abraham BJ, Sarre A, Ting CC, Alexanian M, et al. The long noncoding RNA Wisper controls cardiac fibrosis and remodeling. Sci Transl Med. 2017;9(395).
- Wu Z, Yang H, Colosi P. Effect of genome size on AAV vector packaging. Mol Ther. 2010;18(1):80-6.
- Juliano RL. The delivery of therapeutic oligonucleotides. Nucleic Acids Res. 2016;44(14):6518-48.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible