הריסנית הענקית Stentor coeruleus היא מערכת קלאסית לחקר התחדשות וריפוי פצעים בתאים בודדים. על ידי הדמיית תאי סטנטור בו זמנית בהגדלה נמוכה וגבוהה ניתן למדוד זרימות ציטופלזמיות לפני, במהלך ואחרי פציעה.
מאמר שיטה
הדמיה של זרימה ציטופלזמית במהלך ריפוי פצע של תא בודד ב-Stentor coeruleus
במאמר זה
סיכום
תקציר
למרות שלעתים קרובות מטפלים בריפוי פצעים ברמת רקמות שלמות, במקרים רבים תאים בודדים מסוגלים לרפא פצעים בתוך עצמם, ולתקן קרום תא שבור לפני שהתוכן התאי דולף החוצה. האורגניזם החד-תאי הענק Stentor coeruleus, שבו תאים יכולים להיות בגודל של יותר ממילימטר אחד, היה אורגניזם מודל קלאסי לחקר ריפוי פצעים בתאים בודדים. ניתן לחתוך תאי סטנטור לשניים ללא אובדן כדאיות, ואף ניתן לחתוך אותם ולהשתיל אותם יחד. אך הסובלנות הגבוהה הזו לחיתוך מעלה את השאלה מדוע הציטופלזמה לא פשוט זורמת החוצה מגודל החיתוך. כאן אנו מציגים שיטה לחיתוך תאי סטנטור תוך הדמיה של תנועת הציטופלזמה בקרבת החיתוך ברזולוציה מרחבית וזמנית גבוהה. המפתח לשיטה שלנו הוא שימוש בתצורת מיקרוסקופ "דו-קומתי" בה הניתוח מבוצע תחת מיקרוסקופ מנתח הממוקד בתא הנצפה בו זמנית מלמטה ברזולוציה גבוהה באמצעות מיקרוסקופ הפוך עם עדשת NA גבוהה. הגדרה זו מאפשרת רמה גבוהה של שליטה על ההליך הכירורגי תוך מתן אפשרות למעקב ברזולוציה גבוהה אחר ציטופלזמה.
מבוא
התחדשות וריפוי פצעים הם תהליכים ביולוגיים חשובים שהמנגנונים שלהם נשארים תחומי מחקר פעילים. ואכן, היכולת לרפא פצעים ולחדש חלקים פגומים היא אחת התכונות המבדילות יצורים חיים מחפצים דוממים. בדרך כלל, התחדשות נחשבת מתווכת על ידי התמיינות של תאי גזע לסוגי תאים שונים הדרושים לבנייה מחדש של חלק בעל חיים פגום או קטוע, בעוד שריפוי פצעים נתפס במונחים של תאים חדשים הפולשים לפצע כדי לבנות מחדש אפיתל שלם. לפיכך, נראה כי שני התהליכים מתווכים על ידי קולקטיבים של תאים בודדים, ולכן נראים כתהליכים רב-תאיים מובהקים. לכן זה מפתיע שתאים בודדים מסוגלים, במקרים מסוימים, לתקן פצעים ולחדש רכיבים שאבדו1. ריפוי פצעים בתוך תאים בודדים יכול לכלול מספר מסלולים כולל התכווצות חוט ארנק אקטין-מיוזין סביב הפצע ותיקון הממברנה על ידי איחוי מהיר של שלפוחיות אקסוציטוטיות1-3. אף על פי שסוגי תאים רבים מסוגלים לרפא פצעים ברמה מסוימת4-6, אולי הדוגמה הדרמטית ביותר היא הריסנית הענקית Stentor coeruelus7, שמוצגת באיור 1. תאי סטנטור בודדים הם באורך 1 מ"מ, ומכוסים בשורות של ריסים. תאי סטנטור הם בצורת חרוט עם מנגנון אוראלי, המורכב מאלפי ריסים, בקצה אחד, ומבנה אחיזה צר בקצה השני. סטנטור היה אורגניזם מודל קלאסי לחקר התחדשות מכיוון שאם חלק כלשהו של התא נחתך, הוא יכול היה להתחדש7. לדוגמה, בסדרת ניסויים קלאסית, תומאס האנט מורגן8 הראה שניתן לחתוך תא סטנטור לשניים וכל חצי ייצר מחדש תא בעל פרופורציות נורמליות תוך שעותספורות. המסלולים המולקולריים האחראים להתחדשות בסטנטור נותרו לא ידועים לחלוטין.
היכולת של תאי סטנטור לשמש כמערכת מודל התחדשות מסתמכת על היכולת המדהימה של תאים אלה לרפא את עצמם לאחר שנחתכו. מדוע הציטופלזמה של תא סטנטור אינה דולפת החוצה כאשר התא נחתך? ריפוי פצעים אינו נובע מהתכווצות מיידית של קליפת התא, מכיוון שאפשר לקחת שני תאי סטנטור, לחתוך אותם ואז לחבר את שני התאים החתוכים יחד בתצורות שונות7. במהלך ניסויי השתלה כאלה, הציטופלזמה של שני התאים חייבת להישאר חשופה מכיוון שהיא מתמזגת כאשר התאים נדחפים זה לזה. איכשהו, הציטופלזמה חשופה מספיק למדיה שמסביב כדי לאפשר השתלה, אך עדיין היא לא זורמת החוצה מהתא. האם הציטופלזמה של סטנטור אלסטית מספיק שהיא פשוט לא יכולה לזרום החוצה גם כאשר נוצר חור גדול בקרום הפלזמה? האם תאים מגבירים את צמיגות הציטופלזמה באופן מקומי סביב פצע כדי למנוע מהציטופלזמה לזרום החוצה? ציטופלזמה היא חומר פעיל מורכב ביותר9-11, ותגובת ריפוי הפצע של סטנטור מייצגת הזדמנות ייחודית לחקור זרימות ומכניקה ציטופלזמית במהלך ריפוי פצעים של תא בודד. עם זאת, השימוש בשיטות כירורגיות כדי לגרום לפציעה בסטנטור מהווה אתגר טכני. על מנת לחתוך תא באורך 1 מ"מ באמצעות מחטי זכוכית, הפרדיגמה הכירורגית הקונבנציונלית, יש צורך לפעול בהגדלה נמוכה עם מרחק עבודה ארוך. בתנאי הדמיה אלה, לא ניתן לעקוב אחר זרימת הציטופלזמה, וכל מה שניתן לקבוע הוא האם הציטופלזמה נשארת בתוך התא או לא. השאלה האמיתית שאנו רוצים לשאול היא כיצד התנועה והצמיגות של הציטופלזמה עשויות להשתנות במהלך החיתוך והריפוי. זה דורש הדמיה ברזולוציה גבוהה. כאן אנו מציגים התאמה של פרוטוקול טרטר לחיתוך סטנטור7 המאפשר לבצע את החיתוך באופטיקה בהגדלה נמוכה יותר כדי לראות את התא כולו תוך התבוננות בזרימת הציטופלזמה ברזולוציה גבוהה, מה שמאפשר להשתמש במערכת זו כפלטפורמה לחקר המנגנונים של ריפוי פצעים של תא בודד.
פרוטוקול
1. תרבית תאים ואיסוף
- השג תאי Stentor coeruleus מבריכות טבעיות כמתואר על ידי טרטר7 או מספק מסחרי (ראה ריאגנטים).
- שמור על תרבויות על ידי גידול בחושך בטמפרטורה של 20 מעלות צלזיוס במדיום סטנטור שונה (MSM), המותאם ממתכונים שתוארו על ידי טרטר7 ודה טרה12 המכילים 0.75 מ"מ Na2CO3, 0.15 מ"מ KHCO3, 0.15 מ"מ NaNO3, 0.15 מ"מ KH2PO4, 0.15 מ"מ MgSO4, 0.5 מ"מ CaCl2, ו-1.47 מ"מ NaCl.
- השלם את מדיום ה-MSM עם מקור פחמן על ידי הוספת טרף חי למדיום. לגדל תרביות של מדיום Chlamydomonas reinhardtii TAP בשיטות גידול סטנדרטיות13. לפני ההאכלה יש לשטוף את תאי הכלמידומונס ב-MSM. האכילו 300 מ"ל תרביות סטנטור ~ 3 x 10⁷ תאי כלמידומונס 2-3x בשבוע.
- אסוף תאי סטנטור לניתוח באמצעות פיפטה. סטנטור נוטה לעגן לתחתית ולדפנות צלחת התרבית וכך, על מנת לאסוף תאים, לעורר את התרבית על ידי בעבוע אוויר דרך קצה פיפטה עד שהתאים מתחילים להתנתק ולשחות בחופשיות.
- לכוד תאי שחייה באמצעות פיפטה המצוידת בקצה רחב כדי למנוע גזירה של התאים.
- שטפו תאים שנאספו ב-MSM טרי.
2. הכנת כלים למיקרוכירורגיה
- החזק שני מוטות ערבוב זכוכית מעל מבער בונסן או להבה אחרת עד שהקצוות מתחילים להמיס.
- גע בקצות שני המוטות יחד כך שהזכוכית המותכת תתמזג.
- לאחר יצירת טיפה קטנה של זכוכית מותכת בין שני המוטות, הסר אותם מהלהבה, הניח להתקרר במשך 1-2 שניות ולאחר מכן הפריד אותם כדי ליצור הפסקה נקייה. באופן אידיאלי, הזכוכית תימשך החוצה לחוטים דקים ותישבר בצורה חלקה כאשר הזכוכית מתקררת וכתוצאה מכך מחט באורך של כ-1-2 ס"מ עם חוד דק בקצה (איור 2).
- אם המחט המתקבלת אינה אופטימלית, הקצוות עלולים להישבר לפסולת זכוכית וניתן לעשות שימוש חוזר במוטות.
3. הרכבה של תאים למיקרו-כירורגיה ותצפית (ניתוח רגיל)
- הכן תא מרובע עם קירות וזלין באמצעות חותמת גומי מרובעת המצופה בווזלין ונלחץ על כיסוי זכוכית.
- הוסף MSM המכיל 2% מתיל צלולוז לריבוע הווזלין.
- הנח את הכיסוי במתאם פלסטיק, המאפשר למקם את הכיסוי על מיקרוסקופ עם מחזיק שקופיות סטנדרטי (איור 3).
- הוסף תאים שטופים משלב 1.6 ל-MSM בתוספת מתיל צלולוז כדי לעכב את התנועתיות של תאי הסטנטור כך שיישארו במקומם במהלך הניתוח.
- סדר תאים במתיל צלולוז כך שהם יהיו מרווחים באופן שווה ונדחפים קרוב מספיק לפני השטח של החלקת הכיסוי כדי להיות ממוקדים במהלך ההדמיה.
4. הדמיה ברזולוציה גבוהה של ריפוי פצעים בסטנטור חי
כדי לדמות בו זמנית תא סטנטור ברזולוציה גבוהה תוך חיתוך כירורגי בהגדלה נמוכה, בנה מיקרוסקופ "דו-קומתי" עם סקופ חיתוך המחובר לראש העינית של הסקופ ההפוך כך שהוא ממוקד בחלק העליון של השקופית בעוד הסקופ ההפוך ממוקד מתחת לשקופית.
- שים שקופית על הסקופ ההפוך (השתמש ב-Zeiss Axiovert 200M או ב-Olympus IX80).
- הסר את גוף המיקרוסקופ המנתח מהמעמד שלו וקבע מיקום משוער מעל עינית המיקרוסקופ ההפוכה להצבת היקף חיתוך כדי לאפשר הדמיה של השקופית בהגדלה נמוכה.
- שנה קופסת קרטון כך שתהיה בעובי זהה למרווח הרצוי בין ראש עינית היקף הפוך לטווח הניתוח, ולאחר מכן הדביק לתוך היקף הפוך באמצעות סרט מעבדה שניתן להסיר בקלות בסיום הניסוי. התאם את עובי הקופסה בהתאם לתצורה המדויקת של ראש העינית של המיקרוסקופ ההפוך ולפי גודל המיקרוסקופ המנתח, כך שהדגימה תהיה בשדה הראייה ללא צורך להזיז את היקף החיתוך לאחר חיבורו.
- החזק את טווח החיתוך כנגד הקופסה, הזז אותו עד שהשקופית תהיה ממוקדת, ולאחר מכן הדבק שוב על הקופסה באמצעות סרט מעבדה. התצורה הסופית מוצגת באיור 4.
- תאי תמונה באמצעות היקף הפוך באמצעות אופטיקה DIC ועדשת אובייקט אוויר פי 20. השתמש במעבה DIC למרחק עבודה ארוך כדי לספק מספיק מקום לביצוע המיקרו-כירורגיה מלמעלה.
- קבל תמונות בקצב פריימים של 2 תמונות לשנייה באמצעות מצלמת CCD של 512 x 512.
- התחל ברכישה לפני שמתחילים לחתוך את התאים כדי ללכוד את דפוס הזרימה הציטופלזמי הראשוני ולהתבונן בכל שלבי תהליך הפציעה וריפוי הפצעים.
- הפסקת הרכישה כאשר התא חזר למראה תקין ו/או תנועתיות פעילה, על מנת לדמיין ולמדוד תנועות ציטופלזמיות לאורך תהליך ההתחדשות.
5. ניתוח זרימה ציטופלזמית במהלך ריפוי פצעים
מדוד זרימה ציטופלזמית באמצעות מהירות תמונת חלקיקים (PIV). טכניקה זו היא שגרתית בחקר דינמיקת זורמים, ויכולה ליצור שדות זרימה בהיעדר חלקיקים הניתנים למעקב בנפרד בנוזל. PIV שימש למדידת זרימות של ציטופלזמה על סמך הדמיית שלפוחיות תת-תאיות ותכונות אחרות הנראות בציטופלזמה על ידי מיקרוסקופ אורמועבר 14.
- הורד את PIVLab, חבילת MATLAB עבור PIV, מאתר האינטרנט http://pivlab.blogspot.com/.
- טען את ערימת התמונות tiff עבור כל רצף וידאו לתוכנית PIV בתוך MATLAB.
- צרו מסיכה ידנית לכל אוסף תמונות כדי להסוות אזורים של הנתונים הגולמיים מחוץ לגוף של Stentor.
- הגדר את PIVLab להשתמש בהגדרת ההמרה המהירה של פורייה ובגודל סל של 64 x 64 פיקסלים, שיכניס את הפיקסלים בכל מסגרת לפיקסלים מרובעים גדולים יותר.
- הפעל את PIVLab כדי לחשב מתאמים צולבים בין הפיקסלים בכל מסגרת עם פיקסלים סמוכים בפריים הבא כדי להניב וקטור זרימה תלוי זמן המרוכז בכל פיקסל מאוחסן, בעל רזולוציית זמן זהה לנתונים הגולמיים שלנו.
- חשב ממוצעי זמן של פלט השדה הווקטורי המתקבל כדי ליצור קווי יעילות להשוואה בין נתונים שנלקחו עם ה-Stentor לפני החיתוך ובמהלך ריפוי הפצעים, וחשב היסטוגרמות של מהירויות זרימה (כדי לחקור את חוזק הזרימה) ושינוי המהירות בפיקסל נתון לאורך זמן (כדי לחקור תנודות זרימה).
- עבור רצפי תמונה עם סטנטור חצוי לשניים וציטופלזמה דולפת באופן גלוי למאגר שמסביב, חשב את השטף הכולל של ציטופלזמה בחזרה לגוף התא הנכון על ידי הכפלת מהירות הזרימה הממוצעת בשטח החתך של בסיס הבועה החוץ-תאית של הציטופלזמה.
תוצאות
באמצעות הפרוטוקולים שתוארו לעיל, נמצא כי הציטופלזמה של Stentor היא דינמית להפליא, הן לפני החיתוך והן אחריו. סרטון 1 מראה את הזרימה הנרחבת של הציטופלזמה הקיימת בתאים שלא נחתכו. למרות ציפיותינו המקוריות כי יכולתו של ה-Stentor לשרוד חיתוך תכלול התקשחות או ג'לטינציה של הציטופלזמה, למעשה, כאשר תאי Stentor נחתכים בעוצמה מספקת כדי לשאוב את הציטופלזמה אל מחוץ לתא, הציטופלזמה נשארת דינמית מאוד ומצליחה לזרום חזרה אל תוך התא באופן מכוון מאוד (סרטון 2).
בנוסף להדגמה של דרגה בלתי צפויה של תנועה ציטופלזמית במהלך ריפוי פצעים, ניתן להשתמש ברזולוציה הגבוהה של ההדמיה במדידה זו כדי לכמת את קצבי הזרימה באמצעות ולוצימטריה של תמונות חלקיקים (particle image velocimetry). היכולת לבצע מדידות own כאלה תאפשר בחינה קפדנית של השפעתם של מעכבים כימיים.
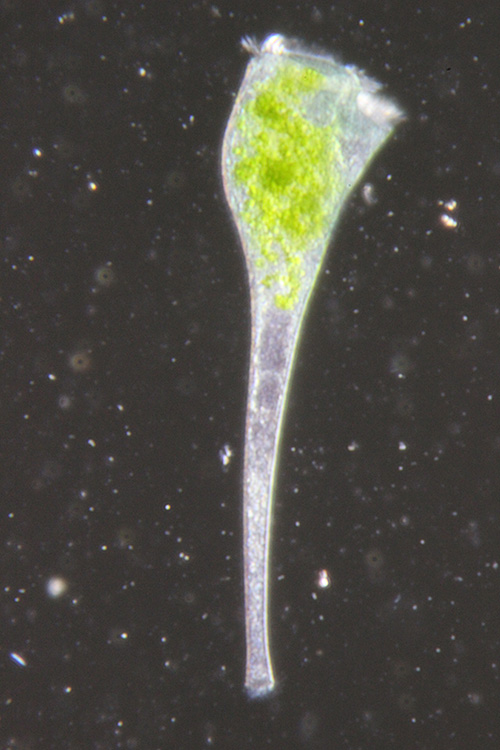
איור 1. מורפולוגיה של תא Stentor חי. תמונת שדה אפל של תא Stentor חי שהוזן ב-Chlamydomonas כפי שמתואר בפרוטוקול 1.3, הנראה כחומר ירוק בתוך ואקואולות מזון. המנגנון הפהי שדרכו התא ניזון נראה כטבעת של ריסונים בחלקו העליון של האיור.
לחצו כאן להצגת תמונה גדולה יותר.

איור 2. הכנת מחט זכוכית לניתוח. (A) המחט נמשכת מקצהו של מוט זכוכית מוצק. (B) תצוגה בהגדלה גבוהה של קצה המחט המצביעה על האורך והחדות הדרושים לניתוח.
לחצו כאן להצגת תמונה גדולה יותר.
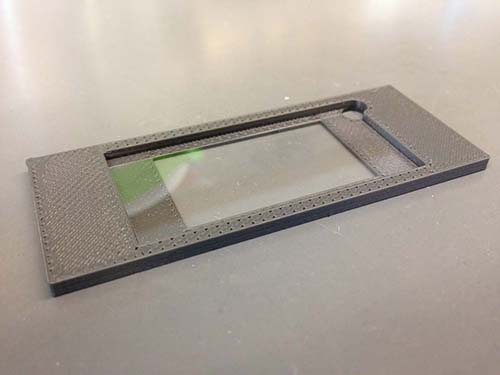
איור 3. מחזיק מותאם אישית לזכוכית כיסוי עבור מיקרו-כירורגיה. כדי לאפשר גישה פתוחה לניתוח תוך שמירה על תנאי דימוי אופטימליים, תאים מורכבים על זכוכית כיסוי במקום על משקפת זכוכית עבה. כדי לאפשר לזכוכית הכיסוי להתאים לבמה של המיקרוסקופ, ניתן לייצר מחזיק פלסטיק באמצעות מדפסת תלת-ממד. למחזיק יש את אותם ממדים של משקפת מיקרוסקופ סטנדרטית, בעוד שהשקע שבמרכזו תואם לממדי זכוכית הכיסוי. חור באחת הפינות מאפשר להוציא את זכוכית הכיסוי מהמחזיק.
לחץ כאן להצגת תמונה גדולה יותר.
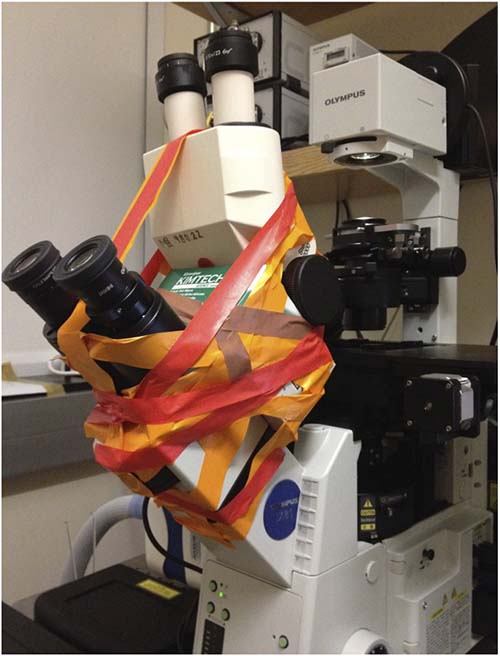
איור 4. תצורת מיקרוסקופ דו-קומתי. ראש של מיקרוסקופ סטריאוסקופי מורכב מעל ראש העינית של מיקרוסקופ הפוך. סרט דביק למעבדה מאפשר הרכבה ופירוק מהירים של המכשיר עם סיום הניסוי.
לחץ כאן להצגת תמונה גדולה יותר.
סרטון 1. דוגמה לזרימה ציטופלזמית שנצפתה בתא חי של Stentor. התא צולם באמצעות עדשה 10X עם אופטיקת שדה אפל בקצב של 2 פריימים לשנייה.
סרטון 2אנידימוי של סטנטור (Stentor) התא בעת חיתוכו והפרעתו באמצעות מחט זכוכית. לאחר החיתוך, כמות ניכרת של ציטופלזמה נמשכת החוצה מגוף התא המרכזי, אך היא זורמת במהירות חזרה אל התא.
דיון
היישום החשוב ביותר של שיטה זו יהיה להשתמש בה כדי לקבוע את המסלולים המולקולריים המווסתים את הזרימה הציטופלזמית במהלך ריפוי פצעים בסטנטור. קיים מגוון רחב של מעכבים כימיים המכוונים לחלבונים מוטוריים כמו גם לרכיבים של השלד הציטולוגי. מעכבי איתות סידן יהיו גם מועמדים סבירים. כמו כן, יהיה מעניין להסיר או להפחית את גרגירי הפיגמנט (אקסטרוזומים) המכילים את הפיגמנט הכחול סטנטורין, ששחרורו מהתא מופעל תחת לחץ, ולשאול כיצד השחרור האקסוציטוטי של סטנטורין עשוי להשפיע על זרימת הציטופלזמה הסמוכה. ניתן לרוקן את הפיגמנט באמצעות טיפול הלבנה פשוט15 שניתן לעשות ממש לפני החיתוך. לא נראה שיש דרך פשוטה לבצע את בדיקת ריפוי הפצע בצורה מקבילה מכיוון שצריך לחתוך ולדמות את התאים אחד בכל פעם. לפיכך, באמצעות מיקרוסקופ יחיד, ניתן יהיה לנתח ולמדוד תאים בקצב של בערך 1 ל-0.5 שעה, כך שבמהלך יום עבודה בודד אמור להיות אפשרי להשיג מספיק נקודות נתונים עבור תרכובת בודדת כדי לקבוע אם יש לה השפעה מובהקת סטטיסטית על התהליך. בעוד שהשיטה אינה אפוא בשום מובן תפוקה גבוהה, יהיה אפשרי לחלוטין לסנן קבוצה נבחרת של תרכובות מועמדות ספציפיות לכמה מסלולי מטרה שנבחרו בקפידה.
מגבלה עיקרית של הגישה הנוכחית היא השיטה הגסה יחסית להרכבת המיקרוסקופ הדו-קומתי. בהנחה שהמיקרוסקופ ההפוך המשמש להדמיה הוא מכשיר לשימוש כללי שעובדים אחרים צריכים להשתמש בו למטרות אחרות, שיקול חשוב הוא הקלות שבה ניתן לפרק ולהרכיב מחדש את המכשיר. בעוד שהשיטה הנוכחית המשתמשת בסרט מעבדה היא אכן מהירה ומפורקת בקלות, היא דורשת יישור קפדני על ידי המשתמש במהלך ההרכבה בכל פעם. שינוי חשוב יהיה אפוא בניית מחזיק נשלף מותאם אישית עם חריצים לראש העינית של הסקופ ההפוך ולגוף משקף הניתוח. זה אמור להיות קל לייצור באמצעות טכנולוגיית מדפסת תלת מימד מודרנית.
מגבלה שנייה של הגישה היא ההסתמכות על הדמיית DIC של אברונים תוך-תאיים כסמני זרימה. מכיוון שזהותם של אברונים אלה שנצפו במיקרוסקופ אינה ידועה כיום, לא ניתן לדעת את גודלם או את האינטראקציות הפוטנציאליות שלהם עם רכיבים תאיים אחרים. לכן זה עשוי להיות יתרון להזריק עוקבים חיצוניים כגון חרוזים פלואורסצנטיים ולהשתמש בהם כדי לעקוב אחר הזרימה. עם זאת, זה ידרוש שלב נוסף - מיקרו-הזרקה - לפני שניתן יהיה לבצע את הניסוי, ובכך להאט עוד יותר את הבדיקה.
מגבלת המפתח הסופית היא ההסתמכות על מישור תמונה יחיד לרכישת נתונים. החשיבות העיקרית של בדיקה זו היא שהיא חורגת מסתם לשאול אם פצע נרפא או לא, ומאפשרת לקבל ניתוח מפורט של דפוס הזרימה. בהקשר זה, יהיה חשוב ביותר להרחיב את ההדמיה להדמיה תלת מימדית. השיטה הנוכחית מצלמת מישור מוקד יחיד ולכן כאשר מבוצע ניתוח PIV, התוצאה היא פרוסה דרך שדה הזרימה התלת מימדי המלא. זה אינפורמטיבי אבל לא שלם. על ידי רכישת תמונות תלת מימד בכל שלב זמן, אמור להיות אפשרי להשיג שדה זרימה תלת מימדי מלא. זה יהיה קריטי במיוחד להתבוננות כיצד בדיוק הציטופלזמה נעה בסביבה הקרובה של אתר הפצע.
גילויים
המחברים מצהירים שאין להם אינטרסים פיננסיים מתחרים.
תודות
העבודה הזו נתמכה על ידי מענק R01 GM090305 של ה-NIH (WFM). ההליך המתואר כאן פותח בקורס הפיזיולוגיה של המעבדה הביולוגית הימית במהלך קיץ 2012, ואנו מודים לסטודנטים, למדריכים ולמנהלי הקורסים על דיונים מועילים ומעוררים רבים.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Stentor coeruleus תרבית חיה | Carolina Biological 131598 | ||
| Methyl Cellulose, 1,500 cP | Sigma | M0387 | |
ציוד: | |||
| שם החומר שם | החברה | מספר | |
| ערבוב זכוכית רכה 5 בארוכה | פישר סיינטיפיק | 11-380A | |
| צלחת תרבות 4.5 ב-250 מ"ל זכוכית | קרוליינה ביולוגית | 741004 | |
| IX81 מיקרוסקופ הפוך | אולימפוס | ||
| Axiovert 200M מיקרוסקופ הפוך | Zeiss | ||
| Stemi 2000 מיקרוסקופ סטריאו | Zeiss | ||
| Evolve 512 x 512 EMCCD מצלמה | פוטומטרית | ||
| תוכנית Apo 20X אובייקטיבי | אולימפוס | UPLSAPO |
מקורות
- Sonnemann, K. J., Bement, W. M. Wound repair: toward understanding and integration of single-cell and multicellular wound responses. Annu. Rev. Cell Dev. Biol. 27, 237-264 (2011).
- Idone, V., Tam, C., Andrews, N. W. Two-way traffic on the road to plasma membrane repair. Trends Cell Biol. 18 (11), 552-559 (2008).
- Reddy, A., Caler, E. V., Andrews, N. W. Plasma membrane repair is mediated by Ca2+-regulated exocytosis of lysosomes. Cell. 106 (2), 157-169 (2001).
- Foissner, I., Wastenays, G. O. The characean internodal cell as a model system for studying wound healing. J. Microsc. 247 (1), 10-12 (2012).
- Bement, W. M., Mandato, C. A., Kirsch, M. N. Wound-induced assembly and closure of an actomyosin purse string in Xenopus oocytes. Curr. Biol. 9 (11), 579-587 (1999).
- Kim, H. G., Klotchkova, T. A., Kang, Y. M. Life without a cell membrane: regeneration of protoplasts from disintegrated cells of the marine green alga Bryopsis plumosa. J. Cell Sci. 114 (11), 2009-2014 (2001).
- Tartar, V. The Biology of Stentor. , Pergamon Press. 434 (1961).
- Morgan, T. H. Regeneration of proportionate structures in Stentor. Biol. Bull. 2 (6), 311-328 (1901).
- Heidemann, S. R., Wirtz, D. Towards a regional approach to cell mechanics. Trends Cell Biol. 14 (4), 160-166 (2004).
- Kasza, K. E., Rowat, A. C., Liu, J., Angelini, T. E., Brangwynne, C. P., Koenderinck, G. H., Weitz, D. A. The cell as a material. Curr. Opin. Cell Biol. 19 (1), 101-107 (2007).
- Mitchison, T. J., Charras, G. T., Mahadevan, L. Implications of a poroelastic cytoplasm for the dynamics of animal cell shape. Sem. Cell Dev. Biol. 19 (3), 215-223 (2008).
- De Terra, N. Culture of Stentor coeruleus on Colpidium campylum. J. Eukar. Microbiol. 13 (3), 491-492 (1966).
- Harris, E. H. The Chlamydomonas Sourcebok. 1, (2009).
- Vallotton, P., Ponti, A., Waterman-Storer, C. M., Salmon, E. D., Danuser, G. Recovery, visualization, and analysis of actin and tubulin polymer flow in live cells: a fluorescent speckle microscopy study. Biophys. J. 85 (2), 1289-1306 (2003).
- Miyake, A., Harumoto, T., Iio, H. Defence function of pigment granules in Stentor coeruleus. Eur. J. Protistol. 37 (1), 7-88 (2001).
הדפסות חוזרות והרשאות
