הפרעות גנטיות מסוימות או חשיפה לרעלים עלולות לשבש תהליכי התפתחות תקינים ולהוביל למוות של סוגי תאים ספציפיים. הניתוח של Caspase 3 המופעל על ידי אימונופלואורסצנציה שלמה בעוברי דג הזברה חושף לוקליזציה ספציפית לשלב ולרקמות של תאים העוברים אפופטוזיס באופן ספציפי.
מאמר שיטה
ניתוח של אפופטוזיס בעוברי דג הזברה על ידי כל הר Immunofluorescence לזיהוי caspase הופעל 3
במאמר זה
סיכום
תקציר
immunofluorescence כל ההר כדי לאתר 3 הופעלו caspase (assay Casp3) הוא שימושי כדי לזהות תאים עוברים אפופטוזיס הפנימי או חיצוני בעוברי דג הזברה. ניתוח כל ההר מספק מידע מרחבי בכל קשור לייחוד רקמה של תאי apoptosing, אם כי חתך ו / או colabeling נדרש סופו של דבר לאתר את סוגי התאים בדיוק עוברים אפופטוזיס. Assay כל הר Casp3 מותאם במיוחד עבור ניתוח של עוברים קבועים בין שלב 4 תאים ו32 HR-לאחר ההפריה והוא שימושי עבור מספר היישומים, כולל ניתוח של מוטציות וmorphants דג הזברה, ביטוי יתר של סוג הפראי שעבר מוטציה ו mRNAs, וחשיפה לכימיקלים. בהשוואה לכתמים כתומים acridine, אשר יכול לזהות תאים אפופטוטיים בעוברת לחיות בעניין של שעות, מבחני Casp3 וTunel ייקחו הרבה יותר זמן כדי להשלים (2-4 ימים). עם זאת, בשל האופי הדינמי של היווצרות תאים אפופטוטיים ואישור, ניתוח של תיקוןעוברי ed מבטיח השוואה מדויקת של תאים אפופטוטיים פני דגימות מרובות בנקודות זמן ספציפיות. יש לנו גם מצאתי assay Casp3 להיות עדיף על ניתוח של תאים אפופטוטיים ידי assay כל הר Tunel לגבי עלות ואמינות. בסך הכל, assay Casp3 מייצג assay חזק, מאוד לשחזור שבו כדי לנתח את התאים אפופטוטיים בעוברי דג הזברה מוקדמים.
מבוא
כאן אנו מתארים כיצד לבצע אימונופלואורסצנציה שלמה בעוברי דג זברה מוקדמים כדי לזהות תאים עם Caspase 3 מופעל (להלן מבחן Casp3). המטרה הכוללת של שיטה זו היא לזהות את השפע והמיקום היחסי של תאים אפופטוטיים בדגי הזברה משלב 4 התאים ועד 32 שעות לאחר ההפריה (hpf).
הן מסלולים אפופטוטיים פנימיים (בתיווך מיטוכונדריה) והן חיצוניים (בתיווך קולטני מוות) מתווכים את מוות התאים באמצעות הפעלת מפל הקספאז1-2. קספזות יוזמות קיימות בדרך כלל כמונומרים בתוך התא, וברגע שהן מגויסות לפלטפורמות ספציפיות למסלול בתגובה לאות פרו-אפופטוטי, הן הופכות לדימרים מופעלים. קספזות יוזמות מופעלות (Caspase 9; מסלול פנימי, ו-Caspase 8; מסלול חיצוני) מכוונות לאחר מכן לקספזות האפקטור הטרדימרי והלא פעיל (Caspase 3, 6, 7) למחשוף ליצירת הטרוטרמרים פעילים. לאחר מכן, קספזות אפקטור אקטיביות מבקעות מטרות תאיות עם שאריות טטרפפטיד ספציפיות כדי ליזום את ההרס הפרוטאוליטי הספציפי שמגיע לשיאו בסימני ההיכר האולטרה-מבניים של אפופטוזיס, כגון עיבוי כרומטין ובליפת ממברנה, ואותות פני התא המתווכים את אריזת התא לבליעה על ידי פגוציטים בצורה שקטה חיסונית. בתאי יונקים, קספזות אפקטור אקטיביות נחשבות כמבצעות את רוב אירועי המחשוף התאי המתווכים אפופטוזיס דרך המסלולים הפנימיים והחיצוניים1-2. הפרוטוקול המתואר כאן משתמש בנוגדנים הקושרים באופן ספציפי את הצורה ההטרוטרמרית השסועה של קספאז 3, אך לא את הדימר הלא פעיל של קספאז 3.
אחד היתרונות של בדיקת Casp3 הוא היכולת לדמיין את ההתפלגות המרחבית של תאים אפופטוטיים בהקשר של העובר כולו. לכן, ניתן לבחון רקמות מעניינות לנוכחות תאים אפופטוטיים, ואם קיימים נוגדנים או זנים טרנסגניים פלואורסצנטיים המסמנים סוגי תאים ספציפיים, ניתן לאתר את הזהות המדויקת של תאים העוברים אפופטוזיס באמצעות ניסויי תיוג משותף. מספר קבוצות השתמשו בהצלחה ב-Caspase 3 המופעל כסמן לאפופטוזיס בעוברי דג זברה (למשל 3-7). טכניקות נוספות להרכבה שלמה לזיהוי תאים אפופטוטיים בעוברי דג זברה כוללות את מבחן TUNEL8 וצביעה כתומה אקרידין (AO)9. השתמשנו בכל שלוש השיטות כדי לזהות תאים אפופטוטיים בעוברי דג הזברה4,6,10.
צביעתTUNEL (Terminal deoxynucleotidyl transferase dUTP nick end labeling) מנצלת את האנזים Terminal deoxynucleotidyl Transferase (TdT) המשמש להוספת נוקלאוטידים לקצוות הידרוקסיל 3' של DNA במהלך רקומבינציה של VDJ בלימפוציטים11. TdT מוסיף dUTP-ביוטין לקבוצות הידרוקסיל 3' ב-DNA, הנמצאות בשפע בעיקר בתאים אפופטוטיים. לאחר מכן הרקמות נחשפות לאבידין-פרוקסידאז, ותאים אפופטוטיים נצבעים עם הוספת המצע 3-אמינו-9-אתילקרבזול. בדיקת TUNEL שימשה לביצוע ניתוח מקיף של תאים אפופטוטיים במהלך התפתחות עוברית ברקמות דג זברה מסוג בר12. בדומה לבדיקת Casp3, בדיקת TUNEL מבוצעת רק על עוברים קבועים. מצאנו שבדיקת Casp3 עקבית יותר וזולה יותר מבדיקת TUNEL.
צביעת AO תוארה לראשונה כמנגנון לזיהוי ספציפי של תאים אפופטוטיים בדרוזופילה13. AO מכתים הן את הציטופלזמה והן את הגרעין של תאים אפופטוטיים, אך לא נמקיים. ידוע היטב ש-AO קושר חומצות גרעין14, וזה נחשב כמסביר את הצביעה הגרעינית. עם זאת, AO אינו מכתים את הכרומטין של תאים חיים; במקום זאת, נראה ששינויים ספציפיים המתרחשים במהלך אפופטוזיס מאפשרים אינטרקלציה וצביעה של גרעינים אפופטוטיים מעובים15. לצביעה של AO יש יתרון של ניתוח אפופטוטי מהיר של עוברים חיים. עם זאת, תיעוד דגימות חייב להתבצע במהירות בשל האופי הדינמי של היווצרות ופינוי תאים אפופטוטיים. מצד שני, קיבוע בו זמנית של כל הדגימות מספק תמונת מצב של אפופטוזיס בזמן נתון על פני כל הדגימות ואינו כפוף למשתנה זמני זה. לפיכך, מכיוון שניתוח תאים אפופטוטיים על ידי צביעת AO אינו תואם לעוברים קבועים, בדיקת Casp3 עדיפה לניסויים שבהם נדרש תיעוד צילומי ו/או כימות על פני מספר דגימות.
פרוטוקול
1. הכנת פתרונות
- הכן 500 מ"ל של 1x PBST (1x PBS, 0.1% Tween-20), ועקר מסנן. ניתן לשמור 1x PBST בטמפרטורת החדר (RT) ללא הגבלת זמן כל עוד אין סימנים לצמיחת חיידקים.
- זהירות: הכינו 50 מ"ל של 4% פרפורמלדהיד (PFA) במכסה מנוע כימי על ידי המסת אבקת PFA ב-1x PBS ב-60 מעלות צלזיוס למשך שעה וכיסוי בנייר אלומיניום להגנה מפני אור. יש לאחסן בטמפרטורה של 4 מעלות צלזיוס למשך חודש, או בטמפרטורה של -20 מעלות צלזיוס למשך שנתיים.
- הכינו 500 מ"ל של 1x PDT טרי (1x PBST, 0.3% Triton-X, 1% DMSO). ניתן לאחסן 1x PDT בטמפרטורה של 4 מעלות צלזיוס עד חודש.
- הכן 50 מ"ל של מאגר חוסם (1x PBST, 10% סרום בקר עוברי מושבת בחום, 2% אלבומין סרום בקר). צור 10 מ"ל מינקוטים, ואחסן בטמפרטורה של -20 מעלות צלזיוס עד שנה. לאחר ההפשרה, ניתן לאחסן את המאגר החוסם בטמפרטורה של 4 מעלות צלזיוס למשך עד 48 שעות.
- מכינים 100 מ"ל מתיל צלולוז 4% על ידי חימום 30 מ"ל מים ל-80 מעלות צלזיוס. מוסיפים 4 גרם מתיל צלולוז למים החמים, ומערבבים בעזרת מוט ערבוב על צלחת ערבוב בטמפרטורת החדר. ערבוב יסודי לוקח בדרך כלל בין 4 שעות ללילה. מוסיפים את שארית המים (הלא מחוממים), ומערבבים בחום של 4 מעלות צלזיוס למשך שעה. אחסן ב-RT.
- אם משתמשים בעוברים בין שלב ניצן הזנב ל-32 hpf, הכינו 50 מ"ל של 10 מ"ג/מ"ל פרונאז, ואחסנו עד שבוע ב-4 מעלות צלזיוס. אחרת, אחסן ב-10 מ"ל ב-20 מעלות צלזיוס למשך עד שנה.
- מניחים 50 מ"ל של 100% מתנול ב-20 מעלות צלזיוס.
- הכן פי 60 מי ביצים על ידי המסת 280 גרם מלח ים אוקיינוס מיידי ב -2 ליטר מים מזוקקים (כמו בווסטרפילד16). הכן 1x מי ביצים על ידי דילול ציר 60x במים נטולי יונים.
2. הכנת עוברים
- אסוף עוברי דג זברה בצלחת פטרי במי ביצים פי 1 בין שלב 4 התאים ל-32 hpf.
- עבור עוברים בין שלבי 4 התאים לניצני הזנב, המשך לשלב 2.2.
- עבור עוברים בין שלב ניצני הזנב ל-32 hpf, הסר כוריון על ידי הוספת 100 מיקרוליטר של 10 מ"ג/מ"ל פרונאז לעוברים ב-10 מ"ל של מי ביצים 1x.
- הערה: פעילות הפרונאז יכולה להיות משתנה בין אצוות. לפיכך, יש לבצע אופטימיזציה של ריכוז הפרונאז הסופי לדכוריונציה כאשר מתקבלות קבוצות חדשות.
- מניחים לדגור בטמפרטורת החדר למשך 30 דקות.
- יוצקים מי ביצים / תמיסת פרונאז לפסולת, ומוסיפים לאט לאט מי ביצים טריים.
- שוטפים פעמיים על ידי שפיכת מי ביצים קיימים (וכוריונים צפים חופשיים), ומוסיפים בעדינות מי ביצים חדשים.
- הערה: יש להסיר את רוב הכורונים בשלב זה. בעזרת פיפט העברה, מצצו בעדינות עוברים למעלה ולמטה עד להסרת הכוריונים הנותרים.
- העבירו עד 40 עוברים לשפופרת של 1.5 מ"ל. יש לשטוף פעמיים עם 1 מ"ל של 1x PBST.
- הסר PBST, והשאיר נוזל ממש מעל העוברים (נפח של כ-100 מיקרוליטר צריך להישאר בצינור). הוסף 1 מ"ל של 4% PFA. הניחו את הצינורות על צידם (כך שהעוברים יתפשטו לאורך הצינור) במיכל בגודל מתאים כדי להקל על ההובלה (למשל צלחת פטרי או קופסת פיפט), והניחו על נדנדה עדינה בטמפרטורה של 4 מעלות צלזיוס למשך הלילה או עד שבוע.
- עבור עוברים בין שלב 4 התאים לניצני הזנב, יש לבצע דה-כוריונציה ידנית של העוברים הקבועים בעזרת מלקחיים.
3. הליך אימונופלואורסצנטי
- הניחו את הצינורות במתלה צינורות כך שכל העוברים ישקעו לתחתית הצינור. הסר PFA (למיכל פסולת מתאים) והשאיר נוזל ממש מעל מפלס העוברים. לאחר הקיבוע (שלב 2.3), אין לחשוף את העוברים לאוויר על מנת למנוע הכתמת נוגדנים ברקע.
- הוסף 1 מ"ל של 100% מתנול קר כקרח (לחדירה) בטיפה. העוברים כעת שבירים לאחר הקיבוע, ויש לנקוט משנה זהירות כדי למנוע מהם ליפול בתוך הצינורית במהלך כל ההסרה/הוספה של הנוזלים שלאחר מכן. הניחו צינורות על דפנותיהם, והניחו בחום של -20 מעלות צלזיוס למשך שעתיים. לחלופין, ניתן להשאיר עוברים בטמפרטורה של -20 מעלות צלזיוס עד 24 שעות.
- הניחו צינורות במתלה כדי לאסוף עוברים בתחתית הצינור. הסר מתנול והשאיר נוזל ממש מעל מפלס העוברים.
- יש להוסיף בזהירות 1 מ"ל 1x PDT. הסר את ה-PDT והוסף 1 מ"ל של 1x PDT טרי. הניחו צינורות על צידיהם ונדנדו בעדינות ב-RT למשך 30 דקות. יש להסיר את ה-PDT ולחזור על הכביסה במשך 30 דקות עם PDT טרי.
- הסר PDT עד שהנוזל נמצא מעט מעל מפלס העוברים, והוסף חיץ חוסם של 500 מיקרוליטר.
- הניחו את העוברים על צידם במיכל הובלה, וודאו שהעוברים לא יעברו יותר מ-2/3 לאורך הצינור. אחרת, עוברים נתפסים במכסה הצינור ומחוץ לנוזל.
- הנח בזהירות את מיכל ההובלה עם הצינורות על נדנדה עדינה מאוד ב-RT למשך שעה.
- העמידו את הצינורות זקופים במתלה צינורות, ופתחו את כל הצינורות כדי לבדוק אם יש עוברים תקועים על המכסה. עבור כל צינור עם עוברים על המכסה, סגור את החלק העליון ונדנד בעדינות את הצינור ביד כדי להחזיר את כל העוברים לנוזל.
- הוסף 1 מיקרוליטר נוגדן קספאז 3 אנטי פעיל של ארנב (דילול 1:500).
- אם מבצעים ניסוי תיוג משותף, פשוט הוסיפו את הדילול המתאים של הנוגדן השני שאינו שמקורו בארנב בנוסף לנוגדני Caspase 3 האנטי-מופעל.
- הניחו בזהירות את העוברים על צדם, ונדנדו בעדינות בטמפרטורת החדר למשך שעתיים. לחלופין, ניתן לדגור עוברים בטמפרטורה של 4 מעלות צלזיוס למשך הלילה.
- העמידו צינורות במתלה צינורות. יש להסיר את תמיסת החסימה/נוגדנים. הוסף 1 מ"ל של 1x PDT. הקפד להפוך את הצינור ביד כדי לאסוף את כל העוברים שנתקעו על מכסה הצינור. לאחר מכן, פתח את כל הצינורות כדי לוודא שכל העוברים הוסרו מהמכסה.
- חזור על שלב 3.4.
- חזור על שלבים 3.5-3.10, אך החלף את נוגדן Caspase 3 האנטי-מופעל בדילול מתאים של נוגדן מצומד נגד ארנב פלואורופור הסופג אור כחול ופולט אור ירוק. עם זאת, ניתן להשתמש כאן בכל נוגדן מצומד פלואורופור עם ספקטרום ספיגה/פליטה מועדף על המשתמש. לאחר הוספת הנוגדן המשני, חשוב לשמור את העוברים בחושך למשך שארית הבדיקה. מכסים את מיכל ההובלה בנייר אלומיניום במהלך שלבי הדגירה, אך אל תדאגו לחשיפה לאור בעת החלפת מאגרים.
- אם מבצעים ניסוי תיוג משותף, פשוט הוסף את הדילול המתאים של נוגדן משני משלים מצומד פלואורופור בשלב זה.
- הערה: אם המשתמש מעוניין לתייג את הנוגדן הפעיל-קספאז 3 עם תאים המבטאים Gfp, אזי הנוגדן האנטי-אקטיבי של קספאז 3 של הארנב צריך להיות מלווה בנוגדנים משניים נגד ארנב שאינו פלואורסצנטי לא ירוק, והנוגדן נגד GFP צריך להיות אחריו נוגדן משני שאינו ארנב פלואורסצנטי ירוק. זה ימנע בלבול אם חלק מהפלואורסצנטיות של Gfp נשארת גלויה לאחר קיבוע העוברים.
4. ניתוח תאים אפופטוטיים על ידי מיקרוסקופיה פלואורסצנטית
- נתח עוברים ב-1x PDT בצלחת פטרי קטנה או בצלחת זכוכית תחת מיקרוסקופ פלואורסצנטי באמצעות מסנן האור המתאים. אם לפקדים חיוביים יש פלואורסצנטיות בהירה עם רקע מינימלי, המשך לשלב 4.2. (אם לא, עיין בסעיף פתרון הבעיות בדיון, וחזור על הפרוטוקול עם עוברים חדשים.) ניתן לאחסן עוברים בטמפרטורה של 4 מעלות צלזיוס ב-PDT אחד למשך עד 48 שעות.
- יוצקים 4% מתיל צלולוז בצלחת פטרי בגודל 3.5 ס"מ, מספיק כדי לכסות את תחתית המנה. לחלופין, ניתן להשתמש בצלחת ספוט מזכוכית או בשקופית שקע עם טיפה גדולה של מתיל צלולוז בשקע. מוצצים בזהירות עוברים מתחתית הצינור לתוך צינור העברה נקי ומעבירים לצלחת פטרי להדמיה.
- לכוון עובר מעניין לתיעוד באמצעות בדיקה זוויתית. סביר להניח שתהיה שונות מסוימת בין עוברים מאותה דגימה, ולכן חשוב לצלם תמונות המייצגות את עוצמת הקרינה והדפוס שנצפו ברוב העוברים מאותה דגימה. יש לבצע תיעוד תוך 48 שעות מהשלמת הבדיקה כדי למנוע הצטברות של פלואורסצנטיות רקע לא ספציפית. שאריות של 4% מתיל צלולוז לא יפריעו לתגובות ה-PCR הבאות הנדרשות לגנוטיפ של עוברים.
- הערה: כדי לסייע בקיבוע של עובר בזווית מסוימת, כדאי לדחוף בעדינות את העובר לתחתית הכלי כך שהחלמון או חלק אחר של העובר (תלוי בתצוגה הרצויה) מונח על תחתית המנה. לאחר מכן, השתמש בבדיקה כדי להזיז את העובר או את המתיל צלולוז שמסביב (תוך הדמיה בו זמנית תחת המיקרוסקופ) כדי להשיג את הזווית הרצויה לתיעוד.
תוצאות
בדיקת ה-Casp3 מספקת ראיות ברורות לתאים אפופטוטיים משלב 4 התאים ועד 32 hpf. איור 2A מראה כי הזרקה לעוברי ריכוזים גבוהים של mRNA המקודד לחלבוני bh3-only פרו-אפופטוטיים עוצמתיים, כגון Bim או Noxa, מובילה במהירות להיווצרות active-Caspase 3 כבר בשלב 4 התאים של ההתפתחות. מוות עוברי מתרחש לאחר מכן תוך שעה אחת4. שימו לב שעוצמת הפלואורסצנציה היא מתונה, אך התוצאות הן חד-משמעיות. בשלבים מאוחרים יותר, עוצמת הפלואורסצנציה היא חזקה יותר. לדוגמה, איור 2B מראה תאים בהירים חיוביים ל-active-Caspase 3 בעוברי שלב ה-sphere שהוזרקו להם רמות רעילות בינוניות4 של mRNA המקודד לגן ה-bh3-only הפרו-אפופטוטי puma. mRNA המקודד לגן ה-anti-apoptotic bcl-2 הוזרק במקביל כדי להוכיח כי הזרקת mRNA של puma משרה אפופטוזיס דרך המסלול הפנימי המתווך על ידי מיטוכונדריה.
אפופטוזיס מושרה על ידי קרינה מייננת (IR) בדגי זברה דורש שעתוק של גנים מסוג bh3-only, כגון, המתווך על ידי p53 פומה5-6העיכוב באפופטוזיס המושרה על ידי הקרנה (IR) ב- איור 3 עולה בקנה אחד עם הדרישה לתעתוק המתווך על ידי p53.
פרוטוקול ה-Casp3 אמור להניב יחס אות לרעש חזק. איור 4 משווה את תוצאת בדיקת ה-Casp3 האופטימלית לשתי תוצאות תת-אופטימליות נפוצות המתרחשות כאשר שלבים קריטיים נפגעים (ראה דיון): יחס אות לרעש חלש עקב פלואורסצנציית רקע ברקמת בעלי חיים ופלואורסצנציית חלמון המסיחה את הדעת מהאות המבוקש.
ניסויי סימון כפול באמצעות קווים טרנסגניים המבטאים GFP מדגמים רקמות העוברות אפופטוזיס (איור 5).
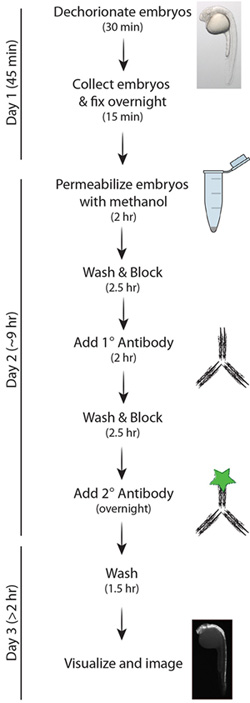
איור 1. תרשים סכמטי מפושט של פרוטוקול Casp3.

איור 2. (A) ניתוח אפופטוזיס בעוברים בשלב 4-תאים. עוברים הוחדרו בשלב תא אחד של ההתפתחות עם 50 pg של mRNA המקודד ל-egfp (ביקורת) או לגנים הפרו-אפופטוטיים bh3-only שנקראים bim ו-noxa. בשלב 4-תאים (בערך שעה לאחר ההזרקה, hpi), העוברים נותחו באמצעות אימונופלואורסנציה כדי לזהות Caspase 3 פעיל. mRNA של Bim ו-noxa מאיצים אפופטוזיס מהירה בעוברים של דג זברה מיד לאחר ההזרקה, ואם העוברים נשארים להתפתח, הדבר מוביל למוות עד 2 hpi4. לצורך השוואה, מוצגת תמונת שדה בהיר של עוברי פרא (wild-type) בשלב 4-תאים. (B) ניתוח אפופטוזיס בעוברים של דג זברה בשלב הספרה. עוברים הוחדרו בשלב תא אחד של ההתפתחות עם mRNA המקודד ל-50 pg egfp (ביקורת), 5 pg puma בתוספת 45 pg egfp (puma), או 5 pg puma בתוספת 45 pg bcl-2 (bcl-2). בשלב הספרה (בערך 4 hpi), העוברים נותחו באמצעות בדיקת Casp3. מוצגות תצפיות הן מהצד (lateral) והן מקוטב החי (animal pole) כדי להמחיש את התאים האפופטוטיים. הצלה מאפופטוזיס המושרה על ידי puma באמצעות bcl-2 מעידה על כך שהזרקת mRNA של puma משרה אפופטוזיס באופן ספציפי דרך המסלול הפנימי המתווך על ידי מיטוכונדריה. לצורך השוואה, מוצגת תמונת שדה בהיר של עוברי פרא (wild-type) בשלב הספרה.

איור 3. מהלך זמן של אפופטוזיס המושרה על ידי קרינה מייננת (IR) בין 17-20 hpf. עוברי דג זברה הוקרנו ב-8 Gy IR ב-17 hpf ונבדקו ב-0, 1.5, 2 ו-3 שעות לאחר הקרינה (hpIR) באמצעות בדיקת Casp3. חצים ב-20 hpf מראים הצטברות של תאים אפופטוטיים בחוט השדרה ב-3 hpIR. להשוואה, מוצג תמונת שדה בהיר (brightfield) של עוברי ב-17-hpf.
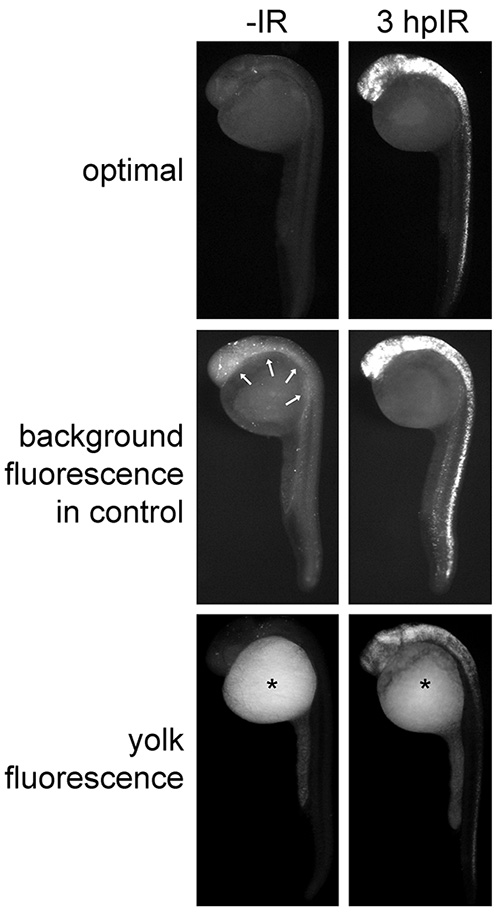
איור 4. תוצאות אופטימליות ותוצאות תת-אופטימליות של אימונופלואורסצנציה של Casp3 בעוברים בני 27 hpf. עוברים של דגי zebrafish הוקרנו (או לא הוקרנו) ב-24 hpf במינון של 15 Gy ונותחו באמצעות בדיקת Casp3. קבוצת ה-"optimal" מראה תוצאות אידיאליות שבהן תאים אפופטוטיים פולטים פלואורסצנציה בהירה, ותאים שאינם אפופטוטיים והחלמון מראים פלואורסצנציית רקע מינימלית. חצים בקבוצת ה-"background fluorescence in control" מצביעים על פלואורסצנציית רקע מוגברת ברקמות החיות של עוברי ביקורת. כוכביות בקבוצת ה-"yolk fluorescence" מדגימות פלואורסצנציה לא ספציפית מוגברת בחלמון.
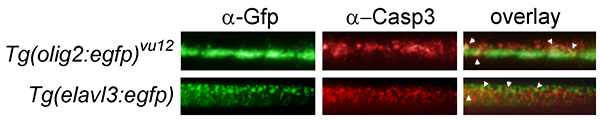
איור 5. ניסויי סימון כפול המעריכים את הספציפיות הרקמתית של אפופטוזיס המושרה על ידי IR. הקו הטרנסגני Tg(olig2:egfp)vu12 מסמן נוירונים מוטוריים ואוליגודנדרוציטים17, והקו Tg(elavl3:egfp) מסמן את כל הנוירונים במצב התמיינות18. כל קו טרנסגני הוקרן ב-15 Gy ב-24 hpf ונאלח 3 שעות מאוחר יותר באמצעות נוגדנים ראשוניים מסוג mouse anti-GFP ו-rabbit anti-active-Caspase 3, ולאחריהם נוגדנים משניים פלואורסצנטיים בירוק ובאדום, בהתאמה. מוצגת הגדלה של חוט השדרה (הממוקם דורסלית לסוף שלב ה-yolk extension בעוברים בני 27-hpf, 3-hpIR). תאים אפופטוטיים נראים כממוקמים באופן חלקי הן באוכלוסיות Tg(elavl3:egfp) והן ב-Tg(olig2:egfp)vu12 (ראה ראשי חצים בחפיפה), מה שמרמז כי נוירונים ואוליגודנדרוציטים רגישים לאפופטוזיס המושרה על ידי IR.
דיון
בדיקת Casp3 כפי שהיא מוצגת בפרוטוקול זה אמורה להיות פשוטה, ואם היא מבוצעת לפי ההוראות כאן, אמורה להוליד יחס אות לרעש חזק. השלבים הקריטיים של פרוטוקול זה כוללים שימוש במאגר PDT טרי 1x לכל השטיפות, אורך מספיק של שלבי שטיפה במאגר PDT לאחר דגירה של עוברים בנוגדנים הראשוניים, טיפול עדין בעוברים, וחשבונאות קפדנית של כל העוברים בתוך צינורות או פיפטות העברה במהלך כל שלבי הפרוטוקול.
מניסיוננו, להלן הסיבות השכיחות ביותר להיעדר אות בבקרות חיוביות: 1) 1x PBST מוחלף ב-1x PDT במהלך שלבי הכביסה, 2) מאגר PDT 1x ישן יותר מחודש, 3) נעשה שימוש בנוגדנים משניים שגויים, 4) עוברים מבוגרים מ-32 HPF ו/או 5) יותר מ-40 עוברים נותחו בצינור אחד. כאשר מתעוררות תוצאות לא עקביות או שונות בתוך הדגימות, זה בדרך כלל בגלל ש-1) לא ננקטה זהירות כדי להבטיח שכל העוברים יישארו בנוזל בכל עת במהלך ההליך, ו/או 2) העוברים לא הודגרו תחת נדנדה מספקת. רמות גבוהות של רעשי רקע מוצגות לעתים קרובות כאובך פלואורסצנטי כללי המתעורר בכל רקמת בעלי החיים של העובר (ראה איור 4, "פלואורסצנטי רקע"). יחס אות לרעש גרוע יכול להיווצר כאשר 1) עוברים לא נשטפו מספיק זמן לאחר הנוגדן הראשוני, ו/או 2) עוברים הושארו ב-PFA או במתנול למשך זמן ארוך יותר מהזמן המומלץ. אם העוברים לא מצליחים להישאר שלמים עד סוף הבדיקה: 1) לא נוספו פתרונות מבחינת טיפה לאחר קיבוע עם PFA, ו/או 2) מהירות הנדנדה במהלך שלבי הדגירה נקבעה גבוהה מדי.
ההדמיה השלמה הטמונה בבדיקת Casp3 מועילה ללוקליזציה מרחבית של תאים אפופטוטיים. עם זאת, ספציפיות הרקמה היא משוערת וסביר להניח שתסתמך על טכניקות תיוג משותף (ראה איור 5) ו/או חתך עוברים כדי לאתר את הזהות המדויקת של תאים שעוברים אפופטוזיס. בפרוטוקול המתואר כאן, תיוג משותף מוגבל על ידי הדרישה לנוגדנים הספציפיים שמקורם בארנב המשמשים בבדיקה שלנו. לא זיהינו נוגדן Caspase 3 אנטי-פעיל שמקורו בארנב שאינו זמין מסחרית שמסמן באופן ספציפי תאים אפופטוטיים על ידי אימונופלואורסצנציה שלמה בעוברי דג זברה. לפיכך, נוגדנים ספציפיים לסוג התא הגדלים בארנבים לא יהיו תואמים לבדיקת Casp3 לניסויי תיוג משותף. חלופה אחת היא לבצע בדיקת TUNEL הדורשת נוגדן שמקורו בעכבר כדי לסמן תאים אפופטוטיים6. עם זאת, מצאנו כי בדיקת ה-TUNEL השלמה המבוצעת על עוברי דג זברה רגישה מאוד למספר משתנים בתגובה, כולל ריכוז האנזים TdT, משך הדגירה של העובר באנזים TdT ומספר העוברים הקיימים בכל צינור (התצפיות שלנו שלא פורסמו). לפיכך, זה מאתגר למצוא איזון של אנזים שנותן פירוש עקבי של התוצאות. לכן, חלופה עדיפה היא לנתח תאים אפופטוטיים בעוברי דג זברה טרנסגניים המבטאים פלואורופור (עם נוגדנים חזקים זמינים מסחרית) כמו GFP בסוג תא ספציפי. לאחר מכן, ניתן לבצע ניסויי תיוג באמצעות נוגדן ראשוני נגד Gfp של עכבר ואחריו נוגדן משני נגד עכברים פלואורסצנטי ירוק. ראה איור 5 לדוגמא.
בעוד שפרוטוקול Casp3 נותן צביעה חזקה ואמינה של תאים אפופטוטיים בעוברים משלב 4 התאים ועד 32 hpf, יש לו יישום מוגבל מעבר ל-32 hpf בשל חוסר היכולת של הנוגדנים לחדור לעור של עוברים מבוגרים. טכניקות נוספות לחדירת העוברים, כולל טיפול בקולגנאז, טריפסין, אצטון או אתנול, יכולות להיות אופטימליות כדי להתאים את הבדיקה הזו לניתוח של עוברים מבוגרים. צביעה עם AO, לעומת זאת, יכולה להתבצע על דג זברה חיעד גיל 5 ימים לפחות. לפיכך, בדיקת ה-AO עוקפת את הגבלת השלב העוברי ומייצגת בדיקה מהירה לניתוח תאים אפופטוטיים (1-2 שעות). לעומת זאת, בדיקת Casp3 דורשת קיבוע בן לילה של העוברים ולוקחת 2-4 ימים להשלים. החסרונות של בדיקת ה-AO כוללים שתיעוד צילומי יעיל של עוברים יכול להיות מאתגר עם דגימות מרובות מכיוון שהעוברים חיים ותאים אפופטוטיים נוצרים ומתנקים במהירות. זה יכול להיות בעייתי במיוחד אם יש צורך להרכיב עוברים כדי לקבל אוריינטציה ספציפית לתיעוד. בנוסף, מצאנו כי צביעת AO פוחתת לאחר קיבוע עם PFA, ולכן היא אינה תואמת לניסויי תיוג הכוללים אימונופלואורסצנטיות.
ניתן לבצע ניתוח כמותי של קספאז 3 מופעל באמצעות תוכנות המודדות את עוצמת הקרינה של תמונות מתועדות. כימתנו אפופטוזיס המושרה על ידי IR ברקמה העצבית, שיטה שתיארנו בפירוט במקום אחר10. בהתאם לניסוי, ניתוח כמותי של קספאז 3 מופעל עשוי לדרוש מניפולציה נוספת של עוברים, כגון הרכבה שטוחה, כדי להשיג אוריינטציה נכונה לניתוח רקמות אופטימלי. בנוסף, הליניאריות של הניתוח תהיה תלויה בעובי הרקמה המנותחת. לדוגמה, ניתחנו אפופטוזיס המושרה על ידי IR ברקמה עצבית על ידי מדידת אימונופלואורסצנציה פעילה-קספאז 3 ברקמה העצבית הרדודה של חוט השדרה במקום ברקמה הצפופה בתאי העצב של המוח4,10.
מניסיוננו, בדיקת Casp3 היא הבדיקה החזקה והאמינה ביותר הקיימת לניתוח אפופטוזיס בעוברי דג זברה בין שלב 4 התאים ל-32 HPF כאשר הניתוח דורש זמן רב לתיעוד. כאשר קיימים נוגדנים מתאימים או קווים טרנסגניים לזיהוי תאים ספציפיים, בדיקה זו מתאימה מאוד גם לתיוג משותף לזיהוי סוגי התאים הספציפיים העוברים אפופטוזיס.
גילויים
למחברים אין מה לחשוף.
תודות
המימון ניתן על ידי קרן הסרטן של האנטסמן (CJ, CT), מענק האגודה האמריקאית לסרטן #RSG-13-025-01-CSM (RS) ו-NIH T32 GM007464-36 (SS).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| שפופרות 1.5 מ"ל | דנוויל סיינטיפיק | c2170 | לא מסוכן. כל צינורות פלסטיק דומים של 1.5 מ 'יספיקו. |
| 10x תמיסת מלח חוצצת פוספט (PBS) | Sigma Aldrich | P5493 | לא מסוכן. |
| נוגדן a-activated-human-Caspase-3 | Fisher Scientific | BDB559565 | עלול להזיק בשאיפה או בבליעה. |
| נוגדן חד שבטי a-GFP (עכבר) | Life Technologies | 33-2600 | עלול להזיק בשאיפה או בבליעה. |
| חלבון עצבי אנושי a-HuC/HuD, IgG2b של עכבר, חד-שבטי 16A11 - UNCONJ | Life Technologies | A21271 | עלול להזיק בשאיפה או בבליעה. |
| אלבומין, בקר BSA בידוד הלם חום | אמרסקו | CAS 9048-46-8 | לא מסוכן. ניתן לרכוש גם דרך Bioexpress: 0332-1006 |
| Alexa Fluor 488 חמור נגד עכבר IgG | Life Technologies | A11029 | השתמש בדילול של 1:200. עלול להזיק בשאיפה או בבליעה. |
| Alexa Fluor 488 חמור נגד ארנב IgG | Life Technologies | A21206 | לשימוש בדילול של 1:200. עלול להזיק בשאיפה או בבליעה. |
| Alexa Fluor 568 חמור נגד ארנב IgG | Life Technologies | A10042 | לשימוש בדילול של 1:200. עלול להזיק בשאיפה או בבליעה. |
| דימתיל סולפוקסיד (DMSO) | Sigma Aldrich | D8418 | דליק. |
| Dumont #5 מלקחיים של Inox (טיפים סטנדרטיים/ישרים) | Fine Science Tools | 11251-20 | Sharp! |
| FBS HyClone סרום בקר עוברי | תרמו-פישר | SH3091003 | לא מסוכן. |
| פישר סיינטיפיק אוסלוט מסובב | פישר סיינטיפיק | 05-450-21 | כל מסובב עם בקרת מהירות ידנית מתאים. |
| מלח אקווריום אינסטנט אוקיינוס | פטקו | 1373684 | לא מסוכן. |
| מתנול (ללא אצטון) | Sigma Aldrich | M1775 | דליק: רעיל בשאיפה, בליעה ומגע. |
| מתיל צלולוז | סיגמא אולדריץ' | M0387-1006 | לא מסוכן. |
| Paraformaldehyde | Sigma Aldrich | P6148 | דליק: רעיל בשאיפה, בליעה ומגע. |
| בדיקה (זווית 80 קצרה/15.5 ס"מ/0.15 מ"מ קוטר קצה)Fine | Science | Tools 10140-02 | Sharp! |
| Pronase | Roche | 11459643001 | לא מסוכן. |
| פיירקס ספוט פלייט | פישר סיינטיפיק | 13-748B | לא מסוכן. |
| צנרת העברה, Samco לשימוש כללי | תרמו-מדעי | 204 | לא מסוכן. |
| Triton X-100 | Sigma Aldrich | T8787 | מגרה: מזיק בבליעה או במגע. |
| Tween-20 | Sigma Aldrich | P7949 | לא מסוכן. מותגים אחרים כוללים VWR #97063-872. |
מקורות
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
הדפסות חוזרות והרשאות
תגיות
