הקלטת זרמי Ca2+ בקרום הפנים של השחרור הפרה-סינפטי היא המפתח להבנה מדויקת של כניסת Ca2+ ושחרור נוירוטרנסמיטרים. אנו מציגים דיסוציאציה חריפה של חוט השדרה הצמד המניב אקסונים רשתית מבודדים פונקציונליים, המאפשרים הקלטה ישירות מקרום הפנים המשוחרר של מסופים פרה-סינפטיים בודדים.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
החריפה דיסוציאציה של האקסונים Reticulospinal צמד ים כדי לאפשר הקלטה משחרור הפנים ממברנה של מסופי Presynaptic פונקציונליים פרט
במאמר זה
סיכום
תקציר
שידור סינפטי הוא תהליך מהיר מאוד. פוטנציאל פעולה מונע זרם של Ca 2 + למסוף presynaptic, באמצעות ערוצי מתח מגודרת סידן (VGCCs) ממוקמים בפני קרום שחרור, הוא הטריגר לאיחוי שלפוחית ושחרור הנוירוטרנסמיטר. חיוני למהירות של העברת הסינפטית הוא תיאום המרחב ובזמן בין הגעתו של פוטנציאל הפעולה, VGCCs ומכונות שחרור הנוירוטרנסמיטר. היכולת להקליט ישירות Ca 2 + זרמים מעל פני שחרור הקרום של מסופי presynaptic פרט הכרחית להבנה מדויקת של מערכת היחסים בין Ca presynaptic 2 + ושחרור הנוירוטרנסמיטר. גישה לפרצוף שחרור קרום presynaptic להקלטת אלקטרו אינה זמינה ברוב ההכנות וCa presynaptic 2 + כניסה התאפיינה תוך שימוש בטכניקות הדמיה וmeasureme הנוכחי מקרוסקופיתNTS - טכניקות שאין לי החלטה זמנית מספיק כדי לדמיין כניסת Ca 2 +. האפיון של VGCCs ישירות במסופי presynaptic אחת לא היה אפשרי בסינפסות מרכזיות ועד כה הושג בהצלחה רק בסינפסה גביע הסוג של גנגליון ריסי חומוס ובcalyces חולדה. יש לנו לטפל בהצלחה בבעיה זו בסינפסה reticulospinal הענק של חוט השדרה צמד ים על ידי פיתוח הכנה בחריפות ניתקת של חוט השדרה שמניב האקסונים reticulospinal מבודדים עם מסופי presynaptic פונקציונליים נטולי מבני postsynaptic. אנו fluorescently יכולים לתייג ולזהות מסופי presynaptic פרט ולמקד אותם להקלטה. שימוש בתכשיר זה, יש לנו מאופיין VGCCs ישירות בפרצוף שחרורו של מסופי presynaptic בודדים באמצעות אימונוהיסטוכימיה ואלקטרופיזיולוגיה גישות. Ca 2 + זרמים נרשמו ישירות בo קרום הפנים שחרורמסופי presynaptic פרט f, ההקלטה הראשונה מסוגו שבוצעו בסינפסות מרכזיות.
מבוא
שידור סינפטי הוא תהליך מאוד מהיר ומדויק. פלישת פוטנציאל פעולה של מסוף presynaptic מובילה לפתיחת VGCCs ממוקם בקרום הפנים שחרור, העלייה וכתוצאה מכך Ca presynaptic 2 + מתנהגת כמו ההדק לשחרור איחוי שלפוחית ומוליך עצבי 1. כל הצעדים האלה להתרחש בתוך מאות מיקרו 2, ולכן דורש צימוד המרחבית הדוק של VGCCs למכונות איחוי שלפוחית 3. Ca 2 + והנתיבים Presynaptic מתאפיינים בעיקר באמצעות הדמיה גישות באמצעות הצבעים הרגישים Ca 2 + 4. Ca 2 + מאגרי שילוב המווסתים Ca 2 + בתאי עצב presynaptic נעשה שימוש כדי לאפיין את מערכת היחסים בין סידן ועצבי 3 presynaptic בעקיפין. בנוסף, ויסות Ca 2 + הריכוז החופשי presynaptic ידי משחרר רפרוף Ca 2 + 5 או הקלטת macroscopiג Ca 2 + זרמים היו בשימוש בשילוב עם אמצעים של איחוי שלפוחית ו / או שחרור; כגון מדידות קיבול 6 או postsynaptic תגובות 2 להתייחס לאותה השאלה. עם זאת, המאפיין את Ca 2 + זרמים ישירות בפרצוף השחרור, הסעיף מיוחד של קרום presynaptic בי שלילת קוטביות קרום מתורגמת לCa 2 + זרמים מפעילות איחוי שלפוחית הסינפטית ושחרור הנוירוטרנסמיטר, הוא חלק בלתי נפרד מהשגת מידה מדויקת של Ca 2 + דרישה לאיחוי שלפוחית הסינפטית. בנוסף, היכולת לאפיין באופן ישיר 2 + זרמי Ca במסופי presynaptic בודדים, בשילוב עם מדידות בו זמנית מדויקות של איחוי שלפוחית ושחרור מאפשר הבהרה מדויקת של מערכת היחסים בין עיתוי מהלך פוטנציאל פעולת הזמן, Ca 2 + נוכחי presynaptic, איחוי שלפוחית ושחרור. גישה לקרום הפנים שחרוראינו זמין ברוב המכריע של מסופי presynaptic בשל סגירת פרד על ידי דנדריטים postsynaptic. חוסר נגישות זה היה מכשול עיקרי באפיון של VGCCs שכן הוא מונע מדידות ישירות של זרם במסופי presynaptic פרט. אפיון ישיר של 2 + זרמי presynaptic Ca במסופי presynaptic בודדים עד כה לא היה אפשרי בסינפסות מרכזיות והושג רק בשני מסופי presynaptic סוג calyceal; סינפסה גביע הסוג של calyces גנגליון ריסי חומוס 7-10 וחולדת 11,12. בכל מסופי presynaptic האחרים, כולל סינפסה reticulospinal הענק בחוט השדרה צמד ים 13, היעדר הגישה לקרום הפנים שחרור סינפטי יש חייבת השימוש בגישות עקיפות כגון ההדמיה Ca 2 + ללמוד Ca 2 + והנתיבים presynaptic.
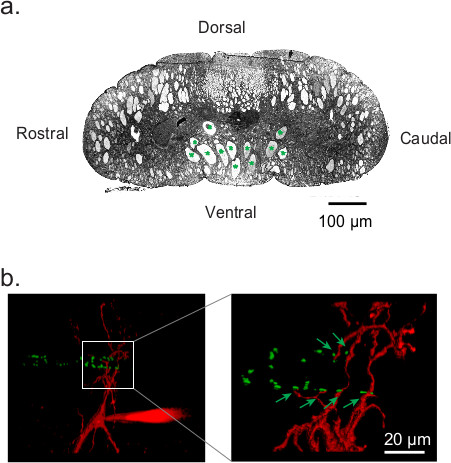 איור 1 צמד ים סינפסה reticulospinal הענק. (א) חתך של חוט השדרה צמד ים המצביע על הנטייה dorso- הגחון. האקסונים Reticulospinal מסומנים בכוכבית ירוקה. (ב) שיקום 3-D של סינפסה reticulospinal בחוט השדרה צמד ים מראה האקסון presynaptic reticulospinal עושה רב en קשר אגב (מסומנים בחצים ירוקים) אל הנוירון postsynaptic 13. מסופי Presynaptic סומנו בתווית עם אלקסה פלואוריד 488 hydrazide phalloidin מצומדות (ירוק), בזמן שהנוירון postsynaptic כבר מלא בhydrazide אלקסה פלואוריד 568 (אדום).
האקסונים reticulospinal ענק צמד ים, הממוקמים באזור הגחון של מקביל בחוט השדרה לאיור 1 א ציר מקורי, זנב, מרובה טופס en קשר אגב הסינפטי על תאי עצב שלקרן השדרה הגחון 14 איור 1b 13. כל תא מקרוסקופית זרמי Ca 2 + נרשמו מהאקסונים reticulospinal בחוט השדרה שלם 13,15. עם זאת, ניסיונות עיוורים קודמים במדידה ישירה של Ca 2 + זרמים באקסונים reticulospinal בכבל צמד ים שלם השדרה באמצעות טכניקת מהדק תיקון מצורף תא הוכיחו לא מוצלחים 13 בשל חוסר הגישה לקרום הפנים שחרור סינפטי בשל תהליכי postsynaptic מתנגדים איור 1b. פני שחרור הקרום נעשה בעבר נגיש על ידי ההסרה של הנוירון postsynaptic 11, ההפרעות מכאניות של סינפסה לפני הקלטת 12 או טיפול אנזימטי בשילוב עם ניתוק מכאני 16. בהתחשב בארגון המורכב של חוט השדרה, זה יהיה קשה מאוד להוכיח לזהות נוירון postsynaptic ולחזור בו באופן מכאני או להפריע הסינפסה דואר. לפיכך, החלטנו להשתמש בטיפול אנזימטי 17 אחרי ניתוק מכאני.
שימוש בגישה זו, פיתחנו הכנה בחריפות ניתקת של חוט השדרה צמד שמניב האקסונים reticulospinal מבודדים קיימא עם מסופי presynaptic פונקציונליים נטול כל תהליכי postsynaptic, ובכך לספק גישה חופשית למסופי presynaptic פרט. בשיתוף עם מיקרוסקופ רגיל הפוך ודימות פלואורסצנטי, זה מאפשר לנו לזהות ולמקד את מסופי presynaptic מזוהה fluorescently בודדים, עם טפטפת תיקון המכיל פתרון הקלטה שמבודד 4d איור 4C ואיור 2 + זרמי Ca, להקלטה באמצעות תאי ד' טכניקת מתח מהדק מצורף. Ca 2 + זרמים נרשמו ישירות בקרום הפנים שחרור presynaptic של 4F איור מסופי presynaptic פרט. זה significant פריצת הדרך בתחום של שידור סינפטי שכן הוא ההקלטה הראשונה מסוג זה בוצע בסינפסות מרכזיות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
.1 הכנת hydrobromide פולי-D-ליזין
- הכן hydrobromide פולי-D-ליזין 1 מ"ג / מ"ל במאגר M 0.1 borate (pH 8.5).
- Aliquot ולאחסן ב -20 מעלות צלזיוס.
ציפוי 2 פולי-ליזין של Coverslips
הערה: בצע את כל שלבי הניקוי וציפוי בזרימה למינרית קאמרית.
- coverslips מקום בצלחת פטרי המכילה 1 חומצה הידרוכלורית N (HCl) לשעה 2.
- לשאוב את כל HCl ולשטוף עם אתנול 70% (EtOH) 2-3x.
- השאר בEtOH 70% עבור שעה 1.
- לשאוב את כל EtOH 70% ולשטוף עם 100% EtOH 2-3x.
- השאר ב100% EtOH לשעה 2. לשאוב את כל EtOH.
- כתם יבש עם נייר סינון וייבוש באוויר לכמה שניות.
- O מקום / N ב1 מ"ג פתרון poly-ליזין מ"ל /.
- יש לשטוף את coverslips למחרת עם 4-5x המים Millipore.
- פולי ליזין האוויר יבש מצופה coverslips על גלגלי זכוכית בצלחת פטרי נקייה.
- לimmunohistochemistry, להשתמש 35 x 10 מ"מ מכסים בצלחת פטרי. הכן sylgard (polydimethylsilioxane, PDMS) בשורה מנות על ידי שפיכת PDMS (אלסטומר וסוכן ריפוי 10: 1 לפי משקל) לתוך הצלחת לעובי של 0.3 סנטימטר ולאפשר להגדיר ב30 ° CO / N. ברגע שזה קבע, לחתוך 2 סנטימטר על 1 סנטימטר שהותקן בPDMS. נקי ומעיל משובץ עם פולי ליזין הבאים את אותם צעדים כאמור לעיל לcoverslips.
- coverslips החנות פולי ליזין המצופה ומנות מכוסות בתוך הזרימה למינרית החדר עד לשימוש (עד 2 שבועות, אבל להשיג תוצאות הדבק הטובות ביותר על ידי הכנה מעת לעת בכל 3-4 ימים).
- הכן בלוק PDMS, להצמיד את חוט השדרה במבצע הרקמות הרוטטת. מיקס אלסטומר ואלסטומר B 1: 1 לפי משקל. יוצקים לתוך צלחת פטרי 100 x 15 מ"מ ותאפשר להגדיר O / N ב30 מעלות צלזיוס. חותכי פיסת PMDS מלבנית ולהדביק אותו לצלחת בסיס חיתוך באמצעות דבק אפוקסי. אפשר מדביק להגדיר תיקון PDMS במקום ופורסים חלקים דקים מרובים את פני השטח כדי להשיג שטוחמשטח להצמיד הרקמה ב.
.3 חריף דיסוציאציה של חוט השדרה צמד ים לתשואת האקסונים Reticulospinal מבודדים
- הרדימי צמד ים ammoecoete או מבוגר (מרינוס Petromyzon) עם methanesulphonate tricaine (MS-222; 100 מ"ג / ליטר). להוסיף חומר הרדמה אל תוך המים, בכוס פלסטיק המכוסה על ידי מכסה, המכיל את צמד ים צריך להקריב.
- לערוף צמד ים בקור (4 ° C) הפתרון של רינגר של הרכב הבא (במ"מ): גוף 130 NaCl, 2.1 KCl, 2.6 CaCl 2, 1.8 MgCl 2, 4 HEPES, 4 דקסטרוז (pH 7.6, osmolarity 270 mOsm) ולהסיר קיר שרירים לחשוף פני השטח הגבי של חוט השדרה.
- הסר Primitiva meninx מהשטח הגבי של חוט השדרה באמצעות מלקחיים בסדר. אל תסיר Primitiva meninx הגחון בשלב זה.
- חותך את חוט השדרה ל1 סנטימטר חתיכות ארוכות.
- הצמד חתיכת חוט השדרה באמצעות סיכות חרקים קנס, צד גב כלפי מעלה, על PDMS מרופד חיתוך PLA בסיסte (ראה 2.12) בתא מבצעה רקמה רוטט המכיל הפתרון של רינגר קר כקרח.
- הסר קטע של הטור הגבי של חוט השדרה מרכזי על ידי חיתוך לאורך ציר rostro- זנב עם הלהב, והותיר אחריו חלקי טור הגבי שלמים על מקורי ואת הזנב מסתיים לשמש מטפל ב2b איור 2a תהליך הניתוק ואיור. השתמש בהגדרת מהירות האיטית ביותר המאפשרת חיתוך והגדרת עומק שמסירה רק את העמודה הגבי עוזב איור 2b ניזוק העמודה האקסון reticulospinal הבסיסי.
- דגירה חתיכות חוט השדרה פרוסה ב RT דקות 45 בקוקטייל של 1 מ"ג פרוטאז מ"ל / (סוג XIV מStreptomyces griseus) ו1 מ"ג / collagenase מ"ל מוכן (סוג IA מhistolyticum Clostridium) בפתרון של רינגר (מותאם מאל Manira & Bussières 1997 17).
- חתיכות חוט השדרה שטופל באנזים פין באמצעות סיכות קנס בPDMS מרופדות conta צלחת פטרי(4 ° C) ining הקר הפתרון של רינגר.
- הסר Primitiva meninx הגחון עם מלקחיים בסדר.
- לחתוך קטעים רוחביים של חוט השדרה עם להב סכין מנתחים בנקודת האמצע של הקטע הגבי הפרוס עוזב את הטור של אקסונים reticulospinal שלמים באיור 2 בעמוד השדרה המרכזי.
- מניחים ירידה של שמן טבילה על העדשה.
- מקום coverslip poly-ליזין המצופה (איור 3 א, פיסה עליונה, המלבן אדום) בחריץ של חדר הקלטת איור 3 ולמרוח משחה ואקום לכל הקצוות (חלל שבין מלבנים אדומים והכחולים באיור 3 א, כדי להקל על חותם. בורג העליון למקומו. מניחים את החדר בהבלעה במתקן ההקלטה.
- הוספת הפתרון של רינגר לתא ההקלטה באמצעות פיפטה פסטר.
- חבר את צינורות יצוא של בקבוק הלחץ המכיל נוזל לרדיאטור פתרון לצינורות הזנת מכשיר קירור תרמואלקטרי. חבר את outpצינורות ut של מכשיר קירור תרמואלקטרי לסוף הקלט של מעיל הקירור החיצוני וסופו של דבר התפוקה לאיור 3 ב מאגר.
- הנח חתיכת חוט השדרה אחד בכל פעם בחדר ההקלטה ועדינות להפריד את עמוד השדרה שמירה על זה לאורך coverslip בכל העת באמצעות מלקחיים מצופים טפלון עד האקסונים הם 2e איור מבודד ו2f איור.
- להביא את טמפרטורת פתרון הקלטה ל10 ° C על ידי העברה (גז חנקן נדחף לתוך בקבוק) בלחץ פתרון נוזל לרדיאטור (על ידי עקירה), באמצעות מכשיר קירור Thermoelectric, דרך מעיל הקירור החיצוני של איור 3 ב תא הקלטה.
- לאפשר האקסונים להתאושש להודעה ניתוק שעה 1 ב10 ° C.
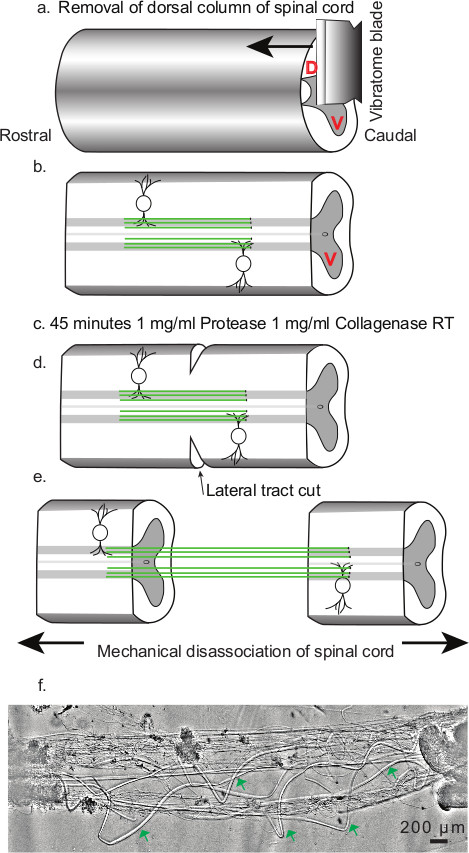
(א) להסרת של עמודה הגבי. החץ מציין את הכיוון של חיתוך של הרקמה. קרנות הגבי מסומנות על ידי D האלפבית (צבע גופן אדום), ואילו בקרנות הגחון על ידי V האלפבית (צבע גופן אדום). (ב) טור הגבי הוסר בחלק מחוט השדרה וחושף את האקסונים reticulospinal המרכזי (קווים ירוקים ). קרנות הגחון, שנותרו על כנן לאחר שתהליך החיתוך, מסומנות על ידי V האלפבית (צבע גופן אדום). טיפול 45 דקות עם פרוטאז וcollagenase (ג) אנזימי קוקטייל (1 מ"ג / מ"ל). חיתוך (ד) לשטחים לרוחב של חוט השדרה; תציין את מיקומה, כיוון ושל קיצוץ רוחבי במידה. ניתוק מכאני של חוט השדרה (ה). חצים מצביעים על מיקום של מלקחיים וכיוון של כוח ההפרדה בדיסוציאציה. (ו) representative דוגמא להכנת האקסון reticulospinal ניתקה. חיצים ירוקים מסמנים אזורים של אקסונים reticulospinal ניתקו בחריפות ללא כל תהליכי postsynaptic.
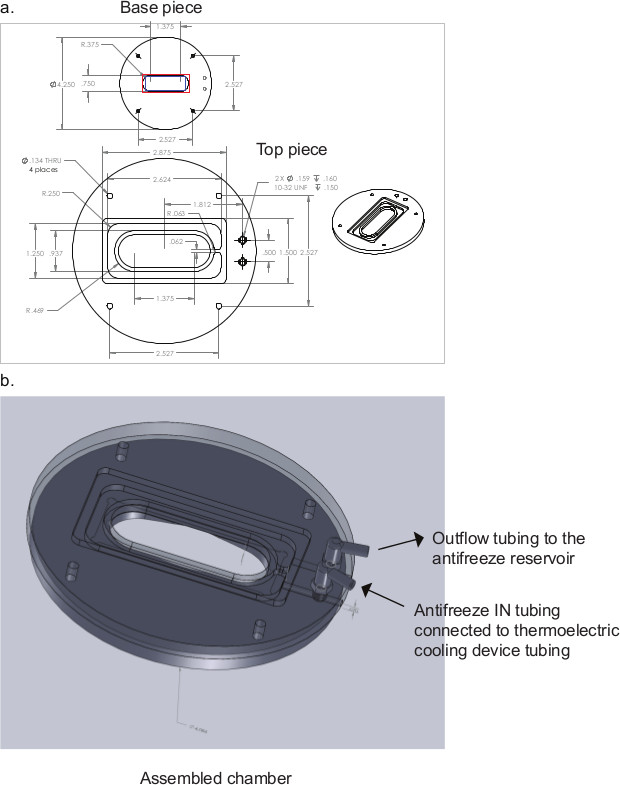
מימדי איור 3 סכמטי של הקלטת תא לניסויי אלקטרופיזיולוגיה. הניתנים הם בסנטימטרים. מלבן אדום שמוצג בתרשים basepiece (א) מצביע על מיקום של coverslip בחריץ coverslip בbasepiece. האזור בין המלבן האדום וכחול, שמוצג בתרשים basepiece (א) המקום שבו השומן גבוה ואקום מיושם. (ב) מראה תא ההקלטה התאסף.
.4 סימון וזיהוי של מסופי Presynaptic עם FM 1-43
- תווית מסופי presynaptic, על ידי שילוב FM 1-43 לנesicles במהלך Exo-אנדוציטוזה הסינפטי במהלך גבוהה K + שלילת קוטביות. Perfuse הכנה עם 5 מיקרומטר FM 1-43 (ב 5 מ"ל הפתרון של רינגר המכיל 30 מ"מ KCl).
- Perfuse הכנה עם 1 מ"ג / מ"ל Advasep-7 (ב 5 מ"ל הפתרון של רינגר) כדי להסיר צבע FM העודף) 18.
- Perfuse הכנה עם הפתרון של רינגר ל15 דקות לכישלון כל צבע remant וAdvasep.
- תמונה עם עדשת 100 X טבילת שמן (NA 1.25) במיקרוסקופ פלואורסצנטי הפוך, בשיתוף עם מצלמת CCD דיגיטלית וMicromanager תוכנת רכישת תמונה, תוך שימוש בפרוטוקולים סטנדרטיים דימות פלואורסצנטי.
- לזהות מסופי presynaptic שכותרתו fluorescently למקד להקלטת איור 4C ו4d איור.
.5 אימונוהיסטוכימיה של האקסונים Reticulospinal מבודדים
- מלא הבלעה מנה (סעיף פרוטוקול 2.10.) עם דו ערכי יון (Ca 2 + וMg 2 +) חופשיהפתרון של רינגר.
- לפברק טפטפות תיקון בחולץ micropipette P-87. מניחים כמות קטנה של דבק תפר בקצה אחד של הבלעה פולי ליזין באמצעות פיפטה תיקון (זכוכית קוטר חיצונית 1.5 מ"מ) ויניקה (באמצעות צינורות סיליקון 0.89 מ"מ קוטר פנימי עם קצה micropipette המצורף בסוף היניקה).
- לבצע התנתקויות תוך שימוש באותו ההליך כאמור בסעיף פרוטוקול 3 איור 2. מניחים קצה אחד של חוט השדרה על דבק התפר ולחץ בעדינות עם מלקחיים כדי להדביק אותו בחריפות על פני השטח. מניחים עוד טיפה של דבק תפר בקצה השני של הבלעה ובעדינות למתוח את חוט השדרה עד האקסונים הם ניתקו ולדבוק סוף חוט השדרה בחינם על ידי גרירתו בעדינות על דבק התפר. לתקן במקום על ידי לחיצה עדינה עם המלקחיים.
- דו ערכי Exchange לשחרר הפתרון של רינגר עם הפתרון של רינגר הקבוע על ידי זלוף.
- לאפשר האקסונים להתאושש להודעה dissoc 20 דקותiation ב10 ° C.
- תקן את האקסונים ניתקו בparaformaldehyde 4% (PFA) {הכין בפוספט הצפת מלוח (PBS, (מ"מ) NaCl 137, KCl 2.7, Na 2 HPO 4 10, KH 2 PO 4 1.8, pH 7.4)} עבור 20 דקות. סנן פתרון PFA לפני שימוש על ידי עובר דרך מסנן מזרק 0.2 מיקרומטר.
- לשטוף את PFA ידי מרוסס 0.1 M גליצין (PBS) עבור 10 דקות.
- דגירה ב0.1% Triton-X (PBS) עבור 10 דקות.
- לשטוף ידי מרוסס PBS עבור 20 דקות.
- לחסום עם 5% חלב דל שומן (PBS) במשך 6 שעות ב 4 ° C..
- להוסיף בנוגדן ראשוני לVGCC של עניין (1: 200 דילול PBS) ודגירה של 20 שעות ב 4 ° C..
- לשטוף ידי מרוסס PBS עבור 20 דקות.
- לחסום עם 5% חלב דל שומן (PBS) עבור 10 דקות ב 4 ° C..
- להוסיף בנוגדנים משני (1: דילול 400 PBS) ו דגירה בחושך במשך שעה 2 ב 4 ° C..
- לשטוף ידי מרוסס עם PBS עבור 20 דקות.
- לחסום עם 1% הסרום albu שורדקות (PBS) עבור 20 דקות.
- להוסיף בphalloidin אלקסה פלואוריד 488 (5 יחידות / μl ריכוז עבודה; המניה הוכנה במתנול 200 יחידות / מ"ל).
- לשטוף ידי מרוסס עם PBS עבור 20 דקות.
- תמונה באמצעות עדשת טבילת 100X מים במיקרוסקופ confocal.
.6 אלקטרו הקלטה
- לפברק טפטפות זכוכית aluminosilicate תיקון (התנגדות פיפטה 2-5 MΩ) בחולץ micropipette P-87. פיפטה תיקון העיצוב כזה שקצה פיפטה מקיף קוטר מסוף presynaptic כולו.
- טפטפות תיקון מעיל PDMS על ידי טבילת פיפטה את התיקון בלחץ psi 50-60 לPDMS 23 (לצרף צינורות סיליקון, 0.89 מ"מ קוטר פנימי, מחוברים לבלון גז חנקן, לקצה האחורי של פיפטה התיקון) ולייבש באמצעות חום אקדח. לחלופין, באופן ידני מעיל פיפטה עם PDMS, יישום ציפוי קרוב לקצה אפשרי, תחת מיקרוסקופ מתחם.
- טפטפות תיקון פולני אש באמצעות MICRoforge (מצוידת לבמה של מיקרוסקופ מתחם נימה פלטינה נבנתה מותאם אישית).
- לזהות אקסונים מבודדים מדגימים מסופי presynaptic שכותרתו על ידי מיקרוסקופ פלואורסצנטי.
- מלאו פתרון הקלטה (שנועד לבודד את Ca 2 + זרמים; 10 מ"מ CaCl 2 או 90 מ"מ BaCl 2 כמוביל מטען, HEPES נאגרו pH 7.6, osmolarity 270 mOsm) לתוך פיפטה התיקון באמצעות מזרק.
- הכנס פיפטה תיקון לבעל פיפטה ועמדה מעל האמבטיה באמצעות MP225 מניפולטור ממונע. בעדינות להוריד את פיפטה התיקון לאמבטיה והעמדה נגד פניו של מסוף presynaptic זיהה fluorescently.
- לקדם את פיפטה התיקון באיטיות עד ליצירת קשר הוא עשה עם הקרום. בשלב זה, להשיג חותם gigaohm על ידי יניקת פה עדינה דרך צינור המחובר לבעל פיפטה.
- כדי להשיג את רמות הרעש נמוכות במיוחד רקע הנדרשות להקלטת ערוץ אחד 2 + זרמי Ca, להשתמשxopatch 200B עם headstage מקוררת להקלטות. נתונים לדוגמה ב20-50 קילוהרץ ומסנן באמצעות מסנן בסל 5 kHz. לבצע רכישת נתונים באמצעות X. Axograph
- השתמש בפרוטוקול צעד סטנדרטי, במרווחים של 10 mV כגירוי. לשלב טרום דופק בפרוטוקול, שקדמו לפרוטוקול הצעד, כדי להבטיח הפעלה מקסימלי של ערוצי 2 + Ca. לשלב צעד דליפת mV 10 לפרוטוקול הצעד לחיסור הודעה ניתוח של זרמי דליפה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
האקסונים זה תשואות פרוטוקול ניתוק בריאים ופונקציונליים מבודדים reticulospinal נטול 2f איור תחזיות postsynaptic, אך בכל זאת לשמור על מסופי presynaptic פונקציונליים מסוגלים 4c עורר שלפוחית הסינפטית Exo-ואנדוציטוזה איור ו4d איור. סעיפים של האזורים המבודדים של אקסונים reticulospinal ניתן לזהות באופן ברור תחת מיקרוסקופ אור שיהיה ברור של כל תהליכים עצביים אחרים המאפשרים גישה בלתי מוגבלת ל2f איור קרום האקסון reticulosp...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
פרוטוקול הניתוק שלנו הוא משמעותי על ידי מניב האקסונים reticulospinal מבודדים נטולי 2f איור תחזיות postsynaptic, אך בכל זאת לשמור על 4d איור 4C מסופים ואיור presynaptic הפונקציונלי. היעדר תהליכי postsynaptic המנוגדים מסוף presynaptic מאפשר גישה ישירה להקלטת קרום הפנים שחרור סינפטי במסופי presynaptic יחידים, בעבר לא היה אפשרי בסינפסות מרכזיות והשיג הצלחה רק בשני מסופי presynaptic calyceal סוג; סינפסה גביע הסוג של calyces גנגליון ריס...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
למחברים אין אינטרסים פיננסיים מתחרים או ניגודי אינטרסים אחרים לחשוף.
תודות
עבודה זו נתמכה על ידי NINDS, RO1NS52699 ו-MH84874 ל-SA.
אנו רוצים להודות לד"ר דייב פת'רסטון (המחלקה למדעי הביולוגיה, אוניברסיטת אילינוי בשיקגו) על שסיפק לנו את דבק התפרים ששימש בעבודת האימונוהיסטוכימיה. אנו מודים למייקל אלפרט על הערותיו והגהה של כתב היד.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.2 ומיקרו; m מסנן מזרק | EMD Millipore | SLGV004SL | |
| 22 x 60 מ"מ Coverslips | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 מצומד עז אנטי-ארנב נוגדן משני | Invitrogen/Life Technologies | A21070 | |
| נוזל לרדיאטור | חומצה בורית פרסטון | ||
| סיגמא-אולדריץ' | B7660 | ||
| אלבומין סרום בקר | סיגמא-אולדריץ' | A7906 | |
| מקור אור שדה בהיר | דולן-ג'נר | פיברלייט 180 | |
| סידן כלוריד | סיגמא אולדריץ' | C4901 | |
| קולגנאז מסוג IA מבית Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| תלוש כיסוי | פישר-מדעי | 12-545-J | |
| דקסטרוז | סיגמא-אולדריץ' | D9559 | |
| מצלמת CCD דיגיטלית | Hamamatsu | C8484-03G01 | |
| מלקחיים עדינים לדיסקציה | כלי מדע עדינים | 91150-20 | |
| מלקחיים לדיסקציה | כלי מדע עדינים | 11251-20 | |
| מיקרוסקופ דיסקציה | Leica Biosystems | Leica MZ 12 | |
| מספריים לדיסקציה | כלי מדע עדינים | 15025-10 | |
| מספריים לדיסקציה עדינים | כלי מדע עדינים | 91500-09 | |
| מספריים לדיסקציה עדינים במיוחד | כלי מדע עדינים | 15000-08 | |
| FM 1-43 | טכנולוגיות Invitrogen/Life | T3163 | |
| Glycine | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| גריז ואקום גבוה | Dow-Corning | ||
| חומצה הידרוכלורית | Fisherbrand | SA-56-500 | |
| שמן טבילה | Fisher-Scientific | M2000 | |
| מיכל גז חנקן בדרגה תעשייתית | Praxair | UN1066 | |
| סיכות חרקים | Fine Science Tools | 26002-10 | |
| דבק תפרים נוזלי | Braun Veterinary Cair Division | 8V0305 | דבק התפרים בו השתמשנו בניסויים שלנו סופק לנו על ידי מעבדה אחרת. הוא כבר לא מיוצר. השגנו דבק תפרים היסטואקריל לשימוש עתידי מאסקולאפ (Ts1050071FP) |
| מגנזיום כלוריד | סיגמא-אולדריץ' | M2670 | |
| מתנול | סיגמא-אולדריץ' | 154903 | |
| חלב יבש ללא שומן | טכנולוגיית איתות תאים | 9999S | |
| P-87 חולץ מיקרופיפטה | Sutter Instruments | ||
| Paraformaldehyde | Sigma-Aldrich | P6148 | |
| משאבת זלוף | קול-פאלמר | מאסטרפלקס C/L | |
| צלחת פטרי 100 x 15 מ"מ | צלחת פטרי פישר-סיינטיפיק | 875712 | |
| 35 x 10 מ"מ | פישר-סיינטיפיק | 875712 | |
| פולי-D-ליזין הידרוברומיד | סיגמא-אולדריץ' | P1024 | MW > 300,000 |
| אשלגן כלורי | סיגמא-אולדריץ' | P9333 | |
| אשלגן פוספט מונו-בסיסי | Sigma-Aldrich | P5379 | |
| נוגדנים ראשוניים תעלת סידן מסוג | R Alomone Labs | ACC-006 | |
| פרוטאז סוג XIV מבית Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| להבי אזמל | World Precision Instruments | 500240 | |
| Schot Duran בקבוק לחץ | פישר-סיינטיפיק | 09-841-006 | |
| צינורות סיליקון ליישום דבק | קול-פאלמר | 07625-26 | |
| צלחת בסיס חיתוך | Leica Biosystems | 14046327404 | |
| תא חיתוך | Leica Biosystems | 14046230132 | |
| נתרן כלורי | סיגמא-אולדריץ' | S7653 | |
| נתרן הידרוקסיד | S8045 | ||
| נתרן פוספט דו-בסיסי | Sigma-Aldrich | S9763 | |
| נתרן טטרבוראט | Sigma-Aldrich | B3545 | |
| Sylgard 160 ערכת אלסטומר סיליקון | Dow Corning | SYLGARD® 160 | להכנה, מערבבים אלסטומר A ואלסטומר B 10:1 לפי משקל |
| Sylgard 184 ערכת אלסטומר סיליקון | Dow Corning | SYLGARD® 184 | להכנה מערבבים אלסטומר וחומר ריפוי 10:1 לפי משקל |
| מלקחיים מצופים טפלון | Fine Science Tools | 11626-11 | |
| טריקאין מתאןסולפונאט | Sigma-Aldrich | A5040 | |
| להבי ויברטום | Precision Instruments | BLADES | |
| מנורת קסנון | Nikon |
מקורות
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
