אנו מתארים כאן מערכת המשתמשת בבלוק חלבון in vivo ספציפי לאתר, הפיך כדי לעכב ולמוטט מזלגות שכפול ב-Escherichia coli. הקמת בלוק השכפול מוערכת על ידי מיקרוסקופ פלואורסצנטי ואלקטרופורזה דו-ממדית של ג'ל אגרוז ניטרלי-ניטרלי משמשת להדמיית חומרי ביניים לשכפול.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
במאמר זה
סיכום
תקציר
מכשולים המצויים על גבי ה- DNA, כוללים חלבונים בחוזקה נכנס ונגעים שונים, יכולים לעכב את ההתקדמות קשה של השכפול של התא. ההשתהות של replisome יכולה להוביל את ניתוק מן כרומוזום, או באופן חלקי או בשלמותו, מובילה לקריסה של המזלג שכפול. ההתאוששות מקריסה זו היא הכרח עבור התא שכפול כרומוזומליות מלא במדויק ולאחר מכן לחלק. לכן, כאשר הקריסה מתרחשת, התא התפתח מנגנונים מגוונים המתרחשים לשחזר את מזלג DNA ולאפשר שכפול להסתיים עם איכות גבוהה. בעבר, מסלולי תיקון שכפול אלה בחיידקים נחקרו באמצעות נזק UV, אשר יש לו את החיסרון של לא להיות מקומי לאתר ידוע. כתב יד זה מתאר מערכת ניצול מערכת מפעיל הקרינה מדכא (FROS) כדי ליצור בלוק חלבון מסוים באתר שיכולים לגרום השתהות וקריסה של שכפול FOrks ב coli Escherichia. פרט הפרוטוקולים כיצד מצב של שכפול ניתן דמיינו תאים בודדים חיים באמצעות מיקרוסקופ פלואורסצנטי ביניים DNA שכפול יכול להיות מנותח על ידי ג'ל אלקטרופורזה agarose 2-ממדי. מוטציות טמפרטורה רגישות של רכיבי replisome (למשל DnaBts) יכולות להיות משולבות לתוך המערכת כדי לגרום לקריסה סינכרוני של המזלגות שכפול. יתר על כן, את התפקידים של חלבונים רקומבינציה helicases כי הם מעורבים בתהליכים אלה ניתן ללמוד באמצעות knockouts הגנטי בתוך מערכת זו.
מבוא
במהלך שכפול ה- DNA, replisome פונה מכשולים על DNA הפוגע בהתנהלותה. נזק לדנ"א כולל נגעים ופערים כמו גם מבנים סוטה יכול למנוע replisome מ שתמשיך 1. לאחרונה, זה כבר נמצא כי חלבונים מאוגדים ה- DNA הם המקור הנפוץ ביותר של מניעה שכפול התקדמות מזלג 2. הידע של אירועים בעקבות המפגש של replisome עם בלוק nucleoprotein הוגבל בעבר על ידי חוסר היכולת לגרום בלוק כזה כרומוזום של תא חי בבאתר ידוע. ניתוח במבחנה שיפרה את ההבנה שלנו של התנהגות קינטית של replisome פעיל כאשר הוא פוגש סתימה nucleoprotein 3, כמו גם את הפרטים מכניסטית של replisome עצמו 4,5. הבנה נוכחית של התיקון של שכפול נעשית בדרך כלל עם UV כסוכן המזיק ללמוד באמצעות פלסמיד דנ"א in vivo 6-8 . בעוד החלבונים שעשויים להיות מעורב תיקון DNA לאחר היא נתקלת לחסום nucleoprotein vivo ב הם הבינו בדרך כלל ממחקרים אלה, אם ישנן וריאציות של האירועים המולקולריים בתוך מסלולי התיקון בשל הגורם הברור בבלוק שהכפול עדיין עדיין להיות נחוש.
כאן אנו מתארים מערכת המאפשרת לחסום nucleoprotein שיוקם במיקום ספציפי של כרומוזום באמצעות מערכת מפעיל פלורסנט מדכאת (FROS). אנו מנצלים זן של E. coli כי יש לו מערך של 240 אתרי TETO שולבו כרומוזום 9. כל אתר TETO בתוך המערך יש רצף אקראי 10 נ"ב איגוף זה כדי להגדיל את היציבות של המערך על ידי מניעת רקומבינציה בתיווך RecA בתוך המערך. מערך זה, ווריאציות של אותו, שימשו במקור להבין E. דינמיקת כרומוזום coli 10,11 אבל הותאמו ואז preveNT in vivo שכפול 12. המערך נמצא להישמר ביציבות לחסום קרוב ל -100% של מזלגות שכפול כאשר מחויב TetR 10,12. השימוש במערך Laco הדומה במבחנה מצא כמה כמו 22 אתרים היו מספיקים כדי לחסום 90% של שכפול, למרות מערך קצר זה היה פחות יעיל vivo 13. כדי להתאים את המערך ליצור סתימת nucleoprotein, החלבון המדכא חייב להיות overproduced מאוד בתנאי אופטימיזציה איפה זה אז נקשר המערך ליצור מחסום. היווצרות של חסימה, ולשחרר הבאים שלה, ניתן לנטר באמצעות מיקרוסקופ פלואורסצנטי אם גרסה מתויג fluorescently של מדכא ט משמש. מעמדו של שכפול בכל תא מותווה במספר המוקדים לראות, שם נקודה אחת מוקדים אומר רק עותק אחד של המערך נמצא בתוך התא מוקדים מרובים מעידים על שכפול פעיל. מחדש אקטיבית זוקפול מופעלת כאשר חסימת nucleoprotein מתהפכת על ידי התוספת של inducer מיותר כי מקטין את הזיקה המחייבת של TetR עבור האתר מפעיל מספיק עבור replisome ולעבור את המערך. החלבון המדכא עדיין מסוגל להיקשר ל- DNA עם זיקה גבוהה מספיק כי העותקים עכשיו המרובים של המערך ניתן דמיינו.
עוד פרטים סבוכים של אירועי סתימת nucleoprotein יכולים להתגלות באמצעות ג'ל אלקטרופורזה agarose ניטראלי ניטראלית דו ממדים ו כלת דרום 14-16. טכניקות אלו מאפשרים ניתוח של מבנים DNA על פני האוכלוסייה. ביניים שכפול אשר נוצרים במהלך האירוע, ואפשרות להישאר מתוקנים, ניתן דמיינו. על ידי שינוי אנזים ההגבלה ו ניצל חללי, את התשומות ניתן דמיינו לא רק באזור אלא גם מערך זרם של המערך כאשר המזלג שהכפול נסוג 17,18. הרגרסיה מתקיים לאחר ניתוק replisome; גדילי המתהווה המובילים מפגרים נפרדים מן גדילי התבנית לחשל זה לזה כמו גדילי תבנית במקביל מחדש לחשל וכתוצאה מכך מבנה ה- DNA ארבעה-כיווני (צומת הולידיי).
באמצעות מערכת זו הוכחה כי המזלג שהכפול אינו יציב כאשר הוא נתקל בלוק זה 18. בנוסף, נגזרים רגישים לטמפרטורה של רכיבי replisome יכולים להיות מנוצלים כדי למנוע העמסת יתר של המזלג שכפול פעם זה קרס. לאחר בלוק מוקם, הזן יכול להיות מוזז לטמפרטורה אוֹסְרָנִי כדי להבטיח שחרור משרות סינכרוני של replisome וכן מניעת מבוקרת של העמסת יתר. הטמפרטורה הנגרמת זה שחרור משרות מבטיחה כל המזלגות בתוך האוכלוסייה קרסו בזמן נתון ומאפשר הערכה של מה קורה כאשר replisome מתמוטט, כיצד DNA מעובד, ומה נדרש כדי מחדשלהתחיל בתהליך של שכפול ה- DNA.
אחד היתרונות של המערכת המתוארת כאן היא כי לחסום nucleoprotein הוא הפיך לחלוטין; ולכן, היכולת של התאים להתאושש מגוש nucleoprotein היא מסוגלת להיות אחריו. התוספת של anhydrotetracycline לתאי תקל על דוק מחייב של המדכא, המאפשרת מזלג שכפול ולעבור והתא להשיב כדאיות. ההקלה של סתימה ניתן דמיינו ידי נייטרלי נייטרלי דו מימדי ג'ל אלקטרופורזה agarose לאחר 5 דק ', ועל ידי מיקרוסקופיה בתוך 10 דקות. יתר על כן, ניתוח כדאיות יכול לחשוף את היכולת של הזן להתאושש הסתימה שהכפולה ממשיך להתרבות.
על ידי שינוי הרקע הגנטי של הזנים המשמשים הליך הניסוי המתואר כאן, שמסלולי התיקון עבור סוג זה של חסימה ניתן הובהרו.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
1. חסימת שכפול עם FROS
- התרמת הסתימה שהכפולה
- לדלל תרבות לילה טריה של E. coli זן נושאת מערך TETO ו pKM1 18 עד OD 600nm = 0.01 בתווך מורכבים לדלל (0.1% tryptone, 0.05% תמצית שמרים, 0.1% NaCl, 0.17 M KH 2 4 PO, 0.72 ח"כ 2 HPO 4) עם אנטיביוטיקה כנדרש לבחירה.
הערה: אל תוסיף טטרציקלין לבחירה כפי שהוא אינו תואם עם מערכת זו. הפוך את עוצמת הקול של התרבות שווה ערך ל -10 מ"ל לדגימה נדרש. לדוגמה, היקף תרבות עבור תכנון הניסוי באיור 1 הוא 60 מ"ל. - לגדול ב 30 מעלות צלזיוס עם רעד עד OD 600 ננומטר = 0.05-0.1. הסר מדגם 10 מ"ל לשמש מלאה uninduced ולהוסיף arabinose 0.1% לתרבות הנותרים כדי לגרום לייצור TetR-YFP מ pKM1. המשך לצמוח הוא uninduced מושרהתרבויות. אחרי השעה 1, לבדוק את קיומו של נקודה אחת מוקדים בתוך כל תא של התרבות המושרית באמצעות מיקרוסקופ פלואורסצנטי (ראה סעיף 2).
- אם התאים המושרים יאושרו חסום (יותר מ -70% של תאים יש להתמקד יחיד), ולהקליט את 600nm OD ולקחת 7.5 מיליליטר דגימת לצורך ביצוע אנליזה על ידי ג'לים 2-D (ראה סעיף 3). קח דוגמא מקבילה מתרבות המלאה uninduced.
- לדלל תרבות לילה טריה של E. coli זן נושאת מערך TETO ו pKM1 18 עד OD 600nm = 0.01 בתווך מורכבים לדלל (0.1% tryptone, 0.05% תמצית שמרים, 0.1% NaCl, 0.17 M KH 2 4 PO, 0.72 ח"כ 2 HPO 4) עם אנטיביוטיקה כנדרש לבחירה.
- שחרור החסימה שהכפולה
- כדי לשחרר את הבלוק שכפול, להוסיף 100 ננוגרם מ"ל -1 של anhydrotetracycline inducer מיותר (AT) מדגם 10 מ"ל של תאים חסומים. ממשיכים לגדול ב 30 מעלות צלזיוס למשך 10 דקות ולקחת דגימות עבור צפיפות התאים (1 מ"ל), ניתוח מיקרוסקופיה (10 μl) ו נייטרלי נייטרלי ג'ל agarose 2 מימדי (7.5 מ"ל).
- גרימת התמוטטות Replisome
- אם התאים מכילים אלל טמפרטורה רגיש כגון TS dnaB או ts dnaC הדורש deactivation, להזיז את הבקבוק המכיל את התאים נחסם ל -42 מעלות צלזיוס. קח דגימות לבדיקה בנקודות זמן הנדרשות (למשל, 1 שעה לאחר דגירה). אחרי התאים יש וטופחו על 42 מעלות צלזיוס במשך שעה 1, להעביר את התאים 30 מעלות צלזיוס במשך 10 דקות (ראה איור 1).
הערה: התאים יכולים להיות מוזזים עד 30 מעלות צלזיוס למשך ניתוח מחדש.
- אם התאים מכילים אלל טמפרטורה רגיש כגון TS dnaB או ts dnaC הדורש deactivation, להזיז את הבקבוק המכיל את התאים נחסם ל -42 מעלות צלזיוס. קח דגימות לבדיקה בנקודות זמן הנדרשות (למשל, 1 שעה לאחר דגירה). אחרי התאים יש וטופחו על 42 מעלות צלזיוס במשך שעה 1, להעביר את התאים 30 מעלות צלזיוס במשך 10 דקות (ראה איור 1).
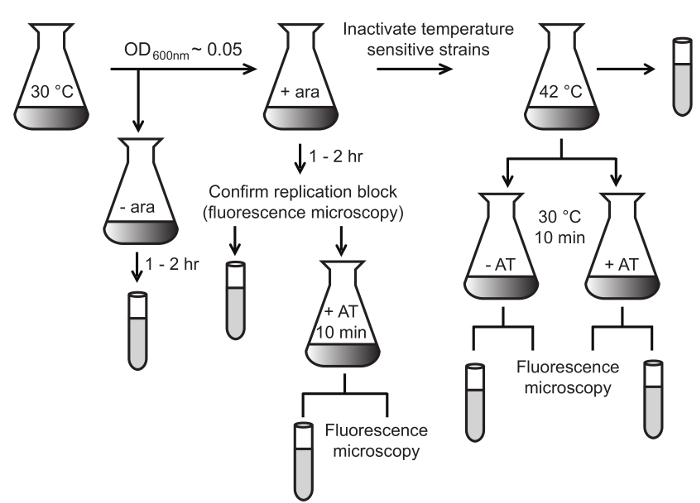
איור 1:. סקירה כללית של הליך ניסיוני חסום שחרור FROS שכפול E. קולי זנים נושאים את מערך TETO גדלים ב 30 מעלות צלזיוס. כאשר התאים להגיע OD 600nm של מעל 0.05, ייצור TetR-YFP מושרה עם arabinose (ערה; 0.1%). המשך לגדל תת-אוכלוסייה של תאי uninduced לפעול כקבוצת ביקורת על 30 מעלות צלזיוס. מדגם של תאי המושרה מנותח באמצעות מיקרוסקופ פלואורסצנטי לאחר 1 - 2 שעות (ראה 2.1). אם שכפול הואאשרתי שיחסם דגימות נלקחות לניתוח ג'ל 2-D שמציין מבחנות (ראה 3.1) ולצורך בדיקות כדאיות (אופציונאלי). הסתימה שהכפולה ניתן להסיר עם anhydrotetracycline (AT; 0.1 מיקרוגרם / מיליליטר) ותאים נתחו 10 דקות מאוחר יותר. אם תאים לשאת אלל טמפרטורה רגיש (למשל dnaB TS), זה יכול להיות מובטל ידי העברת התאים החסומים ל -42 ° C לניתוח מתאים. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
2. מיקרוסקופ פלואורסצנטי
- כן כרית agarose ידי pipetting 500 μl של agarose המותכת (1% במים) לשקופית מיקרוסקופ; מכסים את coverslip שערב agarose מתמצק. אחסן את השקופיות (ים) ברקמות רטובות על 4 מעלות צלזיוס עד צורך.
- כאשר agarose יש הקרושה, להסיר את coverslip מהפנקס agarose ו פיפטה 10 μl של חיידקיםתרבות על גבי במרכז הכרית כדי למנוע תנועה של התאים במהלך להדמיה. לאחר המדגם התייבש (כ 5 דקות), להחליף את coverslip. מניחים טיפת שמן טבילה על להחליק את המכסה ומניחים את השקף מתחת אופטיקה.
- דמיינו את התאים באמצעות מיקרוסקופ שלב בהגדלה 100X.
- בתיבת הדו-שיח רוכשת בתוך תוכנת הדמיה, לקבוע זמן החשיפה 100 msec. ללכוד את התמונה על ידי בחירת לרכוש. אל תזיז את הבמה. בתיבת הדו-השיח הרוכש, בחר YFP כמו התאורה עבור התריס החיצוני צמודות מצלמה. קבע את הזמן exporsure 1,000 msec. כבה את האור הבמה. ללכוד את התמונה הקרינה על ידי בחירת לרכוש.
הערה: זמן עשוי להשתנות בהתאם למקור אור, מיקרוסקופ ומצלמה בשימוש. - כדי כיסוי בשלב ותמונות פלורסנט, בחר צבע שלב מתוך תפריט תצוגה. בצבע השלב בתיבת הדו-שיח, בחר בתמונת YFP כמרכיב הירוק ואת תמונת השלב כמו blרכיב UE. לחץ על צבע לשלב. ברר אם האוכלוסייה צופה שכפול חסם בהצלחה על ידי הקמה אם רוב התאים יש מוקד אחד לכל תא.
הערה: השוואה למדגם מהשלט ללא arabinose הוסיף כדאי חזותית לזהות את ההבדל בייצור EYFP.
- בתיבת הדו-שיח רוכשת בתוך תוכנת הדמיה, לקבוע זמן החשיפה 100 msec. ללכוד את התמונה על ידי בחירת לרכוש. אל תזיז את הבמה. בתיבת הדו-השיח הרוכש, בחר YFP כמו התאורה עבור התריס החיצוני צמודות מצלמה. קבע את הזמן exporsure 1,000 msec. כבה את האור הבמה. ללכוד את התמונה הקרינה על ידי בחירת לרכוש.
3. DNA הפקה / תקעי Agarose
- להוסיף אזיד הנתרן (הריכוז הסופי של 0.1%) על דגימות תרבות 7.5 מ"ל מצעדים 1.1.3 ו 1.2.1. דגירה על קרח למשך 5 דקות לפחות.
הערה: אזיד הנתרן הוא רעיל ביותר. התייעץ עם גיליון הבטיחות לפני תחילת עבודה ואינו להתמודד עם זה עד שכל אמצעי הבטיחות אשר נקרא ומובן. - צנטריפוגה התאים 5,000 XG במשך 10 דקות עד גלולת תאים. בטל supernatant ו resuspend גלולה ב 200 μl של Pett IV (PIV) חיץ (10 מ"מ טריס: HCl (pH 8.0), 1 M NaCl). Microcentrifuge (13, 000 XG למשך 2 דקות) עד גלולת תאים. discard supernatant. בשלב זה, התהליך הכדורי נוסף או בחנות ב -20 ° C.
- Resuspend התאים עם צפיפות התאים הנמוך ביותר ב -50 μl PIV ומקום על 50 מעלות צלזיוס. עבור כל דוגמאות אחרות, להתאים את הכרכים של PIV כך צפיפות התאים הסופי הוא אותו בצינור אחד (1 לדוגמא למשל (600nm OD = 0.128) resuspended ב 50 μl; לדוגמא 2 (600nm OD = 0.138) resuspended ב 54 μl).
- הוסף נפח שווה של פתרון agarose 0.8% מוכנים טרי ב PIV (קונצרט כלשהו סופי 0.4%;. למשל דוגמא 1 50 μl, לדוגמא 2 54 μl). ודא כי הדגימות, agarose ו PIV הוא מעל 50 ° C כדי למנוע התמצקות.
- פנקו את המיקרוסקופ שקופית עם 40 μl של זכוכית מתאים פתרון דוחה מים או סיליקון. לשפשף את השקופית עם רקמה עד שהוא יבש.
הערה: ניתן לעשות זאת מראש את שקופיות מטופלים מאוחסנות לטווח ארוך בטמפרטורת חדר. - מקום 20 טיפות μl של tהוא ההשעיה תא / agarose בשקופית לייצר תקעים כי הם חצי כדור.
הערה: המדגם הראשון (resuspended ב 50 μl PIV) יפיק 5 תקעים בשקופית אחת. - כאשר המצתים יש הקרושה, להחליק אותם בעדינות לתוך צינור microfuge ולהוסיף חיץ תא תמוגה 1 מ"ל (10 mM Tris-HCl [pH 8], 1 M NaCl, 100 חומצה מ"מ Ethylenediaminetetraacetic (EDTA), 0.2% deoxycholate נתרן, 0.5% N-Lauroylsarcosine מלח נתרן (Sarkosyl), 100 מ"ל מיקרוגרם - 1 ליזוזים, 50 מ"ל מיקרוגרם - 1 RNase A). לדגור על 37 מעלות צלזיוס למשך 2 שעות.
- הסר את חוצץ התא תמוגה ולהוסיף 1 מ"ל EDTA / Sarcosyl / proteinase K (ESP) פתרון (0.5 M EDTA, 1% מלח נתרן N-Lauroylsarcosine (Sarkosyl), 1 מ"ג מ"ל - 1 proteinase K). לדגור על 50 מעלות צלזיוס למשך הלילה או עד תקעים הם שקופים. אם דגירת לילה שנייה נדרשה, להחליף את פתרון ESP עם חיץ טרי לאחר כ -18 שעות.
- הסר אתESP חיץ לשטוף את המצתים 5 פעמים עם 12 מ"ל טריס-EDTA (TE) חיץ (10 mM Tris-HCl, 1 mM EDTA, pH 8.0), המאפשר איזון 30 דקות עם כל שטיפה. חנות ב 4 ° C ב 1 מ"ל חיץ TE.
4. Neutral נייטרלי 2-Dimensional ג'ל אלקטרופורזה
- העבר תקע agarose משלב 3.8 לצינור microfuge טרי ולהוסיף 150 μl של חיץ אנזים הגבלה (ריכוז 1x). להוסיף 25-100 יחידות של אנזים הגבלה (למשל, 60 יחידות של EcoRV; (ראה איור 3 א)). תקציר ב 37 מעלות צלזיוס במשך 6-8 שעות.
- ב 4 ° C, לשפוך ג'ל 0.4% agarose (300 מ"ל) ב 1x טריס / Borate / EDTA (TBE) לתוך מגש ג'ל של כ 25 x 25 ס"מ. הכנס מסרק לעשות בארות בערך באותו רוחב כמו קוטר של התקע. כאשר הג'ל מוגדר, להסיר את המסרק ולעבור את הג'ל לטמפרטורת החדר.
- חלק אחד תקעי agarose מתעכלים לתוך באר, מיצוב השקופיות השטוחות של התקע אל דופן הבאר כאשר tהוא DNA ייכנס ג'ל. הכנס תקע יחיד באותו אופן לתוך כל טוב שני.
- פיפטה% 0.4 מותכת agarose לתוך בארות לאטום את המצתים בעמדה.
- סולם DNA 1 טען kb ב באר מים ריק שוב השארת רווח בין סולם הדגימות, ולהפעיל את הג'ל לילה (16 שעות, 55 V) ב TBE 1x בטמפרטורת חדר.
- הכתם ג'ל באמבט מים המכילים ethidium ברומיד (0.3 מיקרוגרם מ"ל -1) במשך 20 דקות.
הערה: ברומיד Ethidium נחשב mutagen חזק רעלן. התייעץ עם גיליון הבטיחות לפני תחילת עבודה ואינו להתמודד עם זה עד שכל אמצעי הבטיחות אשר נקרא ומובן. - דמיין את ה- DNA עם transilluminator UV ארוך גל לגזור כל קטע שביל עם ישר, אפילו לחתוך, מזעור הכללת agarose העודף משני צדי השביל.
הערה: לדוגמה, אם שבר של עניין הוא 5.5 kb, לחתוך שבר 7.5 ס"מ לכלול את שברי דנ"א 5 kb כדי approximatאיליי 12 kb (ראה איור 3 א). - מניחים את השביל ג'ל נכרת ב מגש ג'ל על 90 מעלות לכיוון ההגירה DNA.
הערה: שתי שורות של 3 שברי ג'ל יכול להשתלב מגש ג'ל 25 x 25 ס"מ 2. השורה הראשונה של נתיבי ג'ל היא בחלק העליון של המגש, בשורה השנייה על 12.5 סנטימטר. - הכן 300 מ"ל agarose עבור מימד ג'ל השני (0.9% ב 1x TBE עם 0.3 מיקרוגרם מ"ל -1 ברומיד ethidium). כאשר agarose הוא מקורר ל -50 מעלות צלזיוס, פיפטה agarose מותכת סביב פרוסות ג'ל כדי לחזק את עמדתם. יוצקים את agarose הנותרים למגש עד לעומק כי הוא לפחות ברמה בפרוסות ג'ל.
- לאחר ג'ל הוא התגבש, electrophorese ב 4 מעלות צלזיוס TBE 1x המכיל 0.3 מיקרוגרם מ"ל -1 ברומיד ethidium ב 220 V עד DNA העביר כ -10 ס"מ.
הערה: 4 שעות מספיקות שבר 5.5 kb אבל שבר קטן יצטרך פחות זמן. - ובלו התיבות שבן הדנ"א הגנומי הוא u הנוכחילשיר קצה סרגל מתכת, כולל ג'ל מעליו לכלול את ה- DNA שאינו גלוי (ראה איור 3 ג).
5. כלת דרום
- הכנת פתרון
- הכן חיץ Depurination (0.125 פתרון M HCl).
הערה: מאגר זה ניתן לעשות שימוש חוזר והוא יציב בטמפרטורת החדר למשך חודש עד 1. - כן Denaturation חיץ (1.5 M NaCl, 0.5 M NaOH).
הערה: Denaturation חיץ ניתן לעשות שימוש חוזר פעם והוא יציב עד 3 חודשים בטמפרטורת החדר. - הכן חיץ ניטרול (1.5 M NaCl, 0.5 מ 'טריס). התאם ל -7.5 pH עם HCl.
הערה: חיץ ניטרול ניתן לעשות שימוש חוזר פעם והוא יציב עד 3 חודשים בטמפרטורת החדר. - כן 10x מלוח סודיום ציטראט חיץ (SSC) (0.15 ציטראט M Tri-נתרן, 1.5 M NaCl, pH הם 7 - 8) לשימוש צעדי 5.2.4 ו 5.2.6. מתוך מאגר זה, להפוך מלאה SSC 2x (לשימוש בשלב 5.2.9).
הערה: SSC 10x ו 2x SSCמחדש יציב ב RT במשך 3 חודשים. - כן הכנסייה השתנה וגילברט כלאה 19 הצפה (0.5 M חיץ פוספט [pH 7.2], 7% (w / v) סולפט dodecyl נתרן (SDS), 10 mM EDTA). השאירו על 65 מעלות צלזיוס לפזר לפני ביסודיות להשתמש.
- הכן חיץ Depurination (0.125 פתרון M HCl).
- לְהַעֲבִיר
- שוטפים את רחובות ג'ל נכרת בתמיסה depurination במשך 10 דקות ב RT על כיסא נדנדה או שייקר מסלולית. שמור על מהירות תסיסה נמוך כדי למנוע נזק בלוקים agarose.
- שוטפים את רחובות ג'ל בקצרה עם מים מזוקקים ולאחר מכן עם חיץ denaturation למשך 30 דקות. יש לשטוף שוב בקצרה במים מזוקקים ולאחר מכן דגירה אבני הג'ל במאגר נטרול למשך 30 דקות עם תסיסה עדינה בטמפרטורת החדר.
- חותכים קרום ניילון לגודל המדויק של ג'ל (ים). חותכים חריץ קטן בפינה הימנית העליונה כדי לסייע המכוונת את קרום שבשלבים הבאים.
הערה: שני רחובות ג'ל (6 דגימות) ניתן מדמיין על קרום אחד. - יוצקים מספיק 10x SSC לתוך tray כך שלא יתייבש במשך הלילה. יצירת פלטפורמה כ 5 ס"מ מעל רמת למאגר. להרוות 3 גיליונות נייר 3mm כרומטוגרפיה עם 10x SSC ומניחים על הרציף. חותך את נייר כרומטוגרפיה כך שזה מספיק זמן כדי להיות שקוע חיץ בשני הקצוות ורחב מספיק כדי להתאים את הג'ל הקרום על.
- מניחים את הג'ל (ים) על גבי נייר כרומטוגרפיה רווי. מסגרת הג'ל בניילון נצמד כדי למנוע למאגר על ידי-עובר הג'ל במהלך ההעברה. בזהירות להניח את הקרום לחתוך על גבי הג'ל (ים). הסר בועות אוויר בין הממברנה ואת ג'ל על ידי גלגול בקבוק או פיפטה סרולוגיות בעדינות על פני הממברנה.
- חותכים שלושה גיליונות נייר כרומטוגרפיה 3 מ"מ לאותו גודל כמו קרום. להרוות את גיליונות נייר כרומטוגרפיה עם 10x SSC ומניחים על גבי הממברנה. הסר כל בועות אוויר כי נוצרו.
- מגבות נייר סטאק לפחות 5 ס"מ על גבי נייר סופג ואחריו תמיכה מוצקה (approמשקל ximate של 1 ק"ג עבור קרום 23 x 16 ס"מ). לאפשר העברת להמשיך לילה.
- לחשוף את (עד הצד DNA) קרום ועד 1200 J / m 2 של UV כדי crosslink הדנ"א הממברנה. אין לשטוף לפני שלב זה.
- יש לשטוף את הממברנה ביסודיות SSC 2x למנוע רקע גבוה על התמונות כתם. השתמש כתם מיד הכלאה (ראה 5.3) או לייבש אותו ב RT, עוטפים בניילון ולאחסן פלסטיק על 4 מעלות צלזיוס.
- הַכלָאָה
- תנור ובקבוקים הכלאה מחממים ל -55 מעלות צלזיוס.
- הוספת 100 מיקרוגרם מ"ל -1 אלבומין בסרום שור (BSA) ו -10 מיקרוגרם מ"ל -1 DNA הלא ספציפית (DNA זרע סלמון למשל) למאגר הכלאה מחומם מראש.
- כדי לאפשר גם כיסוי של למאגר ההכלאה כאשר הקרום הוא מגולגל, למקם את הכתם על ריבוע בגודל דומה של רשת ניילון עם הצד נכנס DNA של הממברנה כלפי מעלה. מגלגל את הכתם לאורך הקצה הארוך שלו. שקופיתהכתם / רשת בתוך בקבוק הכלאה. הוספת כמות מתאימה של חיץ הכלאה מחומם מראש לפרוש את כתם (למשל 30 מ"ל עבור קרום 23 x 16 ס"מ 2).
- דגירה בתנור מחומם מראש, מסתובב הבקבוקים, במשך שעה 1.
- הכן את החללית על ידי ערבוב 50 ng של הומולוגיים המוצר PCR מטוהרים אל האזור של עניין, 150 ננוגרם של פריימרים hexamer אקראי, מאגר עבור שבר Klenow ו- H 2 O כדי להפוך בהיקף של 13 μl. מרתיחים במשך 3 דקות ולאחר מכן למקם מיד על הקרח. הוסף 1 μl של 1 מ"מ dCTP / dGTP / תערובת dTTP, 1 μl של שבר Klenow (5U) ו -50 μCi deoxyadenosine radiolabeled 5'-אדנוזין על phosphate- אלפא (α 32 P-dATP).
- לדגור על טמפ 'החדר למשך שעה 1. הוסף 1 μl של 1 מ"מ dNTP לערבב 1 μl של שבר Klenow. דגירה 20 דקות ב RT.
- מרתיחים בדיקה למשך 5 דקות ומוסיפים מיד צינורות הכלאה. להכליא בין לילה ב 55 מעלות צלזיוס, עם רוטציה.
- למזוג prOBE מן הממברנה.
הערה: החללית הוא מסוגל לעשות בה שימוש חוזר פעם. - יש לשטוף את הממברנה בקצרה חיץ לשטוף חומרא מחומם מראש, נמוך (2x SSC, 0.1% (w / v) SDS). הוסף חוצץ חומרא לשטוף נמוך טרי דגירה במשך 5 דקות ב 55 מעלות צלזיוס עם רוטציה. חזור.
- לשטוף פעמיים ב חיץ לשטוף חומרא בינוני (1x SSC, 0.1% (w / v) SDS) במשך 10 דקות ב 55 מעלות צלזיוס עם רוטציה.
- לשטוף פעמיים ב חיץ לשטוף חומרה גבוהה (SSC 0.1x, 0.1% (w / v) SDS) במשך 5 דקות ב 55 מעלות צלזיוס עם רוטציה.
- הסר את הממברנה DAB עם רקמה להסיר עודפי נוזלים. עוטפים בניילון נצמד הבטחת אין הלחות שנותרה על עטיפת הפלסטיק ומניחים קלטת חשיפה עם פוספור מסך אחסון מראש blanked. סגור את הקלטת ולחשוף לפחות 2 שעות לפני להדמיה באמצעות תרמי זרחן.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
FROS הוא בלוק nucleoprotein מושרה, אתר ספציפי המאפשר ביניים שכפולים להיות דמיינו בתאי חי 12,18. עיצוב ניסיוני כללי על דגימת תאים מתואר באיור 1. העיתוי של דגימת וריאציות רקע גנטי לעשות זה מערכה צדדית ללימוד התיקון של גוש כזה. סכמטית ממחישה עד כמה מוטציות רגישות טמפרטורה, כגון dnaB ts ו dnaC ts שנוצלו בעבר 18, יכולות להיות מנוצלות במערכת זו.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
במהלך שכפול הכרומוזומים, מנגנון השכפול יתקל במכשולים שונים המונעים את התקדמותו. כדי להבטיח שכל הכרומוזום ממקור יחיד ישוכפל, לחיידקים יש מסלולים רבים לתיקון ה-DNA המאפשרים טעינה מחדש שלה-Replisome 20,21. נגעים, שברים חד-גדיליים, שברים דו-גדיליים וחלבונים הקשורים היטב ל-DNA עשויים להיות מטופלים כל אחד באמצעות מסלול ייעודי, אם כי סביר להניח שתהיה חפיפה משמעותית במסלולים אלה. המכשול הנפוץ ביותר לרפליזומים בתאים חיים הוא בלוק נוקלאופרוטאין2. עם זאת, שני קשיים ארוכי שנים בחקר ההתנגשות של רפליזום עם חסימת ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים שאין להם אינטרסים פיננסיים מתחרים.
תודות
עבודה זו נתמכה על ידי מועצת המחקר האוסטרלית [DP11010246].
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Tryptone | Sigma-Aldrich | 16922 | רכיב מדיית גידול |
| נתרן כלוריד | VWR | 27810.364 | רכיב מדיית גידול |
| תמצית שמרים | סיגמא-אולדריץ' | 92144 | רכיב מדיית גידול |
| אשלגן פוספט מונו-בסיסי | Sigma-Aldrich | P9791 | רכיב מדיית גדילה; רכיב מאגר אשלגן |
| אשלגן פוספט דו-בסיסי | Sigma-Aldrich | P3786 | רכיב מדיית גדילה; רכיב מאגר אשלגן |
| L-Arabinose | Sigma-Aldrich | A3256 | לאינדוקציה של ייצור TetR-YFP |
| Anhydrotetracycline hydrochloride | Sigma-Aldrich | 37919 | שחרור בלואק שכפול |
| Axioskop 2 מיקרוסקופ פלואורסצנטי | Zeiss | 452310 | הדמיה של תאים |
| eYFP סט מסננים | Chroma Technology | 41028 | הדמיה של |
| מצלמת YFP CCD | Hamamatsu | Orca-AG | הדמיה של תאים |
| MetaMorph תוכנה (התקנים מולקולריים) | SDR Scientific | 31282 | גרסה 7.8.0.0 המשמשת בהכנת כתב יד זה |
| Agarose | Bioline | BIO-41025 | לתקעי אגרוז ואלקטרופורזה ג'ל |
| דוחה מים מזכוכית מקורית (Rain-X) | Autobarn | DIO1470 | לייצור תקעי אגרוז |
| TRIS | VWR | VWRC103157P | TE, רכיב |
| מאגר TBEחומצה אתילן דיאמין-טראצטית | Ajax Finechem | AJA180 | 0.5 M EDTA תמיסת מלח דיסודיום מותאמת ל-pH 8.0 עם NaOH. |
| נתרן אזיד | סיגמא-אולדריץ' | S2002 | חומר בקטריוסטטי |
| חומצה הידרוכלורית | סיגמא-אולדריץ' | 258148 | TE |
| נתרן דאוקסיכולט | סיגמא-אולדריץ' | D6750 | רכיב חיץ ליזה של תאים |
| N-Lauroylsarcosine מלח נתרן (סרקוזיל) | Sigma-Aldrich | L5125 | ליזיס תאים ורכיב חיץ ESP |
| Rnase A | Sigma-Aldrich | R6513 | רכיב מאגר ליזה של תאים |
| Lysozyme | Amresco | 6300 | רכיב מאגר ליזה של תאים |
| Proteinase K | Amresco | AM0706 | ESP רכיב מאגר |
| תת-תא דגם 192 | Cell BioRad | 1704507 | מערכת אלקטרופורזה |
| UV transilluminator 2000 | BioRad | 1708110 | הדמיה של DNA |
| ניתן להשתמש גם ב-Ethidium Bromide | BioRad | 1610433 הדמיה של DNA | |
| חומצה בורית | VWR | PROL20185.360 | רכיב TBE |
| Hybond-XL ניילון Memrbane | Amersham | RPN203S | Zeta-Probe Memrbane (BioRad 1620159) |
| נייר כרומטוגרפיה 3 מ"מ Whatman GE | Healthcare Life Sciences | 3030690 | Southern Blotting |
| HL-2000 Hybrilinker | UVP | 95-0031-01/02 | קישור צולב של DNA והכלאה |
| חומצה דאוקסיריבונוקלאית מזרע סלמון | Sigma-Aldrich | 31149 | רכיב חיץ הכלאה |
| נתרן הידרוקסיד | Sigma-Aldrich | S5881 | רכיב חיץ דנטורציה |
| טריסודיום ציטראט דיהידראט | VWR | PROL27833.363 | מאגר העברה |
| נתרן דודציל סולפט (SDS) | Amresco | 227 | Wash Buffer |
| רכיב אלבומין בסרום בקר | Sigma-Aldrich | A7906 | רכיב מאגר היברידיזציה |
| פריימרים אקראיים של Hexamer | Bioline | BIO-38028 | |
| Klenow Fragment | New England BioLabs | M0212L | |
| dNTP Set | Bioline | BIO-39025 | |
| Adenosine 5'-triphosphate-< sup>32P-ATP | PerkinElmer | BLU502A | |
| אחסון זרחן מסך | GE Healthcare Life Sciences | GEHE28-9564-76 | BAS-IP MS 3543 E רב תכליתי תקן 35 ס"מ x 43 ס"מ מסך |
| טייפון FLA 7000 | GE Healthcare מדעי החיים | 28-9558-09 | הדמיה של כתם |
| בקבוק הכלאה | UVP | 07-0194-02 | 35 מ"מ x 300 מ"מ |
מקורות
- Mirkin, E. V., Mirkin, S. M. Replication fork stalling at natural impediments. Microbiol Mol Biol Rev. 71 (1), 13-35 (2007).
- Gupta, M. K., et al. Protein-DNA complexes are the primary sources of replication fork pausing in Escherichia coli. Proc Natl Acad Sci U S A. 110 (18), 7252-7257 (2013).
- McGlynn, P., Guy, C. P. Replication forks blocked by protein-DNA complexes have limited stability in vitro. J Mol Biol. 381 (2), 249-255 (2008).
- Tanner, N. A., et al. Single-molecule studies of fork dynamics in Escherichia coli DNA replication. Nat Struct Mol Biol. 15 (2), 170-176 (2008).
- Hamdan, S. M., Loparo, J. J., Takahashi, M., Richardson, C. C., van Oijen, A. M. Dynamics of DNA replication loops reveal temporal control of lagging-strand synthesis. Nature. 457 (7227), 336-339 (2009).
- Rudolph, C. J., Upton, A. L., Lloyd, R. G. Replication fork stalling and cell cycle arrest in UV-irradiated Escherichia coli. Genes Dev. 21 (6), 668-681 (2007).
- Jeiranian, H. A., Courcelle, C. T., Courcelle, J. Inefficient replication reduces RecA-mediated repair of UV-damaged plasmids introduced into competent Escherichia coli. Plasmid. 68 (2), 113-124 (2012).
- Le Masson, M., Baharoglu, Z., Michel, B. ruvA and ruvB mutants specifically impaired for replication fork reversal. Mol Microbiol. 70 (2), 537-548 (2008).
- Wang, X., Liu, X., Possoz, C., Sherratt, D. J. The two Escherichia coli chromosome arms locate to separate cell halves. Genes Dev. 20 (13), 1727-1731 (2006).
- Lau, I. F., et al. Spatial and temporal organization of replicating Escherichia coli chromosomes. Mol Microbiol. 49 (3), 731-743 (2003).
- Gordon, G. S., et al. Chromosome and low copy plasmid segregation in E. coli: visual evidence for distinct mechanisms. Cell. 90 (6), 1113-1121 (1997).
- Possoz, C., Filipe, S. R., Grainge, I., Sherratt, D. J. Tracking of controlled Escherichia coli replication fork stalling and restart at repressor-bound DNA in vivo. EMBO J. 25 (11), 2596-2604 (2006).
- Payne, B. T., et al. Replication fork blockage by transcription factor-DNA complexes in Escherichia coli. Nucleic Acids Res. 34 (18), 5194-5202 (2006).
- Brewer, B. J., Fangman, W. L. The localization of replication origins on ARS plasmids in S. cerevisiae. Cell. 51 (3), 463-471 (1987).
- Jeiranian, H. A., Schalow, B. J., Courcelle, J. Visualization of UV-induced replication intermediates in E. coli using two-dimensional agarose-gel analysis. J Vis Exp. (46), (2010).
- Southern, E. M. Detection of specific sequences among DNA fragments separated by gel electrophoresis. J Mol Biol. 98 (3), 503-517 (1975).
- Courcelle, J., Donaldson, J. R., Chow, K. H., Courcelle, C. T. DNA damage-induced replication fork regression and processing in Escherichia coli. Science. 299 (5609), 1064-1067 (2003).
- Mettrick, K. A., Grainge, I. Stability of blocked replication forks in vivo. Nucleic Acids Res. , (2015).
- Church, G. M., Gilbert, W. Genomic sequencing. Proc Natl Acad Sci U S A. 81 (7), 1991-1995 (1984).
- Michel, B., Grompone, G., Flores, M. J., Bidnenko, V. Multiple pathways process stalled replication forks. Proc Natl Acad Sci U S A. 101 (35), 12783-12788 (2004).
- Michel, B., Boubakri, H., Baharoglu, Z., LeMasson, M., Lestini, R. Recombination proteins and rescue of arrested replication forks. DNA Repair (Amst). 6 (7), 967-980 (2007).
- Carl, P. L. Escherichia coli mutants with temperature-sensitive synthesis of DNA. Mol Gen Genet. 109 (2), 107-122 (1970).
- Nawotka, K. A., Huberman, J. A. Two-dimensional gel electrophoretic method for mapping DNA replicons. Mol Cell Biol. 8 (4), 1408-1413 (1988).
- Cole, R. S., Levitan, D., Sinden, R. R. Removal of psoralen interstrand cross-links from DNA of Escherichia coli: mechanism and genetic control. J Mol Biol. 103 (1), 39-59 (1976).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
