כתב יד זה מתאר פרוטוקול פשוטה עבור בידודו של רבים מן הרשתית עכברוש יכול לשמש אלקטרופיזיולוגיות, סידן הדמיה ואת הלחץ myography מחקרים.
מאמר שיטה
בידוד של רבים ברשתית ללימודי פיזיולוגיה של התא Vivo לשעבר
* These authors contributed equally
במאמר זה
סיכום
תקציר
הרשתית היא רקמה פעילה מאוד סמויה הדורשת הספקת דם ניכר. זרימת הדם ברשתית תומך הרשתית הפנימית, בעוד כלי חיבור לספק את photoreceptors. שינויים ברשתית זלוף לתרום רבות הפרעות מסכנות-הראייה, כולל רטינופתיה סוכרתית, גלאוקומה, סניף ברשתית הווריד occlusions. הבנת המנגנונים המולקולריים המעורבים בבקרה על זרימת הדם דרך הרשתית, איך אלה שונו במהלך מחלה עינית עלול להוביל הזיהוי של יעדים חדשים לטיפול של תנאים אלה. רבים ברשתית הן כלי ההתנגדות העיקרי של הרשתית, אפוא, להיות תפקיד מרכזי בוויסות ספיקת הדם ברשתית באמצעות שינויים בקוטר luminal. בשנים האחרונות פותחו שיטות בידוד רבים מן הרשתית חולדה אשר מתאימים למגוון רחב של יישומים כולל לימודי פיזיולוגיה של התא. ההכנה הזאת כבר החלה להניב תובנות חדשות כיצד זרימת הדם נשלטת ברשתית, אפשרה לנו לזהות חלק מהשינויים מפתח המתרחשים במהלך מחלה עינית. במאמר זה, אנו לתאר את שיטות בידודו של עכברוש רבים ברשתית, וכוללים פרוטוקולים לשימוש שלהם תיקון-קלאמפ אלקטרופיזיולוגיה, הדמיית סידן ולימודים לחץ myography. כלים אלה נתונות גם לשימוש ב- PCR-, מחקרים מערביים סופג אימונוהיסטוכימיה מבוססות.
מבוא
הבנת איך נשלטת זרימת הדם ברשתית היא מטרה חשובה, כיוון זרימת הדם נורמלי היה מעורב בפתוגנזה של מגוון רחב של סכנת הראייה מחלות רשתית1,2,3, 4. זרימת הדם ברשתית, המספקת את הנוירונים ברשתית הפנימי ותאי גלייה, יש הסדר עורק הקצה, עם כל הדם העורקים ברשתית, רבים עוברים דרך הנימים venules ברשתית, סוף סוף ורידים5. זרימת הדם ברשתית מוסדר על ידי הצליל של העורקים ברשתית, רבים, כמו גם את פעילות כויץ pericytes ממוקם על הקירות של נימי הדם ברשתית, venules נימי שלאחר6,7, 8. השליטה של הטון כלי הדם ברשתית היא מורכבת, הוא מווסת על ידי מגוון של תשומות במערכת הדם, רקמת רשתית שמסביב, כולל גזים בדם, במחזור מולקולות והורמונים, ושוחררה חומרים vasoactive מ ברשתית וסקולרית אנדותל, macroglia9,10,11. רבים ברשתית נמצאים הענפים עורקים קטנים של הרשתית, המורכבת של שכבה אחת של תאי השריר החלק בכלי הדם, הציפוי הפנימי של longitudinally לארגן תאי אנדותל12,13, 14. אלו כלי הטופס באתר הראשי של התנגדות כלי הדם בתוך מחזור הדם ברשתית, לכן יש תפקיד חשוב בשליטה מקומית של זרימת הדם ברשתית. רבים ברשתית לווסת זרימת נימי הדם ברשתית להרחבת או מתכווץ קוטר luminal שלהם, מתווכת על-ידי שינויים השריר החלק בכלי הדם contractility10,15,16. הבנת המנגנונים המולקולריים דרך הרשתית אשר רבים לווסת זלוף ברשתית ולכן דורש הכנות שבו תאי שריר חלק arteriolar יכולה להיות גישה ולמד בתנאים הכי קרוב פיזיולוגיים ככל האפשר.
Ex-vivo ההכנות של כלי הדם ברשתית מבודד מספקים גישה לתאי השריר החלק בכלי הדם, תוך שמירה על פונקציונליות, interconnectivity עם אנדותל הבסיסית שלהם. רוב המחקרים עד היום באמצעות ספינות בודדות התמקדו גדול שור או חזירי עורקי כלי (60-150 מיקרומטר). אלה יכול להיות מותקן זמינים מסחרית תיל או מערכות myograph לחץ כדי לאפשר חקירה תרופתי של השריר החלק בכלי הדם התא מנגנונים כויץ17,18. הכנות תרמו במידה רבה הידע שלנו על הפיזיולוגיה של כלי הדם ברשתית בתנאים רגילים. מחקרים מעטים השתמשו רבים ברשתית מבודד חיות מעבדה קטנה כמו שלהם קוטר קטן (~ 8-45 מיקרומטר) מונע את השימוש שלהם קונבנציונאלי מערכות myography19,20,21,22. יתרון חשוב, אולם, השימוש ספינות חיות מעבדה קטנה היא זמינותו רחב של מודלים מחלת ששונה גנטית, מהונדס, ברשתית. חיות מעבדה קטנה הם גם יותר בעניין ללימודי התערבות ' ויוו .
כאן נתאר פרוטוקולים פשוטה עבור בידוד, cannulating רבים ברשתית עכברוש לניסויים myography הלחץ. Ca2 + הדמיה electrophysiology פרוטוקולים באמצעות כלים אלה גם מפורטים. אלה יכולים לספק עוד תובנות ויסות contractility השריר החלק בכלי הדם ואת זרימת הדם ברשתית.
פרוטוקול
כל הניסויים המתוארים כאן בוצעו על פי הנחיות הכלולים בתוך המעשה חיות בבריטניה (וצפייה) של 1986, אושרו על ידי האוניברסיטה של בלפסט רווחת של המלכה גוף ביקורת אתית.
1. בידוד של רבים ברשתית
הערה: הפרוטוקול הבא משמש כדי לבודד רבים ברשתית. שיטה זו ממוטב עבור רבים ברשתית עכברוש אולם ניתן להשתמש עם העכבר הרשתית. התשואה של כלי, אולם הוא נמוך יותר בעת שימוש בעכברים.
- מהווים פתרון של נמוך Ca2 + המכיל הנקס (LCH), כפי שמוצג בטבלה 1.
הערה: פתרון זה ניתן לאחסן עד 3 ימים ב 4 ° C (בעת שימוש המאוחסנים LCH, ודא כי זה equilibrates לטמפרטורת החדר ה-pH נכון לפני השימוש). - להרכיב את הציוד הבא: לפני אוסף של רקמות כדי להבטיח microdissection מהירה של באדמומיות: משונן מלקחיים, מספריים מעוגלים, דיסקציה מאכל (מצופה סיליקון פטרי), יחיד פיפיות להב, 2 סטים של מלקחיים (בוטה) 1 כוס פיפטה פסטר (אש מלוטש כדי טיפ עדין אבל לא צר), 1 פיפטה פלסטיק חד פעמיות (עם קצה חיתוך כדי להגדיל את הצמצם כדי ~ 5-7 מ מ), 1 כוס לעגל התחתון מבחנה (5 מ"ל), מחזיק. Decant כ 50 מ ל LCH לתוך גביע זכוכית ולהכין גביע השני כדי decant פסולת נוזלים.
הערה: ראה טבלה של חומרים עבור מפרטים ופרטים היצרן. - המתת חסד העכברוש באמצעות CO2 ואחריו לב לנקב תדמם למוות (למנוע נקע בצוואר הרחם או זעזוע מוח כמו אלה עלולים לגרום נזק בכלי דם בעין). תמשוך את העפעפיים עם מלקחיים משוננות ולאחר מכן השתמש את המספריים מעוקל לחתוך סביב השרירים מסלולית, דרך עצב הראייה. בעדינות לחלץ את העיניים ממסלול מטפל לחתוך המצורפים הנותרים עם מספריים.
- מקם את העיניים שקוע LCH פתרון על המנה לנתיחה (עיניים יכול להיות מועבר על הקרח בפתרון של LCH במידת הצורך). השתמש ערכה אחת של מלקחיים בוטה כדי לעגן את העין למנה על-ידי החזקת את קבצים מצורפים מסלולית שריר או עצב הראייה; ודא כי הנקודה עגינת הכי קרוב ככל האפשר לסקלרה לייצב את העין.
- באמצעות הלהב, לחתוך דרך הקרנית לאורך אורה serrata ולהסיר את העדשה על-ידי הקשת בעדינות על בסקלרה עם מלקחיים.
- חותכים את העין גביע לשניים באופן סימטרי דרך התקליטור האופטי. באמצעות סגר מלקחיים בעדינות 'מברשת' החוצה באדמומיות של שני החצאים של עיינית מטפל כדי להסיר קבצים מצורפים הנותרים על התקליטור האופטי. חזור על התהליך עם העין השנייה ולהעביר באדמומיות ביתור לתוך מבחנה באמצעות שפיפטה של פלסטיק, קטן טיפת LCH בינוני.
- באמצעות פיפטה פלסטיק של מלא את מבחנה עם LCH ל ~ 5 מ"ל ולאפשר באדמומיות ליישב את העניין.
- לשטוף את הרקמה כ 3 פעמים על-ידי הסרת ~ 4 מ"ל של פתרון של הצינור והוספת LCH טריים באמצעות פיפטה פלסטיק את. במידת הצורך, הסר את רקמת חיצוניים כגון גידים suspensory, נוזל זגוגי, שערות.
- לשטוף את החלק הפנימי של הזכוכית פסטר פיפטה (tip מלוטש) עם LCH כדי למנוע את הרקמה נדבקות פיפטה. באמצעות פיפטה של אותו, הסר כ 4 מ"ל של פתרון מבחנה. לאחר מכן להוסיף כ- 2 מ ל LCH טריים.
- בעדינות מביצועם (triturate) באדמומיות על ידי ציור הרקמה באמצעות קצה הזכוכית פיפטה לאט ו לגרש את התוכן לתוך מבחנה. הערה, לא לנסות להציג בועות בשלב זה.
- חזור על שלב 1.10 עד באדמומיות נפרדנו לגודל של 2-3 מ מ2.
- לשטוף את החלק הפנימי של פיפטה עם-2 מ ל LCH ולגרש זה לתוך מבחנה. לאפשר את התוכן ליישב את העניין יותר מ 5-10 דקות.
- חזור על התהליך trituration כמתואר ב 1.10-1.12 בכוח עוד קצת עד כ 1 מ2 גודל החלקים רקמות. שוב, לאפשר את הרקמה להתיישב למשך 5-10 דקות.
- חזור על שלבים 1.10-1.12 בפעם השלישית עם יותר כוח עד התכנים הם לגמרי הומוגני ולהישאר אין חתיכות של הרשתית (הפתרון צריך להיות חלבי במראה).
הערה: טכניקה זו תניב מקטעים arteriolare עד 8 (יחסית חינם סביב neuropile, עם כמה ענפים נותרו) לכל בידוד מדידה מיקרומטר 8-45 בקוטר ו 200-2500 מיקרומטר באורכו. - להעביר כמות קטנה של לנתק לתא הקלטה פיזיולוגיים או להוסיף צבעי פלורסנט למדידת תאיים Ca2 + ריכוז ([Ca2 +]i; ראו סעיף 3). להיפטר משאריות של העין כוסות והפתרון הוסר במהלך תהליך בידוד לפי החוקים המקומיים על טיפול של פסולת בעלי חיים.
הערה: בזמן, מומלץ לערוך ניסוי על כלי מיד לאחר בידוד, בידוד עודפים ניתן לאחסן ב 4 ° C עבור עד 8 שעות.
2. Myography arteriolar הלחץ
הערה: myography Arteriolar הלחץ מבוצעת כדלקמן באמצעות ציוד מפורטת איור 1A, B ו לטבלה של חומרים.
- העברה של aliquot של homogenate כלי ברשתית (1-2 מ ל; מבודד כאמור בסעיף 1) לתא הקלטה פיזיולוגיים (מלאות באופן חלקי נומינלית הפתרון של Ca2 +חינם הנקס; 0Ca2 + הנקס ' ראה טבלה 1) רכוב על השלב של הפוך מיקרוסקופ. להשאיר את כלי להסתפק בתחתית תא הקלטה לפחות 5 דקות לפני הניסויים.
- סריקה חזותית של מעבר לחדר ההקלטה לזהות רבים מיקרומטר > 200 ב אורך ויש לו סוף פתוח שדרכו יכול להיות לצינוריות הספינה (זיהוי של סוג הכלי הוא עוד חקר במקטע תוצאות). מקם את הכלי במרכז שדה הראייה. אם אין כלי מתאים קיימות, להעביר aliquot אחר של כלי השיט homogenate אל החדר הקלטה לפי שלב 2.1.
- עיגון בקצה אחד של כלי השיט באמצעות מלקחיים בסדר תגית תיל טונגסטן קטן (קוטר 75 מיקרומטר ו ~ 2-4 מ מ אורך) הניח כלי השיט (ראה איור 1C(i)). לעשות זה להחזיק את החוט ב המלקחיים ולאתר המלקחיים מעל לחדר ההקלטה.
- זיהוי הצל המתאים של המלקחיים מתחת למיקרוסקופ, להוריד את המלקחיים לתוך האמבט עד החוט יהפוך לכאורה. מקמו את החוט כלי השיט כ-200 מיקרומטר מהקצה הפתוח ושחרר את החוט בניצב לציר הארוך של כלי השיט.
הערה: המשקל של חוט טונגסטן מספיקה occlude את כלי הקיבול רחוק עצירת זרימת תוכן luminal במהלך תעלות, לחץ.
- זיהוי הצל המתאים של המלקחיים מתחת למיקרוסקופ, להוריד את המלקחיים לתוך האמבט עד החוט יהפוך לכאורה. מקמו את החוט כלי השיט כ-200 מיקרומטר מהקצה הפתוח ושחרר את החוט בניצב לציר הארוך של כלי השיט.
- להעביר את arteriole לתוך עמדה מתאימים בתוך תא הקלטה כזה כי זה שוכב אופקית מעבר האמבט עם סוף פתוח בהתאם הצינורית לחץ (ראה איור 1C(ii-iv)). עושים זאת על ידי בעדינות הסטה בתגית תיל טונגסטן occluding עם מקטע נוסף של חוט שנערך בתוך המלחציים; אל תגעו arteriole את כפי שזה בלתי הפיך לדבוק המלקחיים.
- במידת הצורך (עבור מקטעים ארוכים arteriole), להוסיף את פתקי תיל טונגסטן נוספים כלי השיט כזה כי המרחק בין הקצוות occluded ופתוח של כלי השיט הוא לא יותר מ 200 מיקרומטר; פעולה זו מסייעת למנוע את arteriole עוזב את שדה הראייה על לחץ. אם הכלי סניפים בכל צד, אלה צריכים גם להיות occluded עם תגיות תיל טונגסטן נוספים. אם ענף צד לא יכול להיות occluded למחוק את כלי הקיבול.
- Perfuse התא עם 0Ca2 + הנקס ב 37 ° C כדי להסיר את רקמת רשתית מיותר, כדי לחמם את האמבטיה כדי טמפרטורות פיזיולוגית.
הערה: אמבט רגיל הכבידה-fed זלוף בשורה חימום מערכת ניתן להשתמש למטרה זו (ראה איור 1 א'). 0Ca2 + הנקס ' משמש כדי להקל את ההליך תעלות, מאז הסרת Ca חיצוני2 + מבטיחה כי רבים להישאר מורחבים. - לפברק קנולות לחץ של נימים זכוכית בורוסיליקט filamented (טיפ קוטר ~ 3-10 מיקרומטר בהתאם לקוטר של כלי השיט כדי להיות לצינוריות; כלי קטן יותר דורשים קנולות להצר; לראות את הטבלה של חומרים) באמצעות microelectrode פולר, מילוי חוזר עם הפתרון של 0Ca2 + הנקס. ודא שהדוקרן של הצינורית הוא צמצום בעדינות לכיוון הקצה כדי להקל על תעלות.
- לטעון את הצינורית בתוך בעל פיפטה המצורפת מזרק 10 מ"ל דרך מחבר Y וברז 3-way; זה משמש כדי לדחוס את המערכת, הלחץ מוקלטת באמצעות manometer המצורפת הלוואי-היד השנייה של Y-המחבר (ראה איור 1B).
הערה: פיפטה 'עוזר' נדרש כדי לסייע עם תהליך תעלות. לפברק את פיפטה זכוכית בורוסיליקט נימי של פולר microelectrode כדי עצה בקוטר של 0.5 - 2 מיקרומטר. בכבדות אש פולנית פיפטה (לעיתים קרובות עד לסגירת) באמצעות microforge. - בזהירות למקם את פיפטה המסייע בזווית ישרה לציר הארוך של כלי השיט קרוב הקצה הפתוח באמצעות תחמן מכני 3-ציר (ראה איור 1D). מקם את פיפטה המסייע מעל הספינה, אבל לא לגעת בו.
- מקם את פיפטה תעלות בסוף פתוח של כלי השיט (ראה איור 1D ו- 2A(i)) באמצעות micromanipulator בסדר; מקם את הטיפ ומיד בסמוך לו. הפתח, כפי מוערך על ידי התאמת מישור המוקד על המיקרוסקופ (בגיל 20 X). מתי סופו של הספינה, קצה הצינורית בפוקוס באותו זמן הצינורית ימוקם בצורה נכונה עבור תעלות (ראה איור 2 א(ii)).
- לקדם את הצינורית לחץ לתוך הפתח כלי באמצעות הפקדים ציר ה-x של micromanipulator בסדר (ראה איור 2 א(iii)). להעריך את ההצלחה של תעלות על-ידי הזזת את הצינורית לאורך ציר ה-y. אם הצינורית נשאר בתוך הכלי זה בהצלחה לצינוריות (ראה איור 2 א(iv)). אם הצינורית עוברת מחוץ הכלי, הצינורית סביר להניח מעל הספינה; אם כך חזור על שלב 2.10-2.11 עם הצינורית על מטוס נמוך ב ציר z.
- על תעלות מוצלחת והורד בעדינות את פיפטה helper על גבי הספינה כדי לרסן את arteriole. מדריך על הקיר arteriolar מעל הצינורית לחץ עם הפיפטה המסייע באותו הזמן כפי פיפטה תעלות מתקדמת יותר רחוק לומן הספינה למרחק של-30-50 מיקרומטר (ראה איור 2 א(החמישי, השישי)).
הערה: הליך זה דורש תנועה מבוקרת, בו זמנית של שני סימולטורי (פיפטה המסייע נע לכיוון הצינורית בזמן הצינורית נע לתוך לומן כלי) ידרוש תרגול מקיף כדי להשיג אחוזי הצלחה גבוהים. - לשנות את הפתרון אמבט של הנקס רגילים המכילים 2 מ מ Ca2 + (ראה טבלה 1) ב- 37 מעלות צלזיוס. בדרך כלל זה גורם היצרות קלה של arteriole ואת היווצרות חותם צר סביב הצינורית לחץ. ניתן להעביר את פיפטה עוזר אז מן הכלי.
- לאפשר חותם צר לפתח עבור 15 דקות תצוגה הספינה באמצעות מצלמה USB (תמונה רכישת תוכנה) מצורף המיקרוסקופ ולהתאים את המוקד על מנת למקסם את הניגוד בין את גבולות כלי ואת הרווחים חיצוניים ו- intraluminal (ראה איור 2B). תמונה הספינה ב 0.5 - 5 מסגרות לשנייה.
- לאחר 1 דקות הקלטה-0 מ מ כספית, להגביר את הלחץ intraluminal לרמה הרצויה על-ידי סגירת הברז אסידו המצורפת את הצינורית לחץ (ראה איור 1B) ולהחיל כמות קטנה של הלחץ על המערכת באמצעות המזרק. לבחון את הלחץ לשנות manometer.
הערה: לחץ ניתן להוסיף אופנה צעד חכם בפני 100 מ מ כספית, או ערך אחד לדוגמה 40 מ מ כספית (קירוב ברשתית לחץ arteriolar ויוו)23. כלי הקיבול צריך להתרחב במהירות המאשרת תעלות מוצלחת. אנא שימו לב, בלחץ-induced vasoconstriction (כלומר, התגובה myogenic) לאחר מכן יפתחו על פני תקופה של 15 דקות, אבל בגלל גודלו הקטן של כלים אלה, לא תמיד ייתכן לזיהוי חזותי. - לפקח בקפידה על הספינה במהלך לחץ ראשוני לאיתור נזילות ברור. מקורות של דליפה עשוי לנבוע בצד cleaved סניפים או אטימה לקויה של הצינורית הפנימי של arteriole.
- Watch עבור תוכן intraluminal עוזב את כלי הקיבול. דליפות קטנות יותר, פחות ברור עשוי להיות ניכר לאורך זמן כמו ירידה בלחץ על manometer. במידת האפשר, occlude הפתח עם תגיות תיל טונגסטן נוספים מטפל שלא להפריע את הצינורית. אל תכלול ההכנות בשכנוע ברור ניתוח נוסף.
- חלות הסמים של עניין abluminally הספינה לפני, או הפעולות הבאות, לחץ 15 דקות בהתאם המטרות הניסוי (לשעבר מאפשר על ההתפתחות של הצליל myogenic נקבע, בזמן האחרון מאפשר ניתוח של תופעות מצב יציב. בטון myogenic). מערכת לגמילה מסמים מתואר באיור 3A.
- מקם ששקע משלוח בניצב לחלק של הכלי של הריבית (כמופיע באיור 1D) ממרחק ~ 500 מיקרומטר מן הכלי של עניין מטפל על מנת להבטיח כי לשקע הוא אופטימלי ומלוכסן באופן מלא superfuse האזור (ראה איור 3B). ודא כי שינויים זלוף לא להפריע פיזית את כלי הקיבול.
- בעקבות השלמת ניסוי, להחיל פתרון של 0Ca2 + הנקס ' המכיל 10 מיקרומטר wortmannin (מעכבי קינאז שרשרת אור צולבות הקישור חוטים שרירן) להתרחב מקסימאלית את הכלי כדי לקבוע את הקוטר פסיבי.
הערה: כוחו של החותם תעלות יכול להיבדק בתום הניסוי באמצעות העלאת הלחץ intraluminal > 100 מ מ כספית. רוב כלי יישארו מצורפים אפילו בלחץ כזה גבוהה המציין חותם צר. - לבצע ניתוח במצב לא מקוון באמצעות איתור קצוות לעקוב אחר שינויים בהקוטר arteriolar (ראה טבלה של חומרים עבור תוכנה המוצע). לנרמל את הקוטר arteriole עד לקוטר פסיבי להשוואה בין ספינות.
3. Ca2 + הדמיה
הערה: רבים ברשתית מבודד. הם מתכוננים קונבנציונאלי (microfluorimetry), קונאפוקלית Ca2 + הדמיה כמו כדלקמן (באמצעות ציוד מפורטת בטבלה שלחומרים).
- להכין homogenates ברשתית במבחנה מ ל זכוכית כמתואר בסעיף 1. 1 מ של הרשתית homogenate להוסיף Fura - 2 בבוקר (Ca microfluormetric2 + הקלטה) או Fluo - אם 4 (Ca קונאפוקלית2 + הדמיה) לתת ריכוז הסופי של 5 מיקרומטר (להגן מפני אור); מחווני צבע מעדיפים לטעון לתוך תאי השריר החלק.
- לשמור בטמפרטורת החדר בחושך 2 h מצליף את הצד של הצינור כל 15-20 דקות להשעות מחדש את רקמת רשתית. לאחר מכן, לדלל את homogenate 1:4 עם פתרון LCH לצמצום נוסף צבע טעינה.
הערה: כלי להישאר בר קיימא עבור עד 6 שעות (כאשר מאוחסנים ב 4 ° C ולא בחושך); עם זאת מומלץ כי הניסויים הם החלה בהקדם האפשרי כדי להפחית את ההשפעה של מידור של לצבוע ב organelles פנימי או ההבלטה של לצבוע לאורך זמן. - העברה מ ל 1-2 של הרשתית homogenate תא תת הקלטה (מלאות באופן חלקי LCH) רכוב על השלב של מיקרוסקופ הפוכה המחובר Ca2 + microfluorimetry או מיקרוסקופיה קונפוקלית מערכת.
- עוגן רבים בניצב לכיוון זרימת מעבר הקלטה החדר, עם תגיות תיל טונגסטן (50 מיקרומטר קוטר, 2-4 מ מ אורך) במרווחים ~ 100-200 מיקרומטר בנפרד לאורך הספינה (ראה איור 3C) בטכניקה דומה לזו המתוארת בשלב 2.3.
- Perfuse את האמבט עם נורמלי Ca2 + הנקס של הפתרון ב- 37 מעלות צלזיוס. מיקום בשקע משלוח סמים כמו בתמונה ב איור 3C ולהחיל תרופות לכלי כפי שמתואר בשלב 2.17.
- עבור קונבנציונליים Ca2 + הדמיה, להאיר את הכלי עם 340/380 nm אור דרך אובייקטיבית טבילה UV שמן (למשל, 100 X, נה 1.3) ולאסוף הנפלט זריחה-510 ננומטר דרך פוטון ספירת האופטיקה צינור (PMT).
- בקצה של כל ניסוי, למדוד קרינה פלואורסצנטית רקע על ידי להרוות את הכלי עם פתרון המכילים MnCl (ראה טבלה 1). השתמש פלורסצנטיות מתוקן-רקע יחסי (R-F340/F380) לניתוח או להמיר תאיים Ca2 + ([Ca2 +]i) באמצעות Rmin ו- R מידותמקסימום (ראה טבלה 1; לפני שהוחל כדי להרוות 24) את משוואת Grynkiewicz25.
- עבור קונאפוקלית Ca2 + הדמיה, לרגש Fluo-4 טעון כלי-488 ננומטר וללכוד פליטת קרינה פלואורסצנטית תוצאות ב 490-535 nm בשורה או לסרוק במצב (xt) או מצבי סריקה xyt (512 x 512 פיקסלים; חריר המוצע 300 ננומטר). לנרמל את המידות ידי קרינה פלואורסצנטית נרשם בזמן t = 0s (F/F0). להעריך שינויים כלשהם [Ca2 +]i במהלך סמים יישומים או לחץ במצב לא מקוון באזורים ספציפיים של עניין (ROIs) באמצעות תוכנת ניתוח התמונה.
- במידת הצורך, לבצע Ca2 + הדמיה עם לחץ myography.
הערה: התיאורים לעיל מוטבו עבור כלי ושלחתי; זאת ניתן לשלב Ca2 + הדמיה עם הלחץ myography כדלקמן.- לבודד רבים כאמור בסעיף 1. לטעון עם Ca2 + מחוון צבע לפי שלב 3.1 3.2. העברת רבים לחדר ההקלטה, נקרר כאמור בסעיף 2. לטפל כדי להגביל את החשיפה לאור במהלך ההליך הרכבה.
- למדוד Ca2 + לפי שלב 3.5 או 3.7 לעיל. תתאימי את כלי הקיבול וחזור על המדידה של Ca2 +. מדידה סימולטני של קוטר הכלי תלויה במצב של Ca2 + מדידה וציוד המשמש.
הערה: עבור Ca2 + מדידה קונאפוקלית ייתכן צורך תמונת אזורים נפרדים לחץ מראש, שלאחר עקב הלבנה של לצבוע במהלך חשיפות ארוכות לאור.
4. תיקון-קלאמפ אלקטרופיזיולוגיה
הערה: הקלטת כולה-התא ואת ערוץ אחד אפשרי של תאי שריר חלק arteriolar בודדים עדיין מוטבע בתוך שלהם רבים האב כדלקמן (באמצעות ציוד מפורטת בטבלה שלחומרים).
- לבודד, עוגן רבים ברשתית בתא ההקלטה כפי שתואר בשלבים 1, 2.3 ו- 3.3. תיקון-קלאמפ הקלטה, החוט טונגסטן מתעודות משלוח הם במרווחים קבועים 200-800 מיקרומטר בנפרד לאורך הספינה.
- הסר פרופריה הבזליים המקיפים את arteriole, חשמלית לנתק תאים סמוכים שריר חלק ותאי אנדותל כבסיס לפני תיקון מחבר חובק למעקה. כדי לעשות זאת, superfuse הכלי עם סדרה סדרתית של אנזים פתרונות (טבלה 1) ב 37 מעלות צלזיוס למשך פרק הזמן הנדרש.
הערה: משך הזמן של אנזים חשיפה מיטבית רבים ברשתית עכברוש (פרוטאז, ~ 8 דקות; collagenase, ~ 12 דקות) תלויה קצב הזרימה של מערכת משלוח סמים (~ 1 mL/min-הגדרת שלנו) וכן על פעילות יחידת האצווה של אנזימים בשימוש. - להעריך את רמת עיכול על הפרדה ויזואלית של אנדותל וצעד שכבות שריר חלק במהלך collagenase כמוצג באיור4. לאחר הפרדת השכבות תא נצפית (כפי שמוצג באיור 4B), להחיל DNAse אני פתרון (~ 4 דקות) ואז לסיים את העיכול על ידי החלפה של הפתרון אמבט רגיל Ca2 + הנקס של פתרון.
- הסר כל הנותרים קווצות פרופריה הבזליים ו/או neuropile היקפי על ידי בקפידה גורף את קצות המלקחיים בסדר לאורך פני השטח של הכלי סגור.
- משוך, פולנית נימים זכוכית (טבלה של חומרים), מילוי בעזרת פיפטה פתרון (טבלה 1), מקום מאובטח פיפטה האוחז headstage תיקון-קלאמפ. למקם את פיפטה בזווית של 45 מעלות ביחס לתא הקלטה ולקדם אותו לכיוון הספינה באמצעות ההגדרה גס micromanipulator ממונע.
- בחר תא שריר חלק המגיחה מתוך הקיר כלי, הוא ללא פסולת גלוי (ראה איור 4B). מקם את קצה פיפטה תיקון אנכית מעל התא עניין ולהוריד בהדרגה באמצעות תנועת הקנס/להאט micromanipulator לעשות קשר עם קרום שריר חלק.
- להעריך את הקשר בין התא לבין פיפטה חזותית של תנועת התא, שינוי בהתנגדות פיפטה נמדד באמצעות פרוטוקול בדיקת קרום (חותם) בתוכנה רכישה (5-10 mV השלב שליליים מ- 0 mV, התדר 25 KHz; ראה איור 5A(i)) .
- כאשר גברה ההתנגדות חותם 5 פי (למשל, עולה 2 10 MΩ; איור 5A (ii)) הפעילו לחץ שלילי transiently לחלק האחורי של בעל פיפטה באמצעות מחבר y, ברז 3-way, מזרק ואת צינורות המחוברים המחזיק פיפטה (מורכבים באופן דומה לזה המשמש ב לחץ רבים, ראה איור 1B).
- חזור על יישומים של לחץ שלילי עד gigaseal (> התנגדות GΩ 1; כמצוין על-ידי קרום במבחן רכישת התוכנה) הוא נוצר (איור 5A(iii)). שימו לב, תהליך זה עשוי להימשך 1-5 דקות. אם gigaseal נכשל לטופס, לבחור תא שונים מלחציים תיקון באמצעות פיפטה של תיקון טריים.
- חלות אחזקה פוטנציאל התא באמצעות רכישת התוכנה לפי הניסוי המבוצעת (בדרך כלל 0,-40 או-80 mV).
- מחקר (ב תאים) פעילות ערוץ אחד במעבר התצורה הנוכחי. לחלופין, צור תיקונים מבפנים ומבחוץ על ידי במהירות בכדי לבטל את פיפטה תיקון מפני השטח תא לאחר היווצרות gigaseal.
- כפי הפנויות של הקרום יכול anneal מחדש בתנאים אלה להסיר את פיפטה האמבט דרך מהירה תנועה אנכית של manipulator (הגדרת גס). לחזור במהירות דרך מניסקוס להסרת קרום הרפורמית עוזב רק התיקון בתוך הטיפ פיפטה.
- הגדרת תדירות הדגימות על התוכנה רכישה עד 5 קילו-הרץ והפעלת הקלטה רציפה במצב כדי להקליט את ערוץ פעילות. חלים שינויים המתחים במידת הצורך באמצעות התוכנה או המגבר.
- אם נדרש, החל סמים תיקון כלי/ממברנה כפי שמתואר בשלב 2.17.
- אם מתח הממברנה נדרשת, להחיל לחץ שלילי על הצד האחורי של פיפטה באמצעות המזרק מחובר manometer באמצעות ברז 3-way עם מחבר y.
- לנתח את הקלטות ערוץ אחד עבור הסתברות פתוח ומוליכות יוניטרית לפי נהלי26.
- עבור כל תא הנוכחי הקלטה פיפטות למשוך ופולנית לפי הטבלה של חומרים, למלא עם פיפטה, לאודנום המפוטריצין (להוסיף 3 מ"ג של המפוטריצין µL 50 של דימתיל סולפוקסיד; להוסיף 3-6 µL זה 1 מ"ל של פתרון שלם-תא פיפטה; sonicate לערבב) ויוצרים גושפנקה לפי השלבים 4.6-4.9.
- בשל הכללת המפוטריצין שאין צורך להיקרע הקרום בתוך הטיפ פיפטה כדי לקבל גישה לכל תא. לפקח על גישה, אשר להרוויח בהדרגה, באמצעות פרוטוקול הבדיקה ממברנות בתוכנה רכישה (שלב mV-20 מ-40 mV, תדירות הדגימה 25 KHz; ראה איור 5B).
- ההתאמה האוטומטית של שנחשולי קיבולי של תוכנות מסוימות מניב מידות בזמן אמת של הגישה התנגדות, קיבוליות תא (לחלופין ירידה יחסית של תופעות מעבר יכול להיות מוערך על ידי העין). ברגע ההתנגדות גישה נופל על < 15 MΩ, לבצע סדרת ההתנגדות פיצויים (איור 5C) באמצעות את החוגה תאים כל פרמטר (התנגדות קיבול וסדרות) על המגבר.
- כדי לעשות זאת, השתמש בערכים התאמה אוטומטית כדי להגדיר תחילה את החוגה (ראה איור 5C(ii)) ואז להגדיל את סדרת ההתנגדות פיצוי חיוג (חיזוי והן תיקון אם זמין על המגבר) התאמת מחדש את הפיצויים כל התא תוך צמצום והחולף קיבולי (ראה איור 5C(iii)).
- מטפל לא לפיצוי על (כפי שמוצג באיור 5C(iv)). בדרך כלל, זה אפשרי לפצות את ההתנגדות סדרת ב-75% במצב תיקון מחורר (דורש פיצוי לג יש לקבוע מקסימום).
- אם אין התאמה אוטומטית זמין, להתחיל על-ידי הגדרת הפרמטרים כל-תא מחייג 15 pF, 15 mΩ (ערכים אופייניים עבור תאים אלה) ולאחר מכן התאם כדי לייצר את פלטי, כפי שמוצג באיור 5C(ii). הגדלת הפיצוי ההתנגדות סדרת לחייג ל- ~ 75% והתאם את הפרמטרים תאים כל חיוג לפי איור 5C(iii).
- לפני התחלת ניסויים הערה תא קיבוליות המדידה מתוך ההתאמה האוטומטית הראשונית או מכל החיוג לאחר פיצוי ידנית.
הערה: ערך זה משמש לנרמל את זרמי לגודל התא. פיצוי עבור סדרת ההתנגדות ייתכן שיהיה צורך להתאימם במהלך ניסויים כמו access עשוי להמשיך לשפר עקב התאגדות נוסף של המפוטריצין לתוך התיקון. - החל תרופות לכלי כפי שמתואר בשלב 2.17. החל פרוטוקולים מתח (שלבים או רמפות) לפי דרישות ניסיוני.
הערה: מתח טיפוסי שלב פרוטוקולים, 0.1 - 1 s במשך, מוחלים מהמעצר הפוטנציאל ב- 10-20 mV במרווחים כל 5-10 s כדי לייצר משפחה של זרמי מופעל מתח. לחלופין להשתמש בפרוטוקולים הרמפה כדי למדוד זרמים בסדרת מתח באחד, "לטאטא" באמצעות הגדלת המתח לאט (100-200 mV/s) למשל, -80 כדי +80 mV (מיושם s כל 5-10) עם הדגימה מנותק של הזרם במרווחי זמן 10 mV במהלך הרמפה. - זה אפשרי לשלב Ca2 + הדמיה עם תיקון-קלאמפ הקלטה כדלקמן. לבודד רבים כאמור בסעיף 1. לטעון עם Ca2 + מחוון צבע לפי השלבים 3.1 3.2. הר בבית הבליעה הקלטה כאמור בסעיף 4. לטפל כדי להגביל את החשיפה לאור במהלך הליכים אלה.
הערה: עד היום זה לא היה אפשר לשלב תיקון-קלאמפ בלימודים myography לחץ בשל האובדן של קרום המרתף, כלי תקינות במהלך תהליך אנזימטי דיסוציאציה
תוצאות
איור 6A מראה סכימטי ציור של חולדה עץ כלי הדם ברשתית. הטווחים בקוטר של מסדר ראשון (30-45 מיקרומטר), הסדר השני (20-30 מיקרומטר), רבים נימי מראש (8-20 מיקרומטר) אושרה השפעול במעבדה שלנו על ידי הדמיה קונאפוקלית של עכברוש ברשתית ההכנות כולה-הר immunohistochemically מתויג עבור שריר α-חלק אקטין (איור 6B). על דיסוציאציה של הרשתית, ראשי, משני ולא מראש נימי רבים ניתן לזהות המבוססת על קוטר שלהם ועל הסידור של תאי השריר החלק בכלי הדם. רבים ראשונה ושנייה מופיעים דומים מבחינה ויזואלית תחת מיקרוסקופ שדה בהיר, אבל יכול להיות מכובד על בסיס גודלם (איור 6C). רבים מראש נימי בכלי הדם בעורקים הקטנים בהכנת והם לזיהוי בשל הסידור שלהם sparser של סיבי השריר החלק בכלי הדם. רבים מבודדים ניתן להבחין בבירור בין נימים venules בתוך הבידוד. נימים ניכרים meshwork של כלי קוטר קטן (4-10 מיקרומטר בקוטר), בעוד venules דקים עם קירות, חוסר הכיסוי הסלולרי שריר חלק (איור 6C). ראשי, משני ולא מראש נימי רבים מתאימים ללימודי הלחץ myography, Ca2 + הדמיה ותיקון-קלאמפ.
איור 7 מראה ניסוי myography הלחץ שבו יש כבר לצינוריות arteriole ברשתית החולדה הראשית הלחץ intraluminal בחזקת 40 מ מ כספית. Arteriole נשמר אז בלחץ כזה כדי לאפשר הפיתוח של myogenic טון לפני התוספת של 0Ca2 + הנקס המכיל 10 מיקרומטר wortmannin להשגת הקוטר פסיבית של כלי השיט. איור 7 א מראה photomicrographs של arteriole בנקודות זמן שונות במהלך הניסוי. משרה מלאה-שיא מציג את השינויים בקוטר הכלי לאורך זמן יש כבר ההתוויה של איור 7 ב באמצעות תוכנה מותאמת אישית תוצרת edge לזיהוי27. מיד עם לחץ הכלי dilates, אשר לאחר מכן ואחריו של ההתכווצות myogenic פעיל המגיע רמה מצב יציב לאחר 15 דקות תוספת של 0Ca2 + הנקס ' / wortmannin פתרון dilates הספינה חזרה לרמה דומה לזה נצפתה מיד לאחר השלב הראשוני הלחץ. כפי שתואר לעיל, ניתן להחיל סמים כלי לפני או לחץ הבא לחקור את המנגנונים בפיתוח ותחזוקה של טון myogenic כלים אלה. באמצעות גישה זו, אנחנו בעבר הראו כי מופעל מתיחה ערוצי ארעי קולטן פוטנציאליים Vanilloid 2 (TRPV2) ו- Ca ממותגת מתח L - ו T-type2 + ערוצי לשחק תפקיד מרכזי בקידום פיתוח הטון myogenic קודם, להזמין שני עכברים רבים ברשתית20,21,22. גם אנחנו דיווחו על שהזאת גדול-מוליכות Ca2 + מופעל אשלגן ערוצים (ערוצים BK)19,28 ולפעול Kvהמכיל 1 ממותגת מתח K+ ערוצי להתנגד פעילות myogenic כלים אלה, שכן תוספת של מעכבי ספציפיים עבור כל אחד הערוצים הללו מפעילים vasoconstriction (איור 7C).
איור 8 מציג דוגמאות של Ca2 + הדמיה קונאפוקלית קונבנציונאלי ברשתית רבים לפני, עקב חשיפה פפטיד מצר את כלי הדם, endothelin-1 (Et-1). בהקלטות קונבנציונאלי מבוסס fura-2 (איור 8A), Et-1 (10 ננומטר) מעוררת עלייה biphasic ב [Ca2 +]אני לשכבת השריר החלק arteriolar ברשתית, הכוללת של מרכיב ארעי הראשוני ולאחריו נמוכה יותר מתמשכת רכיב. אנחנו קודם לכן שאפיינו את הרכיבים ארעי ומתמשכת כמו להיות בשל Ca2 + לשחרר רשתית תוך-פלזמית Ca2 + זרם מן המרחב חוץ-תאית, בהתאמה29. Fluo 4-קונפוקלי Ca2 + דימות מבוסס מספק תמונה מפורטת יותר של ההשפעות של Et-1 ברמה התאית. בניסויים אלה, זה ברור כי החלק מדורגות לשינויים הכללית [Ca2 +]אני שנצפתה שלנו נובעים מחקרים microfluorimetry Et-1 מגרה את ההפעלה של חוזרות אסינכרוני [Ca2 +]אני תנודות בתאי השריר החלק arteriolar ברשתית השכנות לאורך הקיר כלי (איור 8 ב', ג'; 30).
איור 9 מציג דוגמאות של הקלטות מלחציים תיקון ערוץ אחד, כל תא מתאי שריר חלק arteriolar ברשתית. עד היום, ביצענו שני ערוץ אחד על תאים ו- inside-out תיקון קלאמפ הקלטות22,28. איור 9 א, ב' לדוגמה, להראות מלחציים תיקון על תאים הקלטה לפני הבאים מתיחה ממברנה (נוצר על-ידי החלת לחץ שלילי פיפטה תיקון). תיקון מסוים זה מכיל שני ערוצים אשר מופעלים על ידי מתיחה מכנית. בעבר הראו כי זרמים אלו ניתן והשרירי אותו באמצעות נוגדנים הנקבוביות לא חוסם ערוץ TRPV222. מוליכות יוניטרית של הערוצים (249.71 pS) הוא גם עקבי עם זרמים אלה להיות מתווכת על-ידי TRPV231.
כל תא לפעיל על-מתח זרמי יכול להיות עורר באמצעות פרוטוקולי שלב מתח. איור 9C מציגה משפחה של A-סוג K+ מופעל מתח זרמי נרשם באמצעות גישה כזו. זרמים אלה מתחוורת כאשר זרמי גדולים אחרים להציג תאים אלה (למשל, BK ו- Ca+-הפעלת זרמי Cl– ) נחסמות באמצעות סוכנים תרופתי ספציפי32,33. זרמים דרך תעלות יונים תלוית מתח בלתי - או חלש נבדקים בדרך כלל באמצעות פרוטוקולי הרמפה מתח. השתמשנו כזה פרוטוקולים כדי לזהות ולאפיין זרמים TRPV2 מופעל על ידי היפוטוניק מתיחה22 ו ערוץ אגוניסטים (איור 9D) בתאי השריר החלק arteriolar ברשתית.
איור 10 מראה לחץ כפול myography ויישם קונאפוקלית Ca2 + הדמיה arteriole ברשתית החולדה הראשית. שכיחות מוגברת של מפעילים לחץ התנודות [Ca2 +]i בתאי השריר החלק בודדים דומים לאלו שנצפו עם Et-1. אנחנו הראו בעבר כי תנודות אלה מופעלות על ידי הסיכום של Ca2 + ניצוצות (מקומי Ca2 + שחרור אירועים) ולתרום הדור של הטון myogenic20.
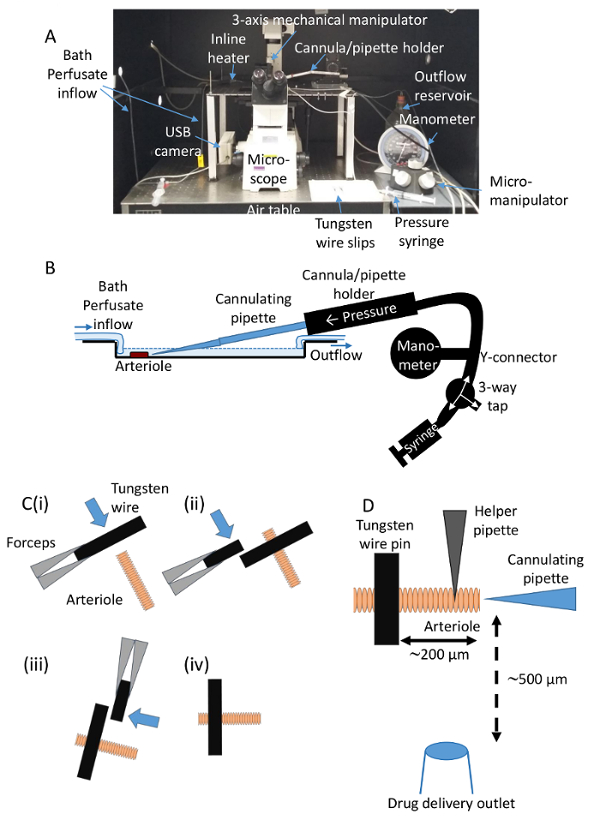
איור 1 . הגדרת הניסוי ללחץ myography ב רבים ברשתית עכברוש. A) ציוד ניסיוני כולל מיקרוסקופ הפוכה, מחמם בשורה perfusate אמבטיה, מכני 3-ציר, מיקרו-סימולטורי, manometer, מחזיק בצינורית ושולחן אוויר. B) תרשים סכמטי מציג ההסדר האופטימלי של פיפטה ו כלי עניין בבית הבליעה הקלטה cannulating. דיאגרמה זו מדגימה גם את הסידור בסיסי של ציוד לחץ. C) תרשים סכמטי שמוצג תהליך עיגון ומזיזים את הספינה באמצעות פתקי תיל טונגסטן נוספת שנערכה ב המלקחיים בסדר. (א) שחרור 1סנט תגית כדי occlude כלי השיט. (ii, iii) השתמש מתעודות משלוח נוספים כדי להסיט את occluding slip (בכיוון שמציין החץ) וליווי כלי אל הכיוון האופטימלי שמוצג (iv). תרשים סכמטי D) מציג את מיקום אופטימלי של occluding slip תיל טונגסטן, המסייע פיפטה ו בצינורית ביחס הכלי כפי שהוסכם לפני תעלות. השקע של מערכת משלוח סמים ממוקם במרחק של ~ 500 מיקרומטר מכלי הקיבול כדי להפחית לכלוכים תנועה במהלך היישום סמים. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
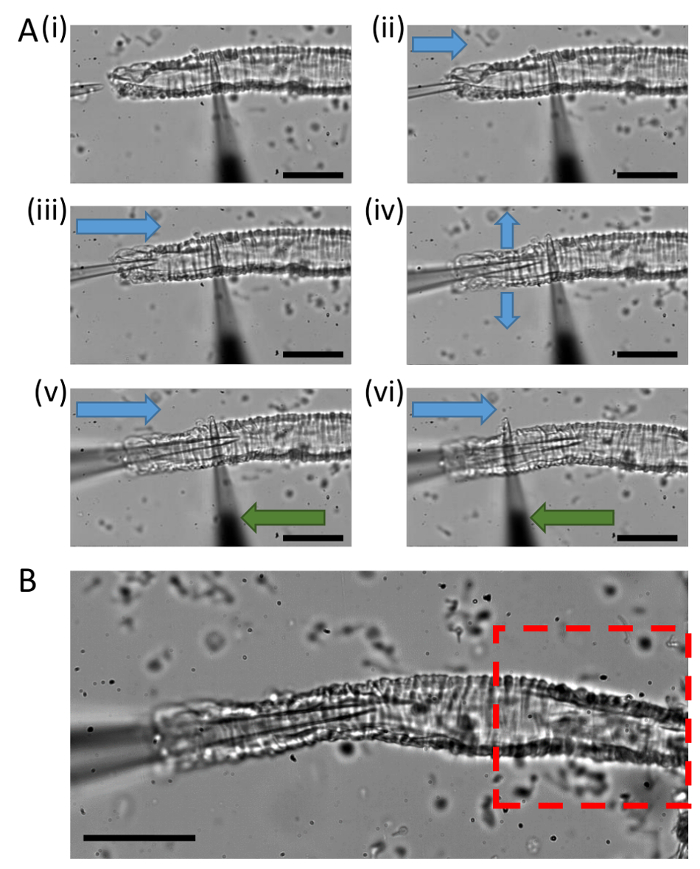
איור 2 . תעלות תהליך ללחץ myography. A) Photomicrographs מציג arteriole ברשתית מעוגן למטה בתא ההקלטה לפני (i), במהלך (ii)-(v), תעלות הבאים (vi). חץ כחול מציין כיוון התנועה של הצינורית בעוד החץ הירוק מציין את כיוון התנועה של פיפטה המסייע. Photomicrograph B) מציג אזור אופטימלית עבור הקלטה של פעילות myogenic בזמן לחץ כפי שמודגש באדום. שימו לב, התאמה של אור להתמקד כדי להגדיל את החדות של כלי הדם מאפשר מעקב טוב יותר של קצוות כלי לניתוח אוטומטי. סולם בר מציין 50 מיקרומטר. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
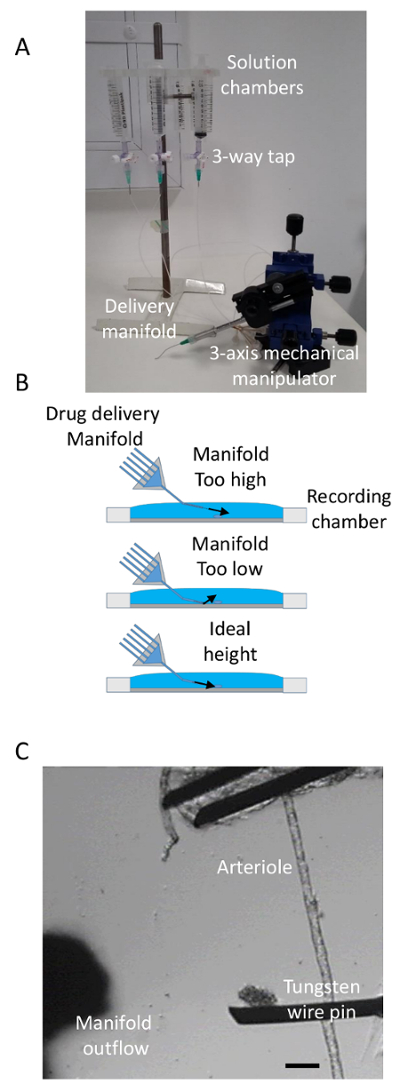
איור 3 . סמים משלוח. A) ציוד המשמש עבור משלוח סמים מציג פתרון מאגרים מחובר של יריעה רב ערוצית משלוח נשלט על ידי 3-דרך הברזים, המצורפת תחמן מכני 3-ציר. B) דיאגרמה המציגה המיקום האנכי אופטימלית של משלוח סמים סעפת ביחס לתא הקלטה. C) Photomicrograph של כלי מעוגן למטה בתא ההקלטה מציג את מיקום אידיאלי בשקע אספקת סמים. סרגל קנה מידה מייצג 100 מיקרומטר. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
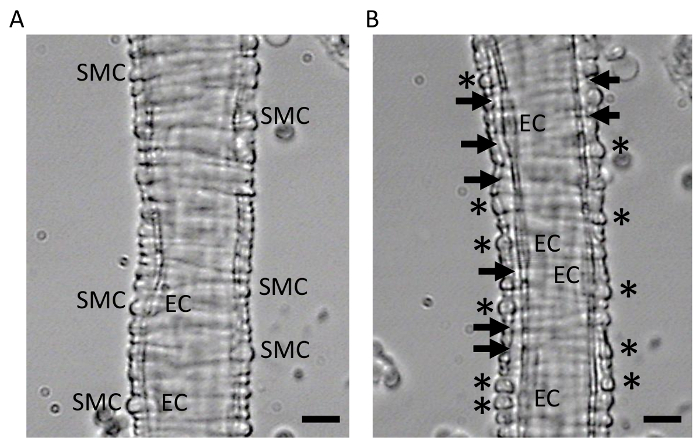
איור 4 . עיכול אנזימטי של רבים ברשתית עבור תיקון קלאמפ הקלטה. אור micrographs של arteriole ברשתית לפני (א), לאחר עיכול אנזימטי (B). הערה על הפרדה פיזית (המסומנים על ידי חצים) של תאי שריר חלק (SMCs) מתאי אנדותל הבסיסית (ECs). תאי שריר חלק מתאים תיקון מחבר חובק למעקה מסומנים בכוכבית. סרגל קנה מידה מייצג 10 מיקרומטר. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
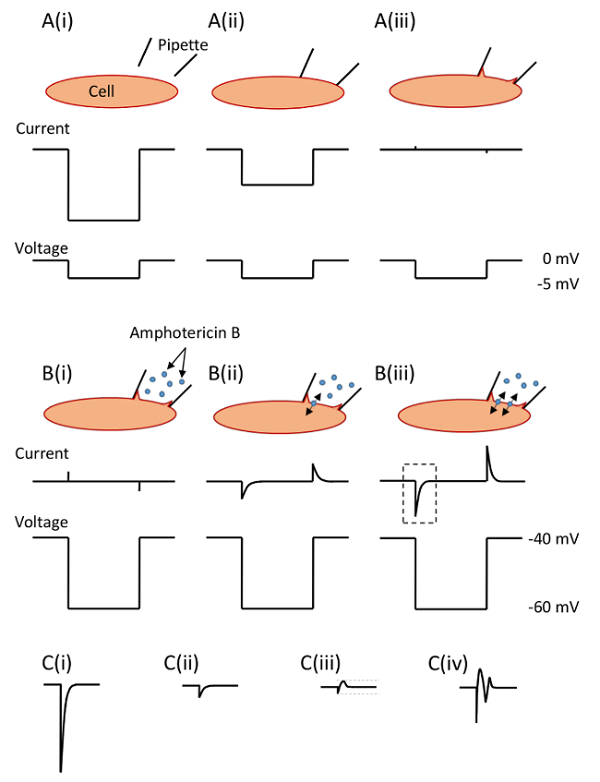
איור 5 . יחיד ערוץ והקלטה מלחציים תיקון כל התא. A) איור של הזרמים המבחן ציין במהלך פרוטוקול 'חותם מבחן' כאשר: (i) פיפטה תיקון נכנס המדיום רחצה חיצוניים, עצה פיפטה (ii) בא במגע עם קרום פלזמה התא השריר החלק בכלי הדם וכן (iii) שאיבה חלה על גב פיפטה כדי לאפשר היווצרות gigaseal. בעקבות פיפטה קיבוליות פיצוי באמצעות המגבר מלחציים תיקון, כעת ניתן להקליט ערוץ אחד הזרמים בתצורה על תאים או תיקון של הממברנה עשויה להוציא על ידי נסיגה במהירות על פיפטה ליצירת תיקון "הפוכה". השינויים הנוכחיים B) הקשורים לפיתוח חשמל גישה אל פנים התא במהלך היישום של כל-התא B שהוא גוסס מחורר תיקון קלאמפ טכניקה (i): (ii) כפי שהוא גוסס B מחיצות לתוך הקרום, גישה ההתנגדות פולס, קיבוליות שנחשולי elicited במהלך hyperpolarizing מתח שלבים (מ-40 ל-60 mV) שיפחת; (iii) ברגע הגישה התנגדות (R) נפל < 15 MΩ, אשר בדרך כלל לוקח 5-10 דקות לאחר היווצרות gigaseal, ניסויים אפשרי. C) קודם כל-תא והקלטה, הגישה התנגדות קיבול תא יקבל פיצוי באמצעות את החוגה הרלוונטיים על המגבר מלחציים תיקון. ערכים של access ההתנגדות ותא קיבוליות שסופקו על-ידי פונקציות אוטומטיות בתוך מלחציים תיקון תוכנה יכול לשמש כדי לעזור להנחות את התהליך הזה: (i) מציג את קיבול ארעי לפני פיצוי שנלקחו האזור המסומן ב- B(iii); (ii) מציגה את ההפחתה קיבול ארעית בדרך כלל נצפו כאשר הגישה התנגדות של קיבול נמצאים פיצוי; (iii) סדרת ההתנגדות פיצוי ואז יש לתקן למעלה כדי התנגדות 75% ו- access ושווה קיבוליות פיצוי על יסודי כך והחולף וכתוצאה מכך אמור להיות יחסית משרעת מעל ומתחת רמת plateau הנוכחי במהלך הצעד. (iv) להקפיד על מנת להבטיח כי ההתנגדות גישה לא מעל יפוצה (מסומן על ידי הנוכחות של "צלצול" והחולף), אשר יכול להתרחש לפעמים אם גישה ממשיכה להשתפר במהלך הניסוי. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
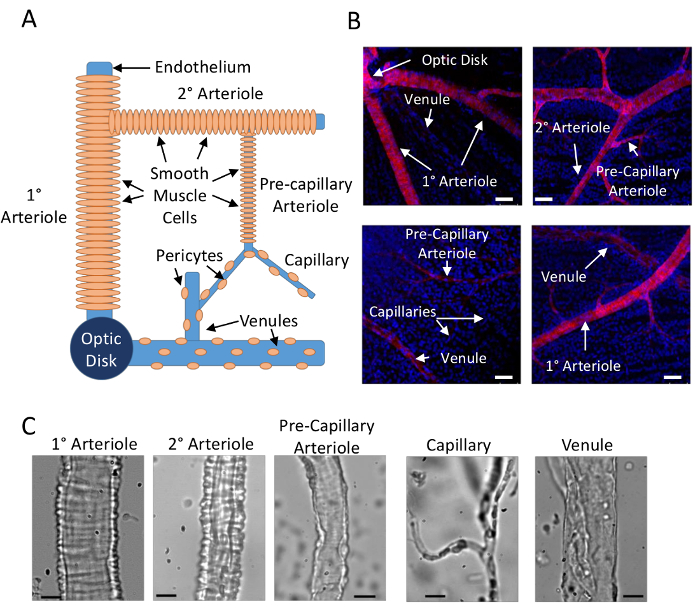
איור 6 . זיהוי של עכברוש מבודד רבים ברשתית. A) איור המציג את הסידור של העץ microvascular ברשתית חולדה. B) תמונות קונאפוקלית של עכברוש רבים ברשתית venules בתוך הר שטוח ההכנות מוכתם αSMA (אדום גרעינים הם מוכתם כחול; סולם העמודות מייצגות 50 מיקרומטר). C) micrographs האור של 1 ° מבודד, 2 ° רבים מראש נימי, נימי ורשת venule (סולם העמודות מייצגות 10 מיקרומטר). אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
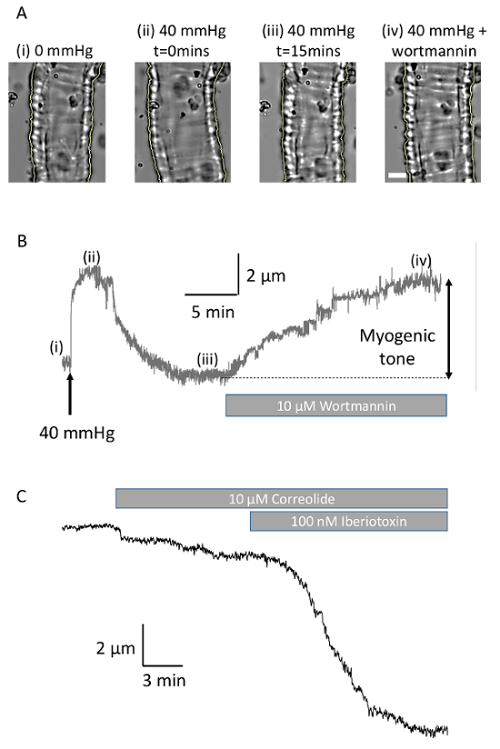
איור 7 . הקלטות myography לחץ arteriolar. A) תמונות של arteriole ברשתית לצינוריות הצגה (i) נח קוטר (כ 35.6 מיקרומטר), (ii) התרחבות על לחץ, (iii) ופיתוח של myogenic vasoconstriction (iv) התרחבות בשל התוספת של 10 מיקרומטר wortmannin ב 0Ca2 + הפתרון של הנקס. סולם בר מייצג 10 מיקרומטר. B) הזמן קורס עלילת מקוטר כלי לניסוי מלא שמוצג A (לטעום-מסגרות 2.5/s). קוטר C) לאתר של arteriole שונים תחת מצב יציב myogenic טון (קוטר 38.7 מיקרומטר) מציג את ההשפעות של correolide מעכב את ערוץ Kv1 (10 מיקרומטר) iberiotoxin מעכב את הערוץ BK (100 ננומטר) (לטעום-מסגרות 0.5/s). אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
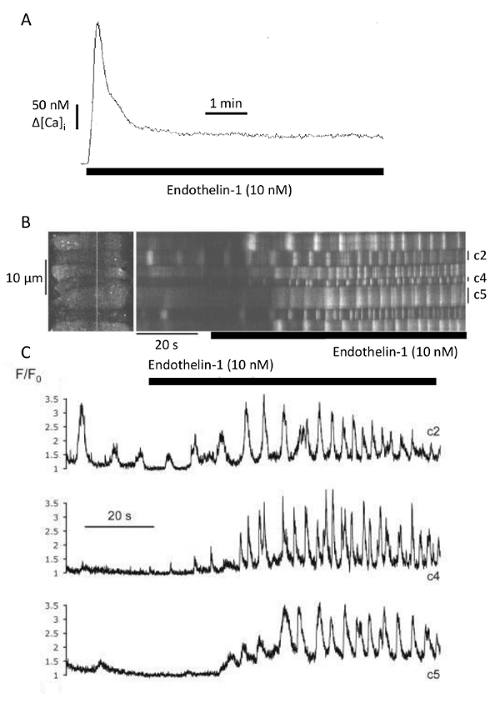
איור 8 . ההשפעות של Et-1 ב- [Ca2 +] . אני איתות פעילות רבים ברשתית חולדה. A) קונבנציונאלי fura-2 מבוססי הקלטה מציג את ההשפעות של Et-1 (10nM)-הכללית [Ca2 +]אני. הבסיס [Ca2 +]אני היה 82 nM, הזה arteriole 1 °. תמונות המבוססות על Fluo-4 xt קונאפוקלית B) מציג את ההשפעות של Et-1 על [Ca2 +]אני ברמה התאית. C) העלילה של עוצמת קרינה פלואורסצנטית מנורמל (F/F0) נמדד בתאים לפי המסומן ב'. דמות זו שונתה מ. Tumelty et al. 30 עם הרשאה. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
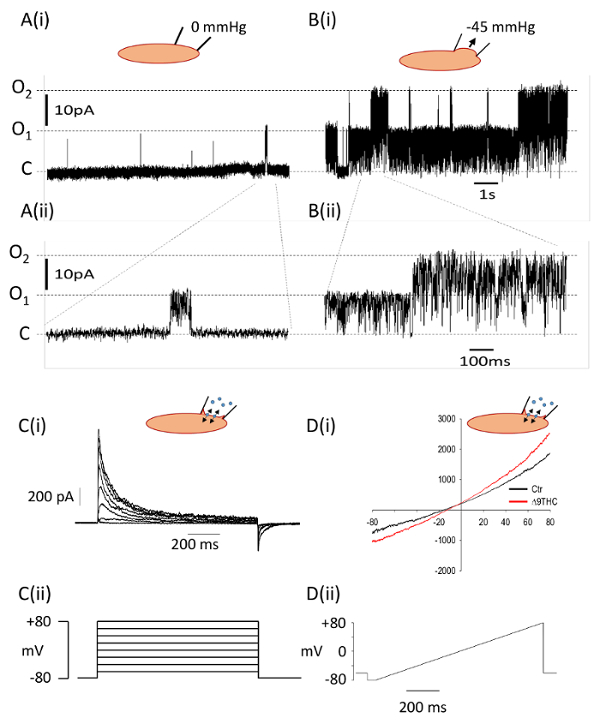
איור 9 . ערוץ אחד והקלטות תאים כל תיקון-קלאמפ מתאי שריר חלק arteriolar ברשתית חולדה. , B) הקלטות ערוץ אחד על תאים קרום זהה תיקון לפני (א) ו- (B) במהלך היישום של לחץ שלילי (-45 מ מ כספית) התיקון פיפטה. שני ערוצים קיימים התיקון (12.81 הנוכחי יוניטרית הרשות הפלסטינית; יוניטרית מוליכות 249.71 pS) באיזו תכנית משמעותית תוך הפעלת בתנאים מתיחה. אזורים שנבחרו בין הפאנלים העליון (i) מוצגים על זמן יותר מהיר הבסיס התחתון לוחות (ii). C) המשפחה של זרמי ערוץ K A-סוג+ (i) הוקלט במצב התא כולו בנוכחותו של מעכבי של BK ו- Ca2 +-מופעל מעכבי ערוץ Cl– , elicited, בתגובה 20 mV מתח צעד במרווחים בין-80 mV כדי +80 mV (ii). זרמים התא כולו D) (i) שהפיק רמפות מתח בין-80 mV ו +80 mV לפני (קו שחור) במהלך יישום (הקו האדום) TRPV2 ערוץ אגוניסט הדלתא-9-tetrahydrocannabinol (Δ9-THC). פרוטוקול הרמפה מתח שמשמש מוצג בחלונית התחתונה (ii). אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
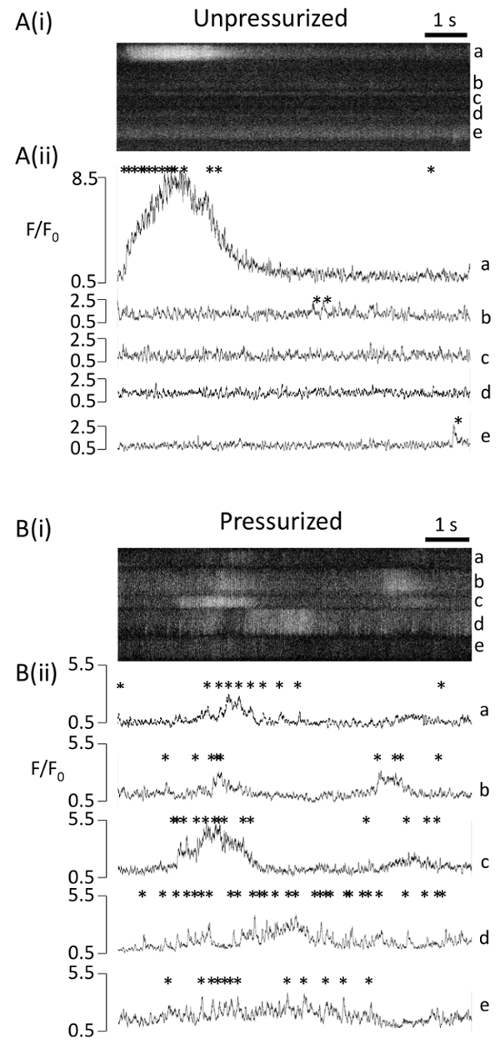
איור 10 . Ca הדמיה2 + קונאפוקלית לפני ובעקבות לחץ arteriole ברשתית עכברוש. ושלחתי xt קונאפוקלית נציג סריקות (i) של תאי שריר חלק arteriolar ברשתית תחת (A) ו- (B) בלחץ תנאים המתקבל אזורים נפרדים של אותו כלי השיט. (ii) שינויים מנורמל קרינה פלואורסצנטית (F/F0) תאים בודדים שהוקלט ב a - e, כפי שמצוין (i), להתוות נגד הזמן. הכוכביות מציינות בודדים subcellular Ca2 + ניצוצות לודיג תדירות לאחר לחץ, summate לעורר Ca הסלולר2 + תנודות. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
| מתחם (מ מ) | נמוך Ca2 + הנקס | 0Ca2 + הנקס | הנקס רגילים | בידוד אנזים פרוטאז | בידוד אנזימים Collagenase | בידוד אנזימים DNAse | להרוות את הפתרון | פתרון Rmin | פתרון Rmax | תא מצורף פתרון חוץ-תאית | תא מצורף פתרון פיפטה | כל תא פתרון חוץ-תאית | פתרון שלם-תא פיפטה |
| טוהר המים (ההתנגדות) | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥18 MΩ.cm | ≥15 MΩ.cm | ≥18 MΩ.cm |
| NaCl | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | |||
| אשלגן כלורי | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 138 | ||
| D-גלוקוז | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | |
| MgCl2 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1 |
| HEPES | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 |
| CaCl2 | 0.1 | 2 | 0.1 | 0.1 | 0.1 | 10 | 2 | 2 | 2 | 0.2 | |||
| EGTA | 4 | 0.5 | |||||||||||
| MnCl | 10 | ||||||||||||
| Ionomycin | 0.01 | ||||||||||||
| קו | 140 | 130 | |||||||||||
| חומצה D-Gluconic | 130 | 130 | |||||||||||
| NaOH | 10 | ||||||||||||
| Penitrem א | 0.0001 | 0.0001 | 0.0001 | ||||||||||
| פמפרידין | 10 | ||||||||||||
| ותשמרי | 0.01 | 0.01 | |||||||||||
| פלואוקסטין | 0.1 | ||||||||||||
| 9-anthracenecarboxylic חומצה | 1 | ||||||||||||
| B שהוא גוסס | 300-600 μg מ ל-1 | ||||||||||||
| סוג פרוטאז הארבעה עשר | ~0.01% (0.4-0.6 מ ג/40 מ ל) | ||||||||||||
| Collagenase מסוג 1A | 0.1% (6 מ ג של 60 מ"ל) | ||||||||||||
| DNAse אני | קו 20 (20 μL של מניות 1 מו/mL של 20 מ ל) | ||||||||||||
| ה-pH | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.2 |
| טיטרציה עם | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | טריס | טריס | NaOH | קו |
טבלה 1- ההרכב של פתרונות בשימוש ניסויים כולל דוגמאות חיצוני, פיפטה פתרונות שימוש עבור ערוץ אחד (TRPV2) של התא כולו (A-סוג) זרמים.
דיון
הפרוטוקולים שתוארו לעיל דורשים תרגול, אבל צריך להיות בר השגה בפתרון מינימלי. ביום ממוצע אנחנו להשיג רבים שמיש 6-8 של הבידוד ולהשיג ניסויים מוצלחים 3-4. אם יש בעיות, עם זאת, ישנם כמה צעדים שניתן לנקוט כדי לשפר את אחוזי ההצלחה. מדי פעם אנחנו גילינו, במיוחד בעת שימוש חולדות הצעיר (< 8 שבועות), כי התשואה של רבים יכול להיות נמוך. כדי לעקוף בעיה זו, ואנו ממליצים צריך שתוציאו את רקמת רשתית (10-30 s-500 x g) בין כל trituration שלבים שלבים 1.12-1.14. זה לעתים קרובות מסייע לשפר את התשואה של כלי אך יהיה גם להגדיל את כמות פסולת תא במסגרת ההכנה.
כאשר cannulating כלי ללימודי myography לחץ זה חשוב לבדוק רבים בקפידה עבור כל צד-סניפים ייתכן ביקע קרוב לאתר נגע הסתעפות. זה מייצג גורם נפוץ זליגת ואובדן הלחץ במהלך ניסויים. העניין המרכזי שעשויות להתרחש עם [Ca2 +]אני הפרוטוקולים היא הרמה של צבע טעינה. צבע עניים הטעינה מוביל יחס אות לרעש נמוך, בעת העמסת תוצאות שיבוש נורמלי Ca2 + הומאוסטזיס. כדי להפחית את הסבירות של אחד מנושאים אלה, ניתן להסיר aliquot קטן של homogenate ברשתית, ספינות בודדות לבדוק מעת לעת במהלך פרוטוקול טעינה. כאשר התחייבות תיקון-קלאמפ ניסויים, שיעור ההצלחה של היווצרות gigaseal תלויה מאוד איך טוב הנדן הבזליים עיכולו. כאשר בתחילה בדיקה פרוטוקול זה או באמצעות שימוש רב חדש של אנזימים יתכן צורך להתאים את הריכוז/המשך של אנזים עיכול. ניטור בקפידה על הפרדת השכבות אנדותל, שריר חלק יבטיח עיכול מספיקות כדי להסיר את הבסיס מספיק laminal כדי לקבל גישה. פיקוח קפדני זה נחוץ גם למנוע עיכול יתר, אשר יכולה להתבטא כמו הכלי מתחיל מתכווצים. אם הדבר יתרחש, תאי שריר חלק הם לעתים קרובות מדי שביר להקלטה מלחציים תיקון. בעת החלת אנזימים, חשוב לכלול DNAse אני כדי להבטיח הסרה של גדילי ה-DNA שחרור מכל התאים הפגועים בתהליך בידוד. שברי DNA הם קשיים ולגרום המלקחיים לדבוק arteriole במהלך השלבים האחרונים של תהליך הניקוי (שלב 4.4), לעיתים קרובות וכתוצאה מכך איבוד הספינה. ניקוי של כלי קשה מבחינה טכנית ומתבצעת בצורה הטובה ביותר בהגדלה גדולה (20 X) עם תנועות גורפת של מלקחיים סגור מקוטר המברשת הטוב ביותר האפשרי. בין הרייטינג, לנקות את המלקחיים עם המעבדה גליל.
כפי שמודגש קודם לכן, מניע המפתח מאחורי התפתחות הפרוטוקולים המפורטים בכתב יד זה היה כדי להבין טוב יותר למה זרימת הדם מופרת במהלך מחלות כלי הדם ברשתית. רוב העבודה שלנו עד כה התמקדה בעין סוכרתית המחלה28,33. רבים ניתן לבודד מפני באדמומיות של מכרסמים ניסיוניות של סוכרת בשיטות המתוארות בסעיף 1. כאשר ניסויים רבים ברשתית מבודד של בעלי חיים סוכרתיים, חשוב לנסות לשכפל מקרוב את התנאים hyperglycemic שחוו את כלי ויוו. מסיבה זו, שנגדל בדרך כלל רמות D-גלוקוז בידוד, פתרונות ניסיוני 25 מ מ. עיבוי של קרום המרתף כלי הדם היא תופעה מוכרת היטב בכלי ברשתית במהלך סוכרת34,35. בעת שימוש בבעלי חיים עם סוכרת ממושכת (> 1 חודשים משך המחלה), ריכוז האנזים מוגבר או עיכול פעמים נדרשים לעתים קרובות כדי להפעיל את היישום של תיקון-קלאמפ הקלטה שיטות.
הגבלה חשובה של שימוש שמחוץ מבודד רבים ברשתית ללמוד פיזיולוגיה של כלי הדם ברשתית, פתופיזיולוגיה אובדן neuropile ברשתית שמסביב. למרות הסרת של תאי גליה ו עצביים ברשתית מאפשר גישה קלה אל תאי השריר החלק בכלי הדם ברשתית ללימודי פיזיולוגיה של התא, התגובה של כלי מגשרים vasoactive ניתן לשנות באופן דרמטי היעדרות, נוכחות של הרשתית רקמות. הפעולות של אדנוזין טרי-פוספט (ATP), לדוגמה, לספק דוגמה טובה נקודה זו. ב מבודד עכברוש רבים ברשתית, תוספת של ATP גורמים חזקים כיווץ של כלי36, תוך נוכחות neuropile ללא פגע, כלי הדם מתרחבים37. לכן, בכל מקום אפשרי, אנחנו בדרך כלל מנסים לאמת את הממצאים העיקריים מן ההכנות שלנו arteriole מבודדים באמצעות שמחוץ ברשתית שלם-mounts ו ויוו מדידות של כלי השיט קוטר ודם זרם16,37 . ראוי לציין, שיטות חדשות שהתגלו לאחרונה לימוד רבים קטנים, נימים בתוך כל perfused הרשתיות חזירי שמחוץ38,39. הכנות צפויים לשפר במידה רבה את הבנתנו איך neuropile ברשתית מווסת את הטון arteriolar ו נימי ברשתית, כמה שינויים ברשתית haemodynamics לווסת את פעילות. עצבית ברשתית.
למרות ההליכים המתוארים במסמך זה מתמקדים על השימוש של רבים ברשתית עכברוש בודד עבור הבנה שריר חלק arteriolar תא פיזיולוגיה, אנו כעת מפתחים פרוטוקולים לאפשר גם המחקר של פונקצית תא אנדותל כלים אלה. עבודה ראשוני, אנחנו כבר מצליחים לשנות עיכול אנזימטי מקטעי רשתית arteriolar להניב צינורות תא אנדותל קיימא נתונות Ca2 + הדמיה ו- patchclamp הקלטה לימודי. תעלות רבים מבודד בשני קצותיו, הפעלת intraluminal משלוח תרופות, יכול בעתיד גם לאפשר אנדותל תלוית תגובות vasodilatory להיחקר בכלי אלה.
גילויים
ד ר ג'ואנה כור עכשיו עובד של מדטרוניק (טווין-ערים, מינסוטה, ארה ב), עבודתה הנוכחי אינו מתנגש עם זה המוצג כאן.
תודות
פיתוח מהפרוטוקולים כמתואר במאמר זה נתמך על ידי מענקים למימון חברות הטיולים הבאות: BBSRC (BB/I026359/1), הריב מטווח הראייה (1429 ו- 1822), לסוכרת נעורים (2-2003-525), טרסט (074648/Z/04), קרן לב הבריטי (PG/11/94/29169), מועדון הכדורגל מונפלייה R & D חטיבה (STL 4748 13), MRC (MC_PC_15026).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| כוסות | פישרברנד | 15409083 או כל מוצר שווה ערך | |
| מספריים מעוקלים | פישר סיינטיפיק | 50-109-3542 | או כל מוצר שווה ערך |
| פיפטה פלסטיק חד פעמית / העברה | Sarstedt | 86.1174 | 6 מ"ל הוא הטוב ביותר אך גדלים אחרים מקובלים; הסר את הקצה כדי להרחיב את הצמצם |
| ניתוח מיקרוסקופ | ברונל מיקרוסקופים בע"מ | או כל מוצר שווה ערך | |
| מלקחיים | World Precision Instruments | Dumont #5 14095 | כל מלקחיים עדינים שווי ערך |
| פסטר פיפטה | פישרברנד | 11546963 | אש מלוטש כדי להפחית את החיכוך אך לא מספיק כדי לצמצם את הקצה |
| צלחת פטרי | סיגמא-אולדריץ' | P7741 | או כל מוצר שווה ערך 10 ס"מ |
| פטמת | פיפטה פישרברנד | 12426180 | או כל מוצר שווה |
| אספקת מים מטוהרים | Merek | Milli-Q מערכת טיהור מים אינטגרלית | או כל מערכת שווה ערך |
| מבחנה עם תחתית עגולה | פישרברנד | 14-958-10 B | 5 מ"ל; כל מוצר שווה |
| מלקחיים משוננים | פישר סיינטיפיק | 17-467-230 | או כל מוצר שווה ערך |
| להבי קצה יחיד | Agar Scientific | T585 | או כל מוצר שווה ערך |
| Sylgard | Dow Corning | 184 | או כל משטח גמיש |
| מתלה מבחנה | Fisherbrand Derlin | 10257963 | או כל מוצר שווה ערך |
| מניפולטור | |||
| מכני 3 צירים | Scientifica | LBM-7 | x2 (או כל מוצר שווה ערך) |
| ברזים תלת כיווניים | Cole-Parmer | UY-30600-02 | או כל מוצר שווה ערך |
| שולחן אוויר | תאגיד ייצור טכני | ספסל נקי | או כל מוצר שווה ערך |
| תוכנת ניתוח | Image J | https://downloads.imagej.net/fiji/ | תוכנת הדמיה חינמית |
| תוסף ניתוח | Myotraker | https://doi.org/10.1371/journal.pone.0091791.s002 | תוסף מותאם אישית עבור imageJ זמין באופן חופשי להורדה |
| זכוכית פיפטה קנולציה | מכשירי תפיסה עולמיים | TW150F-4 | או כל מוצר שווה ערך |
| מחשב | Dell | Optiplex 7010 | או כל מוצר שווה ערך |
| מדחום דיגיטלי | RS | 206-3722 | או כל מוצר שווה ערך |
| Fluo-4-AM | Thermo Fisher Scientific | F14201 | הכינו מלאי של 1 מ"מ ב-DMSO |
| Forceps | World Precision Instruments | Dumont #7 14097 | כל מלקחיים עדינים שווי ערך |
| Fura-2-AM | Thermo Fisher Scientific | F1221 | הכינו מלאי של 1 מ"מ בתא |
| הקלטה עם תחתית זכוכית | וורנר אינסטרומנטס | 64-0759 | או כל מוצר שווה ערך |
| זכוכית | פיפטה עוזרתמכשירי תפיסה עולמיים | IB150F-3 | או כל מוצר שווה ערך |
| מחמם בשורה | בהתאמה | מסחרי SH-27B פתרון מחמם בשורה ממכשיר הרווארד | |
| מיקרוסקופ הפוך | Nikon | Eclypse TE 300 | או כל מוצר שווה |
| מנומטר | Riester | LF1459 | או כל מוצר שווה ערך |
| חולץ | מיקרואלקטרודותמכשירי סאטר | P97 | או כל מוצר שווה ערך |
| Microforge + אולימפוס CX 31 מיקרוסקופ | Glassworks | Fine Point F-550 | או כל מוצר שווה ערך |
| מיקרומניפולטור | מכשירי סאטר | MP-285 | או כל מוצר שווה ערך |
| סעפת משלוח רב ערוצית | אוטומציה | של עיפרון זלוף | או כל מוצר שווה ערך |
| מילוי פיפטה | BD Plastipak | 1 מ"ל | מחומם ונמשך לקוטר הפנימי של |
| פיפטה מחזיק פיפטה | מכשירים מולקולריים | 1-HL-U | או כל מוצר שווה ערך |
| משאבת יניקה | Interpet | AP1 | משאבת אוורור המרה על ידי היפוך |
| מפוח מזרק | BD Plastipak | 20 מ"ל Luer-lok | או כל מוצר שווה ערך |
| חוט טונגסטן | Advent | W558818 | 75μ קוטר |
| m צינורות Tygon | VWR | גדלים שונים | או כל מוצר שווה ערך |
| מצלמת USB | לוג'יטק | HD Pro Webcam C920 | או כל מוצר שווה ערך |
| תוכנת לכידת וידאו | Hypercam | גרסה 2.28.01 | או כל מוצר שווה ערך |
| אמבט מים | Grant | Sub Aqua 12 Plus | או כל מוצר שווה ערך |
| x20 עדשה | Nikon | 20x/0.40 WD 3.8, ∞/0.17 | או כל מוצר שווה ערך |
| x4 עדשת | Nikon | 4x/0.10, WD 30, ∞/- | או כל מוצר שווה ערך מוצר שווה |
| מחברי Y מכשירי | תפיסה עולמיים | 14012 | או כל מוצר שווה ערך |
| הידוק | |||
| ברזים תלת כיווניים | Cole-Parmer | UY-30600-02 | או כל מוצר שווה ערך |
| מניפולטור מכני 3 צירים | Scientifica | LBM-7 | או כל מוצר שווה ערך |
| תאגיד הייצור הטכני | של שולחן האוויר | ספסל נקי | או כל מוצר שווה ערך |
| Amphotericin B | Sigma-Aldrich | A2411 | 3 מ"ג מומס מדי יום ב-50 μ L של DMSO (סוניקט להתמוסס) |
| מגבר | התקנים מולקולריים | Axopatch 200a | או כל מוצר שווה ערך |
| ממיר דיגיטלי אנלוגי | Axon | Digidata 1440A | או כל מוצר שווה ערך |
| קולגנאז סוג 1A | סיגמא-אולדריץ' | C9891 | 0.1 מ"ג/מ"ל ב-LCH |
| מחשב | Dell | Optiplex 7010 | או כל מוצר שווה ערך |
| מדחום דיגיטלי | RS | 206-3722 | או כל מוצר שווה ערך |
| DNAse I | Millipore | 260913 | מלאי עבודה 1 MU mL-1 (10 MU מדולל ב-10 מ"ל LCH) |
| כלוב פאראדיי | בהתאמה | כל מוצר מסחרי שווה ערך | |
| מלקחיים עדינים | דומונט | מס' 7 | כל מלקחיים עדינים |
| מזכוכית תא הקלטה תחתון | וורנר אינסטרומנטס | 64-0759 | או כל מוצר שווה ערך |
| Headstage | מכשירים מולקולריים | CV203BU | או כל מוצר שווה ערך |
| תנור חימום מקוון | בהתאמה | אישית | מסחרי SH-27B פתרון מחמם בשורה ממכשיר הרווארד |
| מיקרוסקופ הפוך | Nikon | Eclypse TE 300 | או כל מוצר שווה ערך |
| חולץ מיקרואלקטרודות | מכשירי סאטר | P97 | או כל מוצר שווה ערך |
| Microforge + אולימפוס CX 31 מיקרוסקופ | Glassworks | Fine Point F-550 | או כל מוצר שווה ערך |
| מיקרומניפולטור | מכשירי סאטר | MP-285 | או כל מוצר שווה ערך |
| סעפת משלוח רב ערוצית | אוטומציה | של עיפרון זלוף | או כל מוצר שווה ערך |
| תוכנת תיקון | מכשירים מולקולריים | Pclamp v10.2 | או כל מוצר שווה ערך |
| מילוי פיפטה | BD Plastipak | 1 מ"ל | מחומם ונמשך לקוטר הפנימי של מחזיק |
| פיפטה | מכשירים מולקולריים | 1-HL-U | או כל מוצר שווה ערך |
| פרוטאז מסוג XIV | סיגמא-אולדריץ' | P5147 | 0.01 מ"ג/מ"ל ב-LCH |
| זכוכית פיפטה חד ערוצית | מכשירי תפיסה עולמית | IB150F-3 | או כל מוצר שווה ערך |
| משאבת יניקה | Interpet | AP1 | משאבת אוורור המרה על ידי היפוך מפוח |
| מזרק | BD Plastipak | 20 מ"ל Luer-lok | או כל מוצר שווה ערך |
| חוט טונגסטן | Advent | W557418 | 50μ קוטר |
| m צינורות Tygon VWR | גדלים שונים | כל מוצר שווה ערך שיתאים למצלמת | |
| USB | לוג'יטק | HD Pro מצלמת אינטרנט C920 | או כל מוצר שווה ערך |
| אמבט מים | מענק | סאב אקווה 12 פלוס | או כל מוצר שווה ערך |
| שלם פיפטה זכוכית | וורנר אינסטרומנטס | GC150TF-7.5 | או כל מוצר שווה ערך |
| x20 עדשת | ניקון | 20x/0.40 WD 3.8, ∞/0.17 | או כל מוצר שווה ערך |
| x4 עדשת | ניקון | 4x/0.10, WD 30, ∞/- | או כל מוצר שווה ערך |
| x40 עדשת | ניקון | 40x/0.55, WD 2.1, ∞/1.2 | או כל מוצר שווה ערך |
| מחברי Y מכשירי | תפיסה עולמיים | 14012 | או כל מוצר שווה ערך |
| Ca2+ הדמיה | |||
| ברזים תלת כיווניים | Cole-Parmer | UY-30600-02 | או כל מוצר שווה ערך |
| 3 צירים מניפולטור מכני | Scientifica | LBM-7 | או כל מוצר שווה ערך |
| תוכנת רכישה | קיירן מחקר בע"מ | מנוע רכישה V1.1.5 | או כל מוצר שווה ערך; מיקרופלואורימטריה |
| שולחן אוויר | תאגיד ייצור טכני | ספסל נקי | או כל מוצר שווה ערך |
| תוכנת ניתוח להדמיה קונפוקלית | Image J | https://downloads.imagej.net/fiji/ | תוכנת הדמיה חינמית |
| מחשב | Dell | Optiplex 7010 | או כל מוצר שווה ערך |
| מיקרוסקופ קונפוקלי | Leica Geosystems | SP5 | או כל מוצר שווה ערך; קונפוקלי |
| מדחום דיגיטלי | RS | 206-3722 | או כל מוצר שווה ערך |
| מלקחיים עדינים | דומונט | מס' 7 | כל מלקחיים עדינים |
| מזכוכית תא הקלטה תחתון | וורנר אינסטרומנטס | 64-0759 | או כל מוצר שווה ערך |
| מחמם מקוון | בהתאמה אישית | מסחרי SH-27B פתרון מחמם בשורה ממכשיר הרווארד | |
| מיקרוסקופ | Nikon | Eclipse TE2000 | או כל מוצר שווה ערך; מיקרופלואורימטריה |
| מונוכרומטור | קיירן מחקר בע"מ | אופטוסקן | או כל מוצר שווה ערך; מיקרופלואורימטריה |
| סעפת אספקה רב ערוצית | אוטומציה | של עיפרון זלוף | או כל מוצר שווה ערך |
| מילוי פיפטה | BD Plastipak | 1 מ"ל | מחומם ונמשך לקוטר הפנימי של פיפטה |
| תוכנה למיקרוסקופ קונפוקלי | Leica Geosystems | LAS-AF גרסה 3.3. | או כל מוצר שווה ערך; קונפוקלי |
| משאבת יניקה | Interpet | AP1 | משאבת אוורור המרה על ידי היפוך מפוח |
| מזרק | BD Plastipak | 20 מ"ל Luer-lok | או כל מוצר שווה ערך |
| חוט טונגסטן | Advent | W557418 | 50μ m קוטר |
| Tygon צינורות | VWR | גדלים שונים | כל מוצר שווה ערך שיתאים |
| לאמבט מים | Grant | Sub Aqua 12 Plus | או כל מוצר שווה ערך |
| עדשת x100 | Nikon | x100 NA 1.3 שמן | או כל מוצר שווה ערך; עדשת מיקרופלואורימטריה |
| x20 | Nikon | 20x/0.40 WD 3.8, ∞/0.17 | או כל מוצר שווה ערך; מיקרופלואורימטריה |
| עדשת x20 | Leica | Geosystems HCX PL FLUOTAR, 20x/0.50, ∞/0.17/D | או כל מוצר שווה ערך; עדשת x4 קונפוקלית |
| Nikon | 4x/0.10, WD 30, ∞/- | או כל מוצר שווה ערך; עדשת מיקרופלואורימטריה | |
| x63 | Leica Geosystems | HCX PL APO, 63x/1.40 - 0.60 OIL CS ∞/0.17/E | או כל מוצר שווה ערך; |
| מחברי Y קונפוקליים | תפיסה עולמית מכשירים | 14012 | או כל מוצר שווה ערך |
| <חזק>פיפטות | <חזקות>מפרטים והגדרות לייצור פיפטות לניסויים | ||
| עוזרים פיפטות | עולמיות מכשירי Percision | IB150F-3 | קוטר פנימי: 0.86 מ"מ רמפה: 261 לחץ: 300 חום: 280 למשוך: 0 מהירות: 56 זמן: 250 מספר מחזורים: 4 קוטר קצה: 0.5-2 μ m ליטוש: כן התנגדות סופית: >10 MΩ |
| קנולציה | פיפטה עולמית | TW150F-4 | קוטר פנימי: 1.17 מ"מ רמפה: 290 לחץ: 300 חום: 280 משיכה: 0 מהירות: 58 זמן: 150 מספר מחזורים: 4 קוטר קצה: 3-10 μ m ליטוש: no התנגדות סופית: < 1 MΩ |
| תיקון בתא | מכשירי תפיסה עולמיים | IB150F-3 | קוטר פנימי: 0.86 מ"מ רמפה: 261 לחץ: 300 חום: 280 משיכה: 0 מהירות: 56 זמן: 250 מספר מחזורים: 4 קוטר קצה: 0.5-2 μ m ליטוש: yes התנגדות סופית: >5 MΩ |
| תיקון תאים שלמים | וורנר אינסטרומנטס | GC150TF-7.5 | קוטר פנימי: 1.17 מ"מ רמפה: 296 לחץ: 200 חום: 287 משיכה: 0 מהירות: 50 זמן: 250 מספר מחזורים: 4 קוטר קצה: 2-3 μ m ליטוש: מועיל אך לא הכרחי התנגדות סופית: 1-2 MΩ |
מקורות
- Kohner, E. M., Patel, V., Rassam, S. M. Role of blood flow and impaired autoregulation in the pathogenesis of diabetic retinopathy. Diabetes. 44, 603-607 (1995).
- Hafez, A. S., Bizzarro, R. L., Lesk, M. R. Evaluation of optic nerve head and peripapillary retinal blood flow in glaucoma patients, ocular hypertensives, and normal subjects. American Journal of Ophthalmology. 136, 1022-1031 (2003).
- Curtis, T. M., Gardiner, T. A., Stitt, A. W. Microvascular lesions of diabetic retinopathy: clues towards understanding pathogenesis? Eye (London). 23, 1496-1508 (2009).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease). Progress in Retinal and Eye Research. 27, 284-330 (2008).
- Kuwabara, T., Cogan, D. G. Studies of retinal vascular patterns. I. Normal architecture. Archives of Ophthalmology. 64, 904-911 (1960).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Puro, D. G. Retinovascular physiology and pathophysiology: new experimental approach/new insights. Progress in Retinal and Eye Research. 31 (3), 258-270 (2012).
- Kur, J., Newman, E. A., Chan-Ling, T. Cellular and physiological mechanisms underlying blood flow regulation in the retina and choroid in health and disease. Progress in Retinal and Eye Research. 31 (5), 377-406 (2012).
- Delaey, C., Van de Voorde, J. Regulatory Mechanisms in the Retinal and Choroidal Circulation. Ophthalmic Research. 32 (6), 249-256 (2000).
- Metea, M. R., Newman, E. A. Glial cells dilate and constrict blood vessels: a mechanism of neurovascular coupling. Journal of Neuroscience. 26, 2862-2870 (2006).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease. Progress in Retinal and Eye Research. 27 (3), 284-330 (2008).
- Hughes, S., Chan-Ling, T. Characterization of smooth muscle cell and pericyte differentiation in the rat retina in vivo. Investigative Ophthalmology & Visual Science. 45 (8), 2795-2806 (2004).
- Shepro, D., Morel, N. M. Pericyte physiology. The FASEB Journal. 7 (11), 1031-1038 (1993).
- Kornfield, T. E., Newman, E. A. Regulation of Blood Flow in the Retinal Trilaminar Vascular Network. Journal of Neuroscience. 34 (34), 11504-11513 (2014).
- Matsushita, K., Puro, D. G. Topographical heterogeneity of KIR currents in pericyte-containing microvessels of the rat retina: effect of diabetes. Journal of Physiology. 573, 483-495 (2006).
- Needham, M., et al. The role of K+ and Cl- channels in the regulation of retinal arteriolar tone and blood flow. Investigative Ophthalmology & Visual Science. 55 (4), 2157-2165 (2014).
- Hessellund, A., Jeppesen, P., Aalkjaer, C., Bek, T. Characterization of vasomotion in porcine retinal arterioles. Acta Ophthalmologicaogica Scandinavica. 81, 278-282 (2003).
- Delaey, C., Van de Voord, J. Pressure-induced myogenic responses in isolated bovine retinal arteries. Investigative Ophthalmology & Visual Science. 41, 1871-1875 (2000).
- Kur, J., et al. Role of ion channels and subcellular Ca2+ signaling in arachidonic acid-induced dilation of pressurized retinal arterioles. Investigative Ophthalmology & Visual Science. 55 (5), 2893-2902 (2014).
- Kur, J., Bankhead, P., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Ca(2+) sparks promote myogenic tone in retinal arterioles. British Journal of Pharmacology. 168 (7), 1675-1686 (2013).
- Fernández, J. A., McGahon, M. K., McGeown, J. G., Curtis, T. M. CaV3.1 T-Type Ca2+ Channels Contribute to Myogenic Signaling in Rat Retinal Arterioles. Investigative Ophthalmology & Visual Science. 56 (9), 5125-5132 (2015).
- McGahon, M. K., et al. TRPV2 Channels Contribute to Stretch-Activated Cation Currents and Myogenic Constriction in Retinal Arterioles. Investigative Ophthalmology & Visual Science. 57 (13), 5637-5647 (2016).
- Guidoboni, G., et al. Intraocular Pressure, Blood Pressure, and Retinal Blood Flow Autoregulation: A Mathematical Model to Clarify Their Relationship and Clinical Relevance. Investigative Ophthalmology & Visual Science. 55 (7), 4105-4118 (2014).
- Scholfield, C. N., Curtis, T. M. Heterogeneity in cytosolic calcium regulation among different microvascular smooth muscle cells of the rat retina. Microvascular Research. 59 (2), 233-242 (2000).
- Grynkiewicz, G., Poenie, M., Tsien, R. Y. A new generation of Ca2+ indicators with greatly improved fluorescence properties. Journal of Biological Chemistry. 260, 3440-3450 (1985).
- Sakmann, B., Neher, E. Single Channel Recording, Second Edition. , Plenum Press. New York. 53-90 (1995).
- Fernández, J. A., Bankhead, P., Zhou, H., McGeown, J. G., Curtis, T. M. Automated detection and measurement of isolated retinal arterioles by a combination of edge enhancement and cost analysis. PLoS One. 9, e91791(2014).
- McGahon, M. K., et al. Diabetes downregulates large-conductance Ca2+-activated potassium beta 1 channel subunit in retinal arteriolar smooth muscle. Circulation Research. 100 (5), 703-711 (2007).
- Curtis, T. M., Scholfield, C. N. Nifedipine blocks Ca2+ store refilling through a pathway not involving L-type Ca2+ channels in rabbit arteriolar smooth muscle. Journal of Physiology. 532 (3), 609-623 (2001).
- Tumelty, J., et al. Endothelin 1 stimulates Ca2+-sparks and oscillations in retinal arteriolar myocytes via IP3R and RyR-dependent Ca2+ release. Investigative Ophthalmology & Visual Science. 52 (6), 3874-3879 (2011).
- Huynh, K. W., et al. Structural insight into the assembly of TRPV channels. Structure. 22 (2), 260-268 (2014).
- McGahon, M. K., Dawicki, J. M., Scholfield, C. N., McGeown, J. G., Curtis, T. M. A-type potassium current in retinal arteriolar smooth muscle cells. Investigative Ophthalmology & Visual Science. 46 (9), 3281-3287 (2005).
- McGahon, M. K., Zhang, X., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Selective downregulation of the BKbeta1 subunit in diabetic arteriolar myocytes. Channels (Austin). 1 (3), 141-143 (2007).
- Ljubimov, A. V., et al. Basement membrane abnormalities in human eyes with diabetic retinopathy. Journal of Histochemistry and Cytochemistry. 44, 1469-1479 (1996).
- Roy, S., Maiello, M., Lorenzi, M. Increased expression of basement membrane collagen in human diabetic retinopathy. Journal of Clinical Investigation. 93, 438-442 (1994).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Hinds, K., Monaghan, K. P., Frølund, B., McGeown, J. G., Curtis, T. M. GABAergic control of arteriolar diameter in the rat retina. Investigative Ophthalmology & Visual Science. 54 (10), 6798-6805 (2013).
- Torring, M. S., Aalkjaer, C., Bek, T. Constriction of porcine retinal arterioles induced by endothelin-1 and the thromboxane analogue U46619 in vitro decreases with increasing vascular branching level. Acta Ophthalmologica. 92 (3), 232-237 (2014).
- P, S. kov J. ensen, S, M. etz M. ariendal P. edersen, Aalkjaer, C., Bek, T. The vasodilating effects of insulin and lactate are increased in precapillary arterioles in the porcine retina ex vivo. Acta Ophthalmologica. 94 (5), 454-462 (2016).
הדפסות חוזרות והרשאות
