פרוטוקול זה מתאר את השימוש של רשת יחיד MHC מחלקה אני מתחמי לחקור מולקולרית באינטראקציה האנושית CD8 + T תאים הפעלה: דור של הנדסה אנטיגן הצגת תאים המבטאים שרשרת אחת בונה, תרבות של שיבוט אנושי של תא CD8 + T וניסויים תא T הפעלה.
מאמר שיטה
שימוש בטכנולוגיה MHC שרשרת אחת לחקור Co-agonism ב אנושי CD8 + T Cell הפעלה
במאמר זה
סיכום
תקציר
פפטיד עצמית מופחתים-ללא MHC (pMHC) מתחמי אל תגרום / הפעלת תא T ופונקציות אפקטור, אך יכול לשפר את תא T התגובות pMHC אגוניסט, בתהליך הנקרא co-agonism. פרוטוקול זה מתאר של ניסויי מערכת לחקור co-agonism במהלך הפעלת תאי CD8 + T האנושית על ידי הבעת MHC האנושי מחלקה אני מולקולות מציגים פפטידים שנקבע מראש כמו יחיד polypeptides (יחיד שרשרת MHC) בקו תא xenogeneic. אנחנו הביע יחיד שרשרת MHCs בתנאים שבו רמות נמוכות של אגוניסט שרשרת אחת p-MHC מתחמי לבין רמות גבוהות של שרשרת יחיד שאינו מופחתים p-MHC מתחמי באו לידי ביטוי. השימוש במערכת ניסויית זו אפשר לנו להשוות CD8 + T cell התגובות אגוניסט pMHC נוכחות או היעדרות של pMHC שאינם מופחתים. הפרוטוקול מתאר תא קו תרביות תאים עם שרשרת יחיד MHC בונה, דור תא יציב של קווים, תרבות של הפטיטיס B וירוסים ספציפיים-CD8 + T תאים אנושיים, הפעלת תא T ניסויים בו זמנית לכימות ייצור ציטוקינים ו degranulation. השיטות שהוצגו ניתן למחקר על היבטים שונים של CD8 + T cell הפעלת תא T בני אדם במערכות עם ירידה לפרטים הידועים פפטיד MHC.
מבוא
MHC מחלקה אני (MHC-אני) מולקולות מציגים פפטידים קצרים (8-10 חומצות אמינו) נגזר חלבונים מסונתז על ידי כל תא. MHC-אני מולקולות על תאים בריאים להציג עצמי פפטידים שמקורם חלבונים אנדוגני. זיהום נגיפי מוביל למצגת של פפטידים נגזר וירוס-עצמי ב- MHC-אני, אבל תאים נגועים אפילו פפטידים-עצמי נוכח בנוכחות כמויות גדולות של פפטיד עצמית-MHC (pMHC). MHC-אני מזוהה על-ידי הקולטן תא T (TCR) את קולטן CD8 שיתוף על תאי T. TCR זיקה מחייבת כדי פפטיד pMHC תלויה מאוד הרצף של פפטידים שהוצגו, ואילו CD8 האיגוד אינו תלוי-פפטיד. TCR מחייב אגוניסט-עצמי pMHC מורכבים מוביל הפעלת תא T ופונקציות אפקטור. Non-מופחתים pMHC עצמית מתחמי אל תגרום / הפעלת תא T ופונקציות אפקטור, אך יכול לשפר את תא T התגובות pMHC אגוניסט, בתהליך הנקרא co-agonism1,2,3. Co-agonism נצפתה העכבר CD4 + T תאים4,5,6 וכן העכבר האנושי CD8 + T תאים7,8,9,10, 11 , 12 , 13. בתנאים פיזיולוגיים, תאי T צריך לזהות כמויות מוגבלות של אגוניסט pMHC על אנטיגן הצגת תאים (נגמ שים) שיתוף מציגים רמות גבוהות של מתחמי pMHC שאינם מופחתים, רומז co-agonism הזה תורם T אופטימלית תגובות תא ויוו. מחלקה MHC פני שטח התא סך הכל אני רמות הם לעתים קרובות downregulated במהלך זיהומים נגיפיים14 , גידולים15. אסטרטגיה זו התחמקות המערכת החיסונית תקטין את המצגת pMHC אגוניסט, אך גם מפחית את כמות pMHC אגוניסט שיתוף אני זמין עבור שיפור הפעלת תא T. יתר על כן, רמות הביטוי משטח תאים גבוהה של MHC מחלקה אני מולקולה הלע-C הוכחו לתאם עם משופרת HIV שליטה16, רומז תפקיד קריטי עבור מחלקה MHC סה כ אני ביטוי תא T הפעלה. למרות המשמעות הפיזיולוגית של co-agonism, מנגנון מולקולרי שלה עדיין שהיישום. זה מובן זאת בעיקר בשל האתגרים הטכניים השפעול לשלוט כמות pMHC הציג אגוניסט שיתוף תוך שמירה אגוניסט pMHC קבוע.
פיתחנו ניסיוני של המערכת כדי לחקור co-agonism במהלך הפעלת תאי CD8 + T האנושי בהבעת MHC האנושי מחלקה אני מולקולות מציג פפטיד שנקבע מראש כמו מפוליפפטיד יחיד (יחיד שרשרת MHC-אני, איור 1A) בתוך תא xenogeneic קו9,10. רשת יחיד (sc) אגוניסט pMHC בא לידי ביטוי בשליטה של יזם טטרציקלין-inducible בקו אוגר-derived צ'ו טי-רקס תא לבטא טטרציקלין מדכא. שבולם.; דבר זה מאפשר ביטוי "דולף" נמוך מאוד של sc אגוניסט pMHC בהיעדרו של טטרציקלין והבעה sc גבוהה אגוניסט pMHC לאחר תוספת של טטרציקלין (איור 1Bג). Sc אגוניסט לבטא pMHC T-REx צ'ו התאים היו אז supertransfected עם pMHC sc אגוניסט שותף שאינו מופחתים,-אני תחת שליטה של מקדם צורונים פעילים (איור 1Bג). השימוש במערכת ניסויית זו אפשר לנו להשוות CD8 + T cell התגובות אגוניסט pMHC נוכחות או היעדרות של רמות גבוהות של pMHC שאינם מופחתים. אנושות, מאז פפטיד MHC-אני שרשרת כבדה מחוברים covalently scMHC-לעצב, דבר זה מאפשר היכרות של מוטציות למולקולות MHC מציגים פפטידים שנקבע מראש. השימוש scMHC-אני טכנולוגיה ובכך אפשרה לנו במיוחד לווסת TCR או מחייב CD8 מאפייני אגוניסט או אגוניסט שיתוף pMHC.
Co-agonism ב- CD8 + T תאים הפעלה נצפתה באמצעות מטוהרים MHC-אני מתחמי הצגת אגוניסט, אגוניסט שיתוף פפטידים בצורה של heterodimers11,17 או קוונטית שהוצגו על הנקודות12,13. בתחילת העבודה על co-agonism בהפעלת תא CD8 + T בהקשר של אגוניסט pMHC זיהוי ב- APC להשתמש TAP2 לקויה התא קווים נגמ שים. ברז נדרש עבור תחבורה פפטיד של הציטופלסמה רשתית תוך-פלזמית, מחסור ברז קשות מפחית את מאגר זמין MHC class-איגוד פפטידים. בהיעדרו של פפטידים, המתחם המתהווה של MHC מחלקה אני שרשרת כבדה,2β - microglobulin אינו יציב, וכתוצאה מכך MHC נמוך מאוד-אני תא ביטוי משטח. בתחילה, השוואה של תאי T מגורה עם אנטיגן טעון על ברז-מספיקות והלקוי בעכבר RMA שורות תאים RMA-S, בהתאמה, כמו נגמ שים, אינו חושף ראיות עבור co-agonism במהלך העכבר תא T הפעלה18. עם זאת, השימוש במערכת ניסויית זו לא איפשרה בקרה מדויקת על כמות pMHC אגוניסט הציג בנפרד pMHC עצמית-מופחתים. יתר על כן, שורות תאים שני אלה עשויות להשתנות גם הביטוי של מולקולות אחרות אשר לווסת את תא T ההפעלה, כגון ליגנדים לקולטנים co-stimulatory או מעכבות תא T או מולקולות אדהזיה.
לאחר מכן, פיתחנו פרוטוקול עבור טעינת תאים TAP2 לקויה RMA-S עם פפטידים אקסוגני כדי לאפשר הצגה של כמות קבועה של אגוניסט pMHC ב נוכחות או היעדרות של pMHC שאינם מופחתים. דבר זה הושג באמצעות הפעולות הבאות: דגירה של TAP2 לקויה RMA-S תאים בטמפרטורות נמוכות (28 ° C, במקום הרגיל 37 ° C) כדי לייצב MHC ריק מחלקה אני שרשרת כבדה/β2 microglobulin מתחמי19; הדגירה ב 28 ° C עם אגוניסט אקסוגני פפטיד; הדגירה ב 28 ° C, נוכחות או היעדרות של פפטיד שאינם מופחתים אקסוגני; דגירה ב 37 ° C כדי להפחית את תא השטח ביטוי MHC ריק מחלקה אני מתחמי8,9. השימוש הגדרת הניסוי הזה חשף כי הנוכחות של pMHC שאינם מופחתים משופרת הפעלה של העכבר thymocytes, תמים היקפיים CD8 + T תאים ו- Ctl8. . Mechanistically, הנוכחות של אי-מופחתים pMHC יכול לגרום הגיוס CD8 T תאים: APC המערכת החיסונית הסינפסה גם בהיעדר של אגוניסט pMHC, pMHC מופחתים יכול לשפר TCR אינטראקציה עם CD8-coreceptor-7,-8. עם זאת, מערכת ניסויית זו אינו מאפשר בדיקות את התרומה של TCR ו CD8 מחייב coreceptor pMHC אגוניסט, אגוניסט שיתוף מתווכים של שיפור ההפעלה, כמו כל שינוי שינוי מחייב TCR או CD8 מחלקה MHC שהייתי להשפיע על כל מולקולות MHC, ללא קשר פפטידי הציג. ולכן השתמשנו מחלקה MHC רקדתי שרשרת בטכנולוגיה כדי להתגבר על בעיה זו.
מחלקה MHC רשת יחיד (sc) לעצב שכבר נעשה שימוש כדי לשפר את המצגת antigenic pMHC לאסטרטגיה טיפולית, כדי לענות על שאלות עקרוניות על מנגנונים של הפעלת קולטן תא TCR ו NK ולתפקד20,21 . scMHC-אני מורכב פפטיד,2β - microglobulin ו MHC-אני שרשרת כבדה הצטרפו שני linkers סרין/גליצין-עשיר גמיש (איור 1 א'), מספר רצפים שונים מקשר כבר פיתח ובחן22. scMHC-אני יכול לקפל בנפרד הברז מורכב, שתלווה אותנו חלבונים הדרושים עבור pMHC קונבנציונאלי ההרכבה מורכב20. scMHC-אני כבר הראו לקפל בצורה נכונה, כפי שנקבע באמצעות נוגדן ספציפי קונפורמציה מכתים22 , על ידי פתירת sc מבנה עם קריסטלוגרפיה באמצעות קרני רנטגן23. ScMHC בסיסי-אני עיצוב שונתה כדי לשפר את הכריכה של זיקה נמוכה פפטידים24,25.
פרוטוקול זה מתאר את השימוש scMHC האנושי-אני לחקור co-agonism במהלך CTL אדם משבט הפעלה. הפרוטוקול מוטבה עבור שיבוט CTL אנושי ספציפי epitope של הנגיף הפטיטיס B (HBV). HBV הוא נטל בריאות חמורות ברחבי העולם, שכן ישנם 350 מיליון אנשים נגוע HBV ולדלקת HBV כרוני יכול להוביל להתפתחות קרצינומה hepatocellular (HCC). התאים HCC הנובע HBV זיהום יכול בדרך כלל להציג HBV, נגזר epitopes, ניתן לזהות על-ידי תאי T אנושי ספציפי. סיווג HBV ו HCC מסתמך על תגובות תא T אנושיים26, אך חולים HCC סובלים לעתים קרובות תא T ומעט תא T מופחתת תגובות27. . לא הקדמה של TCR HBV ספציפיים לתאי T של HBV כאסטרטגיה חיסוני פוטנציאליים כדי למנוע זיהום כרוני של HBV28. עם זאת, זה לא ידוע אם שיטה זו תהיה יעילה בסביבה קלינית, בגלל רמות נמוכות של פני MHC-אני אדם hepatocytes29. לכן, להבין את המנגנון של coagonism עשוי לספק פרספקטיבות חלופיות חיסוני של HBV, כנראה על ידי שיפור את המצגת של pMHC אנדוגני לזירוז co-agonism-מתווכת ' T cell תגובות. הפרוטוקול מכסה את כל הצעדים הדרושים למחקר על האדם co-agonism: תרביות תאים של תאי T-REx צ'ו עם אגוניסט, אגוניסט שיתוף pMHC sc, דור של שורות תאים T-REx צ'ו יציב, תרבות של HBV ספציפיים האנושי CTL CD8 + T תאים בטור והפעלה CTL ניסויים לכימות ייצור ציטוקינים ו degranulation בתגובה לתאי T-REx צ'ו. למרות אנו מתמקדים באמצעות של MHC sc מחלקה אני טכנולוגיה לחקור co-agonism במהלך הפעלת תא HBV T, יש לציין כי השיטות הציג בקלות ניתן להתאים למחקר על היבטים אחרים של תא T ההפעלה במערכות תאי T אדם עם pMHC ידוע-אני ירידה לפרטים.
פרוטוקול זה משתמש ספציפי קו CD8 + CTL אנושי עבור פפטיד HBV, נגזר E183-91 (FLLTRILTI: "E183")30 שהוצגו ב הלע-A2. sc הלע מולקולות המורכב מרצף אות מβ2 אנושי-microglobulin, פפטיד איגוד הלע-A2 של עניין, מקשר גליצין/סרין, של האדם β2-microglobulin, מקשר סרין גליצין/A2 שרשרת כבד יכול להיות מסחרית מסונתז (איור 1A ). פלסמידים קידוד scA2 בונה עם אגוניסט E183 פפטיד, או פפטידים31 HIV מחסום פה (SLYNTVATL) coagonist הינם זמינים מן המחברים על פי בקשה. ניתן לשנות את רצף פפטיד באמצעות האתר בוים-מוטגנזה מכוונת. וקטור טטרציקלין-inducible pcDNA5/אל שימש כדי להביע את השרשרת יחיד אגוניסט הלע-A2 עם פפטיד E183 (sc E183-הלע-A2). בנוכחות טטרציקלין מדכא. שבולם., pcDNA5/אל פלסמיד מאפשר רק נמוך מאוד, "דולף" ביטוי של החלבון עניין; ביטוי גבוהה יכולה להיגרם על ידי התוספת של טטרציקלין (איור 1Bג). השימוש של מערכת ביטוי טטרציקלין-inducible מאפשר שליטה על כמות תא אגוניסט משטח pMHC הביטוי. PcDNA3.1 פלסמיד ביטוי מכוננת שימש לבטא coagonist scA2 עם איסור פרסום פפטיד (sc איסור פרסום-הלע-A2). הביטוי מוסדר טטרציקלין (T-REx) צ'ו תא (קו אוגר תא, אין MHC האנושי אנדוגני) שימש לבטא אגוניסט, אגוניסט שיתוף בונה sc-הלע-A2. מערכת ניסויית זו מאפשרת שליטה מדויקת pMHC מצגת (איור 1C): לא מצגת pMHC (טי untransfected...), כמות גבוהה של אגוניסט שיתוף pMHC מצגת (sc מכוננת ביטוי איסור פרסום-הלע-A2), כמות נמוכה של אגוניסט pMHC מצגת (sc E183-הלע-A2 בהיעדרו של טטרציקלין), כמות גבוהה של אגוניסט pMHC מצגת (sc E183-הלע-A2 בנוכחות טטרציקלין), כמות נמוכה של אגוניסט pMHC מצגת וביטוי גבוהה של אגוניסט שיתוף pMHC (sc E183-הלע-A2 ב היעדרות של טטרציקלין, sc מכוננת ביטוי איסור פרסום-הלע-A2). השימוש במערכת ניסויית זו מאפשרת שליטה מדויקת של כמויות פני שטח התא של אגוניסט coagonist pMHC.
פרוטוקול
הערה: כל פעולות המצריכות שימוש של תאים חיים, שאינו קבוע צריכה להתבצע בשכונה אבטחה ולאחר כל פסולת ותברואה צריכים להיות מושלך על פי הוראות בטיחות וגהות מקומיים.
1. צ'ו תא תרביות תאים, דור של שורות תאים צ'ו יציב
-
תרביות תאים תאים צ'ו
הערה: סעיף זה מתאר צ'ו תא תרביות תאים באמצעות polyethylenimine (פיי). עם זאת, ניתן להשתמש שיטות אלטרנטיביות, כמו תאים צ'ו גם קל יחסית transfect בעזרת ריאגנטים תרביות תאים השומנים זמינים מסחרית.- תרבות צ'ו תאי F12 מלאה (F12 בתוספת 5% FBS, פניצילין U/mL 100, סטרפטומיצין μg/mL 100 ו 10 µg/mL blasticidin לשמור על ביטוי של מדכא. שבולם טטרציקלין, cF12). המעבר את התאים כל 3-4 ימים ב- 1:10 יחס.
- יום אחד לפני תרביות תאים, להכין התליה תא צ'ו. תאים צ'ו לשטוף הבקבוקון באמצעות PBS (10 מ"ל של PBS עבור בקבוקון T75, 5 מ ל PBS עבור בקבוקון T25). להוסיף 0.05% Trypsin/0.02% EDTA ב- PBS (2 מ"ל על בקבוקון T75, 1 מ"ל על בקבוקון T25) הבקבוקון דגירה למשך 5-10 דקות בטמפרטורת החדר (RT). באמצעות מיקרוסקופ אור, בדוק התאים יש תלושים, להפסיק trypsinization על-ידי הוספת cF12 הבקבוק (8 מ עבור בקבוקון T75, 4 מ"ל על בקבוקון T25).
- להעביר התליה תא צ'ו 15 מ"ל, ובשעות צנטריפוגה ב 300-400 x g למשך 5 דקות 4 ° C או הסר RT. תגובת שיקוע, להשעות מחדש ב- cF12 (10 מ"ל על בקבוקון T75, 5 מ עבור בקבוקון T25) ולספור באמצעות של hemocytometer.
- להתאים את התא ריכוז 60,000-100,000 צ'ו תאים/מ ל.... הוסף 5 מ של צ'ו תא השעיה (300,000-500,000 צ'ו תאים) לכל טוב בצלחת טוב 6. דגירה בין לילה ב 37 מעלות צלזיוס, 5% CO2.
- ביום תרביות תאים, להוסיף μL 400 של סרום ללא מדיה F12 או בסרום נמוך מדיה צינור 1.5 מ. להוסיף 3 μg של פלסמיד μL 400 של מדיה. מערבבים על-ידי pipetting. להוסיף μg 6 של פיי (6 μL של פתרון 1 מ"ג/מ"ל פיי) תמהיל מדיה/DNA ו מערבולת באופן מיידי עבור 10 s.
- דגירה המיקס מדיה/DNA/פיי-RT למשך 10-15 דקות. במהלך הדגירה הזה, להחליף צ'ו מדיה תא בצלחת טוב 6 מ של מדיה cF12 טריים.
- להוסיף את הפתרון מדיה/DNA/פיי לתאים צ'ו. הוסף את הפתרון dropwise ובצורה שווה מעל הבאר. דגירה בין לילה ב 37 מעלות צלזיוס, 5% CO2.
-
דור של שורות תאים צ'ו יציב
- יום אחד לאחר תרביות תאים, להסיר מדיה מן הבארות ולהוסיף 5 מ"ל של cF12 המכילה אנטיביוטיקה הבחירה המתאימה כדי מכל קידוח. השתמש hygromycin 0.3 מ"ג/מ"ל פלסמידים מבוססי pcDNA5TO, 1 מ"ג/מ"ל geneticin על פלסמידים מבוסס pcDNA3.
- אם תאים להגיע יותר מ- 90% confluency ב 24 שעות פוסט תרביות תאים, trypsinize את התאים.
- לשטוף וולס עם 1 מ"ל של PBS לכל טוב, להוסיף 1 מ"ל של 0.05% trypsin/0.02% EDTA ב- PBS ואת תקופת דגירה של 5-10 דקות ב- RT. באמצעות מיקרוסקופ אור, בדוק כי התאים יש תלושים, להפסיק trypsinization על-ידי הוספת 3-4 מ ל cF12 לכל טוב.
- להעביר את המתלים תא צ'ו 15 מ"ל, ובשעות צנטריפוגה ב 300-400 x g למשך 5 דקות 4 ° C או RT. להסיר תגובת שיקוע והשהה מחדש ב- 10 מ"ל של cF12. הוסף 5 מ של השעיה תא לכל טוב בצלחת טוב 6. השתמש שתי בארות כדי למקסם את התשואה של התאים transfected.
- דגירה הלוחות טוב 6 ב 37 מעלות צלזיוס, 5% CO2. לפקח על מות תאים וגידול של מושבות עמיד בסיוע מיקרוסקופ אור. להסיר מדיה ולהחליף אותו עם טרי המדיה המכילה את האנטיביוטיקה המתאימה לאחר 4-5 ימים, או מוות של תאים משמעותי נצפית.
- ברגע יד תאים עמידים יותר 70% הנהרות, trypsinize את התאים כפי שמתואר בשלב 1.2.2 ולהעביר ל בקבוקון T25 להרחבת. הבחירה אנטיביוטי לוקח 1-2 שבועות.
- ברגע תאי CHO עמידים לאנטיביוטיקה הבקבוקון T25 להגיע למפגש 70-80%, לבצע נוגדן מכתים כדי לוודא תא ביטוי השטח של המבנה של ריבית. יום אחד לפני נוגדן מכתים, trypsinize את התאים כפי שמתואר בשלב 1.2.2, להתאים את ריכוז תאים תאים למ"ל 200,000, והוסף 1 מ"ל של השעיה התא לצלחת טוב 12. בדיקה של טטרציקלין-inducible בונה, להוסיף 50-60 ng/mL של טטרציקלין. דגירה בין לילה ב 37 מעלות צלזיוס, 5% CO2.
- להשתמש במגרדת תא להתנתק תאים צ'ו מתחתית הבאר. שיטה זו עדיפה על trypsinization, שכן הן מפחיתות את הסיכון לנזק epitope עקב הפרוטאוליטי המחשוף.
- העברה של 1 מ"ל של המדיה המכילה תאי CHO לרכבת התחתית FACS. ספין למטה ב x 300-400 גרם, 4 מעלות צלזיוס במשך 5 דק להשעות מחדש ב- 100 μL של נוגדן anti-הלע מדולל ב- FWB. דגירה 30 דקות ב 4 ° C על קרח. ביצוע זה מכתים עם נוגדן anti-A2 כדי לזהות רמות הביטוי פני שטח התא A2 הכולל, TCR דמוי נוגדן ספציפי עבור A2 במתחם עם פפטיד E183 לגלות אגוניסט pMHC-אני תא רמות הביטוי משטח.
- אחרי אימות ביטוי MHC, FACS-סוג התאים חיובי ולתחזק את התאים ממוינים בתקשורת עם אנטיביוטיקה כדי להפחית את אובדן transgene. עבור תאים צ'ו לבטא אגוניסט pMHC, תא בודד מיון מומלץ, כדי להבטיח אגוניסט דומה הביטוי pMHC עם או בלי supertransfection עם אגוניסט שיתוף pMHC. 2-3 שבועות יש צורך צמיחת תאים צ'ו בעקבות המיון תא בודד.
2. HBV ספציפיים CTL תרבות
-
הכנה של PBMCs כמו מזיני לגירוי ספציפי HBV האנושי CTL מחדש
הערה: עבור השיבוט CTL A2-E183-ספציפי, גירוי מחדש עם טרי מבודדים PBMCs, ולא PBMCs המופשרים, נותן את התוצאות הטובות ביותר.
התראה: להשיג את כל האישורים הדרושים אתית לפני גיוס מתנדבים לתרומות דם. לשם עבודתה זו, PBMC נאספו ממתנדבים בריאים תחת פרוטוקול שאושר על-ידי NUS IRB. הסכמה מדעת הושג מתורמים כל. בצע את כל אמצעי הזהירות הנדרשים בעת עבודה עם דם אנושי כדי להפחית את הסיכון של העברת דם מחלות שמקורן.- לפני שמתחילים, השוכן הטמפרטורה צנטריפוגה 19-20 מעלות צלזיוס, לחמם את צפיפות מעבר הצבע (לדוגמה, Ficoll) כדי RT.
- להוסיף 15 מ"ל של טמפרטורת החדר דחיסות צבע שפופרת 50 מ. צנטריפוגה ב 400 x g למשך 5 דקות ב 19-20 º C. זאת על מנת להבטיח שיש אין צפיפות הצבע בצד של הצינור.
- לאסוף 20 מ של דם מתורם מתנדבים בריאים דרך venipuncture. להוסיף 15 מ"ל של PBS 20 מ של דם בצינור 50 מ. מערבבים על-ידי pipetting למעלה ולמטה.
- . לאט, להוסיף את 35 מ של דם מדולל ב- PBS מעל 15 מ"ל של דחיסות צבע מהשלב 2.1.2. ודא כי הדם של מעבר הצבע צפיפות לא לערבב. Centrifuge הצינורות ב 19 ° C, x 1,200 g עבור 20 דקות עם הבלמים חופש.
- הסר כ- 70% של השכבה פלזמה. בזהירות תשאף בשכבה הכוללת את PBMC (השכבה מעוננים מעל השכבה הדרגתיות צפיפות ברור) באמצעות פסטר פיפטה ולמקם אותו צינור 50 מ ל.
- להוסיף PBS PBMCs להשיג הנפח הכולל 50 מ. צנטריפוגה צינור ב 4 ° C, x 300-400 גרם במשך 10 דקות הסר בזהירות את תגובת שיקוע באמצעות ליניקת ואקום זכוכית סטריליים פסטר פיפטה, או על ידי decanting.
- מחדש להשעות את התאים ב- 50 מ של PBS. צנטריפוגה צינור ב 4 ° C, x 300 גרם במשך 10 דקות הסר בזהירות את תגובת שיקוע באמצעות ליניקת ואקום זכוכית סטריליים פסטר פיפטה, או על ידי decanting.
- להשעות מחדש תאים 2 מ"ל של תא T אנושית מלאה מדיה (סרום חינם מדיה בתוספת 2% בנסיוב אדם). לספור את התאים באמצעות hemocytometer. פרוטוקול זה נותן בממוצע 1-2 x 10⁶ PBMCs לכל 1 מ"ל של דם בשימוש.
-
CTL גירוי מחדש באמצעות PBMCs כתאי מזין
- להאיר. PBMCs-30 Gy לעכב התפשטות בתגובה לגירוי עוקבות.
התראה: ודא אילוף ותאימות עם המעבדה בדרישות הבטיחות בעת שימוש בעוצמה. - מחדש להשעות את PBMCs לקרינה בתקשורת מלאה תא T אנושיים-עונה 2 פרק 106 תאים למ"ל. הוסף ציטוקינים ו לקטין מצויה (פא) לגירוי מחדש רשימת אישורים אמינים ב 2 x ריכוז לתוך המתלה PBMC. ציטוקין הסופי וריכוזי פא הם: 20 U/mL רקומביננטי האנושי il-2, ng/mL 10 רקומביננטי IL-7, 10 ננוגרם למ"ל רקומביננטי האנושי IL-15 ו- 1.5 mg/mL פא.
- להפשיר את המבחנה CTL קפוא בתוך אמבט מים 37 º C. העבר את התאים המופשרים לתוך צינור 15 מ"ל עם 10 מ"ל של תא T אנושית מלאה מדיה. ספין למטה ב x 300-400 גרם ב 4 ° C 5 דק הסר בזהירות את תגובת שיקוע באמצעות ליניקת ואקום זכוכית סטריליים פסטר פיפטה, או על-ידי decanting.
- מחדש להשעות Ctl ב 2 מ"ל של תא T אנושית מלאה מדיה. לספור את התאים באמצעות hemocytometer. הוסף מדיה תא T אנושית מלאה להשגת תא ריכוז 106 תאים למ"ל.
- ב טוב צלחת 24, להוסיף 0.5 מ של PBMCs לקרינה (106 תאים) עם 2 x cytokines פא (שלב 2.2.2) ו 0.5 מ של Ctl (0.5 x 10⁶ תאים) לכל טוב. מספר בארות בשימוש תלוי המספר הכולל של Ctl או PBMCs זמין. דגירה ב 37 מעלות צלזיוס, 5% CO2.
- אחרי 4-5 ימים, כאשר CTL תקיעות גלויים, והופך להיות צהוב, להעביר את התרבויות 6 לוחות טוב ולאחר תוספת האחסון הראשונית 1 מ"ל עם 4 מ"ל של תא T אנושית מלאה מדיה עם 20 U/mL il-2, 10 ננוגרם למ"ל IL-7 ו- 10 ננוגרם למ"ל IL-15 (אין פא).
- לאחר 2-3 ימים, להעביר את התרבויות לתוך בקבוקון T75, להוסיף 40 מ"ל של תא T אנושית מלאה מדיה עם ציטוקינים (שלב 2.2.2, אין פא), תרבות בתנוחה זקופה.
- שתשמור על Ctl-ריכוז של 1-2 x 10⁶ תאים למ"ל על-ידי הוספת מדיה טרי בתוספת ציטוקינים (שלב 2.2.2, אין פא) בווליום שווה לזה של אמצעי האחסון התרבות הקיימת בכל יום אחר. Ctl ניתן לניסויים 7-14 ימים לאחר גירוי מחדש.
- להאיר. PBMCs-30 Gy לעכב התפשטות בתגובה לגירוי עוקבות.
3. תא T הפעלת ניסויים
הערה: ניסוי טיפוסי דורש מספר קווים T-RExCHO שונים: צ'ו T-REx untransfected תאים (בקרה שלילית), T-REx צ'ו תאים הבעת אי-מופחתים pMHC בלבד (scA2-איסור פרסום; בקרה שלילית), T-REx צ'ו תאים לביטוי כמויות נמוכות של אגוניסט pMHC-אני ( מעטפה ללא טטרציקלין, מדגם ניסיוני), scA2, T-REx צ'ו תאים לבטא כמויות נמוכות של אגוניסט pMHC ואת כמויות גבוהות של אגוניסט שותף שאינו מופחתים pMHC (scA2-ENV ו- scA2-איסור פרסום, ללא טטרציקלין, מדגם ניסיוני), תאי T-REx צ'ו לבטא כמויות גבוהות של אגוניסט pMHC-אני scA2-מעטפה עם טטרציקלין, בקרה חיובית), בדומה למוצג באיור 1CD.
-
ציפוי צ'ו תאים כתאי המציג אנטיגן
- התרבות התאים צ'ו T75 את הבקבוק, כפי שמתואר בשלב 1.1.1. השתמש תאים ב- 70-90% למפגש לקבלת התוצאות הטובות ביותר. יום אחד לפני הפעלת תא T ניסוי, trypsinize את התאים כמתואר בסעיף 1.1.2. לאחר trypsinization, העברת התליה תא לתוך צינור 15 מ"ל, צנטריפוגה ב 400 x g למשך 5 דקות 4 ° C או RT, להסיר את תגובת שיקוע על-ידי pipetting או decanting.
- מחדש להשעות בגדר תא ב 5 מ של cF12. צ'ו ספירת תאים באמצעות של hemocytometer.
- התאם את הריכוז תא ל 2 x 10⁵/mL באמצעות cF12. להוסיף 50-60 ng/mL של טטרציקלין כדי אגוניסט רק דוגמאות לזירוז כמויות גבוהות של אגוניסט pMHC-אני ביטוי כפקד חיובי (איור 1C). צ'ו תאים יירגע צינורות 15 מ"ל, לכן ודא לערבב אותם על-ידי pipetting או vortexing לפני ציפוי.
- עבור תא T הפעלה assay, להוסיף 100 μL של התליה תא צ'ו לכל טוב הצלחת היטב U-התחתון 96, והשתמש triplicates לשורה תא צ'ו. עבור צ'ו תא אנטי-MHC מכתים, להוסיף 1 מ"ל של השעיה התא לצלחת טוב 12, והשתמש triplicates לשורה התא. דגירה בין לילה ב 37 מעלות צלזיוס, 5% CO2.
-
תא t הפעלה assay
הערה: assay הפעלה זו תא T מאפשר כימות סימולטני של תא T degranulation (CD107a מכתים, מידה של תא T cytotoxicity) וייצור ציטוקין.- יום לפני הניסוי, צנטריפוגה תאי Ctl ב 400 x g ב 4 מעלות צלזיוס למשך 5 דקות, לספור באמצעות hemocytometer ו מחדש להשעות את התאים-106 תאים למ"ל בתקשורת מלאה תא T אנושיים ללא ציטוקינים או פא. דגירה ב 37 מעלות צלזיוס, 5% CO2. המטרה של שלב זה כל השאר היא לצמצם CTL רגישות, כמו הבחנו ההפעלה המרבית בתגובה כמויות נמוכות של אנטיגן ללא שלב זה.
- ביום של הניסוי, צנטריפוגה T תאים ב x 400 g ב 4 מעלות צלזיוס למשך 5 דקות, להסיר את תגובת שיקוע על-ידי decanting או pipetting, וכן להשעות מחדש את התאים בתקשורת 2 מ"ל מלאה ללא סרום (ללא ציטוקינים או פא). לספור תאים T חיים באמצעות hemocytometer ו תא T ריכוז 106 חי תאים למ"ל באמצעות מדיה תא T אנושית מלאה (ללא ציטוקינים או פא).
- מוסיפים נוגדן נגד CD107a לדילול בטחונות (הריכוז הסופי של 2.5 μg/mL), להוסיף brefeldin A 1:1000 לדילול (הריכוז הסופי של 1 μg/mL).
- הסר מדיה תאי CHO בצלחת טוב 96 כ רפה בעברית עם זכוכית פסטר פיפטה או על ידי מצליף את הצלחת. לכל טוב, להוסיף 200 μL של תא T ההשעיה (0.2 x 10⁶ תאים) המכיל אנטי-CD107a ו- brefeldin א תרבות משותפת T התאים עם צ'ו תאים עבור h 3-4.
- בקצה של תרבות משותפת, לבצע צביעת האנטיגנים תא T. ספין למטה הצלחת היטב ב 300-400 x g96, 5 דקות ב 4 ° C, ולהסיר את תגובת שיקוע על-ידי כ רפה בעברית או להכות אותך. להוסיף 2.5 μL של CD3 ו- 2.5 μL CD8 נוגדנים μL 50 של BSA 0.5% ב- PBS (זרימה שטיפת מאגר, FWB) לכל טוב של התא האנטיגנים מכתים. דגירה דוגמאות על קרח למשך 30 דקות בחושך.
- רחץ דוגמאות על-ידי הוספת μL 150 של FWB לכל טוב. ספין למטה הצלחת היטב ב 300-400 x g96, 5 דקות ב 4 ° C, ולהסיר את תגובת שיקוע על-ידי כ רפה בעברית או להכות אותך.
- לבצע קיבוע/permeabilization השלבים באמצעות ערכת פיקסציה/permeabilization. להוסיף 100 µL של פתרון פיקסציה/permeabilization (מתוך הערכה פיקסציה/permeabilization) לכל טוב, לערבב על-ידי pipetting. דגירה על קרח למשך 20 דקות.
- צנטריפוגה ב x 300-400 גרם ו- 4 מעלות צלזיוס למשך 5 דקות והסר את תגובת שיקוע על-ידי כ רפה בעברית או להכות אותך. להוסיף 200 μL 1 x פרם/שטיפת מאגר (לדלל את 10 x פרם/שטיפת מאגר מניות מן המנזר ערכת להשתמש) לכל טוב. חזור על שלב זה.
- מחדש להשעות בגדר תא בμl 50 x 1 פרם/שטיפת מאגר המכיל נוגדנים anti-IFN-γ-0.3 μg/mL. דגירה על קרח למשך 30 דקות בחושך.
- להוסיף 150 μL 1 x פרם/שטיפת המאגר. צנטריפוגה ב 300-400 x g עבור 4 מעלות צלזיוס למשך 5 דקות והסר את תגובת שיקוע על-ידי כ רפה בעברית או להכות אותך. להוסיף 200 μL 1 x פרם/שטיפת מאגר, centrifuge 300-400 x g עבור 4 מעלות צלזיוס למשך 5 דקות, ולהסיר את תגובת שיקוע על-ידי כ רפה בעברית או להכות אותך.
- מחדש להשעות כל מדגם של 200 μL של FWB. להמשיך עם ניתוח תזרים cytometric.
-
צ'ו תא MHC מחלקה אני מכתים
הערה: זה קריטי כדי לוודא scMHC-אני תא השטח רמות על תאים בשימוש על ניסוי, כמו שורות תאים עלול לאבד את הביטוי transgene. בעת הכנת צלחת טוב 96 לגירוי תא T, להגדיר לוח טוב 12 עבור צ'ו תא מכתים, כמתואר בסעיף 3.1.4.- להשתמש במגרדת התא כדי לנתק את צ'ו תאים מתחתית הבאר. שיטה זו עדיפה על trypsinization, שכן הן מפחיתות את הסיכון לנזק epitope עקב הפרוטאוליטי המחשוף.
- העברה של 1 מ"ל של המדיה המכילה צ'ו לתאים הצינור FACS. ספין למטה ב x 300-400 גרם ב 4 מעלות צלזיוס במשך 5 דק להשעות מחדש ב- 100 μL של נוגדן anti-הלע מדולל ב- FWB. תקופת דגירה של 30 דקות ב 4 ° C על קרח.
- ביצוע זה מכתים עם נוגדן anti-A2 כדי לזהות רמות הביטוי פני שטח התא A2 הכולל, TCR דמוי נוגדן ספציפי עבור A2 במתחם עם פפטיד E18332 לגלות אגוניסט pMHC-אני תא רמות הביטוי משטח.
- להוסיף 1 מ"ל של FWB כל מדגם צ'ו, ספין למטה ב x 300-400 גרם, 4 ° C, 5 דקות, ואז מחדש להשעות את הדגימה ב mL 0.3 של FWB. להמשיך עם ניתוח cytometry זרימה.
תוצאות
Sc MHC מחלקה אני טכנולוגיה המשמשת כאן מאפשר שליטה מדויקת של הבעת פני שטח התא מחלקה MHC אני עם פפטידים הידוע, covalently מקושרים, לזירוז ההפעלה תא T. יש לנו שנוצר מהונדסים xenogeneic APC מערכת (איור 1A, B, C) מאפשר הצגה של רמות נמוכות של אגוניסט pMHC נוכחות או היעדרות של אגוניסט שיתוף pMHC (איור 1D, E). אנושות, השתמשנו TCR דמוי נוגדן ספציפי עבור פפטיד E183 המציג הלע-A2 כדי להציג את המצגת של sc אגוניסט ש-e183-הלע-A2 אינה משתנה על ידי ביטוי משותף של אגוניסט שיתוף sc איסור פרסום-הלע-A2 (איור 1E). עם זאת, יש לציין כי E183-הלע-A2 ספציפי TCR דמוי נוגדן מראה כמה מחייב הלע-A2 איסור פרסום המציג פפטיד (איור 1E). ניתן לבנות דומה אנטיגן מהונדסים, הצגת מערכות התא באמצעות פפטידים שונים או מולקולות MHC לחקור דרישות מולקולרית עבור אינטראקציות TCR ו/או coreceptor בתאי T אדם עם specificities שונים.
השתמשנו אלה נגמ שים מהונדסים לעורר של E183-הלע-A2-ספציפי האנושי CD8 + T cell שיבוט. שלושה פקדים שלילי שימשו: T תאים תאים T-REx צ'ו בלבד, untransfected, תאי T-REx צ'ו לבטא כמויות גבוהות של אגוניסט שיתוף sc איסור פרסום-הלע-A2 כדי לבדוק את פוטנציאל T תאים הפעלה על ידי כל מולקולות מבוטא בתאי T-REx צ'ו (T-REx untransfected צ'ו תאים לעומת תא T בלבד), ו עבור הפעלת תא T מאת sc-איסור פרסום-הלע-A2 (תאי T-REx צ'ו לבטא רמות גבוהות של sc-איסור פרסום-הלע-A2 לעומת תאי T-REx צ'ו untransfected). Untransfected תאי T-REx צ'ו או תאי T-REx צ'ו לבטא sc-איסור פרסום-הלע-A2 לא לגרום הפעלה של E183-הלע-A2-ספציפי CD8 + CTL שיבוט, כפי שנקבע על ידי לכימות IFN-γ ייצור וביטוי של סמן degranulation CD107a כאמצעי של תא T cytotoxicity (איור 2 אב'). ביטוי של רמות גבוהות של אגוניסט sc E183-הלע-A2, משמש בקרה חיובית, המושרה יעילה מאוד IFN-γ ייצור, degranulation (איור 2 אב'), הוכחת sc הלע-A2 הבונה יכול להיות מוכר על ידי TCR הספציפי להפעלת תא t אפקטור פונקציות. ביטוי לרמות נמוכות של sc E183-הלע-A2 המושרה רמות נמוכות יותר של ייצור IFN-γ ו degranulation, זה התעצם נוכחות של אגוניסט שיתוף sc איסור פרסום-הלע-A2 (איור 2 אב'). יש לציין כי אחוזים גבוהים מאוד של CD107a + T תאים נצפו אפילו בתגובה רמות נמוכות של antigenic pMHC (איור 2B), בקנה אחד עם דיווחים קודמים על דרישות נמוכה יחסית עבור כמות אגוניסט pMHC עבור אינדוקציה של תא T cytotoxicity33. MFI CD107a, המציין את כמות degranulation על בסיס לתא בודד, מספק טווח דינמי טוב יותר (איור 2B). תא T וזמינותו ההפעלה המשמש מאפשר כימות בו זמנית של שתי פונקציות אפקטור העיקריים: ציטוקין ייצור, cytotoxicity, ומספק הבדיקה רגישה מאוד עם טווח דינמי טוב.
השתמשנו הטכנולוגיה שרשרת אחת כדי לבדוק אם TCR מחייב שיתוף אגוניסט pMHC נדרש עבור שיפור pMHC תלוית ההפעלה אגוניסט משותף. אנחנו מוטציה ולין במיקום 152 בקצה של החריץ איגוד פפטיד הלע-A2 (איור 3B) כדי חומצה גלוטמית ליצירת מוטציה V152E, כמו מוטציה זו דווחה לבטל מחייב TCR הלע-A234. לאחר מכן, בדקנו אם המוטציה V152E יכולים לבטל TCR מחייב עבור השיבוט E183-הלע-A2 CTL בשימוש, על ידי היכרות עם מוטציה זו לתוך אגוניסט sc E183-הלע-A2 ולבטא הבונה sc אגוניסט מוטציה בתאי T-REx צ'ו. Sc פראי סוג, אבל לא V152E, E183-הלע-A2 המושרה הפעלה של השיבוט CTL E183 הלע-A2-ספציפי בשימוש (איור 3 א). יש לציין כי כל מוטציה TCR מחייב מחלקה MHC אני צריך להבדק בנפרד באמצעות שיבוט בודדים בכל תא TCR/T נעשה שימוש, כמו ההשפעה של מוטציה יהיה תלוי האינטראקציות מולקולרית מדויק בין TCR pMHC מורכבים, אלו יהיו שונים בין TCRs שונים. לדוגמה, בדקנו שמונה מוטציות, גם דיווח בעבר מחייב TCR מוטציות או מוטציות חזה כדי לשבש TCR איגוד ללא abrogating מחייב פפטיד לתוך הלע-A2. אלה, V152E היה המוטציה היחידה ביטלה הפעלה של שיבוט תא T ספציפי E183 בשימוש10. אנחנו מכן הציג את המוטציה V152E לתוך sc אגוניסט שיתוף איסור פרסום-הלע-A2, והביע משותפת WT או V152E sc איסור פרסום-הלע-A2 עם רמות נמוכות של אגוניסט sc E183-הלע-A2. Sc WT והן V152E איסור פרסום-הלע-A2 משופרת ייצור IFN-γ ו degranulation (איור 3CD), רומז TCR מחייב שיתוף אגוניסט pMHC הוא לא נדרש עבור אגוניסט שיתוף תלויי-pMHC CD8 + T תאים הפעלה שיפור. שרשרת אחת MHC מחלקה אני טכנולוגיה, כפי שהוצג כאן, ניתן להשתמש כדי לשנות TCR או coreceptor מחייב את מחלקה MHC אני עם פפטיד ידוע לחקור את הדרישות מולקולרית עבור זיהוי אנטיגן תא T והפעלה.
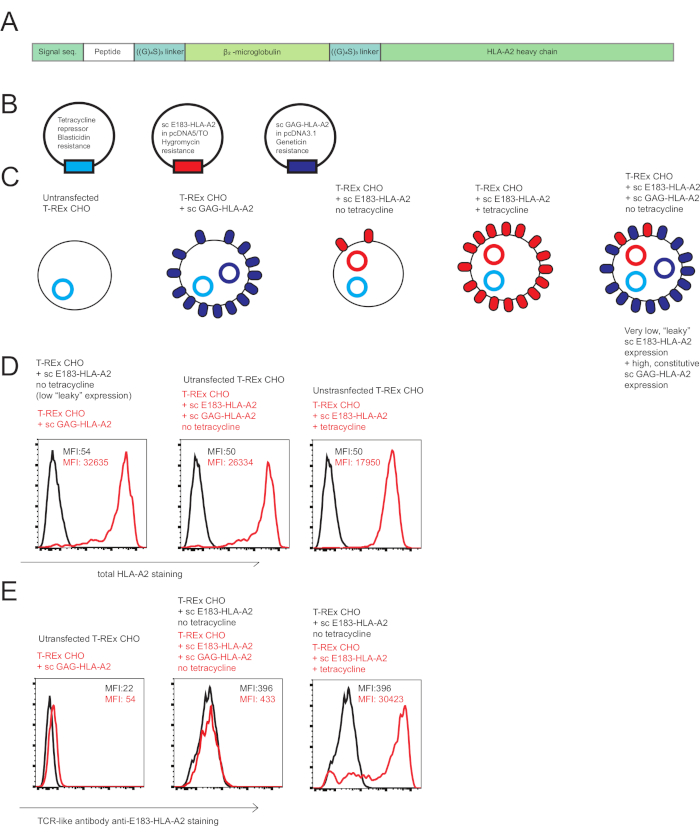
איור 1: יחיד שרשרת הלע-A2 בונה השתמשו לחקור אגוניסט שותף באנושי הפעלת תא CD8 + T. (א) תרשים סכמטי של מבנה scHLA-A2, המורכב covalently אות הרצף של β האנושי מאוחה2 microglobulin, פפטיד של בחירה, גליצין גמיש-סרין מקשר (GGGGSGGGGS GGGGS), microglobulin2 β אנושי, גמיש סרין גליצין מקשר, שרשרת כבדה הלע-A2. (B) תרשים סכמטי של פלסמידים המשמש ליצירת מהונדסים אנטיגן הצגת תאים לחקור co-agonism בהפעלת תא CD8 + T אנושיים: מדכא. שבולם טטרציקלין, אגוניסט sc E183-הלע-A2 תחת שליטה של טטרציקלין-inducible מקדם, אגוניסט שותף שאינו מופחתים sc איסור פרסום-הלע-A2 תחת שליטה של יזם צורונים פעילים. (ג) תרשים סכמטי של אנטיגן מהונדסים הצגת תאים השתמשו לחקור co-agonism: תאי T-REx צ'ו (אין האדם MHC ביטוי), תאי T-REx צ'ו לבטא רמות גבוהות צורונים של sc איסור פרסום-הלע-A2 (אגוניסט שותף שאינו מופחתים pMHC), תאי T-REx צ'ו לבטא רמות גבוהות של sc E183-הלע-A2 בנוכחות טטרציקלין (ברמה גבוהה של אגוניסט פפטיד), תאי T-REx צ'ו לבטא "דולף" רמות נמוכות של sc E183-הלע-A2 בהיעדרו של טטרציקלין (רמה נמוכה של אגוניסט פפטיד), תאים T-REx צ'ו הבעת רמות נמוכות של sc E183-הלע-A2, רמות גבוהות של sc איסור פרסום-הלע-A2 (רמה נמוכה של אגוניסט פפטיד), רמה גבוהה של שיתוף אגוניסט פפטיד. (ד) תא צביעת משטח של אנטיגן מהונדסים הצגת שורות תאים באמצעות נוגדן anti-הלע-A2. המספרים המוצגים מציינות MFI ערכים עבור MHC הכתם בשער תא חי. נתונים נציג של ניסויים עצמאית 5 (E) תא השטח מכתים של אנטיגן מהונדסים הצגת שורות תאים באמצעות TCR דמוי נוגדן ספציפי נגד פפטיד E183 המציג הלע-A2. המספרים המוצגים מציינות MFI ערכים עבור MHC הכתם בשער תא חי. נתונים נציג של 5 ניסויים עצמאית. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
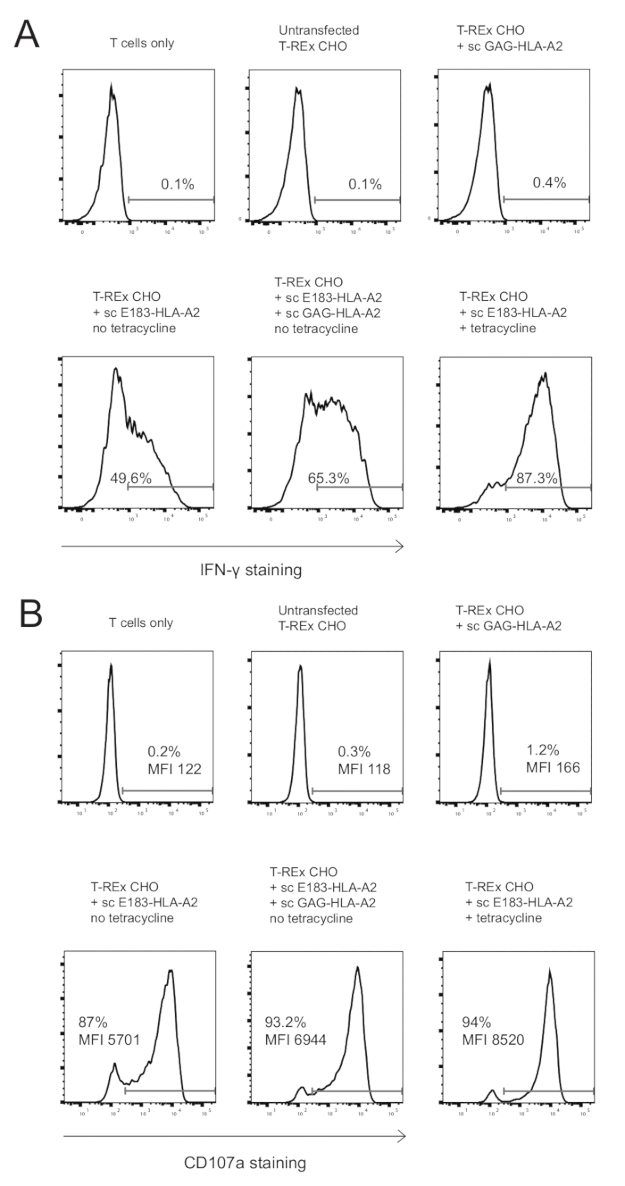
איור 2: נוכחות של אגוניסט שיתוף pMHC משופרת ייצור ציטוקינים, degranulation של שיבוט CD8 + CTL האנושי הלע-A2-ספציפי E183. (א) תאיים IFN-γ מכתים של שיבוט CD8 + CTL האנושי הלע-A2-ספציפיות לאחר גירוי 3 h עם הצביעו מהונדסים אנטיגן הצגת תאים. המספרים המוצגים מציינות יבויחה אחוז עבור IFN-γ מכתים. נתונים נציג של 3 ניסויים עצמאי, כל אחד הופיע עם triplicates טכני. תא (B) על פני השטח CD107a מכתים של שיבוט CD8 + CTL האנושי הלע-A2-ספציפיות לאחר גירוי 3 h עם הצביעו מהונדסים אנטיגן הצגת תאים. המספרים המוצגים מציינות את אחוז חיובי עבור CD107a מכתים או את MFI CD107a עבור האוכלוסייה תא CD8 + T. נתונים נציג של 3 ניסויים עצמאי, כל אחד הופיע עם triplicates טכני. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
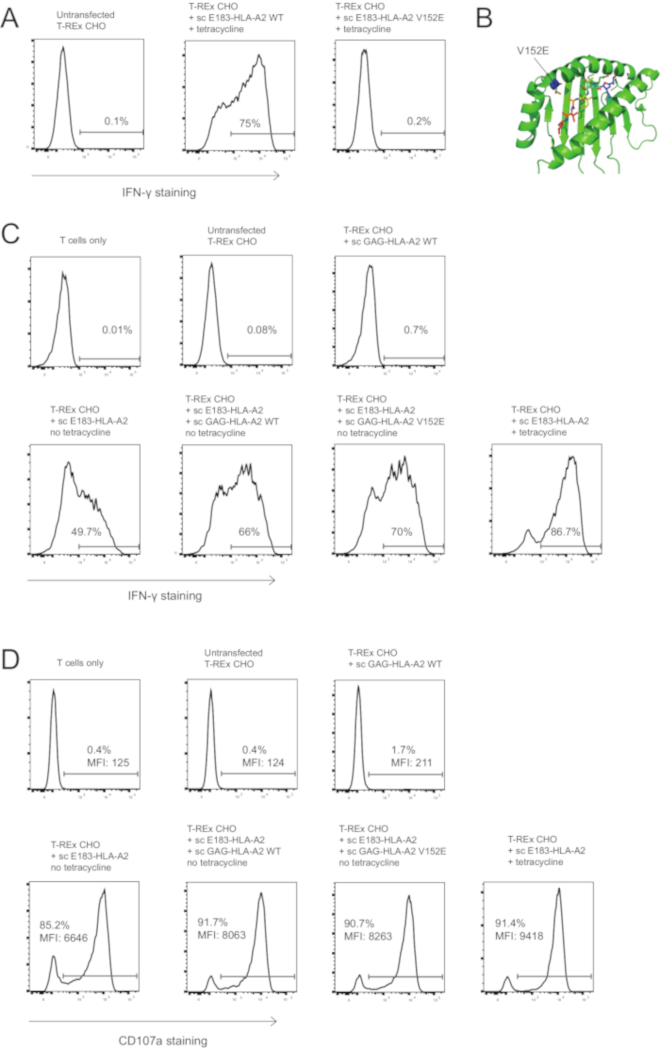
איור 3: שיתוף אגוניסט – שיפור הפעלת תא T בתיווך לא דורשת TCR מחייב pMHC אגוניסט שיתוף מורכבים. (א) V152E מוטציה ב- sc E183-הלע-A2 מבטל הפעלה של השיבוט CD8 + CTL האנושי E183 הלע-A2-ספציפית. תאי T-REx צ'ו לבטא (טטרציקלין אינדוקציה) רמות גבוהות של WT או V152E מוטציה sc E183-הלע-A2 שימשו כדי לעורר E183 הלע-A2-ספציפי שיבוט CD8 + CTL אנושי במשך 3 שעות. תא t ההפעלה הייתה לכמת באמצעות צביעת IFN-γ תאיים. המספרים המוצגים מציינות יבויחה אחוז עבור IFN-γ מכתים. נתונים נציג של 3 ניסויים עצמאי, כל אחד הופיע עם triplicates טכני. (B) מיקום המוטציה V152E בתוך החריץ איגוד פפטיד של הלע-A2. (ג) V152E מוטציה ב- sc איסור פרסום-הלע-A2 אגוניסט שיתוף pMHC מורכבים לא לבטל את שיפור co agonist תלוית ההפעלה. תאיים IFN-γ מכתים של שיבוט CD8 + CTL האנושי הלע-A2-ספציפיות לאחר גירוי 4 שעות עם הצביעו מתוכנן אנטיגן הצגת תאים. המספרים המוצגים מציינות יבויחה אחוז עבור IFN-γ מכתים. נתונים נציג של 3 ניסויים עצמאי, כל אחד הופיע עם triplicates טכני. (ד) V152E מוטציה ב- sc איסור פרסום-הלע-A2 אגוניסט שיתוף pMHC מורכבים לא לבטל את שיפור co agonist תלוית ההפעלה. תא השטח CD107a מכתים של שיבוט CD8 + CTL האנושי הלע-A2-ספציפיות לאחר גירוי 3h עם הצביעו מהונדסים אנטיגן הצגת תאים. המספרים המוצגים מציינות את אחוז חיובי עבור CD107a מכתים או את MFI CD107a עבור האוכלוסייה תא CD8 + T. נתונים נציג של 3 ניסויים עצמאי, כל אחד הופיע עם triplicates טכני. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
דיון
פרוטוקול שהוצגו מספקת כלי חזקים לחקירה של אינטראקציות מולקולרית במהלך הפעלת תאי CD8 + T אנושי. שלב קריטי לחקירה של co-agonism במהלך הפעלת תא T האנושי הוא שליטה אגוניסט pMHC תא השטח ביטוי כדי להבטיח אגוניסט שווה pMHC מצגת על נגמ שים עם או בלי שיתוף אגוניסט pMHC הביטוי. במערכת הניסוי שלנו, זו מושגת באמצעות שיבוט תא בודד לבטא כמויות נמוכות של אגוניסט pMHC, ואחריו supertransfection עם אגוניסט שיתוף pMHC לבנות, אגוניסט pMHC כמת באמצעות TCR דמוי נוגדן10, 32-אגוניסט sc pMHC ביטוי יכולים להשתנות לאורך זמן, זה קריטי לכמת אגוניסט pMHC ביטוי משטח על נגמ שים בשימוש כל הניסוי באמצעות TCR כמו נוגדנים. אם אין נוגדנים כמו TCR הספציפי זמין, אגוניסט scMHC-יכול לבוא לידי ביטוי כמו חלבון פלואורסצנטי פיוז'ן, ואת ביטויה פני שטח התא ואז ניתן לכמת באמצעות שיטה מיקרוסקופ רגישים, כגון מיקרוסקופ פלורסצנטיות החזרה גמורה 35 , 36. יתר על כן, תא השטח של אגוניסט שיתוף pMHC פוחתת עם הזמן, בשל מתילציה תלוית ובלתי - תלוי להחרשת יזם CMV37, וביטוי צריך לפקח באמצעות נוגדן מכתים לזרום cytometry וניתוח, עם חוזרים ונשנים FACS-מיון בעת הצורך. לנו יש תרבותי צ'ו תאים עד 5 שבועות עם אובדן מוגבלת יחסית sc pMHC הביטוי. מומלץ מאוד להקפיא את התאים צ'ו מיד לאחר הבחירה/מיון כדי להבטיח מלאי אמין של תאים עם ביטוי MHC sc ידוע.
מספר שלבים של הפרוטוקולים שהוצגו יכול להיות שונה, בהתאם לזמינות של ציוד, או בהתאם מטרות מחקר ספציפי. לדוגמה, PBMC התפשטות פוטנציאלי יכול להיות מאופק (שלב 3.2.1) באמצעות שיטות חלופיות שאינן מחייבות גמא (או X-) בעוצמה, כגון טיפול עם מיטומיצין C38. מאגרי דיסוציאציה תאים שאינם אנזימטי המכיל chelators מתכת39 יכול לשמש במקום תא גירוד בשלב 3.3.1. יתר על כן, יכול להיות שונה אנטיגן הצגת המערכת כדי להפוך אותו מתאים יותר עבור שיבוטים אנושיים CTL המבטאת שונות TCRs. צ'ו תאים האוגרים אקספרס MHC מחלקה אני מולקולות, ולמרות האלה לא רלוונטים עבור שורת רשימת אישורים אמינים למדתי כאן (איור 2 א ו איור 3A, הבחנו אין תגובות תא T untransfected תאי CHO), קיימת אפשרות כי TCRs אנושיים אחרים עשויים להראות כמה xenoreactivity. במקרה, אוגר MHC מחלקה אני הביטוי יכול להיות מופחת על ידי לדפוק אוגר β2-microglubulin או הקש על שימוש CRISPR/Cas9; או קו APC האנושי יכול לשמש לאחר β2-microglubulin CRISPR/Cas9-מתווכת או ברז נוק-אאוט.
המערכת ניסיוני המוצג כאן מאפשרת שליטה מדויקת של TCR ו CD8 אינטראקציות מולקולות MHC מציגים פפטידים מוגדרים מראש. לדוגמה, אנחנו בעבר הראו כי מוטציות המבטלת CD8 איגוד40 coagonist pMHC חיסלה שיפור ההפעלה בתיווך coagonist מאתר ואנושי CD8 + T תאים9,10, ואילו abrogating TCR אינטראקציה עם אגוניסט שיתוף pMHC לא היתה השפעה על שיפור ההפעלה בתיווך coagonist10. עם זאת, השימוש של בונה יחיד שרשרת MHC יש מספר מגבלות. לדוגמה, הגיע הזמן, הצורכים העבודה לבחון פפטיד אגוניסט שותף מספר רצף באמצעות מערכת ניסויית זו, כפי זה כרוך דור של פלסמידים מרובים קידוד sc MHC עם פפטידים שונים, ו transfections הבאים ומיון תא. בעבר, השתמשנו הקו תא חשוכת-ברז מאתר RMA-S כדי לבדוק פפטידים אגוניסט שיתוף מרובים עכבר תא T הפעלה8,9, אבל גישה זו היה לא מוצלח עם ברז לקויה האנושי T2 תא קו10, ככל הנראה עקב מצגת של ברז תלויית פפטידים41. הגבלה נוספת של מערכת הניסוי שלנו היא שזה אינו מספק שיטה מהירה לשנות את כמות מולקולות pMHC אגוניסט שותף לצורך לקביעת כמות קריטית של אגוניסט שיתוף pMHC נדרש להפעיל הפעלה תא T. יתר על כן, המשמש את המחשב טטרציקלין-inducible אינו מאפשר טיטור של אגוניסט pMHC כמות ברמת תא בודד על-ידי שינוי הריכוז טטרציקלין, כמו ריכוז טטרציקלין משתנות משנה את הפרופורציה של תאים חיוביים הלע-A2, במקום רמות הלע-A2 על בסיס לכל תא. גישה חלופית אשר אנו חוקרים כיום היא להשתמש השומנים הנתמכים bilayers42, השתמשת קודם לכן כדי לחקור co-agonism במהלך מאתר CD4 + T תאים הפעלה4 או חרוזים המציג כמות קבועה של אגוניסט pMHC ב נוכחות של כמויות משתנות של אגוניסט שיתוף pMHC. בעת שימוש בשילוב עם UV-cleavable פפטיד טכנולוגיה4,43, מערכות ניסיוני חלופיים אלה אמור לאפשר בדיקה מהירה של אגוניסט שיתוף פפטיד רצפים מרובים, כמו גם כמויות שונות של אגוניסט שיתוף pMHC .
Sc MHC הטכנולוגיה יכולה להיות גם רלוונטי לחקירה של co-agonism בתאי CD4 T אנושית או מאתר, כפי יחיד MHC class II מולקולות שרשרת הצגת שנקבעו מראש פפטידים יש כבר הביע בהצלחה על משטחים בתרבית של תאים44. יתר על כן, השימוש בטכנולוגיה sc MHC ניתן להרחיב את החקירה של מולקולות MHC-קלאסי כגון הלע-אי Sc הלע-E תואר קודם, הביטוי שלה הוכח לעכב הפעלת תאי T אדם45. מולקולת MHC-קלאסי עוד עניין היא CD1, המציג שומנים במקום פפטידים46. בונה Sc המורכב שרשרת כבדה CD1 ו β2-microglobulin הוכחו לבוא לידי ביטוי על פני השטח של התא, כדי לאגד השומנים הרלוונטיים ליגנדים47. שרשרת אחת טכנולוגיה MHC יש פוטנציאל אדיר ככלי מחקר על חקירת האינטראקציות מולקולרית במהלך הפעלת תאי T ו- NK.
גילויים
המחברים מצהירים אין אינטרסים מתחרים.
תודות
מחקר זה נתמך על ידי סינגפור משרד הבריאות של רפואי המועצה הלאומית למחקר תחת שלה CBRG/0064/2014 ל N.R.J.G., על ידי יצירת תחת שלה R571-002-012-592 ל- P.A.M., Investigatorship הלאומי של קרן המחקר R571-000-272-281 ל P.A.M ., על ידי סינגפור המחקר Translational (סטאר) חוקר פרס (NMRC/כוכב/013/2012) עד א. ב אנחנו אסירי תודה ד ר פול האצ'ינסון, מר Teo גואו הואי ממתקן NUS אימונולוגיה לזרום תכנית הליבה עבור המיון תא מומחה אנו מודים על אליהו חן לקריאה ביקורתית של כתב היד.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Aim-V (מדיה ללא סרום) | Gibco | 12055091 | |
| Blasticidin | Gibco | R21001 | |
| Cytofix/Cytoperm (ערכת קיבוע/פרמליביזציה) | BD | 554714 | |
| F12 | Gibco | 10565-018 | |
| סרום בקר עוברי (FBS) | HyClone | SH3007103 | |
| Geneticin | Gibco | ||
| GolgiPlug (Brefeldin A) | BD | 555029 | |
| סרום אנושי | Sigma-Aldrich | H4522 | |
| Hygromycin | Gibco | 10687010 | |
| לקטין מ-Phaseolus vulgaris (PHA) | Sigma-Aldrich | L4144 | |
| Opti-MEM (מדיה בסרום נמוך) | Bibco | 31985070 | |
| 10x PBS | Vivantis | PB0344 – 1 ליטר | |
| פניצילין/סטרפטומיצין | HyClone | SV30010 | |
| פוליאתילנימין (PEI) | סיגמא-אולדריץ' | 408727 | |
| רקומביננטי אנושי IL2 | מו"פ די סיסטמס | 202-IL | |
| רקומביננטי אנושי IL7 | די סיסטמס | 207-IL | |
| רקומביננטי אנושי IL15 | D Systems | 247-ILB | |
| Tetracycline | Sigma-Aldrich | T7660 | |
| T-REx קו תאים CHO Thermo | Fisher Scientific | R71807 | |
| 10 x Trypsin/EDTA | Gibco | 15400054 | |
| נוגדנים | |||
| CD3 | BD | 347347 | שיבוט SK7, RRID:AB_400287 |
| CD8α | BD | 563795 | שיבוט RPA-T8, RRID:AB_2722501 |
| CD107a | BD | 566261 | שיבוט H4A3, RRID:AB_2739639 |
| HLA-A2 | eBioscience | 17-9876-41 | שיבוט BB7.2, RRID:AB_11151522 |
| IFN-γ | eBioscience | 12-7319-41 | שיבוט 4S. B3, RRID:AB_1311250 |
מקורות
- Gascoigne, N. R. Do T cells need endogenous peptides for activation? Nature Reviews. Immunology. 8 (11), 895-900 (2008).
- Gascoigne, N. R., Zal, T., Yachi, P. P., Hoerter, J. A. Co-receptors and recognition of self at the immunological synapse. Current Topics in Microbiology and Immunology. 340, 171-189 (2010).
- Krogsgaard, M., Juang, J., Davis, M. M. A role for "self" in T-cell activation. Seminars in Immunology. 19 (4), 236-244 (2007).
- Krogsgaard, M., et al. Agonist/endogenous peptide-MHC heterodimers drive T cell activation and sensitivity. Nature. 434 (7030), 238-243 (2005).
- Ebert, P. J., Jiang, S., Xie, J., Li, Q. J., Davis, M. M. An endogenous positively selecting peptide enhances mature T cell responses and becomes an autoantigen in the absence of microRNA miR-181a. Nature Immunology. 10 (11), 1162-1169 (2009).
- Lo, W. L., et al. An endogenous peptide positively selects and augments the activation and survival of peripheral CD4+ T cells. Nature Immunology. 10 (11), 1155-1161 (2009).
- Yachi, P. P., Ampudia, J., Gascoigne, N. R., Zal, T. Nonstimulatory peptides contribute to antigen-induced CD8-T cell receptor interaction at the immunological synapse. Nature Immunology. 6 (8), 785-792 (2005).
- Yachi, P. P., Lotz, C., Ampudia, J., Gascoigne, N. R. T cell activation enhancement by endogenous pMHC acts for both weak and strong agonists but varies with differentiation state. The Journal of Experimental Medicine. 204 (11), 2747-2757 (2007).
- Hoerter, J. A., et al. Coreceptor affinity for MHC defines peptide specificity requirements for TCR interaction with coagonist peptide-MHC. The Journal of Experimental Medicine. 210 (9), 1807-1821 (2013).
- Zhao, X., et al. Nonstimulatory peptide-MHC enhances human T-cell antigen-specific responses by amplifying proximal TCR signaling. Nature Communications. 9 (1), 2716(2018).
- Juang, J., et al. Peptide-MHC heterodimers show that thymic positive selection requires a more restricted set of self-peptides than negative selection. The Journal of Experimental Medicine. 207 (6), 1223-1234 (2010).
- Anikeeva, N., et al. Quantum dot/peptide-MHC biosensors reveal strong CD8-dependent cooperation between self and viral antigens that augment the T cell response. Proceedings of the National Academy of Sciences of the United States of America. 103 (45), 16846-16851 (2006).
- Anikeeva, N., Gakamsky, D., Scholler, J., Sykulev, Y. Evidence that the density of self peptide-MHC ligands regulates T-cell receptor signaling. PloS One. 7 (8), e41466(2012).
- Schuren, A. B., Costa, A. I., Wiertz, E. J. Recent advances in viral evasion of the MHC Class I processing pathway. Current Opinion in Immunology. 40, 43-50 (2016).
- Bubenik, J. MHC class I down regulation, tumour escape from immune surveillance and design of therapeutic strategies. Folia Biologica. 51 (1), 1-2 (2005).
- Apps, R., et al. Influence of HLA-C expression level on HIV control. Science. 340 (6128), New York, N.Y. 87-91 (2013).
- Cebecauer, M., et al. CD8+ cytotoxic T lymphocyte activation by soluble major histocompatibility complex-peptide dimers. The Journal of Biological Chemistry. 280 (25), 23820-23828 (2005).
- Sporri, R., Reis e Sousa, C. Self peptide/MHC class I complexes have a negligible effect on the response of some CD8+ T cells to foreign antigen. European Journal of Immunology. 32 (11), 3161-3170 (2002).
- Ljunggren, H. G., et al. Empty MHC class I molecules come out in the cold. Nature. 346 (6283), 476-480 (1990).
- Kotsiou, E., Brzostek, J., Gould, K. G. Properties and applications of single-chain major histocompatibility complex class I molecules. Antioxidants & Redox Signaling. 15 (3), 645-655 (2011).
- Hansen, T. H., Connolly, J. M., Gould, K. G., Fremont, D. H. Basic and translational applications of engineered MHC class I proteins. Trends in Immunology. 31 (10), 363-369 (2010).
- Yu, Y. Y., Netuschil, N., Lybarger, L., Connolly, J. M., Hansen, T. H. Cutting edge: single-chain trimers of MHC class I molecules form stable structures that potently stimulate antigen-specific T cells and B cells. Journal of Immunology. 168 (7), Baltimore, Md. 3145-3149 (2002).
- Mitaksov, V., et al. Structural engineering of pMHC reagents for T cell vaccines and diagnostics. Chemistry & Biology. 14 (8), 909-922 (2007).
- Truscott, S. M., et al. Disulfide bond engineering to trap peptides in the MHC class I binding groove. Journal of Immunology. 178 (10), Baltimore, Md. 6280-6289 (2007).
- Truscott, S. M., et al. Human major histocompatibility complex (MHC) class I molecules with disulfide traps secure disease-related antigenic peptides and exclude competitor peptides. The Journal of Biological Chemistry. 283 (12), 7480-7490 (2008).
- Bertoletti, A., Ferrari, C. Innate and adaptive immune responses in chronic hepatitis B virus infections: towards restoration of immune control of viral infection. Postgraduate Medical Journal. 89 (1051), 294-304 (2013).
- Boni, C., et al. Characterization of hepatitis B virus (HBV)-specific T-cell dysfunction in chronic HBV infection. Journal of Virology. 81 (8), 4215-4225 (2007).
- Gehring, A. J., et al. Engineering virus-specific T cells that target HBV infected hepatocytes and hepatocellular carcinoma cell lines. Journal of Hepatology. 55 (1), 103-110 (2011).
- Gehring, A. J., et al. The level of viral antigen presented by hepatocytes influences CD8 T-cell function. Journal of Virology. 81 (6), 2940-2949 (2007).
- Bertoni, R., et al. Human histocompatibility leukocyte antigen-binding supermotifs predict broadly cross-reactive cytotoxic T lymphocyte responses in patients with acute hepatitis. The Journal of Clinical Investigation. 100 (3), 503-513 (1997).
- Goulder, P. J., et al. Patterns of immunodominance in HIV-1-specific cytotoxic T lymphocyte responses in two human histocompatibility leukocyte antigens (HLA)-identical siblings with HLA-A*0201 are influenced by epitope mutation. The Journal of Experimental Medicine. 185 (8), 1423-1433 (1997).
- Sastry, K. S., et al. Targeting hepatitis B virus-infected cells with a T-cell receptor-like antibody. Journal of Virology. 85 (5), 1935-1942 (2011).
- vanden Berg, H. A., et al. Cellular-level versus receptor-level response threshold hierarchies in T-cell activation. Frontiers in Immunology. 4, 250(2013).
- Moots, R. J., Matsui, M., Pazmany, L., McMichael, A. J., Frelinger, J. A. A cluster of mutations in HLA-A2 alpha 2 helix abolishes peptide recognition by T cells. Immunogenetics. 34 (3), 141-148 (1991).
- Crites, T. J., Chen, L., Varma, R. A TIRF microscopy technique for real-time, simultaneous imaging of the TCR and its associated signaling proteins. Journal of Visualized Experiments. (61), (2012).
- Axmann, M., Schutz, G. J., Huppa, J. B. Single Molecule Fluorescence Microscopy on Planar Supported Bilayers. Journal of Visualized Experiments. (105), e53158(2015).
- Mariati,, Koh, E. Y., Yeo, J. H., Ho, S. C., Yang, Y. Toward stable gene expression in CHO cells. Bioengineered. 5 (5), 340-345 (2014).
- Matsushita, S., Tanaka, Y., Matsuoka, T., Nakashima, T. Clonal expansion of freshly isolated CD4T cells by randomized peptides and identification of peptide ligands using combinatorial peptide libraries. European Journal of Immunology. 31 (8), 2395-2402 (2001).
- Heng, B. C., Cowan, C. M., Basu, S. Comparison of enzymatic and non-enzymatic means of dissociating adherent monolayers of mesenchymal stem cells. Biological Procedures Online. 11, 161-169 (2009).
- Smith, K., et al. Sensory adaptation in naive peripheral CD4 T cells. The Journal of Experimental Medicine. 194 (9), 1253-1261 (2001).
- Wei, M. L., Cresswell, P. HLA-A2 molecules in an antigen-processing mutant cell contain signal sequence-derived peptides. Nature. 356 (6368), 443-446 (1992).
- Vardhana, S., Dustin, M. Supported Planar Bilayers for the Formation of Study of Immunological Synapses and Kinapse. Journal of Visualized Experiments. (19), (2008).
- Bakker, A. H., et al. Conditional MHC class I ligands and peptide exchange technology for the human MHC gene products HLA-A1, -A3, -A11, and -B7. Proceedings of the National Academy of Sciences of the United States of America. 105 (10), 3825-3830 (2008).
- Rhode, P. R., et al. Single-chain MHC class II molecules induce T cell activation and apoptosis. Journal of Immunology. 157 (11), Baltimore, Md. 4885-4891 (1996).
- Crew, M. D., Cannon, M. J., Phanavanh, B., Garcia-Borges, C. N. An HLA-E single chain trimer inhibits human NK cell reactivity towards porcine cells. Molecular Immunology. 42 (10), 1205-1214 (2005).
- Van Kaer, L., Wu, L., Joyce, S. Mechanisms and Consequences of Antigen Presentation by CD1. Trends in Immunology. 37 (11), 738-754 (2016).
- Im, J. S., et al. Direct measurement of antigen binding properties of CD1 proteins using fluorescent lipid probes. The Journal of Biological Chemistry. 279 (1), 299-310 (2004).
הדפסות חוזרות והרשאות
