פרוטוקול זה מתאר את זרימת העבודה לתיוג מטבולי של תאים סניסנטיים ולא מתחלקים עם SILAC פועם, ניתוח ספקטרומטריית מסה לא ממוקדת וחישוב יעיל של זמן מחצית חיים של חלבונים.
מאמר שיטה
מדידת שיעורי תחלופת חלבונים בתאי תרבית סנסנטיים ולא מתחלקים באמצעות תיוג מטבולי וספקטרומטריית מסה
במאמר זה
סיכום
תקציר
עדויות הולכות וגוברות הראו כי הצטברות של תאים סנסנטיים במערכת העצבים המרכזית תורמת להפרעות נוירודגנרטיביות כגון אלצהיימר ומחלות פרקינסון. סנסנציה תאית היא מצב של עצירת מחזור תאים קבועה המתרחשת בדרך כלל בתגובה לחשיפה ללחצים תת-קטלניים. עם זאת, כמו תאים אחרים שאינם מתחלקים, תאים סנסנטיים נשארים פעילים מבחינה מטבולית ומבצעים פונקציות רבות הדורשות דרישות שעתוק ותרגום ייחודיות ושינויים נרחבים בפרוטאום התוך תאי והמופרש. הבנת האופן שבו סינתזת חלבונים וקצבי דעיכה משתנים במהלך הסנסנציה יכולה להאיר את המנגנונים הבסיסיים של סנסנציה תאית ולמצוא דרכים טיפוליות פוטנציאליות למחלות שהוחמרו על ידי תאים סנסנטיים. מאמר זה מתאר שיטה להערכה בקנה מידה של פרוטאום של זמן מחצית חיים של חלבונים בתאים שאינם מתחלקים באמצעות תיוג איזוטופים יציב בפולסים על ידי חומצות אמינו בתרבית תאים (pSILAC) בשילוב עם ספקטרומטריית מסה. pSILAC כולל תיוג מטבולי של תאים עם גרסאות יציבות המכילות איזוטופים כבדים של חומצות אמינו. יחד עם גישות מודרניות של ספקטרומטריית מסות, pSILAC מאפשר מדידה של תחלופת חלבונים של מאות או אלפי חלבונים בתערובות מורכבות. לאחר תיוג מטבולי, ניתן לקבוע את דינמיקת התחלופה של חלבונים על סמך העשרה יחסית של איזוטופים כבדים בפפטידים שזוהו על ידי ספקטרומטריית מסות. בפרוטוקול זה, מתוארת זרימת עבודה עבור יצירת תרביות פיברובלסטים סנסנטיות ופיברובלסטים רזיסטיים שנעצרו באופן דומה, כמו גם pSILAC פשוט ונקודתי חד פעמי המתייג מהלך זמן הממקסם את הכיסוי של שיעורי תחלופת החלבון הצפויים. יתר על כן, מוצג צינור לניתוח נתוני ספקטרומטריית מסה pSILAC וחישוב ידידותי למשתמש של שיעורי פירוק חלבונים באמצעות גיליונות אלקטרוניים. ניתן להרחיב את היישום של פרוטוקול זה מעבר לתאים סנסנטיים לכל תאי תרבית שאינם מתחלקים כגון נוירונים.
מבוא
סנסנציה זוהתה לראשונה כמצב של עצירת גדילה בלתי מוגבלת שהוצגה על ידי תאים ראשוניים בתרבית לאחר שהגיעו לתשישותמשוכפלת 1. מאז הוכח כי סנסנציה יכולה להיווצר בתגובה לעלבונות תאיים רבים, כולל לחצים גנוטוקסיים, מיטוכונדריאליים ואונקוגניים, בין היתר2. בעוד של-senescence יש מספר תפקידים חשובים מבחינה פיזיולוגית, כגון דיכוי גידולים וריפוי פצעים, הצטברות של תאים סנסנטיים במהלך ההזדקנות קשורה לשורה של השפעות מזיקות על הבריאות3, כולל מספר מצבים נוירודגנרטיביים 4,5,6. סנסנציה תאית מתרחשת במספר סוגי תאי מוח, כולל תאי עצב 7,8,9,10, אסטרוציטים11, מיקרוגליה12 ומבשרי אוליגודנדרוציטים13, ותורמת לניוון עצבי ולתפקוד קוגניטיבי לקוי. אוליגומרים עמילואידים בטא, אחד מסימני ההיכר של מחלת האלצהיימר14, הוכחו כמאיצים את הסנסנציה העצבית 13,15,16. שכיחות מוגברת של תאים סנסנטיים נקשרה גם למחלת פרקינסון17, במיוחד כתוצאה מגורמי עקה סביבתיים11,18. חשוב לציין כי חיסול סלקטיבי של תאים סנסנטיים במודלים פרה-קליניים מאריך את תוחלת החיים וממתן מספר רב של מחלות הקשורות לגיל 3,5,12 ומשפר ליקויים קוגניטיביים 8,11,12,13. תאי סנסנט התגלו אפוא כמטרות טיפוליות מבטיחות לטיפול במצבים רבים הקשורים לגיל.
חלק גדול מההשפעה המזיקה של תאים סנסנטיים נגרם על ידי הפנוטיפ המפריש הקשור לסנסנציה (SASP), תערובת מורכבת של מולקולות ביו-אקטיביות המופרשות על ידי תאים סנסנטיים שיכולים לגרום לדלקת מקומית, אנגיוגנזה, הרס המטריצה החוץ-תאית והתפשטות הסנסנציה ברקמה הסובבת 19,20,21 . ה-SASP מייצג גם תופעה ביולוגית מעניינת של סנסנציה משום שהיא דורשת מאמץ שעתוק ותרגום ניכר במהלך מצב של עצירת מחזור התא. למעשה, הודגם כי תאים סנסנטיים מראים ירידה בביוגנזה של ריבוזומים22,23,24 שאמורה להפחית את סינתזת החלבון. במקום זאת, תאים סנסנטיים מתרגמים בחוזקה חלבונים מסוימים, במיוחד גורמי SASP, ומשפיעים על חילוף החומרים של הרקמה הסובבת25. לפיכך, יש עניין רב בהבנת האופן שבו תאים סנסנטיים העוברים עצירה קבועה של מחזור התא ממשיכים לשמור על הומאוסטזיס של חלבונים ובמקביל מבטאים בחוזקה גורמי SASP וחלבונים נבחרים אחרים.
שיטה זו מתארת כיצד להשתמש בספקטרומטריית מסות ובתיוג איזוטופים יציבים על ידי חומצות אמינו בתרבית תאים (pSILAC) כדי למדוד באופן גלובלי את זמן מחצית החיים של חלבונים בתאים סנסנטיים בקנה מידה רחב של פרוטאום. ב-SILAC המסורתית, תאים בתרבית מסומנים לחלוטין מבחינה מטבולית באיזוטופים כבדים וקלים שאינם רדיואקטיביים של חומצות אמינו לניתוח במורד הזרם של שפע חלבונים. שיטה זו יושמה בעבר כדי להעריך שינויים בשפע באופן מקיף וכמותי ב- SASP של פיברובלסטים מתורבתים26. ב-pSILAC, התאים מסומנים באופן דומה מבחינה מטבולית עם פולס של איזוטופ כבד העוקב אחר תיוג מראש עם איזוטופ קל, ולאחר מכן נקטפים במרווחי זמן אחד או יותר. קצבי השילוב של איזוטופים כבדים בהתייחס לאיזוטופים קלים קיימים משמשים לאחר מכן לחישוב קצבי תחלופת חלבונים יחסיים. באופן כללי, איזוטופים של ארגינין וליזין משמשים מכיוון שטריפסין מבקע את השאריות האלה; לפיכך, כל הפפטידים מעיכול סטנדרטי יכילו באופן פוטנציאלי את התווית הכבדה. זוגות של פפטידים הנבדלים זה מזה רק על ידי נוכחות או היעדרות של ליזין כבד או ארגינין זהים מבחינה כימית וניתן להבדיל ביניהם ולכמת אותם על ידי ספקטרומטר מסה. לאחר ניתוח ספקטרומטריית מסות, ניתן לזהות פפטידים כסינתזה חדשה או כקיימים מראש בהתבסס על נוכחות או היעדר התווית האיזוטופית בזיהויי הפפטידים המתקבלים. לאחר מכן ניתן לקבוע את שיעורי תחלופת החלבון על ידי התאמת היחס בין פפטידים כבדים (13 C-15N) על פני פפטידים קלים (12 C-14N) עבור חלבון נתון למודלים קינטיים לצמיחה מעריכית או דעיכהשל 27,28. pSILAC שימשה במספר השוואות של שיעורי תחלופת חלבונים 29,30,31,32 והיא כיום השיטה המקיפה ביותר ובעלת התפוקה הגבוהה ביותר למדידת זמן מחצית חיים של חלבונים.
פרוטוקול זה מפרט את הכנתם של תאים סנסנטיים במקביל לתאים קשים שנעצרו באופן דומה בתרבית, ולאחר מכן תיוג מטבולי עם pSILAC. לאחר מכן נקטפים תאים, הופכים להומוגניים לליסאטים ומעובדים לצורך רכישה וניתוח של ספקטרומטריית מסות. הנתונים המתקבלים מספקטרומטריית מסות משמשים לאחר מכן לקביעת זמן מחצית החיים של חלבונים באמצעות שיטה כמותית פשוטה המשתמשת בנקודת זמן אחת ובחישובי זמן מחצית חיים המבוצעים בגיליון אלקטרוני. באמצעות גישה זו, ניתן למדוד הערכות של זמן מחצית חיים של חלבונים באופן מקיף וכמותי, אותנטי יותר לתנאים תאיים לא מופרכים מאשר פרוטוקולים המשתמשים בחוסמים של סינתזה או תחלופה של חלבונים.
פרוטוקול
1. הכנת תאים ותאים קוויסנטיים הניתנים לסנסציה על ידי חשיפה לקרינה מייננת (IR)
הערה: ניתן לגרום לסנסנציה תאית ול-quiescence באמצעות שיטות מרובות, כפי שמתואר בפירוט במקום אחר 33,34,35. הגירויים המשמשים להשראת סנסנציה וקוויסקנציה עשויים להיות תלויים בסוג העניין של התא ובשאלה הביולוגית הנחקרת. התאים ששימשו במחקר זה זמינים באופן מסחרי.
- להפשיר פיברובלסטים IMR-90 דיפלואידים אנושיים (~1 x 10⁶ תאים) מקריאוביאל ולצלוח אותם ב-20 מ"ל של DMEM בתוספת 10% סרום בקר עוברי (FBS) (טבלה 1) על צלחת של 150 מ"מ.
- לגדל את התאים בתנאי חמצן פיזיולוגיים (3% O2, 5% CO2, 37 °C) ולהרחיב את התרביות ב-10% מדיה המכילה FBS עד שיוקמו מספיק שכפולים עבור תאים קוויזנטיים וסנסנטיים (לפחות 3-5 שכפולים מומלצים לכל מצב).
הערה: גידול תאים בחמצן פיזיולוגי (3%) הוא אידיאלי לתאי פיברובלסטים אנושיים ראשוניים, אך תנאי תרבית מתאימים לסוגי תאים אחרים עשויים להשתנות ויש לקבוע אותם על בסיס כל מקרה לגופו. - ליצור תאים סנסנטיים על ידי חשיפת תאים מתרבים ל-15 אפורים (Gy) של קרינה מייננת (IR).
הערה: עוצמת החשיפה לקרינה עשויה להשתנות בהתאם לסוג התא. בעוד 15 Gy משמש כאן, 10 Gy הוא גם מינון קרינה נפוץ עבור fibroblasts; תאים אחרים, כגון מונוציטים, עשויים לדרוש מינון נמוך עד 5 Gy. המינון נקבע בדרך כלל באופן אמפירי על ידי שקילה של כדאיות כנגד אינדוקציה של סנסנציה.- חשוף את התאים במפגש של 40%-60% ל-IR במדיה המכילה 10% FBS.
- לאחר חשיפה ל-IR, החליפו למדיה טרייה המכילה 10% FBS.
- שינוי מדיה (20 מ"ל, המכילה 10% FBS) כל יומיים למשך 8 ימים.
הערה: תאים נחשפים ל-IR במפגש נמוך יותר מכיוון שתאים שטופלו ב-IR יתרחבו בתרבית לפני שהם יפסיקו לגדול. בניסוי זה, התאים לא היו תאים מפוצלים במהלך התבססות הסנסנציה, ואף על פי שהם נעשו יותר מפגשיים, הם עדיין הציגו סמני תאים סנסנטיים בעת הקציר. בפיברובלסטים, הפנוטיפ הסנסנטי מתפתח תוך 7-10 ימים.
- צור תאי בקרה שקטים על-ידי שינוי המדיה של תאים מתרבים מצופים למדיה המכילה 0.2% FBS (הרעבת סרום) (טבלה 1).
- המשך גידול תאים שישמשו לבקרת ה-quiescence במדיה המכילה 10% FBS עד יום 4 לאחר שתאי סנסנט ייחשפו ל-IR, ויתפצלו בעת הצורך.
- ביום ה-4 לאחר IR, שנו את המדיה של תאים שקטים ל-20 מ"ל של מדיה המכילה 0.2% FBS (טבלה 1) והמשיכו לצמוח עוד 6 ימים, תוך שינוי מדיה כל יומיים.
הערה: אפילו במדיה המכילה 0.2% FBS, פיברובלסטים ימשיכו לגדול במידה מסוימת ועשויים להיראות מפגשיים עד סוף הקציר. ככלל אצבע, יש לשאוף לאסוף תאים שקטים כאשר הם מגיעים למפגש בדומה לזה של תרביות התאים הסנסנטיות.
2. תיוג תאים עבור SILAC פועם וקציר של ליזטים
- שנה את המדיה הן בתאים הסנסנטיים והן בתאי ה-quiescent (12 צלחות) ל-SILAC Light (טבלה 1) וגדל במשך יומיים.
הערה: תיוג זה עוזר להפחית את רעשי הרקע מכיוון שיש שפע טבעי נמוך של 13C ו- 15N. ניתן לדלג על שלב זה בתנאים מגבילי ריאגנטים, אך יגרום להערכת יתר קלה של סינתזת חלבונים חדשה. - החלף את המדיה ב- SILAC DMEM (טבלה 1) לתיוג מטבולי.
הערה: מדיה SILAC DMEM פותחה במיוחד כדי להכיל איזוטופים קלים או כבדים בלבד של ארגינין וליזין לסימון מטבולי. אין להחליף אותם בניסוחים סטנדרטיים של DMEM בסעיפים 2.2.1 או 2.2.2.- עבור שלוש לוחות סנסנט ושלושה לוחות קוויסנט, החליפו את המדיה ב-30 מ"ל של אור SILAC (טבלה 1) וצמחו במשך 3 ימים מבלי לשנות את המדיה.
- עבור מינימום של שלושה לוחות סנסנט ושלושה לוחות שקטים, החליפו את המדיה ב-30 מ"ל של SILAC Heavy (טבלה 1) וצמחו במשך 3 ימים מבלי לשנות את המדיה.
הערה: יש אפשרות בשלב זה לקצור את מה שיהיו התאים המסומנים באור באופן מיידי, במקום לסמן אותם במשך 3 ימים נוספים. עבור נקודת זמן אחת, עדיף לסמן תאים כבדים עם תווית קלה למשך אותה תקופה כפי שנעשה בפרוטוקול זה כדי למזער את השפעות האצווה.
- נתקו את התאים מצלחות התרבית על ידי הוספת 5 מ"ל של מגיב טריפסין שחומם מראש לכל מנה ודגירה למשך 5 דקות ב-37 מעלות צלזיוס.
- בצעו החייאה של התאים המנותקים ב-5 מ"ל של אותה מדיה המשמשת לתרבית (SILAC Light או SILAC Heavy) לנפח כולל של 10 מ"ל.
- לקצור את התאים לצורך מיצוי של ליזטים ואימות של סמני סנסנציה.
- עבור כל תרחיף, aliquot 0.6 x 10⁶ של תאים לתוך 2 מ"ל של מדיה המכילה 0.2% FBS במנה של 6 בארות (שתי מנות, אחת עבור תאים בתרבית SILAC Light ואחד עבור SILAC תאים בתרבית כבדה) ומניחים בטמפרטורה של 37 מעלות צלזיוס לדגירה לילית.
הערה: לוחות אלה (תת-שלב 2.5.1) ישמשו לזיהוי פעילות הקשורה לסנסנציה הקשורה β-גלקטוזידאז (SA-βGal) (שלב 3.1). - עבור כל תרחיף, אליקו 1 x 10⁶ של תאים לתוך צינור microcentrifuge ולהסתובב למטה בצנטריפוגה שולחנית במלוא המהירות במשך דקה אחת. הסר את הסופרנטנט והחזיר את הכדור ב 1 מ"ל של פנול; בשלב זה, ניתן לטהר את ה-RNA במלואו כמתואר במדריך של ספק הפנול או לאחסן אותו לטווח ארוך בטמפרטורה של -80 מעלות צלזיוס.
אזהרה: פנול הוא קורוזיבי ויש לטפל בו אך ורק במכסה המנוע עם כפפות ומעיל מעבדה.
הערה: הרנ"א שחולץ ישמש לזיהוי mRNA המקודדים גורמי SASP באמצעות שעתוק הפוך (RT) ולאחר מכן ניתוח PCR (RT-qPCR) בזמן אמת (q) PCR (RT-qPCR) (שלב 3.2). בדיקה אמינה נוספת לאינדוקציה של סנסנציה היא בדיקה לשילוב של 5-אתניל דיהידרוקסי אורידין (EdU), המצביעה על נוכחותם של תאים מתרבים. ניתן להשתמש בהיעדר התפשטות כדי לאשר את התפשטותם ואת התפשטותם. - העבירו את התאים הנותרים לקרח והסתובבו כלפי מטה ב-300 x גרם ו-4 מעלות צלזיוס.
- עבור כל תרחיף, aliquot 0.6 x 10⁶ של תאים לתוך 2 מ"ל של מדיה המכילה 0.2% FBS במנה של 6 בארות (שתי מנות, אחת עבור תאים בתרבית SILAC Light ואחד עבור SILAC תאים בתרבית כבדה) ומניחים בטמפרטורה של 37 מעלות צלזיוס לדגירה לילית.
- מוציאים את חומר העל ושוטפים את התאים פעמיים ב-1 מ"ל של PBS קר כדי להסיר מדיום המדיה/טריפסין וחלבון אקסוגני מסרום בקר עוברי ממדיום התרבית.
- סובבו שוב את התאים, הסירו את ה-supernatant והמשיכו ל-lysis.
- בצעו החייאה של כדורי התא ב-150 μL של 8 M אוריאה 50 mM 50 mM ammonium bicarbonate Lysis Buffer (טבלה 1), וערבבו על ידי צנרת למעלה ולמטה.
- Sonicate את lysates ב sonicator מים במשך 2.5 דקות עם 30 s מופעל / כבוי בעוצמה בינונית ב 4 ° C.
- מעבירים את הליזאטים לבלוק חום מחומם מראש של 95 מעלות צלזיוס ודנטורציה למשך 4 דקות.
- סובבו את הליזטים; כעת ניתן לאחסן lysates בטמפרטורה של -80 °C (80 °F) או להשתמש בהם באופן מיידי לכימות.
- הכינו מלאי של 30 μL של דילולים של 1:10 עבור כל ליזט ב-Lysis Buffer.
- מדוד את ריכוז החלבון באמצעות ערכת הבדיקה של BCA באמצעות עקומה סטנדרטית שהוכנה ב- 1/10x Lysis Buffer מדולל ב- ddH2O. כעת ניתן לאחסן ליזאטים בטמפרטורה של -80 מעלות צלזיוס ללא הגבלת זמן.
3. אימות של סנסנציה על ידי פעילות הקשורה לסנסנציה β-גלקטוזידאז (SA-βGal) וניתוח RT-qPCR של mRNA הקשורים לסנסנציה
הערה: חומר ההתחלה עבור שלבים אלה נאסף במהלך שלב 2.5
- החל מלוחות 6 הבארות שהוגדרו בתת-שלב 2.5.1, נתחו תאים עבור פעילות SA-βGal באמצעות ערכת צביעת Senescence β-Galactosidase בהתאם לפרוטוקול היצרן. דמיינו צביעה תחת שדה בהיר עם צבע מופעל, כפי שתואר קודם לכן36.
הערה: SA-βGal מכמת על ידי השוואת אחוז התאים החיוביים (צבע כחול נראה לעין) בתנאי בקרה סנסנטיים לעומת קוויזנטיים. מינימום של 70% מהתאים צריכים להיות SA-βGal חיוביים לאישור מוצלח של סנסנציה. תאי בקרה קוויזנטיים צריכים להיות פחות מ-10% חיוביים עבור SA-βGal. - חלץ את הרנ"א מתרחיף פנול (תת-שלב 2.5.2) ונתח באמצעות RT-qPCR עבור רמות מוגברות של mRNA המקודדים גורמי SASP (IL6, CXCL8, IL1B), סמני מחזור תאים (CDKN2A/p16, CDKN1A/p21), ואינדיקטורים אחרים של סנסנציה (אובדן LMNB1 ו-PCNA).
הערה: RNA אינו יציב ולכן יש לטפל בו עם ציוד ללא RNase, כפפות טריות ועל קרח, אלא אם כן צוין אחרת בפרוטוקול.- החל מתרחיף פנול, הוסף 200 μL של כלורופורם לכל 1 מ"ל של פנול והסתובב למטה ב 12,000 x g למשך 15 דקות ב 4 °C (76 °F).
- הסר בזהירות את הפאזה המימית והוסף נפח של 1:1 של איזופרופנול, 15 מיקרוגרם של משקע קו-מזרז גליקוגן, ולאחר מכן דגירה בטמפרטורה של 4 מעלות צלזיוס למשך 10 דקות כדי לזרז את הרנ"א.
- לאחר הדגירה, גלול את הרנ"א על ידי צנטריפוגה ב 12,000 x g במשך 20 דקות ב 4 °C ואחריו לשטוף ב 75% EtOH שווה 1 נפח של פנול בשימוש. החייאת הרנ"א ב-50 מיקרול' של מים מזוקקים נטולי נוקלאזות; ניתן לאחסן RNA בטמפרטורה של -80 מעלות צלזיוס ללא הגבלת זמן.
- לדגימות RNA, הוסיפו 38 μL של מים מזוקקים ללא נוקלאז, 10 μL של 10x מאגר תגובת DNAse, ו-2 μL של DNase I ולאחר מכן ערבוב.
הערה: יצירת תמהיל משותף של כל הריאגנטים ב- substep 3.2.3 כפול מספר הדגימות לטיפול בחלוקה שווה לדגימות היא השיטה הטובה ביותר. - דגימות RNA DNase I-דגירה בטמפרטורה של 37 מעלות צלזיוס למשך 30 דקות.
- הסר את DNase מהדגימות באמצעות נפח אחד של תערובת פנול/כלורופורם/איזואמיל אלכוהול (25:24:1) על ידי מערבולת וסיבוב במהירות המרבית בצנטריפוגה שולחנית למשך 5 דקות; הרנ"א יכיל את השלב המיימי.
- חזור על תת-שלבים 3.2.2 ו- 3.2.3 כדי לזרז את הרנ"א. Resuspend ב 20 μL של מים מזוקקים ללא נוקלאז; ניתן לאחסן RNA בטמפרטורה של -80 מעלות צלזיוס ללא הגבלת זמן.
- צור cDNA מ- RNA מטוהר על ידי דגירה של 0.5-1.0 מיקרוגרם של RNA מטוהר עם 200 U של תעתיק הפוך, 100 פריימרים אקראיים של pMol ו- 10 mM של תערובת dNTP במאגר תגובה 1x המסופק עם תעתיק הפוך; אינקובציה למשך 10 דקות בטמפרטורה של 25 מעלות צלזיוס, ולאחר מכן למשך 30 דקות בטמפרטורה של 50 מעלות צלזיוס, עם שלב השבתה סופי בטמפרטורה של 85 מעלות צלזיוס למשך 5 דקות.
- נתחו את ה-cDNA משלב ה-RT (תת-שלב 3.2.3) מתאים לבקרה שקטה ותאי סנסנט באמצעות ניתוח PCR כמותי (q) בזמן אמת כדי להעריך את רמת סמני ה-mRNA הידועים כמוגדלים (CDKN2A/p16, CDKN1A/p21, IL1B, IL6 ו-CXCL8 mRNA) או ירדו (LMNB1 ו-PCNA mRNA) עם סנסנציה כמתואר במקום אחר. ACTB mRNA, המקודד את החלבון הביתי β-אקטין, הוא לעתים קרובות mRNA טוב לנרמול ההבדלים בחומר הקלט. הפריימרים שבהם נעשה שימוש נמצאים בטבלה 2.
הערה: ניתוח RT-qPCR יחסי תלוי בהנחות של יעילות איגוד שווה בין זוגות פריימרי היעד לבין זוג פריימרים ייחוס. יש לבחון הנחות אלה עבור קבוצות פריימרים חדשות כמפורט במקום אחר37. בנוסף, סמני הייחוס צריכים להיות קבועים בין סוגי התאים המושווים, ומספר אפשרויות נוספות לתאים סנסנטיים זוהו בעבר38.
4. עיכול טריפסין בתמיסה
הערה: מנקודה זו ואילך, חיוני להשתמש במאגרים, ממסים וכימיקלים ברמת ספקטרומטריית מסות כדי למנוע הפרעות מזיהומים במהלך ניתוח ספקטרומטריית מסות. כל המאגרים צריכים להיות מורכבים ממרכיבים המתאימים לניתוח ספקטרומטריית מסות טנדם כרומטוגרפיה נוזלית, כולל מים ואצטוניטריל. עיין בטבלת החומרים לקבלת רשימה של כימיקלים וממסים מתאימים.
- Aliquot 50 מיקרוגרם של כל דגימת חלבון לתוך צינורות חדשים ולהביא לנפחים שווים עם Lysis Buffer.
- לכל דגימה, הוסף DTT לריכוז סופי של 20 mM כדי להפחית קשרים דיסולפידיים.
- דגירו את הדגימות בטמפרטורה של 37 מעלות צלזיוס למשך 30 דקות עם רעידות, ולאחר מכן אפשרו לדגימות להתקרר בטמפרטורת החדר (RT, ~10 דקות).
- הוסיפו יודואצטאמיד לריכוז סופי של 40 מ"מ כדי לאלקיל באופן בלתי הפיך את קבוצות הסולפהידריל שהופחתו בשלב הקודם. דגירה של הדגימות ב- RT בחושך במשך 30 דקות.
- דיללו כל דגימה אל מתחת ל-1 M אוריאה עם חיץ המורכב מ-50 mM אמוניום ביקרבונט. בדוק אם ה- pH הוא בערך 8 על ידי צנרת כמות קטנה של דגימה על רצועות pH.
- הוסיפו 1 מיקרוגרם של טריפסין לכל דגימה עבור 50 מיקרוגרם של חלבון מתחיל, או ב-1:50 טריפסין:יחס חלבון, לפי מסה, אם מעכלים כמות חלבון אחרת. לדוגמה, 3 מיקרוגרם של טריפסין יתווסף לעיכול של 150 מיקרוגרם של חלבון.
- דגירה של הדגימות למשך הלילה בטמפרטורה של 37 מעלות צלזיוס עם רעידות לעיכול חלבונים לפפטידים.
- הוסיפו חומצה פורמית ל-1%, לפי נפח, של כל דגימה כדי להרוות את עיכול החלבון.
הערה: ניתן להשהות את הניסוי כאן. הקפא את הדגימות בטמפרטורה של -80 מעלות צלזיוס והמשך לשלב הבא במועד מאוחר יותר במידת הצורך.
5. ניקוי דגימה עם מיצוי בפאזה מוצקה (SPE)
הערה: פרוטוקול מיצוי זה בפאזה מוצקה דורש מחסניות חילוץ בפאזה מוצקה והגדרת סעפת ואקום. פרוטוקולי מיצוי מקבילים אחרים של פאזה מוצקה (SPE) יכולים להתבצע על פי שיקול דעתו של החוקר לפני ניתוח ספקטרומטריית מסות.
- התכונן ל- SPE על-ידי הצבת מחסניות מיצוי בפאזה מוצקה על סעפת ואקום, תוך שימוש במחסנית חילוץ אחת עבור כל דגימה.
הערה: עיין בהנחיות היצרן לגבי כמות הסורבנט לשימוש בפרוטוקול SPE. עבור 50 מיקרוגרם של דגימות פפטיד, מומלץ להשתמש 10 מ"ג מחסניות סורבנט. - התן כל מחסנית SPE על-ידי הוספת 800 μL של מאגר SPE Elution Buffer (טבלה 1) והשתמש בשאיבת ואקום כדי למשוך את הממס דרך המחסנית.
- חזור על שלב 5.2.
- יש לאזן כל מחסנית על-ידי הוספת 800 μL של SPE Wash Buffer (טבלה 1) והשתמש בשאיבה בשואב אבק כדי למשוך את המאגר דרך המחסניות.
- חזור על שלב 5.4 פעמיים נוספות ובסך הכל שלוש פעמים.
- טען את דגימות הפפטידים למחסניות SPE והשתמש בשאיבת ואקום כדי למשוך דגימות דרך המחסניות.
הערה: בשלב זה, פפטידים קשורים לסורבנט שבתוך המחסניות. - שטפו כל מחסנית עם SPE Wash Buffer והשתמשו בשאיבה בשואב אבק כדי למשוך את המאגר דרך המחסניות.
- חזרו על שלב 5.7 פעמיים נוספות בסך הכל שלוש שטיפות.
- לפני שלב האלוטציה, ארגנו את צינורות האיסוף בתוך סעפת הוואקום שמתחת לכל מחסנית, תוך הקפדה על יישור בין צינורות האיסוף והמחסניות.
- כדי להעלים פפטידים, הוסיפו 800 μL של SPE Elution Buffer לכל מחסנית ופפטידים אלוטים לצינורות איסוף עם יניקה בוואקום.
- חזור על שלב 5.10 עם 400 μL של SPE Elution Buffer.
- מסירים את דגימות הפפטידים מסעפת הוואקום ומייבשים לחלוטין ברכז ואקום (ייבוש אורך כ-3 שעות).
הערה: ניתן להשהות את הניסוי כאן. הקפיאו דגימות בטמפרטורה של -80 מעלות צלזיוס והמשיכו במועד מאוחר יותר במידת הצורך.
6. ניתוח ספקטרומטריית מסות רכישה תלוית נתונים (DDA)
- בצעו החייאה של דגימות הפפטידים בריכוז של 400 ננוגרם/מיקרול'ל במאגר המורכב מ-0.2% חומצה פורמית במים.
- כדי לסייע בסולוביזציה מחדש של פפטידים, מערבלו את הדגימות במשך 5 דקות. לאחר מכן, sonicate את הדגימות במשך 5 דקות ב sonicator אמבט מים.
- גלול כל החומרים הבלתי מסיסים על ידי צנטריפוגה דגימות ב 15,000 x g במשך 15 דקות ב 4 °C (64 °F). מעבירים את הסופרנאטים הפפטידיים לבקבוקוני טרשת נפוצה.
- הוסף סטנדרטים פפטידיים של זמן שמירה באינדקס (iRT) לכל דגימה בריכוז של 1:30 iRT:sample, לפי נפח.
- הגש את הדגימות לניתוח פרוטאומי באמצעות ניתוח ספקטרומטריית מסות טנדם של כרומטוגרפיה נוזלית (LC-MS/MS).
- השתמש בהגדרות LC-MS/MS המומלצות לניתוח לא ממוקד על ידי מתקן ספקטרומטריית המסות. הגדרות לדוגמה לניתוח מוצגות באיור 3, המוגדרות לניתוח על ספקטרומטר מסה של Orbitrap המוצמד למערכת כרומטוגרפיית ננו-נוזלית במצב ננו-זרימה. להלן פרוטוקול לדוגמה.
- טען 1 מיקרוגרם (5 μL) של כל דגימה על עמודת השמנה (1 ס"מ אורך x 100 μm קוטר) ושטוף אותם עם ממס טעינה (טבלה 1) בקצב זרימה של 10 μL /min למשך 5 דקות.
- טען את הדגימות לעמודה אנליטית (50 ס"מ אורך x 100 מיקרומטר קוטר) עם קצב זרימה של 400 ננול/דקה.
- הקפידו על הפפטידים במשך 90 דקות של שיפוע ליניארי עם ממס אורגני (0.2% חומצה פורמית ו-99.8% אצטוניטריל) וממס אנאורגני (0.2% חומצה פורמית ב-99.8% מים), הנע בין 5% ל-35% ממס אורגני.
- קבל נתוני ספקטרומטריית מסה במצב תלוי נתונים עם מחזור רציף של סריקות סקר MS1 (60,000 רזולוציה, יעד AGC של 3e6, זמן צבירה מרבי של 100 אלפיות השנייה וטווח מסה של 400-1,600 m/z) ולאחר מכן 20 סריקות MS2 תלויות נתונים (רזולוציה של 15,000, יעד AGC של 1e5, זמן הקרנה מרבי של 25 אלפיות השנייה וחלונות בידוד ברוחב 1.6 מ"ק/z) עם פיצול HCD (אנרגיית התנגשות מנורמלת של 27%).
- לאחר רכישת MS של כל הדגימות, ייבא קבצי ספקטרומטריית מסות גולמיות לתוך כלי תוכנה לניתוח פרוטאומיקה של ספקטרומטריית מסה לזיהוי וכימות של אזורי שיא פפטידים.
הערה: לזיהוי פפטידים וחלבונים בניסוי זה, נעשה שימוש בכלי החיפוש במסד הנתונים של הקמע עם מסד הנתונים של רצף הפרוטאומים האנושיים UniProt שנסקר (מזהה פרוטאום: UP000005640). פרמטרי החיפוש הבאים צוינו ב-Mascot:- כמות: SILAC K+8 R+10 [MD] אנזים: טריפסין/p שינוי קבוע: קרבמידומתיל (C)
- שינויים משתנים: אצטיל (חלבון N-מונח), Gln->pyro-Glu (N-term Q), חמצון (M), תווית:13C(6)15N(2) (K), תווית:13C(6)15N(4) (R)
- סבילות מסה פפטידית: 10 עמודים לדקה
- סבילות מסת שברים: 0.08 Da
- מקס החמיץ מחשוף: 2
- כל הפרמטרים שלא צוינו היו ברירת המחדל
- לכמת את אזורי השיא של הפפטידים עבור פפטידים כבדים וקלים בכלי תוכנה לכמויות פרוטאום. לצורך כימות אזורי השיא בניסוי זה, נעשה שימוש בפלטפורמת התוכנה החופשית והקוד הפתוח Skyline39,40. ייצא אזורי שיא פפטידים כבדים וקלים להערכת זמן מחצית חיים של חלבון.
7. חישוב זמן מחצית החיים של החלבון
- פתח את חוברת העבודה לניתוח SILAC (טבלה 3) לגיליון הראשון בשם 1) נתונים גולמיים והדבק במזהי UniProt, שמות גנים, אזורי שיא כבדים ואזורי שיא קלים לעמודות שצוינו (SH = Senescent-Heavy, SL = Senescent-Light, CH = Control (quiescent)-Heavy, CL = Control (quiescent)-Light).
- פתחו את יריעות 2-4 וודאו שהעמודות UniProt ID ו-Gene תואמות את מספר החלבונים שזוהו מהניתוח (ניסויים אלה זיהו 841 חלבונים). שאר העמודות יתמלאו באופן אוטומטי בנתונים לאחר שנגררו כדי לכסות את החלבונים שזוהו.
- פתח את הגיליון הרביעי בשם 4) נתח והסר שורות שבהן העמודות G ו- H מציינות שהמדגם נמצא מחוץ לטווח; שמור שורות שקוראות בטווח. חלקת הר הגעש בגיליון החמישי תאוכלס באופן אוטומטי.
תוצאות
פרוטוקול זה מתאר שיטה להשוואה גלובלית של זמן מחצית החיים של חלבונים בין תאי בקרה סנסנטיים לתאי בקרה סנסנטיים ולא מתחלקים, באמצעות pSILAC ונקודות זמן מינימליות. פרוטוקול זה מפרט את יצירתם של תאים סנסנטיים וקוויסנטים בתרבית, תיוג מטבולי של תאים עם איזוטופים יציבים של ארגינין וליזין במשך 3 ימים, כימות השפע היחסי של איזוטופים פפטידיים כבדים וקלים על ידי ספקטרומטריית מסות, וחישוב פשוט ונגיש של זמן מחצית חיים של חלבונים באמצעות נוסחאות גיליון אלקטרוני (איור 1). שיטה זו גמישה מאוד וניתן להתאים אותה לסוגי תאים ותנאים רבים.
כחלק מהדור של תאים סנסנטיים עבור פרוטוקול זה, נעשה שימוש בשתי שיטות לאימות סנסנציה: SA-β תאים חיוביים-גל שהומחשו על ידי מיקרוסקופיה ורמות מוגברות של סמנים סנסנטיים המכומתים באמצעות ניתוח RT-qPCR. המדידה של סמנים סנסנטיים אמורה להניב הבחנות ברורות בין תאים קוויסנטיים וסנסנטיים כדי שהשוואות בין שתי אוכלוסיות התאים ייחשבו תקפות. עבור פעילות SA-βGal, תאים סנסנטיים צריכים להיראות כחולים בעוד שלתאי בקרה קוויזנטיים אין צבע או מעט מאוד צבע (איור 2A). ניתן לכמת בדיקה זו על ידי ספירת התאים החיוביים, המוכתמים בכחול כאחוז ממספר התאים הכולל, ולאחר מכן השוואת שיעור החיוביות באחוזים בין שליטה קוויזנטית לתאים סנסנטיים. חשוב שפרוטוקול זה יבוצע בו זמנית לצורך השוואה בין שני מצבי התא; פעילות SA-βGal מסתמכת על ה-pH של תמיסת הכתם, כך שהתוצאות יכולות להשתנות באופן משמעותי בין הבדיקות ויש לראות בהן מדד איכותי.
ניתוח RT-qPCR של סמנים סנסנטיים יראה רמות גבוהות של mRNA המקודדים גורמי SASP (IL6, CXCL8, IL1B) ומעכבי מחזור התא (CDKN2A/p16, CDKN1A/p21) ברוב המודלים הסנסנטיים. אף על פי ששונות מסוימת צפויה בהתבסס על סוג התא, מצב התרבית והמשרה הסנסנטי41,42, רוב התאים הסנסנטיים מציגים יותר מפי חמישה רמות גבוהות יותר של IL6, CXCL8 ו-CDKN1A/p21 mRNA בהשוואה לתאי בקרה קוויסנטיים בהשוואה לתאי בקרה קוויסנטיים; לעומת זאת, הרמות של LMNB1 ו-PCNA mRNA, המקודדות סמני התפשטות, צריכות להיות נמוכות או נעדרות בתאים סנסנטיים בהשוואה לתאים שקטים (איור 2B). יחד, אחוז משמעותי של חיוביות SA-βGal והביטוי הצפוי של פאנל של סמני mRNA הקשורים לסנסנציה מספיקים כדי לאשר את האינדוקציה של סנסנציה בניסוי.
עיבוד דגימות חלבון לניתוח ספקטרומטריית מסות מורכב מעיכול בתמיסה (2 ימים) ומיצוי בפאזה מוצקה (4-6 שעות). כדי לבצע ניתוח פרוטאומי לא ממוקד, הפפטידים המתקבלים נשלחים לניתוח LC-MS/MS באמצעות רכישה תלוית נתונים (DDA). במכשירי Orbitrap, ניתן לציין שיטת DDA בעורך התוכנה של מכשיר ספקטרומטריית המסה. הגדרות ספקטרומטר המסה שבהן נעשה שימוש במחקר זה מוצגות באיור 3A. ניתן לציין גם הגדרות כרומטוגרפיה נוזלית בתוך עורך השיטה. לצורך מחקר זה נעשה שימוש בשיפוע ליניארי של 90 דקות עם פאזה אורגנית גוברת (אצטוניטריל) (איור 3B). לאחר רכישה מוצלחת, זרם היונים הכולל (TIC) אמור להכיל אות אינטנסיבי במהלך חלק השיפוע הליניארי של השיטה (איור 3C). פרוטוקול זה מתאר פרוטוקול לדוגמה במכשיר Orbitrap, אך ניתן לבצע את חישוב זמן מחצית החיים של החלבון על נתונים המתקבלים מכל ספקטרומטר מסה שנאסף במצב DDA, הזמין במספר סוגים של מכשירים (למשל, Orbitraps ומכשירים לזמן טיסה) וספקים. הגדרות הרכישה יהיו ייחודיות לסוג ולתצורה של המכשיר בו נעשה שימוש, ומומלץ להשתמש בהגדרות המוצעות על ידי מתקן ספקטרומטריית המסה. שיטה זו תואמת גם לשיטות שאינן DDA (SRM, PRM, DIA), כל עוד ניתן לחלץ אזורי שיא כרומטוגרפיים כמותיים עבור פסגות כבדות וקלות מקבצי הנתונים הגולמיים ולהזין אותם לנוסחאות הגיליון האלקטרוני.
חיפוש בקבצי ספקטרומטריית מסות גולמיות מתבצע באמצעות אחד מכלי החיפוש הרבים הזמינים במאגרי מידע פרוטאומיים כדי לזהות פפטידים וחלבונים. לדוגמה, מחקר זה השתמש במנוע החיפוש Mascot43. כדי להשיג אזורי שיא כרומטוגרפיים לכימות של פפטידים כבדים וקלים, תוצאות החיפוש של מסד הנתונים מיובאות לתוכנה פרוטאומית המסוגלת לאזורי שיא כרומטוגרפיים כגון Skyline39,40. בדיקה של כרומטוגרמות היונים המופקות של פפטידים (איור 4) תגלה את היחס היחסי של אותות פפטידים כבדים וקלים. שיעור נמוך יותר של אות פפטיד כבד ביחס לאות פפטידי קל בתאי סנסנט מצביע על קצב תחלופה איטי יותר של חלבונים (איור 4A), ואות פפטיד כבד יותר ביחס לאור מצביע על קצב תחלופת חלבונים מהיר יותר (איור 4B). הדגימות ללא תווית אמורות להראות מעט אות פפטידי כבד, אם בכלל. כל אות פפטיד כבד לכאורה בדגימות ללא תווית נחשב לרעשי רקע ויופחת במהלך החישובים הסופיים. יש לייצא כימות של אזורי שיא כרומטוגרפיים עבור פפטידים קלים וכבדים לכל תנאי הטיפול והתיוג לצורך חישוב מאוחר יותר של שיעורי תחלופת חלבונים וניתוח סטטיסטי.
על ידי שימוש בניתוח נקודת זמן בודדת, הכימות של זמן מחצית החיים של חלבון הוא פשוט לביצוע וניתן לעשות זאת בנוחות בגיליונות אלקטרוניים. בטבלה 3 חושבו זמן מחצית החיים של 695 חלבונים שזוהו מניתוח ספקטרומטריית המסות. החל משפע איזוטופים כבדים וקלים ברמת החלבון עבור כל חלבון בדגימות (קלט עבור גיליון הנתונים הגולמיים 1), איזוטופ כבד באחוזים (המכונה יחס, R) מחושב באופן אוטומטי על הגיליון שכותרתו 2) יחס H | ח + ל. בשלב זה, ה-R מדגימות כבדות מסומנות מנורמל על ידי חיסור ה-R מדגימות ללא תווית כדי לייצר R סופי עבור המשולשים הקוויזנטיים והסנסנטיים. מכיוון שדגימות ללא תווית לא אמורות לכלול איזוטופ כבד שנוסף באופן אקסוגני, הן משמשות לחיסול אות הרקע. מ- R, kdeg (שיעור מחזור) מחושב באמצעות הנוסחה הבאה:
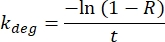
זמן מחצית החיים (H, בימים) נקבע עבור כל חלבון בבקרת ה-quiescent וב-senescent trilicates (גיליון שכותרתו 3) Half-Life (ימים)) באמצעות הנוסחה הבאה:

לאחר מכן, זמן מחצית החיים הזה ממוצע בין המשולשים הקווסנטיים והסנסנטיים כדי ליצור זמן מחצית חיים ממוצע שקט וסנסנטי עבור כל חלבון, כמו גם ערך p. לאחר מכן מסוננים מחצית חיים מחושבים עבור ערכים שליליים, המתרחשים כאשר האות הכבד מתאים המסומנים באור (הרקע) גדול יותר מהאות הכבד מתאים בעלי תווית כבדה. סינון זה הביא ל-707 חלבונים מתוך 841 שזוהו עם זמן מחצית חיים תקף עבור התוצאות שהוצגו כאן.
לאחר מכן מדווחים על זמן מחצית החיים כיחס של לוג2 של סנסציה על פני תאי בקרה שקטים (log2FC) ומתוותים בחלקת הר געש (איור 5). לדוגמה, על-ידי התבוננות בגיליון 5) Analysis, ניתן לראות את החלבון של קולטן תרומבין קרישה II (F2R) כבעל זמן מחצית חיים בתאים שקטים של 0.51 ימים (עמודה B) ומחצית חיים בתאים סנסנטיים של 1.07 ימים (עמודה C) שהניבה יומן2FC של ~1.06 (עמודה D) עם ערך p של 0.001.
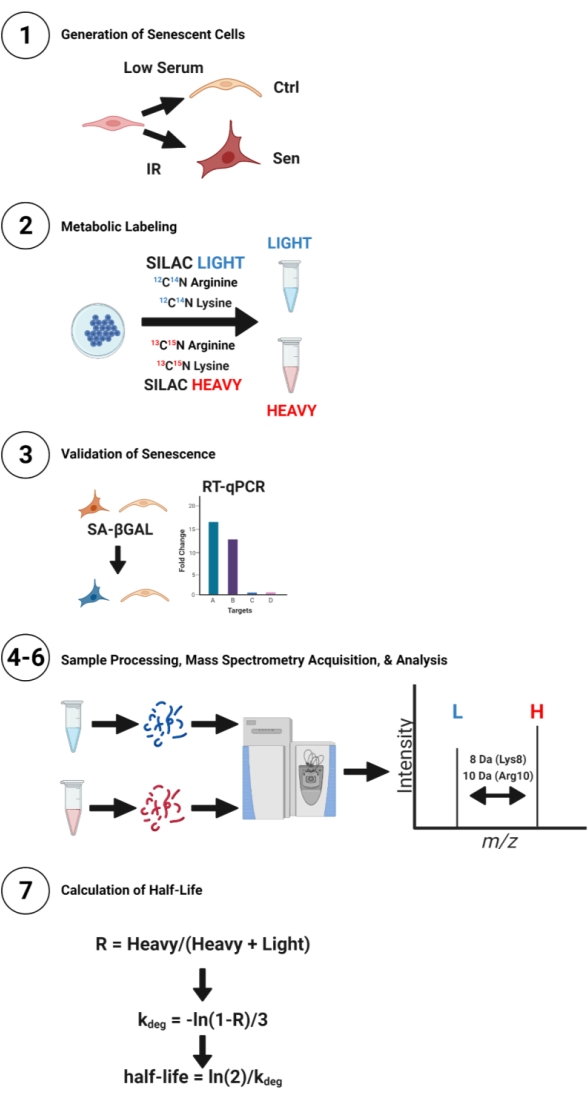
איור 1: דיאגרמה של זרימת העבודה של pSILAC עבור תאי בקרה סנסנטיים וקוויזנטיים. פיברובלסטים אנושיים מסוג IMR-90 שימשו להכנת תרביות תאים שקטות (דלות סרום) או סנסנטיות (IR) לצורך השוואה של זמן מחצית חיים של חלבונים. לאחר מכן סומנו התאים ב-SILAC Light או SILAC מדיה כבדה עם ארגינין איזוטופי וליזין במשך 3 ימים. ליסאטים הוצאו מתאים, עוכלו, הושפלו ונותחו באמצעות ספקטרומטריית מסות. פסגות איזוטופים כבדים וקלים של פפטידים תואמים לפפטידים מסונתזים וקיימים חדשים, בהתאמה. מחצית החיים חושבה באמצעות משוואה לדעיכה מעריכית. אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
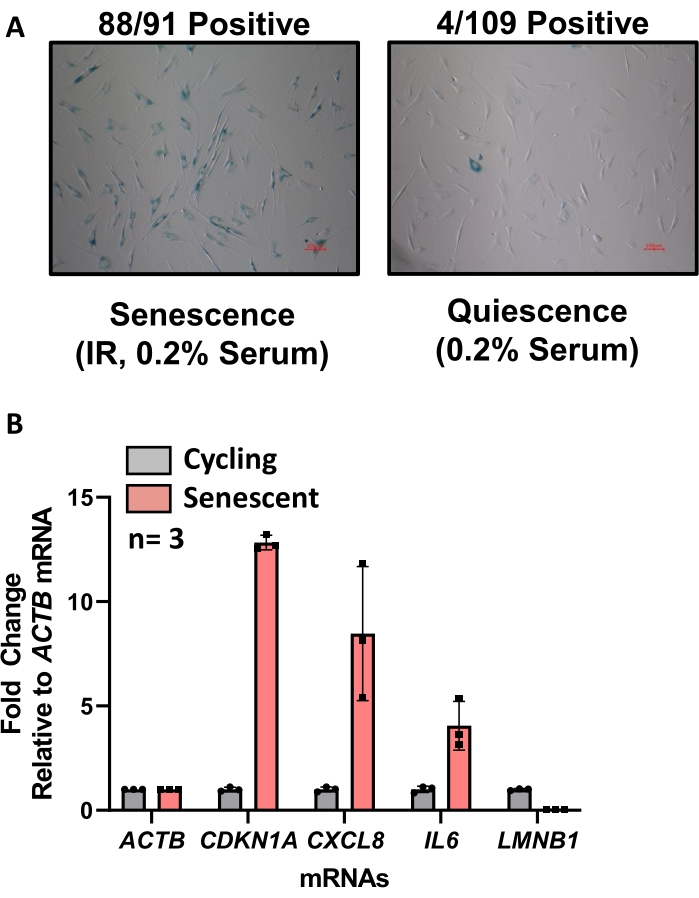
איור 2: אימות של פנוטיפים סנסנטיים באמצעות ניתוחי SA-βGal ו-RT-qPCR. (A) תאים סנסנטיים וקוויזנטיים מצופים מחדש בזמן הקציר לתוך צלחת בעלת 6 בארות ומוכתמים עבור SA-βGal באמצעות ערכת הכתמים SA-βGal. הצבע הכחול בגוף התא חיובי לסנסנציה. התמונות צולמו בשדה בהיר עם צבע בהגדלה של פי 10, סמן גודל באדום. (B) ניתוח RT-qPCR המשווה בין תאים סנסנטיים (אדומים) ותאים מחזוריים (אפורים) מניסוי שאינו קשור. עליות ברמות של CDKN1A/p21, CXCL8 ו-IL6 mRNA מעידות על סנסנציה, כמו גם הירידה ברמות ה-mRNA של LMNB1 . אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
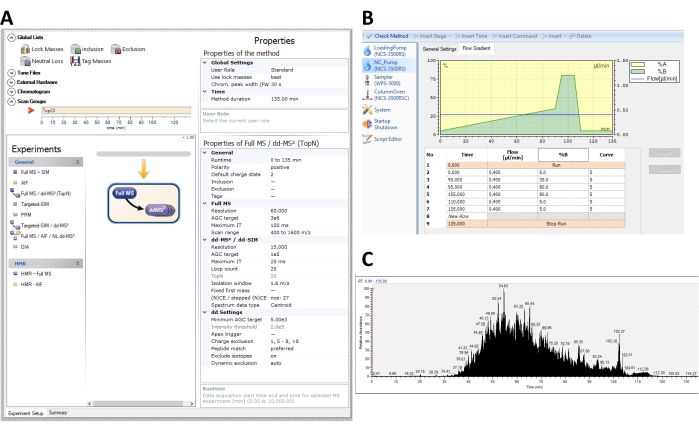
איור 3: שיטות מייצגות לסריקות רכישה תלויות נתונים (DDA) ולשיפוע כרומטוגרפיה נוזלית של תרביות pSILAC בספקטרומטר המסה Q-Exactive HF orbitrap. (A) הגדרות מכשירים מומלצות בתוכנת המכשירים לניתוח תלוי נתונים של ליזטים של תאים שלמים מניסוי pSILAC. (B) הגדרות לדוגמה של שיטת גרדיאנט זרימת כרומטוגרפיה נוזלית. פפטידים מתחמקים מעל שיפוע ליניארי של 90 דקות הנע בין 5% ל-35% buffer B (0.2% חומצה פורמית ו-99.8% אצטוניטריל), ולאחר מכן שטיפה של 10 דקות עם 80% מאגר B, ו-25 דקות של שיווי משקל עם 5% buffer B. (C) כרומטוגרמה כוללת מייצגת של יונים כוללים (TIC) של רכישת ספקטרומטריית מסה של פפטידים פיברובלסטים IMR-90 שנרכשו עם ההגדרות שצוינו. אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
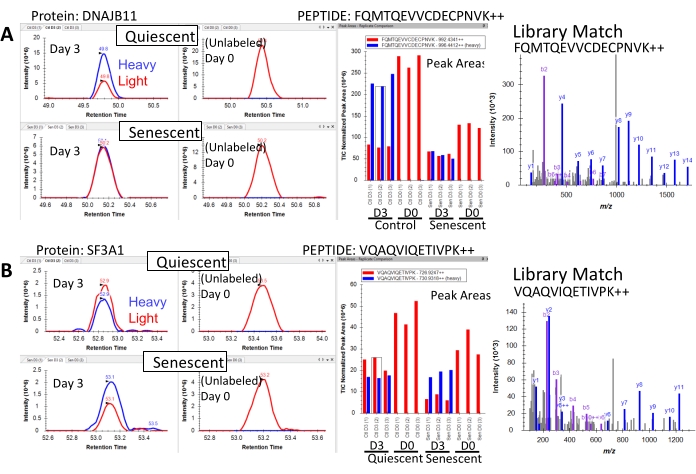
איור 4: כרומטוגרמות יונים מופקות מייצגות של פפטידים עם תחלופה משתנה במהלך הסנסנציה. (A) אזורי שיא כרומטוגרפיים של הפפטיד FQMTQEVVCVCDECPNVK++ מתת-המשפחה ההומולוגית DnaJ של החלבון B חבר 11 (DNAJB11) בתאים סנסנטיים ולא סנסנטיים. לאחר 3 ימים של SILAC, תאים סנסנטיים משלבים איזוטופים פחות כבדים בפפטיד זה בהשוואה לתאים ססגוניים (שאינם סנסנטיים), כפי שמעידה ירידה בשטח השיא של פפטיד כבד המכיל איזוטופים (כחול) ביחס לפפטיד האור (אדום), מה שמעיד על כך שפפטיד זה הפחית את התחלופה בתאים הסנסנטיים. (B) אזורי שיא כרומטוגרפיים של הפפטיד VQAQVIQETIVPK++ מגורם שחבור החלבון 3a תת-יחידה 1 (SF3A1) בתאים סנסנטיים ולא סנסנטיים. לאחר 3 ימים של SILAC, תאים סנסנטיים משלבים שיעור גבוה יותר של איזוטופים כבדים לתוך פפטיד זה בהשוואה לתאים שקטים (שאינם סנסנטיים), כפי שמעידה ירידה בשטח השיא של פפטיד כבד המכיל איזוטופים (כחול) ביחס לפפטיד האור (אדום), מה שמעיד על כך שלפפטיד זה יש תחלופה מוגברת בתאי סנסנט. התנאים ללא תווית (יום 0) אינם מראים שילוב של איזוטופים כבדים עבור שני הפפטידים, כצפוי. אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
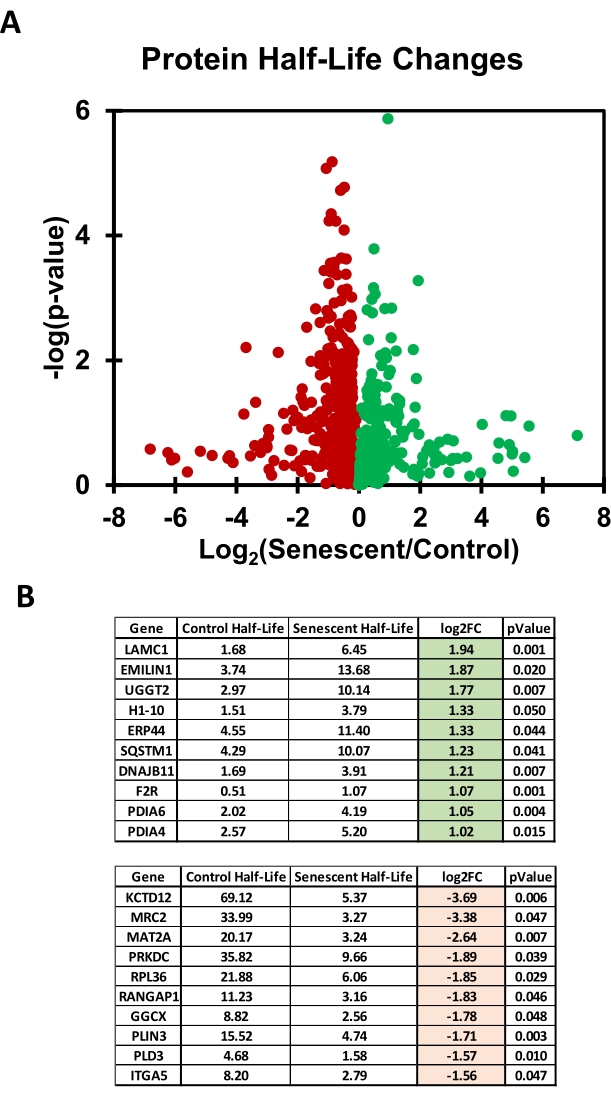
איור 5: השוואה בין זמן מחצית החיים של חלבונים בתאים סנסנטיים וקוויסנטיים שנקבעה מתיוג pSILAC. (A) תרשים הר געש המציג את יחס היומן2 של סנסנט / בקרה (שקט) עבור כל אחד מ-695 החלבונים שזוהו; בניסוי זה, מדיית תיוג קלה וכבדה לא הכילה גלוקוז ולא פנול אדום. (B) טבלאות המציגות את 10 החלבונים המובילים עם מחצית החיים המוגברת ביותר או המופחתת ביותר בתאים קוויסנטיים לעומת תאים סנסנטיים (שמאל וימין, בהתאמה). אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
טבלה 1: מדיה ובמאגרים המשמשים בפרוטוקול זה. אנא לחץ כאן כדי להוריד טבלה זו.
טבלה 2: פריימרים RT-qPCR המשמשים בפרוטוקול זה. אנא לחץ כאן כדי להוריד טבלה זו.
טבלה 3: חוברת עבודה לניתוח SILAC לחישוב זמן מחצית חיים של חלבון, שינויי קיפול ובדיקות t. אנא לחץ כאן כדי להוריד טבלה זו.
דיון
pSILAC היא טכניקה רבת עוצמה המאפשרת כימות גלובלי של שיעורי תחלופת חלבונים על פני מצבים תאיים מרובים. מאמר זה מפרט את השימוש ב-pSILAC כדי להשוות את זמן מחצית החיים של חלבונים גלובליים בין תאים סנסנטיים וקוויזנטיים, כולל הוראות להכנת תאים סנסנטיים וקוויזנטיים, תיוג וקצירה של SILAC, ובסופו של דבר ניתוח באמצעות ספקטרומטריית מסה של DDA. בנוסף, בדיקה דו-שלבית מתוארת לאימות של פנוטיפ הסנסנציה באמצעות ניתוח SA-βGal ו-RT-qPCR של פאנל של mRNA המקודד חלבונים הקשורים לסנסנציה. בנוסף לאימות של סנסנציה עם שתי הגישות המתוארות, ניתן לבצע אימות שלישי של סנסנציה לאחר ניתוח ספקטרומטריית מסות על ידי חיפוש שינויים בסמני סנסנציה ידועים בין תאים סנסנטיים וקוויסנטיים ברמה הפרוטאומית. חלבונים הקשורים לסנסנציה שצפויים להיות גבוהים כוללים את p16, p21 ו-BCL2, בין היתר, המתוארים במקומות אחרים44,45. בפרוטוקול שתואר לעיל, קרינה מייננת שימשה להשראת סנסנציה ורעב בסרום עבור תאים שקטים. עבור אינדוקציה של senescence, ישנן אפשרויות מרובות זמינות ויש הטרוגניות משמעותית ביניהן 41,42,46. נכון לעכשיו, אין שיטה senescent כי הוא נחשב "הפיזיולוגי ביותר", ולכן הבחירה של משרה senescent מבוסס במידה רבה על ההקשר של הניסוי. עם זאת, ניסויים שמטרתם לקבוע תופעה כללית על senescence מומלץ להשתמש לפחות שני משרי סנסנט שונים. דיון בטווח הפרדיגמות של סנסנציה הוא מעבר להיקף של מאמר זה, אך כמה שיטות נפוצות להשראת סנסנציה כוללות הפעלת נזק לדנ"א (IR, דוקסורוביצין, תשישות משוכפלת), ביטוי חלבונים אונקוגניים (HRAS, BRAF) ושיבוש תפקוד המיטוכונדריה2.
בנוסף לבחירה של משרה סנסנטי, הבחירה של תאי בקרה היא שיקול חשוב לא פחות. תאים סנסנטיים נמצאים, מעצם הגדרתם, תחת מעצר גדילה בלתי מוגבל בזמן, ולכן לעתים קרובות נבחרת השוואה לתאים אחרים שנעצרו על ידי גדילה. עבור pSILAC, תאים שנעצרו במחזור התאים עדיפים בדרך כלל מכיוון שהם אינם משתכפלים ולכן קל יותר להשתמש בהם לחישובי זמן מחצית חיים של חלבון47. עם זאת, מאחר שתאים בתרבית ישמרו לעתים קרובות על חלק מהתאים המתחלקים, חשוב שהשיטות המשמשות לגרימת עצירת מחזור התאים ייצרו תגובה הומוגנית ככל האפשר כדי למזער את השגיאה של תאים שעדיין מתרבים. כדי לחשב את שיעורי הפירוק של חלבונים עבור תאים מחזוריים באמצעות pSILAC נדרשים חישובים נוספים כדי לפצות על הקצב שבו חלבון מדולל לתאי בת27. עם זאת, מעצר צמיחה שקט עצמו אינו נטול סיבוכים. ישנן שתי שיטות כלליות למעצר מחזור התא: מניעת סרום ועיכוב מגע48. לא כל התאים יכולים להיות שקטים באמצעות עיכוב מגע, אם כי כמה פיברובלסטים הוכחו כמפגינים שקט לאחר מספר ימים של culturing49. שיטה זו השתמשה בחסך סרום מכיוון שהיא משמשת בדרך כלל יותר להשוואות של תאים סנסנטיים, אם כי היא דורשת שהתא הסנסנטי יהיה מקופח באופן דומה בסרום להשוואות מדויקות. הסרום מפעיל את קומפלקס ה-mTOR, ולכן לחסך בסרום יש מספר השפעות במורד הזרם על התא בנוסף למעצר מחזור התא50. יש לציין כי הודגם כי תאים סנסנטיים מציגים SASP מופחת עם מחסור בסרום או עיכוב mTOR51,52.
נקודה חשובה נוספת שיש לקחת בחשבון ב- pSILAC היא כמה נקודות זמן לבדוק. פרוטוקול זה אסף תאים בנקודת זמן אחת (3 ימים של תיוג קל או כבד), מה שמפשט באופן משמעותי את הניתוח המתקבל. בחירת נקודת הזמן צריכה להתבסס על מטרת הניסוי. לצורך ניתוח גלובלי, 3 ימים צפויים ללכוד את רוב החלבונים, אם כי בנקודת זמן זו לא ניתן למדוד את זמן מחצית החיים של חלבונים קצרי מועד שמתחלפים לחלוטין תוך 3 ימים (כל אות האור הולך לאיבוד). לעומת זאת, חלבונים בעלי תוחלת חיים ארוכה עם תחלופה מועטה מאוד ב-3 ימים גם הם קשים לכימות ולעתים קרובות מופיעים כבעלי זמן מחצית חיים גדול במיוחד (לפי סדר השבועות) שהם בדרך כלל רק תוצאה של הצטברות אותות כבדה קטנה מאוד. בשל הקשר הלא ליניארי ביחס בין אותות פפטידים כבדים וקלים לעומת אחוז החלבון המסונתז החדש בנקודות זמן קצרות וארוכות יותר, ניתן לשפר את כמות מחצית החיים על ידי הוספת נקודות זמן תיוג נוספות. עבור השוואות יחסיות בין שני מצבי תאים, כמו בפרוטוקול זה, ייתכן שזמן מחצית חיים משוער יספיק, אך ניתן להשתמש בנקודות זמן נוספות כדי לשפר את הדיוק הכמותי.
פרוטוקול זה מתאר כיצד לבצע ניתוח מבוסס DDA לא ממוקד של תחלופת חלבונים. עם זאת, חישובי תחלופת החלבונים יכולים להיות מיושמים באופן כללי על כל ערכת רכישה המסוגלת להפיק את השפע היחסי של זוגות פפטידים כבדים וקלים. לדוגמה, שיטות מבוססות MS2 כגון רכישה בלתי תלויה בנתונים (DIA/SWATH) יכולות להיות מיושמות גם לחישוב שיעורי תחלופה בהצלחה53. בנוסף, ניתן להשתמש במכשור ובצינורות תוכנה שאינם אלה המתוארים בפרוטוקול זה כדי לבצע ניתוח DDA, זיהוי חלבונים וכימות חלבונים. בעת שימוש בפלטפורמות תוכנה לכימות חלבונים כגון Skyline כדי לחלץ אזורי שיא פפטידיים, מומלץ לבדוק ידנית כרומטוגרמות יונים שחולצו בסביבת העבודה של המסמך, לזהות פסגות ששולבו בטעות ופסגות לא כמותיות, ולאצור את המסמך בהתאם. אוסף נרחב של הדרכות זמין באינטרנט עבור Skyline (skyline.ms).
pSILAC מייצג את אחת השיטות האידיאליות ביותר לכימות גלובלי של זמן מחצית חיים של חלבון בתאים בתרבית עקב ריבוב מעולה (כיסוי פרוטאום) ותפוקה. בעוד ש- pSILAC אינו מספק שיעורים ישירים של סינתזה או השפלה, מכיוון שהשינוי באות קל וכבד נובע ממפגש של גורמים, pSILAC שימושי מאוד להשוואות בין תנאים וסוגי תאים שונים. שיטות בעלות תפוקה נמוכה מתחלקות לעתים קרובות לשני סוגים: 1) טיפול בתאים עם ציקלוהקסימיד כדי לחסום סינתזה וקציר של חלבונים במרווחי זמן לאחר תוספת לניטור ריקבון, או 2) טיפול בתאים עם מעכב של ריקבון חלבונים וקציר במרווחי זמן לאחר תוספת כדי לעקוב אחר הצטברות החלבון, ובכך להסיק את שיעורי דעיכת החלבון. המגבלה של שתי השיטות היא שטיפולים כאלה יגרמו בהכרח לשינויים מהותיים בפיזיולוגיה התאית. לעומת זאת, pSILAC אינו דורש התערבות משמעותית ובאופן תיאורטי אין לו השפעות ניתנות לזיהוי על הפיזיולוגיה התאית מכיוון שחומצות אמינו איזוטופיות נבדלות בנייטרון יחיד בלבד ממקבילותיהן הלא איזוטופיות. לפיכך, השיטה המתוארת כאן עבור pSILAC מייצגת פרוטוקול פשוט למדידה גלובלית של זמן מחצית החיים של החלבון הפיזיולוגי ביותר בתאים שאינם מתחלקים.
לשינויים בתחלופת חלבונים יש קשר הדוק להזדקנות, למחלות הקשורות לגיל, לניוון עצבי ולאריכות ימים 54,55. פרוטוקול זה מתאר שיטה לחקור את הקשרים האלה באמצעות תיוג איזוטופים יציב של חומצות אמינו בתרבית תאים כדי למדוד את שיעורי תחלופת החלופה של חלבונים בתאי סנסנציה. עם זאת, קיימות שיטות מקבילות רבות לביצוע מחקרים בהקשר של הזדקנות וניוון עצבי in vivo באורגניזמים שלמים כגון עכברים. ואכן, מחקרים אלה הדגישו את החשיבות של מדידת שיעורי תחלופת חלבונים בהקשר של מחלות הקשורות לגיל 56,57,58,59.
במחקר זה, חלבונים ריבוזומליים וחלבונים המתגוררים ברשתית האנדופלסמית בלטו כשתי קטגוריות של חלבונים עם ירידה ועלייה במחצית החיים בתאי הסנסציה, בהתאמה. בעוד שניתוח נוסף של רמות מצב יציב נדרש למסקנות סופיות, תוצאות אלה מצביעות עוד יותר על כך שתאים סנסנטיים עשויים לווסת באופן ייחודי את התרגום באמצעות ירידה בחצי החיים של חלבונים ריבוזומליים. בהמשך, יישום גישות יציבות לתיוג איזוטופים כדי לחקור את הקשר בין סנסנציה תאית לניוון עצבי in vivo במודלים של עכברים יהיה הרחבה מבטיחה של גישת תיוג האיזוטופים המתוארת על ידי פרוטוקול זה.
גילויים
למחברים אין גילויים.
תודות
עבודה זו נתמכה על ידי המכונים הלאומיים לבריאות (NIH) ותוכנית המחקר התוך-גופית (IRP), המכון הלאומי להזדקנות (NIA). נ.ב. נתמך על ידי מענקי דחף אריכות ימים, ותוכנית החוקרים של המשרד לתוספי תזונה (ODS). איור 1 נוצר עם BioRender.com.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אצטוניטריל (בדרגת LC-MS) | Grainger | AH015 | |
| אמוניום ביקרבונט | Millipore-Sigma | 9830 | |
| אנטיביוטיקה-אנטי-פטריית (100x) | ThermoFisher | ערכת | |
| ThermoFisher | 23227 | ||
| Dithiothreotol (DTT) | Sigma | D9779 | |
| DMEM, גלוקוז גבוה, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| סרום בקר עוברי, מוסמך, מומת בחום | ThermoFisher | 10082147 | |
| חומצה פורמית | סיגמא | 27001 | |
| Gammacel 40 Exactor | הטוב ביותר Theratronics | Cesium Irradiator לתאים | |
| GlycoBlue | ThermoFisher | AM2238 | |
| יודואצטמיד (IAA) | Sigma | I1149 | |
| IMR-90 רגיש לאור IMR-90 פיברובלסטים ראשוניים של ריאות | ATCC | CCL-186 | |
| iRT ערכת (זמן שמירה באינדקס) | Biognosys | Ki-3002-2 | תקני פפטיד זמן שמירה באינדקס |
| איזופרופנול | ThermoFisher | 423835000 | |
| מדע | מטריצת | קמעקמע Daemon 2.8 | תוכנת חיפוש מסד נתונים פרוטאומי |
| Maxima Reverse Transcritase (200 U/µ L) | ThermoFisher | EP0742 | |
| MEM תמיסת חומצות אמינו לא חיוניות (100x) | ThermoFisher | 11140050 | |
| Nano LC System | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB מיצוי פאזה מוצקה Cartirdges | Waters | 186000383 | |
| Orbitrap ספקטרומטר מסה | ThermoFisher | Q Exactive HF Orbitrap | |
| פנול/כלורופורם/איזואמיל אלכוהול (25:24:1), 100 מ"מ EDTA, pH 8.0 | ThermoFisher | 327110025 | |
| פוספט חוצץ מלח (PBS) | |||
| Pierce SILAC (טריפסין) -DMEM | ThermoFisher | A33972 | |
| QuantStudio 6 מערכת PCR בזמן אמת | ThermoFisher | ||
| פריימר | אקראיThermoFisher | SO142 | |
| Senescence β-Galactosidase Staining Kit | Cell Signaling | 9860 | |
| Skyline | אוניברסיטת וושינגטון | Skyline-Daily v21.2.1.424 | תוכנה פרוטאומית Qantiative חינמית וקוד פתוח. זמין באמבט מים www.skyline.ms |
| Sonicator | Branson | CPX-952-516R | |
| TRIzol Reagent | ThermoFisher | 15596018 | מכונה פנול בטקסט; מסוכן |
| TRYPle Express | ThermoFisher | 12605010 | |
| Trypsin (דרגת ריצוף) | Promega | V5113 | |
| TURBO Dnase (2U/uL) | ThermoFisher | AM2238 | |
| אוריאה | ThermoFisher | 29700 | |
| מים (דרגת LC-MS) | גריינגר | AH365 |
מקורות
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
הדפסות חוזרות והרשאות
