פרוטוקול זה מתאר שיטה מקיפה להערכת הפעלת קספאז (קספאז-1, קספאז-3, קספאז-7, קספאז-8, קספאז-9 וקספאז-11) בתגובה הן למודלים במבחנה והן ב-in vivo (בעכברים) של זיהום, עלבונות סטריליים וסרטן כדי לקבוע את התחלתם של מסלולי מוות תאי, כגון פירופטוזיס, אפופטוזיס, נקרופטוזיס ו-PANoptosis.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
הערכת הפעלת קספז להערכת מוות מולד של תאי מערכת החיסון
במאמר זה
סיכום
תקציר
חסינות מולדת מספקת את קו ההגנה הראשון הקריטי בתגובה לפתוגנים ולעלבונות סטריליים. מרכיב מכניסטי מרכזי בתגובה זו הוא התחלת מוות תאי מתוכנת חיסוני מולד (PCD) כדי לחסל תאים נגועים או פגומים ולהפיץ תגובות חיסוניות. עם זאת, עודף PCD קשור דלקת ופתולוגיה. לכן, הבנת ההפעלה והוויסות של PCD היא היבט מרכזי באפיון תגובות חיסוניות מולדות ובזיהוי מטרות טיפוליות חדשות על פני ספקטרום המחלה.
פרוטוקול זה מספק שיטות לאפיון הפעלת PCD חיסונית מולדת על ידי ניטור קספזות, משפחה של פרוטאזות תלויות ציסטאין הקשורות לעתים קרובות למסלולי PCD מגוונים, כולל אפופטוזיס, פירופטוזיס, נקרופטוזיס ו- PANoptosis. דיווחים ראשוניים אפיינו את קספאז-2, קספאז-8, קספאז-9 וקספאז-10 כקספזות יוזמות ואת קספאז-3, קספאז-6 וקספאז-7 כקספזות משפיעות באפופטוזיס, בעוד שמחקרים מאוחרים יותר מצאו שהקספזות הדלקתיות, קספאז-1, קספאז-4, קספאז-5 וקספאז-11, מניעות פירופטוזיס. כיום ידוע כי קיימת הצלבה נרחבת בין הקספזות לבין מולקולות אחרות של מערכת החיסון המולדת ומוות תאי על פני מסלולי PCD שהוגדרו קודם לכן, מה שזיהה פער ידע מרכזי בהבנה המכניסטית של חסינות מולדת ו-PCD והוביל לאפיון של PANoptosis. PANoptosis הוא מסלול PCD דלקתי חיסוני מולד ייחודי המווסת על ידי קומפלקסים של PANoptosome, המשלבים רכיבים, כולל קספזות, ממסלולי מוות תאים אחרים.
כאן ניתנות שיטות להערכת הפעלת קספזות בתגובה לגירויים שונים. שיטות אלו מאפשרות אפיון של מסלולי PCD הן במבחנה והן in vivo, כאשר קספזות פעילות עוברות מחשוף פרוטאוליטי שניתן להמחיש על ידי כתם מערבי באמצעות נוגדנים אופטימליים ותנאי כתש. נקבעו פרוטוקול וזרימת עבודה מערבית המאפשרים הערכה של הפעלה של קספזות מרובות מאותה אוכלוסייה סלולרית, ומספקים אפיון מקיף של תהליכי PCD. שיטה זו יכולה להיות מיושמת על פני תחומי מחקר בפיתוח, הומאוסטזיס, זיהום, דלקת וסרטן כדי להעריך מסלולי PCD לאורך תהליכים תאיים בבריאות ובמחלות.
מבוא
מערכת החיסון המולדת פועלת כקו ההגנה הראשון במהלך זיהום ובתגובה לגירויים סטריליים, כגון פגיעה ברקמות ושינויים בהומאוסטזיס. חיישנים חיסוניים מולדים על פני התא ובציטופלסמה מגיבים לדפוסים מולקולריים הקשורים לפתוגן או נזק (PAMPs או DAMPs, בהתאמה) כדי להפעיל מסלולי איתות דלקתיים ותגובות תאיות. אחד התהליכים המרכזיים של התגובה החיסונית המולדת הוא השראת מוות תאי כדי להסיר תאים נגועים או פגומים ולהניע תגובות חיסוניות מולדות ונרכשות נוספות. מוות תאי מתוכנת (PCD) הוא תהליך שמור מאוד בין מינים, מה שמדגיש את חשיבותו האבולוציונית כמנגנון חיסוני מולד.
ישנם מספר מסלולי PCD חיסוניים מולדים שיכולים להיות מופעלים בכל סוגי התאים. קספזות הן משפחת מפתח של פרוטאזות תלויות ציסטאין שהשתמרו מאוד, תוך תאיות ותלויות ציסטאין, שהן קריטיות במסלולי PCD רבים, כולל מסלול אפופטוזיס לא דלקתי מסורתי, כמו גם מסלולי PCD דלקתיים כמו פירופטוזיס, נקרופטוזיס ו-PANoptosis 1,2,3,4,5 . ישנם 11 קספזות אנושיות ו -10 קספזות מורין המוגדרות היטב, כמו גם פסאודו-קספזות שעשויות להיות פונקציונליות, ורובן מבוטאות באופן מכונן כפרו-קספזות מונומריות או דימריות לא פעילות הדורשות מחשוף להפעלה 6,7. Caspases מכילים גם תחומים חשובים עבור גיוס והיווצרות של מתחמי multiprotein. אלה כוללים את תחום ההפעלה והגיוס של קספאז (CARD), שניתן למצוא בקספאז-1, קספאז-2, קספאז-4, קספאז-5, קספאז-9 וקספאז-11, או תחום אפקט המוות (DED), שנמצא בקספאז-8 ובקספאז-10. הן באמצעות הפעילות הפרוטאוליטית שלהם והן באמצעות יכולתם ליצור קומפלקסים של מולטי-חלבונים, קספזות הן מניעים קריטיים של PCD חיסוני מולד.
תפקידן של קספזות ב-PCD של מערכת החיסון המולדת זוהה לראשונה באפופטוזיס, כאשר הקספזות היוזמות, קספאז-2, קספאז-8, קספאז-9 וקספאז-10, מפעילות את קספזות התליינים, קספאז-3, קספאז-6 וקספאז-7, כדי לגרום למוות תאי 8,9,10,11,12. קספזות יוזמות יכולות להיות מופעלות על ידי מפל איתות מגוון; המסלול החיצוני מפעיל את קספאז-8 באמצעות איתות קולטן מוות חוץ-תאי המושרה על ידי ליגנד, והמסלול הפנימי מפעיל את קספאז-9 באמצעות הפרעה לשלמות המיטוכונדריה13. קספזות יוזמות מופעלות מנתקות את המקשר המפריד בין תת-היחידות הקטליטיות הגדולות והקטנות של קספזות התליין כדי לייצר את צורתן הפעילה. לאחר מכן, קספזות התליין קורעות את הסובסטרטים שלהן כדי לפרק את התא, וכתוצאה מכך מתפרקת הדנ"א, ממברנות מפוצלות, פיצול גרעיני ושחרור גופים אפופטוטיים14,15. תהליך זה מסתיים בדרך כלל בצורה לא ליטית ולא דלקתית של מוות תאי כאשר הוא יחד עם פינוי מיידי של התאים הגוססים על ידי אפרוציטוזה16. עם זאת, פגמים efferocytosis או חוסר תאים phagocytic יכול להוביל הצטברות של תאים אפופטוטיים, אשר לאחר מכן לעבור מוות תאים ליטיים ודלקתיים17,18.
הקספזות הדלקתיות, כולל קספאז-1 (אדם ועכבר), קספאז-4 וקספאז-5 (אדם) וקספאז-11 (עכבר), התגלו כמופעלות במהלך צורה של PCD (III-PCD) דלקתי של מערכת החיסון המולדת הנקראת פירופטוזיס. הפעלת קספאז-1 קשורה להיווצרות של דלקתיות, שהן קומפלקסים רב-חלבוניים המכילים חיישן חיסוני מולד ציטוסולי, מולקולת מתאם (חלבון דמוי גרגיר הקשור לאפופטוזיס המכיל CARD [ASC]) וקספאז-1. היווצרות קומפלקס זה מאפשרת לקספאז-1 לעבור אוטופרוטאוליזה בתיווך קרבה כדי לשחרר את צורתו הפעילה, אשר יכולה לבקע את מצעי המטרה כולל הציטוקינים מעודדי הדלקת אינטרלוקין (IL)-1β ו- IL-18 ומולקולה יוצרת הנקבוביות Gasdermin D (GSDMD)19,20,21,22,23 . קספאז-11, קספאז-4 וקספאז-5 יכולים גם להפעיל GSDMD ללא היווצרות מעלה הזרם של הדלקתיות לאחר חישה של PAMPs כגון ליפופוליסכריד (LPS)19,20. קספזות אלה עוברות דימריזציה ואחריה אוליגומריזציה ומחשוף עצמי להפעלה עם קשירה ל- LPS ציטוסולי, מה שמוביל להפעלה דלקתית לא קנונית 24,25,26 והפעלת קספאז-1 באופן פנימי לתאים כדי לגרום להבשלת IL-1β ו- IL-18 20. ההבשלה והשחרור של ציטוקינים מעודדי דלקת אלה מאפיינים קספזות אלה כ"דלקתיות". בנוסף, נמצא כי הקספאז-8 האפופטוטי מתמקם בדלקת, ומספק קשר בין תהליכים אפופטוטיים ופירופטוטיים. מחקרים מצאו כי קספאז-8 אפופטוטי הוא גם קריטי לוויסות צורה אחרת של PCD הנקראת נקרופטוזיס. אובדן קספאז-8 גורם לאינטראקציה ספונטנית של קולטן סרין-תראונין קינאז 3 (RIPK3) בתיווך שושלת מעורבת קינאז דמוי תחום פסאודוקינאז (MLKL) כדי להניע את מסלול III-PCD של נקרופטוזיס 27,28,29,30,31,32,33,34,35.
בעוד שקספזות סווגו בעבר כ"אפופטוטיות" או "דלקתיות" בהתבסס על סוג המוות התאי שהן יוזמות, עדויות הולכות וגדלות מצביעות על כך שיש הצלבה נרחבת בין מסלולי PCD של מערכת החיסון המולדת דרך קספזות 3,4. לדוגמה, הקספאז-1 הדלקתי מדלקת קוטע את הקספאז-7 האפופטוטי באתר ההפעלה הקנוני שלו34. הפעלת קספאז-1 יכולה גם להוביל לפיצול של מצעים אפופטוטיים כגון פולי(ADP-ריבוז) פולימראז 1 (PARP1)36. בתאים חסרי GSDMD, קספאז-1 יכול גם לבקע קספאז-337,38. בנוסף, קספאז-3 אפופטוטי קנוני יכול לבקע gasdermin E (GSDME) כדי לגרום PCD17,18 וגם מעבד GSDMD לתוך צורהלא פעילה 40. יתר על כן, גיוס קספאז-8 לקומפלקס הדלקתי נצפה 39,40,41,42,43,44,45, וקספאז-8 הוא וסת מרכזי של הפעלה דלקתית קנונית ולא קנונית 39. ישנם גם תפקידים חופפים ומיותרים עבור קספאז-8 וקספאז-1 במצבים דלקתיים רבים, ו-PCD חיסוני מולד המאופיין בהפעלת רכיבים פירופטוטיים, אפופטוטיים ונקרופטוטיים, מתרחש על פני ספקטרום המחלה 39,46,47,48,49,50.
בהתבסס על קשר גומלין זה בין קספזות דלקתיות ואפופטוטיות, זוהה פער מרכזי בהבנה המכניסטית של חסינות מולדת ו- PCD, מה שהוביל לגילוי PANoptosis. PANoptosis היא צורה ייחודית של III-PCD המופעלת בתגובה לפתוגנים, PAMPs, DAMPs ושינויים בהומאוסטזיס ומווסתת על ידי PANoptosomes - קומפלקסים מקרומולקולריים רבגוניים המשלבים רכיבים ממסלולי מוות תאי אחרים 44,50,51,52,53,54,55 . מכלול ההשפעות הביולוגיות ב-PANoptosis אינו יכול להיות מוסבר באופן אינדיבידואלי על ידי פירופטוזיס, אפופטוזיס או נקרופטוזיס בלבד 3,4,35,36,39,46,47,48, שכן PANoptosis מאופיין בהפעלה של קספזות מרובות, כולל קספאז-1, קספאז-11, קספאז-8, קספאז-9, קספאז-3 ו/או קספאז-7, בהתאם להקשר 44,48,49,50,51,52,53,54,56,57,58,59,60,61,62 . PANoptosis היה מעורב יותר ויותר במחלות זיהומיות ודלקתיות, כמו גם בסרטן וטיפולים בסרטן 3,4,35,36,39,44,46,47,48,49,50,51,52,53 ,54,56
,57,58,59,60,61,62,63,64,65,66.
בהתחשב בתפקיד החיוני של קספזות על פני מסלולי מוות תאי, כולל אפופטוזיס, פירופטוזיס, נקרופטוזיס, ו PANoptosis, חשוב לפתח טכניקות כדי לאפיין את ההפעלה שלהם ולהבין את המורכבות המלאה של מסלולי PCD. הפרוטוקול כאן מפרט שיטה לגרות תאים ולמדוד את ההפעלה הבאה של קספזות (איור 1). שיטה זו ממנפת את המחשוף הפרוטאוליטי של קספזות, הנדרש בדרך כלל להפעלתן, כאמצעי לחקור אותן. באמצעות כתמים מערביים, ניתן לקבוע את גודל החלבון, המאפשר הדמיה ברורה והתמיינות של פרו-קספזות לא פעילות וצורתן הפעילה והשסועה.
היתרונות העיקריים של פרוטוקול זה הם: 1) יכולתו להעריך את ההפעלה של מספר קספזות במקביל מאוכלוסייה אחת של תאים אנדוגניים כדי לקבוע בצורה מדויקת יותר את הפעלת PCD, 2) שימוש בטכניקות מעבדה פשוטות יחסית שאינן דורשות הכשרה מקיפה או ציוד יקר. פרוטוקולים קודמים השתמשו בכתם מערבי, בכתבים פלואורסצנטיים או בצביעת נוגדנים כדי לעקוב אחר הפעלת קספז בתרביות, בליזטים של תאים ורקמות, בתאים שלמים באמצעות מיקרוסקופיה, וב-in vivo 67,68,69,70,71, אך טכניקות אלה בדרך כלל מנטרות רק קספזה אחת או שתיים בדגימה. יתר על כן, בעוד שמצעים פפטידים סינתטיים המכילים אתרי מחשוף קספז הזורמים על המחשוף שימשו לניטור הפעלת קספז בליזטים של תאים או רקמות69, מצעים אלה יכולים לעתים קרובות להיבקע על ידי יותר מקספזה אחת, מה שמקשה לקבוע את ההפעלה הספציפית של קספזות בודדות במערכת זו. בנוסף, השימוש בכתם מערבי במקום שימוש בכתבים פלואורסצנטיים או שיטות מבוססות תגיות אחרות מאפשר לחוקרים להשתמש בתאים אנדוגניים במקום ליצור קווי תאים ספציפיים עם גנים של כתב. ישנם יתרונות רבים לשימוש בתאים אנדוגניים, כולל העובדה שקווי תאים אימורטליים רבים חסרים במולקולות מפתח של מוות תאי72,73, מה שעלול להשפיע על התוצאות. בנוסף, שימוש בתאים אנדוגניים מאפשר הערכה של סוגי תאים מגוונים, כגון מקרופאגים, תאי אפיתל ותאי אנדותל, ולא שושלת אחת. המלטות מערביות הן גם טכניקה פשוטה יחסית וחסכונית שניתן לבצע במעבדות ברחבי העולם ללא צורך בציוד גדול ויקר או התקנות מסובכות.
פרוטוקול זה מיושם באופן נרחב ברחבי הביולוגיה כדי להבין הן את התפקודים התלויים במוות תאי והן את התפקודים שאינם תלויים במוות תאי של קספזות, כולל תפקידי הפיגומים שלהם ותפקודם במסלולי איתות דלקתיים אחרים74. יישום שיטה זו מאפשר גישה אחידה בחקר מסלולי PCD חיסוניים מולדים ואיתות דלקתי על פני מחלות ותנאים, וניתן להשתמש בפרוטוקול זה כדי לזהות תהליכים רגולטוריים קריטיים וקשרים מכניסטיים שיסייעו בפיתוח אסטרטגיות טיפוליות עתידיות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
השימוש בבעלי חיים והנהלים אושרו על ידי ועדת בית החולים למחקר לילדים סנט ג'וד לשימוש וטיפול בבעלי חיים.
1. הכנת הפתרונות
- הכינו מדיה מותנית L929.
- צלחת 1 × 10⁶ תאים L929 (ראה טבלת חומרים) בבקבוק תרביתרקמה בגודל 182 ס"מ 2 המכיל 50 מ"ל של מצע תרבית L929 (ראה טבלה 1 להכנת המדיה).
- לגדל את התאים באינקובטור לח ב 37 ° C עם 5% CO2.
- לאחר 7 ימים, לאסוף את supernatant, ולסנן באמצעות מסנן 0.45 מיקרומטר. הכינו 50 מ"ל aliquots (לאחסן aliquots קפוא ב -80 ° C עד 1 שנה).
- הכינו 500 מ"ל של תרבית מקרופאגים שמקורם במח עצם (BMDM) (טבלה 1).
- הכינו 500 מ"ל של אמצעי גירוי BMDM (טבלה 1).
- הכינו 500 מ"ל של מדיה לזיהום (טבלה 1).
- הכינו 100 מ"ל של חיץ 1 M Tris (טבלה 1).
- הכינו מאגר 4x נתרן דודציל סולפט (SDS) (טבלה 1).
- הכינו 1 מ"ל של 1 מ"ל 1,4-dithiothreitol (DTT, טבלה 1).
- הכינו 40 מ"ל של חיץ קספז ליזיס (טבלה 1).
- הכינו 100 מ"ל של חיץ טריס באורך 1.5 מ' (טבלה 1).
- הכן 100 מ"ל של תמיסת SDS של 10% (wt/vol) (טבלה 1).
- הכינו 50 מ"ל של חיץ 2x radiimmunoprecipitation assay (RIPA) (טבלה 1).
- הכינו תמיסת LPS במינון 5 מ"ג/מ"ל (טבלה 1).
- הכינו תמיסת ATP באורך 0.5 מ' (טבלה 1).
- הכינו את פתרונות הכתמים המערביים.
- הכינו 1 ליטר של מלאי חיץ פועל פי 5 (טבלה 1).
- הכן 1 ליטר של מלאי מאגר העברה 10x (טבלה 1).
- הכינו 1 ליטר של מלח חוצץ טריס עם Tween 20 (TBST, טבלה 1).
- הכינו 100 מ"ל של תמיסת חסימת חלב רזה 5% (wt/vol) (טבלה 1).
- הכן את פתרונות הנוגדנים העיקריים.
- הכינו 10 מ"ל של נוגדן ראשוני קספאז-1 (טבלה 1).
- הכינו 10 מ"ל של נוגדן ראשוני קספאז-11 (טבלה 1).
- הכינו 10 מ"ל של נוגדן ראשוני קספאז-3 (טבלה 1).
- הכינו 10 מ"ל של נוגדן ראשוני קספאז-7 (טבלה 1).
- הכינו 10 מ"ל של נוגדן ראשוני קספאז-8 (טבלה 1).
- הכינו 10 מ"ל של נוגדן ראשוני קספאז-9 (טבלה 1).
- הכינו 10 מ"ל של נוגדן ראשוני מצומד β-אקטין HRP (טבלה 1).
- הכן את פתרונות הנוגדנים המשניים.
- הכינו 10 מ"ל של נוגדן משני נגד ארנבים (טבלה 1).
- הכינו 10 מ"ל של נוגדן משני נגד עכבר (טבלה 1).
- הכינו 10 מ"ל של נוגדן משני נגד חולדות (טבלה 1).
2. בידוד מקרופאגים שמקורם במח עצם
הערה: עבור פרוטוקול זה, ניתן להשתמש בעכברי בר בני 6-10 שבועות עם מסלולי PCD שלמים או עכברים מוטנטיים עם מווסתי PCD, משפיעים או מולקולות בעלות עניין שנמחקו או שונו.
- הרדימו עכבר בתא CO 2 עם קצב זרימה המחליף 10%-30% מנפח הכלוב לדקה למשך2-3 דקות. לאחר מכן, בצע המתת חסד משנית, כגון פריקת צוואר הרחם. פעל בהתאם לכל ההנחיות והתקנות הספציפיות למתקן, למוסד ולממשלה בכל מקום רלוונטי.
- נתחו את העכבר כדי לאחזר את עצמות הרגליים האחוריות.
- הצמידו את העכבר לגבו כך שהבטן תהיה חשופה. יש לרסס אתנול 70% (vol/vol) כדי לעקר את הרגליים האחוריות והבטן.
אזהרה: אתנול דליק. יש להרחיק אותו מאש גלויה. - השתמש מספריים כדי לבצע חתך בקו האמצע של הבטן; המשיכו לחתוך לכיוון הרגליים כדי להפוך את עצם הירך לגלויה.
- קח את הרגל האחורית הימנית ומשוך את העור מהגוף לכיוון קו האמצע. לנתק את הרגל מהגוף על ידי קטיעת שרירי adductor לכיוון קו האמצע; לאחר מכן, חתכו את הרגל בין מפרק הירך לעמוד השדרה. לאחר מכן, חתכו את הכף מהדיסטלית לקרסול, והסירו רקמה עודפת מהעצם על ידי קילוף העור ושימוש במספריים פתוחים מעט כדי לפשוט את רקמת השוק.
- מניחים את הרגל על מגבת ספוגה אתנול 70% (vol/vol) ומנתחים את השוקה ואת עצם הירך.
- אחזו את השוקה ואת עצם הירך כל אחד עם מערכת נפרדת של מלקחיים. לחץ בעדינות על השוקה כנגד הכיוון הטבעי של מפרק הברך; זה יגרום לטיביה להישבר בברך.
- השתמש במלקחיים ובמספריים המנתחים במידת הצורך כדי להסיר את הרקמה התלויה שנותרה. שמור את השוקה לשימוש מאוחר יותר על ידי הנחתה על מגבת ספוגה אתנול.
- לאסוף את עצם הירך באותו אופן, על ידי הצמדת הברך.
- חזור על שלבים 3 ו -4 לעיל עבור רגל שמאל כדי להסיר אותה מהגוף ולנתח את השוקה ואת עצם הירך.
- רססו את העצמות באתנול 70% (vol/vol).
- נקו את העצמות על ידי הנחתן על מגבת נקייה 70% (vol/vol) ספוגה באתנול, סחיטת החלק הבשרני במגבת ושפשוף המגבת כנגד העצם כדי להסיר רקמה עודפת.
- הצמידו את העכבר לגבו כך שהבטן תהיה חשופה. יש לרסס אתנול 70% (vol/vol) כדי לעקר את הרגליים האחוריות והבטן.
- לאחר ששתי עצם הירך ושתי הטיביאס נקיות, רססו את כל ארבע העצמות באתנול 70% (vol/vol). אספו את העצמות בצלחת פטרי סטרילית ושטפו אותן עם 10 מ"ל של תרבית BMDM על ידי ניקוי עדין של המדיה בצלחת.
- מלאו מזרק 10 מ"ל במדיית תרבית BMDM טרייה 10 מ"ל וחברו מחט 25 גרם.
- להרים את השוקה באמצעות מלקחיים; לאחר מכן, חתכו את מפרק הקרסול בזווית ~ 45 מעלות.
- שוטפים את מח העצם מהשוקה.
- החזיקו את השוקה מעל צינור של 50 מ"ל, כאשר הקצה הצר של השוקה מצביע כלפי מטה. מוציאים את המדיה על השוקה מהמזרק המלא.
- הכנס את המחט (בעדינות בהתחלה) בקצה העליון של המוח והוציא את המדיה.
- הסר את המחט ולאחר מכן הכנס שוב. השתמש בלחיצות קצרות בלחץ גבוה כדי לחלק את המדיה ולהזיז את המחט לתוך המח.
- ברגע שהמדיה מתחילה לזרום החוצה מתחתית העצם, השתמשו בלחיצות קצרות בלחץ גבוה כדי להמשיך לשטוף את התאים החוצה. עקוב אחר צבע העצם בתהליך זה, וכאשר העצם לבנה, השליך אותה.
- עשה זאת עבור שני tibias.
- חזור על שלבים 5 ו -6 לעיל עבור עצם הירך, חיתוך במפרק הירך כמו השוקה נחתך במפרק הקרסול. השתמש באותו צינור של 50 מ"ל כדי לאסוף את מדיית התרבית BMDM בזמן שהמח סמוק.
- לאחר שכל ארבע העצמות נשטפו, שאפו את המח והמדיה מצינור 50 מ"ל למעלה ולמטה 3x דרך מחט 18 G על מזרק 10 מ"ל, ושטפו את צידי הצינור בכל פעם כדי לפזר את המח.
- כוונן את הנפח הסופי בצינור 50 מ"ל ל- 30 מ"ל באמצעות מדיית תרבית BMDM, וודא שהתאים מושהים היטב.
- השתמש במסננת תאים של 70 מיקרומטר כדי לסנן את מדיית תרבית BMDM מצינור 50 מ"ל.
- צלחת את תרחיף התא שנוצר, המכיל את תאי האב של מח העצם, לתוך שלוש צלחות תרבית רקמה 150 מ"מ על ידי הוספת 10 מ"ל (או ~ 20 × 106 תאים) לכל אחד. לאחר מכן, הוסף 10 מ"ל נוספים של מדיה תרבית BMDM לכל מנה. לדגור באינקובטור לח ב 37 °C (77 °F).
3. בידול BMDM וציפוי לניסויים
- לדגור את תאי אב מח עצם מצופה ב 37 ° C במשך 3 ימים. לאחר מכן, הסר כל מנה, והוסף 5-8 מ"ל נוספים של מדיה תרבית BMDM (טבלה 1). חזור לחממה ב 37 °C (77 °F).
- ביום 5 לאחר הציפוי הראשוני, מוציאים כל מנה, ומוסיפים 5 מ"ל נוספים של תרבית BMDM. חזור לחממה ב 37 °C (77 °F).
- ביום השישי, מוציאים כל מנה, ומשליכים את המדיה. לאחר מכן, להוסיף 10 מ"ל של קור (מאוחסן ב 4 ° C) PBS לשטוף פעם אחת. יש להשליך את 10 מ"ל של שטיפת PBS קרה. לאחר מכן, הוסיפו 10 מ"ל של PBS טרי וקר לכל מנה, ודגרו על כל מנה על קרח במשך 5 דקות.
- באמצעות מגרד תאים, לגרד בעדינות את התאים מכל שלוש הכלים לתוך צינור אחד 50 מ"ל. סובב בעדינות את התאים ב 270 × גרם ב 4 °C במשך 5 דקות; לאחר מכן, השליכו את הסופר-נטנט.
- הוסף 20 מ"ל של מדיה תרבית BMDM, פיפטה למעלה ולמטה כדי להשעות מחדש את הכדור, ולספור את התאים.
הערה: צפוי שכל עכבר יניב כ- 60 × 10 6-100 ×10 6 תאים. - תכננו את פריסת הלוחות של 12 בארות עבור המבחן הרצוי למוות תאי חוץ גופי /גירוי דלקתי. תכננו צלחת 1 × 10⁶ תאים לכל באר. עבור כל גירוי מתוכנן, כלול לפחות שלושה עותקים ביולוגיים, וצלחת קבוצה אחת של בארות שייקצרו בחיץ קספז ליזיס וקבוצה שנייה של בארות שייקצרו במאגר RIPA.
- צלחת 1 × 10⁶ תאים ב 1 מ"ל של מדיה תרבית BMDM לכל באר בלוחות 12 באר. תרבית לילה באינקובטור לח ב 37 מעלות צלזיוס לפני שתמשיך להערכת מוות תאים / דלקת. לאחר דגירה לילה, להסיר את התקשורת, ולהוסיף 1 מ"ל של PBS חם (37 ° C) לכל באר כדי לשטוף את התאים.
- הסר את שטיפת PBS והוסף 500 מיקרוליטר של חומר גירוי BMDM עם אנטיביוטיקה (אם אתה מבצע גירויים שאינם חיידקיים) או מדיה לגירוי BMDM ללא אנטיביוטיקה (אם אתה מבצע גירויים חיידקיים) (טבלה 1). יש לדגור במשך שעתיים לפני המעבר לשלב 4 לגירוי/זיהום חוץ גופי .
4. גירוי או הדבקת התאים
התראה: החומרים הכלולים בפרוטוקול זה עלולים להיות פתוגניים ויש לטפל בהם באמצעי הזהירות המתאימים במתקן ברמת בטיחות ביולוגית 2 (BSL2) עם אישור מהרשויות המוסדיות והממשלתיות הרלוונטיות.
- לעורר את BMDMs כדי להפעיל מוות התא עם הטריגר של עניין.
הערה: למטרות פרוטוקול זה, וירוס שפעת A (IAV), וירוס הרפס סימפלקס 1 (HSV1), Francisella novicidaו- LPS + ATP משמשים להמחשה, אך ניתן להשתמש בטריגרים אחרים.,- גירוי לדוגמה 1: הדבקה ב- IAV (A/Puerto Rico/8/34, H1N1 [PR8]) (נבנה לפי Hoffmann et al.75; הטיטר הנגיפי לקביעת ריבוי הזיהום [MOI] מחושב על ידי בדיקת פלאק בתאי MDCK):
- חשב את נפח הנגיף הדרוש להדבקה בריבוי זיהום (MOI) של 20 יחידות יוצרות פלאק (PFU) באמצעות משוואה (1) ומשוואה (2):

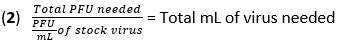
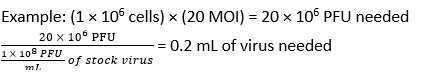
- הסר את המדיה מן BMDMs ולשטוף את התאים פעם אחת עם 500 μL של PBS. הוסף 450 μL של IAV (20 MOI) ב- DMEM עתיר גלוקוז ללא מומת חום (HI)-FBS לכל באר. יש לדגור על הצלחות בטמפרטורה של 37°C למשך שעה באינקובטור לח כדי לאפשר ספיגה.
- הסר את הצלחות והוסף 50 μL של HI-FBS. מחזירים את הצלחות לאינקובטור ב 37 מעלות צלזיוס. דגירה בסך הכל 12 שעות.
- חשב את נפח הנגיף הדרוש להדבקה בריבוי זיהום (MOI) של 20 יחידות יוצרות פלאק (PFU) באמצעות משוואה (1) ומשוואה (2):
- גירוי לדוגמה 2: הדבקה ב-HSV1 (זן HF; תרבית כמתואר קודם44; הטיטר הנגיפי לקביעת MOI מחושב על ידי בדיקת פלאק בתאי ורו):
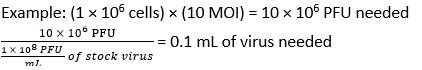
- חשב את נפח הנגיף הדרוש להדבקה ב- MOI של 10 PFU באמצעות משוואה (1) ומשוואה (2) משלב 1 בסעיף זיהום IAV לעיל.
- הסר את המדיה מה-BMDM. הוסף 450 μL של HSV1 (MOI 10) ב-DMEM עתיר גלוקוז ללא HI-FBS לכל באר. יש לדגור על הצלחות בטמפרטורה של 37°C למשך שעה באינקובטור לח כדי לאפשר ספיגה.
- הסר את הצלחות, ולהוסיף 50 μL של HI-FBS. מחזירים את הצלחות לאינקובטור ב 37 מעלות צלזיוס. דגירה בסך הכל 12 שעות.
- חשב את נפח הנגיף הדרוש להדבקה ב- MOI של 10 PFU באמצעות משוואה (1) ומשוואה (2) משלב 1 בסעיף זיהום IAV לעיל.
- גירוי לדוגמה 3: להדביק עם F. novicida (זן U112; תרבית כפי שתואר קודם44 בתנאים אירוביים ב 37 ° C ב BBL טריפטיקס מרק סויה בתוספת 0.2% L-ציסטאין במשך הלילה. לאחר מכן, תרבית את החיידקים ביחס של 1:10 ב-37°C למשך 4 שעות נוספות בתווך טרי לפני נטילת הצפיפות האופטית (OD) ב-600 ננומטר תוך שימוש בתווך הטרי כחומר ריק. ערך OD של 1 שווה ל- 1 × 10⁹ יחידות יוצרות מושבה (CFU) לכל מ"ל.)
- חשב את נפח F. novicida הדרוש להדבקה ב- MOI של 50 CFU באמצעות משוואה (3) ומשוואה (4):

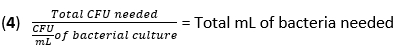
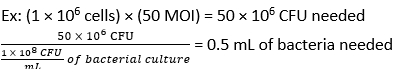
- הסר את המדיה מה- BMDM. הוסף 500 μL של F. novicida (MOI 50) במדיה לגירוי BMDM ללא אנטיביוטיקה לכל באר. דוגרים על הצלחות בטמפרטורה של 37°C למשך 4 שעות באינקובטור לח כדי לאפשר ספיגה.
- שטפו את התאים שלוש פעמים עם PBS מחומם (37°C) והוסיפו 500 μL של חומר גירוי BMDM המכיל 50 מיקרוגרם / מ"ל גנטמיצין. מחזירים את הצלחות לאינקובטור ב 37 מעלות צלזיוס. לדגור לילה (16 שעות).
- חשב את נפח F. novicida הדרוש להדבקה ב- MOI של 50 CFU באמצעות משוואה (3) ומשוואה (4):
- גירוי לדוגמה 4: גירוי עם LPS + ATP.
- הסר את המדיה מה-BMDM. הוסף 500 מיקרוליטר של חומר גירוי BMDM עם אנטיביוטיקה (טבלה 1) המכילה 100 ננוגרם/מ"ל LPS לכל באר. לדגור על הצלחות ב 37 ° C במשך 3.5 שעות באינקובטור לח.
- הוסף 5 μL של 0.5 M ATP פתרון מלאי (טבלה 1) לכל באר. מחזירים את הצלחות לאינקובטור ב 37 מעלות צלזיוס. דוגרים במשך 30 דקות.
- גירוי לדוגמה 1: הדבקה ב- IAV (A/Puerto Rico/8/34, H1N1 [PR8]) (נבנה לפי Hoffmann et al.75; הטיטר הנגיפי לקביעת ריבוי הזיהום [MOI] מחושב על ידי בדיקת פלאק בתאי MDCK):
5. איסוף הסופרנאטנט והחלבון ליזט המשולבים שישמשו לכתמי קספז מערביים
- לאחר 4 שעות, 12 שעות או 16 שעות של דגירה (העיתוי הספציפי תלוי בהדק בו נעשה שימוש), הסר את הצלחת מהאינקובטור.
- הסר 150 μL של supernatant; השליכו או שמרו זאת לניתוחי סופרנאטים אחרים (למשל, בדיקת אימונוסורבנט מקושרת אנזימים [ELISA]). אל תסיר את הסופרנטנט שנותר.
- צור את פתרון איסוף החלבונים על-ידי שילוב של 50 μL של חיץ קספז ליזה + 100 μL של חיץ SDS 4x לכל באר (טבלה 1). לאחר מכן, להוסיף 150 μL של תערובת לכל באר.
- עבור כל באר, פיפטה את התערובת למעלה ולמטה כדי לאסוף את התאים lysed ו supernatant. תוך כדי פיפט, גם לגרד את תחתית הבאר עם קצה פיפטה כדי לשבש את התאים. לאחר גירוד ו pipetting, לאסוף את החלבון lysate לתוך מסומן 1.5 מ"ל צינורות.
- השתמש בלוק חום כדי לחמם את כל הצינורות ל 100 ° C במשך 12 דקות.
- גלול כל רכיב בלתי מסיס על ידי צנטריפוגה ב 14,500 × גרם במשך 30 שניות בטמפרטורת החדר.
הערה: זוהי נקודת הפסקה – ניתן להשתמש בחלבון מהסופרנאטנט המשולב והחלבון ליזטים באופן מיידי או לאחסן בטמפרטורה של -20°C למשך עד חודשיים או בטמפרטורה של 80°C למשך עד 6 חודשים עד שהוא מוכן לשימוש.
6. איסוף החלבון ליזט לשימוש בכתמי קספז מערביים
- לאחר 4 שעות, 12 שעות או 16 שעות של דגירה (העיתוי הספציפי תלוי בהדק בו נעשה שימוש), הסר את הצלחת מהאינקובטור. להסיר את כל supernatant; השליכו או שמרו זאת לניתוחי סופרנאטנט אחרים (למשל, ELISA).
- צור את מאגר RIPA 1x על-ידי דילול תמיסת מלאי 2x RIPA (טבלה 1) בנפח שווה של מים שעברו דה-יוניזציה. לאחר מכן, הוסף טבליה אחת מעכב phosphatase וטבליה מעכב פרוטאז אחת, ולאפשר להם להתמוסס. הוסף 150 μL של 1x RIPA buffer ו- 50 μL של 4x SDS לכל באר.
- עבור כל באר, פיפטה את התערובת למעלה ולמטה כדי לאסוף את התאים lysed. תוך כדי פיפט, גם לגרד את תחתית הבאר עם קצה פיפטה כדי לשבש את התאים. לאחר גירוד ו pipetting, לאסוף את החלבון lysate לתוך מסומן 1.5 מ"ל צינורות.
- השתמש בלוק חום כדי לחמם את כל הצינורות ל 100 ° C במשך 12 דקות.
- גלול כל רכיב בלתי מסיס על ידי צנטריפוגה ב 14,500 × גרם במשך 30 שניות בטמפרטורת החדר.
הערה: זוהי נקודת הפסקה - ניתן להשתמש בחלבון ליזטים באופן מיידי או לאחסן ב -20 ° C או -80 ° C עד מוכן לשימוש.
7. ביצוע כתם מערבי באמצעות הליזטים שנאספו מה-BMDM בעקבות השלבים לעיל או מהומוגנאטים של רקמות
הערה: אם משתמשים ברקמה, ניתן להפוך אותה להומוגנית ביד או באמצעות הומוגנייזר רקמות מונע כוח. הפרוטוקול של סימפסון76 מספק תיאור מפורט של הומוגניזציה של רקמות.
- הכן מאגר ריצה אחד: שלב 200 מ"ל של מאגר חיץ ריצה 5x (טבלה 1) ו- 800 מ"ל של מים שעברו דה-יוניזציה. צור מאגר ריצה 1x זה ממש לפני כל ניסוי.
- הכינו את מכשיר האלקטרופורזה עם ג'ל פוליאקרילאמיד 12% (wt/vol) עם 10 בארות. מלא את מנגנון האלקטרופורזה במאגר ריצה 1x. לאחר מכן, הסר את מסרק הג'ל.
הערה: כדי לנתח קספאז-1, קספאז-11, קספאז-3, קספאז-7, קספאז-8 וקספאז-9 עבור כל דגימה, יהיה צורך בשישה ג'לים. - עבור גושי קספאז-1, קספאז-3, קספאז-7 וקספאז-8, תכננו להשתמש ב-30 מיקרוליטר של סופרנאטנט משולב וחלבון ליזט במאגר קספז ליזה או בהומוגנט הרקמה. עבור כתמי קספאז-11 וקספאז-9, תכננו להשתמש ב-20 מיקרוליטר של החלבון ליזט במאגר RIPA או בהומוגנט הרקמה. אם הדגימות אוחסנו בטמפרטורה של -20°C או -80°C, הפשירו אותן תחילה על קרח.
- עבור כל הדגימות, יש לחמם ל-100°C למשך 5 דקות, ולצנטריפוגה ב-14,500 × גרם למשך 30 שניות ב-4°C לפני הטעינה. לאחר מכן, טען לאט 20 או 30 μL של הדגימה לכל נתיב. הימנע מכל גלישה של דגימה לנתיבים האחרים. כדי להעריך את כל ששת הקספזות בבת אחת, השתמש באותו הליך כדי לטעון את הדגימות המתאימות לכל אחד מששת הג'לים.
- חבר את מכשיר האלקטרופורזה למקור החשמל. לאחר מכן, הגדר את ההספק ל- 80 V למשך 20 דקות כדי להתחיל את ריצת הג'ל, ולאחר מכן כוונן את ההספק ל- 130 V למשך 45-60 דקות.
- שימו לב היטב לחזית הצבע, וכבו את החשמל כאשר חזית הצבע נמצאת בתחתית הג'ל אך עדיין לא נדחפה החוצה מהג'ל.
- בזמן שהג'ל פועל, הכינו חיץ העברה 1x על ידי שילוב של 700 מ"ל של מים שעברו דה-יוניזציה, 100 מ"ל של מלאי חיץ העברה 10x (טבלה 1) ו-200 מ"ל מתנול. הפוך את הפתרון 1x לרענן בכל פעם.
הערה: יש להיזהר מכיוון שמתנול דליק. בצע את הכנת חיץ ההעברה הרחק מאש גלויה. - הסר את הג'ל ממכשיר האלקטרופורזה בעדינות באמצעות משחרר הג'ל.
- הגדר ערימת העברה אחת עבור כל ג'ל.
- הפעל קרום PVDF על ידי השרייתו במתנול למשך דקה אחת.
- הרטיבו מראש שתי פיסות נייר פילטר, הג'ל וקרום PVDF במאגר העברה למשך 5 דקות. שמור את קרום PVDF וג'ל במיכלים נפרדים במהלך דגירה זו של 5 דקות.
- הרכיבו את מחסנית ההעברה במערכת היבשה למחצה. מתחילים בצד האנודה הפלטינה התחתונה, מניחים פיסת נייר פילטר אחת, קרום PVDF, הג'ל, ולבסוף פיסת נייר סינון אחת. גלגלו בעדינות החוצה או לחצו החוצה בועות אוויר בין השכבות, וסגרו את החלק העליון של המערכת. ודא כי כיסוי הבטיחות מאובטח לפני שתמשיך הלאה.
- התחבר למקור החשמל. הגדר את המתח ל- 25 V למשך 45 דקות.
- לאחר השלמת ההעברה, לפרק את ערימת ההעברה, ולאסוף את הממברנה; מניחים אותו בצלחת פטרי מרובעת (מגש דגירה).
- בצע חסימת ממברנה על-ידי הוספת 15 מ"ל של תמיסת חלב רזה 5% (wt/vol) (טבלה 1). יש לדגור על הממברנה על שייקר נדנדה במהירות 50 סל"ד עד 70 סל"ד בטמפרטורת החדר למשך שעה אחת.
הערה: זוהי נקודת הפסקה – ניתן להסיר את הממברנה לאחר שעה או לאחסן בתמיסת חסימה ב -4 מעלות צלזיוס למשך הלילה. - לאחר שעה או דגירה של לילה, הסר את הפתרון החוסם. הוסף 10 מ"ל של תמיסת הנוגדנים המדוללת (נוגדן אנטי-קספאז-1, נוגדן אנטי-קספאז-11, נוגדן משולב אנטי-קספאז-3 ונוגדן אנטי-קשס-3, נוגדן משולב אנטי-קספאז-7 ונוגדן אנטי-קשס-7, נוגדן משולב נגד קספאז-8 ונוגדן אנטי-קשס-8, או נוגדן אנטי-קספאז-9) (טבלה 1). מניחים על שייקר נדנדה ב-50 עד 70 סל"ד כדי לדגור בטמפרטורת החדר למשך שעתיים או ב-4 מעלות צלזיוס למשך הלילה (16 שעות).
- אספו את תמיסת הנוגדנים (עשו שימוש חוזר עד פי 3 או השליכו אותה), ושטפו על ידי הוספת 15 מ"ל TBST (טבלה 1) לממברנה על שייקר נדנדה ב-50 סל"ד עד 70 סל"ד בטמפרטורת החדר למשך 10 דקות. מחק את TBST.
- חזור על הכביסה עם 15 מ"ל TBST לאחר שלב 14 בסך הכל 3x.
- הוסף 10 מ"ל של תמיסת נוגדנים מצומדת משנית מדוללת של HRP (אנטי-ארנב עבור כתמים המוכתמים בנוגדנים ראשוניים נגד קספאז-3, קספאז-7, קספאז-8 או קספאז-9; אנטי-עכבר עבור כתמים המוכתמים בנוגדן ראשוני נגד קספאז-1; אנטי-חולדה עבור כתמים המוכתמים בנוגדן ראשוני נגד קספאז-11) (טבלה 1). יש לדגור על שייקר נדנדה ב-50 סל"ד עד 70 סל"ד בטמפרטורת החדר למשך שעה.
- הסר את תמיסת הנוגדנים, ושטוף על ידי הוספת 15 מ"ל TBST לממברנה על שייקר נדנדה ב 50 סל"ד עד 70 סל"ד בטמפרטורת החדר במשך 10 דקות. מחק את TBST.
- חזור על הכביסה עם 15 מ"ל של TBST לאחר שלב 17 בסך הכל 3x.
- הוסף 10 מ"ל של מצע HRP בעל רגישות גבוהה לממברנה. תן לו לשבת בטמפרטורת החדר בחושך במשך 1 דקה.
- מוציאים את הקרום מהמצע. המשך ישירות להדמיה, באמצעות מכונת imager chemiluminescence עם מגש טרנס לבן אביזר מוכנס במיקום התחתון. חשוף את הממברנה באמצעות מצב חשיפה אוטומטי (בדרך כלל ~ 1-2 דקות של זמן חשיפה).
- באמצעות הממברנה מהקספאז-9 או קספאז-11 (כלומר, קרום עם דגימות RIPA lysate), מוסיפים 10 מ"ל של חיץ הפשטה, ודגרים על שייקר נדנדה ב-50 סל"ד עד 70 סל"ד בטמפרטורת החדר למשך 5 דקות.
- השליכו את חיץ ההפשטה ושטפו על ידי הוספת 15 מ"ל TBST לממברנה על שייקר נדנדה ב-50 סל"ד עד 70 סל"ד בטמפרטורת החדר למשך 10 דקות. מחק את TBST.
- חזור על הכביסה עם 15 מ"ל TBST לאחר שלב 22 בסך הכל 3x.
- בצע חסימת ממברנה על ידי הוספת 15 מ"ל של תמיסת חלב רזה 5% (wt/vol). יש לדגור על הממברנה על שייקר נדנדה במהירות 50 סל"ד עד 70 סל"ד בטמפרטורת החדר למשך שעה אחת.
הערה: זוהי נקודת הפסקה – ניתן להסיר את הממברנה לאחר שעה או לאחסן בתמיסת חסימה ב -4 מעלות צלזיוס למשך הלילה. - לאחר שעה או דגירה של לילה, הסר את הפתרון החוסם. הוסף 10 מ"ל של תמיסת נוגדנים מדוללת נגד β אקטין (HRP-מצומד). מניחים על שייקר נדנדה ב-50 סל"ד עד 70 סל"ד כדי לדגור בטמפרטורת החדר למשך שעה וחצי.
- הסר את תמיסת הנוגדנים ושטוף על ידי הוספת 15 מ"ל TBST לממברנה על שייקר נדנדה ב 50 סל"ד עד 70 סל"ד בטמפרטורת החדר במשך 10 דקות. מחק את TBST.
- חזור על הכביסה עם 15 מ"ל TBST לאחר שלב 26 בסך הכל 3x.
- הוסף 10 מ"ל של מצע HRP בעל רגישות סטנדרטית לממברנה. תן לו לשבת בטמפרטורת החדר בחושך במשך 1 דקה.
- המשך ישירות להדמיה, באמצעות מכונת imager chemiluminescence עם מגש טרנס לבן אביזר מוכנס במיקום התחתון. חשוף את הממברנה באמצעות מצב חשיפה אוטומטית (בדרך כלל <1 דקות של זמן חשיפה).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
PANoptosis נצפתה בתגובה לזיהומים חיידקיים, נגיפיים ופטרייתיים רבים וגירויים דלקתיים אחרים, כמו גם בתאים סרטניים 44,48,49,50,51,52,53,54,56,57,58,60,61,62
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
ניטור הפיצול וההפעלה של הקספז מספק את אחת התמונות המקיפות ביותר של הפעלת PCD חיסוני מולד כחלק מהתגובה החיסונית המולדת. הפרוטוקול המתואר כאן מדגים אסטרטגיה לניטור הפעלת קספז בתגובה לזיהומים IAV, HSV1 ו- F. novicida והטריגר הסטרילי LPS + ATP, אך גירויים רבים אחרים יכולים לגרום ל- PCD וניתן להשתמש בהם בשיטה זו, כפי שהוכח במספר פרסומים 44,48,49,50,51,52,53,54,56
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
ט.-ד.ק. היא יועצת לפייזר.
תודות
אנו מודים לחברי מעבדת Kanneganti על הערותיהם והצעותיהם, ומודים ל- J. Gullett, PhD, על התמיכה בעריכה מדעית. העבודה במעבדה שלנו נתמכת על ידי מענקי המכונים הלאומיים לבריאות (NIH) AI101935, AI124346, AI160179, AR056296 ו- CA253095 (ל- T.-D.K.) ועל ידי ארגוני הצדקה האמריקאים הקשורים ללבנון הסורית (ל- T.-D.K). התוכן הוא באחריותם הבלעדית של המחברים ואינו מייצג בהכרח את הדעות הרשמיות של המכונים הלאומיים לבריאות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.45 μ מסנן m | Millipore | SCHVU05RE | |
| מזרק 10 מ"ל | BD Biosciences | 309604 | |
| ג'ל פוליאקרילאמיד 12% עם 10 בארות | ביו-ראד | 4561043 | |
| צלחת 12 בארות | קורנינג | 07-200-82 | |
| מחט 18 גרם | BD Biosciences | 305195 | |
| מחט 25 גרם | BD Biosciences | 305122 | |
| שפופרת 50 מ"ל | פישר סיינטיפיק | 50-809-218 | |
| 70 μ מסננת תאים M | קורנינג | 431751 | |
| 150 מ"מ צלחות תרבית רקמות | קורנינג | 430597 | |
| 182 ס"מ2 בקבוק תרבית רקמות | Genesee Scientific | 25-211 | |
| אביזר מגש טרנס לבן | Cytiva | 29-0834-18 | |
| Anti– נוגדן caspase-1 | AdipoGen | AG-20B-0042-C100 | |
| Anti– נוגדן קספאז-11 | נובוס ביולוגי | NB120-10454 | |
| אנטי– caspase-3 נוגדן | איתות תאים | 9662 | |
| Anti– caspase-7 נוגדן | איתות תאים | 9492 | |
| Anti– caspase-8 נוגדן | איתות תאים | 4927 | |
| Anti– caspase-9 נוגדן | איתות תאים | 9504 | |
| Anti– נוגדן קספאז-3 שסוע | טכנולוגיית איתות תאים | 9661 | |
| Anti– נוגדן קספאז-7 שסוע | טכנולוגיית איתות תאים | 9491 | |
| Anti– נוגדן קספאז-8 שסוע | טכנולוגיית איתות תאים | 8592 | |
| נוגדן משני מצומד HRP נגד עכברים | Jackson ImmunoResearch Laboratories | 315-035-047 | |
| נוגדן משני מצומד HRP נגד ארנב | Jackson ImmunoResearch Laboratories | 111-035-047 | |
| נוגדן משני מצומד HRP נגד חולדות | מעבדות ג'קסון אימונו-מחקר | 112-035-003 | |
| אנטי– &בטא;-נוגדן אקטין (C4) HRP | סנטה קרוז | sc-47778 HRP | |
| ATP | InvivoGen | tlrl-atpl | |
| BBL Trypticase מרק סויה | BD Biosciences | אמבט חרוזים 211768 | |
| Chemglass Life Sciences | CLS-4598-009 | ||
| ביופוטומטר D30 | Eppendorf | 6133000010 | |
| BME | Sigma | M6250 | |
| ברומופנול כחול | מגרדי תאים Sigma | BO126 | |
| CellTreat מוצרים מדעיים | 229315 | ||
| הדמיית כימילומינסנציה (אמרשם 600) | Cytiva | 29083461 | |
| CO2 תא | VetEquip | 901703 | |
| Cuvettes | Fisher Scientific | 14-955-129 | |
| ניתוחי מספריים | Thermo Fisher Scientific | 221S | |
| DMEM | Thermo Fisher Scientific | 11995-073 | |
| DTT | Sigma | 43815 | |
| מכשיר אלקטרופורזה | ביו-ראד | 1658004 | |
| אתנול | פארמקו | 111000200 | |
| סרום בקר עוברי | Biowest | S1620 | |
| נייר סינון | Bio-Rad | 1703965 | |
| מלקחיים | פישר סיינטיפיק | 22-327379 | |
| Francisella novicida (זן U112) | BEI Resources | NR-13 | |
| משחרר ג'ל | Bio-Rad | 1653320 | |
| ג'נטמיצין | גיבקו | 15750060 | |
| גליצרול | סיגמא | G7893 | |
| גליצין | סיגמא | G8898 | |
| HCl | סיגמא | H9892 | |
| בלוק חום | פישר סיינטיפיק | 23-043-160 | |
| וירוס הרפס סימפלקס 1 (זן HF) | ATCC | VR-260 | |
| גלוקוז גבוה DMEM | סיגמא | D6171 | |
| אנטי אנושי; נוגדן קספאז-1 | R& D Systems | MAB6215 | |
| Human Anti– נוגדן קספאז-8 | Enzo | ALX-804-242 | |
| אינקובטור לח | Thermo Fisher Scientific | 51026282 | |
| תוכנת ניתוח תמונות | ImageJ | v1.53a | |
| IMDM | Thermo Fisher Scientific | 12440-053 | |
| נגיף שפעת A (A/Puerto Rico/8/34, H1N1 [PR8]) | נבנה לפי הופמן ואחרים. | ||
| תאי L929 | ATCC | CCL-1 | קו תאים ליצירת מדיה מותנית L929 |
| L-ציסטאין | Thermo Fisher Scientific | BP376-100 | |
| Luminata Forte Western HRP מצע | Millipore | WBLUF0500 | מצע HRP רגישות סטנדרטית |
| תאי MDCK | ATCC | CCL-34 | קו תאים לקביעת טיטר ויראלי IAV |
| מתנול | סיגמא | 322415 | |
| מיקרוצנטריפוגה | תרמו פישר סיינטיפיק | 75002401 | |
| חומצות אמינו לא חיוניות | ג'יבקו | 11140050 | |
| אבקת חלב מיובש ללא שומן | תמיסת קרוגר | ||
| NP-40 | Sigma | 492016 | |
| PBS | Thermo Fisher Scientific | 10010023 | |
| פניצילין וסטרפטומיצין | סיגמא | P4333 | |
| צלחת פטרי | פישר סיינטיפיק | 07-202-011 | |
| PhosSTOP | Roche | PHOSS-RO | |
| מקור כוח | Bio-Rad | 164-5052 | |
| טבלית מעכב פרוטאז | Sigma | S8820 | |
| PVDF ממברנה | Millipore | IPVH00010 | |
| שייקר נדנדה | Labnet | S2035-E | |
| SDS | Sigma | L3771 | |
| נתרן כלורי | Sigma | S9888 | |
| נתרן דאוקסיכולאט | Sigma | 30970 | |
| נתרן הידרוקסיד | Sigma | 72068 | |
| נתרן פירובט | Gibco | 11360-070 | |
| צלחת פטרי מרובעת | פישר FB0875711A | ||
| מדעי הפשטת מאגר | תרמו פישר סיינטיפיק | 21059 | |
| סופר אות Femto HRP מצע | תרמו פישר סיינטיפיק | 34580 | מצע HRP רגישות גבוהה |
| צנטריפוגה שולחנית | תרמו פישר מדעי | 75004524 | |
| מערכת Trans-Blot חצי יבשה | Bio-Rad | 170-3940 | |
| Tris | Sigma | TRIS-RO | |
| Tween 20 | Sigma | P1379 | |
| ליפופוליסכריד אולטרה-טהור (LPS) מבית E. coli 0111:B4 | InvivoGen | tlrl-3pelps | |
| תאי Vero קו תאים | ATCC | CCL-81 | לקביעת טיטר ויראלי HSV1 |
מקורות
- Alnemri, E. S., et al. Human ICE/CED-3 protease nomenclature. Cell. 87 (2), 171(1996).
- Man, S. M., Kanneganti, T. D. Converging roles of caspases in inflammasome activation, cell death and innate immunity. Nature Reviews Immunology. 16 (1), 7-21 (2016).
- Gullett, J. M., Tweedell, R. E., Kanneganti, T. D. It's all in the PAN: Crosstalk, plasticity, redundancies, switches, and interconnectedness encompassed by PANoptosis underlying the totality of cell death-associated biological effects. Cells. 11 (9), 1495(2022).
- Pandian, N., Kanneganti, T. D. PANoptosis: A unique innate immune inflammatory cell death modality. Journal of Immunology. 209 (9), 1625-1633 (2022).
- Galluzzi, L., et al. Molecular mechanisms of cell death recommendations of the Nomenclature Committee on Cell Death 2018. Cell Death & Differentiation. 25 (3), 486-541 (2018).
- Shi, Y. Caspase activation: Revisiting the induced proximity model. Cell. 117 (7), 855-858 (2004).
- Galluzzi, L., Lopez-Soto, A., Kumar, S., Kroemer, G. Caspases connect cell-death signaling to organismal homeostasis. Immunity. 44 (2), 221-231 (2016).
- Fernandes-Alnemri, T., Litwack, G., Alnemri, E. S. CPP32, a novel human apoptotic protein with homology to Caenorhabditis elegans cell death protein Ced-3 and mammalian interleukin-1 beta-converting enzyme. Journal of Biological Chemistry. 269 (49), 30761-30764 (1994).
- Tewari, M., et al. Yama/CPP32 beta, a mammalian homolog of CED-3, is a CrmA-inhibitable protease that cleaves the death substrate poly(ADP-ribose) polymerase. Cell. 81 (5), 801-809 (1995).
- Nicholson, D. W., et al. Identification and inhibition of the ICE/CED-3 protease necessary for mammalian apoptosis. Nature. 376 (6535), 37-43 (1995).
- Stennicke, H. R., et al. Pro-caspase-3 is a major physiologic target of caspase-8. Journal of Biological Chemistry. 273 (42), 27084-27090 (1998).
- Twiddy, D., Cohen, G. M., Macfarlane, M., Cain, K. Caspase-7 is directly activated by the approximately 700-kDa apoptosome complex and is released as a stable XIAP-caspase-7 approximately 200-kDa complex. Journal of Biological Chemistry. 281 (7), 3876-3888 (2006).
- Kesavardhana, S., Malireddi, R. K. S., Kanneganti, T. D. Caspases in cell death, inflammation, and pyroptosis. Annual Reviews of Immunology. 38, 567-595 (2020).
- Kerr, J. F., Wyllie, A. H., Currie, A. R. Apoptosis: a basic biological phenomenon with wide-ranging implications in tissue kinetics. British Journal of Cancer. 26 (4), 239-257 (1972).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: Controlled demolition at the cellular level. Nature Reviews Molecular Cell Biology. 9 (3), 231-241 (2008).
- Morioka, S., Maueröder, C., Ravichandran, K. S. Living on the edge: Efferocytosis at the interface of homeostasis and pathology. Immunity. 50 (5), 1149-1162 (2019).
- Wang, Y., et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin. Nature. 547 (7661), 99-103 (2017).
- Rogers, C., et al. Cleavage of DFNA5 by caspase-3 during apoptosis mediates progression to secondary necrotic/pyroptotic cell death. Nature Communications. 8, 14128(2017).
- Kayagaki, N., et al. Caspase-11 cleaves gasdermin D for non-canonical inflammasome signalling. Nature. 526 (7575), 666-671 (2015).
- Shi, J., Gao, W., Shao, F. Pyroptosis: Gasdermin-mediated programmed necrotic cell death. Trends in Biochemical Sciences. 42 (4), 245-254 (2017).
- Sborgi, L., et al. GSDMD membrane pore formation constitutes the mechanism of pyroptotic cell death. EMBO Journal. 35 (16), 1766-1778 (2016).
- Aglietti, R. A., et al. GsdmD p30 elicited by caspase-11 during pyroptosis forms pores in membranes. Proceedings of the National Academy of Sciences of the United States of America. 113 (28), 7858-7863 (2016).
- Hagar, J. A., Powell, D. A., Aachoui, Y., Ernst, R. K., Miao, E. A. Cytoplasmic LPS activates caspase-11: implications in TLR4-independent endotoxic shock. Science. 341 (6151), 1250-1253 (2013).
- Kayagaki, N., et al. Noncanonical inflammasome activation by intracellular LPS independent of TLR4. Science. 341 (6151), 1246-1249 (2013).
- Shi, J., et al. Inflammatory caspases are innate immune receptors for intracellular LPS. Nature. 514 (7521), 187-192 (2014).
- Lamkanfi, M., et al. Targeted peptidecentric proteomics reveals caspase-7 as a substrate of the caspase-1 inflammasomes. Molecular & Cellular Proteomics. 7 (12), 2350-2363 (2008).
- Kalai, M., et al. Tipping the balance between necrosis and apoptosis in human and murine cells treated with interferon and dsRNA. Cell Death & Differentiation. 9 (9), 981-994 (2002).
- Li, C., et al. Development of atopic dermatitis-like skin disease from the chronic loss of epidermal caspase-8. Proceedings of the National Academy of Sciences of the United States of America. 107 (51), 22249-22254 (2010).
- Kovalenko, A., et al. Caspase-8 deficiency in epidermal keratinocytes triggers an inflammatory skin disease. Journal of Experimental Medicine. 206 (10), 2161-2177 (2009).
- Kang, T. B., et al. Caspase-8 serves both apoptotic and nonapoptotic roles. Journal of Immunology. 173 (5), 2976-2984 (2004).
- Oberst, A., et al. Catalytic activity of the caspase-8-FLIP(L) complex inhibits RIPK3-dependent necrosis. Nature. 471 (7338), 363-367 (2011).
- Kaiser, W. J., et al. RIP3 mediates the embryonic lethality of caspase-8-deficient mice. Nature. 471 (7338), 368-372 (2011).
- Zhang, H., et al. Functional complementation between FADD and RIP1 in embryos and lymphocytes. Nature. 471 (7338), 373-376 (2011).
- Shi, J., et al. Cleavage of GSDMD by inflammatory caspases determines pyroptotic cell death. Nature. 526 (7575), 660-665 (2015).
- Hitomi, J., et al. Identification of a molecular signaling network that regulates a cellular necrotic cell death pathway. Cell. 135 (7), 1311-1323 (2008).
- Malireddi, R. K., Ippagunta, S., Lamkanfi, M., Kanneganti, T. D. Cutting edge: Proteolytic inactivation of poly(ADP-ribose) polymerase 1 by the Nlrp3 and Nlrc4 inflammasomes. Journal of Immunology. 185 (6), 3127-3130 (2010).
- Tsuchiya, K., et al. Caspase-1 initiates apoptosis in the absence of gasdermin D. Nature Communications. 10 (1), (2019).
- Taabazuing, C. Y., Okondo, M. C., Bachovchin, D. A. Pyroptosis and apoptosis pathways engage in bidirectional crosstalk in monocytes and macrophages. Cell Chemical Biology. 24 (4), 507-514 (2017).
- Gurung, P., et al. FADD and caspase-8 mediate priming and activation of the canonical and noncanonical Nlrp3 inflammasomes. Journal of Immunology. 192 (4), 1835-1846 (2014).
- Man, S. M., et al. Inflammasome activation causes dual recruitment of NLRC4 and NLRP3 to the same macromolecular complex. Proceedings of the National Academy of Sciences of the United States of America. 111 (20), 7403-7408 (2014).
- Man, S. M., et al. Salmonella infection induces recruitment of Caspase-8 to the inflammasome to modulate IL-1beta production. Journal of Immunology. 191 (10), 5239-5246 (2013).
- Van Opdenbosch, N., et al. Caspase-1 engagement and TLR-induced c-FLIP expression suppress ASC/caspase-8-dependent apoptosis by inflammasome sensors NLRP1b and NLRC4. Cell Reports. 21 (12), 3427-3444 (2017).
- Pierini, R., et al. AIM2/ASC triggers caspase-8-dependent apoptosis in Francisella-infected caspase-1-deficient macrophages. Cell Death & Differentiation. 19 (10), 1709-1721 (2012).
- Lee, S., et al. AIM2 forms a complex with pyrin and ZBP1 to drive PANoptosis and host defence. Nature. 597 (7876), 415-419 (2021).
- Sagulenko, V., et al. AIM2 and NLRP3 inflammasomes activate both apoptotic and pyroptotic death pathways via ASC. Cell Death & Differentiation. 20 (9), 1149-1160 (2013).
- Lukens, J. R., et al. Dietary modulation of the microbiome affects autoinflammatory disease. Nature. 516 (7530), 246-249 (2014).
- Gurung, P., Burton, A., Kanneganti, T. D. NLRP3 inflammasome plays a redundant role with caspase 8 to promote IL-1beta-mediated osteomyelitis. Proceedings of the National Academy of Sciences of the United States of America. 113 (16), 4452-4457 (2016).
- Kuriakose, T., et al. ZBP1/DAI is an innate sensor of influenza virus triggering the NLRP3 inflammasome and programmed cell death pathways. Science Immunology. 1 (2), (2016).
- Malireddi, R. K. S., et al. TAK1 restricts spontaneous NLRP3 activation and cell death to control myeloid proliferation. Journal of Experimental Medicine. 215 (4), 1023-1034 (2018).
- Malireddi, R. K. S., et al. Innate immune priming in the absence of TAK1 drives RIPK1 kinase activity-independent pyroptosis, apoptosis, necroptosis, and inflammatory disease. Journal of Experimental Medicine. 217 (3), (2020).
- Christgen, S., et al. Identification of the PANoptosome: A molecular platform triggering pyroptosis, apoptosis, and necroptosis (PANoptosis). Frontiers in Cellular and Infection Microbiology. 10, 237(2020).
- Malireddi, R. K. S., et al. RIPK1 distinctly regulates Yersinia-induced inflammatory cell death, PANoptosis. Immunohorizons. 4 (12), 789-796 (2020).
- Zheng, M., Karki, R., Vogel, P., Kanneganti, T. D. Caspase-6 is a key regulator of innate immunity, inflammasome activation, and host defense. Cell. 181 (3), 674-687 (2020).
- Karki, R., et al. ADAR1 restricts ZBP1-mediated immune response and PANoptosis to promote tumorigenesis. Cell Reports. 37 (3), 109858(2021).
- Wang, Y., et al. Single cell analysis of PANoptosome cell death complexes through an expansion microscopy method. Cellular and Molecular Life Sciences. 79 (10), 531(2022).
- Malireddi, R. K. S., et al. Inflammatory cell death, PANoptosis, mediated by cytokines in diverse cancer lineages inhibits tumor growth. Immunohorizons. 5 (7), 568-580 (2021).
- Kesavardhana, S., et al. The Zα2 domain of ZBP1 is a molecular switch regulating influenza-induced PANoptosis and perinatal lethality during development. Journal of Biological Chemistry. 295 (24), 8325-8330 (2020).
- Banoth, B., et al. ZBP1 promotes fungi-induced inflammasome activation and pyroptosis, apoptosis, and necroptosis (PANoptosis). Journal of Biological Chemistry. 295 (52), 18276-18283 (2020).
- Karki, R., et al. Interferon regulatory factor 1 regulates PANoptosis to prevent colorectal cancer. JCI Insight. 5 (12), 136720(2020).
- Zheng, M., et al. Impaired NLRP3 inflammasome activation/pyroptosis leads to robust inflammatory cell death via caspase-8/RIPK3 during coronavirus infection. Journal of Biological Chemistry. 295 (41), 14040-14052 (2020).
- Karki, R., et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 184 (1), 149-168 (2021).
- Karki, R., et al. ZBP1-dependent inflammatory cell death, PANoptosis, and cytokine storm disrupt IFN therapeutic efficacy during coronavirus infection. Science Immunology. 7 (74), (2022).
- Jiang, W., Deng, Z., Dai, X., Zhao, W. PANoptosis: A new insight into oral infectious diseases. Frontiers in Immunology. 12, 789610(2021).
- Chi, D., et al. Real-time induction of macrophage apoptosis, pyroptosis, and necroptosis by Enterococcus faecalis OG1RF and two root canal isolated strains. Frontiers in Cellular and Infection Microbiology. 11, 720147(2021).
- Lin, J. F., et al. Phosphorylated NFS1 weakens oxaliplatin-based chemosensitivity of colorectal cancer by preventing PANoptosis. Signal Transduction and Targeted Therapy. 7 (1), 54(2022).
- Song, M., et al. Self-assembled polymeric nanocarrier-mediated co-delivery of metformin and doxorubicin for melanoma therapy. Drug Delivery. 28 (1), 594-606 (2021).
- Boucher, D., Chan, A., Ross, C., Schroder, K. Quantifying caspase-1 activity in murine macrophages. Methods in Molecular Biology. 1725, 163-176 (2018).
- Boucher, D., Duclos, C., Denault, J. B. General in vitro caspase assay procedures. Methods in Molecular Biology. 1133, 3-39 (2014).
- Kaushal, V., Herzog, C., Haun, R. S., Kaushal, G. P. Caspase protocols in mice. Methods in Molecular Biology. 1133, 141-154 (2014).
- Swacha, P., Gekara, N. O., Erttmann, S. F. Biochemical and microscopic analysis of inflammasome complex formation. Methods in Enzymology. 625, 287-298 (2019).
- Talley, S., et al. A caspase-1 biosensor to monitor the progression of inflammation in vivo. Journal of Immunology. 203 (9), 2497-2507 (2019).
- Pelegrin, P., Barroso-Gutierrez, C., Surprenant, A. P2X7 receptor differentially couples to distinct release pathways for IL-1beta in mouse macrophage. Journal of Immunology. 180 (11), 7147-7157 (2008).
- Yu, J. W., et al. Cryopyrin and pyrin activate caspase-1, but not NF-kappaB, via ASC oligomerization. Cell Death & Differentiation. 13 (2), 236-249 (2006).
- Henry, C. M., Martin, S. J. Caspase-8 acts in a non-enzymatic role as a scaffold for assembly of a pro-inflammatory "FADDosome" complex upon TRAIL stimulation. Molecular Cell. 65 (4), 715-729 (2017).
- Hoffmann, E., Neumann, G., Kawaoka, Y., Hobom, G., Webster, R. G. A DNA transfection system for generation of influenza A virus from eight plasmids. Proceedings of the National Academy of Sciences of the United States of America. 97 (11), 6108-6113 (2000).
- Simpson, R. J. Homogenization of mammalian tissue. Cold Spring Harbor Protocols. (7), (2010).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
