פרוטוקול זה מתאר גישה לביצוע הדמיית סידן באורגנואידים של מעיים אנושיים נגועים בנגיף, ומציע גישה לניתוח.
מאמר שיטה
הדמיית סידן חיה של חד-שכבות אורגנואידים במעי אנושי נגועים בנגיף באמצעות מדדי סידן מקודדים גנטית
במאמר זה
סיכום
תקציר
איתות סידן הוא וסת אינטגרלי של כמעט כל רקמה. בתוך אפיתל המעי, סידן מעורב בוויסות פעילות ההפרשה, דינמיקה של אקטינים, תגובות דלקתיות, התפשטות תאי גזע ותפקודים תאיים רבים אחרים שאינם מאופיינים. ככזה, מיפוי דינמיקת איתות הסידן בתוך אפיתל המעי יכול לספק תובנה לגבי תהליכים תאיים הומיאוסטטיים ולחשוף תגובות ייחודיות לגירויים שונים. אורגנואידי מעיים אנושיים (HIOs) הם מודל בעל תפוקה גבוהה שמקורו בבני אדם לחקר אפיתל המעי ובכך מייצגים מערכת שימושית לחקר דינמיקת הסידן. מאמר זה מתאר פרוטוקול להתמרה יציבה של HIOs עם מדדי סידן מקודדים גנטית (GECIs), ביצוע מיקרוסקופ פלואורסצנטי חי וניתוח נתוני הדמיה כדי לאפיין באופן משמעותי אותות סידן. כדוגמה מייצגת, HIOs תלת מימדיים הומרו עם lentivirus כדי לבטא ביציבות GCaMP6s, GECI ציטוסולי ירוק מבוסס חלבון פלואורסצנטי. לאחר מכן פוזרו ה-HIOs המהונדסים לתרחיף חד-תאי ונזרעו כחד-שכבות. לאחר ההתמיינות, חד-שכבות HIO נדבקו בנגיף הרוטה ו/או טופלו בתרופות הידועות כמעוררות תגובת סידן. מיקרוסקופ אפיפלואורסצנטי המצויד בתא הדמיה חי מבוקר טמפרטורה ולח איפשר הדמיה ארוכת טווח של חד-שכבות נגועות או מטופלות בתרופות. לאחר ההדמיה, התמונות שנרכשו נותחו באמצעות תוכנת הניתוח הזמינה באופן חופשי, ImageJ. בסך הכל, עבודה זו מקימה צינור מותאם לאפיון איתות סלולרי ב- HIOs.
מבוא
סידן הוא שליח שני שנשמר באופן נרחב וממלא תפקיד קריטי בוויסות הפיזיולוגיה התאית1. בהתחשב במטען החזק שלו, גודלו הקטן ומסיסותו הגבוהה בתנאים פיזיולוגיים, סידן הוא מניפולטור אידיאלי של קונפורמציה חלבונית. זה הופך את הסידן לאמצעי רב עוצמה להמרת אותות אלקטרוכימיים לשינויים אנזימטיים, שעתוק או לאחר שעתוק. שיפועי ריכוז הסידן המחמירים על פני הרשתית האנדופלסמית (ER) וקרומי הפלזמה יוצרים כוח מניע גבוה המאפשר שינויים מהירים בריכוז הסידן הציטוסולי. מנגנונים מרובים, כולל חציצה והובלה אקטיבית, שומרים בחוזקה על שיפוע זה. בעוד שהוא נחוץ לתפקודים תאיים תקינים, תחזוקה זו יקרה מבחינה אנרגטית, מה שהופך אותו לרגיש במיוחד במצבי לחץ 2.
לכן, חוסר ויסות של סידן בתוך ציטוזול הוא אות כמעט אוניברסלי של סוגים רבים של מתח תאי. הפרעות מטבוליות, רעלים, פתוגנים, נזק מכני והפרעות גנטיות יכולים כולם לשבש את איתות הסידן. ללא קשר לגירוי, ברמת התא כולו, עלייה מתמשכת ובלתי מבוקרת בסידן ציטוסולי יכולה לקדם אפופטוזיס ובסופו של דבר נמק 3,4. עם זאת, לשינויים ברמות הסידן הציטוסולי של משרעת נמוכה יותר או בתדירות גבוהה יותר, יש השפעות משתנות2. כמו כן, התוצאות של תנודות סידן עשויות להיות שונות בהתאם למיקרו-תחום המרחבי שבו הן מתרחשות5. ניטור רמות הסידן יכול אפוא להציע תובנה לגבי תהליכי איתות דינמיים, אך לשם כך נדרשת דגימה ברזולוציה טמפורלית ומרחבית גבוהה יחסית.
מדדי סידן מקודדים גנטית (GECIs) הם כלים רבי עוצמה לדגימה רציפה במערכות תאים חיים6. חלק מה- GECIs הנפוצים ביותר הם חלבונים פלואורסצנטיים מבוססי GFP המגיבים לסידן הידועים בשם GCaMPs7. GCaMP הקנוני הוא מיזוג של שלושה תחומי חלבון נפרדים: GFP בעל תמורות מעגליות (cpGFP), קלמודולין ו-M136. תחום הקלמודולין עובר שינוי קונפורמציה עם קשירת הסידן, המאפשר את האינטראקציה שלו עם M13. האינטראקציה קלמודולין-M13 גורמת לשינוי קונפורמטיבי ב-cpGFP שמגביר את הפליטה הפלואורסצנטית שלו בעת עירור. לכן, עלייה בריכוז הסידן נמצאת בקורלציה עם עלייה בעוצמת הפלואורסצנטיות של GCaMP. חיישנים אלה יכולים להיות ציטוסוליים או ממוקדים לאברונים ספציפיים8.
בדומה לרוב הרקמות, סידן מווסת מגוון תפקודים בתוך אפיתל מערכת העיכול. אפיתל המעי הוא אינטגרלי לספיגת חומרים מזינים ונוזלים, אך גם חייב ליצור מחסום הדוק וממשק חיסוני הדוק כדי למנוע פלישת פתוגן או עלבונות רעילים. מסלולים תלויי סידן משפיעים כמעט על כל התפקודים החיוניים הללו 9,10,11. עם זאת, איתות סידן בתוך אפיתל המעי נותר גבול שלא נחקר מספיק עם פוטנציאל מבטיח כמטרה טיפולית. בעוד ניטור דינמיקת הסידן בתוך אפיתל המעי in vivo ממשיך להציב אתגרים, אורגנואידי מעיים אנושיים (HIOs) מציעים מערכת אקס ויו ניתנת להתאמה לניסויים12. HIOs הם ספרואידים תלת-ממדיים (תלת-ממדיים) שמקורם בתאי גזע אנושיים במעי, ועם התמיינותם, הם משחזרים חלק גדול מהמגוון התאי של אפיתל המעי המקומי12.
פרוטוקול זה מתאר שיטות מקיפות להנדסת HIOs המבטאים GECIs ולאחר מכן מכינים HIOs מהונדסים כמונו-שכבות להדמיית סידן בתאים חיים. הוא מציע זיהום ויראלי כדוגמה למניפולציה פתולוגית המשבשת את איתות הסידן ומספק גישה אנליטית לכימות שינויים אלה.
פרוטוקול
כל אורגנואידי המעי האנושי (HIOs) המשמשים בפרוטוקול זה והניסויים המייצגים נגזרו מרקמה אנושית שהושגה ותוחזקה על ידי המרכז הרפואי טקסס למחלות עיכול Enteroid Core. כל הדגימות נאספו בהתאם לפרוטוקול שאושר על ידי מועצת הביקורת המוסדית במכללת ביילור לרפואה.
1. הכנת חומרים וריאגנטים
- לתחזוקת אורגנואידים, אספו צלחות 24 בארות שטופלו בתרבית תאים, מטריצת קרום מרתף (BMM), צינורות חרוטיים בנפח 15 מ"ל וצינורות חרוטיים בנפח 1.5 מ"ל.
- כדי להכין מדיה מלאה ללא גורמי גדילה (CMGF-), ל 500 מ"ל של DMEM F12 מתקדם להוסיף 5 מ"ל של 1M HEPES, 5 מ"ל של 100x אנטיביוטיקה antimycotic, 5 מ"ל של 100x תוסף גלוטמין.
- כדי להכין מדיה המכילה Wnt, R-spondin ו- Noggin (WRNE), ערבבו חלקים שווים מדיה מותנית CMGF ו- Wnt, הוסיפו מדיום מותנה Noggin, 10% לפי נפח, מדיום מותנה R-spondin, 20% לפי נפח, 50 ng/mL גורם גדילה אפידרמיס אנושי, 10 mM ניקוטינאמיד, 10 ננומטר [Leu15]-Gastrin I, 500 ננומטר A-83-01, 10 מיקרומטר SB202190, תוספת B27 1x, תוסף N2 1x ו- 1 mM N-אצטיל-ציסטאין.
- להתמרה לנטיויראלית, הכינו סרום בקר עוברי (FBS), 0.05% טריפסין-EDTA במי מלח חוצצים פוספט 1x (PBS), CMGF- עם 10% FBS, סטרילי 1x PBS, פוליברן, 10 מיקרומטר Y-27632, Lentivirus, Wnt גבוה WRNE + 10 מיקרומטר Y-27632
- ליצירת חד-שכבות אורגנואידים, הכינו תחתית זכוכית שקופית תרבית תאים בת 10 בארות, FBS, קולגן IV (1 מ"ג/מ"ל בדה-יוניזציה (di)H2O), מטריצת קרום מרתף, 0.5 mM EDTA ב-1x PBS, 5 mM EDTA ב-1x PBS, מאגר דיסוציאציה אנזימטי, CMGF- עם 10% FBS, WRNE + 10 μM Y-27632.
- לזיהום ויראלי של חד-שכבות אורגנואידים, הכינו טריפסין, ציר רוטה-וירוס, CMGF-, מחט 25G, PBS סטרילי 1x ומדיית התמיינות נטולת פנול אדום.
- כדי להכין מדיית התמיינות נטולת פנול אדום, יש ליטול 500 מ"ל של תרבית תאים נטולת פנול אדום, להוסיף 5 מ"ל של 100x MEM חומצות אמינו לא חיוניות, 5 מ"ל של 100x L-גלוטמין, 5 מ"ל של נתרן פירובט 100 ננומטר ו-7.5 מ"ל של 1M HEPES.
- לצביעת אורגנואידים אימונופלואורסצנטיים, הכינו 4% פורמלדהיד (16% פורמלדהיד מדולל ב-1x PBS), טריטון X-100 (0.1% טריטון X-100 ב-1x PBS), אלבומין בסרום בקר (3% אלבומין בסרום בקר ב-1x PBS), תמיסת NH4Cl (50 mM), DAPI (תמיסת DAPI 1 מיקרוגרם/מ"ל ב-1x PBS).
2. הנדסת אורגנואידים לביטוי חיישני סידן מקודדים גנטית
הערה: פרוטוקול זה מתאר את השלבים להתמרה של באר אחת של אורגנואידים תלת-ממדיים של מעיים אנושיים המצופים ב-30 מיקרוליטר של מטריצת קרום מרתף (BMM) על צלחת13 בעלת 24 בארות. רוב הקווים יכילו כ-400,000 תאים לבאר. באר שנייה, שאינה מומרת, צריכה להיכלל כבקרה. שמור את כל הריאגנטים ותרחיקי התאים על קרח.
- לאחר 2-5 ימים מהמעבר האחרון, הסר את אמצעי התחזוקה WRNE משתי בארות של HIOs. יש להחליף עם 300 μL של 0.05% טריפסין-EDTA לכל באר ופיפטה עדינה למעלה ולמטה 5x כדי לנתק את BMM מהצלחת. מניחים באינקובטור של 37 מעלות צלזיוס למשך 4 דקות.
- הוסף 500 μL של CMGF- + 10% FBS לכל באר. יש לצפות מראש קצה פיפטה בעל קשירה נמוכה של 1 מ"ל עם FBS על ידי פיפטציה של 1 מ"ל של FBS למעלה ולמטה פי 2. ניתן לעשות שימוש חוזר ב-FBS במספר קצוות. עם הקצה המצופה מראש, פיפטה את HIOs למעלה ולמטה פי 10.
- העבר את התוכן של כל באר לצינור מיקרוצנטריפוגה מצופה מראש 1.5 מ"ל. שטפו כל באר עם 500 μL נוספים של CMGF - והוסיפו את השטיפה לצינור המתאים.
- צנטריפוגה את הצינורות ב 100 x גרם בצנטריפוגת דלי מתנדנד במשך 5 דקות ב 4 ° C. הסר supernatant וכל BMM שיורית.
- השהיה מחדש ב 1 מ"ל של 1x PBS. לפצל כל צינור לשני צינורות מיקרוצנטריפוגות עבור 4 צינורות בסך הכל. צנטריפוגה את הצינורות ב 100 x גרם במשך 5 דקות ב 4 ° C. הסר supernatant.
- השהה כל צינור פעם נוספת ב-1x PBS ובצנטריפוגה ב-100 x גרם למשך 5 דקות ב-4°C.
- הכינו 400 מיקרוליטר של מדיום התמרה ואמצעי בקרה (טבלה 1). השהה 2 צינורות ב 200 μL של מדיום הבקרה ו 2 צינורות ב 200 μL של מדיום הטרנסדוקציה.
- דגירה באינקובטור תרבית תאים של 37 מעלות צלזיוס למשך 24 שעות. יש להשהות מחדש על ידי צנרת מעלה ומטה עם קצה מצופה מעת לעת (למשל, שעתיים לאחר התמרה (hpt), 12 hpt, 18 hpt) כדי לעודד התמרה אחידה.
- לאחר 24 שעות, צינורות צנטריפוגה ב 100 x גרם במשך 5 דקות ב 4 ° C. הסר supernatant.
- יש להשהות את הגלולה ב-500 מיקרוליטר של 1x PBS לשטיפה. צנטריפוגה ב 100 x גרם במשך 5 דקות ב 4 ° C. הסר supernatant.
- בעזרת קצה פיפטה קר כקרח של 200 μL, יש להשהות מחדש כל אחד מ-4 הכדורים ב-30 μL של BMM. יש לטפט בעדינות למעלה ולמטה כדי להתפזר באופן שווה.
- לוחים את תכולת כל צינור לבאר משלו על צלחת בת 24 בארות. יש לדגור במשך 10 דקות בטמפרטורה של 37°C כדי לאפשר ל-BMM להתמצק לפני הוספת 500 μL של HighWnt WRNE + 10μM Y-27632.
- אפשר ל-HIOs מותמרים לגדול במשך שבוע אחד, ולרענן את המדיה (HighWnt WRNE + 10 μM Y-27632) אחת ליומיים. לאחר שבוע, בדוק את הביטוי של מחוון פלואורסצנטי על ידי מיקרוסקופיה. אם האות חזק, התחל בבחירת תרופות. אם האות חלש, חזור על ההעברה כמתואר לעיל.
- לאחר הקמת הקו, ודא את תפקוד מחוון הפלואורסצנטיות באמצעות טיפול אגוניסט. 100nM ADP הוא אגוניסט אמין לאימות GCaMP. בדוק אורגנואידים תלת-ממדיים לצורך אימות ראשוני כמתואר להלן.
- לאחר מעבר, לוחים באר (או מרובה) של אורגנואידים ב-BMM על צלחת נפרדת בתחתית ההדמיה. לוחית את האורגנואידים בערך 1/3 מהצפיפות הרגילה כדי למנוע חפיפה עודפת בעת ההדמיה. אין להמשיך לעבור את ה-HIOs הללו לאחר טיפול אגוניסטי מכיוון שקשה להבטיח סטריליות.
- יש להמתין 2-3 ימים עד שהקופות החולים יתאוששו לאחר המעבר. לפני ההדמיה, העבר את המדיה למדיית התמיינות ללא פנול אדום.
- באמצעות מיקרוסקופ פלואורסצנטי, הגדר ריצה של 3 דקות עם תמונות שנרכשו כל 5 שניות באמצעות עירור 488 ננומטר וסט מסנן FITC/GFP. לאחר 30 שניות של הדמיה, הוסף ADP של 100 ננומטר או בקרת רכב. המשך בהדמיה עד שהאות יחזור לקו הבסיס הקרוב, ~2 דקות. עלייה חולפת, ~פי 2 בפלואורסצנטיות GCaMP עם טיפול ADP מצביעה על תפקוד מוצלח של התמרה וביוסנסורים. להערכה מדויקת יותר של יעילות הטרנסדוקציה, חזרו על בדיקת אגוניסט עם הדמיה באמצעות חד-שכבות שנוצרו בתהליך המתואר בחלק 3.
3. הכנת חד-שכבות HIO להדמיית פלואורסצנטיות חיה
- צפו את כל הבארות של שקופית תא הדמיה תחתונה של 10 בארות בקולגן IV. כדי לעשות זאת, לערבב 34 μL של 1 מ"ג / מ"ל קולגן IV עם 960 μL של מים סטריליים deionized. הוסיפו 95 מיקרוליטר של תמיסת קולגן IV מדוללת לכל באר ודגרו בטמפרטורה של 37°C למשך 0.5-2 שעות.
- הסר את אמצעי התחזוקה של WRNE מ-4 בארות של HIO תלת-ממדיים. HIOs צריכים להיות 5-7 ימים מהמעבר האחרון שלהם.
הערה: צלחת 1 10 בארות דורשת בדרך כלל ~ 1.25 x 10⁶ תאים. זה בדרך כלל דורש 2-4 בארות של HIOs 3D מצופים 30 μL של BMM כל אחד, אבל ישתנה בהתאם לצפיפות. - הוסף 500 μL של 1x PBS + 0.5 mM EDTA לכל באר. עם קצה מ"ל מצופה מראש, פיפטה למעלה ולמטה בעדינות כדי לנתק BMM מהצלחת. מעבירים את המתלה לצינור חרוטי מצופה מראש של 15 מ"ל, המשתלב כמו בארות לאותו צינור.
- יש לשטוף כל באר בתוספת של 500 μL של PBS + 0.5 mM EDTA. צנטריפוגה ב 300 x גרם במשך 5 דקות ב 4 ° C. הסר את ה- supernatant ואת שאריות BMM.
- באמצעות קצה מצופה מראש, להשעות מחדש את הגלולה הנותרת ב 3 מ"ל של PBS + 5 mM EDTA (שים לב שזה פי 10 יותר EDTA מאשר הכביסה הראשונה).
- צנטריפוגה ב 300 x גרם במשך 5 דקות ב 4 ° C. הסר את ה- supernatant ואת שאריות BMM. להשעות את הגלולה ב 2 מ"ל של חיץ דיסוציאציה אנזימטית.
- יש לדגור באמבט חרוזים/מים בטמפרטורה של 37°C למשך 5 דקות. מוסיפים 3 מ"ל CMGF- + 10% FBS ופיפטה בעדינות לערבוב.
- צנטריפוגה ב 300 x גרם במשך 5 דקות ב 4 ° C. הסר את supernatant. הוסף 1 מ"ל של CMGF-.
- פיפטה נמרצת למעלה ולמטה עם קצה מצופה מראש 80x-100x כדי לפרק באופן מכני HIOs לתאים בודדים. צנטריפוגה ב 300 x גרם במשך 5 דקות ב 4 ° C. הסר supernatant.
- Resuspend ב 1 מ"ל של WRNE + 10 μM Y-27632. השג ספירת תאים עבור ההשעיה של 1 מ"ל.
- לדלל את תרחיף התא עם WRNE + 10μM Y-27632 כדי להשיג ריכוז של 1.25 x 10⁵ תאים / 100 μL (1.25 x 10⁶ תאים / מ"ל).
- בעזרת פיפטה של 200 מיקרוליטר, הסירו את תמיסת הקולגן מהצלחת שהוכנה בשלב 1, מכיוון שהקולגן שקע כעת בתחתית הבאר. הימנעו מלגעת בתחתית הבאר עם קצה הפיפטה.
- באמצעות קצה פיפטה מצופה מראש של 200 μL, הוסף 100 μL של תמיסת התא משלב 3.11 (1.25 x 10⁵ תאים) לכל באר.
- דגירה במשך 24 שעות באינקובטור תרבית תאים של 37 מעלות צלזיוס. לאחר 24 שעות, להסיר את מדיום התרבות מכל הבארות ולהחליף אותו עם 100 μL של מדיום בידול לכל באר.
הערה: בשלב זה, התאים צריכים להיצמד לצלחת. שימו לב שסביר להניח שהחד-שכבה לא תהיה חופפת או מישורית לחלוטין. - החזירו את המגלשה לאינקובטור תרביות תאים בטמפרטורה של 37°C. רענן את מדיום הבידול כל 24 שעות עד שהשכבה החד-שכבתית תתמזג. זה בדרך כלל דורש 3-5 ימים מציפוי. לאחר נקודה זו, המונו-שכבות מוכנות ליישומים במורד הזרם.
4. זיהום ויראלי של חד-שכבות HIO
- הכינו את החיסון נגד הנגיף. במידת הצורך, טריפסין להפעיל את מלאי הנגיף. עבור rotavirus, להוסיף 10 מיקרוגרם / מ"ל טריפסין של וורת'ינגטון למלאי הנגיף לדגור ב 37 ° C במשך 1 שעה.
- דלל את מלאי הווירוסים המופעלים באמצעות אחת משתי השיטות הבאות.
- אם מכוונים למספר המרבי של תאים נגועים באמצעות זן נגיפי אחד בלבד, יש לערבב 50 μL של הזן הנגיפי הפעיל עם 50 μL CMGF-.
- אם משווים בין זנים מרובים, הכינו את החיסונים כדי להשיג הכפלות הדבקה שוות ערך (MOIs). השתמש בנוסחה הבאה כדי לקבוע את נפח מלאי הווירוסים לכל באר הדרושה עבור MOI הרצוי. הוסף CMGF- לנפח מלאי הווירוסים המחושב כדי להשיג נפח סופי של 100 μL לכל באר.
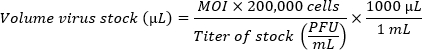
הערה: שכבה חד-שכבתית יחידה של HIO המצופה בבאר בקוטר של 5.46 מ"מ (צלחת 96 בארות) מכילה כ-200,000 תאים. בגלל היעילות הירודה של זיהום בחד-שכבות, עדיף MOI גבוה (100-1 מיליון חלקיקים נגיפיים לתא). את MOI האופטימלי יש לקבוע אמפירית.
- להדביק את monolayers על ידי הסרת עדין את המדיה מן monolayer HIO באמצעות פיפטה 200 מ"ל. החלף עם 100 מ"ל של חיסון וירוס או חיסון מדומה.
- מאחר שרוב מאגרי נגיף הרוטה מופצים בתאי MA104, השתמשו בליזט תאי MA104 לא נגוע עבור החיסון המדומה. השתמש בנפח שווה ערך לנפח מלאי הווירוסים המשמש לבארות הנגועות והוסף CMGF - לנפח סופי של 100 מ"ל לכל באר.
- עבור וירוסים שמדביקים תאים באופן בזולטרלי, כגון rotavirus14, השתמש במחט 25G כדי להבקיע את monolayer. הכי קל לעשות ניקוד יחיד לאורך החד-שכבתי, מלמטה לחלק העליון של הבאר. לחצו בעדינות את המחט לתוך השכבה החד-שכבתית בזווית שבה הצד המשופע כלפי מעלה, הפוך לכיוון התנועה, וגררו אותה לאורך השכבה כדי ליצור צלקת (איור 2A).
- דגירה באינקובטור של 37 מעלות צלזיוס למשך שעתיים. הסר את הנגיף ולעג לחיסונים. שטפו את השכבות פעם אחת עם 1x PBS.
- הוסף 100 μL של פנול אדום ללא הבחנה מדיה. מקם את השקופית באינקובטור של 37°C עד שהוא מוכן לתמונה. חלון ההדמיה האופטימלי ישתנה בהתאם לקינטיקה של הזיהום הנגיפי. עבור rotavirus, להתחיל הדמיה ב 6-8 שעות לאחר ההדבקה.
- דלל את מלאי הווירוסים המופעלים באמצעות אחת משתי השיטות הבאות.
5. Ca2+ הדמיה של monolayers נגועים
- מחממים מראש את האינקובטור העליון ל -37 מעלות צלזיוס. הפעל CO2 לח ב 0.02 ליטר / דקה. יש להחליק עם החד-שכבות הנגועות לתוך תא האינקובטור ולאטום את המכסה.
- באמצעות תאורת שדה בהיר (BF) ומטרה של 20x, בחר את קואורדינטות X ו- Y של שדות הראייה בתוך השכבה החד-שכבתית שתוצלם. עדיף לבחור נקודות עם האזור הניקוד בתצוגה, כמו רוב התאים נגועים יהיה ליד השריטה.
- מטב את פרמטרי ההדמיה וקבל תמונה באמצעות עירור 488 ננומטר. כדי למזער את רעילות האור, הגדר את מקור האור לעוצמה של 50% עם זמן חשיפה של 50 אלפיות השנייה. פרמטרי הרכישה המתאימים עשויים להשתנות ויש לייעל אותם על ידי רכישת רכישות מרובות. ודא שאין רוויה בפיקסלים. כוונן את זמן החשיפה ואת עוצמת האור לפי הצורך כדי להבטיח שניתן יהיה לזהות את כל הטווח הדינמי של חיישן הסידן הפלואורסצנטי.
- אם אתם משתמשים בפלואורופורים אחרים (למשל, וירוסים מתויגים באופן פלואורסצנטי), חזרו על המיטוב בערוצים אלה. הגדר את לולאת ההדמיה וקבל תמונה של 488 ננומטר בכל קואורדינטת X ו- Y שנבחרה בלולאה של דקה אחת. דמיינו לולאה זו ברציפות. בעת שימוש בווירוס מתויג פלואורסצנטית, רכוש תמונה בערוץ המתאים בכל לולאה10 (כלומר, תמונה אחת / 10 דקות).
- אסוף תמונות במשך ~ 18 שעות. אם אתה משתמש בנגיפים ללא תגים פלואורסצנטיים, תקן monolayers ובצע צביעה immunofluorescence כדי לזהות תאים נגועים. בצע פעולה זו לאחר השלמת ריצת ההדמיה כמתואר להלן.
- הסר את מדיית ההדמיה והחלף ב-100 μL של 4% פורמלדהיד ב-1x PBS. יש לדגור בטמפרטורת החדר למשך 30 דקות.
- יש להסיר את הקיבוע ולהרוות עם 100 מיקרוליטר של 50mM NH4Cl למשך 10 דקות. להסיר NH4Cl. לחדור את monolayers עם 100 μL של 0.1% Triton X-100 ב 1x PBS במשך 1 שעה בטמפרטורת החדר או לילה ב 4 ° C.
- הסר את מאגר החדירות. לחסום עם 100 μL של אלבומין 3% בסרום בקר ב 1x PBS במשך 1 שעות.
- הסר את פתרון החסימה. הוסף נוגדנים ראשוניים מדוללים לריכוז המומלץ/אופטימלי ב- 1x PBS. הוסף 100 μL של תמיסת נוגדנים לכל באר.
- יש לדגור למשך הלילה ב-4°C (75 °F) עם נדנוד עדין. הסר נוגדנים ראשוניים. יש לשטוף 3x עם 1x PBS.
- הוסף נוגדנים משניים מצומדים פלואורסצנטיים מדוללים לריכוז המומלץ/אופטימלי ב- 1x PBS. מוסיפים 100 μL לכל באר. יש לדגור במשך שעתיים בטמפרטורת החדר.
הערה: FPBase15 הוא משאב נהדר שעוזר לבחור רכיבים משניים שימנעו דימום בעת ריבוי. רוב המשניות יעילות בדילול של 1:1000 ב-1x PBS. - הסר נוגדנים משניים. הכינו תמיסת DAPI של 1 מיקרוגרם/מ"ל ב-PBS אחד והוסיפו 100 מיקרוליטר לכל באר. יש לדגור במשך 20 דקות. מוציאים את DAPI. יש לשטוף 3x עם 1x PBS.
- שמור על חד-שכבות קבועות ב-100 μL של 1x PBS להדמיה. החזירו את השקופית לשלב המיקרוסקופ, טענו מחדש את קואורדינטות X ו-Y מריצת ההדמיה החיה, ודמיינו כל נקודה מרובת נקודות בערוץ המתאימה לנוגדן המשני ששימש לצביעה. עיין בתמונות מהפעלת ההדמיה החיה כדי לוודא שאותן נקודות נלכדות.
6. כימות גלי סידן בין-תאיים
- ודא שפיג'י היא רק ImageJ (FIJI) מותקן עם התוספים הבאים: Bio-Formats (צריך להיות מותקן מראש ב- FIJI אך לא יהיה ב- ImageJ); ספר בישול: כדי להתקין, מתפריט FIJI, עבור אל Help > Updates > Manage update sites. בדוק את ספר הבישול. הפעל מחדש את FIJI.
- פצל את קובץ הנתונים מהפעלת ההדמיה החיה למספר קבצים, תוך הפרדת כל קואורדינטת X, Y. ברכיבי NES של Nikon, בחר File > Import/Export > Split Multipoints. בחר תיקייה לייצוא וקידומת מתאימה.
- פתח את פיג'י. טען קובץ בודד מהנקודות המרובות המפוצלות. אם אתם משתמשים בתמונה מרובת ערוצים, פצלו את הערוצים. בחר את החלון עם התמונות מערוץ 488 ננומטר (GCaMP).
- הפעל את הפונקציה DeltaF Up כדי לקבוע את השינוי בכל ערך פיקסל מנקודת זמן אחת לאחרת. לשם כך, בחר Cookbook > פונקציות T > Delta F Up.
- גלול בערימה עד שתימצא תמונה עם גל סידן. כאשר גל הסידן מוצג, הגדר סף על-ידי לחיצה על תמונה > התאם סף >. כוונן את הגבול התחתון כדי למזער את כמות האות שאינה חלק מהגל שעובר את הסף. עבור תמונות של 16 סיביות שנרכשו באמצעות הפרמטרים המתוארים לעיל, התחל עם סף נמוך יותר של 600 והתאם לפי הצורך.
- הפעל את מנתח החלקיקים כדי לפלח גלים על-ידי לחיצה על נתח > נתח חלקיקים. הגדר את גודל הגל המינימלי במיקרומטר2 על-ידי התאמת הטווח. הוא מוגדר ל-0-אינסוף בקו הבסיס. עבור תמונות של תאי MA104 שנרכשו באמצעות מטרה של 20x, התחל בהגדלת הגבול התחתון ל- 10,000 מיקרומטר2 והתאם בהתאם לצורך.
- סמן את התיבות עבור הצג תוצאות ונקה תוצאות. בתפריט הנפתח "הצג", בחר קווי מתאר ולאחר מכן לחץ על אישור. התוצאה אמורה להיות 2 פלטים: חלון אחד, תוצאות, יפרט כל גל שזוהה, את שטח הגל, ואת ערכי העוצמה הממוצעת, המינימלית והמקסימלית שלו (בהתבסס על דלתא F). החלון השני, שכותרתו ציור של [שם הקובץ], יכלול ערימה חדשה עם קווי המתאר של גלים מקוטעים. השתמש באפשרות זו כדי לאמת זיהוי גלים. התאם את ערכי הסף ואת טווח הגדלים במידת הצורך, ובדוק מחדש את קריאות הגל.
- לעיבוד אצווה, השתמש בסקריפט המאקרו הכלול (קובץ קידוד משלים 1). כדי להשתמש בכך, בצע את השלבים המתוארים להלן.
- פצל נקודות מרובות לקבצים בודדים כמתואר בשלב 6.2. פתח את פיג'י. בחר תהליך > אצווה > מאקרו. בתיבה "קלט", ספק את המפה לתיקייה המכילה את הקבצים מרובי הנקודות המפוצלים. השאר את התיבה "פלט" ריקה.
- הדבק את הסקריפט מקובץ קידוד משלים 1 בתיבה. התאם את סף העוצמה ואת סף הגודל בסקריפט כדי לשקף את הפרמטרים הממוטבים משלבים 6.5 ו- 6.6.
- לחץ על תהליך. בהתאם למספר הנקודות המרובות ומהירות העיבוד של המחשב, עיבוד כל התמונות עשוי להימשך 30 דקות או יותר. לאחר השלמתם, הנתונים ייכתבו בקובץ גיליון אלקטרוני חדש בשם "שנה את שמי לאחר הכתיבה" בשולחן העבודה. קובץ הפלט צריך להכיל, לכל נקודה מרובה, ספירת גלים ומדדי גל (שטח, עוצמה ממוצעת, עוצמה מינימלית ומקסימלית וצפיפות עוצמה).
תוצאות
איור 1A מראה כיפת BMM המכילה אורגנואידים תלת-ממדיים של המעי האנושי שהומרו לביטוי יציב של GCaMP6s. איור 1B מראה את אותו קו של אורגנואיד מצופה מחדש כמו חד-שכבתי ב-24, 48 ו-72 שעות לאחר הזריעה. כדי לאמת את הפונקציה של GCaMP6s, המונושכבה צולמה על ידי מיקרוסקופ פלואורסצנטי כל 2 שניות במשך 4 דקות, ו- ADP של 100 ננומטר נוסף למדיה לאחר ~ 20 שניות. ADP מעורר שחרור סידן מהרשתית האנדופלסמית, ומגביר את הסידן הציטוסולי. עוצמת הפלואורסצנטיות שזוהתה בתעלה של 488 ננומטר בכל חשיפה מתוארת באיור 1C. המעקב מראה עוצמת פלואורסצנטיות יציבה בקו הבסיס ואחריה עלייה מהירה עם הוספת ADP, וחזרה הדרגתית לכיוון קו הבסיס. בקרת רכב נכללת כדי לוודא שהתגובה היא אירוע איתות אמיתי, ולא רק שינוי בעוצמת הפלואורסצנטיות שעשוי לנבוע מהוספת מדיה.
ניקוד חד שכבתי HIO מגביר את היעילות של זיהום rotavirus. בעוד שטכניקות הניקוד משתנות, הכי קל לקבל זיהום עקבי באמצעות ניקוד יחיד לאורך השכבה החד-שכבתית, כפי שמוצג באיור 2A. בעת שימוש בזנים רקומביננטיים של נגיף הרוטה שמבטאים חלבונים פלואורסצנטיים, ניתן לאמת זיהום במהלך הדמיה חיה (איור 2B). בעת שימוש בזן שאינו מבטא סמן, ניתן לזהות זיהום על ידי immunofluorescence לאחר הדמיה. בהתחשב בתנועתיות התאים בחד-שכבות HIO, לעתים קרובות קשה לעקוב אחר תא נגוע יחיד לאורך זמן. במקום זאת, השתמשו בצביעת נקודות הקצה כשיטה לאמת את ההדבקה ולוודא שריבוי ההדבקה תואם בין שדות הראייה (איור 2C).
ניתן לצפות בגלי סידן בין-תאיים ב-HIOs באופן איכותי, כפי שמתואר באיור 3A. עם זאת, קביעת התדירות של גלי סידן בשדה ראייה נתון דורשת ניתוח כמותי. השלבים של פילוח מוצלח, כפי שמתוארים בשלב 6 של הפרוטוקול לעיל, מתוארים באיור 3A. האיור מראה את התמונה הגולמית (איור 3Ai), את התמונה לאחר הפחתת עוצמות הפיקסלים מהמסגרת הקודמת (איור 3Aii), ולאחר מכן את גל הסידן המקוטע (איור 3Aiii).
לאחר שגלי הסידן חולקו וכומתו עבור כל שדה ראייה במהלך ריצת ההדמיה, לעתים קרובות אינפורמטיבי להשוות את תדירות הגלים בחד-שכבות שנחשפו לתנאים שונים. תרשים הפסים באיור 3B מראה את המספר הכולל של גלי סידן לכל שדה ראייה בחד-שכבות מדומות ומחוסנות בנגיף רוטה. דוגמה זו כוללת שני זנים של RV: זן של נגיף רוטה אנושי (Ito HRV) וזן רקומביננטי של נגיף הרוטה סימיאן SA11 המבטא mRuby (SA11-mRuby). הבקרה הנגועה בדמה נלקחת כתדר גלי הסידן הבסיסי, החד-שכבות הנגועות בנגיף הרוטה שאינן מטופלות משמשות כבקרות חיוביות, והחד-שכבות הנגועות בנגיף הרוטה ומטופלות הן תנאי הניסוי. לאחר מכן ניתן להשוות חד-שכבות נגועות במוק ו-RV המטופלות בתרופות, כולל מעכב קולטן ADP, BPTU, לשני תנאי הבקרה על ידי ANOVA חד-כיוונית. הנתונים מצביעים על כך ש-BPTU מפחית ביעילות את התדירות של גלי סידן בין-תאיים.
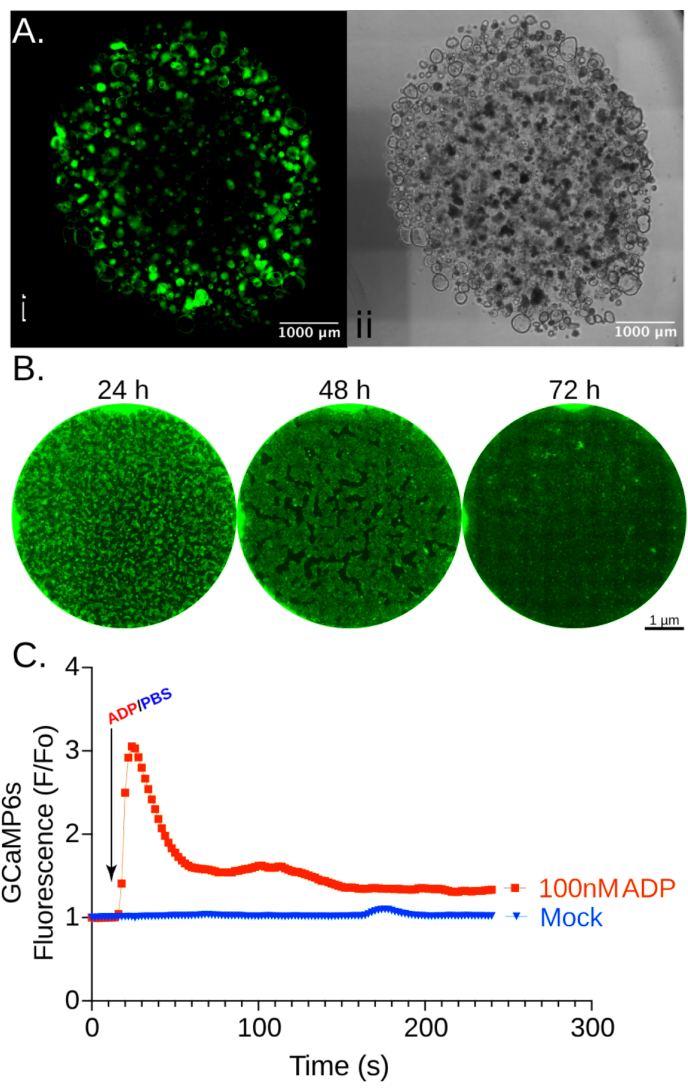
איור 1: אימות ביטוי GCaMP6s באורגנואידים של מעיים אנושיים. (A) לאחר התמרה של לנטי-וירוס, ה-HIOs המבטאים GCaMP עברו סלקציה ומעברים מרובים, המוצגים כאן ב-7 ימים מאז הקטע האחרון. עם גירוי עם לייזר 488 ננומטר, ביטוי GCaMP6s ניכר ב- HIOs המומרים המצופים במטריצת קרום מרתף 15 μL כספרואידים תלת ממדיים (Ai). חשיפות של 50 מילישניות נרכשו בהספק לייזר של 50% באמצעות מטרה של פי 20, ולאחר מכן נתפרו יחד כדי להמחיש את כל כיפת המטריקס של קרום המרתף. תהליך דומה בוצע באמצעות 4 ms brightfield exposures (Aii). בתמונת השדה הבהיר, ה-HIOs הכהים במרכז הכיפה הם אינדיקציה לכך שהתרבויות מוכנות למעבר. (B) HIOs עוכלו אנזימטית לתרחיף חד-תאי, ואז צופו מחדש בצפיפות של 150,000 תאים לבאר (קוטר 5 מ"מ) של צלחת תחתית הדמיה מצופה מראש בקולגן IV. עד 72 שעות לאחר הזריעה, השכבה החד-שכבתית הייתה שוטפת ומוכנה ליישומים במורד הזרם. כדי לאמת את הפונקציה של GCaMP, התמונות נרכשו באמצעות מסנן 488 ננומטר עם חשיפות של 50 אלפיות השנייה בעוצמת לייזר של 50% כל 2 שניות למשך 4 דקות. (C) העקבות המוצגות כאן מייצגות את עוצמת הפלואורסצנטיות של כל השדה שנורמלה לרכישה הראשונה במהלך ההדמיה. בסביבות 20 שניות (חץ), לאחר החשיפה העשירית, 100 ננומטר אדנוזין דיפוספט (ADP) נוסף כדי לעורר עלייה חדה בסידן ציטוסולי (אדום). התוספת של נפח שווה של 1x PBS לא עוררה תגובה משמעותית (כחול). אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
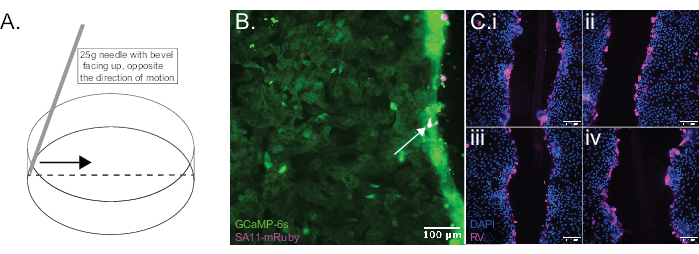
איור 2: ניקוד שכבה חד-שכבתית של HIO כדי להקל על זיהום RV. (A) האיור מדגים טכניקה מתאימה לניקוד חד-שכבתי באמצעות מחט 25G. (B) חד-שכבה של HIO נדבקה בזן רקומביננטי של RV המבטא את החלבון הפלואורסצנטי mRuby (מגנטה, חץ), המאפשר זיהוי תאים נגועים. לחלופין, בעת שימוש בזן טבעי של RV, ניתן לזהות תאים נגועים באמצעות immunofluorescence. (C) התמונות המוצגות הן מ-4 שכבות HIO שונות לאחר קיבוע, צביעת DAPI (כחול) ותיוג נוגדנים של אנטיגן רוטה-וירוס (מגנטה). שתי הטכניקות ממחישות את זיהום ה-RV המועדף ליד החלק המבקיע של החד-שכבתי. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
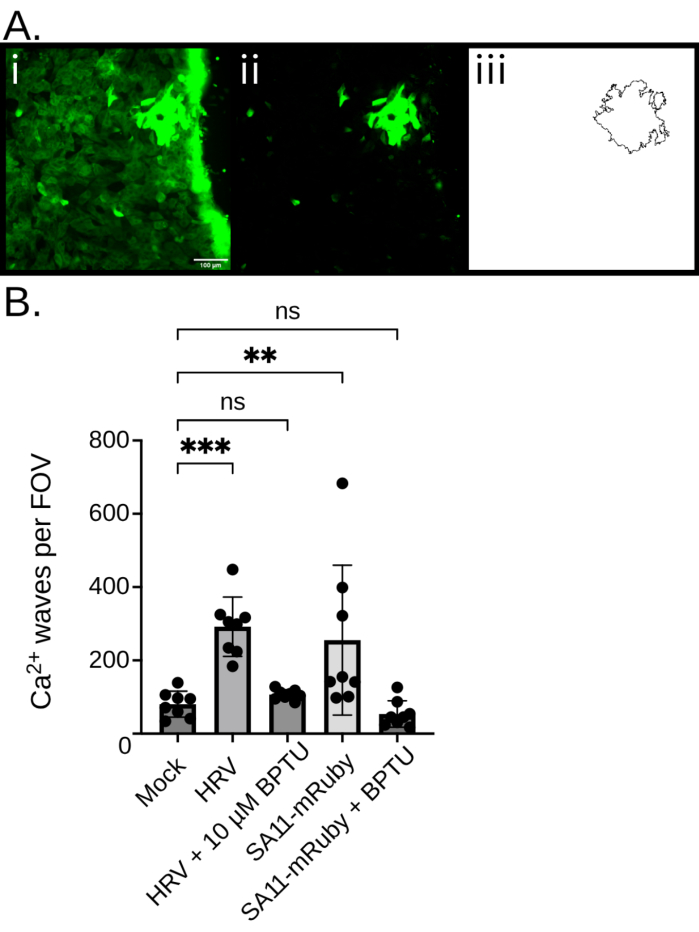
איור 3: פילוח וכימות של גלי סידן בין-תאיים הנגרמים על-ידי RV. חשיפות של 488 ננומטר של HIOs נגועים בקרוואנים המבטאים GCaMP6s נרכשו כל דקה למשך 16 שעות באמצעות הפרוטוקול. (A) האיור ממחיש את תהליך פילוח גלי הסידן הבין-תאיים. ראשית, ערכי הפיקסלים מהרכישה הקודמת (t-1) מופחתים מכל תמונה גולמית (Ai) כדי לכמת את השינוי בעוצמת הפלואורסצנטיות (Aii). לאחר מכן מוחל סף המבוסס על עלייה מינימלית אופטימלית בעוצמה מהמסגרת הקודמת. לאחר מכן התמונות מסוננות עבור אזור אות רציף מינימלי כדי לבחור עבור גלי סידן בין-תאיים (Aiii) ולא לכלול אותות סידן חד-תאיים. עיבוד זה מאפשר לכמת גלי סידן בכל שדה ראייה. בניסוי זה, חד-שכבות היו נגועות בדמה, נגועות בזן ITO של נגיף הרוטה האנושי (HRV), או נגועות בזן רקומביננטי של נגיף הרוטה סימיאן המקודד mRuby על מקטע גן 7, במורד הזרם של חלבון לא מבני 3 (SA11-mRuby). חד-שכבות נגועות טופלו במעכב קולטן ADP BPTU או נותרו ללא טיפול. לאחר מכן צולמו חד-שכבות ב-8 מיקומים שונים, וגלי סידן בכל שדה ראייה כומתו באמצעות הצינור המתואר בפרוטוקול זה. הנקודות בתרשים הרצועה מציינות את מספר גלי הסידן שזוהו בכל מיקום על גבי תרשים עמודות המסמן את הממוצע ואת SD. ANOVA חד-כיווני ואחריו הבדיקות של דנט מראות כי בעוד שכל זן של RV מגביר את התדירות של גלי סידן בין-תאיים מעל זו של הקבוצה הלא נגועה, טיפול BPTU מונע את העלייה בתיווך RV בתדירות גלי הסידן. **p<0.01, ***p<0.001. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
| מגיב | התמרה | לשלוט |
| Y-27632 (מלאי של 1 מיליון) | 4 μL | 4 μL |
| פוליברן (1 מ"ג/מיקרוליטר מלאי) | 2 μL | 2 μL |
| לנטיוירוס | משתנה* | |
| HighWnt-WRNE *ראה הערות | עד 400 μL | עד 400 μL |
טבלה 1: מדיום התמרה של לנטיוירוס. הכן את מדיית ההעברה ואת אמצעי הבקרה על ידי שילוב הריאגנטים באמצעי האחסון המצוינים בעמודה השנייה והשלישית, בהתאמה. יש לשאוף לריבוי זיהומים (MOI) של 10 יחידות התמרה של לנטי-וירוס לכל תא. עבור LV ארוז בבית, זה בדרך כלל דורש ~ 25-50 μL של LV מרוכז. הטיטר של רוב LV ארוז מסחרית יסופק עם תעודת הניתוח.
קובץ קידוד משלים 1: סקריפט מאקרו ImageJ כדי לאפשר כימות גלי סידן על ידי עיבוד אצווה. אנא לחץ כאן כדי להוריד קובץ זה.
דיון
שינויים ברמות Ca2+ ציטוסוליים יכולים להיות סיבה ותוצאה של פתולוגיות בתוך אפיתל 10,16,17. עלייה בסידן ציטוסולי יכולה לגרום ישירות להפרשה באמצעות הפעלת תעלת הכלוריד תלוית הסידן TMEM16A18,19. הפעלת TMEM16A בתגובה ל- Ca2+ מאפשרת זרימה אפית של כלוריד, ויוצרת שיפוע אוסמוטי המקדם הפרשת נוזלים20,21. יתר על כן, עליות Ca2+ בתוך תאים enteroendocrine לעורר את שחרורו של סרוטונין, אשר מגרה נוירונים חושיים afferent שיכול לווסת את הפעילות בתוך מערכת העצבים אנטרי22. אותות Ca2+ יכולים גם לווסת צמתים הדוקים כדי להשפיע על תפקוד המחסום23,24, ולווסת את ההתפשטות בתאי גזע במעי25. לכן, דיסרגולציה של Ca2+ יכולה להיות בעלת השפעות רחבות ומרחיקות לכת.
וירוסים רבים מבצעים מניפולציות ציטוסוליות Ca2+ כדי ליצור סביבה תאית שתורמת לשכפול26. Rotavirus הוא דוגמה מצוינת לכך בתוך אפיתל המעי27. Rotavirus non-structural protein 4 (NSP4) הוא ערוץ מוליך Ca2+ המאפשר זרימה של Ca2+ מהרשתית האנדופלסמית לתוך ציטוזול28,29. זה מגרה אוטופגיה ומסייע להרכבה של הקפסיד החיצוני 30,31,32. זיהום Rotavirus גם גורם לשחרור ADP, ומפעיל גלי Ca2+ בין-תאיים התורמים לפתוגנזה17. וירוסים אנטריים אחרים, כולל caliciviruses ו enteroviruses, מקודדים Ca2+ מוליך viroporins המפעילים חוסר ויסות דומה של Ca2+ בתוך תאים נגועים33,34.
הדמיה של תאים חיים Ca2+ של אורגנואידים במעיים אנושיים מציעה פלטפורמה רב-תכליתית לחקר איתות המושרה על ידי וירוסים בתוך האפיתל. עם זאת, עוצמת המסקנות העולות מנתוני ההדמיה תלויה, באופן בלתי נמנע, בבריאות ואיכות ה- HIOs, בפרמטרים מתאימים של הדמיה ובגישה אנליטית מבוססת.
התמרה לנטיויראלית יעילה היא לעתים קרובות השלב המגביל בעת הקמת קווי HIO חדשים, אך לנטיוירוס טיטר גבוה וטרנסדוקציות מרובות עוזרים להבטיח ביטוי טרנסגנים מספיק. חשוב לציין, זה יצטרך להיות מאוזן עם הפוטנציאל של מתח תאי משמעותי על התמורה. זה לרוב זמני ושוכך לאחר בחירה וקטעים מרובים. עם זאת, זה קריטי כי HIOs שהונדסו לבטא GECIs להציג צמיחה נורמלית והתפשטות לפני תחילת הניסויים. כמו כן, פיזור HIOs תלת-ממדיים והפיכתם לחד-שכבתיים גורם לעקה תאית. מומלץ לאפשר שלושה ימים או יותר לחד-שכבות להסתגל לאחר הציפוי. ציפוי הצלחות בקולגן IV הוא קריטי לשלמות חד-שכבתית35,36. שימוש בקולגן IV ואחסון בטמפרטורה של -80°C בין שימושים מסייע להבטיח היצמדות חד-שכבתית. קביעת צפיפות הזריעה האופטימלית עבור כל קו HIO יכולה גם לעזור לשפר את העקביות. לבסוף, הכללת הבקרות המתאימות, והשוואתם בין ניסויים, היא הכרחית כדי להבטיח שכל תצפית מייצגת תגובה למשתנה המדובר, ולא גורם מבלבל טכני.
בעוד ניקוד חד שכבתי יכול לגרום נזק לא רצוי לתאים, זה משפר מאוד זיהום RV של HIO 2D. איור 2 ממחיש זאת, מאחר שכמעט כל התאים הנגועים צמודים ישירות לשריטה. ראיות ניסיוניות מצביעות על כך ש- RV מדביק בצורה היעילה ביותר על פני השטח הבזולטרליים של תאי אפיתל המעי37. לפיכך, צפוי כי ניקוד חד שכבתי משפר את ההדבקה על ידי חשיפת המשטח הבזולטרלי. זיהום חד-שכבתי יעיל יכול להיות מושג גם על ידי ציפוי HIOs על ממברנות פוליקרבונט המרחפים בבארות המכילות מדיום תרבית, המאפשרים גישה למשטח הבזולטרלי. עם זאת, המרחק הגדול יחסית בין הצלחת לבין קרום הפוליקרבונט, קרום הפוליקרבונט עצמו ומשטח הפלסטיק בבסיס הבאר הופכים אותם ללא מתאימים להדמיית אפיפלואורסצנטיות. לפיכך, שיטת הניקוד המתוארת בפרוטוקול זה נותרה הגישה המועדפת. בהתחשב בכך שהניקוד עצמו עלול להוביל להפרעות איתות, הכללת בקרת הניקוד הלא נגועה היא קריטית לפרשנות. עבור וירוסים, כגון נורו-וירוס אנושי, המדביקים ביעילות דרך הממברנה האפיקאלית, ניקוד החד-שכבתי אינו נדרש38.
כמו בכל מערכת הדמיה חיה, פוטוטוקסיות יכולה בקלות לבלבל ניסויים המשתמשים בחד-שכבות HIO. במהלך ניסוי הדמיה, חשוב לעקוב אחר vacuolization בלתי צפוי, blebbing קרום, או אינדיקטורים מורפולוגיים אחרים של מתח39. אם אחד מהסימנים הללו מזוהה, יש להפחית את משך הזמן, התדירות או עוצמת העירור. הגדלת יחס האות לרעש באה לעתים קרובות על חשבון בריאות התא לטווח ארוך ולכן אופטימיזציה אמפירית של פרמטרים היא קריטית. הלבנה, כפי שמצוין על ידי ירידה בעוצמת הפלואורסצנטיות הבסיסית לאורך זמן, היא מבשרת של לחץ תאי ויש להימנע ממנה.
הוויזואליות של נתוני הדמיה יכולה להוביל חוקרים להעדיף ניתוחים איכותיים, ולא כמותיים. עם זאת, כמו בכל מודאליות, מסקנות ניתנות לשחזור דורשות כימות. ניתוח תמונה כמותי מכיל הרבה יותר מורכבות ממה שניתן לכסות בכתב יד בודד, אך כדאי להדגיש כמה נקודות מפתח. ראשית, כימות עקבי דורש רכישה עקבית. צינור ניתוח שפותח עבור קבוצה נתונה של פרמטרי רכישה עשוי שלא להיות יעיל עבור תמונות שנרכשו בתדרים, זמני חשיפה, עוצמות לייזר או אורכי גל שונים. שנית, לריבוי הזיהומים יש השפעה עצומה על תדירות אותות הסידן הנגיפיים. לכן, חשוב להעריך את מספר התאים הנגועים בכל שדה ראייה ולהבטיח עקביות בין תנאי הטיפול. לחלופין, נרמול תדירות האות למספר התאים הנגועים לכל שדה ראייה יכול לסייע בהפחתת השגיאה. לבסוף, בעוד שאינדיקטור הסידן מבוסס mNG (NEMO) שפותח לאחרונה מציע גישה מבטיחה לקביעת ריכוזים מוחלטים של Ca2+ בתאים40, רוב הביו-חיישנים מעבירים רק מידע יחסי על מערכות ביולוגיות. לכן, חיסור רקע, נורמליזציה והשוואה לפקד הם קריטיים.
בעוד פרוטוקול זה מתמקד בהדמיית סידן במהלך זיהום נגיפי, הגישה הכללית ניתנת להתאמה בקלות. זיהום ויראלי יכול בקלות להיות מוחלף במצב טיפול חלופי, ויש מגוון הולך וגדל של biosensors כדי לפקח על מסלולים ותהליכים תאיים רבים ושונים. עם כל התאמת פרוטוקול, החוקרים חייבים לשמור על הניתוח בראש סדר העדיפויות, ולתכנן ניסויים עם תוצאות ברורות וניתנות לכימות.
בסך הכל, הדמיה חיה מספקת רזולוציית זמן ללא תחרות, ומשפרת את אפיון התהליכים הדינמיים ביותר. שילוב אורגנואידים בניסויי הדמיה חיים מאפשר תצפית על תהליכים אלה במודל נאמן לרקמה, רלוונטי מבחינה פיזיולוגית. אנו מקווים שהפרוטוקול המתואר כאן יאפשר תכנון ואופטימיזציה של ניסויים, ויעצים חוקרים לחשוף היבטים חדשים של איתות תאים ורקמות.
גילויים
למחברים אין אינטרסים כלכליים מתחרים לחשוף.
תודות
עבודה זו נתמכה על ידי מענקים R01DK115507 ו R01AI158683 (PI: J. M. Hyser) מהמכונים הלאומיים לבריאות (NIH). תמיכת המתאמנים ניתנה על ידי מענקי NIH F30DK131828 (PI: J.T. Gebert), F31DK132942 (PI: F. J. Scribano) ו- F32DK130288 (PI: K.A. Engevik). ברצוננו להודות למרכז הרפואי טקסס Digestive Diseases Enteroid Core על אספקת אמצעי תחזוקת האורגנואידים.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| DMEM F12 | Gibco | מתקדם 12634028 | |
| [Leu15]-Gastrin I | Sigma-Aldrich | G9145 | |
| 0.05% טריפסין EDTA | גיבקו | ||
| 0.05% טריפסין EDTA | גיבקו | ||
| 25300054 צינורות מיקרוצנטריפוגה 1.5 מ"ל | Fisherbrand | 5408137 | |
| צינורות חרוטיים 15 מ"ל | Thermofisher Scientific | 0553859A | |
| 16% פורמלדהיד | Thermofisher Scientific | 28906 | |
| 1M HEPES | Gibco | 15630080 | |
| 1M HEPES | Gibco | 15630080 | |
| 1X PBS | קורנינג | 21-040-CV | |
| 25 מד מחט | Thermofisher Scientific | 1482113D | |
| A-83-01 | Tocris | 2939 | |
| ADP | Sigma-Aldrich | A2754 | |
| DMEM מתקדם F12 | Gibco | 12634028 | |
| אנטיביוטיקה-אנטי-מיקוציטיקה | גיבקו | 15240062 | |
| אנטיביוטיקה-אנטי-פטרייה | תוסף גיבקו | 15240062 | |
| B27 | Gibco | 17504-044 | |
| אלבומין סרום בקר | FisherScientific | ||
| CellView שקופית תרבית תאים, PS, 75/25 מ"מ, תחתית זכוכית, 10 תאים | גריינר | 543979 | |
| קולגן IV | סיגמא אולדריץ' | C5533 | |
| DAPI | Thermofisher Scientific | D1306 | |
| EDTA | Corning | 46-034-CI | |
| סרום בקר עוברי | קורנינג | 35010CV | |
| סרום בקר עוברי | קורנינג | 35010CV | |
| פלואורובריט | גיבקו | A1896701 | |
| GlutaMAX | גיבקו | ||
| GlutaMAX | גיבקו | ||
| 35050079 גורם גדילה אפידרמלי אנושי | ProteinTech | HZ-1326 | |
| Lentivirus | VectorBuilder | (משתנה) | |
| Matrigel | BD Biosceicen | 356231/CB40230C | |
| תוסף N2 | Gibco | 17502-048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165-5G | |
| NH4Cl | סיגמא-אולדריץ' | A9434 | |
| ניקוטינמיד | סיגמא-אולדריץ' | N0636 | |
| Nunc תרבית תאים מטופלת 24 בארות צלחות | Thermofisher Scientific | 142475 | |
| פוליברן | MilliporeSigma | TR1003G | |
| SB202190 | Sigma-Aldrich | S70767 | |
| Triton X-100 | Fisher BioReagents | BP151100 | |
| אנזים TrypLE Express, ללא פנול אדום | Thermofisher Scientific | 12604013 | |
| טריפסין | וורת'ינגטון | ביוכימי NC9811754 | |
| Y-27632 | Tocris | 1254 |
מקורות
- Bootman, M. D., Bultynck, G. Fundamentals of cellular calcium signaling: A primer. Cold Spring Harb Perspect Biol. 12 (1), a038802(2020).
- Clapham, D. E. Calcium signaling. Cell. 131 (6), 1047-1058 (2007).
- Danese, A., et al. Cell death as a result of calcium signaling modulation: A cancer-centric prospective. Biochim Biophys Acta Mol Cell Res. 1868 (8), 119061(2021).
- Harr, M. W., Distelhorst, C. W. Apoptosis and autophagy: Decoding calcium signals that mediate life or death. Cold Spring Harb Perspect Biol. 2 (10), a005579(2010).
- Barak, P., Parekh, A. B. Signaling through Ca2+ microdomains from store-operated CRAC channels. Cold Spring Harb Perspect Biol. 12 (7), a035097(2020).
- Nakai, J., Ohkura, M., Imoto, K. A high signal-to-noise Ca(2+) probe composed of a single green fluorescent protein. Nat Biotechnol. 19 (2), 137-141 (2001).
- Erofeev, A. I., Vinokurov, E. K., Vlasova, O. L., Bezprozvanny, I. B. GCaMP, a family of single-fluorophore genetically encoded calcium indicators. J Evol Biochem Phys. 59 (4), 1195-1214 (2023).
- Suzuki, J., Kanemaru, K., Iino, M. Genetically encoded fluorescent indicators for organellar calcium imaging. Biophys J. 111 (6), 1119-1131 (2016).
- Nászai, M., Cordero, J. B. Intestinal stem cells: Got calcium. Curr Biol. 26 (3), R117-R119 (2016).
- Barrett, K. E. Calcium-mediated chloride secretion in the intestinal epithelium: Significance and regulation. Curr Top Membr. 53, 257-282 (2002).
- Xu, J., et al. Calcium-sensing receptor regulates intestinal dipeptide absorption via Ca2+ signaling and IKCa activation. Physiol Rep. 8 (1), e14337(2020).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Lin, S. C., Haga, K., Zeng, X. L., Estes, M. K. Generation of CRISPR–Cas9-mediated genetic knockout human intestinal tissue–derived enteroid lines by lentivirus transduction and single-cell cloning. Nat Protoc. 17 (4), 1004-127 (2022).
- Crawford, S. E., Ramani, S., Blutt, S. E., Estes, M. K. Organoids to dissect gastrointestinal virus-host interactions: What have we learned. Viruses. 13 (6), 999(2021).
- Lambert, T. J. FPbase: a community-editable fluorescent protein database. Nat Methods. 16 (4), 277-278 (2019).
- Lai, Y., et al. Inhibition of calcium-triggered secretion by hydrocarbon-stapled peptides. Nature. 603 (7903), 949-956 (2022).
- Chang-Graham, A. L., et al. Rotavirus induces intercellular calcium waves through ADP signaling. Science. 370 (6519), eabc3621(2020).
- Lee, B., et al. Anoctamin 1/TMEM16A controls intestinal Cl− secretion induced by carbachol and cholera toxin. Exp Mol Med. 51 (8), 1-14 (2019).
- Saha, T., et al. Intestinal TMEM16A control luminal chloride secretion in a NHERF1 dependent manner. Biochem Biophys Rep. 25, 100912(2021).
- Mroz, M. S., Keely, S. J. Epidermal growth factor chronically upregulates Ca2+-dependent Cl− conductance and TMEM16A expression in intestinal epithelial cells. J Physiol. 590 (8), 1907-1920 (2012).
- Sui, J., et al. Dual role of Ca2+-activated Cl− channel transmembrane member 16A in lipopolysaccharide-induced intestinal epithelial barrier dysfunction in vitro. Cell Death Dis. 11 (5), 404(2020).
- Bellono, N. W., et al. Enterochromaffin cells are gut chemosensors that couple to sensory neural pathways. Cell. 170 (1), 185-198.e16 (2017).
- Paradis, T., Bègue, H., Basmaciyan, L., Dalle, F., Bon, F. Tight junctions as a key for pathogens invasion in intestinal epithelial cells. Int J Mol Sci. 22 (5), 2506(2021).
- Samak, G., et al. Calcium/Ask1/MKK7/JNK2/c-Src signalling cascade mediates disruption of intestinal epithelial tight junctions by dextran sulfate sodium. Biochem J. 465 (3), 503-515 (2015).
- Deng, H., Gerencser, A. A., Jasper, H. Signal integration by Ca2+ regulates intestinal stem cell activity. Nature. 528 (7581), 212-217 (2015).
- Saurav, S., Tanwar, J., Ahuja, K., Motiani, R. K. Dysregulation of host cell calcium signaling during viral infections: Emerging paradigm with high clinical relevance. Mol Aspects Med. 81, 101004(2021).
- Chang-Graham, A. L., et al. Rotavirus calcium dysregulation manifests as dynamic calcium signaling in the cytoplasm and endoplasmic reticulum. Sci Rep. 9 (1), 10822(2019).
- Hyser, J. M., Collinson-Pautz, M. R., Utama, B., Estes, M. K. Rotavirus disrupts calcium homeostasis by NSP4 viroporin activity. mBio. 1 (5), e00265-e00310 (2010).
- Pham, T., Perry, J. L., Dosey, T. L., Delcour, A. H., Hyser, J. M. The Rotavirus NSP4 viroporin domain is a calcium-conducting ion channel. Sci Rep. 7, 43487(2017).
- Crawford, S. E., Hyser, J. M., Utama, B., Estes, M. K. Autophagy hijacked through viroporin-activated calcium/calmodulin-dependent kinase kinase-β signaling is required for rotavirus replication. Proc Natl Acad Sci U S A. 109 (50), E3405-E3413 (2012).
- Crawford, S. E., Criglar, J. M., Liu, Z., Broughman, J. R., Estes, M. K. COPII vesicle transport is required for Rotavirus NSP4 interaction with the autophagy protein LC3 II and trafficking to viroplasms. J Virol. 94 (1), e01341(2019).
- Pando, V., Iša, P., Arias, C. F., Ló Pez, S. Influence of calcium on the early steps of Rotavirus infection. Virology. 295 (1), 190-200 (2002).
- Hyser, J. M., Estes, M. K. Pathophysiological consequences of calcium-conducting viroporins. Annu Rev Virol. 2 (1), 473-496 (2015).
- Strtak, A. C., et al. Recovirus NS1-2 has viroporin activity that induces aberrant cellular calcium signaling to facilitate virus replication. mSphere. 4 (5), e00506-e00519 (2019).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), 59357(2019).
- Hirota, A., AlMusawi, S., Nateri, A. S., Ordóñez-Morán, P., Imajo, M. Biomaterials for intestinal organoid technology and personalized disease modeling. Acta Biomater. 132, 272-287 (2021).
- Cevallos Porta, D., López, S., Arias, C. F., Isa, P. Polarized rotavirus entry and release from differentiated small intestinal cells. Virology. 499, 65-71 (2016).
- Mirabelli, C., et al. Human Norovirus efficiently replicates in differentiated 3D-human intestinal enteroids. J Virol. 96 (22), e0085522(2022).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 28749075(2017).
- Li, J., et al. Engineering of NEMO as calcium indicators with large dynamics and high sensitivity. Nat Methods. 20 (6), 918-924 (2023).
הדפסות חוזרות והרשאות
