מחקר זה מציג בדיקת FRET רציומטרית פשוטה וידידותית למשתמש לאיתור והערכה כמותית של פעילות DNase, ומדגים את יישומו בניתוח נוקלאז חלש.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
הערכת פעילות DNase על ידי העברת אנרגיית תהודה פלואורסצנטית רציומטרית
במאמר זה
סיכום
תקציר
הפרוטוקול הנוכחי מתאר בדיקת העברת אנרגיה תהודה של פרסטר (FRET) פשוטה ורגישה לזיהוי והערכה כמותית של פעילות DNase. מדידות FRET רציומטריות עושות שימוש ביחס בין אותות הפליטה של התורם והמקבל. הבדיקה מזהה שברי DNA חד-גדיליים באמצעות אוליגופרוב FRET 38-mer בצורת סיכה, בעל תיוג כפול, המשמש כחיישן מחשוף DNA בזמן אמת. היישום העיקרי של הגישה המתוארת הוא הערכה כמותית של ההשפעות של תנאי תגובה, כגון pH, טמפרטורה והרכב חיץ, על פעילות ה-DNase. בשל יכולתו לזהות אפילו מחשוף DNA קל ואיטי, הבדיקה מתאימה במיוחד לחקירת פעילות נוקלאוליטית חלשה הדורשת תקופות ממושכות של תצפית ולחקר השפעות ה-pH על פעילות ה-DNase. היתרונות הספציפיים הללו של פרוטוקול FRET רציומטרי זה מודגמים על ידי יישומו לזיהוי וניתוח של פעילות ה-DNase של מעכב אלסטאז לויקוציטים (LEI).
מבוא
גישת הקרינה היחסית היא שיטה אנליטית המשתמשת ביחסים של אותות פלואורסצנטיים במקום להסתמך אך ורק על העוצמה של אות בודד 1,2. היתרון בשימוש ביחסים הוא שהם מספקים כיול פנימי ומפצים על גורמים אקראיים רבים, כגון וריאציות בריכוזי הדגימה והבדיקה, פרמטרים של מכשירים וכו'. זה משפר את הדיוק והרגישות של בדיקות פלורסנט.
בהקשר הספציפי של בדיקות העברת אנרגיית תהודה של פורסטר (FRET), המונח "יחס מטרי" מתייחס לעובדה שהמדידה מבוססת על היחס בין שני אותות פליטה מצמד הפלואורופורים התורמים והמקבלים. כדי לכמת את הפעילות של אנליט המטרה, בדיקות FRET רציומטריות משתמשות ביחס בין עוצמות הפליטה של המקבל/תורם (או, במקרים מסוימים, יחס התורם/מקבל ההפוך). היחס קשור ישירות ליעילות ה-FRET. הוא מספק מנגנון נורמליזציה עצמית הממזער רעשי רקע ומביא בחשבון שינויים בתנאי התאורה וריכוז הבדיקה3.
היישומים המעניינים האחרונים של שיטת היחס כוללים את השימוש בה בביו-חיישנים אלקטרוכימיים רציומטריים לזיהוי DNA של גידול במחזור (ctDNA)4,5, בביו-ננו-מכונות המופעלות על ידי תנועה בראונית לזיהוי FRET של השלב הפגוציטי של אפופטוזיס6, ולתיוג וניתוח FRET אקספרס של פינוי פגוציטי7. גישת ה-FRET היחסית המתוארת בעבודה זו שימושית להערכה כמותית של פעילות DNase. מדידות הבדיקה מבוססות על היחסים בין פליטות זוג ה-FRET. בשל יכולתו לזהות אפילו מחשוף DNA קל ואיטי, הבדיקה מתאימה במיוחד לחקירת פעילות נוקלאוליטית חלשה הדורשת תקופות תצפית ארוכות יותר ולניסויים ברמות pH שונות.
כאן, כמה יתרונות ספציפיים של בדיקת FRET היחסית מומחשים על ידי היישום שלה לחקר פעילות ה-DNase של מעכב אלסטאז נוקלאז-לויקוציטים חלש (LEI). הדוח כולל פרוטוקול מפורט עם הוראות שלב אחר שלב ותיאור של ניתוח הנתונים היחסיים.
תיאור בדיקת FRET רציומטרי
בדיקת ה-FRET היחסית היא אוליגו DNA 38-mer משלים את עצמו הנושא את זוג ה-FRET התורם-מקבל של FAM-TAM (Fluorescein-Tetramethylrhodamine). הרצף שלו הוא 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. ה-38-mer ההכלאה העצמית מניחה קונפורמציה בצורת סיכות, המורכבת משתי סיכות שיער מחוברות של 23 ו-15 נוקלאוטידים, הממקמות את שני הפלואורופורים שלו במרחק של 23.8 Å זה מזה. זה קרוב משמעותית לרדיוס פורסטר עבור זוג זה, R0 = 55 Å8. מיקום כזה מתאים ליעילות גבוהה מאוד של העברת אנרגיה מהתורם למקבל7: EFRET = 0.993477. כתוצאה מכך, כאשר הוא מואר באורך גל עירור FAM (488 ננומטר), בדיקת ה-FRET פולטת פלואורסצנטיות באורך גל הפליטה של ה-TAM המקבל (580 ננומטר), בעוד שפליטת FAM (525 ננומטר) מדוכאת.
איור 1A מציג את המבנה המשני החזוי של UNAFold, עם לולאות קטנות בשני קודקודי סיכות הראש עקב עיכוב סטרי מעקמומיות הדוקה. הסכימה של זיהוי שבירת DNA על ידי בדיקת FRET מוצגת באיור 1B. זה מראה ששבירה של האוליגופרוב על ידי DNase מפרידה את זוג ה-FRET שלו. הפרדה זו מייצרת שינויים דרסטיים בספקטרום הפליטה של שני הפלואורופורים בבדיקה. איור 1C מציג את ספקטרום פליטת הבדיקה לפני ואחרי הפיצול שלו ומדגים כי הפיצול של זוג ה-FRET לאחר מחשוף בדיקת DNase II מגדיל את פליטת התורם ב-525 ננומטר (ID 525 ננומטר) ובמקביל מפחית את פליטת המקבל ב-580 ננומטר (IA 580 ננומטר). איור 1D מציג את יחסי הג'ל וה-FRET של PAGE המתאימים לספקטרום הפליטה. מחשוף בדיקת DNase II יצר שתי רצועות רחבות המתאימות לשברי FAM 12-16-mer (ירוק) ו-20-24-mer TAM (אדום), מה שמעיד על חתכים אקראיים של 38-mer משני צידי T23 בקרבת אזור החיבור בין סיכות השיער.
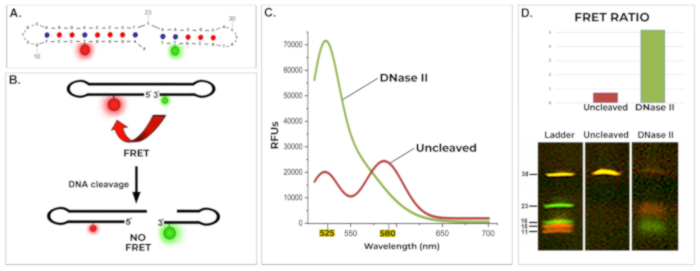
איור 1: מבנה ותפעול של בדיקת FRET היחסית. (A) מבנה משני חזוי של בדיקת FRET שנוצרה על ידי UNAFold. (B) ייצוג סכמטי של בדיקת ה-FRET העובדת. בדיקת ה-FRET היחסית היא אוליגונוקלאוטיד 38-mer בצורת סיכות המסומן עם תורם FRET (FAM) ומקבל (TAM) במרחק FRET אפקטיבי של 23.8 Å, מה שמבטיח יעילות FRET של >99%. מחשוף של האוליגופרוב על ידי DNase מפריד בין זוג ה-FRET, ומבטל את FRET. (C) ספקטרום הפליטה של בדיקת FRET לפני ואחרי מחשוף בתיווך DNase II. לפני המחשוף, פליטת FAM מדוכאת, ופליטת TAM בולטת. מחשוף בתיווך DNase מפריד בין FAM ל-TAM, משחזר את פליטת ה-FAM (שיא של 525 ננומטר) ומבטל את פליטת ה-TAM (ירידה של 580 ננומטר). λ עירור = 488 ננומטר. (D) הערכה רציומטרית ואלקטרופורטית של בדיקת FRET לפני ואחרי מחשוף DNase II. פאנל עליון: יחסי FRET (RD / A = ID 525 ננומטר / IA 580 ננומטר), המייצגים מדד כמותי של מצב הבדיקה. אדום: ללא שבירה; ירוק: DNase II-שסוע. פאנל תחתון: דנטורציה של ג'ל PAGE המתאים לנתונים פלואורומטריים. מחשוף DNase II מניב שברים המסומנים ב-FAM (12-16 nt, ירוק) ושברים מסומנים ב-TAM (20-24 nt, אדום), המעידים על מחשוף ליד החיבור בין סיכות השיער, משני צדי T23. בקרה לא מחוספסת מראה פלואורסצנטיות צהובה. סולם: אוליגונוקלאוטידים המסומנים ב-FAM ו-TAM המתאימים למקטעים 5' ו-3' של הגשושית 38-mer, עם תוויות פלואורסצנטיות במיקומם המקורי. תנאי תגובה: מאגר נתרן אצטט 10 מ"מ (pH 5.2), בדיקה 1 pmol/μL FRET, 0.0033 U/μL DNase II, 24 שעות ב-37 מעלות צלזיוס. RD/A = ID 525 ננומטר/IA 580 ננומטר; λ עירור = 488 ננומטר. תנאים לא קיימים: בדיקה 1 מיקרומטר FRET, 10 מ"מ Na+, 0 מ"מ מ"ג2+, 37 מעלות צלזיוס. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
בעוד שהשינויים בספקטרום פליטת הבדיקה הבודדת ברורים, השוואות כמותיות בין מספר רב של ספקטרום פליטה דורשות פרמטר כמותי ידידותי וקומפקטי יותר למשתמש. תפקיד זה ממלא יחס FRET. שיטת הקרינה המוצגת שייכת לקבוצה של גישות רציומטריות המסתמכות על היחסים הישירים (דו-ערוציים) של פליטות הקרינה של חברי זוג FRET לצורך ההערכות הכמותיות שלהם 2,9.
הגישה משתמשת ביחס בין פליטות תורם/מקבל (RD/A = ID 525 ננומטר / IA 580 ננומטר), הקשור ליעילות ה-FRET ומאפיין כמותית את מצבו של ה-38-mer (שבור או שלם). יחס ID / IA מספק מנגנון נורמליזציה עצמית המסביר מטבעו שינויים בגורמים כגון ריכוז בדיקה, עוצמת עירור והלבנת פוטו3. הגישה מתאימה רק לבדיקות FRET שיש לתורם ומקבל מקושרים בתוך אותה בדיקה, כאשר היחס ביניהם ידוע וקבוע. מסיבה זו, הגישה אינה צריכה לקחת בחשבון את העירור הישיר של המקבל או התורם2. הסטוכיומטריה הקבועה של תורם-מקבל של הגשושית מבטיחה שיחסי הפליטה של התורם/מקבל אינם מושפעים משינויים אלה ומשקפים ישירות את מצב הבדיקה. כתוצאה מכך, היחס בין פליטות תורם-מקבל מספק פרמטר מחשוף DNA כמותי עם נורמליזציה מובנית של אותות 2,3.
הבדיקה משתמשת ביחס ID / IA ( ולא ביחס IA / ID הפוך) מכיוון שיחס זה מתאר הפסקת FRET לאחר מחשוף בדיקה ובכך משתנה באותו כיוון כמו פעילות DNase - הגדלת עם מחשוף מוגבר. זה מומחש על ידי איור 1D, המציג את יחס ה-FRET של הגשושית היחסית והאלקטרופורזה של PAGE שלה לפני ואחרי הפיצול שלה על ידי DNase II, שניהם תואמים לספקטרום באיור 1C. כדי להדגים את הנוחות, החיסכון בזמן וקלות השימוש של בדיקת ה-FRET היחסית, היא יושמה כדי לחשוף ולחקור את פעילות ה-DNase של מעכב אלסטאז נוקלאז-לויקוציטים חלש (LEI).
נוקלאז LEI חלש
מעכב פרוטאז LEI הוא מטה-יציב באופן טבעי, כלומר לא מאוזן טופולוגית. תכונה זו חיונית למנגנון המעכב שלה. כאשר פרוטאז המטרה שלו מבקע את לולאת האתר התגובתי של LEI (RSL), מולקולת מעכב הפרוטאז עוברת שינוי קונפורמציה דרסטי, ומותחת מכנית את הפרוטאז לצורה לא פעילה10,11. למרבה הפלא, זה גם שובר ומרחיב את מולקולת ה-LEI עצמה וחושף אתר DNase קריפטי המכוסה בקפל המקורי שלו, ובכך ממיר LEI לאנדונוקלאז פעיל L-DNase II (DNase II שמקורו ב-LEI)11,12. אתר ה-DNase הקריפטי יכול להיחשף גם על ידי דנטורציה ושבירה של LEI הנגרמים על ידי הדגירה הלילית שלו ב-pH 2 בחומצה גופרתית10,13. השימוש במבחן FRET זה לחקר LEI הראה כי טיפולי דנטורציה כימיים קשים ומחשוף אנזימטי ממוקד אינם נדרשים בקפדנות כדי לחשוף את הפעילות הנוקליאוליטית הסמויה של LEI.
היישום והפרוטוקול המוצגים של גישת ה-FRET היחסי מתארים את חשיפת פעילות ה-DNase החלשה הקיימת מטבעה ב-LEI רגיל ולא מפורק. גילוי היכולת הנוקלאוליטית הפנימית של LEI ללא פיצול וניתוחו התאפשרו בשל התאמת הבדיקה לתקופות ממושכות של תצפית ברמות pH חומציות שונות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
הערכת פעילות DNase על ידי העברת אנרגיית תהודה פלואורסצנטית רציומטרית
השיטה מתאימה לאיתור וניתוח התכונות הנוקליאוליטיות של חלבון מסיס. כדי לבחון את תלות ה-pH של ה-DNase שנחקר, ההליך מעריך בו זמנית את פעילות ה-DNase על פני מגוון ערכי pH. ניתן להשתמש בטכניקה כדי לחקור פעילויות נוקלאז חלשות ואיטיות. פרטי הריאגנטים והציוד המשמש במחקר זה מפורטים בטבלת החומרים.
1. הכנת רכיבי תערובת הדגירה למערכת ההערכה הפלואורומטרית
- הכן את תמיסות החיץ בטווחי pH רצויים. לטווח pH 6.8 עד 8.0, השתמש ב-Tris-HCl או חוצצי פוספט. השתמש במאגר Tris-HCl לתנאי pH פיזיולוגיים (pH 7.2 עד 8.0) בשל יציבותו והפרעה מינימלית לפעילות האנזים.
הערה: חוצצי פוספט מתאימים לטווח pH זה אך פחות מתאימים לערכי pH גבוהים יותר (>7.5) בשל מגבלות יכולת החציצה שלהם.
לטווח pH של 4.2 עד 7.2, השתמש במאגרי אצטט או ציטראט. חוצץ אצטט יעיל לתנאי pH נמוכים יותר, עד pH 4.2.
הערה: מאגר ציטראט ניתן לשימוש בערכי pH מעט גבוהים יותר (pH 5.6 עד 7.2) ומציע יכולת חציצה טובה. מאגרים אלה מתאימים לחקר פעילות DNase בתנאים חומציים עד ניטרליים. המחקר שהוצג על הפעילות הנוקליאוליטית של LEI השתמש במאגרי נתרן אצטט של 10 מ"מ עם pH שנע בין 4.8 ל-6.5. - מדללים את דגימת החלבון לריכוז מתאים בכל תמיסת חיץ. כאשר הפעילות בדגימה אינה ידועה לחלוטין, הכינו מגוון של דילולים של החלבון. הדילול האופטימלי תלוי בעוצמת פעילות ה-DNase ויש לקבוע אותו בניסוי על ידי בדיקת מספר ריכוזי חלבון.
הערה: המחקר שהוצג על הפעילות הנוקליאוליטית החלשה במיוחד של LEI השתמש בו בריכוז של 1 מיקרומטר.- בדוק תמיד את ה-pH של התמיסה הסופית בעת שימוש במאגרים מרוכזים מאוד, מכיוון שה-pH של מאגרים מרוכזים יכול להשתנות עם הדילול.
- הכן את תמיסת בדיקת ה-FRET היחסית במים נטולי נוקלאז. השתמש בריכוזי בדיקה FRET הקרובים ל-1 מיקרומטר (1 pmol/μL). הימנע משימוש בריכוזי בדיקה גבוהים מאוד.
מחממים ומקררים במהירות את תמיסת הבדיקה לפני היישום כדי להבטיח דיסוציאציה מוחלטת של זיווגי בסיס לא רצויים.
הערה: המחקר שהוצג על הפעילות הנוקלאוליטית של LEI השתמש בריכוז של 1 מיקרומטר (1 pmol/μL) של בדיקת FRET במים נטולי נוקלאז.
2. אינדוקציה של תגובת ה-DNase באמצעות בדיקת FRET היחסית כמצע
- הכן שלוש בארות בצלחת של 96 בארות עבור כל מצב pH שייבדק. כלול שלוש בארות נוספות, כל אחת עבור הבקרות החיוביות והשליליות.
- בכל באר לסדרת ה- pH, שלב את הדברים הבאים:
70 מיקרוליטר מים נטולי גרעין
10 מיקרוליטר של מאגר 10X (מאגר לבחירתך)
10 מיקרוליטר דגימה עם חלבון
10 מיקרוליטר של תמיסת בדיקה רציומטרית (ריכוז מלאי של 10 pmol/μL)
הערה: המחקר שהוצג על הפעילות הנוקליאוליטית של LEI ב-pH חומצי השתמש במאגר 10X הבא: 100 מ"מ Na אצטט pH 5.2 - בכל באר בקרה חיובית, שלב את הדברים הבאים:
79 מיקרוליטר מים נטולי גרעין
10 מיקרוליטר של מאגר 10X DNase II (100 מ"מ עם pH אצטט 5.2)
0.33 μL של DNase II (מלאי U/μL אחד)
10 מיקרוליטר של תמיסת בדיקה רציומטרית (ריכוז מלאי של 10 pmol/μL)
הערה: למחקרים על pH חומצי, השתמשו ב-DNase II כבקרה חיובית. בעת הערכת פעילות DNase ליד pH 7 (במיוחד pH 6.5-8), עבור ל-DNase I והמאגר הקשור אליו (למשל, 10 מ"מ Tris-HCl, 2.5 מ"מ MgCl2, 0.5 מ"מ CaCl2, pH 7.6) במקום DNase II ומאגר אצטט. - בכל באר בקרה שלילית הוסף מים נטולי נוקלאז במקום דגימת החלבון.
- בכל באר לסדרת ה- pH, שלב את הדברים הבאים:
- לגרום לתגובת ה-DNase על ידי הוספת תמיסות הבדיקה לתערובות התגובה המכילות חלבון DNase בערכי pH שונים.
הערה: מערבבים היטב את כל הדגימות תוך הימנעות מהיווצרות בועות. עבור דגימות DNase פעילות, התחל את כל התגובות קרוב ככל האפשר לבו זמנית. עבור פעילות חלשה במיוחד, כמו זו של LEI, תזמון קפדני הוא פחות קריטי.
הערה: כדי להבטיח זמני דגירה עקביים, במיוחד כאשר עוסקים בנוקלאזות פעילות, יש להקדים את הוספת הדגימות על סמך הזמן הנדרש לכל מדידה. לדוגמה, אם כל מדידה אורכת 10 שניות, הוסף את הדגימה השנייה 10 שניות אחרי הראשונה.
3. דגירה
- דגור את ה-DNase שנחקר עם בדיקת FRET רציומטרית ב-37 מעלות צלזיוס באמבט מים או בחממה מווסתת טמפרטורה לפרקי זמן שונים. השתמש במספר נקודות זמן עם מרווחי דגימה קבועים כדי להעריך במדויק את שיעורי תחלופת האנזימים ולמזער חפצים. המחקר שהוצג על הפעילות הנוקלאוליטית החלשה במיוחד של LEI השתמש בדגירות של 24 שעות כדי לרשום את התגובה הנוקלאוליטית האיטית.
הערה: קבע את זמן הדגירה האופטימלי בניסויים המקדימים, מכיוון שהוא תלוי בחוזק ה- DNA שנחקר. נוקלאז פעיל ידרוש זמן קצר מאוד כדי להשלים את מחשוף הבדיקה, אז התחל עם דגירה של 15-30 דקות. אם הדגימה מרוכזת מדי, והתגובה מהירה מדי, יש להפחית את ריכוז החלבון. אם חלבון הדגימה חלש מדי, זמן הדגירה יכול לגדול לפי הצורך.
4. נורמליזציה של אותות לאותם תנאי pH
- עצור את כל תגובות הדגירה על ידי הוספת 100 מיקרוליטר של 250 מ"מ Tris-HCL (pH 8.0). שלב זה גם משווה את ה-pH בכל הדגימות.
הערה: שלב השוואת ה-pH חשוב בעת השוואת תגובות שהחלו בתנאי pH שונים. ההליך מבטיח הפרדה מוחלטת של שברי הגשושית וממקסם את האות מבוסס ה-FRET. בנוסף, פליטת הפלואורופור FAM של הגשושית מופחתת ב-pH חומצי והיא אופטימלית ב-pH 8.0. עבור דגימות בעלות חוזק יוני גבוה יותר מאלה ששימשו במחקר זה, ייתכן שתידרש תמיסת השוואה מרוכזת יותר (>250 מ"מ) ו-pH גבוה יותר (>8.0) כדי להשיג התאמת pH יעילה.
הערה: pH אלקליין עוצר ביעילות את פעילותם של נוקלאזות חומצה כגון LEI, כפי שהודגם במחקר הנוכחי. עבור נוקלאזות ניטרליות או אלקליין, יש לזהות וליישם שיטות הפעלה ספציפיות מתאימות לפני הערכת האות.
5. זיהוי אותות פלואורומטרי וחישוב יחסי FRET
- מיד לאחר שלב השוואת ה-pH, השתמש בספקטרופלואורומטר כדי לתעד את ספקטרום הפליטה של הפלואורופורים התורמים והמקבלים. בצע מדידות ישירות בצלחת 96 הבארות על ידי גירוי הפלואורופור התורם ב-488 ננומטר ובמקביל זיהוי פליטות ב-525 ננומטר (תורם) ו-580 ננומטר (אות מקבל שמקורו ב-FRET).
- השתמש בעוצמות הקרינה המתועדות כדי להעריך את פעילות ה-DNase בכל דגימה. ליישם שיטות סטטיסטיות מתאימות לניתוח הנתונים ולהערכת מובהקות.
הערה: חשב את יחס ה-FRET באמצעות הנוסחה: RFRET = פליטת תורם ב-525 ננומטר/פליטת מקבל ב-580 ננומטר. בבדיקה זו, מחשוף ה-DNA משבש את ה-FRET על ידי הפרדת הפלואורופורים, וכתוצאה מכך פליטת תורם מוגברת ופליטת מקבל. שינוי זה מעלה את יחס ה-FRET (RFRET), המשמש כאינדיקטור לפעילות DNase.
6. אימות מחשוף מבוסס PAGE
- אמת את המחשוף של בדיקת ה-FRET על ידי ביצוע אלקטרופורזה של ג'ל פוליאקרילאמיד (PAGE)14. בדיקת ה-FRET ומוצרי המחשוף שלה מסומנים באופן פלואורסצנטי ונראים ללא כתמים נוספים.
הערה: במחקר המייצג, מחשוף בתיווך LEI של בדיקת FRET 38-mer אושר על ידי דנטורציה של PAGE (ראה איור 2). הניתוח גילה כי LEI ייצר שברים עם תווית FAM של 6-8 וקטעים עם תווית של 15-16 מר, התואמים את המחשוף ליד שני קודקודי סיכת הראש. דפוס זה היה שונה מפרופיל השבר שנוצר על ידי DNase II.- טען 15 מיקרוליטר מכל דגימה על ג'ל PAGE לדנטורציה של 20%.
- הפעל את הג'ל למשך שעה אחת ב 100 וולט.
- רכוש תמונות ג'ל באמצעות מערכת תיעוד המצוידת במצלמה צבעונית ברזולוציה גבוהה.
הערה: התמונות במחקר המייצג צולמו באמצעות מצלמת SLR דיגיטלית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
מחקר מייצג זה מדגיש יתרונות ספציפיים של גישת FRET רציומטרית לחקירת תגובות אנזימטיות איטיות הדורשות תקופות תצפית ממושכות. בפרט, האפליקציה מדגימה את הזיהוי והניתוח של פעילות ה-DNase הטבועה ב-LEI באמצעות מערכת FRET רציומטרית. תוצאות המחקר הזה מוצגות באיור 2.
באמצעות גישה זו, הראינו כי LEI מפגין פעילות DNase בתנאים חומציים קלים מבלי לדרוש הפעלה אנזימטית באמצעות מחשוף או חשיפה לטיפולים כימיים קש...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
מחקר זה מדגים את היישום של FRET רציומטרי לזיהוי והערכה של פעילות DNase באמצעות נוקלאז חלש - מעכב אלסטאז לויקוציטים (LEI). הגישה מספקת שיטה נוחה וכמותית להערכת תכונות ה-DNase של חלבונים וביו-מולקולות. הפרוטוקול שלו פשוט והליך ניתוח הנתונים שלו ישיר ופשוט. הבדיקה משתמשת בבדיקת FRET 38-mer הסובלת דגירות ארוכות ב-pH חומצי שונה. תכונה זו, כפי שהדגמנו, מאפשרת לבדיקה לזהות אפילו מחשוף DNA קל ואיטי. יציבות כזו מציעה יתרון מובהק על פני שיטות אחרות מבוססות בדיקות, כגון משואות מולקולריות
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
למחברים אין מה לחשוף.
תודות
מחקר זה נתמך על ידי מענק R01 GM148812 מהמכון הלאומי למדעי הרפואה הכללית, NIH; על ידי מענקים R21 CA255979 מהמכון הלאומי לסרטן, NIH; ומענקים R21 AG073887 ו-R21 AG071978 שניהם מהמכון הלאומי להזדקנות, NIH (כולם V.V.D).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| צלחת 96 באר | בז | 353219 | |
| בדיקת DNA FRET | דנ"א IDT | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3'; FAM – פלואורסצאין-dT; TAM – טטרמתילרודמין-dT. | |
| דנאס II | סיגמא אולדריץ' | D8764 | |
| מצלמת SLR דיגיטלית EVOLT | אולימפוס | E500 | |
| מכשיר אלקטרופורזה ג'ל עם ספק כוח | ביו-ראד | ||
| ליי | נובופרוטאין | CJ01 | |
| מערכת הדמיית ג'ל LiCOR | LiCOR | ||
| מים ללא נוקלאז | Invitrogen | 10977015 | |
| ג'ל PAGE יצוק מראש | Invitrogen | EC68852 | |
| תמיסת חיץ נתרן אצטט pH 5.2 | סיגמא אולדריץ' | S2899-100 מ"ל | |
| ספקטרופלואורומטר | טקאן | ספייר 2 |
מקורות
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
