פרוטוקול זה מפרט הכנה של מדיה מוגבלת ב-Zn2+, כלי גידול ותרביות זרעים לייצור ריבוזומים מוגבלים ב-Zn2+ במיקובקטריה. עקבות של Zn2+ מובילים לצמיחה מגבילה של Zn2+ ואנו מתארים תכונות מורפוגניות המשמשות כאינדיקטורים ביולוגיים לאימות מגבלת Zn2+ במבחנה בחיידק המודל, Mycobacterium smegmatis, והפתוגן האנושי M. tuberculosis.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
שימוש ב-Mycobacterium smegmatis כאינדיקטור ביולוגי לתנאי גידול מוגבלים באבץ במיקובקטריה
* These authors contributed equally
במאמר זה
סיכום
תקציר
חיידקים רבים בונים ריבוזומים חלופיים בתנאי גידול מגבילים של Zn2+ על ידי החלפת חלבונים ריבוזומליים קושרים Zn2+ בפרלוגים בלתי תלויים ב-Zn2+. הגדרת מערכת לחקר הריבוזומים החלופיים הללו הוכחה כקשה מכיוון שזיהום Zn2+ במעבדה נפוץ. כדי לטפל בבעיה זו, לפעמים מוסיפים חומרי כלאט למצע הגדילה, אך גישה זו מרכזת את התגובה הביולוגית להגבלה הדרגתית של Zn2+ וקשורה לתרדמת ריבוזום. כאן, מתוארות הוראות מפורטות להכנת מדיה וזריעה של תרביות לגידול מוגבל Zn2+ ללא הוספת כלאטורים. בעקבות שיטה זו, חיידק המודל, Mycobacterium smegmatis, עובר מורפוגנזה, התלויה בריבוזומים חלופיים. מכיוון שמורפוגנזה ניתנת למעקב ומתרחשת רק בתנאים מגבילים של Zn2+, M. smegmatis יכול לשמש כאינדיקטור ביולוגי לאימות תנאי גידול רלוונטיים מבחינה ביולוגית. מתוארים שלושה פנוטיפים ביו-אינדיקטורים (צפיפות תאים, אורך תא וקואנזים F420 פלואורסצנטי) המצביעים על מגבלת Zn2+ בסוג הבר, ומתוארים שינויים בביו-אינדיקטורים אלה למוטציה מחיקה שאינה יכולה לבנות ריבוזומים חלופיים. מכיוון שקשה לשלוט בזיהום עקבות Zn2+ עבור כל אצווה של מדיה, וכימות מדויק של Zn2+ בכל הכנת מדיה מכביד מדי, מעקב אחר פנוטיפ ביו-אינדיקטור זה הוא דרך נגישה לאמת את ההכנה של מצע גידול מוגבל Zn2+. כדי לסייע בזיהוי תנאים נאותים לצמיחה המגבילה Zn2+ וייצור ריבוזום חלופי, שינויים בפנוטיפים הביו-אינדיקטורים תוארו גם עבור תכשירים מזוהמים Zn2+ או מדוללים מאוד Zn2+ של מדיה מוגבלת Zn2+. מוצגים פרטים נוספים להשגת צמיחה מגבילה של Zn2+ וייצור ריבוזום חלופי ב-M. tuberculosis, יחד עם הפנוטיפ הביו-אינדיקטור הקשור אליו. בסך הכל, ההוראות המפורטות והפנוטיפים הביו-אינדיקטורים המתוארים כאן יעזרו לתקנן את הייצור של ריבוזומים חלופיים פעילים בתרגום במיקובקטריה.
מבוא
יון אבץ (Zn2+) הוא מיקרו-נוטריינט חיוני ומרכיב סטנדרטי במדיה מיקרוביולוגית. עם זאת, חיידקים רבים סובלים ממגבלת Zn2+ בסביבה מכיוון שתנאים מגבילים של Zn2+ נפוצים; soil1, marine2, ונישות בתוך המארח3 הן לרוב מוגבלות Zn2+. ככזה, רוב החיידקים פיתחו מנגנונים להתגבר על מגבלת Zn2+ ולשמר תפקוד תאי4. מערכות המעורבות בשמירה על הומאוסטזיס Zn2+ נמצאות תחת בקרת שעתוק הדוקה5 ועוסקות בניקוי Zn2+ באמצעות מערכות ייבוא Zn2+ בעלות זיקה גבוהה, גיוס עתודות Zn2+ סלולריות והחלפת חלבונים מסוימים הקשורים ל-Zn2+ בפרלוגים חלופיים בלתי תלויים ב-Zn2+6. דוגמה לאחרון היא פרלוגים של חלבון ריבוזומלי (RPs) בלתי תלוי ב-Zn2+, שהם מאפיין נפוץ של רגולונים מגיבים ל-Zn2+ בחיידקים4. RPs בלתי תלויים ב-Zn2+ שונים מאוד נבדלים מהפרלוגים המחייבים של Zn2+ שלהם על ידי שיבוש מוטיב CXXC מחייב Zn2+7. יותר ממחצית הגנומים הפרוקריוטיים המרוצפים מכילים לפחות זוג אחד של RPs משוכפלים, כאשר ברבים מהם, RP אחד קושר Zn2+, בעוד שהפרלוג שלו אינו 8. בעוד שסימון C+/C- (המציין את נוכחות/היעדר מוטיב הקישור Zn2+ העשיר בציסטאין) משמש בדרך כלל בהתייחס לזוגות RP פרלוגיים אלה7, RPs בלתי תלויים ב-Zn2+ תוארו גם כגרסאות חלופיות (Alt) של פרלוגים RP ראשוניים (Prim), Zn2+, מכיוון ש-AltRPs משמשים כ-RPs חלופיים לביוגנזה של ריבוזום ב-Zn2+-מצב מוגבל בחיידקים מסוימים וזו מילת מפתח עם יכולת חיפוש טובה יותר9,10,11.
מכיוון שביטוי AltRP מווסת היטב על ידי Zn2+, הגיוני להניח שביטוי AltRP מציע יתירות תפקודית לחלבונים ריבוזומליים תלויי Zn2+ לנוכח מגבלת Zn2+. ואכן, תכונה זו של AltRPs הודגמה עבור חיידק הקרקע המודל Bacillus subtilis, שבו הצמיחה ניצלת במהלך מגבלת Zn2+ על ידי שחרור פני השטח PrimRP L31 והחלפתו ב-AltRP L3112,13. עם זאת, חלק מה-AltRPs הם פרלוגיים ל-PrimRPs הליבה, למשל, S14, כלומר שילובם נדרש במהלך ביוגנזה של ריבוזום12,13. בנייה מחדש של הריבוזום עם AltRPs היא תוכנית מחויבת ועתירת אנרגיה. בעוד ש-AltRPs הליבה הללו עשויים לשמש לשחרור Zn2+ מהריבוזום, ייתכן גם שחלק מה-AltRPs פיתחו פונקציה נוספת בסביבה המוגבלת ב-Zn2+. זה נתמך על ידי ההבחנה ש-AltRPs שונים מה-PrimRPs הפרלוגיים שלהם; הומולוגיה של רצף של גנים AltRP היא לרוב גבוהה יותר בקרב הומולוגים במינים שונים מאשר לרצף הגנים PrimRP הקשור ל-Zn2+ באותו מין7,10. מכיוון שגנים המקודדים AltRPs שונים מאוד נמצאים תחת בקרת שעתוק תלויה ב-Zn2+, הם מוסרים מהלחץ הסלקטיבי המופעל על הסופראופ<רון הריבוזומלי המווסת היטב והשמור היטב class="xref">14. לחץ סלקטיבי מנותק על המידע הגנטי המקודד את המנגנון הריבוזומלי וה-AltRPs חושף את ה-RPs הללו למסלולים אבולוציוניים שונים מאשר ה-PrimRPs ההומולוגיים ויכול לאפשר אבולוציה ספציפית לשושלת של אותו AltRP בחיידקים10,15. קיומם הנרחב של AltRPs בחיידקים והוויסות הגנטי המנותק של RPs ייחודיים אלה מעלה שאלה מעניינת האם שילוב AltRPs בריבוזומים חיידקיים מעניק תכונה מיוחדת לריבוזומים המכילים AltRP (Alt-ribosomes).
מיקובקטריה היא קבוצה אידיאלית של חיידקים לחקר התכונות המכאניסטיות של Alt-ריבוזומים. ראשית, למיקובקטריה יש אופרון altRP שמור מאוד המכיל ארבעה גנים המקודדים AltRPs: S14-2, S18-2, L28-2 ו-L33-28,9. AltRPs מיקובקטריאליים שונים באופן משמעותי מפרלוגי ה-PrimRP שלהם; בכל ארבעת זוגות PrimRP/AltRP, גן AltRP נתון דומה יותר בכל מיני המיקובקטריאליים מאשר לגן PrimRP באותו מין10. אבולוציה ספציפית לשושלת של AltRPs ניכרת גם בתוך מיקובקטריה, כפי שמעידים AltRPs S18-2 ו-L28-2 ב-Mycobacterium tuberculosis ו-M. bovis, המכילים רצפים ייחודיים בקצה C שאינם קיימים במיקובקטריה10. שנית, קבוצה זו של חיידקים קרובים מאוד מכילה חברים לא פתוגניים ופתוגניים שחיים בסביבות מגוונות מאדמה (למשל, M. smegmatis) ועד לאינספור פונדקאים: בני אדם (למשל, M. tuberculosis), בקר (למשל, M. bovis), מימיים (למשל, M. marinum) ועופות (למשל, M. avium), אם להזכיר כמה. האופי השמור מאוד של אופרון altRP במיקובקטריה, האבולוציה הספציפית לשושלת של גנים ספציפיים של AltRP, והסביבות השונות מאוד שבהן חברים בקבוצה זו קיימים מספקים הזדמנות ייחודית לנתח את האבולוציה השמורה והספציפית לשושלת של פונקציית AltRP והתכונות המכאניסטיות של Alt-ribonesmes. למרות השפע של AltRPs בגנומים פרוקריוטיים, תפקידם של AltRPs ו-Alt-ribosomes נחקר רק בכמה חיידקים9,10,11,12,13,16,17,18,19. הקמת מערכת סטנדרטית עם מדדים ספציפיים לאימות תנאי גידול מגבילים של Zn2+ במיקובקטריות תשפר את תוצאות הניסוי ותקדם את ההבנה של אלט-ריבוזומים בתחום חקר הריבוזומים.
Zn2+ הוא מיקרו-נוטריאנט; לכן, עקבות של זיהום Zn2+ בכימיקלים ובמים תורמים לזמינות הביולוגית של Zn2+, גם כאשר הם מושמטים מתכשיר המדיה. כמויות העקבות של Zn2+ הקיימות במים או בכימיקלים יכולות להשתנות באופן דרסטי בין מעבדות, ובכך להשפיע על התוצאה של צמיחה מגבילה של Zn2+. כימות אמפירי של [Zn2+] בכל הכנה עצמאית של מדיה מכביד מדי עבור רוב המעבדות המבצעות בדיקות גידול שגרתיות, אך מנגנון לביטול האפשרות של זיהום Zn2+ במצע הגידול יהיה בעל ערך מהותי. לשם כך, מוצגת כאן שיטה מפורטת להכנת מצע מוגבל Zn2+ (ZLM) מוגדר כימית, כלי גידול ותרביות זרעים לצמיחה מגבילה של Zn2+ וייצור Alt-ריבוזום ב-M. smegmatis ו-M. tuberculosis. מאפיינים מורפוגניים עיקריים (צפיפות תאים נמדדת על ידי OD600, אורך התא והפלואורסצנטיות של קו-אנזים F420) לאחר גידול ב-ZLM משמשים כדי לוודא שהושגה מגבלת Zn2+. קו-אנזים F420 הוא קו-פקטור של דאזפלבין בעל תפקידים חשובים בקטבוליזם ובהגנה מפני עקה חמצונית במתאנוגנים ובמיקובקטריה20,21. חשוב לציין, מיקובקטריות הן אוטו-פלואורסצנטיות כאשר הן מעוררות ב-420 ננומטר בשל השפע של מחלקה זו של קופקטור22. הקשר המולקולרי בין [Zn2+] לפלואורסצנציה F420 נותר לא פתור, אך מעקב אחר פלואורסצנטיות F420 בתרביות הוא אינדיקטור ביולוגי ניתן למעקב ואמין.
ב-M. smegmatis, הפנוטיפים הביו-אינדיקטורים מופיעים בחיידקים מסוג הבר, אך מוטנט מחיקה חסר אופרון altRP אינו עובר את אותה תוכנית מורפוגנית ויכול לשמש כאינדיקטור ביולוגי דיפרנציאלי10. למרות ש-M. tuberculosis אינו עוקב אחר אותה תוכנית מורפוגנית כמו M. smegmatis במהלך מגבלת Zn2+, ל-M. tuberculosis יש תגובה חזקה וגלובלית ל-Zn2+ מגבלה ופנוטיפ ביו-אינדיקטור מרכזי בעקבות שיטה זו23. לפיכך, המערכת המוגדרת כאן מאפשרת לייצר פריים ואלט-ריבוזומים באותם תנאי גידול (כלומר, מגבלת Zn2+), מה שמקל על החיתוך המכניסטי של תפקוד אלט-ריבוזום ותפקידו בעיצוב הפיזיולוגיה של החיידקים. שיטת גידול זו שימשה כדי לפתור את המבנה של Alt-ריבוזומים פעילים ולהדגים את פעילותם התרגומית בסוג בר M. smegmatis24. תמיכה נוספת בכך ששיטת גידול זו ופנוטיפ ביו-אינדיקטור מדגישים את הפונקציונליות הביולוגית של AltRPs במהלך מגבלת Zn2+, ביטוי AltRP נדרש למורפוגנזה התלויה ב-Zn2+ ויש לו השפעה עמוקה על הטרנסקריפטום והפרוטאום של M. smegmatis10,25. אותה שיטה, עם שינויים קלים בכמות החיסון וזמן הדגירה, משמשת ליצירת תרביות מוגבלות Zn2+ של M. tuberculosis9,23. כאן, מפורטים פרוטוקולים ופנוטיפים ביו-אינדיקטורים להשגת צמיחה מגבילה של Zn2+ הן ב-M. smegmatis והן ב-M. tuberculosis, עם דגש על M. smegmatis מכיוון שחיידק זה רגיש יותר לזיהום Zn2+ במדיה והוא נגיש יותר מהפתוגן הגדל לאט.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
הערה: הזנים ששימשו במחקר זה הם M. smegmatis mc2 155 מסוג wild-type (מתנה מד"ר רוברט הסון, בית החולים לילדים בבוסטון) וזן המחיקה ΔaltRP (מקורו במעבדתו של Prisic10). ניתן לגדל אותם במעבדה ברמת בטיחות ביולוגית 1 (BSL1) או BSL2, בהתאם לתקנות הבטיחות הביולוגית המקומיות והמשאבים הזמינים. כאן, הפרוטוקול נכתב עבור מעבדת BSL2. במידה והעבודה מבוצעת במעבדת BSL1, ניתן להחליף את קבינת הבטיחות הביולוגית בטכניקה אספטית באמצעות מבער בונסן. בנוסף, חוקרים המעוניינים לכלול זנים או תנאים אחרים יצטרכו לחשב את נפח המצע הדרוש בהתאם למספר התרביות הכולל שנבדקו. יש לטפל ב-M. tuberculosis H37Rv פתוגני (Mtb-H37Rv; מתנה מד"ר רוברט הסון, בית החולים לילדים בבוסטון) במעבדת BSL3 תוך שימוש במסכת נשימה (למשל, PAPR או N95). אין להשתמש שוב בבקרים בעת גידול מיקובקטריה בעלת וירולנציה גבוהה, כגון Mtb-H37Rv. M. tuberculosis mc26206 אוקסוטרופי (Mtb-Aux) הוא זן מוחלש וניתן לטפל בו במעבדת BSL2 (מתנה מד"ר ויליאם ר. ג'ייקובי ג'וניור, Albert Einstein College of Medicine).
1. הכנת הבקבוקים
הערה: תנאי גידול עם הגבלה של Zn2+ מושגים בבקבוקי ארלנמאייר מポリקרבונט בנפח 250 mL הניתנים לשימוש חוזר (ניתנים לעיקור באוטוקלאב). אין להשתמש בבקבוקי זכוכית לצורך גידול עם הגבלה של Zn2+, ואין לבחון או להשוות נהלי שטיפה חומצית קפדניים לתוצאות המוצגות בפרוטוקול זה19. בקבוקים חדשים מספיקים להשגת תנאי גידול עם הגבלה של Zn2+, אך אין לערבב בקבוקים חדשים וישנים באותו ניסוי. יש להשליך בקבוקים המראים סימני חולשה (בדרך כלל בתפרים) או כאלה ששימשו יותר מ-20 פעמים בקירוב. יש לבדוק את מסנני הפקקים באופן קבוע לאיתור התדרדרות ולהשליכם אם הם פגומים. במידה וקיימים, יש להשליך את מכסי הפקקים המהודקים לחלק העליון של הפקק ומכסים את המסננים. שיטה זו מפרטת את אמצעי הזהירות הננקטים לניקוי הבקבוקים והכנתם לשימוש חוזר.
- סמנו את הבקבוקים באופן קבוע, כך שסט זה ישמש אך ורק עבור Zn2+-תנאים מגבילים. סמנו סט נוסף של בקבוקים עבור Zn2+-גידול במצע עשיר. סימון בצבעים שונים יעיל למניעת ערבוב בין הבקבוקים.
- אין לאפשר לשאריות התרבית להתייבש בתוך הבקבוקים. יש להוסיף מים לבקבוקים מיד לאחר שפיכת התרבית מהם (למשל, 100 מ"ל). אם התרבית אינה נאספת בתום תקופת הגדילה, יש לרוקן את הבקבוקים על ידי שפיכת התרבית כולה למכל לפסולת נוזלית עם ריכוז סופי של 10% אקונומיקה, לאחר תיעוד הפנוטיפים של הביואינדיקטורים כפי שמתואר בפרוטוקול זה.
- סטריליזציה באבקה (Autoclave) של בקבוקים במחזור לנוזלים (לפחות 121 °C בלחץ של 15 psi למשך 20 דקות, כאשר המים בפנים והמכסים סגורים.
- לאחר עיקור באוטוקלאב, יש לשטוף את הבקבוקים עם דטרגנט לא-יוני בעל הקצפה נמוכה ולקרצף אותם היטב באמצעות מברשת קרצוף רכה. הקצה מברשת ייעודית שתשמש אך ורק לשטיפת בקבוקים ששימשו ל-Zn.2+-הגבלה של הצמיחה. ודאו שהבקבוקים נקיים משאריות או לכלוך. אין לשפשף או להשתמש בסבון על הפקקים; שטפו אותם בעדינות במים דה-יוניזציה.
- שטפו היטב את הבקבוקים במי ברז, ולאחר מכן בשלו שטיפות במים דה-יוניים (סוג II או III) ובלפחות שטיפה אחת נוספת במים אולטרה-טהורים (סוג I) (18.2 MΩ-cm ב- 25 °C ו-≤ 5 ppb של פחמן אורגני כללי).
- הניחו את הבקבוקים באופן אנכי כשהם הפוכים, כך שלא יוכל להיווצר שלולית מים בתחתית. אין להשתמש במתקני ייבוש סטנדרטיים המותקנים על קיר במעבדה, שכן אלו מחזיקים את הבקבוקים בזווית ומאפשרים הצטברות של כמות קטנה של מים. מתקני ייבוש סטנדרטיים לכלים יספיקו. הניחו לבקבוקים ולמכסים להתייבש לחלוטין.
- לאחר הייבוש, הברגו את הפקקים על הבקבוקים וכסו את המכסים בנייר אלומיניום. הדביקו חתיכת סרט אינדיקטור לאוטוקלאב על הנייר כדי לציין את מצב הסטריליזציה ולהגן על מסנני הפקקים מאבק.
- עקרו באוטוקלאב את הבקבוקים המנוקים (לפחות 121 °C בלחץ של 15 psi) למשך 20 דקות, ולאחר מכן ואקום לאחר המחזור לייבוש המטען (במידה והאוטוקלאב מצויד בתכונה זו). יש לאחסן את הבקבוקים כשהם יבשים ומוגנים מאבק.
2. הכנת מצע דל ב-Zn2+ (ZLM)
הערה: השתמשו אך ורק בכלי כימיים מפלסטיק, במבחנות מדידה ובכל שאר הציוד להכנת המצעים. הקצו סט של כלי מעבדה המשמשים אך ורק להכנת מצעים עם הגבלה ב-Zn2+. שטפו את כל כלי המעבדה ביסודיות במים אולטרה-טהורים (type I) לפני ואחרי השימוש. השתמשו בכימיקלים ברמת טהרה גבוהה ורכשו אותם מאותם ספקים, במידת האפשר.
- הכינו מצע Sauton המוגבל ב-Zn2+ ללא תוספת של מלחים של Zn2+26 על ידי ערבוב הכימיקלים הבאים עם ~950 mL של מים אולטרה-טהורים בכלי זכוכית פלסטי של 1 L עם מגנט ערבוב:
0.5 g KH2PO4 (0.05%; MW: 136.09)
0.5 g MgSO4 x 7H2O (0.05%; MW: 246.48)
2 g חומצה ציטרית, ללא מים (0.2%; MW: 192.12)
4 g L-asparagine, 99% (0.4%; MW: 132.12)
60 mL גליצרול (6%)
189 µL של 1 M ferric ammonium citrate (0.005%; MW: 265)- הוסיפו גליצרול באמצעות פיפטה סרולוגית פלסטית חד-פעמית של 50 mL. שטפו היטב את הפיפטה על ידי שאיבה ופליטה של הנוזל כ-10 פעמים לתוך המצע, עד שלא יישאר בו גליצרול.
הערה: גליצרול הוא צמיגי מאוד וקשה למדידה. לחלופין, ניתן לשפוך את הגליצרול למשורה ולשטוף אותה מספר פעמים עם כ-30 mL של מים אולטרה-טהורים, אותם הוסיפו לאחר מכן למצע. בגישה זו, התחילו עם נפח קטן יותר (~600 mL) כדי שהנפח הסופי לא יעלה על ~950 mL לאחר הוספת הגליצרול ושטיפות המשורה למצע.
- הוסיפו גליצרול באמצעות פיפטה סרולוגית פלסטית חד-פעמית של 50 mL. שטפו היטב את הפיפטה על ידי שאיבה ופליטה של הנוזל כ-10 פעמים לתוך המצע, עד שלא יישאר בו גליצרול.
- העלו את נפח המצע לכ-950 mL וערבבו היטב. ל-L-asparagine לוקח מספר דקות להתמוסס; המתינו עד שלא יישארו פתיתים לבנים לפני שתמשיכו.
הערה: תמיסת ה-ferric ammonium citrate מקנה למצע צבע צהוב בהיר. - הכינו 15 mL של תמיסת NaOH טרייה (~10% w/v) עם מים אולטרה-טהורים במכל פלסטיק (למשל, מבחנה קונית של 15 mL).
- שטפו היטב מד pH עם מים אולטרה-טהורים לפני השימוש והטביעו רק את הבצבע של מד ה-pH לתוך המצע. השאירו את מד ה-pH במצע תוך כדי ערבוב עדין בעת כיוון ה-pH. בעזרת פיפטת העברה פלסטית חד-פעמית, הוסיפו את תמיסת ה-NaOH שהוכנה זה עתה עד להגעה ל-pH סופי של 7.4.
הערה: ה-pH ההתחלתי של המצע הוא חומצי מאוד. נדרש נפח גדול של תמיסת NaOH כדי להעלות את ה-pH לטווח הניטרלי. הוסיפו בתחילה 4-6 mL מתמיסת ה-NaOH; ברגע שה-pH מגיע לסביבות 6.5, הוסיפו את תמיסת ה-NaOH בטיפות. היזהרו לא לחרוג מערך ה-pH המטרה של 7.4. אם הדבר קרה, אל תנסו לכוון מחדש עם HCl או חומצות אחרות - השליכו את המצע. מומלץ להקדיש מד pH ייעודי להכנת ZLM ולא להשתמש בו למדידת pH של מצעים ותמיסות באפר אחרות שעלולות לזהם את האלקטרודה. - העבירו את המצע למשורה והעלו את הנפח הסופי ל-1 L באמצעות מים אולטרה-טהורים. סטריליזו את המצע באמצעות סינון דרך פלסק סינון חד-פעמי של 0.2 µm.
- הוסיפו באופן אספטי 2.5 mL של תמיסת Tween-80 20% שעברה סטריליזציה בסינון (ריכוז סופי של 0.05%). אחסנו ב-4 °C הרחק מאור למשך עד 6 חודשים.
3. צמיחה תחת הגבלה של Zn2+ ב- M. smegmatis
הערה: בשל שונות בין מנות בכמות ה-Zn2+ הנמצאת ב-ZLM, חובה להשתמש באותה מנת מדיום או במספר מנות מדיום שעורבבו היטב עבור כל התרביות בניסוי. בנוסף למדיום הדרוש להקמת התרביות, נדרשים כ-100 mL נוספים לצורך שטיפה ונורמליזציה של תרביות הזרע.
- בצע את כל השלבים במCabinnet ביטחון ביולוגי. הכן תרביות התבססות (seed cultures) 18 שעות לפני הקמת ניסוי הגדילה. אין להשתמש בתרביות התבססות שגדלו מדי או שנוטות להצטברות גושים. תרבית התבססות אחת לכל זן מספיקה.
- הוסף בצורה אספטית 5 mL של מצע 7H9-ADC (ציר Middlebrook 7H9 עם 0.05% Tween 80 ו-10% העשרה של ADC [ריכוז סופי: 0.5% bovine serum albumin, 0.2% dextrose, 0.085% NaCl ו-0.0003% catalase רשות]) לתוך מבחנה של ביו-ריאקטור בנפח 50 mL.
- הוסף בצורה אספטית 10 µL של תאי מאגר גליצרין שהופשרו (שהוכנו לפי26) ישירות למצע. סגור את המכסה על המבחנה.
- מקם את המבחנות בצורה יציבה באינקובטור שקשקש בזווית של כ-45°, כך שהנוזל יגיע לכמחצית גובה המבחנה בזמן השקשוק.
- דגור את המבחנות ב-37 °C עם שקשוק ב-120 rpm למשך כ-18 שעות.
- בדוק את תרביות ההתבססות של הלילה כדי לוודא שהתרבית עכורה באופן אחיד ואינה נוטה להצטברות גושים משמעותית. הצפיפות האופטית ב-600 nm (OD600) של תרבית הלילה היא באופן אידיאלי סביב 0.5-0.8.
- שקיע את תרביות הלילה במבחנות הביו-ריאקטור, ששימשו לגדילה בלילה, באמצעות סבב צנטריפוגה ב-3,000 x g למשך 5 דקות בטמפרטורת החדר.
- רוקן או שאב את העלייה (supernatant) והשהה מחדש ב-5 mL של ZLM. חזור על שלבי הסבב בצנטריפוגה וההשהה מחדש פעמיים, לסך הכל שלושה שטיפות.
- במהלך שלבי הסבב בצנטריפוגה, מלא קובטה עד גלישה ב-70% ethanol לצורך עיקור. השאר את הקובטה המלאה בתוך ה-Cabinet ביטחון ביולוגי למשך 10 דקות ושטוף היטב 3 פעמים ב-ZLM באמצעות פיפטה.
הערה: תהליך נורמליזציית התאים דורש זמן ותרגול כדי להתבצע ביעילות. ביצוע נורמליזציית התאים ישירות בתוך הקובטה שעוקרה באתנול מאיצה את התהליך באופן משמעותי. - הכן מספיק קובטות עבור מספר הזנים הכלולים במחקר, למשל, פרוטוקול זה דורש שתי קובטות מעוקרות, אחת עבור זן הבר (wild-type) ואחת עבור המוטנט ΔaltRP.
- במהלך שלבי הסבב בצנטריפוגה, מלא קובטה עד גלישה ב-70% ethanol לצורך עיקור. השאר את הקובטה המלאה בתוך ה-Cabinet ביטחון ביולוגי למשך 10 דקות ושטוף היטב 3 פעמים ב-ZLM באמצעות פיפטה.
- לאחר שלוש שטיפות עם ZLM, השהה מחדש כל משקע תאים ב-2 mL של ZLM.
- בצע כיול אפס (Blank) לספקטרופוטומטר עם 600 µL של ZLM בקובטה. אין צורך שקובטה זו תהיה מעוקרת. הset aside את הקובטה והשתמש בה לכיול אפס של הספקטרופוטומטר לפני נורמליזציה של כל תרבית (כלומר, זן).
- עבוד עם זן אחד בכל פעם, העבר 600 µL של תאים שטופים משלב 3.5 לקובטה מעוקרת שהוכנה בשלב 3.4.1 ומדוד את ה-OD600 ההתחלתי. אם ה-OD600 גבוה מ-1, המשך לשלב 3.8. אם ה-OD600 נמוך מ-1, בצע את שלבי המשנה 3.7.1 ו-3.7.2.
- אם קריאת ה-OD600 ההתחלתית משלב 3.7 נמוכה מ-1, אסוף את כל התרבית מתוך הקובטה, הוסף אותה בחזרה לתאי ההתבססות השטופים שנותרו במבחנת הצנטריפוגה, וסובב את התרבית שוב בצנטריפוגה כפי שנעשה בשלב 3.3. השהה את התרבית בנפח נמוך יותר מזה ששימש בשלב 3.5 (למשל, 1 mL) כדי להשיג צפיפות תאים גבוהה יותר, וחזור על שלב 3.7.
- אם ה-OD600 לאחר שלב 3.7.1 עדיין נמוך מ-1, התרבית אינה דחוסה מספיק; התחל מחדש את הפרוצדורה משלב 3.1. דגור את התרביות למשך זמן רב יותר או הגדל את כמות האינוקולום להקמת תרביות הלילה כך שצפיפות תרבית הלילה הסופית תהיה סביב OD600 = 0.5-0.8, כפי שמתואר בשלב 3.2.
- חשב את נפח ה-ZLM שיש להוסיף ל-600 µL של תאים שטופים בקובטה כדי להגיע ל-OD600 של 1, תוך שימוש במשוואה הבאה וב-OD600 שנמדד בשלב 3.7:
Volume of ZLM (μL) = (starting OD600 - 1) × 600 μL - הוסף את נפח ה-ZLM שחושב בשלב 3.8 לקובטה שהוכנה בשלב 3.7, ערבב היטב על ידי פיפטור 5-10 פעמים, ומדוד שוב את ה-OD600.
- כוונן את ה-OD600 לטווח של 5% מ-OD600 = 1 לפי שלבי המשנה המפורטים להלן. השתמש בשתי פיפטות, כאשר אחת (בגודל P1000) מוקדשת לערבוב התרבית כדי למנוע שימוש ביותר מדי טיפים עבור כל כיוונון שמתבצע.
- אם ה-OD600 גבוה מ-1, הוסף ZLM בטיפות (~50 µL בכל פעם), ערבב היטב על ידי פיפטור למעלה ולמטה 5-10 פעמים, ומדוד את ה-OD600. חזור על תהליך זה לפי הצורך עד שהתרבית תהיה בטווח של 5% מ-OD600 = 1.
- אם ה-OD600 יורד מתחת ל-1 במהלך הנורמליזציה, הוסף תאים שטופים נוספים (~20 µL להתחלה) משלב 3.5, ערבב היטב על ידי פיפטור למעלה ולמטה 5-10 פעמים, ומדוד את ה-OD600. חזור על תהליך זה לפי הצורך (או הוסף ZLM נוסף כמתואר בשלב 3.10.1 אם ה-OD600 עולה מעל 1) עד שהתרבית תהיה בטווח של 5% מ-OD600 = 1.
- וודא שהנפח בקובטה אינו עולה על ~1.5 mL במהלך נורמליזציית התאים כדי למנוע שפיכת תרבית לתוך הספקטרופוטומטר. הסר תרבית מהקובטה בעת דילול, במידת הצורך. וודא גם שנפח התרבית בקובטה גבוה מהמינימום הנדרש למדידה מדויקת של OD600 עבור הספקטרופוטומטר. רוב הספקטרופוטומטרים דורשים לפחות 600 µL.
- חזור על שלבי נורמליזציית התאים (3.6 - 3.10) עבור כל הזנים והתנאים הכלולים במחקר.
- הכן את סך כל הבקבוקים הנדרשים לניסוי על ידי הוספה אספטית של 50 mL של ZLM לבקבוקי ארלנמאייר פלסטיים של 250 mL שהוכנו כמתואר בשלב 1.
- בצע אינוקולציה לבקבוקים על ידי הוספה אספטית של 50 µL מהתרבית המנורמלת ב-OD600 = 1 ישירות מהקובטה, כדי להגיע ל-OD600 סופי של 0.001 (דילול של 1:1000 של האינוקולום המנורמלת).
- עבור תרביות הגדלות ללא הגבלת Zn2+ (כלומר, מצעים עשירים ב-Zn2+, ZRM), הוסף 30 µL של 10 mM ZnSO4 סטרילי (שהוכן טרי מתמיסת מאגר סטרילית של 1M) ישירות לבקבוקי התרבית לריכוז סופי של 6 µM ZnSO4.
- דגור את הבקבוקים ב-37 °C עם שקשוק ב-100 rpm למשך 3 ימים עד להגעה לשלב הסטציונרי (יום 0 הוא יום האינוקולציה).
- בכל יום של גדילה, השתמש בקורא מיקרופלייטים מבוסס מונוכרומטור או פילטר כדי למדוד את מדדי הגדילה הבאים באמצעות 200 µL של תרבית במיקרופלייט של 96 בארות עם תחתית שטוחה. בצע את קריאות הפלייט מיד לאחר חלוקת התאים כדי למנוע את שקיעתם.
הערה: חימום מוקדם של קורא הפלייטים אינו נחוץ כיוון שערכי הפלואורסצנציה המוחלטים אינם אינפורמטיביים כמו היחס וסריקות הפלואורסצנציה, והנפח הקטן הנמדד מגיע במהירות לשיווי משקל עם טמפרטורת החדר במהלך הגדרת הפלייט. ניתן למדוד פלואורסצנציה מהחלק העליון או התחתון של הפלייט אם עיבוי על המכסה מהווה בעיה, אם כי ערכי עוצמת הפלואורסצנציה נמוכים יותר באופן כללי כאשר הקריאה מבוצעת מהחלק התחתון.- צפיפות תאים (כלומר, OD600): כדי לדווח על ה-OD600 שהתקבל מקורא מיקרופלייטים, צור עקומת סטנדרט כדי להמיר את הקריאה מאורך הנתיב של המיקרופלייט תוך שימוש בנפח קבוע (למשל, 200 µL) לאורך נתיב סטנדרטי של 1 cm.
- פלואורסצנציה של קופקטור F420 (ex 420 nm/em 475 nm): עבור קוראי מיקרופלייטים מבוססי פילטר, השתמש בסט הפילטרים הקרוב ביותר (למשל, ex 430 nm/em 488 nm) ובמיקרופלייטים שחורים של 96 בארות.
- מדוד פלואורסצנציית רקע ב-375 nm (ex 375 nm/em 475 nm)
- במידה ונעשה שימוש במונוכרומטור, צור סריקת עוצמת פלואורסצנציה מ-ex 230 - 440 nm במדרגות של 5 nm ופליטה קבועה ב-475 nm.
- במידה ונעשה שימוש במונוכרומטור, חשב את אחוז עוצמת הפלואורסצנציה ב-375 nm לעומת 420 nm באמצעות המשוואה:
F375/420 (%) = (F375/F420) x 100
4. הקלטה ומדידה של אורך התא
- ביום ה-3, בצעו ויזואליזציה ותיעוד של אורך התאים. נקו תגית זכוכית וכיסוי זכוכית בעזרת מטלית נטולת סיבים. טפטפו בעזרת פיפטה טיפה של 10 µL מהתרבית על התגית והניחו את כיסוי הזכוכית ישירות מעל התרבית. לחצו בעדינות על כיסוי הזכוכית כך שהתרבית תתפשט ותמלא כמעט את כל השטח שמתחת לכיסוי. הכינו את התגיות ובצעו ויזואליזציה באופן מיידי כדי למנוע התייבשות.
הערה: אם התרבית אינה מתפשטת בקלות, פסולת תמנע מגע טוב, ותנועת מים תקשה על לכידת התאים במיקוד. הכינו תגית חדשה. - בעזרת מיקרוסקופ אור מורכב (או DIC, ראו להלן) עם עדשת שמן 100x ועדשות עיניות 10x (הגדלה כוללת של 1000x) ותוסף מצלמה, בצעו ויזואליזציה של התגית המוכנה.
הערה: קל הרבה יותר לראות תאים בעזרת הניגודיות של מיקרוסקופייה במיפלט הפרשבני (DIC)10. השתמשו בסוג זה של מיקרוסקופ לקבלת תמונות באיכות גבוהה, במידת האפשר. לצורך ניתוח שגרתי ואימות של מצב צמיחה מוגבל ב-Zn2+, מיקרוסקופ אור מורכב סטנדרטי הוא מספיק. - צלמו אזורים בתגית שבהם ישנם תאים מרובים שנמצאים במיקוד, במישור (כלומר, כל אורך התא נראה) ואינם נעים. תיעדו מספיק תמונות מאזורים שונים בתגית (או ממספר תגיות של אותה תרבית) כך שיימדדו לפחות 100 תאים.
- בעזרת אותו מיקרוסקופ ואותה עדשה, צלמו תגית כיול.
- בתוכנת Fiji27, השתמשו בכלי הקו הישר כדי לצייר קו לאורך תגית הכיול. בחרו ב-Analyze > Set scale ומלאו את המרחק הידוע ואת היחידה של סרגל המقياس. בחרו ב-Global כדי להחיל את המقياس על כל התמונות והמדידות העתידיות.
- פתחו תמונת מיקרוסקופ. השתמשו בכלי הקו הישר כדי לצייר קו לאורך תא ולחצו על מקש M במקלדת כדי למדוד את התא. מדדו לפחות 100 תאים מכל תרבית.
- העתיקו את נתוני האורך שנוצרו בחלון הקופץ ב-Fiji לתוכנת גיליונות נתונים או שמרו אותם כקובץ ערכים מופרדים בפסיקים (.csv) לצורך ניתוח סטטיסטי.
5. התאמות לגידול של M. tuberculosis (Mtb) תחת הגבלה של Zn2+
הערה: בניגוד ל-Mtb-H37Rv, זן ה-Mtb-Aux אינו מסוגל לסנתז L-leucine ו-D-pantothenate, ולכן תוספים אלו מתווספים למצע הגידול28. התוספות עבור Mtb-Aux אינן משפיעות על הגבלת ה-Zn2+, ושני הזנים מראים פנוטיפים דומים ב-ZLM23. פרוטוקול זה מבוסס על פרוטוקול שפורסם בעבר23, כאשר ההבדל העיקרי הוא שתרביות הגדלה מגדלות במשך 8 ימים במקום 10 ימים כדי להפחית התגבשות ולאפשר העשרה של תאים בודדים, דבר הדרוש ליישומים המשכיים כגון הדבקות של מקרופאגים. להבדלים מינוריים נוספים, אנא עיינו בפרסום המקורי23. שיטת ההחדרה שונה מזו של M. smegmatis בשל כמות האינוקולום הגבוהה בהרבה הדרושה להתחלת צמיחתו של M. tuberculosis.
- עבור Mtb-Aux, ספקו תוספת נוספת של 50 µg/mL L-leucine ו- 48 µg/mL D-pantothenate בכל המצעים. בצעו סטריליזציה באמצעות סינון של תמיסות סטוק בריכוז 1000x של 50 mg/mL L-leucine ו- 48 mg/mL calcium D-pantothenate עם מסנן 0.2 µm והוסיפו למצעים שעברו סטריליזציה.
- הוסיפו באופן אספטי 1 mL של תאי סטוק מפשירים בגליצרין ל- 4 mL של 7H9-ADC בתוך מבחנה בעלת תחתית עגולה ופקק לחיצה בנפח 14 mL (עבור Mtb-Aux) או מבחנת ביו-ריאקטור בנפח 50 mL (עבור Mtb-H37Rv).
- דגרו ב- 37 °C ללא ניעור עד שהתרבית מגיעה ל- OD600 ~1. תהליך זה ייקח כשבוע. אווררו את התרבית פעם ביום על ידי פתיחת המבחנה במC-cabinet (קבינה לבטיחות ביולוגית) וביצוע פיפוט מספר פעמים כדי לערבב את התרבית.
- הדביקו 1 mL מהתרבית הסטטית לתוך 50 mL של 7H9-ADC בבקבוק פלסטיק מאוורר בנפח 250 mL. תרבית אחת של 50 mL ב- 7H9-ADC מספיקה לשלוש חזרות ביולוגיות לכל זן ותנאי (כלומר, wild-type ב- ZLM וב- ZRM). הקפידו להימנע מגושים גדולים (כלומר, אגרגטים גדולים של תאים) על ידי השארת התרבית ללא תזוזה למשך 5-10 דקות לפני ההדבקה, כדי לאפשר לגושים לשקוע לתחתית המבחנה, ושאיבת התרבית מהחלק העליון.
הערה: הדבקה עם גושים גדולים מובילה לתרביות גושיות, דבר המשפיע על נורמליזציה של התרבית ועל השחזוריות. - דגרו ב- 37 °C עם ניעור במהירות 100 rpm עד שהתרבית מגיעה ל- OD600 של 0.5-0.8 (שלב mid-log). תהליך זה ייקח 3-5 ימים.
- העבירו את התרבית למבחנה קונית בנפח 50 mL והשקיעו את התאים על ידי סבב צנטריפוגה ב- 3,000 x g למשך 10 דקות בטמפרטורת החדר. השליכו את הנוזל העליון על ידי שאיבת 40 mL עם פיפטה סרולוגית והסרת שארית הנוזל העליון עם מיקרופיפטה P1000.
הערה: שלב זה הוא קריטי להפחתת שאריות של Zn2+ ממצע ה- 7H9-ADC. - השביו את המשקע ב- 5 mL של ZLM והשלימו את נפח התרבית הכולל ל- 50 mL במבחנה הקונית באמצעות ZLM.
- חזרו על הסבב בצנטריפוגה ב- 3,000 x g למשך 10 דקות בטמפרטורת החדר להשקעת התאים. השליכו את הנוזל העליון. השביו את משקע התאים לנפח סופי של 50 mL כפי שמתואר בשלב 5.7.
- מדדו את ה- OD600 של תאי הזרע השטופים וחשבו את הנפח הדרוש כדי להגיע ל- OD600 התחלתי של 0.05 (עבור Mtb-H37Rv) או 0.08 (עבור Mtb-Aux) ב- 50 mL באמצעות המשוואה הבאה:
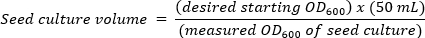
הערה: צמיחת Mtb-Aux עם OD600 התחלתי של 0.05 אינה עקבית; לכן, נעשה שימוש ב- OD600 גבוה יותר של 0.08 לצמיחה עקבית. - העבירו את נפח תרבית הזרע שחושב בשלב 5.9 למבחנה קונית חדשה בנפח 50 mL והשלימו את הנפח ל- 50 mL עם ZLM. שפכו את התרבית השטופה והמנורמלת מהמבחנה הקונית לבקבוקי ארלנמאייר פלסטיים שהוכנו כפי שמתואר בשלב 1. חזרו על הפעולה תוך שימוש באותה מבחנה קונית עבור כל החזרות הביולוגיות לכל זן ותנאי.
- עבור תרביות הגדלות ללא הגבלה של Zn2+ (כלומר, מצעים עשירים ב- Zn2+, ZRM), הוסיפו 30 µL של 10 mM ZnSO4 סטרילי ישירות לבקבוקי התרבית עד לריכוז סופי של 6 µM ZnSO4.
- דגרו את בקבוקי התרבית ב- 37 °C עם ניעור במהירות 100 rpm למשך 8 ימים. מדדו את ה- OD600 ואת הפלואורסצנציה של F420 לאורך הצמיחה כפי שמתואר בשלב 3. השליכו תרביות אם הן גושיות במהלך הימים הראשונים של הצמיחה (כלומר, התרבית אינה נראית עכורה, וישנם גושים בכל רחבי התרבית).
הערה: באופן אידיאלי, התרביות הן בעיקר פלנקטוניות (כלומר, נקיות מגושים גדולים הנראים לעין) במהלך הימי הצמיחה הראשונים. תרביות Mtb, ובמיוחד תרביות ZLM, הופכות לגושיות יותר ויותר לאורך הצמיחה, וצפויים להיות גושים הצפים על פני המצע בצורת פתיתים לקראת שלב ה-log המאוחר23.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
פנוטיפים של ביו-אינדיקטורים עבור *M. smegmatis*
סוג בר M. smegmatis תרביות שגודלו ב-ZLM אשר השיגו Zn2+-גדילה מוגבלת מציגים שלושה פנוטיפים עיקריים של ביו-אינדיקטור בהשוואה לתאים שגודלו תחת Zn2+-תנאי רוויה: [1] צפיפות אופטית (OD) מופחתת600, [2] תאים מוארכים, ו-[3] ירידה בשיא הפלואורסצנציה ב-420 ננומטר. המוטנט החסר ב-AltRPs (ΔaltRP) אינו בעל את אותו Zn2+מורפוגנזה תלויה ב- כסוג הבר (wild-type)10
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
תרומה מרכזית לפער הידע על יסודות מכניסטיים של Alt-ריבוזומים היא הקושי להשיג תנאים מגבילים Zn2+ במבחנה. עקבות זיהום Zn2+ בסביבת המעבדה נפוץ; לפיכך, השגת תנאי גידול מוגבלים של Zn2+ הניתנים לשחזור היא מאתגרת. זיהום Zn2+ יכול לנבוע ממספר מקורות, אם כי המקור המשמעותי והנפוץ ביותר לזיהום ושונות הוא מהמים האולטרה-טהורים המשמשים לשטיפת כלי מעבדה וייצור מדיה. יש לתחזק כראוי מערכות מים טהורים במיוחד ולשטוף אותן למשך דקה אחת לפני שטיפת כלי מעבדה או שימוש במים למדיה. צלוחיות שאינן...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
למחברים אין ניגודי אינטרסים.
תודות
מחקר זה מומן על ידי פרס הקריירה של הקרן הלאומית למדע (NSF) 1844854, פרס החדשנות של איגוד הריאות האמריקאי IA -937538, והמכון הלאומי לבריאות (NIH) NIAID R21 AI109293 ל-S.P. הכתובת הנוכחית של Allexa D. Burger היא מרכז המחקר למדעי הביולוגיה של האוקיינוס השקט, אוניברסיטת הוואי במאנואה, הונולולו, הוואי, ארצות הברית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1000 מ"ל מערכות סינון ואקום, קו סטנדרטי | VWR | 10040-440 | |
| 125 מ"ל צלוחיות שייקר Erlenmeyer | Greiner Bio-One | 679501 | |
| 14 מ"ל צינורות תרבית, פלסטיק, עם מכסים דו-מיקומיים | VWR | 60818-725 | |
| 250 מ"ל צלוחיות שייקר Erlenmeyer | Greiner Bio-One | 679502 | |
| 40X-1000X מעבדה תרכובת ביולוגית דו-עינית מיקרוסקופ | Omax | M82EZ | |
| 50 מ"ל צינורות ביו-תגובה, סטרילי | VWR | 76211-286 | |
| 50 מ"ל צינורות צנטריפוגה בעלי ביצועים גבוהים עם מכסי דגל | VWR | 89039-656 | |
| Alcojet אבקת ניקוי עם קצף נמוך | Alconox | 1404 | |
| אמוניום ברזל (III) ציטראט, חום | Thermo Scientific | AAA1119930 | MW: 265 גרם/מול, עבור תמיסה של 1M הוסף 1.325 גרם עד 5 מ"ל מים טהורים במיוחד; יש לאחסן מוגן מפני אור בטמפרטורה של 4 מעלות צלזיוס |
| אלבומין סרום בקר | Thermo Scientific | J10857-A1 | |
| סידן D-פנטותנט | תרמו סיינטיפיק | AC243300050 | |
| קטלאז | סיגמא-אולדריץ' | C1345-10G | |
| חומצת לימון נטולת מים, גבישי | פישר סיינטיפיק | BP339-500 | |
| דקסטרוז נטול מים | פישר סיינטיפיק | D14-500 | |
| Difco Middlebrook 7H9 Broth | BD Diagnostics | 271310 | |
| DiluPhotometer OD600 לקביעת צפיפות התאים ומבחני ברדפורד | Implen | OD600-10 | |
| GENios FL Microplate Reader | Tecan | הופסק | |
| גליצרול | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Multimode Microplate Reader | Tecan | LGE140213-20BL | |
| L-אספרגין | תרמו סיינטיפיק | AAB2147336 | |
| L-Leucine | Thermo Scientific | A1231122 | |
| Macrofire SP CCD מצלמה | Optronics | לשימוש עם מיקרוסקופ אולימפוס | |
| מגנזיום סולפט heptahydrate | VWR | 97062-134 | |
| Milli-Q Direct 8 מערכת טיהור מים | Millipore | C85358 | |
| Moticam X3 | Motic | הופסק, הוחלף על ידי Moticam X5 Plus; לשימוש עם מיקרוסקופ מורכב | |
| חומצה אולאית | Thermo Scientific | 031997-14 | |
| אולימפוס BX51 מיקרוסקופ זקוף | אולימפוס | הופסק, הוחלף על ידי BX53M | |
| אשלגן פוספט, מונו-בסיסי | פישר סיינטיפיק | BP362-500 | |
| חצי מיקרו דו צדדי קוביות פלסטיק חד פעמיות | VWR | 97000-590 | |
| נתרן כלורי, קריסטל | VWR | VW1494-01 | |
| נתרן הידרוקסיד | פישר סיינטיפיק | S318-500 | |
| Tween 80 | מגה פיקסל ביומדיקל | 103170 | |
| אבץ גופרתי הפטהידרט, גבישי/ACS | MP ביומדיקל | 219145290 |
מקורות
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
