כאן אנו מציגים מחקר שהוקם ב-iDiv Ecotron, תאי מזוקוסמוס יבשתיים עם תנאים סביבתיים מבוקרים מעל ומתחת לאדמה, כדי לחקור את ההשפעות העצמאיות והאינטראקטיביות של היסטוריית הצמחים וההיסטוריה של הקרקע על תפקוד המערכת האקולוגית של קהילות עשב לאורך שיפוע מגוון צמחים.
מאמר שיטה
JenaTron - גישה ניסויית לחקר ההשפעות של היסטוריית הצמח וההיסטוריה של הקרקע על תפקוד המערכת האקולוגית של העשב
במאמר זה
סיכום
תקציר
אובדן המגוון הביולוגי העולמי הניע מחקרים רבים המשנים באופן ניסיוני את עושר מיני הצמחים ובוחנים את ההשלכות על תפקוד המערכת האקולוגית. ניסויים כאלה מראים בדרך כלל קשר חיובי בין המגוון הביולוגי מעל ומתחת לאדמה לבין תפקודן של מערכות אקולוגיות יבשתיות. יתר על כן, קשר זה נוטה להתחזק עם הזמן, ונתפס כתפקוד משופר של קהילות צמחים מגוונות ותפקוד מופחת של קהילות צמחים בעלות מגוון נמוך. השערה היא שהבדלים בהרכבה קהילתית מולטי-טרופית ובאינטראקציות ביוטיות בחברות צמחים בעלות מגוון גבוה לעומת מגוון נמוך משפיעים על ביצועי הצמח על ידי שינוי מבנה ותפקוד קהילת הצרכנים והנעת תגובות פלסטיות או מיקרו-אבולוציוניות של מיני צמחים בקהילות הצמחים. כדי לפתור את יחסי הגומלין המורכבים האלה של ההיסטוריה הקהילתית, הפרדנו את ההשפעות הללו להיסטוריה של הצמחים והאדמה. היסטוריה של הצמח מתייחסת לכל התגובות ברמת הצמח ללחצי ברירה אביוטיים וביוטיים בעבר שחוו בקהילותיהם, בעוד שההיסטוריה של הקרקע מתייחסת לכל תכונות הקרקע האביוטיות והביוטיות שפותחו כמורשת של אינטראקציות צמח-קרקע תחת מגוון צמחים משתנה. הקמנו ניסוי מגוון ביולוגי באקוטרון, מתקן מזוקוסמוס יבשתי המאפשר שליטה בתנאי הסביבה מעל ומתחת לאדמה, כדי לבחון אם הקשר המתחזק בין המגוון הביולוגי לתפקוד המערכת האקולוגית נובע מהיסטוריה של האדמה, ההיסטוריה של הצמחים או שילוב של שניהם. קבענו מדרג מגוון צמחים המורכב מ-1, 2, 3 ו-6 מיני צמחים בעשב וקיננו באופן גורמי עם היסטוריית הקרקע וטיפולי היסטוריה של צמחים עבור כל רמה של עושר מיני צמחים. תוצאות מייצגות מדגימות את ההקמה המוצלחת של טיפולי מטרה בניסוי אקוטרון, תוך התבוננות בהשפעות ההיסטוריה של הצמח והקרקע על התפתחות ראשונית של הצמח וצמיחה סופית של הצמח. בנוסף, אנו מספקים מקרה בוחן לניתוח נתונים של משתני תגובה בודדים. אנו מתארים מטרות מחקר ושיטות להערכה מקיפה של התגובות הרב-תכליתיות לטיפולים הניסיוניים הדרושים כדי להתמודד בסופו של דבר עם השערת העל.
מבוא
במהלך שלושת העשורים האחרונים, חששות גוברים לגבי אובדן המגוון הביולוגי הניעו מחקר נרחב המתמקד במניפולציה ניסויית של עושר מיני צמחים כדי לחקור את השפעתו על תפקוד המערכת האקולוגית 1,2. מחקרים ניסיוניים הראו קשר חיובי בין מגוון צמחים לתפקוד המערכת האקולוגית1, הנוטה לעלות עם הזמן 3,4,5,6,7,8,9. זהו ממצא משמעותי, שכן הוא מצביע על כך שתוצאות ניסויים שהתקבלו מקהילות צעירות שהוקמו לאחרונה ככל הנראה ממעיטות בהערכת ההשלכות של אובדן המגוון הביולוגי תוך הדגשת החשיבות של שימור מערכות אקולוגיות ישנות ועשירות במינים10.
שינויים בתהליכים ביוטיים וא-ביוטיים לאורך זמן, שניתן לצפות בהם רק בניסויים ארוכי טווח, הם הסבר אפשרי אחד להשפעות המוגברות של המגוון הביולוגי על תפקוד המערכת האקולוגית. מגוון צמחים גבוה נקשר לעלייה בריכוזי הפחמן והנוטריינטים בקרקע 3,9,11,12,13, השלמת משאבים אופטימלית 3,8,14, בידול נישה משופר בין צמחים15, הצטברות הדדיות בכל הרמות הטרופיות10,16והפחתת האיומים מצד פתוגנים ואוכלי עשב באמצעות מנגנוני ויסות חזקים יותר מלמעלה למטה 17,18,19., לעומת זאת, מגוון צמחים נמוך נקשר ללחץ סלקטיבי לקראת השקעה מוגברת בהגנות צמחים ושימוש פחות יעיל במשאבים 10,20,21,22. יחד, הבדלים בהרכבה קהילתית מולטי-טרופית ובאינטראקציות ביוטיות בחברות צמחים בעלות מגוון גבוה לעומת מגוון נמוך משפיעים על ביצועי הצמח על ידי שינוי מבנה ותפקוד קהילת הצרכנים, כמו גם הנעת שינויים פלסטיים או מיקרו-אבולוציוניים של מיני צמחים ברמת קהילות הצמחים 23,24,25,26 . כדי לפתור את יחסי הגומלין המורכבים של ההיסטוריה הקהילתית, השפעות אלה הופרדו לשני מרכיבים חשובים: היסטוריה של צמחים והיסטוריה של הקרקע. היסטוריה של הצמח מתייחסת לכל תגובות הצמחים ללחצי ברירה אביוטיים וביוטיים בעבר שחוו בקהילותיהם, בעוד שההיסטוריה של הקרקע מתייחסת לכל תכונות הקרקע האביוטיות והביוטיות שהתפתחו כתוצאה מאינטראקציות צמח-קרקע 23,24,27,28. שני המרכיבים מוכרים יותר ויותר כמניעי מפתח בהשפעות ארוכות טווח על המגוון הביולוגי 29,30,31.
מחקרי שדה ניסיוניים מספקים תובנות חשובות לגבי ההשפעות ארוכות הטווח של ההיסטוריה של הקרקע והצמח בתנאים סביבתיים מציאותיים ובקנה מידה מרחבי גדול32,33. עם זאת, ניסויי שדה כפופים לגורמים חיצוניים בלתי מבוקרים שונים, כגון תנודות מזג אוויר, הפרעות טבעיות ואינטראקציות עם אורגניזמים אחרים. לעומת זאת, ניסויי מיקרוקוסמוס בקנה מידה קטן, למרות שהם מוגבלים בלכידת המורכבות והדינמיקה של מערכות אקולוגיות טבעיות, מציעים שליטה מדויקת על גורמים אביוטיים כמו טמפרטורה, אור ומים. כדי לשלב את היתרונות של שתי הגישות, הופיעו בשנות ה-90 מתקנים ניסיוניים חדשים בשם 'אקוטרונים' (למשל, אקוטרון בסיקלקווד, בריטניה34; אקוטרון במונפלייה, צרפת35; Ecotron in Hasselt, Belgium36). Roy et al. (2021)37 מגדירים אקוטרון כמתקן ניסיוני המורכב ממארזים משוכפלים שנועדו להכיל דגימות מערכת אקולוגית, המאפשרים סימולציה מציאותית של תנאי סביבה מעל ומתחת לקרקע תוך הקלה על מדידה סימולטנית ואוטומטית של תהליכי מערכת אקולוגית. לפיכך, אקוטרונים מאפשרים מחקר משולב של תהליכים אקולוגיים מורכבים, אינטראקציות מולטי-טרופיות ופונקציות מערכת אקולוגית. הם יכולים להכיל מגוון אורגניזמים מעל ומתחת לקרקע מרמות טרופיות מרובות בסדרה גדולה של תאי מזוקוסמוס עצמאיים, המאפשרים בקרה וניטור מדויקים של תנאי הסביבה במערכות מעל ומתחת לקרקע 37,38.
במחקר הזה, הקמנו ניסוי ב-iDiv Ecotron38,39, שנקרא "ניסוי JenaTron" (איור 1 ואיור 2), כדי לבחון אם קשרי מגוון ביולוגי-תפקוד אקולוגי (BEF) בקהילות עם רמות שונות של עושר מיני צמחים מווסתים על ידי היסטוריה של אדמה, היסטוריה משותפת של צמחים, או השפעה משולבת של שניהם. ה-iDiv Ecotron תוכנן במיוחד לניסויים במגוון ביולוגי רב-טרופי, תוך התמקדות בחקירה משותפת של אינטראקציות מעל ומתחת לקרקע במערכות אקולוגיות יבשתיות 38,39,40. הוא מורכב מ-24 יחידות ניסוי זהות, הנקראות 'יחידות אקולוגיות' (איור 2F,G), שכל אחת מהן מסוגלת להכיל עד ארבע מערכות אקולוגיות בודדות בתאים מבודדים (איור 2K), מה שמאפשר בנייה של מערכות אקולוגיות מורכבות וכמעט טבעיות תוך מזעור ההשפעה של השונות הסביבתית. יתרון מרכזי אחד הוא היכולת ליצור שכפולים מרובים של מונוליתים שלמים בקרקע (איור 2A-C) בתנאים סביבתיים מבוקרים, המאפשרים מדידה של תהליכים אקולוגיים מורכבים, כולל השפעות משוב של צמח-צמח וצמח-אדמה, שלעתים קרובות קשה ללכוד בניסויי מיקרוקוסמוס בקנה מידה קטן38,39.
באירופה, שטחי דשא טבעיים למחצה הם בין המערכות האקולוגיות היבשתיות המגוונות והמורכבות ביותר, ומספקים שירותי מערכת אקולוגית חיוניים. עם זאת, מאז תחילת המאהה-20, אדמות העשב המנוהלות באופן נרחב התמודדו עם איומים הולכים וגדלים משינוי שימושי הקרקע, מה שהופך אותם למוקד מרכזי לשימור ומחקר של המגוון הביולוגי. אחד הניסויים הארוכים ביותר בעולם במגוון ביולוגי על אדמות עשב מנוהלות באופן נרחב הוא ניסוי Jena32,33, הממוקם ביינה, גרמניה (50.951°N, 11.621°E, 139 m a.s.l.; אתר אינטרנט: https://the-jena-experiment.de). הניסוי, שהוקם בשנת 2002, חוקר את הקשרים בין מגוון צמחי העשב לתפקוד המערכת האקולוגית, תוך התמקדות במיוחד במחזור נוטריינטים ואינטראקציות טרופיות32,33. להתקנת ניסוי JenaTron בתוך iDiv Ecotron, השתמשנו בניסוי מבוסס תכונות41 (TBE), מרכיב בניסוי Jena שהחל ב-2010 והושלם ב-2021. בשנת 2022, נבחרו 23 חלקות של TBE כדי לקבוע שיפוע מגוון צמחים הנע בין מין אחד לשישה מין, המשתרע על פני 24 קהילות צמחים בתוך iDiv Ecotron. קהילות אלה כללו שישה מיני צמחי עשב, שחפפו לניסוי העיקרי של ניסוי יינה וייצגו שלושה מיני עשב (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) ושלושה מיני עשב (Leucanthemum vulgare agg., Plantago lanceolata L., ו-Ranunculus acris L.; ראו טבלה 1 לפרטים על הרכב מיני הצמחים והעתקים עבור כל רמת מגוון צמחים). מינים אלה, הנפוצים ולעתים קרובות מתקיימים במקביל בערבות אירופאיות טבעיות למחצה, נבדלים בנוסף בתכונות רכישת המשאבים הזמניים שלהם, מה שהופך אותם לאידיאליים למחקרים מקיפים של שימוש במשאבים זמניים, כגון פנולוגיה של צמחים41. 24 הרכבי הצמחים הוקצו באופן אקראי לכל היחידות האקולוגיות (איור 1C), כאשר כל יחידה אקולוגית חולקה לארבעה תאים כדי להתאים לשילובים הגורליים של היסטוריית הקרקע וטיפולי ההיסטוריה של הצמח.
ההיסטוריה של הקרקע (איור 1A) נקבעה על ידי חפירה של 96 מונוליתים של אדמה מניסוי Jena. אדמת האתר היא אדמת מישור הצפה עשירה בחומרים מזינים המסווגת כ-Eutric Fluvisol, שהתפתחה ממשקעי נהר חרסיים32,33. מידע מפורט לגבי pH בקרקע, שינויים במרקם הקרקע וחומר אורגני בפרופיל הקרקע של ניסוי ג'נה ניתן למצוא ב-Lange et al. (2023)9. מתוך 96 המונוליטים, 48 מקורם בחפירת שני מונוליתים מכל אחת מ-22 חלקות TBE, הכוללות מונוקולטורות, תערובות של שניים ושלושה מינים. בנוסף, ארבעה מונוליתים נלקחו מחלקה של שמונה מינים, שישמשו כתערובת של שישה מינים בניסוי JenaTron. כל אחד מ-48 מונוליטי הקרקע הללו (עומק: 0.8 מ'; קוטר: 0.5 מ') הכיל קהילת מגורים ספציפית לחלקה מאז 2010, ובכך מייצג היסטוריה של קרקע ספציפית לחברת צמחים (+SH). 48 המונוליטים הנותרים נחפרו מארבע חלקות קרקע חשופות שנשמרו נקיות מצמחייה מאז תחילת ניסוי ג'נה ב-2002, ולכן חסרות כל היסטוריה ספציפית לקרקע של קהילת צמחים (-SH). מכל אחת מארבע החלקות החשופות נחפרו 12 מונוליתים. שני טיפולי ההיסטוריה של הקרקע (+SH; -SH) שולבו באופן פקטוריאלי עם שני טיפולי היסטוריה של הצמח על ידי שתילת צמחים שגדלו מראש ששיקפו את ההרכב הספציפי לקבוצת הצמחים של TBE בצפיפות שווה, עם צמחים בודדים במרחק של 6 ס"מ זה מזה.
ההיסטוריה של הצמח (איור 1B) נקבעה באמצעות שני מקורות זרעים נפרדים עבור כל אחד ממיני הצמחים שנבחרו ממאגר המינים של ניסוי Jena: המקור הראשון כלל זרעים שנאספו מצמחים שחוו היסטוריה ספציפית לקהילה מאז 2010, בהתאם לחלקות הניסוי המדויקות מבוססות התכונות (TBE) שמהן נחפרו מונוליטי האדמה (+PH). זרעים אלה נאספו ממאי עד ספטמבר 2019 בהתאם לפנולוגיה של פריחת המינים, מה שמבטיח שנדגמו מינימום של חמישה פרטים לכל מין ועלילה. לאחר האיסוף, הזרעים נוקו ואוחסנו בטמפרטורה של -20 מעלות צלזיוס עד לתחילת ניסוי JenaTron. מקור הזרעים השני כלל זרעים שהושגו מספק זרעים מסחרי המייצר זרעים ממקורות אזוריים. זרעים אלה שימשו להקמת חלקות TBE בשנת 2010, ובכך ייצגו צמחים ללא היסטוריית ברירה ספציפית לקהילה בניסוי Jena (-PH) ואוחסנו בטמפרטורה של -20 מעלות צלזיוס משנת 2010 עד תחילת ניסוי JenaTron. שני ההיסטוריות של ששת מיני הצמחים הרב-שנתיים טופחו מראש מפברואר עד מאי 2022 בארבעה חדרים של חממת המחקר iDiv הממוקמת בלייפציג, גרמניה (51.330°N, 12.393°E, 120 מ' מעל פני הים).
השילוב הגורמי של היסטוריית הקרקע (SH) והיסטוריית הצמח (PH) בכל רמה של עושר מיני צמחים הביא לארבעה טיפולים בכל אחת מ-24 היחידות האקולוגיות: (1) עם היסטוריה של הקרקע, עם היסטוריה של הצמח (+SH/+PH), (2) עם היסטוריה של הקרקע, ללא היסטוריה של הצמח (+SH/-PH), (3) ללא היסטוריה של הקרקע, עם היסטוריה של הצמח (-SH/+PH), ו-(4) ללא היסטוריה של הקרקע, ללא היסטוריה של הצמח (-SH/-PH; איור 1C). המטרה העיקרית של ניסוי JenaTron היא לחקור אם הקשר המתחזק בין המגוון הביולוגי לתפקוד המערכת האקולוגית נובע מהיסטוריה של הקרקע, היסטוריה של צמחים או שילוב של שניהם. אנו משערים כי קהילות צמחים עם היסטוריה ספציפית משותפת של צמחים ואדמה יציגו את הקשר החזק ביותר בין BEF, בעוד שהדרה ניסיונית של היסטוריית האדמה, ההיסטוריה של הצמח או שניהם עשויה להיות בעלת השפעות מזיקות על היחסים החיוביים של מגוון הצמחים ותפקוד המערכת האקולוגית. בסופו של דבר, אם ההיסטוריה של הקרקע או הצמח תשנה את הקשר בין עושר מיני הצמחים לתפקוד המערכת האקולוגית, זה ישמש שיקול חשוב לשימור ולניטור של קהילות שהשתמרו מקומית ומשוחזרות חדשות.
פרוטוקול
הערה: ודא שציוד מגן אישי מתאים (למשל, קסדות, כפפות, חזיות, נעלי בטיחות וכו') מסופק בכל שלבי הפרוטוקול.
1. קרקעות: הכנה, חפירה, התקנה
- מקורות קרקע, בחירת חלקות והכנתן (פברואר 2022)
- בחר שני מקורות קרקע מאתר השדה של ניסוי יינה:
- בחר 23 חלקות TBE שהכילו קהילה ספציפית לחלקה במשך 12 שנים על מנת לכסות שיפוע מגוון צמחים של 1, 2, 3 ו-6 מינים. ייעד חלקות אלה כטיפול בניסוי JenaTron "עם היסטוריית קרקע ספציפית לקהילת הצמח" (+SH).
- בחר 4 חלקות קרקע חשופות בעלות תכונות קרקע זהות לחלקות TBE (pH, תכולת חול וכו'), אך נשמרות ללא כיסוי צמחייה מאז 2002. ייעד חלקות אלה כטיפולי ניסוי JenaTron "ללא היסטוריה ספציפית לקהילת צמחים" (-SH).
- הסר בעדינות את 5 הס"מ העליונים של האדמה מכל החלקות שנבחרו באמצעות מיני מחפר כדי להשוות את התנאים בין טיפולי היסטוריית הקרקע.
- בחר שני מקורות קרקע מאתר השדה של ניסוי יינה:
- חפירת מונוליט אדמה (מרס 2022)
- הגדר את מכשיר מיצוי המונוליט בכל חלקה, הרכיב מערכת חיתוך על גליל פלדה ריק והכנס אותו למכשיר החילוץ (איור 2A).
- הפעל את המכשיר, ומערכת החיתוך תסתובב סביב דופן הצילינדר החיצונית. המערכת חותכת חריץ באדמה שלתוכו מכשיר החילוץ לוחץ בו זמנית על גליל הפלדה. במקביל, השתמשו במיני חופר כדי לחפור בור בצד גליל הפלדה (איור 2B).
- לאחר שגליל הפלדה מוטבע לחלוטין באדמה, טפסו לתוך הבור הצדדי והצמידו את המונוליט בקצה התחתון של גליל הפלדה על ידי הרכבת לוחית תחתונה זמנית והשתמשו במכשיר מיצוי המונוליט כדי להרים אותו מבור החפירה (איור 2C).
- לפרק את מערכת החיתוך מגליל הפלדה, להרכיב צלחת עליונה זמנית על גליל הפלדה, להרים את המונוליט באמצעות מתלה המחובר למיני חופר ולהפוך אותו הפוך.
- התקנת מערכת יניקת המים (מרץ 2022)
- פרק את הצלחת התחתונה, הסר כ -5 ס"מ של שכבת אדמה בעזרת כף ואחסן אותה לשימוש מאוחר יותר.
- הטמע טבעת של בדיקות יניקת מים (8 נרות המחוברים לצינורות פוליוויניל כלוריד [PVC]) באבקת קוורץ, הרטיבו אותה במים דה-מינרליים (VE), ומלאו מחדש את תחתית גליל הפלדה באדמה שהוסרה בעבר.
- חבר את חלק קצה ה-PVC של טבעת בדיקת יניקת המים לצלחת התחתונה והברג אותה לאחר מכן.
- סובב שוב את גליל הפלדה עם המתלה על המיני מחפר זקוף, סמן אותו בנפרד, אטום את הפתחים בדפנות הצילינדר עם סרט דבק ועטוף את הגליל בנייר כסף להגנה במהלך ההובלה.
- הובלת מונוליטי הקרקע עם משאית ל-iDiv Ecotron, הממוקם בתחנת השדה הניסיונית של מרכז הלמהולץ למחקר סביבתי (UFZ) בבאד לאוכשטדט, גרמניה (51.392°N, 11.876°E, 116 מ' מעל פני הים).
- התקנת חיישני קרקע (אפריל 2022)
- לאחר הפירוק, חתכו חורים מתאימים במדויק לחיישנים במונוליט האדמה בעזרת להב פלדה מותאם אישית באמצעות הפתחים בדופן הצילינדר בשלושה עומקים שונים (9.5 ס"מ, 21.5 ס"מ ו-43.5 ס"מ).
- הנח את חיישני האדמה לתוך החורים, השתמש בבול עץ כדי להביא אותם למצב הנכון, והברג את הפתחים עם פקקי איטום בהתאמה אישית.
- התקנת מונוליתים של האדמה ביחידות האקולוגיות (אפריל 2022)
- הרם בזהירות את החלק הטכני והעליון של כל יחידת EcoUnit מהחלק התחתון (איור 2G). העבר את החלק התחתון לגלילי הפלדה המכילים את מונוליטי האדמה השלמים המצוידים בחיישני אדמה.
- חבר כל גליל פלדה למתלה, הרם אותו בעזרת מלגזה והתקן מחבר לטבעת נר היניקה המחוברת לצלחת התחתונה.
- הרימו ארבעה מונוליתים של אדמה לתוך המיכל התחתון של כל אחת מ-24 היחידות האקולוגיות (איור 2F), כאשר לשניים יש את אותה היסטוריית אדמה ספציפית לקהילת הצמח (+SH) ולשניים ללא היסטוריית אדמה ספציפית לקהילת הצמח (-SH). הוביל את הכבלים של חיישני הקרקע דרך פתחי מיכל הקרקע.
- תקן את גלילי הפלדה לחלק התחתון בעזרת ברגים ולאחר מכן חבר את טבעות נרות יניקת המים של כל צילינדר למערכת יניקת המים של ה-EcoUnit דרך המחבר שהותקן בעבר.
- השתמש במלגזה כדי להעביר את המכולה המצוידת במונוליטים האדמה לאולם (24 מ 'על 24 מ').
- הנח בזהירות את החלקים הטכניים והעליונים (עם קירות פנימיים בין יחידות משנה [איור 2K]) של כל יחידה אקולוגית בחזרה על גבי החלק התחתון.
- סדרו את כל 24 היחידות האקולוגיות בשלוש שורות, כל אחת מורכבת משתי קבוצות של ארבע יחידות אקולוגיות, היוצרות בסך הכל שישה בלוקים. הקפידו על מרחק ממרכז למרכז של 6 מ' בין בלוקים בתוך כל שורה ו-8.2 מ' בין השורות. בכל בלוק, הקצו באופן אקראי את ארבע רמות מגוון הצמחים (1, 2, 3 ו-6) לארבע היחידות האקולוגיות, מה שמבטיח פיזור שווה של המינים בכל היחידות האקולוגיות במידת האפשר.
2. צמחים: התקנת הכנה וטיפוח
- בחירת מינים וחומר זרעים
- בחר את ששת מיני הצמחים הבאים ממאגר המינים של ניסוי יינה: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) ו-Ranunculus acris L. (Ranunculaceae).
- עבור כל מין, בחר חומר זרעים שמקורו בשני מקורות זרעים שונים:
- השתמשו בזרעים מצמחים שגדלו על חלקות TBE של ניסוי ג'נה מאז 2010 (עם היסטוריה של צמחים, +PH).
- השתמש בחומר הזרע המקורי ששימש להתחלת ה-TBE בשנת 2010 שמקורו ביצרן זרעים אזורי (ללא היסטוריה של צמחים, -PH).
- הכנת מצע (פברואר 2022)
- אסוף אדמה ספציפית לחלקה מכל אחת מהחלקות שנבחרו באתר השדה של ניסוי ג'נה. ממלאים את האדמה בקופסאות פלסטיק של 20 ליטר ומאחסנים אותה בטמפרטורה של 4 מעלות צלזיוס עד לשימוש לגידול צמחים.
- מסננים כל אדמה ספציפית לחלקה דרך רשת של 4 מ"מ. מערבבים את האדמה מארבע חלקות הקרקע החשופות לפני הסינון.
- כדי להסיר ביוטה לא רצויה, העבירו חול קוורץ למיכלי נירוסטה וחממו בתנור ייבוש למשך 4 שעות בחום של 200 מעלות צלזיוס.
- מערבבים אדמה ספציפית לחלקה וחול קוורץ לפי נפח ביחס של 3:1 וממלאים את תערובת האדמה-חול לצלחות מרובות סירים באמצעות חפירה מפלסטיק (סה"כ n = 152).
- סמן כל צלחת מולטיפוט בנפרד והנח אותם בחממה עם מחזור יום-לילה של 16 שעות/18 מעלות צלזיוס ו-8 שעות/12 מעלות צלזיוס, תוך שמירה על לחות בינונית של 60%-70% לחות יחסית (לחות יחסית).
- השקו את הצלחות לפי דרישה ושמרו אותן חשופות למשך שבועיים כדי לאפשר לבנקי זרעים באדמה לנבוט. עשב את כל הצלחות פעמיים כדי להסיר שתילים לא רצויים.
- קמפיין זריעה (מרץ-אפריל 2022)
- קבע את סדר הזריעה על סמך זמן הנביטה הספציפי למין באופן הבא:
- לזרוע R. acris שבועיים לפני צמחי מרפא אחרים
- זרעו P. lanceolata ו-L. vulgare שבוע אחד לפני העשבים A. odoratum, D. glomerata ו-H. lanatus.
- זרעו את כל המינים, למעט R. acris, ישירות לתוך מצע חול האדמה הספציפי לחלקה (3:1) בצלחות מרובות סיר עם שניים או שלושה זרעים בכל עציץ. לאחר נביטה מוצלחת, יש לדלל את כל המינים לשתילים בודדים באמצעות פינצטה מפלדת קפיץ.
- טיפול מקדים בזרעי R. acris בצלחות פטרי על נייר פילטר שהורטב בתמיסת חומצה ג'יברלית (1000 מ"ג. L−1) כדי לשבור את התרדמה (איור 2D). דגרו את הזרעים למשך 24 שעות.
- מעבירים את זרעי R. acris לנייר סינון שהורטב במים דה-מינרליים (VE) עד לנביטה. לאחר שהזרעים מגיעים לשלב הרדיקל, דוקרים שתילים לתוך מצע חול האדמה הספציפי לחלקה (3:1) בצלחות המולטיפוט המוכנות באמצעות פינצטה מפלדת קפיץ.
- להשקות את כל הפרטים של הצמחים במים נטולי יונים לפי דרישה, ולשמור אותם בחממה עד להובלה ל-iDiv Ecotron (איור 2E-H)
- קבע את סדר הזריעה על סמך זמן הנביטה הספציפי למין באופן הבא:
- קמפיין נטיעות (מאי 2022)
- תכנן תוכניות שתילה בודדות לכל מונוליטי האדמה עם המאפיינים הבאים:
- הקפידו על מספר מאוזן של פרטים לכל מין בתוך קהילות הצמחים.
- שמרו על מרחק של 6 ס"מ בין כל פרט צמח לשכנו.
- חלק את דפוס השתילה באופן אקראי בין יחידות אקולוגיות, אך שמור אותו קבוע בתוך יחידות משנה.
- השתמש בשבלונה לשתילה בהתאמה אישית כדי לסמן את המיקום המדויק של כל צמח פרט על מונוליתים באדמה. השתמש בקיסמי פלסטיק בצבעים שונים לסימון, והקצה צבע ספציפי לכל מין. לאחר הסימון, הסר את השבלונה (איור 2I).
- שתלו את הצמחים שגדלו מראש על כל מונוליתים בקרקע תוך שבוע באמצעות אדניות פקעות בקוטר 4 ס"מ (5280 פרטי צמחים בסך הכל; איור 2J).
- תכנן תוכניות שתילה בודדות לכל מונוליטי האדמה עם המאפיינים הבאים:
3. מהלך הניסוי
- שלב הקמה של שלושה שבועות (מאי 2022):
- החלף את כל הפרטים שלא שרדו את מסע השתילה תוך שבועיים מהשתילה הראשונית (n = 124 [2.35%]).
- הדליקו את האורות והגדירו את משטר התאורה למחזור יום-לילה של 16/8 שעות. כדי לשחזר את אורך היום האזורי בסוף האביב והקיץ בתחילת הניסוי, דמו את הדמדומים על ידי עמעום האורות מ-100% ל-75% בעוצמה במשך שעה, ואז ל-0% במהלך השעה הבאה (100% עוצמה: ~370 מיקרומול/(מ"ר)). דמו את השחר על ידי היפוך דפוס עמעום זה.
- השוו את לחות הקרקע העליונה ל-20% (± 3%) בנפח באמצעות ערכת מדידת לחות קרקע.
- הגדר את ההשקיה הראשונית ל-450 מ"ל כל 12 שעות עבור כל יחידת משנה.
- חבר חיישני אוויר וקרקע כדי לנטר טמפרטורה ולחות לאורך כל הניסוי.
- שלב הניסוי (יוני-אוקטובר 2022)
- בהתאם לעונתיות הטבעית, קצר את אורך היום בשעה שלמה כל שבועיים מאוגוסט עד אוקטובר כדי לקחת בחשבון את אורכי היום האזוריים מסוף הקיץ עד הסתיו.
- הגדילו את ההשקיה הראשונית ל־650 מ"ל כל 12 שעות ביולי ול־750 מ"ל כל 12 שעות באוגוסט, תוך התאמה לדרישות המים של הצמחים.
- עשב כל הזמן שתילים לא רצויים בשלב הקוטילדון באמצעות פינצטה כדי לשמור על צפיפות הצמח תוך מזעור ההפרעה למבנה האדמה.
- בהתאם לניהול הסטנדרטי של כרי דשא המנוהלים באופן נרחב, בצע שני קצירים של ביומסה מעל הקרקע, וחתוך את הצמחים 3 ס"מ מעל פני האדמה במספריים.
תוצאות
כדי לספק תובנות ראשוניות לגבי היעילות של גישה זו בבדיקת ההשפעות העצמאיות והאינטראקטיביות של היסטוריית הצמח והקרקע על קשרי המגוון הביולוגי ותפקוד המערכת האקולוגית, הערכנו תחילה תצלומים של שתי יחידות אקולוגיות מייצגות לאחר שלב ההקמה בן 3 השבועות של ניסוי JenaTron, שבו השפעות הטיפול נעשו גלויות במהירות (איור 3). מלבד הבדלים ספציפיים לטיפול בגובה ובצבע של קהילת הצמחים (איור 3A), זיהינו בנוסף הבדלים ספציפיים לטיפול בזמן הפריחה של R. acris. באופן ספציפי, נראה שלצמחים שגדלו מזרעים ללא היסטוריה של צמחים הייתה התחלת פרח מוקדמת יותר מאשר צמחים שגדלו מזרעים עם היסטוריית הצמחים הספציפית לקהילה של ניסוי Jena (איור 3B).
כדי להעריך אם הקהילות החדשות שהוקמו ב-iDiv Ecotron משקפות במדויק את קהילות השדה המקוריות, בוצע ניתוח השוואתי של גובה הצמח הצמחי הספציפי למין כאינדיקטור להתפתחות הצמח הסופית בין ניסוי JenaTron לחלקות TBE. בניסוי JenaTron נקבע גובה הצמח כערך הממוצע של העלה הווגטטיבי הגבוה ביותר של שלושה פרטים לכל מין צמח בכל אחת מ-24 הקהילות ושילובי הטיפול ממש לפני קמפיין הקציר הראשון בסוף יולי 2022. ביולי 2012 נקבע גובה הצמח הצמחי כערך הממוצע של העלה הווגטטיבי הגבוה ביותר של שלושה פרטים לכל מין צמח וחלקה ביולי 2012. מדידות גובה הצמח מ-iDiv Ecotron מציגות מתאם חזק עם אלה מחלקות השדה של ניסוי Jena (איור משלים 1).
כדי לספק עוד מקרה בוחן לניתוח נתונים, גובה הצמח הצמחי ב-iDiv Ecotron נחקר ביתר פירוט. התמקדנו בניתוחים ברמת המינים והקהילה ובדקנו אם היסטוריית הצמח, היסטוריית הקרקע ומגוון הצמחים משפיעים על צמיחת צמחים וגטטיביים. לשם כך, השתמשנו במודלים ליניאריים של אפקטים מעורבים (LMM) וסיכמנו את התוצאות באמצעות ANOVA (סכום ריבועים מסוג I; לתוצאות מפורטות של ANOVA, ראה טבלה משלימה 1). ברמת החלקה, משתני התגובה היו גובה צמחי ממוצע של הצמח ומקדם השונות של גובה הצמח (CV = sd/ממוצע 100). ההשפעות הקבועות כללו מגוון צמחים (מספרי), טיפולי היסטוריה של צמחים וקרקע והאינטראקציות ביניהם. אפקטים אקראיים כללו EcoUnit המקוננת בתוך בלוק אולם Ecotron. ברמת המינים, כללנו בנוסף מינים והאינטראקציה שלהם עם מגוון צמחים וטיפולי היסטוריה במונחים קבועים. טרנספורמציות נתונים (יומן לגובה הצמח ושורש ריבועי לגובה (CV) הבטיחו עמידה בהנחות המודל. הניתוחים נערכו באמצעות R (גרסה 4.3.1)42 וחבילת nlme עבור LMMs43. התוצאות הראו הבדלים משמעותיים בין המינים בגובה הצמח, כאשר עשבים גבוהים יותר מעשבים (איור 4, איור משלים 2). בכל המינים, להיסטוריה של הקרקע הייתה השפעה חיובית על גובה הצמח (F(1,66) = 11.11, P = 0.001), בעוד שלהיסטוריה ולמגוון של הצמחים לא הייתה השפעה משמעותית (F(1,66) = 0.22, P = 0.64 ו- F(1,17) = 1.52, P = 0.23, בהתאמה; איור 4). ברמת הקהילה, למגוון הצמחים לא הייתה השפעה על הגובה (F(1,17) = 0.01, P = 0.91; איור 5A) אך הגדיל משמעותית את גובה הצמח CV בתוך קהילות (F(1,17) = 14.29, P = 0.002; איור 5B). לא נמצאו השפעות משמעותיות של היסטוריית הצמח או הקרקע על גובה הצמח CV (F(1,68) = 0.55; P = 0.46; F(1,68) = 0.09, P = 0.76; איור 5). העלינו את הנתונים ואת סקריפט R למסד הנתונים של ניסוי Jena (https://doi.org/10.25829/QN9R-J839).

איור 1: הקמת ניסוי JenaTron. (A) היסטוריית הקרקע (SH) הוקמה על ידי חפירה של 96 מונוליתים שלמים באדמה מניסוי Jena (JE), שמחציתם (n = 48) התקבלו מ-23 חלקות ששימשו כמקלט לקהילה ספציפית לחלקה במשך 12 שנים (+SH), בעוד שהמחצית השנייה (n = 48) הושגה מארבע חלקות קרקע חשופות שהוחזקו ללא צמחייה מאז תחילת ניסוי Jena בשנת 2002 (-SH). (B) היסטוריה של צמחים (PH) נקבעה באמצעות שני מקורות זרעים עבור כל אחד מששת מיני הצמחים: זרעים שנאספו מצמחים שגדלו מאז 2010 באותן חלקות, שם המונוליטים נחפרו בניסוי Jena (+ PH), והזרעים המקוריים ששימשו לזריעת החברות האלה בשדה בשנת 2010 (-PH). (C) ההיסטוריה של הצמח וההיסטוריה של הקרקע הוצלבו באופן עצמאי עבור כל הרכב ברמות שונות של מגוון צמחים (1, 2, 3 ו-6), וכתוצאה מכך נוצרו ארבעה טיפולים בכל יחידה אקולוגית של iDiv Ecotron: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH, ו-(4) -SH/-PH. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.

איור 2: iDiv Ecotron בתחנת המחקר של מרכז הלמהולץ למחקר סביבתי (UFZ) בבאד לאוכשטדט, גרמניה. (A) ציוד לחפירת מונוליט קרקע בשטח, (B) חפירת מונוליט קרקע בשטח, (C) בור חפירה בשטח, (D) הכנת חומר זרעי Ranunculus acris בצלחות פטרי על נייר סינון שהורטב בתמיסת חומצה ג'יברלית בחממה, (ה) גידול מקדים של צמחים עם מצע אדמה ספציפי לחלקה בצלחות מרובות עציצים בחממה, (F) יחידות אקולוגיות באולם iDiv Ecotron, (G) תיאור סכמטי של יחידת ניסוי אחת ("EcoUnit") עם ציוד טכני (מותאם מ-Eisenhauer et al. (2019)23 ו-Schmidt et al. (2021)38), (H) צלחות עם כל הפרטים שישתלו בניסוי JenaTron) לאחר הובלה ל-iDiv Ecotron, (I) סימון ספציפי למין של עמדות השתילה של כל פרטי הצמחים על מונוליט אדמה שעשוי עם שבלונה של שתילה, (J) שתילה של פרטים של צמחים על מונוליט אדמה באמצעות אדניות נורות, (K) ארבעה ליזימטרים ביחידה אקולוגית עם קירות פנימיים. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.

איור 3: שני נציגים של 24 היחידות האקולוגיות, שכל אחת מהן מאכלסת קהילה אחת בכל שילובי הטיפול בהיסטוריה של הצמח והאדמה. (A) יחידה אקולוגית עם תערובת של 3 מינים (A. odoratum, H. lanatus ו-P. lanceolata) עם הבדלים ספציפיים לטיפול בגובה ובצבע הצמחייה הקהילתית. (B) יחידה אקולוגית עם מונוקולטורה של R. acris, מה שמצביע על הבדלים תלויים בהיסטוריה של הצמח בזמן הפריחה. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
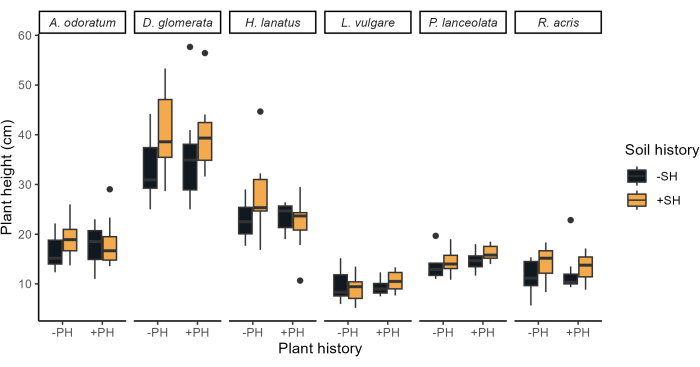
איור 4: השפעות ההיסטוריה של הצמח והקרקע על גובה הצמח הצמחי (ס"מ) של ששת מיני צמחי העשב לפני הקציר הראשון ביולי 2022. המינים רשומים בסדר אלפביתי בתוך קבוצות פונקציונליות (עשבים ואחריהם עשבים). טיפולי היסטוריה של צמחים (+PH/-PH) נמצאים על ציר ה-x, והיסטוריית הקרקע (+SH/-SH) מקודדת בצבע (צהוב/שחור) בחלקות הקופסה. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
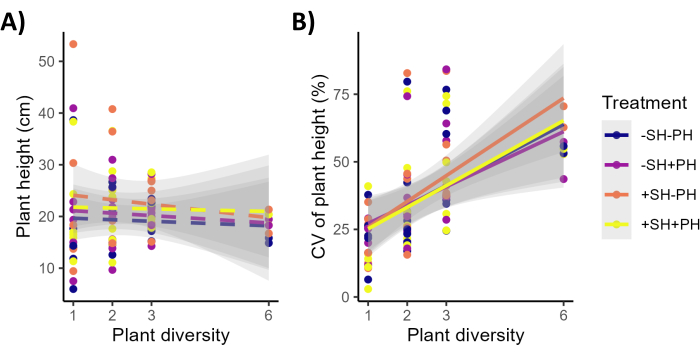
איור 5: השפעות עושר המינים על ממוצע הקהילה והשונות בגובה הצמח הצמחי. (A) ממוצע הקהילה. (B) שונות בגובה הצמח הצמחי. (+PH/-PH) להיסטוריה של הצמח, (+SH/-SH) להיסטוריה של הקרקע. וריאציה של גובה הצמח (CV) מוצגת לכל תת-יחידה. קווים מקווקווים מייצגים קווים לא משמעותיים, קווים מוצקים מייצגים השפעות משמעותיות על מגוון הצמחים. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
טבלה 1 קהילות צמחים בניסוי JenaTron. מונוקולטורות של כל מיני הצמחים שנבחרו (n = 6); תערובות 2 מינים (n = 9); תערובות של 3 מינים (n = 7) כולם עם הרכבים שונים; ושני שכפולים זהים של תערובת 6 המינים (n = 2). אנא לחץ כאן להורדת טבלה זו.
איור משלים 1: גובה הצמח הממוצע של המינים. גובה הצמח הממוצע של המינים בחלקות (A) של ניסוי JenaTron (יולי 2022) ובחלקות השדה (B) TBE (יולי 2012). רק נתונים מהטיפול עם היסטוריית הצמח והיסטוריית הקרקע נכללו בפאנל A. יש מתאם מובהק בין גובה הצמח בניסוי JenaTron לבין חלקות השדה (מתאם פירסון r(49) = 0.45, p = 0.0008). אנא לחץ כאן להורדת קובץ זה.
איור משלים 2: השפעות של טיפולי היסטוריה של צמחים וקרקעות על גובה צמחים וגטטיביים (ס"מ) של ששת מיני הצמחים ברמות שונות של מגוון צמחים (SR). סמלי המקרא +PH ו-PH מייצגים טיפולים עם ובלי היסטוריה של הצמח, בעוד ש-+SH ו--SH מסמלים טיפולים עם ובלי היסטוריה של הקרקע, בהתאמה. אנא לחץ כאן להורדת קובץ זה.
טבלה משלימה 1: תוצאות ANOVA ממודלים ליניאריים של אפקטים מעורבים המעריכים את ההשפעות של מגוון צמחים (עושר מינים, SR), היסטוריה של קרקע (SH) והיסטוריה של צמחים (PH) על גובה הצמח הן ברמת המין והן ברמת החלקה. ערכי F וערכי p מדווחים עבור כל מונח. הערה: numDF ו-denDF מייצגים את המונה ואת דרגות החופש של המכנה עבור כל מונח מודל. ערכי P < 0.05 מצביעים על השפעה מובהקת סטטיסטית על גובה הצמח. אנא לחץ כאן להורדת קובץ זה.
טבלה משלימה 2: מדידות מעל ומתחת לקרקע, משתני תגובה ושיטות. ספקטרום של מדידות מעל ומתחת לאדמה, משתני תגובה ושיטות שנערכו בניסוי JenaTron כדי לחקור את ההשפעות העצמאיות והאינטראקטיביות של היסטוריית הצמח וההיסטוריה של הקרקע על יחסי BEF עבור מערכות אקולוגיות בכללותן. אנא לחץ כאן להורדת קובץ זה.
דיון
עם ניסוי JenaTron, אנו מספקים גישה ניסויית משלימה לאתר השדה של ניסוי Jena 32,33 כדי לשפר את ההבנה המכאניסטית שלנו של קשרי BEF. ניסוי השדה מאפשר לנו לחקור את ההשפעות ארוכות הטווח של ההיסטוריה של הקרקע וההיסטוריה של הצמחים על תפקוד המערכת האקולוגית בתנאים סביבתיים מציאותיים, עם חלקות גדולות ובלתי מופרעות המאפשרות מדידות חוזרות ונשנות לאורך שנים רבות. השילובים שנבחרו באקראי של מיני צמחים ממאגר מינים גדול לאורך שיפוע מגוון צמחים מבוסס היטב ממונוקולטורות עד 60 מינים עוזרים לזהות השפעות גיוון על ידי אי הכללת השפעות ספציפיות למינים ככל האפשר32,33. עם זאת, ניסוי השדה, המתייחס כאן במפורש ל'ניסוי ΔBEF' כחלק מניסוי ג'נה (לפרטים נוספים, ראו Vogel et al. (2019)29), מוגבל בחקירת ההיסטוריה של הקרקע וההיסטוריה של הצמחים באופן עצמאי לחלוטין זה מזה ומהשפעות פוטנציאליות של גורמים חיצוניים שונים, כגון תנודות מזג אוויר, הפרעות טבעיות ואינטראקציות עם אורגניזמים אחרים29. בשלב זה, הגישה המשלימה של שימוש בניסויי אקוטרון נכנסת למוקד מחקר ה-BEF. ניסויי אקוטרון מייצגים חוליה חשובה בין ניסויי מיקרוקוסמוס בקנה מידה קטן וקצרי טווח, החוקרים רק מעט או אפילו רק מין בודד ובכך מפחיתים את המורכבות הגבוהה של ניסויי שדה או אפילו את העולם האמיתי34,38. לפיכך, המטרה העיקרית של ניסויי אקוטרון אינה לחקות את מלוא המורכבות של הטבע אלא ליצור מערכות אקולוגיות פשוטות אך בעלות משמעות ביולוגית. זה מאפשר להבין טוב יותר רבים, אך כמובן לא את כולם, תהליכים ביולוגיים ואינטראקציות המתרחשות בעולם האמיתי34,37. יתר על כן, המערכות הסגורות של אקוטרון מאפשרות לחקור שטפים ותהליכים, שלעתים קרובות לא ניתן לחקור בקלות בתחום35.
שינויים שונים בטכניקת הניסוי שימשו במחקרים קודמים, והדגישו את יכולת ההסתגלות המשמעותית של מתקן iDiv Ecotron. לדוגמה, ניסוי "ארמגדון חרקים"44, שנערך ב-2018, כלל תצורה מחדש של היחידות האקולוגיות על ידי הסרת הקירות הפנימיים מעל הקרקע וחיתוך תת-קרקעי עם גלילי פלדה. במקום זאת, המכלים התת-קרקעיים מולאו לחלוטין בתערובת אדמה-חול, מה שהקל על הקמת קהילות עשב הכוללות 12 מיני צמחים אירופיים על פני שטח קרקע של 1.5 מ"ר ליחידה אקולוגית. תכנון ניסיוני זה איפשר הכנסת שתי רמות שפע נפרדות של חסרי חוליות מעל הקרקע, מה שאפשר לחוקרים לחקור את ההשפעות של ירידה בביומסה של חסרי חוליות על תפקודי המערכת האקולוגית והשירותים בתוך מערכות אקולוגיות של ערבות מרכז אירופה. דוגמה נוספת להמחשה היא ניסוי "EcoLux", שנערך בשנת 2020, שהדגים שינוי במשטר האור כדי לחקור את השפעות זיהום האור בלילה על מגוון הצמחים וביצועיהם45 וכן את השפעתו על קהילות ותפקודי קרקע46. במבט קדימה, הפוטנציאל לשינויים נוספים נותר משמעותי. ניסוי "ResCUE" הקרוב, המתוכנן לשנת 2026, נועד לבחון את הקשרים בין מגוון צמחים ויציבות המערכת האקולוגית בתנאי אקלים קיצוניים26. ניסוי זה יישם בצורת חמה סטנדרטית, מצב סביבתי שקשה לשכפל בסביבות טבעיות, על ידי הדמיית משקעים מופחתים לצד טמפרטורות גבוהות יותר על פני שיפוע של מגוון צמחי עשב שנקבע ב-iDiv Ecotron. המחקר יתמקד בהערכת העמידות וההתאוששות של תפקודי מערכת אקולוגית מרובים בתגובה לאירוע הקיצוני האקלימי המבוקר26.
עם זאת, השימוש במתקני אקוטרון כדי לגשר בין ניסויי שדה וניסויי מיקרוקוסמוס בקנה מידה קטן כרוך גם במגבלות, כגון בעיקר קנה מידה מרחבי קטן יחסית, מספר נמוך של שכפולים, מורכבות ביולוגית נמוכה יותר והיעדר ייצוג של שונות אקלימית טבעית37. יתר על כן, מתקן iDiv Ecotron אינו יכול לדמות כל מיני תרחישים אקלימיים, כגון חורפים, מה שמגביל את יכולתו לחקור צמחים בודדים במחזור שנתי ריאלי על פני מספר דורות. לפיכך, כאמור, חשוב מאוד להתייחס למחקרי אקוטרון כגישות מחקר משלימות שיש לשקול בסופו של דבר בשילוב עם תוצאות מגישות ניסיוניות אחרות37. אף על פי כן, מתקן iDiv Ecotron מציע לנו הזדמנות ייחודית לחקור מונוליתים שלמים בקרקע בתנאים סביבתיים מבוקרים, להצליב באופן אורתוגונלי צמחים עם היסטוריה ספציפית לחברות צמחים שונות עם קרקעות עם היסטוריה ספציפית לחברות צמחים שונות ולחקור את השפעותיהם על תפקוד המערכת האקולוגית לאורך שיפוע מגוון צמחים, שקשה להשיג בתנאי שדה23. 35. בנוסף, הטכניקה מאפשרת לחקור צמחים בכללותם, הן מעל הקרקע והן מתחת לאדמה, בתנאי סביבה מבוקרים, שאינם ניתנים להשגה בקלות בשטח. לבסוף, בניסוי JenaTron הוקמו קהילות הצמחים הנטועות (ולא שנזרעו) כדי להבטיח צפיפות צמחים כוללת שווה, כאשר כל מין מיוצג בפרופורציות שוות. לעומת זאת, בקהילות שנזרעו, מינים מתבססים לעתים קרובות בקצב שונה, וחלק ממיני היעד עשויים להיכשל לחלוטין בהתבססות או להישאר בשפע נמוך מאוד.
כדי להבטיח את יכולת השחזור של הפרוטוקול המוצג, יש לשקול בקפידה מספר שלבים קריטיים במהלך הביצוע: (1) חפירת מונוליט קרקע: יתרון מרכזי אחד של מתקן iDiv Ecotron הוא יכולתו ליצור מספר ניכר של שכפולים של מונוליטים שלמים בקרקע בתנאים סביבתיים מבוקרים. כדי להבטיח את שלמות מונוליטי הקרקע, חיוני לשמור על תנאי שדה אופטימליים להפקת מונוליט קרקע. באופן ספציפי, לחות קרקע מוגזמת עלולה להוביל לדחיסה של עמוד האדמה, בעוד שקרקעות יבשות מדי או קפואות עלולות לגרום להיווצרות סדקים. במקרים בהם המונוליט נפגע עקב גורמים אלה, יש להשליכו, מה שמחייב חזרה על תהליך החפירה. (2) בחירת מינים: הפרוטוקול המתואר משתמש בשישה מיני צמחי עשב של TBE, שנבחרו על סמך חפיפה עם הניסוי העיקרי, ייצוג מאוזן של עשבים ועשבים, והאפשרות לחקור אסטרטגיות שונות לשימוש במשאבים (למשל, פנולוגיה של צמחים)41. עבור ניסוי מגוון ביולוגי, שישה מינים הם מספר מינים נמוך, ובחירה של מינים אחרים בעלי שילובי תכונות אחרות יכולה להוביל לתוצאות ניסוי שונות ויש לשקול זאת בקפידה. (3) צפיפות צמחים ופרופורציות שוות של כל המינים: יתרון בולט של מערך ניסוי JenaTron הוא שקהילות צמחים מוקמות עם צפיפות צמחים כוללת שווה ושכל מין מיוצג עם אותו מספר פרטים. הבטחת צפיפות צמחים עקבית ופרופורציות שתילה שוות היא חיונית לשחזור ניסיוני, מכיוון שהיא מונעת השפעות מבלבלות הקשורות להתבססות דיפרנציאלית של מינים בודדים. לפיכך, בקרה מדויקת על צפיפות הצמח חיונית לשימור תכנון הניסוי ולהבטיח תוצאות אמינות.
לאחר התחלת ניסוי JenaTron בעקבות הפרוטוקול עם דגש מיוחד על התחשבות בשלבים הקריטיים ביותר שהוזכרו, השפעות טיפול ניכרות על גובה קהילת הצמחים, צבעם וזמן הפריחה הופיעו במהירות. ניתוחים השוואתיים מאוחרים יותר של גבהי צמחים וגטטיביים ספציפיים למינים בין JenaTron ל-TBE אישרו בבירור כי קהילות שהוקמו ב-iDiv Ecotron אכן דומות לקהילות המקוריות בשטח. כדי לספק מקרה בוחן נוסף לניתוח נתונים, ניתחנו את גובה הצמח הצמחי בניסוי JenaTron ביתר פירוט. ניתוחים של גבהי צמחים וגטטיביים ספציפיים למין ב-JenaTron אישרו את ההתבססות המוצלחת של כל מיני היעד וחשפו הבדלים משמעותיים בין מינים וקבוצות פונקציונליות. תוצאה זו צפויה, מכיוון שעשבים ידועים כגבוהים יותר מקבוצות פונקציונליות אחרות בניסוי Jena47. זוהתה השפעה חיובית משמעותית של היסטוריית הקרקע על פני מינים, מה שמצביע על כך שתנאי קרקע קודמים מעצבים את צמיחת הצמחים באקוטרון, מונעים באופן פוטנציאלי על ידי השפעות משוב חיוביות מקרקעות שבעבר אכלסו קהילת צמחים (ללא תלות ברמת המגוון) ומשוב שלילי מקרקעות שהוחזקו נקיות מצמחייה. נראה כי התכונות הביוטיות והא-ביוטיות של היסטוריית הקרקע שונות, מה שמעניק לצמחים בקרקעות עם היסטוריה ספציפית לקהילה צמחית יתרון על פני צמחים בקרקעות ללא היסטוריה זו, שכן גובה הצמח ממלא תפקיד חשוב ביכולתם להתחרות על אור ולכן הוא תכונה חיוניתלרווח פחמן. לעומת זאת, לא נמצאה השפעה משמעותית של היסטוריית הצמחים הספציפית לחברת הצמחים על הגובה הצמחי הממוצע, מה שמרמז על כך שלתכונות הקרקע עשויה להיות השפעה חזקה יותר ממקורות הזרעים בתנאי הסביבה של האקוטרון. עם זאת, השערה זו צריכה להיבדק בצורה הוליסטית על ידי חקירת ריבוי פונקציות המערכת האקולוגית שנמדדו בניסוי JenaTron.
לא ניתוחים ספציפיים למינים ולא לקהילה סיפקו ראיות לכך שעושר המינים משפיע על גובה הצמח הצמחי הממוצע, בניגוד לממצאים קודמים מניסוי השדה, שבו גובה הצמח גדל עם מינים גבוהים יותר49 ככל הנראה בגלל תחרות אור חזקה יותר47,50. השלמה גדולה יותר בין מינים בקהילות מגוונות יותר עשויה להוביל לצפיפות צמחים גבוהה יותר51, מה שעשוי לשפר בנוסף את צמיחת גובה הצמח52. היעדר השפעות של מגוון צמחים על גובה הצמח בניסוי JenaTron יכול לנבוע אפוא מהיעדר שונות תלוית מגוון ביולוגי בצפיפות הצמחים, מה שמצביע על החשיבות הפוטנציאלית של מנגנון זה לביצועי צמחים בודדים תלויי מגוון בעולם האמיתי52. עם זאת, לעושר המינים הייתה השפעה משמעותית על גובה הצמחים, מה שמצביע על כך שמגוון הצמחים מגדיל את המורכבות המבנית של הצמחייה, בהתאם למחקרים המקשרים את המגוון לחופות מורכבות יותר מעל פני הקרקע 49,50,52,53,54.
יחד, התוצאות מאשרות את ההקמה המוצלחת של טיפולי המטרה של ניסוי JenaTron, ומספקות תובנות ראשונות לגבי יעילות הגישה שלנו באמצעות ביטוי מהיר של השפעות טיפול משמעותיות (איור 3, איור 4 ואיור 5). בנוסף, ניתוח השוואתי של גובה צמחים וגטטיביים ספציפיים למין מצביע על כך שהקהילות החדשות שהוקמו ב-iDiv Ecotron אכן דומות לתצפיות השדה המקוריות. הניתוח המפורט של גובה הצמח הצמחי משמש כמקרה בוחן לניתוח נתונים והדמיה של משתני תגובה בודדים. עם זאת, מחקר מקרה זה מדגיש את המגבלות של התמקדות במשתנה תגובה יחיד בהתייחסות הוליסטית להשערת העל, האם הקשר המתחזק בין המגוון הביולוגי לתפקוד המערכת האקולוגית לאורך זמן נובע מהיסטוריה של הקרקע, היסטוריית הצמחים או שילוב של שניהם. זה מדגיש את החשיבות של הגישה השיתופית שלנו לחקירת ההשפעות העצמאיות והאינטראקטיביות של היסטוריית הצמח וההיסטוריה של הקרקע על יחסי BEF23. אחד עשר תת-פרויקטים של יחידת המחקר הניסויי של ג'נה (FOR 5000) עבדו בשיתוף פעולה הדוק בניסוי JenaTron, ומדדו מגוון רחב של משתני תגובה בתחומי מחקר שונים, כגון מיקרוביולוגיה, אקולוגיה כימית, פנולוגיה, חישה פרוקסימלית, גנטיקה, אפיגנטיקה, אקולוגיה של קרקע ומודלים של שרשרת מזון. מאמץ אינטגרטיבי זה נועד (1) להפריד בין השפעות ההיסטוריה של הצמח לבין השפעות ההיסטוריה של הקרקע על רמות הזנה מרובות ותפקודי מערכת אקולוגית, (2) לחקור השפעות ספציפיות למיני צמחים וספציפיות לאינטראקציה בכל רמות העושר של מיני צמחים, ו-(3) לחקור את המנגנונים הבסיסיים של קשרי BEF23 (טבלה משלימה 249, 50,55,56,57,58,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
גילויים
למחברים אין מה לחשוף.
תודות
תודה יוצאת דופן ל-L. Boockmann, T. Meier, N. Naderi ו-L.-M. וולטר על תמיכתם כעוזרי מחקר במשך כל תקופת ניסוי ג'נטרון. תודה רבה לכל עובדי Umwelt-Geräte-Technik GmbH (UGT) על שיתוף הפעולה המקצועי והחם במהלך חפירת מונוליט האדמה בניסוי יינה. ברצוננו להודות גם ל-C. Lauterwasser, H.-C. Schulz, ו- R. Widuwils על תמיכתם ב- UGT בחפירת מונוליט אדמה. תודה רבה לצוות הטכני של ניסוי יינה S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze ו- H. Scheffler על תמיכתם בשטח ועזרתם הקשה במהלך מסע הנטיעות ב- iDiv Ecotron. אנו אסירי תודה ל-I. Merbach ולצוות הטכני של תחנת המחקר של מרכז הלמהולץ למחקר סביבתי (UFZ) בבאד לאוכשטדט, במיוחד ל-O. Bednorz ו-K. Kirsch, על תמיכתם החיונית. אנו רוצים להודות לא.ק. בארת ור. אלטמן על שיתוף הפעולה המצוין שלהם בחממת iDiv. תודה רבה לש' הנזל, א' לוכנר וא' זונר על עזרתם החיונית באדמיניסטרציה, בארגון ובעבודת המעבדה. אנו מודים לעמיתי מרקטור J. Cavender-Bares, F. Isbell, L. Mommer ו-K. Mueller, כמו גם למשתף הפעולה הקרוב B. Schmid ולחוקרים הראשיים U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth ו-J. Wolf על תרומתם החשובה לרעיון, לעיצוב ולהגשמה של ניסוי JenaTron. לבסוף, אנו מודים לקרן המחקר הגרמנית (DFG) על התמיכה הכספית (FOR 5000), כמו גם למרכז הגרמני לחקר מגוון ביולוגי אינטגרטיבי (iDiv, במימון קרן המחקר הגרמנית [DFG-FZT 118, 202548816]), לאוניברסיטת לייפציג, לאוניברסיטת פרידריך שילר בינה ולמכון מקס פלאנק לביוגיאוכימיה בינה על התמיכה הכספית והלוגיסטית.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אדנית נורות ( קוטר 4 ס"מ) | קנט & | חנות לחומרי בניין | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ מקור=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| נר יניקה מחבר | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| מגש טיפוח ( ללא ניקוז) | קניות בונסאי | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| מים דה-מינרליים (VE) | Alfiltra | VEWA1000B | |
| https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter סרט דביק | חנות לחומרי בניין | T-Rex | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| קופסאות פלסטיק (20 ליטר) | אריזת Auer | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source = 1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| נייר סינון (קוטר 150 מ"מ) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| מלגזה | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| חומצה ג'יברלית ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| פכי מדידה ( 3000 מ"ל) | Hü https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ חנות לחומרי בניין נרסדורף | ; | |
| פכי מדידה ( 5000 מ"ל) | Hü https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ חנות לחומרי בניין נרסדורף | ; | |
| מסננות מתכת (גודל רשת 4 מ"מ) | בלאו-מטאל | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| מיני חופר | צפלין חתול | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| אמבטיות מרגמה ( 90 ליטר) | חנות לחומרי בניין | Gripline | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| צלחות מולטיפוט (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| צלחות פטרי (קוטר 150 מ"מ) | לאבסולוט | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| שבלונה לשתילה (בהתאמה אישית) | UFZ | n.a. | שבלונה לשתילה המיוצרת על ידי בית המלאכה של מרכז הלמהולץ למחקר סביבתי (UFZ), לייפציג, גרמניה, במיוחד לשתילת גלילי המתכת iDiv Ecotron. |
| נייר כסף | פלסטיק חנות לחומרי בניין קרגו פוינט | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ | |
| אתי פלסטיק | Hü https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ חנות לחומרי בניין נרסדורף | ; | |
| מרסס לחץ (1500 מ"ל) | Bü רקל | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| אבקת קוורץ | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| חול קוורץ HQS (גודל 0.3 - 0.8 מ"מ) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| פקקי חותם | Umwelt Gerä te Technik (UGT) | 1871000 https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ | |
| חומר זרעים | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| ערכת מדידת לחות קרקע (ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| מיצוי מונוליט קרקע מכשיר | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| חיישני קרקע ( SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| פינצטה מפלדת קפיץ (105 מ"מ) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| להב נירוסטה (בהתאמה אישית) | UFZ | n.a.להב | נירוסטה המיוצר על ידי בית המלאכה של מרכז הלמהולץ למחקר סביבתי (UFZ), Bad Lauchstä dt, גרמניה, במיוחד להכנסת חיישני קרקע לגלילי המתכת iDiv Ecotron. |
| צילינדר נירוסטה | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| מדבקות סטיק (12 ס"מ x 2 ס"מ) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| מתלה | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| צלחת עליונה/תחתונה זמנית | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| קיסמים | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8aa& סוג חנות=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-PLA-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 חנות לחומרי בניין Iwo-CRoCfWsQAvD_BwE |
| Trowel | Kaufmann | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea | . google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| משאית | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term & gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& סוג רכב = TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& פיקאפYe ar=2024& pickupMonth=12& איסוף יום=11& dropoffYear=2024& dropoff חודש=12& יום ירידה=18& איסוף שעה = 10 & pickupMinute=00& החזרה שעה=18& dropoffMinute=00& נהג גיל = 26 & countryOfResidence=DE |
| פינצטה | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| בדיקות יניקת מים | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| עץ לחיישן יומן | לחומרי בניין | Konsta | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
מקורות
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
הדפסות חוזרות והרשאות
