קווי תאים שימושיים במחקרים על אורגניזמים תוך-תאיים שלא ניתן לגדל מחוץ לתאים המארחים שלהם. למרות שקווים נגועים בוולבכיה אפשרו תגליות רבות, ההטרוגניות בתוך קווים אלה יכולה להוביל לתוצאות ניסוי משתנות. אנו מציגים פרוטוקול ליצירת שיבוטים של תאים בודדים ותרביות רציפות מתאי JW18 נגועים בוולבכיה.
מאמר שיטה
יצירת תרביות חד-שבטיות מקו התאים של Drosophila melanogaster JW18 נגוע בוולבכיה
במאמר זה
סיכום
תקציר
קווי תאים הם מודלים בשימוש נרחב במחקר ביולוגי. הם שימושיים במיוחד במחקרים על חיידקים תוך-תאיים שלא ניתן להפיץ ביעילות מחוץ לאורגניזמים מארחים. וולבכיה, סימביונט תוך-תאי של חסרי חוליות רבים, גורם להשפעות רבייה ואנטי-ויראליות חזקות במארחי החרקים שלו. תאי חרקים נגועים בוולבכיה היו בשימוש נרחב לחקר פנוטיפים של וולבכיה. עם זאת, קווי תאים אלה מורכבים לרוב מאוכלוסיות מעורבות של תאים עם פנוטיפים ותגובות שונות לטיפולים ניסיוניים. בפרט, קווי תאים עם וולבכיה דווחו כמציגים שיעורי גדילה משתנים ושכיחות משתנה של זיהום וולבכיה ממעבר אחד למשנהו. כדי לתקן זאת, יצרנו קווי תאים חד-שבטיים מקו תאי JW18 שמקורו בדרוזופילה מלנוגסטר נגוע בוולבכיה. קווים משובטים אלה נקבעו בנקודות זמן שונות ומראים סטטוסים שונים של זיהום וולבכיה. שונות זו מצביעה על כך שכל טיפול המיושם על אוכלוסיית JW18 הורית יכול להוביל לבחירת תת-אוכלוסיות בניגוד להשפעה על הפיזיולוגיה של התרבות כולה. כאן, אנו מציגים פרוטוקול ליצירת שיבוטים של תא בודד ותרביות שיבוט רציפות מתאי חרקים נגועים בוולבכיה, המאפשר ניסויים מבוקרים וניתנים לשחזור יותר.
מבוא
תאי Drosophila melanogaster נמצאים בשימוש נרחב במחקרים גנטיים, חקר מחלות וכפלטפורמה לבדיקת תרופות בתפוקה גבוהה1. הם גם מועילים בחקר אחד המיקרובים התוך-תאיים הנפוצים ביותר על פני כדור הארץ: וולבכיה. וולבכיה הוא חיידק תוך-תאי גרם שלילי שנמצא ב-40-70% ממיני החרקים 2,3,4, שם הוא מתפשט באופן אימהי וגורם למניפולציות רבייה 5,6,7,8. וולבכיה יכולה גם לספק למארחים נגועים הגנה אנטי-ויראלית 9,10,11,12,13,14,15 אשר יחד עם מניפולציות רבייה מנוצלות כדי לשלוט בהעברת ארבו-וירוס מיתושים לבני אדם 16,17. במערכות שונות, הוכח כי וולבכיה שולטת באפופטוזיס18, מספקת חומרים מזינים חיוניים19 ומשנה את ביטוי הגנים והחלבונים 20,21,22,23,24,25.
קווי תאים הופיעו כמודל לחקר וולבכיה בגלל הביולוגיה הפשוטה שלהם, הנוחות והיכולת להתפשט בכמויות גדולות. קווי תאים הוכחו כיעילים בהסתגלות מוקדמת של וולבכיה לסימביוזה עם פונדקאים חדשים26 ומאפשרים לוולבכיה לצבור מוטציות27,28. הם שימשו לסריקת תרכובות אנטי-וולבכיה, שיכולות להיות מועילות בטיפול במחלות פילריאליות29 ובחקר אינטראקציה בין וולבכיה למארח30. למרות שקווי תאים הם הכרחיים במחקרים על סימביוזה של וולבכיה 29,30,31, המנגנונים העומדים בבסיס רוב הפנוטיפים של וולבכיה נותרו לא ידועים. זה מצביע על כך שעדיין ניתן לשפר את מערכת מודל תרבית התאים.
קווי תאי חרקים נגועים בוולבכיה נגזרים מעוברי חרקים וזחלים. Aa23, שמקורו בעוברים של Aedes albopictus, היה קו32 היציב הראשון שנדבק בוולבכיה, ושימש לאחר מכן למחקרים רבים על סימביוזה של וולבכיה 33,34,35. קו התאים JW18 היה אחד הקווים הראשונים הנגועים בוולבכיה באופן טבעי שנוצרו מ-D. melanogaster29,36. קו זה, שמקורו בעוברים של שעה עד 15 שעות של זבובים נגועים ב-wMel, שימש גם כמקור לוולבכיה עבור קווי תאים אחרים של דרוזופילה: 1182-4H ו-S2R+37. מכיוון שלעוברים יש שיעור גבוה של תאים פלוריפוטנטיים, על ידי הסתגלות לגידול בפלסטיק, הם יכולים לרכוש מאפיינים חדשים, לפעמים שונים עבור שושלות תאים בודדות. זה עשוי להסביר את ההטרוגניות של מורפולוגיות התאים ותדירות הזיהום של וולבכיה שנצפו בתאים אלה בכל זמן נתון ולאורךדורות 29.
המגוון התאי בתרבית JW18 מעורר חששות, שכן מחקרים על קווי תאים של יתושים, כגון Aag2, הראו כי קווי תאים חד-שבטיים והורים עשויים להגיב באופן שונה לטיפולים עקב שינויים במאפייני התא38. כתוצאה מכך, מתן טיפולים לאוכלוסיית תאים מעורבים עלול להניב תוצאות מטעות. כדי לחקור את התגובה של אוכלוסיית תאים הומוגנית לטיפול (לא סלקציה לסוגי תאים בודדים), יצרנו תרביות חד-שבטיות מקו התאים ההורי JW18. לא נעשו ניסיונות קודמים לייצר תרביות חד-שבטיות מתאים אלה. הפרוטוקול כולל בידוד תאים בודדים מקו התאים של ההורים JW18, ולאחר מכן תחזוקתם והעברתם לצלוחיות כדי ליצור תרביות שיבוט רציפות. בדקנו את מצב ההדבקה בוולבכיה של קווים בודדים, והראינו שהם שונים במאפיין מפתח זה. תרביות תאים הומוגניות הן קריטיות להבטחת הדיוק והשחזור של ניסויים עתידיים.
פרוטוקול
הערה: כל העבודה עם תאים חיים והמדיה שלהם חייבת להתבצע בארון בטיחות ביולוגי כדי למנוע זיהום.
1. הכנת מדיה
- הכן מדיום תרבית טרי על ידי השלמת מדיום חרקים מגן וסאנג עם 10% סרום בקר עוברי (FBS).
- מדיה מושקעת ומותנית
- גדל תאי JW18 בבקבוקבגודל 25 ס"מ המכיל מדיום טרי של חרקים מגן וסאנג בתוספת 10% FBS ב-25 מעלות צלזיוס. דגירה עד שהתאים מגיעים למפגש (~ שבוע).
- סנן את מדיום תרבית התאים המשומש בן שבוע המשמש לגידול התאים, כדי להסיר וולבכיה, פסולת תאים ומזהמים אחרים: השתמש במסנן סטרילי של 5 מיקרומטר ולאחר מכן במסנן סטרילי של 0.2 מיקרומטר המותאם למזרק של 50 מ"ל.
- הכן מדיום מותנה על ידי השלמת מדיום טרי עם 20% מהמדיום המושקע. הכן מספיק מדיום ממוזג לצלחת אחת של 96 בארות (~ 30 מ"ל); בעזרת פיפטה סרולוגית, מערבבים 6 מ"ל של המדיום המסונן עם 24 מ"ל של מדיום Shield ו-Sang Insect טרי בתוספת 10% FBS.
2. הכנת צלחת 96 בארות
- הכנת תרחיף תאים JW18
- מגרדים את התאים מבקבוק משולב בן שבוע באמצעות מגרד תאים ומשעים אותם מחדש באמצעות פיפטה סרולוגית.
- ספרו את התאים באמצעות תא נויבאואר ודללו אותם במדיום מותנה כדי להשיג ריכוז סופי של 2 x 10³ תאים/מ"ל.
- הוספת מדיום מותנה לצלחת
- העבירו את המדיום הממוזג המוכן למאגר ריאגנט.
- בעזרת פיפטה רב-ערוצית, הוסף 100 מיקרוליטר של מדיום מותנה לכל באר של צלחת 96 הבארות, למעט באר A1.
- דילול סדרתי של מתלה התא
- הוסף 200 מיקרוליטר של מתלה התא לבאר A1.
- בעזרת פיפטה חד-ערוצית, העבירו 100 מיקרוליטר מבאר A1 לבאר B1 וערבבו בעדינות (הימנעו מבועות) כמו באיור 1A.
- חזור על הדילול הסדרתי במורד עמודה 1, והשליך את 100 המיקרוליטר הסופיים מהבאר האחרונה.
- דילול על פני הצלחת
- הוסף 100 מיקרוליטר של מדיום מותנה לכל באר בעמודה הראשונה, לנפח כולל של 200 מיקרוליטר.
- בעזרת הפיפטה הרב-ערוצית, העבירו 100 מיקרוליטר מהעמודה הראשונה לשנייה. מערבבים בעדינות.
- חזור על תהליך זה עבור כל העמודות (1-12) על פני הלוח (איור 1A).
- לאחר ההשעיה מחדש, השלך 100 מיקרוליטר מהעמודה האחרונה. בשלב זה, כל באר מכילה 100 מיקרוליטר של תרחיף תאים.
- הוסף 100 מיקרוליטר נוסף של מדיום תרבית לכל הבארות, והביא את הנפח הסופי בכל באר ל-200 מיקרוליטר.
3. זיהוי תאים בודדים
- מכסים את הצלחת, אוטמים אותה ב-Parafilm ומסמנים אותה בהתאם.
- התבוננו בלוח תחת מיקרוסקופ, ובדקו כל באר בזהירות אם יש תאים בודדים (איור 1B). הקפד לסרוק היטב את הבארות והקצוות כדי לאשר את נוכחותו של תא אחד בלבד.
הערה: זהו אחד השלבים הקריטיים ביותר בפרוטוקול. - רשום את מספר הבאר של תאים בודדים על מפת לוח של 96 בארות (על נייר).
הערה: סביר יותר שתאים בודדים יימצאו בבארות לכיוון ימין ותחתון הצלחת. - לאחר זיהוי וסימון תאים בודדים, אחסן את הצלחת בחממה בטמפרטורה של 25 מעלות צלזיוס. עקוב אחר התאים כל יומיים.
4. תחזוקה והעברת תאים
- ניטור תאים
הערה: לתאי JW18 בדרך כלל לוקח 3 ימים להתחיל להתחלק מתא בודד, ואוכלוסיות משובטות עשויות לגדול בקצב שונה (איור 2).- עקוב אחר הבארות כל 2-3 ימים לאיתור זיהום חיידקי וכדי לוודא שהמדיום לא התייבש. אם נראה שהבארות מתייבשות, מלאו אותן במדיום טרי לפי הצורך.
- הרחבת תאים
- ברגע שהתאים מגיעים למפגש בצלחת של 96 בארות, העבירו אותם לצלחת של 24 בארות (איור 1D).
- לאחר מכן, העבירו את התאים לצלחת של 6 בארות ולבסוף לבקבוק (איור 1E, F).
הערה: התרחבות מדורגת זו מגדילה את הסבירות להקמת קו תאים משובט רציף.
- הקפאת תאים
- לאחר הקמת תרבית משובטת, הקפיאו חלק מהתאים לשימוש עתידי.
- מגרדים את התאים מהבקבוק בעזרת מגרד תאים ומעבירים אותם לצינור צנטריפוגה של 15 מ"ל. צנטריפוגה ב-250 x גרם למשך 5 דקות ב-4 מעלות צלזיוס.
- הכן מדיום הקפאה פי 2 (מדיום חרקים מגן וסאנג בתוספת 20% FBS ו-10% DMSO).
- לאחר הצנטריפוגה, השליכו חלק מהסופרנטנט והשאירו מחצית מהנפח הרצוי הסופי. הוסף נפח שווה של מדיום ההקפאה פי 2 לסופרנטנט הנותר והשהה בעדינות את הגלולה באמצעות פיפטה.
- הכניסו 1 מ"ל מהמתלה לכל 1.5 מ"ל קריוביאל והניחו את הבקבוקונים על קרח. אחסן את הבקבוקונים בטמפרטורה של -80 מעלות צלזיוס למשך הלילה, ולאחר מכן העביר אותם למיכל חנקן נוזלי למחרת לאחסון לטווח ארוך.
- לאחר הקמת תרבית משובטת, הקפיאו חלק מהתאים לשימוש עתידי.
5. PCR לאישור סטטוס וולבכיה
- חלץ DNA מדגימות התרבית החד-שבטית בשיטת פנול-כלורופורם39.
- מניחים 1 מ"ל של תאים מגורדים ותלויים במדיום בצינור מיקרו-צנטריפוגה של 1.5 מ"ל וצנטריפוגה את התאים ב-290 x גרם למשך 5 דקות ב-4 מעלות צלזיוס. השליכו את הסופרנטנט (מדיום תרבית תאים) והניחו את הצינור על קרח.
- הוסף 250 מיקרוליטר של תמיסה A, המורכבת מ-0.1 M Tris HCl (pH 9.0), 0.1 M EDTA ו-1% SDS. השעו מחדש את התאים ודגרו בטמפרטורה של 70 מעלות צלזיוס למשך 30 דקות בבלוק חימום.
- לאחר הדגירה, הוסיפו 35 מיקרוליטר של 8 M אשלגן אצטט, נערו את הצינור בעדינות (הימנעו ממערבולת), ודגרו על קרח למשך 30 דקות נוספות.
- סובב ב-13,000 סל"ד למשך 15 דקות ב-4 מעלות צלזיוס, העביר את הסופרנטנט לצינור חדש והוסף נפח שווה של פנול-כלורופורם. לנער היטב ולהסתובב שוב, ולחזור על שלב זה פעם אחת.
- העבירו את הסופרנטנט לצינור חדש, ואז הוסיפו 150 מיקרוליטר של איזופרופנול, נערו וסובבו במהירות של 10,000 סל"ד למשך 5 דקות. הסר את הסופרנטנט בזהירות, שטוף את הגלולה עם 1 מ"ל של 70% אתנול וסובב ב-13,000 סל"ד.
- לאחר ייבוש הגלולה למשך 10 דקות בטמפרטורת החדר, השעו אותה מחדש ב-100 מיקרוליטר של מאגר TE. כמת את ה- DNA ואחסן ב -20 מעלות צלזיוס.
- בצע PCR קונבנציונאלי עם ה-DNA המופק מדגימות התרבית החד-שבטית כדי לזהות וולבכיה באמצעות תערובת מאסטר PCR ירוקה של DreamTaq. השתמש בפריימרים wsp 81F ו-wsp 691R40 עבור פריימרים Wolbachia ו-Drosophila rpl32 41 לבקרת איכות DNA.
- הוסף 7.5 מיקרוליטר של תערובת מאסטר, 0.5 מיקרוליטר מכל פריימר ב-10 מיקרומטר, 1 מיקרוליטר של DNA מדולל 1:50 ו-5.5 מיקרוליטר של מים בדרגה מולקולרית כדי לקבל 15 מיקרוליטר מתערובת התגובה.
- השתמש בתוכנית ה-PCR הבאה: 94 מעלות צלזיוס למשך 4 דקות, 30 מחזורים x (94 מעלות צלזיוס למשך 40 שניות, 55 מעלות צלזיוס למשך 40 שניות, 72 מעלות צלזיוס למשך 30 שניות), 72 מעלות צלזיוס למשך 10 דקות. לאחר PCR, שמור דגימות ב-4 מעלות צלזיוס.
- בצע אלקטרופורזה של ג'ל אגרוז בג'ל אגרוז 2% במאגר TAE ב-90 וולט עם מוצרי ה-PCR המתקבלים כדי להמחיש את הרצועות. הוסף סולם DNA לצד כדי לזהות את הרצועות עבור wsp (632 bp) ו-rpl32 (194 bp).
6. צביעת FISH כדי להמחיש זיהום וולבכיה בשורות תאים
- בצע הכלאה פלואורסצנטית באתרה (FISH) כמתואר בפרוטוקול Stellaris FISH עבור תאים דבקים לצבוע וולבכיה עם סט בדיקות 16s rRNA FISH מתויג של קוואזר 670. מכתים את חומצות הגרעין עם Hoechst 33342.
הערה: ערכת בדיקה זו תוכננה על סמך רצף wMel 16S rDNA ותואמת את ערכת הבדיקה שפורסמה ב-Schneider et al.42 (ראה טבלה משלימה S1).- הכן ריאגנטים (מאגר קיבוע, מאגר הכלאה, מאגר כביסה A ו-B, ערכת בדיקה מותאמת אישית משוחזרת) בהתאם להוראות היצרן43.
- גדל תאים נדבקים על 70% זכוכית כיסוי עגולה מעוקרת אתנול 18 מ"מ בצלחת תרבית של 24 בארות. לאחר שהתאים מגיעים למפגש הרצוי, יש לשאוב את מצע הגידול ולשטוף עם 1 מ"ל של 1x PBS. מוסיפים 1 מ"ל של מאגר קיבוע ודוגרים בטמפרטורת החדר למשך 10 דקות. שוטפים את התאים פעמיים עם 1 מ"ל של 1x PBS.
- לחלחל על ידי טבילת הכיסוי בתאים ב-1 מ"ל של 70% אתנול ולדגור למשך הלילה ב-4 מעלות צלזיוס; אחסן את הדגימות באתנול בטמפרטורה זו עד שבוע לפני ההכלאה. שאפו את האתנול והוסיפו 1 מ"ל של מאגר כביסה A; דוגרים בטמפרטורת החדר למשך 2-5 דקות.
- הכן תא לח על ידי הנחת מגבת נייר רוויה במים ושכבת פרפילם בכלי תרבית 150 מ"מ. פיפטה 100 מיקרוליטר של מאגר הכלאה המכיל 1 מיקרוליטר של מלאי בדיקה של 12.5 מיקרומטר על גבי הפרפילם. הפוך בעדינות את זכוכית הכיסוי, והנח את התאים כלפי מטה על טיפת מאגר ההכלאה. כסו ואטמו את החדר עם Parafilm, ולאחר מכן דגרו בחושך בטמפרטורה של 37 מעלות צלזיוס למשך 4 שעות לפחות (עד 16 שעות במידת הצורך).
- לאחר הכלאה, העבירו בזהירות את צד תאי זכוכית הכיסוי כלפי מעלה לבאר טרייה המכילה 1 מ"ל של מאגר כביסה A ודגרו בטמפרטורה של 37 מעלות צלזיוס למשך 30 דקות. שאפו את המאגר והוסיפו 0.5 מיקרוליטר של מלאי Hoechst של 20 מ"מ ל-700 מיקרוליטר של מאגר כביסה A; דגירה בטמפרטורה של 37 מעלות צלזיוס למשך 30 דקות בחושך.
- הסר את תמיסת Hoechst והוסף 1 מ"ל של Wash Buffer B; דוגרים בטמפרטורת החדר למשך 2-5 דקות. לבסוף, הנח טיפה קטנה (10 מיקרוליטר) של מדיום הרכבה על שקופית מיקרוסקופ והרכיב את תאי זכוכית הכיסוי כלפי מטה על הטיפה. נדפו בעדינות עודפי אמצעי הרכבה ואטמו את היקף זכוכית הכיסוי עם לק שקוף.
- אחסן את השקופיות ב-4 מעלות צלזיוס והמשך להדמיה בהקדם האפשרי.
- עבד את התמונות באמצעות ImageJ44. פצלו ערוצים ושנו את לוח הצבעים בהתאם לצורך.
תוצאות
דמיינו את התהליך של הקמת תרביות חד-שבטיות עם מיקרוסקופ אור מיום הכנת התרחיף והציפוי של התא הבודד (יום 0) ועד להקמת קווי תאים רציפים (יום 45 או 77, איור 2). הסימנים הראשונים של חלוקת תאים נצפו ביום השלישי (4 ימים לאחר הציפוי, שכן הציפוי בוצע ביום 0) כאשר כבר היו ארבעה תאים לבאר (איור 2). ביום ה-14, השיבוטים גדלו כחד-שכבתי (JW18-B9, C7 ו-E5) או ככדור (JW18-G4), ששובש במהלך המעבר. ביום ה-28, ההבדלים בגדילה בין קווי התאים היו ברורים ביותר. תרבית JW18-C7 הייתה מתכנסת ביום 45, בעוד שתרביות השיבוט הנותרות הוקמו רק ביום 77. דמיינו גם את ארבע התרבויות השונות 30 קטעים לאחר ההקמה כדי ללכוד הבדלים במורפולוגיה של תאים (איור 3).
כדי לקבוע את מצב הזיהום של וולבכיה בתרביות חד-שבטיות, ערכנו PCR (איור 4) ו-FISH (איור 5). ראינו שכל השיבוטים מלבד אחד (JW18-C7) יצרו רצועה לגן wsp , המעידה על זיהום וולבכיה . FISH אישש את תוצאות ה-PCR: שיבוטים JW18-B9, JW18-E5 ו-JW18-G4 שמרו על זיהום וולבכיה , בעוד שבשיבוט JW18-C7 לא היה וולבכיה. בסך הכל, מאוכלוסיית תאי JW18 מעורבת, הצלחנו ליצור ארבע תרביות משובטות, ששלוש מהן שמרו על זיהום הוולבכיה המקורי. ניתן לגשת לנתונים הגולמיים בכתובת Figshare: https://figshare.com/s/15fde47ca7338f31dda9.
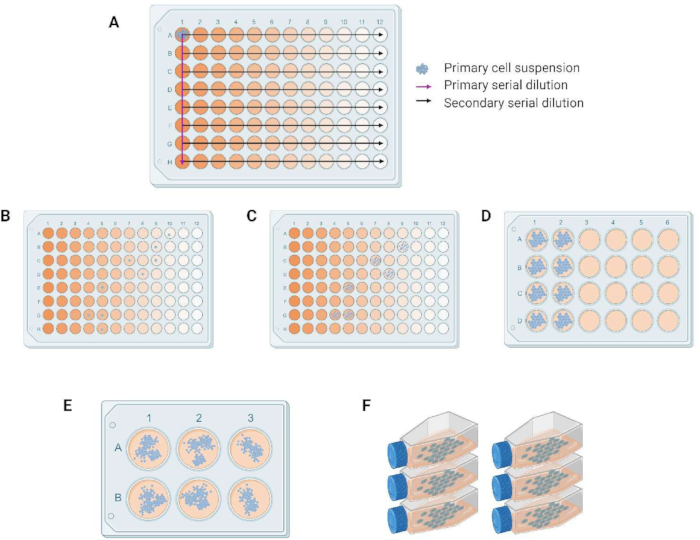
איור 1: זרימת עבודה ליצירת תרבית חד-שבטית. (A) דילולים ראשוניים ומשניים בצלחת 96 בארות. (B) תאים בודדים לאחר דילול סדרתי. (ג-ה) התקדמות בכפל תאים והעברה מצלחת 96 באר לצלחת 24 ו-6 בארות, בהתאמה. (F) תרביות רציפות בצלוחיות תרבית תאיםבגודל 25 ס"מ. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
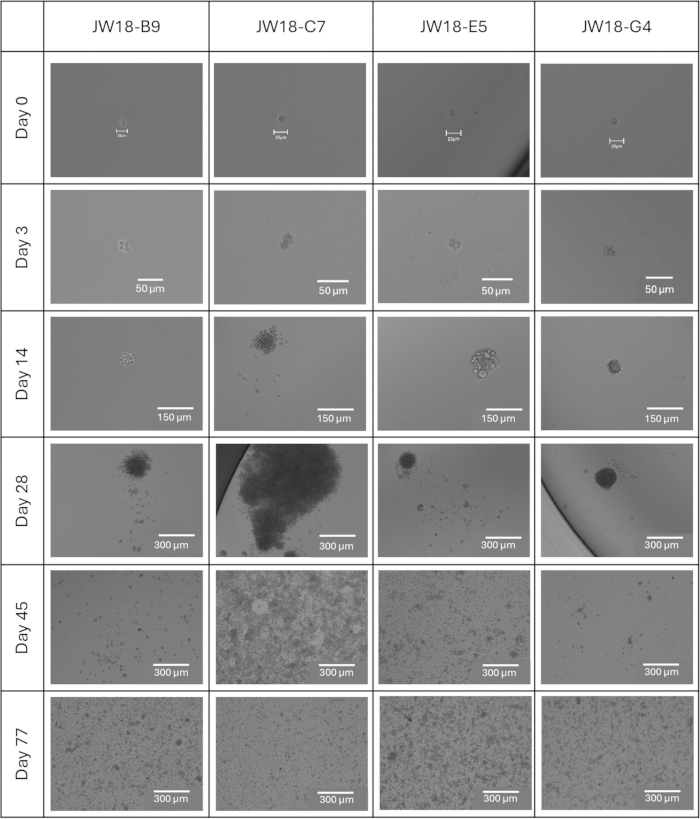
איור 2: התקדמות קווי שיבוט JW18 מתא בודד לתרבית רב-תאית. תמונות שדה בהירות של קווים משובטים מהיום 0 (יום הציפוי) עד היום ה-77, כאשר כל הקווים הוקמו בהצלחה בבקבוק תרבית תאיםבגודל 25 ס"מ. פסי קנה מידה = 25 מיקרומטר (יום 0), 50 מיקרומטר (יום 3), 150 מיקרומטר (יום 14), 300 מיקרומטר (ימים 28, 45, 77). אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
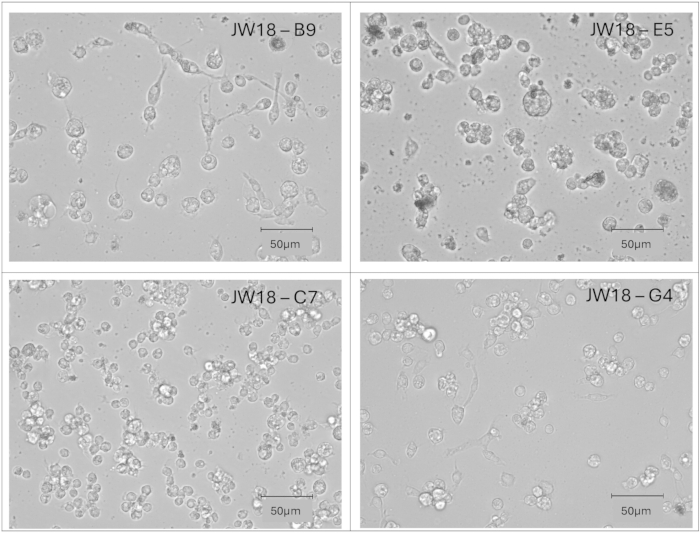
איור 3: מורפולוגיה של קווים משובטים בודדים של JW18. תמונות שדה בהירות של קווים משובטים המראים מורפולוגיות תאים במעבר 30 לאחר הקמתם. פסי קנה מידה = 50 מיקרומטר. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
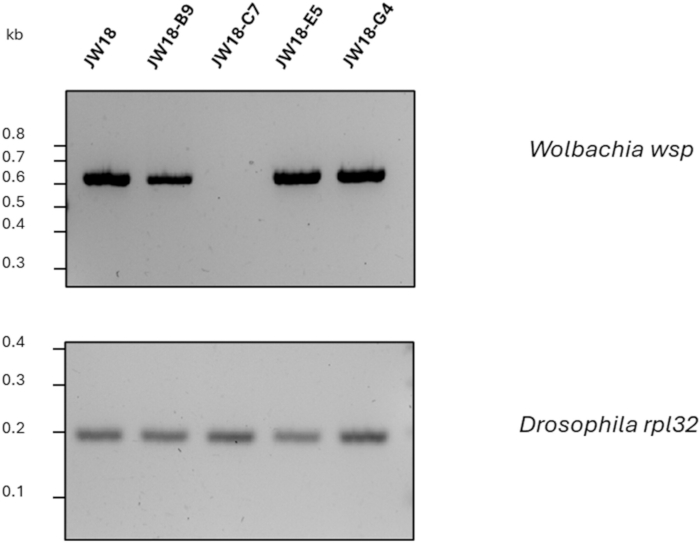
איור 4: מצב וולבכיה של תרביות משובטות שנבדקו על ידי PCR. PCR לוולבכיה בקו תאי ההורים JW18 ובקווי השיבוט JW18-B9, JW18-C7, JW18-E5 ו-JW18-G4 במעבר 11 לאחר הקמתה. להקת Wolbachiawsp מאשרת את נוכחותה של Wolbachia, בעוד שרצועת Drosophilarpl32 היא PCR בקרת איכות DNA. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
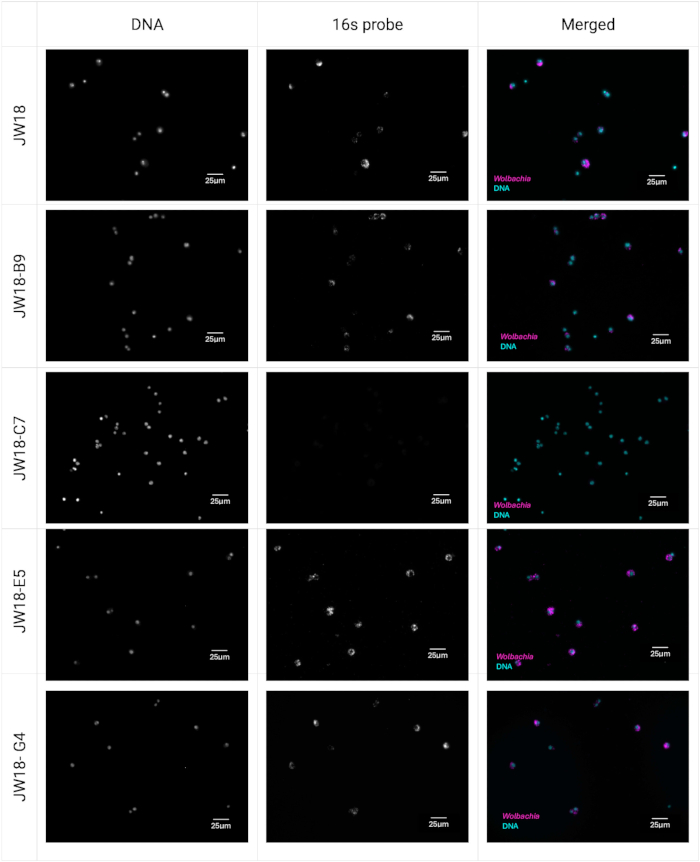
איור 5: מצב וולבכיה של תרביות משובטות שנבדקו על ידי FISH. קו תאי הורים JW18 ושיבוטים JW18-B9, JW18-C7, JW18-E5, JW18-G4 המוצגים על ידי צביעת FISH במעבר 13 לאחר הקמה. וולבכיה מוכתמת בבדיקת Quasar 670-tagged 16s rRNA Stellaris FISH בצבע מג'נטה, וחומצות גרעין מוכתמות ב-Hoechst 33342 בציאן. פסי קנה מידה = 25 מיקרומטר. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
טבלה משלימה S1: בדיקות אוליגונוקלאוטידים שתוכננו כנגד Wolbachia wMel 16S rDNA והשוואתם לבדיקות שפורסמו על ידי שניידר ואחרים.42. אנא לחץ כאן להורדת טבלה זו.
דיון
כאן אנו מתארים שיטה סטנדרטית ליצירת שיבוטים של תא בודד מקו התאים JW18 D.melanogaster, שניתן ליישם על קווי תאי דרוזופילה וחרקים אחרים. הפרוטוקול כולל דילול סדרתי של תרחיף תאים מוכן על פני צלחת של 96 בארות כדי לבודד תאים בודדים. לאחר מכן תאים אלה מודגרים בתנאים אופטימליים כדי ליצור תרביות רציפות. הפרוטוקול כולל גם תוספת של 20% מדיה מותנית לקידום הישרדות התאים וחלוקת תא בודד45,46.
שלב קריטי בפרוטוקול הוא אימות נוכחותו של תא בודד בכל באר לאחר דילול סדרתי. שלב זה דורש תשומת לב קפדנית, שכן הוא חיוני להצלחת הפרוטוקול כולו. כדי להקל על אישור עתידי של מקור התא הבודד, מומלץ לצלם תמונות של הבארות שנבחרו מזוויות שונות.
שלב מפתח נוסף כולל העברת תאים בין צלחות תרבית. כדי להבטיח הקמה מוצלחת של תרבית רציפה, יש להעביר תאים רק לאחר שהגיעו למפגש. אם צמיחת התאים עומדת על שמריה, רענון המדיה יכול לקדם צמיחה נוספת. העברה מוקדמת של תאים לפני המפגש עלולה לגרום למוות של תאים.
בעוד שפרוטוקול זה גוזל זמן רב יותר ועתיר עבודה משיטות נפוצות אחרות, כגון מיון תאים מופעל פלואורסצנטי (FACS)38,46, הוא מציע מספר יתרונות. אלה כוללים עלות-תועלת, סיכון מינימלי לנזק לתאים, ללא דרישה לסמנים פלואורסצנטיים, ציוד יקר וזמן אופטימיזציה. בסך הכל, פרוטוקול זה מתאים היטב ליצירת אוכלוסיות תאי חרקים הומוגניות מקווי תאים רציפים.
תכונות התרבויות החד-שבטיות
התוצאות שלנו מראות כי התרביות החד-שבטיות שונות מבחינת מהירות ההתבססות שלהן ומצב ההדבקה בוולבכיה (איור 2, איור 4 ואיור 5). שיבוט נטול וולבכיה JW18-C7 היה המהיר ביותר שהגיע למפגש בפרוטוקול הבידוד החד-תאי שלנו. וולבכיה יכולה הייתה תמיד להיעדר משושלת תאים זו, או שהיא עלולה לאבד עקב חוסר היכולת לעמוד בקצב החלוקה של התא המארח. זה יכול היה גם ללכת לאיבוד בגלל צפיפות התאים הנמוכה הראשונית בפרוטוקול השיבוט שלנו. עם זאת, מכיוון שזה לא קרה עבור קווי התאים המשובטים האחרים, אנו רואים בכך לא סביר. ההדבקה הניסיונית של JW18-C7 בוולבכיה (לצד שיבוטים אחרים שטופלו בטטרציקלין) יכולה לענות על השאלה האם קו זה מתירני לסימביונט.
ההטרוגניות התאית אינה ייחודית לקו התאים JW18 ודווחה בעבר עבור קווי תאים אחרים הנגועים בוולבכיה 32,47,48,49,50,51,52. ניסיון קודם לשיפורו כלל העברה של וולבכיה מביצי D. simulans או תאי Aa23 לקו תאים C7-10 A. albopictus 53. C7-10 שובט שנים רבות לפני העברות הוולבכיה 54,55, וההעברות אינן מהוות את הזיהום הטבעי שאנו מתכוונים לחקור.
להבדל בסטטוס זיהום הוולבכיה ובזמן הקמת התרבית החד-שבטית (המעיד על הבדלים בקצב חלוקת התאים) עבור שיבוטים בודדים של JW18 יכולות להיות השלכות עמוקות על מחקרים קודמים המקשרים בין טיטר וולבכיה לקצב גדילת תאי חרקים בתגובה לטיפולים ספציפיים. שינויים במספר התאים, צפיפות סימביונטית או שינויים בביטוי הגנים בעת הטיפול עשויים לנבוע מבחירה של סוגי תאים בעלי תכונות ספציפיות ולא משינויים במצב של כל התאים באוכלוסייה מעורבת. מתן טיפולים לאוכלוסיית תאים מעורבת עם שונות במאפייני מפתח עשוי להניב תוצאות מוטות ובלתי ניתנות לשחזור.
גילויים
למחברים אין ניגודי אינטרסים לחשוף.
תודות
אנו מודים לוויליאם סאליבן (אוניברסיטת קליפורניה, סנטה קרוז, ארה"ב), ללורה סרבוס (האוניברסיטה הבינלאומית של פלורידה, ארה"ב) וללואיס טיישיירה (האוניברסיטה הקתולית הפורטוגזית, ליסבון, פורטוגל) על קו התאים JW18 ועל הצעות שימושיות כיצד לעבוד איתו. אנו אסירי תודה ל-Nidhi Krishna Shrivastava (האוניברסיטה היגילונית, קרקוב, פולין) על הצעות מועילות לגבי הפרוטוקול. אנו מודים ליוליה צ'יקונובה (האוניברסיטה היגילונית, קרקוב, פולין) על הגהה של כתב היד.
איור 1 נוצר עם BioRender (Chrostek, E. (2024) https://BioRender.com/o69b306).
עבודה זו נתמכת על ידי מענק התחלתי של ERC (מזהה הסכם מענק: 101040311) המוענק ל-EC ומלגת דוקטורט מבית הספר לדוקטורט למדעים מדויקים ומדעי הטבע (אוניברסיטת Jagiellonian) המוענקת ל-NF. עם זאת, ההשקפות והדעות המובעות הן של המחברים בלבד ואינן משקפות בהכרח את אלה של האיחוד האירופי או הסוכנות המבצעת של מועצת המחקר האירופית. לא האיחוד האירופי ולא הרשות המעניקה לא יכולים לשאת באחריות להם.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.22 ומיקרו; מזרק M ליטר | TPP | 99722 | עקר |
| 10x תמיסת מלח חוצצת פוספט (PBS) | תרמו-פישר סיינטיפיק | 70011044 | עקר |
| כיסוי עגול 12 או 18 מ"מזכוכית | כל מותג | ||
| צינורות פלקון 15 מ"ל | ג'נופלסט | 601052 | עקר |
| צלחת 24 בארות | ציטו אחד | CC7682-7524 | תרבית רקמות מטופלת |
| 5 ומיקרו; מסנן מזרק M | ווטמן | 10462000 | עקר |
| צלחת 6 בארות | ציטו אחד | CC7682-7506 | תרבית רקמות מטופלת |
| צלחת 96 בארות | ציטו אחד | CC7682-7596 | תרבית רקמות מטופלת |
| אגרוז | תרמו-פישר סיינטיפיק | J66501.30 | |
| בקבוק תרבית תאים, 25 ס"מ2 | גריינר ביו-וואן | 391-3103 | עקר |
| מגרדי תאים | גריינר ביו-וואן | 391-3010 | עקר |
| לק שקוף | כל מותג | ||
| בקבוקוני CryoPure | סרשטדט | 72.379 | עקר |
| DMSO, דרגת תרבית תאים | מרק | D2650-100 מ"ל | עקר |
| DreamTaq PCR מאסטר מיקס | תרמו-פישר סיינטיפיק | K1081 | |
| EDTA | מרק | ברקוד 324503-100GM | עקר |
| ספק כוח אלקטרופורזה | מרק | ת.ב. 251-2 | |
| אפנדורף רכז פלוס | מרק | EP5305000509 | ניתן להשתמש ברכז ואקום של כל מותג במקום. |
| אתנול | מרק | 1009861000 | |
| מערכת הדמיה EVOS M5000 | תרמו-פישר סיינטיפיק | AMF5000 | ניתן להשתמש במיקרוסקופ הפוך של כל מותג כדי לעקוב אחר התקדמות השיבוט. נדרש מיקרוסקופ פלואורסצנטי כדי להמחיש FISH. |
| סרום בקר עוברי | מרק | F9665 | מנוטרל בחום |
| פורמלדהיד | תרמו-פישר סיינטיפיק | 047377.9 ליטר | |
| פורממיד | מרק | F7503-100 מ"ל | |
| מיכלי אלקטרופורזה ג'ל | קליבר סיינטיפיק | MSMIDI | |
| ג'ל אימג'ר | ביוראד | 12009077 | מערכת הדמיית ג'ל GelDoc Go |
| GeneRuler 100 bp סולם DNA | תרמו-פישר סיינטיפיק | SM0243 | |
| בלוק חימום | תרמו-פישר סיינטיפיק | 88870005 | |
| Herasafe 2025 Class II ארון בטיחות ביולוגי | תרמו-פישר סיינטיפיק | 51033314 | ניתן להשתמש בארון בטיחות ביולוגי של כל מותג כל עוד הוא שומר על סביבה סטרילית בפנים. |
| תמיסת Hoechst 33342 (20 מ"מ) 5 מ"ל | תרמו-פישר סיינטיפיק | 62249 | אחסן בחושך. |
| חומצה הידרוכלורית | מרק | 258148-2.5 ליטר | |
| אינטגרה ביוסיינסס קורפ PIPETBOY acu 2 סיוע לפיפט | פישר סיינטיפיק | NC0085686 | ניתן להשתמש בבקרת פיפטה סרולוגית של כל מותג. |
| איזופרופנול | מרק | I9516-1L | |
| מקפיא מעבדה | ליבהר | LGUex 1500 מדיליין | כל מקפיא המסוגל לשמור על טמפרטורה קבועה מתאים. |
| מיכל חנקן נוזלי | תרמו-פישר סיינטיפיק | CY50985 | |
| שקופיות מיקרוסקופ | מרק | CLS294875X25-72EA | |
| מים בדרגה מולקולרית | |||
| פיפטה רב ערוצית | אפנדורף | 3125000036 | |
| ננו-דרופ | פקלאב | ND-1000 | |
| נויבאואר המוציטומטר | מרק | BR717810-1EA | |
| פרפילם סרט איטום M | מרק | HS234526B-1EA | |
| אינקובטור מקורר פלטייר | ממרט | IPP55plus | יש חממה שמסוגלת לשמור על 25 קבוע? C מתאים. אין צורך בבקרת CO2 עבור קו התאים JW18 או השיבוטים שלו. |
| פנול/כלורופורם/איזואמיל אלכוהול (25:24:1) | תרמו-פישר סיינטיפיק | 327115000 | |
| סט פיפטות | אפנדורף | EP2231300008 | |
| אשלגן אצטט | מרק | P1190-500 גרם | עקר |
| קוואזר 670-tagged 16s rRNA FISH בדיקה הצית | טכנולוגיות Biosearch | בהתאמה אישית, ניתן למצוא רצפים של הבדיקות בטבלה 1. | |
| מיקרו-צנטריפוגה בקירור | לבנט | C2500-R | |
| rpl32 פריימר קדימה 5'-CCGCTTCAAGGGACAGTATC-3' | גנומיקה של Eurofins | בהתאמה אישית על סמך ההפניה המצוטטת במאמר | |
| rpl32 פריימר הפוך 5'-CAATCTCCTTGCGCTTCTTG-3' | גנומיקה של Eurofins | בהתאמה אישית על סמך ההפניה המצוטטת במאמר | |
| SDS | תרמו-פישר סיינטיפיק | AM9823 | עקר |
| פיפטות סרולוגיות | קורנינג | 357771 | |
| שילדס וסאנג M3 מדיום חרקים | מרק | S8398 | עקר |
| מאגר היברידיזציה של Stellaris RNA FISH | טכנולוגיות Biosearch | SMF-HB1-10 | עקר |
| Stellaris RNA FISH Wash Buffer A | טכנולוגיות Biosearch | SMF-WA1-60 | עקר |
| Stellaris RNA FISH Wash Buffer B | טכנולוגיות Biosearch | SMF-WB1-20 | עקר |
| מאגרי ריאגנטים סטריליים | תרמו-פישר סיינטיפיק | 8094 | עקר |
| מאגר TAE | מרק | 1061741000 | 1x |
| מאגר TE | מרק | 93283 | עקר |
| מחזור תרמי | סינג'ן ביוטק | תרמובלוק 96 | ניתן להשתמש במקום זאת במחזור תרמי של כל מותג. |
| בסיס טריס | מרק | 10708976001 | עקר |
| מקפיא בטמפרטורה נמוכה במיוחד | תאגיד PHC | MDF-DU502VH-PE | יש מקפיא מעבדה שמסוגל לשמור על -80? ניתן להשתמש ב-C. |
| Vectashield הרכבה בינונית | מעבדות וקטור | H-1000-10 | |
| WSP פריימר פורוורד 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | גנומיקה של Eurofins | בהתאמה אישית על סמך ההפניה המצוטטת במאמר | |
| wsp פריימר הפוך 5'-AAAAATTAAACGCTACTCCA-3' | גנומיקה של Eurofins | בהתאמה אישית על סמך ההפניה המצוטטת במאמר |
מקורות
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
הדפסות חוזרות והרשאות
