מאמר זה מציג מודל תרבית משותפת של תאי תקה וגרנולוזה בקר. לשיטה זו יש פוטנציאל לשמש בסיס אמין לניתוחים המתמקדים בחקר תקשורת פרקרינית והובלת מצע בין התאים הסומטיים בתוך הזקיק.
מאמר שיטה
מערכת קו-תרבית מותאמת להבנת אינטראקציות בין תאי גרנולוזה-תקה בשחלת הבקר
במאמר זה
סיכום
תקציר
לתרבית משותפת אמינה של תאי גרנולוזה (GCs) ותקה (TCs) יש פוטנציאל להקל על הבנה מקיפה יותר של האינטראקציות, מסלולי האיתות וחילופי הסובסטרט בין שני תאי התאים בזקיק השחלות של הבקר. תוך שימוש בתוספות תרבית תאים זמינות מסחרית, הוקם מודל תרבית משותפת הניתן לשחזור של GCs ו-TCs של בקר. נצפה כי תאי תקה וגרנולוזה ראשוניים דורשים זמן רב יותר להיצמד לקרום ההכנסה בהשוואה לשורות התאים. בתחילה, ה-TCs נזרעו על קרום ההכנסה ההפוך, כאשר צינור קטום שימש כמיכל חיסון למניעת דליפה בינונית. לאחר תקופת דגירה של 72 שעות, התוספת התהפכה, מה שאפשר לתרבית את ה-GCs בצד הנגדי של הממברנה. תרבית משותפת זו הייתה נתונה לאחר מכן ל-6 ימי דגירה נוספים ב-37 מעלות צלזיוס ו-5% CO2, עם החלפת מדיה כל יומיים. הביטוי של גנים סמנים הצביע על דפוסים ספציפיים לסוג התא, כאשר CYP17A1 היו בשפע מאוד ב-TCs ולא באו לידי ביטוי ב-GCs. לעומת זאת, CYP19A1 הראו רמות גבוהות ב-GCs ורק רמות נמוכות ב-TCs. ניתוח ההורמונים תמך בנוכחות מערכת תרבית משותפת פיזיולוגית, כפי שמעידה הסינתזה של אסטרדיול. מודל קו-תרבית מותאם זה תומך במחקרים הניתנים לשחזור של איתות פרקריני והובלת מצע בין התאים הסומטיים של הזקיק.
מבוא
במהלך הזקיקים, עלייה בהורמון הלוטניזציה (LH) מעוררת מפל של שינויים פיזיולוגיים בשחלה, מה שמוביל בסופו של דבר לשחרור ביצית בוגרת במהלך הביוץ 1,2. תהליך זה מווסת היטב על ידי התאים הסומטיים הזקיקים, המספקים תמיכה חיונית להבשלת הביציות ומבטיחים תפקוד ביוץ תקין3. הזקיק מורכב משני סוגים של תאים סומטיים סטרואידוגניים, שכבה פנימית של תאי גרנולוזה (GCs) ושכבה חיצונית של תאי תאקה (TCs). בין אלה, GCs עוברים את השינויים המורפולוגיים והתפקודיים הבולטים ביותר בעקבות גל ה-LH, מה שמדגיש את תפקידם הקריטי בתזמור השלבים האחרונים של התפתחות הזקיקים4. כתוצאה מכך, GCs הם בעלי עניין רב בניתוח גורמים שעשויים להשפיע על זקיקים, ביוץ ולוטאין.
מודל תרבית תאים של GCs בקר המחקה סטטוס אסטרדיול-אקטיבי הוקם בעבר 5,6,7,8,9,10,11. מודל תרבית נטול סרום זה מאפשר ניתוח אמין של פיזיולוגיה של GC וניתוחי אפקטורים אפשריים במסלולי איתות, ויסות גנים וסינתזת הורמונים 12,13,14. עם זאת, מבנה הזקיק מורכב בהרבה, כפי שמודגש על ידי השערת 2 תאים-2-גונדוטרופין15. זה מדגיש את התלות והאופי המקושר של סוגי התאים בהקשר של סינתזת סטרואידים הממודרת בין שתי השכבות.
מספר מחקרים תיארו מודלים של תרבית TC הדומים למערכות מונו-תרבות GC שהוקמו בעבר 16,17,18. עם זאת, דווח על מערכת תרבית משותפת של תאי תקה חזיר ותאי גרנולוזה, שבה שתי אוכלוסיות התאים מגודלות בצלחת אחת ביחס של 4:1 של GCs ל-TCs 19,20,21. במודל זה, ניתן להראות כי קיימת מערכת פונקציונלית ואינטראקציה בין תאי גרנולוזה ותקה, החושפת כמות גבוהה יותר של אסטרדיול במערכת התרבות המשותפת מאשר בתרבית המונו-תרבית. עם זאת, יש לציין כי מודל זה אינו מסוגל לנתח כראוי את האינטראקציה וחילופי המצע בין תאי גרנולוזה ותקה, מכיוון ששני סוגי התאים עשויים להיות מושפעים באופן שונה. לכן, ניתוח הרמות המולקולריות של GCs ו-TCs ללא תלות זה בזה כמעט ולא אפשרי ללא הליך מיון מורכב, שבעצמו עשוי להשפיע על הפיזיולוגיה של התא. יתר על כן, חשוב לקחת בחשבון שמודל זה עשוי שלא לשכפל במדויק את המצב לפני נחשול ה-LH, כאשר GCs ו-TCs מופרדים על ידי קרום בסיס3. בבקר הוצעה מערכת תרבית תאים מבוססת ממברנה, שבה שני סוגי התאים מעובדים משני צידי קרום קולגן, ובכך משקפים את המצב in vivo בצורה מדויקת יותר 22,23,24,25,26.
תוך התאמת הרעיון הראשוני של מערכת מבוססת ממברנה, שיטה זו נועדה להקים מודל תרבית משותפת עבור GCs ו-TCs של בקר עם תוספות תרבית תאים כדי לאפשר מחקרים עתידיים של איתות פרקריני בין שני תאי התא. השיטה המוצגת משתמשת בתוספות תרבית תאים תלויות זמינות מסחרית במקום מערכת ממברנה מבוססת מותאמת אישית, ומציעה יתרונות כגון יכולת שחזור גבוהה יותר, איכות סטנדרטית ויציבות מוצר משופרת. גישה זו מבטיחה עקביות בין ניסויים, מה שהופך אותה לכלי רב ערך עבור חוקרים החוקרים אינטראקציות בין תאים זקיקים. הליך התרבית כולל זריעה ראשונית של 1.7-1.8 x 10⁵ תאי תקה בצד התחתון של התוספת, ואחריו כ-1.0 x 10⁵ תאי גרנולוזה על המשטח העליון לאחר היפוך ו-72 שעות לפני הדגירה. התרביות נשמרות במדיום מוגדר בתנאים סטנדרטיים (37 מעלות צלזיוס, 5%CO2) עם החלפת מדיה אחת ליומיים. כדי לאפשר חילופי פרקרין בין תאים, נעשה שימוש בתוספות תרבית תאים של 0.4 מיקרומטר העשויות מפוליאסטר, כגון פוליאתילן טרפתלט (PET), (זמין מסחרית). ממברנות בגודל נקבוביות זה מאפשרות דיפוזיה של מקרומולקולות מסיסות, כגון הורמונים, גורמי גדילה וחלבונים, תוך מניעת נדידת תאים27,28.
על ידי מתן אפשרות להפרדה מרחבית תוך שמירה על תקשורת פרקרינית, מערכת קו-תרבית זו מספקת סביבה רלוונטית מבחינה פיזיולוגית לחקירת אינטראקציות בין תאי גרנולוזה-תקה, מסלולי איתות וחילופי מצע. המודל מתאים במיוחד למחקרים הדורשים תנאים מבוקרים, כגון ויסות הורמונים, ניתוח ביטוי גנים או בדיקת תרופות. חוקרים המתעניינים בדינמיקה זקיקית, פיזיולוגיה של הרבייה או הפרעות בשחלות עשויים למצוא שיטה זו ישימה למחקריהם. בנוסף, השימוש בתוספות סטנדרטיות מאפשר התאמה קלה לצרכי ניסוי שונים, כולל שינויים במשך התרבית, סוגי התאים או תנאי הטיפול.
פרוטוקול
שחלות בקר הושגו מבית מטבחיים מסחרי מקומי. במערך ניסיוני זה, הכנת השחלות מתבצעת תוך שעתיים לאחר הקבלה. איסוף תוצרי לוואי של משחטות אינו דורש אישור אתי על פי החוק הגרמני.
הערה: הבידוד והשימור בהקפאה של GCs בקר כבר תואר והוצג בדוח שיטה קודם6 וניתן לבצע אותו בהתאם.
1. הכנת ריאגנטים והגדרה לדיסקציה של זקיקי השחלות
- יש להכין 1x PBS (pH 7.4) בתוספת 100 יחב"ל פניצילין, 0.1 מ"ג/מ"ל סטרפטומיצין ו-0.5 מיקרוגרם/מ"ל אמפוטריצין להובלת שחלות. ניתן לאחסן את התמיסה בטמפרטורה של 4 מעלות צלזיוס עד 4 שבועות.
- הכן את תמיסת העיכול המכילה 10x מאגר המלח של הנקס בתוספת 25 מ"מ HEPES, 100 IU פניצילין, 0.1 מ"ג/מ"ל סטרפטומיצין ו-0.5 מיקרוגרם/מ"ל אמפוטריצין. ניתן לאחסן את תמיסת העיכול בטמפרטורה של 4 מעלות צלזיוס למשך 2-3 שבועות.
- מלאו 1 מ"ל של תמיסת עיכול בצינורות של 1.5 מ"ל עבור כל זקיק מנותח מתוכנן וחממו מראש את התמיסה ל-37 מעלות צלזיוס.
- הוסף 10 מיקרוליטר קולגנאז NB8 כדי להשיג ריכוז של 0.1% מתמיסת העיכול זמן קצר לפני ההכנה.
- הכן את הכלים הבאים להכנה, בידוד והליכי כביסה.
- כלי זכוכית בקוטר מינימלי של 3 ס"מ להנחת השחלות לדיסקציה.
- צלחת 6 בארות עם 1 מ"ל 1x PBS (בתוספת אנטיביוטיקה) לשטיפה.
- מנה בת 12 בארות עם כ -10 מיקרוליטר תמיסת עיכול.
- לשימור בהקפאה, הכינו תמיסת הקפאה המורכבת מ-80% סרום עגל עוברי (FCS) ו-20% DMSO.
הערה: הריכוז הסופי של DMSO לשימור בהקפאה יהיה 10%.
2. דיסקציה של זקיקים עם עיכול לאחר מכן של תאי תאקה בקר
- בצע את הליכי עיכול התאים כמו גם את עבודת תרבית התאים מתחת לספסל זרימה למינרית.
- שטפו את השחלות 2-3x ב-1x PBS (בתוספת אנטיביוטיקה, ראה שלב 1.1) כדי להסיר דם ושאריות אחרות מהשטח. מניחים את השחלות בכוס, ממלאים אותה ב-1x PBS כך שהשחלות מכוסות, וזורקים את התמיסה לאחר מכן. חזור על שלב זה 3-4 פעמים עד שהשחלות נקיות.
- מניחים שחלה אחת בכלי זכוכית ובוחרים זקיקים של 5-11 מ"מ, נמדדים בעזרת סרגל, לדיסקציה.
- שאפו את הנוזל הזקיקי עם מזרק של 3 מ"ל ומחט של 18 גרם על ידי ניקוב זקיק אחד שנבחר. השליכו את הנוזל הזקיקי.
- חותכים את הזקיק במספריים, החל מהנקודה בה הוכנסה המחט במהלך השאיפה. השתמש בזוג משקפות לחיתוך מדויק.
- השתמש בפינצטה בקצה החיתוך של הזקיק כדי לתפוס את השכבה הפנימית ביותר, ה-theca interna.
- נסה לקלף את ה-theca interna מהצד הפנימי של דופן הזקיק הפתוח.
הערה: בהתאם לגיל או לשלב של הזקיק, ניתן לקלף את שכבת תאי ה-theca ביתר קלות, וכתוצאה מכך שכבת theca שלמה.
- מניחים את שכבת תאי ה-theca בכלי מלא ב-1x PBS (בתוספת אנטיביוטיקה, ראה שלב 1.1.) כדי להסיר את תאי הגרנולוזה הנותרים.
- מגרדים בעדינות את תאי הגרנולוזה מהצד הפנימי של הממברנה בעזרת אזמל. התאים צריכים להתנתק בקלות באשכולות גדולים.
- מניחים את שכבת תאי ה-theca בכלי חדש מלא ב-1x PBS כדי לשטוף אותה.
- שטפו בזהירות את הממברנה על ידי סיבוב ה-PBS הטרי 1x כדי להסיר תאים רופפים.
הערה: מהשלב הבא ואילך, עבדו מתחת לתיבת הזרימה הלמינרית.
- העבירו את ה-theca interna לתמיסת העיכול המוכנה של צלחת 12 הבארות (ראו שלב 1.2 ו-1.3.3) וחתכו אותה לחתיכות קטנות, ככל הנראה 1-3 מ"מ, בעזרת אזמל.
הערה: מומלץ לעכל תאי theca מזקיקים שונים באופן עצמאי כדי למנוע סתימת רקמות ממקורות שונים. - העבירו את קטעי ה-theca לצינור תגובה מוכן של 1.5 מ"ל (ראה שלב 1.2.1 ו-1.2.2). דגרו את התקה באינקובטור מנער תרמוס ב-800 סל"ד ב-37 מעלות צלזיוס למשך 45-50 דקות.
- לאחר טלטול במשך 30 דקות, התחל מערבולת של צינורות התגובה למשך 3-5 שניות והחזר אותם לאינקובטור הרועד.
- חזור על שלב זה 3-4 פעמים בזמן הדגירה שנותר.
- לאחר הדגירה, השעו מחדש את התאים המעוכלים בעזרת פיפטה.
- הסר את הרקמה הלא מעוכלת על ידי סינון עם מסננת התאים של 100 מיקרומטר המונחת על צינור של 50 מ"ל, והמשך מיד בספירה ושימור בהקפאה של התאים כדי להסיר את אמצעי העיכול.
3. ספירה ושימור בהקפאה של TCs
- כדי לספור את מספר התאים הקיימאים, הכינו צינור עם 1.5 מיקרוליטר של תמיסה כחולה של 0.25%. תאים חיים יישארו לא מוכתמים, בעוד שתאים מתים נראים כחולים בגלל הגישה של טריפן כחול דרך מחסומי תאים שבורים.
- מוסיפים 15 מיקרוליטר מתרחיף התאים המעוכלים לתמיסה הכחולה של הטריפן ומערבבים בעדינות.
- מניחים 10 מיקרוליטר מהתערובת בשני החדרים של המוציטומטר. ספרו את מספר התאים החיים (= חסרי צבע) בריבוע אחד גדול לכל תא.
- קבע את מספר התאים החיים עם הממוצע של שני ריבועי התא בהתאם להנחיות הסטנדרטיות. שימו לב ששיעור התאים החיים עשוי להיות שונה בין השחלות.
- הקפיאו חלקים לא מעוכלים של תרחיף תאי ה-theca (ראה שלב 2.9) להשוואה מכוונת כבקרה לא מתורבתת וכדי לבצע הערכה של זיהום צולב פוטנציאלי עם GCs (כפי שמוצג באיור 2).
- העבירו את הרקמה הלא מעוכלת של כל theca interna מנותח שנותרה במסננת התאים של 100 מיקרומטר (ראו שלב 2.10) לתוך צינור מסומן.
- הקפיא את הצינור בחנקן נוזלי לפני האחסון בטמפרטורה של -80 מעלות צלזיוס.
- לבצע שימור בהקפאה של תאי התאקה המבודדים על מנת להקל על תכנון משופר של תרביות תאים, תוך התייחסות מיוחדת למספר התאים הנדרשים.
- צנטריפוגה את תרחיף התא המעוכל ב-500 x גרם למשך 5 דקות בטמפרטורת החדר (בממוצע 20 מעלות צלזיוס). השליכו את הסופרנטנט.
- ממיסים בזהירות את גלולת התא ב-1 מ"ל של 100% FCS. הוסף 1 מ"ל של אמצעי הקפאה (ראה שלב 1.4) לתמיסת התא. הריכוז הסופי של DMSO לשימור בהקפאה הוא 10%. העבירו את התערובת לבקבוקוני קריו של 2 מ"ל שצוינו.
- הנח את הבקבוקונים במכשיר קירור לירידה מבוקרת בטמפרטורה. במערך זה נעשה שימוש במיכל הקפאה ספציפי, המבטיח קצב הקפאה של -1 מעלות צלזיוס לדקה כאשר הוא מונח לפחות 4 שעות ב-80 מעלות צלזיוס. לאחר מכן, ניתן לאחסן את הבקבוקונים במערכות אחסון חנקן נוזלי.
4. תכשירים לעבודת תרבית תאים
- חותכים את המכסה מצינור תגובה של 1.5 מ"ל. לאחר מכן, חותכים את צינור התגובה כ -1 ס"מ מהפתח בעזרת אזמל (רצוי מחומם) או חותך צינור מתאים. לאחר מכן, חיטוי הצינורות והמכסים החתוכים. המכסים עשויים להידרש להליכים הבאים של תרבית התאים (ראה שלב 5.5).
הערה: ודא שהצינורות בנפח 1.5 מ"ל מתאימים היטב לתוספת שנבחרה. - הקפד לצפות את התוספות ב-0.02% קולגן R לחיבור של GC ו-TC בתרבית.
הערה: בצע את הליך הציפוי מתחת למכסה זרימה למינרי סטרילי.- השתמש במים מטוהרים (המתאימים לתרבית תאים) להכנת תמיסת קולגן R של 0.02%. הכן 80 מיקרוליטר של תמיסה זו עבור כל תוספת תרבית תאים נדרשת.
- הניחו את התוספת הפוכה במכסה של צלחת 24 בארות. הוסיפו בעדינות 40 מיקרוליטר של תמיסת קולגן R לקרום התוספת, וודאו שהיא תישאר במקומה. יש להשאיר את תמיסת הקולגן R לייבוש למשך 4-5 שעות מתחת לקולט האדים הלמינארי.
- סובב את התוספת ותלה אותה בבארות של צלחת 24 הבארות כדי לצפות את הצד השני שוב ב-40 מיקרוליטר של תמיסת קולגן R. תן לתמיסה להתייבש שוב למשך 4-5 שעות.
- הקרינו את התוספות באור UV למשך 10-15 דקות כדי להפחית את הזיהום.
- יש לאחסן את התוספות בתוך צלחת 24 בארות (רצוי בשקית המשלוח הסטרילית) ובמקרר בטמפרטורה של 4 מעלות צלזיוס וניתן להשתמש בהן עד 4 שבועות.
- הכן את המדיה 8,10 באופן הבא:
הערה: בצע את הליך הכנת המדיה מתחת למכסה זרימה למינרי סטרילי.- הוסיפו למדיום החיוני α-מינימום (α-MEM) 2 מ"מ L-גלוטמין, 0.084% נתרן ביקרבונט, 0.1% BSA, 20 מ"מ HEPES, 4 ננוגרם/מ"ל נתרן סלניט, 5 מיקרוגרם/מ"ל טרנספרין, 10 ננוגרם/מ"ל אינסולין ו-1 מ"מ חומצות אמינו לא חיוניות.
הערה: כדי להבטיח עקביות, מומלץ להכין מראש מספיק מדיום לכל הניסוי. ניתן לאחסן את המדיום המוכן בטמפרטורה של 4 מעלות צלזיוס. עבור ההגדרה המתוארת, השתמש היטב ב-750 מיקרוליטר לתרבית תאים. - יתר על כן, הוסף 100 IU פניצילין, 0.1 מ"ג/מ"ל סטרפטומיצין ו-0.5 מיקרוגרם/מ"ל אמפוטריצין למדיה המוכנה.
- מחממים מראש את המדיה ב-37 מעלות צלזיוס באמבט מים.
הערה: לאחר התחממות מוקדמת של המדיה, האנטיביוטיקה יציבה למשך כ-48 שעות. לכן, יש לציין רק את כמות המדיה הרצויה להתחממות. - בנוסף, יש להשלים את ה-α-MEM עם 20 ננוגרם/מ"ל של הורמון מגרה זקיק (FSH), 50 ננוגרם/מ"ל של R3 IGF-1 ו-2 מיקרומטר אנדרוסטנדיון לסביבת תאים פיזיולוגית 7,8,10,11.
הערה: הוסף רכיבים אלה זמן קצר לפני תחילת חילופי התרבות או המדיה. על מנת למנוע פעילות שנפגעה, הכרחי להימנע ממחזורי הקפאה-הפשרה חוזרים ונשנים של פתרונות המניות FSH ו-IGF-1.
- הוסיפו למדיום החיוני α-מינימום (α-MEM) 2 מ"מ L-גלוטמין, 0.084% נתרן ביקרבונט, 0.1% BSA, 20 מ"מ HEPES, 4 ננוגרם/מ"ל נתרן סלניט, 5 מיקרוגרם/מ"ל טרנספרין, 10 ננוגרם/מ"ל אינסולין ו-1 מ"מ חומצות אמינו לא חיוניות.
5. תרבות משותפת של TCs ו-GCs
- הכינו את תא החיסון לתרבית של תאי theca (איור 1A).
- הנח את התוספת המצופה הפוכה לצלחת גדולה יותר (למשל, צלחת 12 בארות).
- הנח את הצינור החתוך והחיטוי על תוספת הפוכה (ראה שלב 4.1). ודא שהצינור יושב היטב על התוסף כדי למנוע דליפת מדיה.
- הפשירו את תאי ה-theca המשומרים בהקפאה במהירות באמבט מים של 37 מעלות צלזיוס למשך 3-5 דקות והעבירו את תרחיף התא מיד לאחר ההפשרה למדיה המחוממת מראש.
- צנטריפוגה את תרחיף תאי ה-theca ב-500 x גרם למשך 3 דקות בטמפרטורת החדר (בממוצע 20 מעלות צלזיוס) והשליכו את הסופרנטנט. הוסף את התוספת α-MEM והשהה בזהירות את התאים.
- זרע 1.7-1.8 x 10⁵ תאים לכל תוספת בתא החיסון בנפח סופי של 200 מיקרוליטר מדיה. כלול לפחות שלושה שכפולים טכניים לכל תנאי.
- כדי לסגור את צלחת תרבית התאים עם מכסה, ייתכן שיהיה צורך להגדיל את המרחק בין הכלי למכסה בעת השימוש בתא החיסון.
- השתמש במכסים החתוכים והחיטוי מצינורות התגובה של 1.5 מ"ל (ראה שלב 4.1) והנח אותם בכל פינה של לוחות תרבית התאים. הכובעים ישמשו כתומכים להרמת מכסה הצלחת מעט, ויספקו מספיק מקום לתא החיסון תוך כיסוי נאות של צלחת התרבית.
- סגור את צלחת הבאר בזהירות, וודא שהיא נשארת יציבה ואינה נוגעת בקרום או בתא.
- העבירו בעדינות את הצלחת לחממת תרבית תאים לחה.
- דגרו את תאי התקה למשך 3 ימים בטמפרטורה של 37 מעלות צלזיוס עם 5% CO2 כדי לאפשר חיבור תאים על הממברנה.
- סובב את התוספת לאחר 3 ימי תרבית כדי להתכונן לזריעה עם GCs (איור 1B).
- מכינים צלחת של 24 בארות וממלאים ב-500 מיקרוליטר מדיה בכל אחת מהבארות הרצויות.
- בעזרת פיפטה, הסר את כל המדיה מתא החיסון. הסר בזהירות את תא החיסון מהתוספת בעזרת פינצטה.
- הנח את התוספת עם תאי ה-theca המחוברים לתוך הצלחת המוכנה של 24 בארות, וודא שה-TCs פונים כלפי מטה (ראה איור 1B לפרטים נוספים).
- כדי לזרוע תאי גרנולוזה משימור קריו, בצע את שלבים 5.2 ו- 5.3.
- זרע כ-1.0 x 10⁵ תאים לכל תוספת בנפח סופי של 250 מיקרוליטר של מדיה המונחת בתוך התוספת.
- לאחר מכן, דגרו את התרבות המשותפת ב-37 מעלות צלזיוס עם 5% CO2 למשך שישה ימים נוספים.
- בצע חילופי מדיה כל 48 שעות לאחר זריעת GC כאשר רק שני שלישים מאמצעי התרבות מוחלפים. זה אמור להפחית את הלחץ של ההליך ולעזור להסתגל למדיה החדשה שנוספה.
6. ניתוח עוקב של תאי תקה וגרנולוזה מתורבתים
- בצע הערכה מורפולוגית של תאי theca וגרנולוזה בכל תרבית התאים עם מיקרוסקופ ניגודיות פאזה כדי לנטר את ההתקשרות וההתפשטות של שני סוגי התאים (ראה איור 3).
- לניתוח הורמון הסטרואידים יש לאסוף את המדיה ולהקפיא בטמפרטורה של -20 מעלות צלזיוס. השתמש בשיטה מתאימה כדי לנתח את ריכוזי ההורמונים הסטרואידים הרצויים (למשל, בזרימת עבודה זו, אסטרדיול נותח באמצעות RIA 5,29).
הערה: ניתוח הורמון סטרואידים עוזר להעריך את המצב הפיזיולוגי של התרבית7. - כדי לנתח את ביטוי הגנים, ראשית יש לבודד את ה-RNA בטכניקה מתאימה (למשל נהלי ערכה).
הערה: שים לב שבמהלך הליך הבידוד, שני סוגי התאים מוכנים באופן עצמאי זה מזה.- נתק את התאים משני צידי הממברנה עם מגיב מתאים (למשל, טריפסין או אקוטאז). הנח את מדיום הדיסוציאציה הן בתוספת (למשל, 200 מיקרוליטר אקוטאז) והן בבארות הצלחת (למשל, 500 מיקרוליטר אקוטאז) כך שהממברנה תהיה מוקפת לחלוטין במדיום הדיסוציאציה.
- אסוף את תאי הגרנולוזה מהתוספת, ואילו את תאי ה-theca המנותקים ניתן לאסוף מהבאר. העבירו כל סוג תא לצינור של 1.5 מ"ל.
- צנטריפוגה של התאים ב-500 x גרם למשך 3 דקות והשליכו את הסופרנטנט.
- ליז את התאים, לבצע בידוד RNA ולאחר מכן למדוד את ריכוז ה-RNA.
הערה: ניתן להפסיק את הפרוטוקול לאחר ליזה של תאים עבור רוב הליכי הבידוד, כך שניתן לאחסן דגימות בטמפרטורה של -20 מעלות צלזיוס לטווח קצר. לאחסון ארוך יותר, ניתן לאחסן את התאים הליזים בטמפרטורה של -80 מעלות צלזיוס. - לאחר מכן, סנתז cDNA כדי למדוד את שפע התעתיקים המעניינים על ידי qPCR. סינתזת ה-cDNA משתמשת ב-100 ננוגרם של RNA עם הקסמר אקראי ופריימרים אוליגו-dT. עבור qPCR, נעשה שימוש בפריימרים ספציפיים לגן כפי שתואר קודם לכן 5,30. בקצרה, תנאי המחזור היו כדלקמן: דגירה מוקדמת ב-95 מעלות צלזיוס למשך 5 דקות, דנטורציה של 40 מחזורים ב-95 מעלות צלזיוס למשך 20 שניות, חישול ב-60 מעלות צלזיוס למשך 15 שניות, הארכה ב-72 מעלות צלזיוס למשך 15 שניות, ורכישת פלואורסצנט חד-נקודתית למשך 10 שניות. תקן חיצוני של חמישה ריכוזים שונים (5x10-12- 5x10-16 גרם DNA/תגובה) הוגבר במשותף. לצורך נורמליזציה של שפע התעתיקים, חושב הממוצע הגיאומטרי של RPLP0 ו-TBP.
- כדי למנוע זיהום צולב פוטנציאלי, העריכו את הטוהר של תכשירי תאי theca וגרנולוזה על ידי ניתוח ביטוי הגנים של הסמנים הספציפיים לתא CYP17A1 CYP19A1 מתכשירי התאים המבודדים הטריים של TCs ו-GCs (איור 2).
הערה: הערכה סטטיסטית צריכה לכלול לפחות שלושה שכפולים של תרביות תאים שונות. במערך ניסיוני זה, בוצע מבחן t או ANOVA חד כיווני לאחר בדיקת נורמליות ושונות.
תוצאות
למרות ש-TCs ו-GCs בודדו באמצעות טכניקות הפרדה מכניות מבוססות היטב המבוססות על מידור זקיקים, הביטוי של גנים ספציפיים לסוג התא CYP17A1 ו-CYP19A1 הוערך כדי למנוע את הסיכון לזיהום צולב. CYP17A1 התבטא אך ורק ב-TCs שבודדו טריים, בעוד CYP19A1 התבטא בעיקר ב-GCs שבודדו טריים (איור 2).
מערכת התרבות המשותפת מאפשרת מידור של תאי תקה בקר וגרנולוזה בצדדים מנוגדים של הכנסת ממברנה, ובכך מחקה את הארגון המרחבי in vivo. אחרי שלושה ימים בתרבית, ה-TCs הראו מורפולוגיה שטוחה ומוארכת כשהם התפשטו על פני השטח של קרום ההכנסה המצופה בקולגן, מה שמעיד על חיבור מוצלח (איור 3A). כאשר הם תורבו לבד במשך כל תקופת 9 הימים, TCs המשיכו להתרבות והגיעו למפגש עד היום התשיעי (איור 3B). לעומת זאת, GCs שגודלו לבד במשך 6 ימים על קרום ההכנסה המצופה בקולגן פיתחו פנוטיפ דמוי פיברובלסטים, האופייני ל-GCs במבחנה (איור 3C). בנוסף, כפי שתואר קודם לכן, GCs נטו ליצור אשכולות, מאפיין אופייני של תאים אלה בתרבית 5,7,31,32. במערכת התרבות המשותפת, לא נצפו הבדלים מורפולוגיים לכאורה ב-TCs או ב-GCs בהשוואה לתרביות המונו-תרביות המותאמות בזמן שלהן (איור 3D), מה שמצביע על כך שהסביבה מבוססת ההכנסה שומרת על התנהגות תאית נורמלית. עם זאת, בשל מגבלות טכניות, הערכה מיקרוסקופית של התרבות המשותפת נותרה מאתגרת, במיוחד בהבחנה והערכה של מורפולוגיה של TC באופן עצמאי מהתאים האחרים. כדי להתגבר על מגבלות אלה, מטפלים כיום בפרוטוקול אופטימלי לקיבוע תאים בהתאם לבחינת אסטרטגיות חלופיות לזיהוי תאים בהיעדר נוגדנים ספציפיים לתא לצביעה חיסונית.
הפונקציונליות של מערכת התרבות המשותפת הוערכה על ידי ניתוח ייצור הורמונים וביטוי גנים סמני מפתח עבור TCs ו-GCs33,34, המאשרים את התפקידים הסטרואידוגניים הספציפיים לסוג התא. השוואה בין מונו-תרבות GC למודל התרבות המשותפת גילתה רמות אסטרדיול (E2) דומות המיוצרות במבחנה. עם זאת, כצפוי, תרבית TC מונו-תרבית ייצרה רק כמויות זניחות של E2, בהתאם להשערת 2-תאים-2-גונדוטרופין (איור 4A)15, הקובעת כי לתאי theca אין את היכולת לסנתז E2 באופן עצמאי.
כדי להעריך עוד יותר את הרלוונטיות הפיזיולוגית של תנאי התרבית, נבדק הביטוי של גנים סמני מפתח33. בהתאם להשערת 2 תאים-2-גונדוטרופין, CYP19A1 התבטא בעיקר ב-GCs, בעוד CYP17A1 זוהה בעיקר ב-TCs, דפוס שנצפה הן בתנאי מונו-תרבית והן בתנאי קו-תרבית (איור 4B,C). יש לציין כי שפע התעתיק של CYP19A1 היה גבוה יותר ב-GCs בתוך מערכת ה-co-culture בהשוואה ל-GC mono-culture, למרות שלא נצפו הבדלים בריכוזי האסטרדיול.
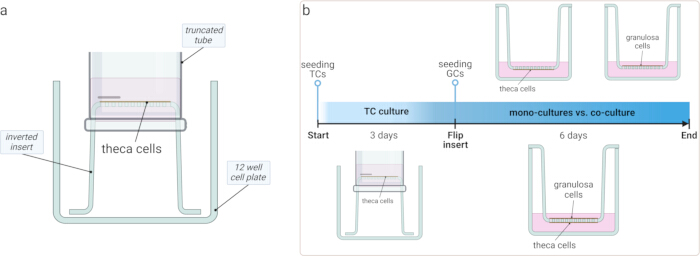
איור 1: ייצוג סכמטי של מערך תרבית תאים. (A) דיאגרמה הממחישה את תא החיסון שנבנה בהתאמה אישית, המשתמש בצינור קטום על התוספת ההפוכה כדי למנוע דליפת מדיה לאורך תקופת התרבית הראשונית. (B) ציר הזמן של הליך הניסוי: TCs תורבבו על התוסף ההפוך במשך שלושה ימים כדי לאפשר היצמדות. התוספת התהפכה, ו-GCs נזרעו בצד הנגדי, ואחריהם שישה ימים נוספים של תרבית. המחקר השווה TCs ו-GCs שגודלו בנפרד למערכת התרבות המשותפת TC-GC. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
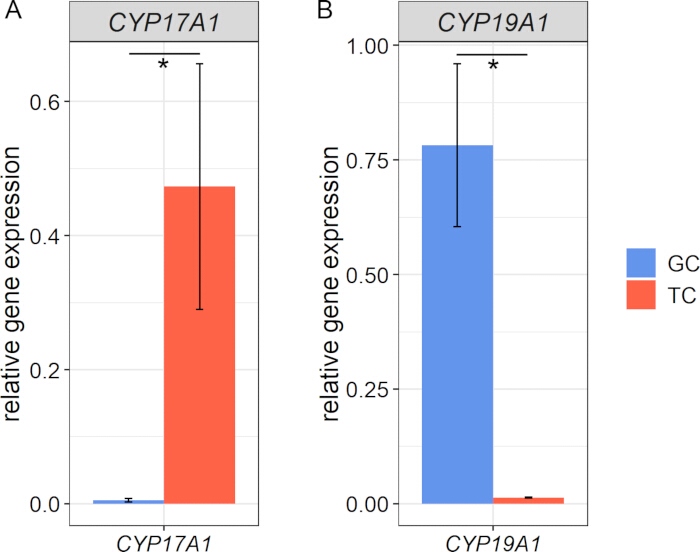
איור 2: ביטוי גנים של סמנים ספציפיים לסוג התא בתאי גרנולוזה ותקה שבודדו טריים. (A) CYP17A1 התבטא אך ורק ב-TCs, בעוד ש-(B) CYP19A1 זוהה בעיקר ב-GCs, מה שאישר את הספציפיות והטוהר הראשוני של אוכלוסיות התאים המבודדות לפני התרבית. הנתונים מוצגים כביטוי יחסי מנורמל לממוצע הגיאומטרי של גני הייחוס RPLP0 ו-TBP. הממוצעים וטעות התקן של האמצעים מוצגים, הנתונים נבדקו לנורמליות ושונות, כוכביות מצביעות על הבדלים משמעותיים (n=3, מבחן t). אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
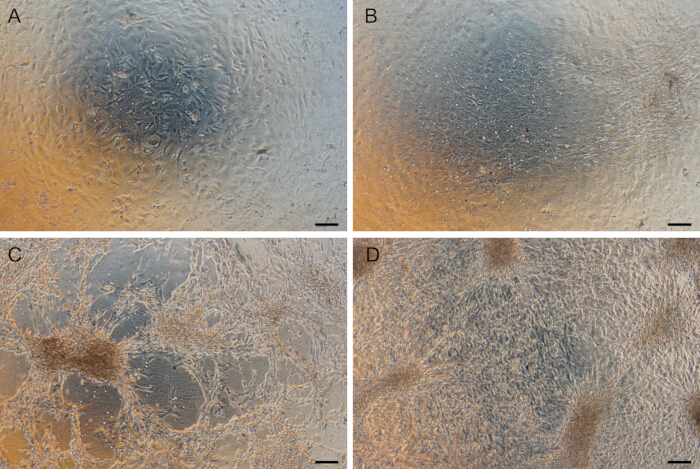
איור 3: מורפולוגיה של תאי theca וגרנולוזה בתרבית. (A) TCs שתורבו במשך 3 ימים חוברו לקרום ההכנסה המצופה בקולגן. (B) TCs גדלו למפגש לאחר כל תקופת 9 הימים בתרבות המונו-תרבית. (C) GCs מציגים את הפנוטיפ דמוי הפיברובלסטים האופייני לאחר 6 ימים בתרבית. (D) תרבית משותפת של TCs ו-GCs לא מראה הבדל מורפולוגי נראה לעין בהשוואה למונו-תרביות תואמות זמן. תמונה זו צולמה לאחר 6 ימים של תרבית GC ו-9 ימים של תרבית TC (בסיום ניסוי ה-co-culture). פסי קנה מידה 100 מיקרומטר. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
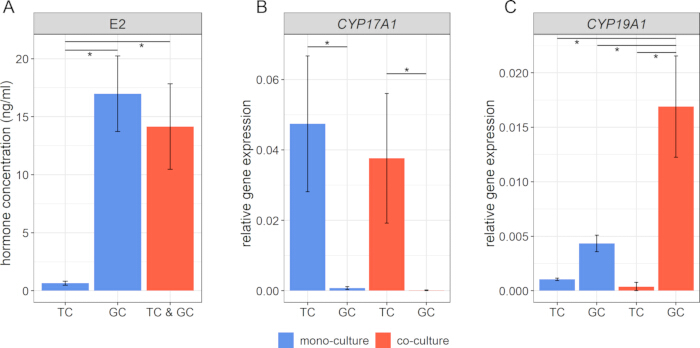
איור 4: ניתוח סמנים פונקציונליים במערכת התרבית המשותפת. (A) ריכוזי הורמונים של אסטרדיול (E2) מאשרים את התפקוד הפיזיולוגי של מערכת תרבית התאים. (ב, ג) ניתוח ביטוי גנים של סמן TC CYP17A1 וסמן GC CYP19A1 מדגים את הזהות והמצב התפקודי של שתי אוכלוסיות התאים. הממוצע הגיאומטרי של גני הייחוס RPLP0 ו-TBP שימש לחישוב הביטוי היחסי. מוצגים ממוצעים וטעות תקן של אמצעים, הנתונים נבדקו לנורמליות ושונות, כוכביות מצביעות על הבדלים משמעותיים (n=3, ANOVA חד כיווני). אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
דיון
התנאי המוקדם לביצוע מודל תרבית משותפת זה הוא בידוד מבוצע היטב של שני סוגי התאים כדי למנוע זיהום צולב. הטוהר של שני תכשירי התאים הוערך על ידי ביטוי הגנים של הסמן הספציפי ל-TC CYP17A1 והסמן הספציפי ל-GC CYP19A1. כפי שהוצג קודם, הטכניקה של בידוד GC ו-TC לא הראתה זיהום צולב רלוונטי30.
מודל תרבית משותפת זה מאפשר תרבית בו-זמנית של תאי תקה וגרנולוזה בצדדים מנוגדים של הממברנה, מחקה את הארגון המרחבי שלהם בתוך הזקיק ותומך במצב הפיזיולוגי של שתי אוכלוסיות התאים3. תוקף המודל מחוזק על ידי פרופיל ייצור ההורמונים ודפוסי ביטוי הגנים שלו התואמים את השערת 2-תא-2-גונדוטרופין15. כצפוי, רמות האסטרדיול הנמוכות בתרבית TC מאשרות שתאי theca לבדם אינם מסוגלים לסנתז אסטרדיול, מה שתומך בידע מבוסס על סטרואידוגנזה זקיקית35. למרות ביטוי CYP19A1 הגבוה יותר ב-GCs בתרבית משותפת, רמות האסטרדיול נותרו דומות למונו-תרבית GC, מה שמרמז על ההשפעה של מנגנוני רגולציה כגון זמינות סובסטרט, עיכוב משוב או הבדלי פעילות אנזימים. יש צורך בחקירה נוספת של מסלולי האיתות והמנגנונים הבסיסיים, כנושא למחקרים עתידיים. עם זאת, הקמת מערכת תרבית משותפת פונקציונלית של TCs ו-GCs של בקר היא הכרחית, כפי שנקבע במחקר זה. המחקר הנוכחי התמקד בייצור אסטרדיול וברמות ביטוי mRNA של CYP17A1 ו-CYP19A1 כאינדיקטורים מרכזיים לפונקציונליות של מודל התרבות המשותפת. שניהם מייצגים סמנים רגישים של גרנולוזה ותפקוד תאי theca 4,8,36 והם מיושרים ישירות עם השערת 2-תא-2-גונדוטרופין15. תוך הכרה בחשיבות ביטוי החלבון, היעדר נוגדנים אמינים מנע את הערכתו המדויקת; לכן, ניתוח מקיף של רמות החלבון היה מעבר לתחום החקירה הראשונית הזו.
באופן כללי, מודל זה הוא פיתוח נוסף של מודל התרבות הדו-ממדית המסורתי, המחקה בחלקו את מבנה זקיק השחלה3. התוצאות תומכות במצב הפיזיולוגי של שני תאי התאים המתגלה על ידי ביטוי של סמנים רגישים לפיזיולוגיה של GC ו-TC.
יתרון על פני מודלים מסורתיים של תרבית דו-ממדית הוא הקלה על אינטראקציות פרקריניות בין תאי theca וגרנולוזה תוך שמירה על ההפרדה המרחבית שלהם, חיקוי טוב יותר של מבנה הזקיקים in vivo. לעומת זאת, מערכות קו-תרבותיות על הצלחת, שבהן TCs ו-GCs מעורבבים בבאר אחת, חסרות את הארגון המבני הזה. מחקרים המשתמשים במערכות כאלה יישמו בדרך כלל יחס GC:TC של 4:1 19,20,21, אך גישה זו אינה משקפת את המידור שנמצא ב-vivo ולכן ייתכן שלא תהיה ריאלית לניתוח חילופי מצעים. יתר על כן, לא ניתן לזהות בקלות שינויים שנמצאו ברמת התא, כאשר יש למיין את תערובת ה-GC-TC הזו בצורה מורכבת.
מודלים תלת מימדיים של תרבית משותפת לתאי גרנולוזה ותקה נותרו נדירים, אך ניסיונות מוקדמים הראו תוצאות מבטיחות. הקבוצה של Kotsuji 22,23,24,37 תיארה בעבר את האינטראקציה של תאי גרנולוזה ותקה בתרבית באמצעות קרום קולגן כמפריד פיזי. עם זאת, מערכת זו הסתמכה על ממברנת קולגן שנבנתה בהתאמה אישית, מה שהופך את השחזור והסטנדרטיזציה למאתגרים. לעומת זאת, מודל התרבות המשותפת המוצג נהנה מתוספות תרבית תלויות זמינות מסחרית, המשפרות את יכולת השחזור, הסטנדרטיזציה ואיכות המוצר, ומבטיחות ישימות רחבה יותר במעבדות. למרות שהמודל המוצג כאן הביא לייצור אסטרדיול גבוה יותר מהמודלים הקודמים, ההשוואה בין מודלים אלה קשה, מכיוון שהוא חסר אחדות של תוספי תרבית תאים, במיוחד הריכוזים בשימוש26 או השימוש הנוסף ב-IGF-1 22,23,24,37.
אחד השלבים המכריעים ביותר בהליך הוא תרבית TCs בתוך תא החיסון. הקפדה על מיקום מאובטח של התא על התוספת ההפוכה חיונית למניעת דליפת מדיה, שעלולה לפגוע בחיבור ה-TC ובהישרדותו. לכן, מומלץ ללחוץ בחוזקה על תא החיסון על התוספת ההפוכה בעזרת פינצטה ולבדוק חזותית את מיקום תא החיסון. בנוסף, הסרת תא החיסון והיפוך התוספת לאחר שלושה ימים דורשת דיוק טכני. ייתכן שיהיה צורך באימון מיומנות מסוים כדי לבצע שלב זה מבלי לשבש ו/או לפגוע בתאים המחוברים. שיקול חשוב נוסף הוא צפיפות הזריעה של GCs. צפיפות תאים גבוהה יותר העולה על רמות אופטימליות של 1.0 x 10⁵ תאים לתוספת יכולה להוביל להתמיינות של GCs, מה שעלול להשפיע על התפוקה הסטרואידוגנית. יתר על כן, שיטת השימור בהקפאה שהוצגה הניבה כדאיות לאחר הפשרה של 80-90% עבור שני סוגי התאים.
למרות שהמודל המתואר מציע מערכת פיזיולוגית וניתנת לשחזור לחקר אינטראקציות בין תאי גרנולוזה ותקה, יש לקחת בחשבון כמה מגבלות. השיטה ניתנת להתאמה גם למינים אחרים; עם זאת, הבדלים ספציפיים למינים עשויים לדרוש אופטימיזציה של פרמטרים של תרבית תאים, כמו צפיפות תאים, תזמון או הרכב מדיה. יכולת ההרחבה של מודל זה מוגבלת לזמינות של תוספות תרבית התאים, אך היא עשויה להספיק לרוב מחקרי האפקטור. לבסוף, מודל קו-תרבותי זה הוא צעד נוסף לקראת חיקוי המצב in vivo של הזקיק, אך עדיין חסר את מלוא המורכבות של זקיק השחלה.
לסיכום, ניתן לשנות בקלות את המודל המוצג כך שיתאים לצרכים ניסיוניים שונים, כגון הארכת תקופת התרבית, התאמת מספרי תאים או יחסים, או שילוב גורמים נוספים. עם התפתחות נוספת, מערכת זו מייצגת כלי רב ערך לחקר תפקוד הזקיקים, סטרואידוגנזה ואיתות תאים בין שני תאי התא. בנוסף, הוא טומן בחובו פוטנציאל ליישומים בטוקסיקולוגיה של רבייה, ומספק פלטפורמה מבוקרת להערכת ההשפעה של תרכובות שונות על תאים זקיקים.
גילויים
כל המחברים מצהירים שאין להם ניגודי אינטרסים.
תודות
ברצוננו להביע את הערכתנו לורוניקה שרייטר, מארן אנדרס ואוליבייה זיידל על הסיוע הטכני המצוין שלהם. יתר על כן, ברצוננו להודות לבית המטבחיים המסחרי "DANISH CROWN Teterower Fleisch GmbH" (גרמניה), ממנו קיבלנו את השחלות למחקר זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 10x תמיסת מלח מאוזנת של האנק HBSS (עם מ"ג/Ca, פנול אדום) | ביו & מכר | ב. L201-10 | להמיס במים טהורים במיוחד; התאם את ה-pH ל-7.4 של תמיסת העיכול (HBSS ו-HEPES) ובצע סינון סטרילי לפני השימוש |
| מחט 18 גרם, 40 מ"מ, קוטר 1.2 מ"מ | רוט | 281ט.1 | מחט חד פעמית, קיצור דרך |
| מזרק 3 מ"ל (Omnifix Luer) | רוט | LY22.1 | |
| אקוטאז | מרק | א6964 | סניף החברה: סיגמא-אולדריץ' |
| אמפוטריצין B (250 ומיקרו; גרם/מ"ל) | ביו & מכר | ב. AB17.01050 | |
| אנדרוסטנדיון | מרק | 46033 | אנו משתמשים בתמיסת מלאי של 10 מ"מ, מדוללת ב-100% אתנול; סניף החברה: סופלקו |
| משקפת Carl Zeiss Technival2 | קארל זייס ג'נה | לא ישים | בשימוש יחד עם תאורת תקרית Schott KL 1600 LED |
| BSA (5%) | מרק | א3311 | סניף החברה: סיגמא-אולדריץ' |
| מסננת תאים (100 ומיקרו; גודל נקבוביות מ') | סרשטדט | 83.3945.100 | התאמת צינורות צנטריפוגה של 50 מ"ל |
| קולגן R (0.2%) | סרווה | 47254 | |
| קולגנאז NB8 (10%) | נורדמארק | S1745601 | |
| מיכל הקפאת תאים CoolCell LX | מרק | CLS432002 | מוצר מקורנינג |
| בקבוקונים לשימור הקפאה (2 מ"ל) | TPP פאוסט | TPP89020 | |
| צלחת תרבות, 12 בארות, תחתית שטוחה | TPP פאוסט | TPP92112 | |
| צלחת תרבות, 24 בארות, תחתית שטוחה | TPP פאוסט | TPP92424 | |
| צלחת תרבות, 6 בארות, תחתית שטוחה | TPP פאוסט | TPP92006 | |
| DMSO | רוט | 4720.1 | |
| DPBS עם Ca2+, Mg2+ | ביו & מכר | ב. L182-10 | יש להמיס במים טהורים במיוחד ובחיטוי לפני השימוש |
| אסטרדיול, 17b-[2,4,6,7-3H] | הרטמן אנליטיק | ART1555 | |
| סרום עגל עוברי (FBS Superior stabil) | ביו & מכר | FBS. S0615 | |
| FSH (~7,000 יחב"ל/מ"ג; מיותרת המוח האנושית) | מרק | F4021 | אנו מעדיפים להשתמש בתמיסת מלאי של 2 ומיקרו; גרם/מ"ל, מדולל ב-0.9% NaCl; סניף החברה: סיגמא-אולדריץ' |
| תוספות תרבית תאים תלויות (0.4 ומיקרו; גודל נקבוביות מ') | cellQART | 9320412 | בזמן ההזמנה להיות מודע למאפיינים השונים של תוספות; אנו מעדיפים קרום PET שקוף למיקרוסקופ ניגודיות פאזה |
| HEPES (1 מ') | רוט | 9105.2 | התאם את ה-pH ל-7.4 של תמיסת העיכול (HBSS ו-HEPES) ובצע סינון סטרילי לפני השימוש |
| הולו-טרנספרין (בקר) | מרק | T1283 | להתמוסס במים סטריליים; סניף החברה: סיגמא-אולדריץ' |
| ערכת מיני רנ"א innuPREP 2.0 | IST innuscreen | ברקוד 845-KS-2040250 | |
| אינסולין (10 מ"ג/מ"ל; מלבלב בקר) | מרק | I0516 | להתמוסס ב-1x PBS; סניף החברה: סיגמא-אולדריץ' |
| L-גלוטמין (200 מ"מ) | ביו & מכר | ב. K0283 | |
| LR3-IGF-1 | מרק | I1146 | אנו משתמשים בתמיסת מלאי של 200 ומיקרו; גרם/מ"ל, מומס ב-10 מ"מ HCl ו-1x PBS עם 1 מ"ג/מ"ל BSA; סניף החברה: סיגמא-אולדריץ' |
| ספקטרופוטומטר NanoDrop 1000 | תרמו-סיינטיפיק | לא ישים | מדידת ריכוז RNA |
| NEA (פי 100) | ביו & מכר | ב. K0293 | |
| פניצילין/סטרפטומיצין (10,000 יחב"ל/10 מ"ג/מ"ל) | ביו & מכר | ב. א2213 | |
| מים מטוהרים, מתאימים לתרבית תאים | מרק | W3500 | סניף החברה: סיגמא-אולדריץ' |
| ערכת סינתזה cDNA SensiFAST | ביוליין | ביו-65054 | מסופק באמצעות שותפת ההפצה BioCat |
| נתרן ביקרבונט (7.5%) | ביו & מכר | ב. L1713 | |
| נתרן סלניט | מרק | S9133 | להתמוסס במים סטריליים; סניף החברה: סיגמא-אולדריץ' |
| תרמושייקר TS-100C | פישר סיינטיפיק | 12357627 | בשימוש יחד עם בלוק HC18 (מס' קטלוגי 12337627) |
| α-MEM | ביו & מכר | ב. F0915 |
מקורות
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
הדפסות חוזרות והרשאות
