כאן, אנו מתארים הליך פשוט ומהיר לזיהוי DNA מפתוגנים של דבורים, כגון Lotmaria passim ו-Nosema ceranae, באמצעות ליזיס תאים מוכן להגברה, הגברת פולימראז רקומבינאז ומבחני CRISPR/Cas12a.
מאמר שיטה
זיהוי DNA באתר של טפילים טריפנוזומטיים ו-nosema ceranae באמצעות ליזה אלקליין בשילוב עם מערכת RPA/CRISPR/Cas12a
במאמר זה
הודעת תיקון
Important: There has been an erratum issued for this article. View Erratum Notice
סיכום
תקציר
זיהוי מוקדם באתר של פתוגנים מיקרוסקופיים חיוני לניהול יעיל ובריאות של מושבות דבורי דבש. נכון לעכשיו, תקן הזהב לזיהוי מולקולרי של פתוגנים של דבורים הוא qPCR או RT-qPCR. כאן, אנו מציגים אלטרנטיבה מהירה, רגישה וחסכונית לזיהוי פתוגן DNA הניתן לפריסה בשטח. שיטה זו משלבת ליזיס תאים ישיר ומוכן להגברה של בטן דבורים פועלות עם הגברת פולימראז רקומבינאז (RPA), מחשוף בתיווך CRISPR/Cas12a של בדיקות מדווח, וזיהוי באמצעות מבחני זרימה רוחבית. אימתנו בהצלחה את הפרוטוקול הזה בדבורי דבש שנדבקו ב-Nosema ceranae ו-Lotmaria passim. ניתן לבצע את הפרוטוקול המתואר באמצעות בלוק חום פשוט או בטמפרטורת החדר והוא עשוי להיות ישים לכל פתוגן מבוסס DNA או מיקרוביוטת מעיים של דבורת הדבש. התהליך כולו אורך כ-180 דקות ומשיג רגישות דומה ל-qPCR, ומזהה רק 96 עותקי טפילים למיקרוליטר. לסיכום, גישה זו מציעה כלי מבטיח לאבחון שדה אמין ומהיר של זיהומי דבורי דבש ללא צורך בציוד מעבדה מורכב, מה שהופך אותה לאידיאלית למעקב אחר מושבות באתר.
מבוא
דבורים הן מיני מפתח המעורבים בהאבקת צמחים והן חיוניות להתרבות צמחים, מגוון ביולוגי וביטחון תזונתי1. שירותי ההאבקה שלהם מועילים למגוון רחב של יבולים בעלי ערך כלכלי גבוה, ותורמים כ-235-577 מיליארד דולר מדי שנה לחקלאות העולמית. עם זאת, הירידה העולמית באוכלוסיות הדבורים העלתה חששות רציניים בשל השלכותיה הפוטנציאליות על היציבות האקולוגית ופריון היבול, שהביאו לאובדן מוערך של 4.8-16.3 מיליארד דולרבמדינות עניות עם חובות כבדים. מסת היעלמות הדבורים כרוכה באינטראקציות מרובות בין מספר גורמים: יישום חומרי הדברה, אובדן בתי גידול, שינויי אקלים וזיהומים על ידי פתוגנים, כולל וירוסים, חיידקים, פטריות ופרוטיסטים.
בין המיקרואורגניזמים הללו, Nosema spp., פטרייה מיקרוספורידית המפריעה לתפקוד המעיים, וטפילי טריפנוזומאטיד - במיוחד Lotmaria passim - מופצים באופן נרחב במושבות דבורי דבש ברחבי העולם3, 4. ממצאים אחרונים מראים כי זיהומי L. passim , גם כאשר הם אסימפטומטיים, יכולים להפחית את הוויסות של גנים הקשורים למערכת החיסון ולשנות את חילוף החומרים האנרגטי בדבורי הדבש, מה שעלול לפגוע בעמידותןתחת לחץ נוסף. באופן דומה, זיהומי Nosema spp. מפחיתים את אורך החיים של הדבורים, מדכאים את תפקוד מערכת החיסון ומשבשים את דינמיקת החיפוש של המושבה, מה שמוביל להפחתת ייצור הדבש ולעלייה בתמותת המושבה. יתר על כן, זיהומים נלווים הכוללים הן Nosema spp. והן טריפנוזומטידים עשויים להיות בעלי השפעות סינרגטיות, להחמיר את הלחץ הפיזיולוגי ולהחליש את הגנות המארח. ממצאים אלה מדגישים את החשיבות של ניטור מספר פתוגנים בו זמנית.
התמודדות עם איומים אלה מחייבת פיתוח של כלי אבחון מהירים ומדויקים, אשר בתורם תלויים בהבנה מעמיקה יותר של הביולוגיה, ההעברה ואסטרטגיות ההישרדות של פתוגניםאלה. איתור פתוגנים אלה בשיטות מסורתיות, כולל מיקרוסקופ אור והגברה מולקולרית, נותר אמין אך עומד בפני מגבלות מסוימות. דוגמאות ל-qPCR, RTqPCR (דורש רכיבה על אופניים בטמפרטורות שונות), ושיטות איזותרמיות, כגון הגברה מתווכת לולאה (LAMP, פועלת בטמפרטורה קבועה), פותחו עבור טפילים פטרייתיים, ויראליים, חיידקיים או פרוטוזואים 6,7,8,9,10. עם זאת, יישום שיטות אלה דורש ציוד מיוחד, יחד עם כוח אדם מיומן ומתקני מעבדה מאובזרים היטב, מה שמגביל את המעשיות שלהם ליישומי שטח ולניטור בקנה מידה גדול. כדי לטפל בבעיות אלה, פותחו טכניקות מולקולריות חדשות - הגברה של מטרות DNA עם הגברת פולימראז רקומבינאז (RPA), יחד עם זיהוי מבוסס CRISPR/Cas12a - גישה מהירה, ספציפית ורגישה. השיטה פועלת בצורה איזותרמית ומייצרת תוצאות חזותיות שהופכות אותה למתאימה לאבחון באתר או בנקודת טיפול, על פי Shao et al.11 ו-Xiao et al.12.
RPA היא שיטת הגברת DNA פשוטה ומהירה הפועלת בטמפרטורה קבועה, בדרך כלל בין 37 מעלות צלזיוס ל-42 מעלות צלזיוס. הוא מסתמך על אנזימי רקומבינאז, חלבונים קושרי DNA חד-גדיליים ופולימראז עקור גדיל כדי להגביר את ה-DNA ללא צורך במחזור תרמי. RPA מתאים במיוחד לבדיקות באתר ואבחון בשטח בשל מהירותו, דרישות הציוד המינימליות ותאימות לדגימות גולמיות 11,12,13. כדי לשפר את הספציפיות, ניתן לזהות את מוצר ה-RPA באמצעות אנדונוקלאז Cas12a, שמתפקד גם הוא באותו טווח טמפרטורות. Cas12a נקשר ל-RNA מנחה CRISPR (gRNA), RNA קצר המנחה את Cas12a לעבר רצף המטרה המוגבר ונקשר לרצף המשלים ב-DNA. עם הקשירה, Cas12a מופעל ומפגין פעילות מחשוף צדדית (טרנס), במיוחד כנגד DNA חד-גדילי (ssDNA). זה מאפשר שימוש במולקולות מדווחות ssDNA המסומנות בפלואורופורים או ביוטין, שיכולות ליצור פלואורסצנטיות או אותות חזותיים, כולל קריאות רצועות זרימה לרוחב. יחד, RPA ו-CRISPR/Cas12a יוצרים פלטפורמת אבחון מולקולרית רבת עוצמה, מהירה, רגישה ומתאימה לשימוש בשטח או במסגרות מוגבלות במשאבים12.
כדי לשפר עוד יותר את המעשיות של גישת אבחון מולקולרית זו, יישמנו גם שיטת ליזיס תאים מוכנה להגברה (ARCL) פשוטה המבוססת על ליזה של נתרן הידרוקסיד (NaOH) של בטן דבורים11,14, ומבטלת את הצורך בהכנת דגימות נרחבת וריאגנטים למעבדה. טכניקת מיצוי מהירה זו של חומצות גרעין, בשילוב עם ההגברה האיזותרמית ומערכת הזיהוי CRISPR/Cas12a, מאפשרת זרימת עבודה הניתנת לפריסה בשטח שמפחיתה משמעותית הן את הזמן והן את העלות. חשוב לציין, הבדיקה שומרת על האיכות, הרגישות הגבוהה והספציפיות בהשוואה ל-qPCR, תקן הזהב הנוכחי לזיהוי פתוגנים בדבורים.
כאן, יישמנו בהצלחה את המתודולוגיה הזו לזיהוי של Nosema ceranae ו-L. passim בדבורי דבש (איור 1). השווינו שיטה זו למבחני qPCR סטנדרטיים ואימתנו את ביצועיה באמצעות דגימות נגועות באופן טבעי. הממצאים שלנו מראים שגישה זו היא אלטרנטיבה מעשית ואמינה לניטור מבוסס שטח של בריאות דבורי הדבש, עם פוטנציאל חזק למעקב בקנה מידה גדול ולמאמצי התערבות מוקדמת בגידול דבורים.
פרוטוקול
כל ההליכים נערכו בהתאם להנחיות מוסדיות ולאומיות לעבודה עם חסרי חוליות ושימוש במספר הדבורים הנמוך ביותר הדרוש להוכחת הרעיון. דבורי הדבש הועברו בקופסאות כוורת מיוחדות עם אוורור וטמפרטורה מתאימה ואוחסנו במעבדה בטמפרטורה של -20 מעלות צלזיוס עד לניתוח.
1. ליזה של תאים אלקליין HotSHOT
- הכנת פתרון
- הכנת מאגר ליזה HotSHOT של 100 מ"ל
- שוקלים 99.993 מ"ג NaOH ו-8.32 מ"ג EDTA, מוסיפים 90 מ"ל מים מזוקקים ומערבבים. התאם את ה-pH ל-12 ואת הנפח ל-100 מ"ל; חיטוי.
- 40 מ"מ Tris-HCl, pH 5
- ל-484.544 מ"ג טריס, הוסיפו 90 מ"ל מים נטולי יונים, התאימו את ה-pH ל-5 עם HCl והביאו את הנפח ל-100 מ"ל.
- הכנת מאגר ליזה HotSHOT של 100 מ"ל
- פרוטוקול ליזה
- מנתחים את בטן הדבורה בעזרת אזמל סטרילי ומעבירים את הרקמה המנותחת לצינור מיקרו-צנטריפוגה של 1.5 מ"ל.
הערה: לזיהוי פתוגנים נעשה שימוש רק בבטן, ושאר חלקי הגוף הושלכו. - הוסיפו 400 מיקרוליטר של מאגר HotSHOT, השרו את הרקמה באמצעות עלי חד פעמי, והפכו אותה להומוגניזציה נוספת על ידי מערבולת.
הערה: ניתן לעשות שימוש חוזר בעלי אם הוא מטוהר על ידי דגירה של החומר למשך הלילה בתמיסת NaOH של 0.1 N, ולאחר מכן שטיפה במים נטולי יונים כפולים, ולאחר מכן מחזור חיטוי אחד וייבוש לאחר מכן בחממה. - דגרו את ההומוגנאט בטמפרטורה של 95 מעלות צלזיוס למשך 10 דקות כדי ליז את התאים. לאחר הדגירה, הניחו מיד את הצינור על קרח להתקררות.
- כדי לנטרל את התגובה, הוסף נפח שווה (400 מיקרוליטר) של 40 מ"מ Tris-HCl, וכתוצאה מכך ריכוז סופי של 20 מ"מ Tris-HCl בתמיסה.
הערה: הליך ליזה זה מתואר באיור 2.
- מנתחים את בטן הדבורה בעזרת אזמל סטרילי ומעבירים את הרקמה המנותחת לצינור מיקרו-צנטריפוגה של 1.5 מ"ל.
2. הגברה איזותרמית על ידי RPA
הערה: עיצוב הפריימרים נעשה בעזרת כלי התוכנה eprimer3 (https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3), אם כי ניתן להשתמש בכלי עיצוב פריימר אחרים.
- הכנת פתרונות עבודה
- פתרונות פריימר RPA
- הכן תמיסות מלאי בריכוז של 100 מיקרומטר לפי הוראות היצרן. לדוגמה, יש להרכיב מחדש 10.0 ננומול של פריימר ליופיליזציה ב-100 מיקרוליטר של מים שטופלו בדיאתיל פירוקרבונט (DEPC) ולאחסן בטמפרטורה של -20 מעלות צלזיוס. הכן פתרונות עבודה בריכוז של 10 מיקרומטר על ידי דילול המלאי 1:10; מערבבים 90 מיקרוליטר של מים שטופלו ב-DEPC עם 10 מיקרוליטר מתמיסת המלאי של 100 מיקרומטר בשפופרת של 0.2 מ"ל. אחסן פתרונות אלה בטמפרטורה של -20 מעלות צלזיוס.
- פתרונות פריימר RPA
- פרוטוקול RPA
- הכן את תערובת המאסטר בהתאם למספר התגובות שיש לבצע. כלול גם בקרה שלילית (החלפת ARCL במים שטופלו ב-DEPC) וגם בקרה חיובית באמצעות DNA פתוגני (בדוגמה זו, DNA מתרבית תאים L. passim promastigotes ודבורים חיוביות ל-Nosema spp. (נבגים שזוהו במיקרוסקופיה)) (טבלה 1).
הערה: הכינו תמיד את תערובת המאסטר RPA על קרח והשתמשו בקצות מסנן כדי למנוע זיהום. - העבירו כמות של 46.5 מיקרוליטר מתערובת המאסטר לכל צינור של 0.2 מ"ל.
- הוסף מגנזיום אצטט (MgOAc) ותבנית DNA למכסי הצינורות, בהתאם לנפחים המפורטים בטבלה 2. צנטריפוגה קצרה של הצינורות כדי לערבב את התוכן וליזום את תגובת ה- RPA.
הערה: לשחזור טוב יותר, מערבולת וצנטריפוגה בקצרה את כל הרכיבים לפני השימוש. יש לכלול בקרות חיוביות ושליליות בכל אצווה כדי לאמת את התגובה. - דגרו את הדגימות בטמפרטורה של 39 מעלות צלזיוס למשך 40 דקות לתגובת הגברת ה-RPA.
הערה: לאחר הדגירה, ניתן להשתמש ישירות בתגובות RPA לזיהוי במורד הזרם (למשל, מבחנים מבוססי CRISPR/Cas12a), המתוארים בסעיף 3.
- הכן את תערובת המאסטר בהתאם למספר התגובות שיש לבצע. כלול גם בקרה שלילית (החלפת ARCL במים שטופלו ב-DEPC) וגם בקרה חיובית באמצעות DNA פתוגני (בדוגמה זו, DNA מתרבית תאים L. passim promastigotes ודבורים חיוביות ל-Nosema spp. (נבגים שזוהו במיקרוסקופיה)) (טבלה 1).
3. זיהוי DNA פתוגן על ידי CRISPR/Cas12a
הערה: זיהוי לאחר RPA יכול להתבצע בדרכים שונות. בפרוטוקול זה, נפרט זיהוי על ידי פלואורסצנטיות (FAM-TTTTTTTT-MGB) ורצועות אימונוכרומטוגרפיות (Biotin-TTTTTTTT-FITC).
בצע את כל ההליכים באזור נקי ונטול DNA (למשל, חלל PCR ייעודי). נקו משטחי עבודה ופיפטות עם 0.5% אקונומיקה, ואחריהם 70% אתנול. השתמש תמיד בקצות סינון ולבש כפפות. טפל ב-DNA או בחומר מוגבר באזור נפרד מאזור הכנת המגיבים. להפשיר את כל הריאגנטים על קרח ולשמור על תנאי קור לאורך כל ההכנה.
- הכנת פתרונות עבודה
- crRNA
הערה: העיצוב של Nosema ceranae ו-Lotmaria passim crRNA בוצע באמצעות ה-Eukaryotic Pathogen CRISPR guide RNA/DNA Design Tool (EuPaGDT) http://grna.ctegd.uga.edu/. עבור תכנון crRNA מותאם אישית, ניתן להשתמש בתוכנות אחרות כגון GPP sgRNA Designer (https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design) או CHOPCHOP (https://chopchop.cbu.uib.no/).- להכנת תמיסת מלאי crRNA של 100 מיקרומטר, הרכיבו מחדש 10 ננומול מכל crRNA ליופילי עם 100 מיקרוליטר מים שטופלו ב-DEPC ואחסנו בטמפרטורה של -20 מעלות צלזיוס. כדי להכין פתרון עבודה של 1 μM, בצע דילול של 1:100 על ידי ערבוב של 1 μL של תמיסת המלאי של 100 μM עם 99 μL של מים שטופלו ב-DEPC בשפופרת של 0.2 מ"ל (איור 3).
הערה: יש לאחסן את שני הפתרונות בטמפרטורה של -20 מעלות צלזיוס.
- להכנת תמיסת מלאי crRNA של 100 מיקרומטר, הרכיבו מחדש 10 ננומול מכל crRNA ליופילי עם 100 מיקרוליטר מים שטופלו ב-DEPC ואחסנו בטמפרטורה של -20 מעלות צלזיוס. כדי להכין פתרון עבודה של 1 μM, בצע דילול של 1:100 על ידי ערבוב של 1 μL של תמיסת המלאי של 100 μM עם 99 μL של מים שטופלו ב-DEPC בשפופרת של 0.2 מ"ל (איור 3).
- הכנת Cas12a
הערה: ניתן לספק Cas12a בריכוזים של 1 מיקרומטר או 100 מיקרומטר.- אם מסופק ב-100 מיקרומטר, יש לדלל אותו לתמיסת עבודה של 1 מיקרומטר לפני השימוש על ידי ערבוב של 1 מיקרוליטר של האנזים Cas12a 100 מיקרומטר עם 99 מיקרוליטר של המדלל המסופק בערכה (דילול 1:100, איור 3).
הערה: ניתן לכוונן את ריכוז האנזים Cas12a בהתאם לסוג המדגם. מכיוון שהאנזים מאוחסן בדילול על בסיס גליצרול, חשוב לוודא שנפח האנזים הנוסף לא יעלה על 20% מנפח התגובה הכולל כדי למנוע השפעות מעכבות פוטנציאליות.
- אם מסופק ב-100 מיקרומטר, יש לדלל אותו לתמיסת עבודה של 1 מיקרומטר לפני השימוש על ידי ערבוב של 1 מיקרוליטר של האנזים Cas12a 100 מיקרומטר עם 99 מיקרוליטר של המדלל המסופק בערכה (דילול 1:100, איור 3).
- הכנת תמיסות בדיקה FAM וביוטין
הערה: בדיקת FAM מסופקת בצורה ליופילית.- כדי להכין תמיסת מלאי של 100 מיקרומטר, השהה מחדש את הגשושית על ידי הוספת 1 מיקרוליטר של מים שטופלו ב-DEPC לכל 1 ננומול של בדיקה (למשל, עבור 102 ננומול, הוסף 102 מיקרוליטר מים שטופלו ב-DEPC). אחסן את תמיסת המלאי בטמפרטורה של -20 מעלות צלזיוס. לשימוש בתערובת האב לגילוי, יש לדלל את המלאי 1:10 (90 μL של מים שטופלו ב-DEPC עם 10 μL של 100 μM FAM) כדי לקבל פתרון עבודה של 10 μM (איור 3).
- crRNA
- פרוטוקול זיהוי CRISPR/Cas12a
- זיהוי מבוסס פלואורסצנטי (בדיקת FAM)
- בצינור מיקרו-צנטריפוגה של 1.5 מ"ל, הכינו את תערובת התגובה כמתואר בטבלה 3, למעט המגברים.
- מערבבים היטב בעזרת מערבולת ומחלקים את התערובת לצינורות PCR.
- לאחר מכן, הוסף 4 מיקרוליטר של אמפליקון RPA (מתואר בשלב 2.2) לכל צינור.
- דגרו את התגובות ב-37 מעלות צלזיוס למשך 120 דקות בתרמו-סייקלר עם יכולת קריאת פלואורסצנטיות, תוך רישום הקרינה בכל דקה.
- אופציונלי: בתום הדגירה מעבירים את התגובות לצינורות של 0.2 מ"ל ומדמיינים באמצעות מערכת תיעוד ג'ל להדמיה.
- איתור באמצעות בדיקת ביוטין בבדיקת זרימה רוחבית
- בצינור מיקרו-צנטריפוגה של 1.5 מ"ל, הוסף את הרכיבים המוצגים בטבלה 4.
- הכינו את התערובת כמתואר בסעיף 3.2.1, ערבבו והפיצו אותה לצלחת PCR. לבסוף, הוסף 4 מיקרוליטר של אמפליקון לבארות המתאימות.
- דגירה למשך 120 דקות בתרמו-סייקלר (ללא קריאת פלואורסצנטיות) או בלוק תרמי ב-37 מעלות צלזיוס.
- העבירו את הדגימות לצינורות של 0.2 מ"ל ובצעו את הזיהוי באמצעות רצועות חיסוניות. לשם כך, הוסף 50 מיקרוליטר של מאגר רץ ו -10 מיקרוליטר מתערובת התגובה לכל צינור והכנס את הרצועה ישירות לתוך הצינור. דגירה למשך 15 דקות בטמפרטורת החדר וקריאת התוצאות לאחר 10 דקות של טבילה, כפי שמוצג באיור 3.
- זיהוי מבוסס פלואורסצנטי (בדיקת FAM)
תוצאות
כאן תיארנו שיטה מהירה באתר המשתמשת בליזה אלקליין של בטן דבורים פועלות יחד עם הגברת RPA וזיהוי מבוסס CRISPR/Cas12a על ידי גישות פלואורסצנטיות ו/או זרימה רוחבית. הסכימה של זרימת העבודה המלאה מיוצגת באיור 3, והסכימה של הליזה האלקליין של HotSHOT של בטן דבורים פועלות נמצאת באיור 4. תוצאות מייצגות של בדיקת RPA/CRISPR/Cas12a מוצגות באיור 5. כדי לזהות L. passim ו-N. ceranae, נעשה שימוש בתרמו-ציקלר כדי לכמת את יחידות הקרינה היחסית (RFUs) באמצעות בדיקה המסומנת על ידי FAM (איור 4A). תגובות ה-RPA בוצעו באמצעות 10 ננוגרם של דנ"א, ונתוני הקרינה שורטטו בגרף (איור 4B). בשלב הסופי של הבדיקה, דגימות בצינורות חרוטיים צולמו באמצעות מערכת הדמיית ג'ל (איור 4C). לזיהוי באמצעות בדיקה עם תווית ביוטין, הדגימות הודגרו בתרמובלוק (איור 4A); תמיסת הגילוי הוכנה על פי הוראות היצרן והוחלה על פס זרימה רוחבי (איור 4B, C). השיטה הביאה לזיהוי מוצלח של שני הפתוגנים של דבורי הדבש.
כדי לקבוע את היעילות של תגובות RPA, השווינו שיטה זו עם qPCR סטנדרטי באמצעות DNA מטוהר מדבורי דבש באמצעות הערכה המוזכרת (ראה טבלת החומרים). בסך הכל נבדקו 32 דגימות דבורים עם פריימרים המכוונים לגן β-טובולין של L. passim עבור שתי השיטות ולאחר מכן זוהו על ידי CRISPR/Cas12a trans-vacapage של בדיקות פלואורסצנטיות. יש לציין כי כתוצאה מכך, 12 דגימות נמצאו חיוביות על ידי qPCR, בעוד ש-RPA/CRISPR/Cas12a זיהו L. passim ב-16 דגימות (איור 5A). זה מצביע על כך שביצועי תגובת RPA רגישים יותר מ-PCR, כשיטת הגברת ה-DNA בתקן הזהב.
כמו כן, קבענו את גבול הזיהוי (LOD) עבור qPCR ו-RPA בשילוב עם זיהוי CRISPR/Cas12a עבור L. passim DNA כמודל הפתוגן באמצעות דילולים סדרתיים של L. passim DNA הנעים בין 66 ננוגרם ל-6 fg. qPCR זיהה רק 6 pg, המקביל לכ-96 טפילים (איור 5B). לשם השוואה, ה-LOD עבור RPA תואם ל-96 טפילים (איור 5C, D).
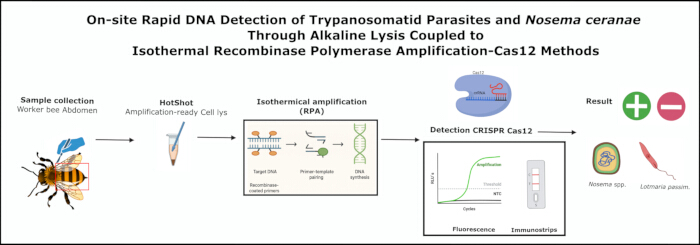
איור 1: זרימת עבודה כללית של הליזיס האלקליין HotSHOT יחד עם הגברת RPA ושיטות זיהוי Cas12 בדבורי דבש. קיצורים: RPA = הגברת פולימראז רקומבינאז; CRISPR = חזרות פלינדרומיות קצרות מקובצות במרווחים קבועים; Cas = חלבון הקשור ל-CRISPR. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
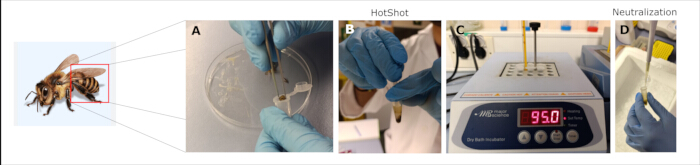
איור 2: עיבוד ליזה של תאים מוכנים להגברה עם מאגר HotSHOT. (A) חתכו את בטן דבורת הדבש בעזרת אזמל והכניסו אותה לצינור צנטריפוגה; (B) עם עלי, הכינו השריה עם 400 מיקרוליטר של HotShot; (ג) לדגור על תרמובלוק בטמפרטורה של 95 מעלות צלזיוס למשך 10 דקות; ו-(D) לנטרל עם 400 מיקרוליטר של 40 מ"מ Tris-HCl. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
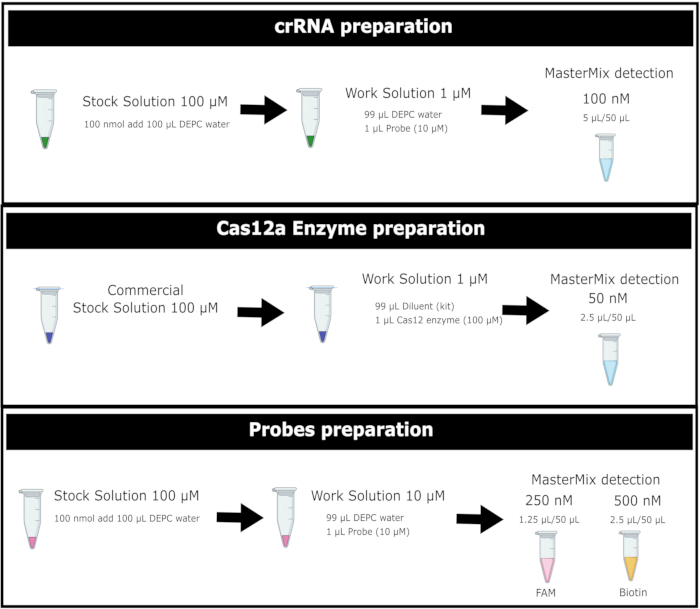
איור 3: זרימת עבודה כללית להכנת אנזים Cas12a ופתרונות בדיקה מדווחים עם תווית FAM וביוטין. קיצורים: DEPC-water = מים שטופלו בדיאתיל-פירוקרבונט; crRNA = RNA CRISPR; Cas12 = סוג של חלבון הקשור ל-CRISPR. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
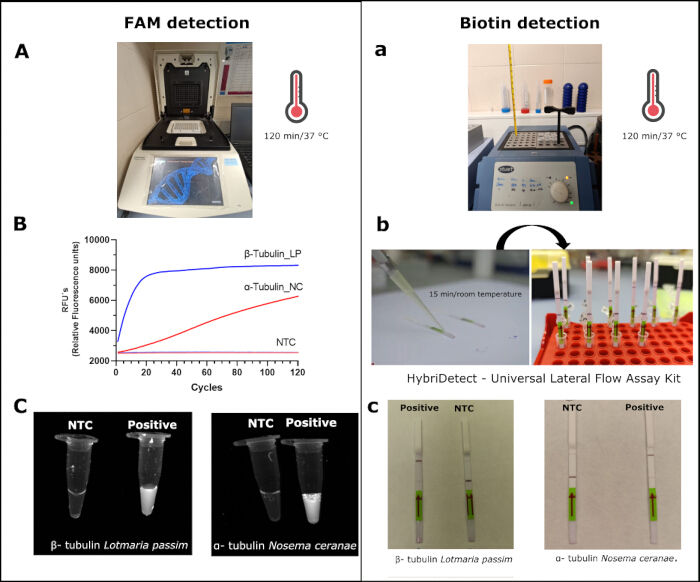
איור 4: זיהוי של Lotmaria passim ו-Nosema ceranae. בשיטת CRISPR/Cas12a עם בדיקות FAM וביוטין. לזיהוי FRA, (A) דגימות מודגרות ב-thermocycler; (B) יחידות הקרינה היחסית (RFU's) של L. passim ו-N.ceranae; (ג) הדמיה של אותן דגימות תחת מערכת תיעוד תמונות. בבדיקות ביוטין, (א) דגימה שדוגרת בבלוק תרמו; (ב) דגימות נוספו בסטריפ חיסוני מהערכה (ראו טבלת החומרים); (ג) התוצאות לאחר הדגירה. קיצורים: LP= Lotmaria passim; NC = Nosema ceranae; NTC= אין בקרת תבנית; RFU: יחידות פלואורסצנטיות יחסיות אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
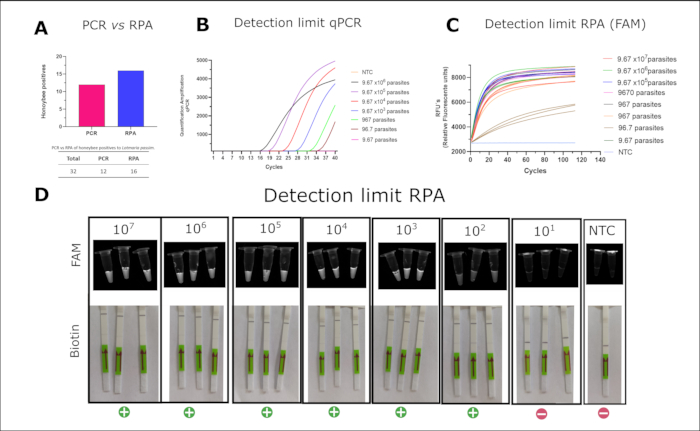
איור 5: השוואה בין qPCR ל-RPA, וגבול הגילוי של Lotmaria passim. (A) איתור L. passim בדגימות דבורי דבש באמצעות qPCR ו-RPA קונבנציונליים. (B) מגבלת זיהוי qPCR של L. passim באמצעות SsoFast EvaGreen. (C) גבול זיהוי של L. passim באמצעות CRISPR/Cas12a עם בדיקה עם תווית FAM; (D) הדמיה של אותו זיהוי CRISPR/Cas12a ( מ-C) תחת מערכת הדמיית ג'ל (שורה עליונה), ותוצאות זרימה רוחבית תואמות באמצעות CRISPR/Cas12a עם בדיקה עם תווית ביוטין (שורה תחתונה). קיצורים: RPA = הגברת פולימראז רקומבינאז; qPCR = תגובת שרשרת פולימראז כמותית. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
| מגיב | ריכוז סופי | 10 מיקרוליטר | 50 מיקרוליטר |
| 2x מאגר תגובה | 1x | 5 מיקרוליטר | 25 מיקרוליטר |
| dNTPs (10 מ"מ) | 1.8 מ"מ | 1.8 מיקרוליטר | 9 מיקרוליטר |
| 10x מיקס אלקטרוני בסיסי | 1x | 1 מיקרוליטר | 5 מיקרוליטר |
| פריימר קדימה (10 μM) | 480 ננומטר | 0.5 מיקרוליטר | 2.4 מיקרוליטר |
| פריימר הפוך (10 μM) | 480 ננומטר | 0.5 מיקרוליטר | 2.4 מיקרוליטר |
| תערובת תגובת ליבה 20x | 1x | 0.5 מיקרוליטר | 2.5 מיקרוליטר |
| DEPC מים | -- | 0.7 מיקרוליטר | 3.7 מיקרוליטר |
טבלה 1: רכיבי Mastermix עבור RPA עם נפחים סופיים של 10 μL ו-50 μL, וריכוזי עבודה מתאימים:
| מגיב | ריכוז סופי | תגובת 10 מיקרוליטר | תגובת 50 מיקרוליטר |
| 280 מ"מ MgOAc | 1.8 מ"מ | 0.5 מיקרוליטר | 2.5 מיקרוליטר |
| דנ א | 10-0.1 ננוגרם | 1 מיקרוליטר | 2 מיקרוליטר |
טבלה 2: נפח ריאגנטים שיש להוסיף לכל דגימה בתגובה של RPA
| מגיב | [מלאי] | [סופי] | 1x (μL) |
| אנזים Cas12a | 1 מיקרומטר | 50 ננומטר | 2.5 |
| cRNA | 1 מיקרומטר | 100 ננומטר | 5 |
| בדיקת FAM | 10 מיקרומטר | 250 ננומטר | 1.25 |
| מאגר NEB 10x | פי 10 | 1x | 5 |
| מגבר RPA | - | - | 4 |
| מים | - | - | 32.25 |
| סך | 50 |
טבלה 3: ריכוזי ריאגנטים ליצירת תערובת של זיהוי FAM בשיטת CRISPR/Cas 12a.
| מגיב | [מלאי] | [סופי] | 1x (μL) |
| אנזים Cas12a | 1 מיקרומטר | 50 ננומטר | 2.5 |
| cRNA | 1 מיקרומטר | 100 ננומטר | 5 |
| בדיקת ביוטין | 10 מיקרומטר | 500 ננומטר | 2.5 |
| מאגר NEB 10x | פי 10 | פי 1 | 5 |
| מגבר RPA | - | - | 4 |
| מים | - | - | 31 |
| סך | 50 |
טבלה 4: ריכוזי ריאגנטים ליצירת תערובת של זיהוי ביוטין בשיטת CRISPR/Cas 12a.
דיון
במחקר זה, פיתחנו ואימתנו פרוטוקול אבחון מולקולרי מעשי לאיתור פתוגנים של דבורי דבש. זרימת העבודה משלבת ליזיס תאים מוכן להגברה, הגברה איזותרמית באמצעות RPA וזיהוי ספציפי ביותר באמצעות CRISPR/Cas12a. בין שיטות מיצוי ה-DNA הכימיות שהוערכו, פרוטוקול הליזה האלקליין של HotSHOT מציע יתרונות משמעותיים בעלות, מהירות ופשטות. הוא מייצר ביעילות ליזטים מוכנים להגברה ללא צורך בערכות מסחריות. שיטה זו הוכחה כאמינה ביישומים שונים, כולל זיהוי פתוגנים בדבורי דבש 14,15,16,17,18. התנאים האלקליין בטמפרטורה גבוהה משבשים את ממברנות התאים ואת קשרי המימן בין גדילי ה-DNA, ומשחררים DNA חד-גדילי המתאים להגברה במורד הזרם. למרות שהמגבלות הפוטנציאליות כוללות נוכחות של מעכבי PCR או נטרול תת-אופטימלי, ליזה אלקליין הוכחה כיעילה באורגניזמים מגוונים כגון ארכיאה19, חיידקים20 ופטריות14, ותואמת לשיטות PCR, qPCR ואיזותרמיות כמו LAMP21 ו-RPA12.
בידינו, מערכת RPA/CRISPR/Cas12a הראתה ספציפיות חזקה ורגישות משביעת רצון. השימוש ב-crRNAs המכוונים לאזורים שמורים בכל פתוגן איפשר זיהוי מדויק ללא תגובתיות צולבת ל-DNA מארח או מיקרואורגניזמים לא קשורים. יישומים קודמים של מערכת זו בדבורי דבש השיגו מגבלות זיהוי של כ-6.5 × 10² ו-6.2 × 101 עותקים למיקרוליטר עבור וירוסי כנף מעוותים מסוג A ו-B 8,12. עם זאת, בדיקות אלה לא עברו אופטימיזציה לתנאי שטח עם מיצוי מהיר של RNA ו/או DNA. בעבודה זו, התאמנו את השיטה במיוחד עבור פתוגנים של DNA - N. ceranae ו- L. passim - המאפשרים זיהוי תואם שדה.
התוצאות שלנו מראות כי RPA/CRISPR/Cas12a עלה על PCR קונבנציונלי בזיהוי דגימות חיוביות (16 לעומת 12), ככל הנראה בשל האות המשופר באמצעות פעילות המחשוף הביטחונית CRISPR/Cas12a, שנשארת יעילה גם בליזטים גולמיים. השיפור ברגישות בהשוואה לשיטות מבוססות PCR דווח בעבר במודלים שונים של פתוגנים כגון Yersinia enterocolitica22, Diaporthe aspalathi23 או Vibrio vulnificus24. יתר על כן, ניתוח כמותי חשף גבול שווה ערך לזיהוי של RPA/CRISPR/Cas12a ו-qPCR בתנאי מעבדה (~96 עותקי טפיל/מיקרוליטר). זה מרמז על ביצועים טובים של השיטה עם ספציפיות דומה ל-TaqMan qPCR, בשל זיהוי הרצף הנוסף המסופק על ידי ה-crRNA. יתר על כן, הבדיקה דורשת ציוד מינימלי בלבד, אינה תלויה בתרמו-סייקלר או בקורא פלואורסצנטי, וניתן לדמיין אותה באמצעות רצועות זרימה רוחביות כפי שפותח בעבר עבור פתוגנים אחרים25,26. זה מפשט את הפרשנות והופך את הבדיקה לנגישה ביותר עבור טכנאי שטח ודבוראים.
הפרוטוקול הנוכחי מניב תוצאות חזקות, אך שיפורים נוספים אפשריים. התאמת הבדיקה להתמקדות בפתוגנים אחרים של דבורים מבוססי DNA תדרוש רק תכנון מחדש של פריימרים ו-crRNAs של RPA. עבור נגיפי RNA, ניתן להרחיב את הפרוטוקול כך שיכלול שלב שעתוק הפוך (RT-RPA) כפי שהודגם בעבר עבור מספר מחלות זיהומיות נגיפיות26,27,28, כולל DWV-A ו-DWV-B בדבורי דבש15. בנוסף, סביר להניח שניתן להפחית את זמן הבדיקה הכולל - כיום בסביבות 180 דקות - באמצעות אופטימיזציה של פרוטוקול להפחתת התזמון של כל שלב. חלופה נוספת תהיה סיר אחד RPA/CRISPR/Cas12a המשלב את כל ריאגנטים RPA/CRISPR/Cas12a בתגובה אחת. מתודולוגיית הכל-באחד זו יושמה בהצלחה לאיתור מגוון רחב של פתוגנים נגיפיים וחיידקיים 25,26,29. מלבד ולמרות שבדיקות ssDNA הורחבו והפכו פופולריות לזיהוי Cas12a, כמה מחקרים דיווחו על הקיבולת של Cas12a של בדיקות DNA דו-גדילי (dsDNA) שעשויות להיות שימושיות לבדיקה בשל היציבות של dsDNA30. זה יוביל לזמן עד לתוצאה של פחות מ-30 דקות, מה שישפר עוד יותר את הישימות בשטח. ליופיליזציה של ריאגנטים RPA ו-CRISPR תשפר גם את יציבות הריאגנטים ותבטל את הצורך בשרשרת קירור, ותגדיל את ההתאמה לסביבות מרוחקות או דלות משאבים. הביצועים המוצלחים של RPA/CRISPR/Cas12a באמצעות ריאגנטים ליופיליים נקבעו בהצלחה לזיהוי Actinobacillus pleuropneumonia31 ווירוסים זיהומיים בדרכי הנשימה28,32, כולל SARS-Cov226.
לסיכום, מחקר זה מציג פלטפורמת אבחון מולקולרית מלאה בשטח, חסכונית וניידת לזיהוי פתוגנים של דבורי דבש. מתודולוגיה זו, כפי שהיא, תימשך 180 דקות בערך, אך התזמון הכולל שלה עדיין יכול להיות נתון לשיפורים נוספים. בעוד שהתמקדנו ב-L. passim ו-Nosema spp. כמטרות הוכחת רעיון, המערכת מודולרית וניתנת להתאמה למגוון רחב של פתוגנים דבורים מבוססי DNA (כלומר, זחלי Paenibacillus או Melisococcus plutonious) כמו גם לניטור סימביונטים קומנסליים מעניינים. גישה זו מרחיבה את הגישה לאבחון מולקולרי מעבר להגדרות מעבדה מסורתיות ותומכת באסטרטגיות התערבות מוקדמת בכוורת. באופן רחב יותר, התוצאות שלנו מדגימות את הכדאיות של טכנולוגיות מבוססות CRISPR ביישומי אבחון מוכנים לשטח.
גילויים
למחברים אין ניגודי אינטרסים לחשוף.
תודות
עבודה זו נתמכה על ידי המענק "כלים מולקולריים חדשים לניטור מהיר של מחלות דבורי דבש במכוורות במחוז גרנדה" (GOPG-GR-23-0002) תחת הקריאה סיוע לקבוצות תפעוליות של איגוד החדשנות האירופי (AEI) בפרודוקטיביות חקלאית וקיימות של ממשלת אנדלוסיה. אנו מכירים גם בתמיכה של התוכנית הספרדית ליצירת ידע ולחיזוק מדעי וטכנולוגי של מערכת R+D+I, מענק PID2021-126938OB-I00 במימון MCIN/AEI/10.13039/501100011033 ועל ידי "ERDF/EU". הערכנו מאוד את העזרה והמשאבים שסיפקו כוורנים של Asociación de Pequeños Apicultores de Granada (APAG) ו-Cooperativas Agroalimentarias de Granada (FAECA). המחקר הוא חלק מעבודת הדוקטורט של ד. פדרו גרסיה אולמדו. תכנית דוקטורט בביולוגיה בסיסית ומערכתית (אוניברסיטת גרנדה, UGR).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.2 מ"ל צינורות אפנדורף נטולי DNA ו-RNAse | אקסיג'ן | MTC-02-C | |
| 1.5 מ"ל צינורות אפנדורף נטולי DNA ו-RNAse | אקסיג'ן | MTC-150-C | |
| 10 μ L טיפים מסוננים עם שמירה נמוכה | מרפאות מעבדה | 5-063-P5-0 | |
| 100 μ L טיפים מסוננים עם שמירה נמוכה | מרפאות מעבדה | 5-120-פ5-0 | |
| 1000 μ L טיפים מסוננים עם שמירה נמוכה | מרפאות מעבדה | 5-203-פ4-0 | |
| סדרת BH-200 מחמם בלוק יבש סטיוארט | קול-פארמר | EW-36610-00 | |
| מים שטופלו על ידי DEPC | אמביקון | AM9906 | |
| EDTA | סיגמא-אולדריץ' | 798681 | |
| EnGen Lba Cas12a (Cpf1) | מעבדות ביולוגיות של ניו אינגלנד | M0653T | |
| סיגמא-אולדריץ' | סיגמא-אולדריץ' | 64-17-5 | |
| HCl | סיגמא-אולדריץ' | 7647-01-0 | |
| עלי מיקרו-צינור | פישרברנד | 12141364 | |
| Milenia GenLine HybriDetect | Комен | MGHD 1 | |
| נאוה | סיגמא-אולדריץ' | 221465 | |
| ערכת RPA TwistAmp נוזלי בסיסי | טוויסטאמפ | TALQBAS01 | |
| להבי אזמל | סוואן-מורטון | 201 | |
| יחיד שאנל פיפט PIPETMAN P1000L מיקרופיפטה פליטת מתכת | גילסון | F144059M | |
| יחיד שאנל פיפט PIPETMAN P100L מיקרופיפטה פליטת מתכת | גילסון | F144057M | |
| יחיד שאנל פיפט PIPETMAN P10L פליטת מתכת מיקרופיפטה | גילסון | F144055M | |
| נתרן היפוכלוריט | |||
| גע במערכת זיהוי PCR בזמן אמת | ביוראד | CFX96 | |
| תריס-הידרוכלוריד | סיגמא-אולדריץ' | T1503 | |
| טוויסטאמפ נוזלי בסיסי | טוויסט | TALQBAS01 |
מקורות
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
הדפסות חוזרות והרשאות
תיקון
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
