כאן, אנו מתארים פרוטוקול חוץ גופני למידול נזקי היפוקסיה/חמצון מחדש בתאי אפיתל פרוקסימליים פרוקסימליים מטבוליים מאוד. מודל זה נועד לגרום לנזק שנגרם מלחץ מטבולי, שניתן למדוד באמצעות ביטוי סמני נזק לצינורות הפרוקסימליים והערכת תפקוד הנשימה המיטוכונדריאלי.
מאמר שיטה
מידול פגיעות היפוקסיה/חמצון מחדש בתאי אפיתל צינוריים פרוקסימליים
במאמר זה
סיכום
תקציר
השתלת כליה מהווה כ-60%-65% מכלל האיברים המוצקים המושתלים. רוב הכליות התורמות מתקבלות מאנשים שנפטרו, ודורשות שימור קר ממושך, דבר התורם הידוע לתוצאות גרועות של השתלות. למרות אסטרטגיות השימור הנוכחיות, פגיעת איסכמיה-ריפרפוזיה (IRI) נותרה תוצאה בלתי נמנעת של הפסקת זרימת דם חולפת, המובילה למחסור בחמצן ובחומרים מזינים. בתוך הנפרון, תאי אפיתל צינוריים פרוקסימליים (PTECs) של מקטע S3 רגישים במיוחד ל-IRI בשל הביקוש המטבולי הגבוה שלהם ותלותם בזרחון חמצוני מיטוכונדריאלי. ברמה המולקולרית, IRI משבש את חילוף החומרים המיטוכונדריאלי ומפחית את ייצור ה-ATP, פוגע בצרכי האנרגיה של תאי אפיתל צינוריים פרוקסימליים (PTECs) ומקדם אפופטוזיס ונמק. כדי לחקור מנגנונים אלו ולהעריך אסטרטגיות טיפוליות פוטנציאליות, חיוניים מודלים עמידים וניתנים לשחזור של IRI כלייתי במבחנה, אשר מסכמים במדויק את הפגיעות המטבולית של PTECs. כאן, אנו מתארים פרוטוקול להשראה והערכה של פציעות היפוקסיה/חמצון מחדש (H/R) ב-PTECs מוותרים בעכברים (IM-PTECs). הפרוטוקול כולל מידע מפורט על הרכב התווך ותנאי התרבית הנדרשים לשמירה על תאים אלו, ואחריו השראת פגיעת H/R דרך היפוקסיה מבוקרת ופאזני חמצון מבוקרים, המדמים במידה רבה את אירועי האיסכמיה והרפרפוזיה בכליות שהושתלו. מודל זה מספק פלטפורמה חשובה להערכת השפעות של התערבויות שונות על תאי אפיתל כלייתי שנחשפו לפגיעה ב-H/R. השפעת טיפולים אלו ניתנת להערכה באמצעות ניתוח ביטוי הסמנים הקשורים לנזק פיזיותרפיה, וכן באמצעות הערכת תפקוד הנשימה המיטוכונדריאלי. יחד, הקריאות הללו מציעות תובנות מכניות לגבי יעילות התרכובות ותהליכי התאוששות תאית, התומכות בפיתוח טיפולים ממוקדים ל-IRI בכליות.
מבוא
לפי המצפה העולמי לתרומה והשתלות, השתלות כליה מהוות כ-60%-65% מכלל השתלות האיברים המוצקים בעולם, כאשר מספר ההליכים שבוצעו בשנת 2023 גבוה פי שלושה מזה של השתלות כבד, כאשר האחרון הוא הסוג השני בשכיחתו. ב-61% מההשתלות שבוצעו באותה שנה, האיבר נוצר מתורמיםנפטרים 1, מה שדורש תקופת שימור ארוכה יותר בהשוואה להשתלות מתורמים חיים, שבהן זמן ההמתנה קצר משמעותית2. במהלך תקופת השימור הזו, הכליות נשמרות בדרך כלל באמצעות אחסון קר סטטי במטרה להאט את חילוף החומרים התאי, מה שמפחית את דרישת החמצן והאנרגיה וכך מגביל את הפציעה האיסכמית3. עם זאת, אחסון קר סטטי מספק הגנה חלקית בלבד, שכן הוא אינו יכול לתמוך במלואו במטבוליזם תאי או באספקת חמצן, מה שמוביל להפרעה מטבולית מתקדמת במהלך השימור 4,5. לחילופין, שימור נורתרמי אקס ויבו הפך לאסטרטגיה ישימה לשמירה על האיבר בטמפרטורה כמעט פיזיולוגית, ובכך לתמוך במטבוליזם תאי ובחמצון, ובכך להפחתת פגיעת איסכמיה-רפורוזיה (IRI)6.
עם זאת, במהלך השתלת כליה, פגיעה חריפה בכליה (AKI) הנגרמת מ-IRI היא תוצאה בלתי נמנעת. IRI נגרם מהפסקת זרימת הדם דרך האיבר, מה שמוביל לחוסר איזון בין היצע וביקוש לחמצן ולחומרים מזינים7. תהליך זה משפיע ישירות על תפקוד הכליה המושתלת, ומעלה את הסיכון לדחייה חריפה ולהפחתת תפקוד השתל לטווח ארוך 8,9.
PTECs - הנפוצים במיוחד בקורטקס הכלייתי - פגיעים במיוחד ל-IRI. תאים אלו מהווים כ-60%-70% מהאפיתל הצינורי ואחראים לספיגה מחדש של רוב הסינון הגלומרולרי, כולל מים, יונים, גלוקוז וחומצות אמינו. הפעילות המטבולית הגבוהה שלהם נתמכת על ידי רשת מיטוכונדריאלית נרחבת כדי לעמוד בדרישות ההובלה התלויות ב-ATP11. כתוצאה מכך, הם רגישים מאוד להפרעות מטבוליות, כגון מחסור בחמצן ותפקוד לקוי של המיטוכונדריה, שניהם תכונות מרכזיות של IRI12.
במהלך IRI, מחסור בחמצן משבש את הפוספורילציה החמצונית של המיטוכונדריה, מה שמוביל לדלדול ATP ולפגיעה בתפקוד הספיגה13,14. דבר זה מתחיל מעבר מטבולי מחמצון חומצות שומן (FAO) לגליקוליזה אנאירובית והפעלת מסלול הפנטוז פוספט, שלמרות שהוא מגן זמנית, אינו מספיק כדי לעמוד במלואו בדרישות האנרגטיות והחימצוןשל תאים אלו. אם הדיכוי של FAO נמשך בשלב התיקון, הצטברות שומנים16 וטוקסיות שומן17, מה שפוגע בתאים ופוגע ביכולת ההתחדשות שלהם18. מצב מטבולי לא מסתגל זה עלול בסופו של דבר לגרום לניוון צינורות, לפיברוזיס אינטרסטיאלי ולהתקדמות למחלת כליות כרונית19.
פגיעה מטבולית זו, הנגרמת על ידי פגום ב-FAO, פוגעת ביכולת לעמוד בדרישות האנרגטיות הגבוהות של צינור הכליה17,19. הדלדול ה-ATP והצטברות השומנים שנוצרים מקדמים תפקוד לקוי של מיטוכונדריה ויצירת מיני חמצן תגובתי, שמפעילים אותות פרו-דלקתיים וחדירת לויקוציטים 20,21,22. דלקת מתמשכת ופגיעות חמצוניות מערערות את יציבות שלמות המיטוכונדריה, מגבירה כשל אנרגטי ולבסוף גורמת למוות אפופטוטי ותאי נקרוטי23,24. במהלך שלב הפציעה החריף הזה, סמנים ביולוגיים מסוימים כגון מולקולת פגיעת הכליה 1 (KIM-1) וליפוקלין נויטרופילי ג'לטינאז (NGAL) מווסתים, ומשמשים כאינדיקטורים רגישים לנזק צינורי פרוקסימלי ול-AKI25 מוקדם.
לאחר פציעה חריפה, מנגנוני תיקון לא מסתגלים מקדמים הצטברות מטריצה חוץ-תאית מופרזת, סימן ההיכר של פיברוזיס כליה26. מבין רכיבי המטריצה החוץ-תאית, קולגן, במיוחד קולגן מסוג I (מקודד על ידי גן Col1a1), מצטבר במרחב הבין-תאי ותורם לניוון הצינורות ולאובדן הפרנכימה התפקודית27. שינוי פיברוטי זה מונע בעיקר על ידי הזדקנות צינורית ומעבר אפיתל למזנכימלי חלקי (pEMT) בתאי אפיתל צינוריים, מה שמוביל בסופו של דבר לירידה בתפקוד הכליות 28,29,30. הופעת pEMT כלייתי ופיברוזיס מסייעת בהתקדמות מ-AKI למחלת כליות כרונית (CKD), מה שמוביל לאובדן בלתי הפיך של תפקוד הכליה ולפגיעה בהישרדות השתל31,32.
בפרוטוקול זה, אנו מתארים מודל במבחנה של פגיעת H/R המשתמש בתאי אפיתל צינוריים פרוקסימליים (IM-PTECs) שהונצחו על ידי עכבר SV40, שנחשפו לתנאי H/R מבוקרים. רוב המחקרים הפרה-קליניים על IRI כלייתי הסתמכו באופן מסורתי על מודלים של בעלי חיים, המשכפלים את התגובות הוסקולריות והחיסוניות המורכבות של הכליה, אך כרוכים בעלויות גבוהות יותר, חששות אתיים ושונות ביולוגית גבוהה בהרבה 33,34. מגבלות אלו האטו את התפתחות מערכות משלימות מבוססות תאים, הרלוונטיות למחקרים מכניים מפורטים ובעלי תפוקה גבוהה. מערכת ניסויית זו מאפשרת סימולציה שחזורית של מחסור בחמצן ושיקום, המדמה תכונות מרכזיות של IRI שנצפו בכליות מושתלות. המודל משמש ככלי חשוב לחקר המנגנונים התאיים והמולקולריים העומדים בבסיס פגיעה צינורית, ביטוי סמנים ביולוגיים ותגובות פיברוטיות בסביבה מבוקרת. יתרה מזאת, היא מספקת פלטפורמה רלוונטית לסינון והערכת אסטרטגיות טיפוליות פוטנציאליות שמטרתן למנוע או להפחית נזק איסכמי ולשפר תוצאות לאחר השתלה.
פרוטוקול
התאים ששימשו בפרוטוקול זה לא בודדו בהקשר של מחקר זה. הם היו מבודדים בעבר והיו זמינים על ידי חוקרים אחרים35. לכן, לא בוצעו ניסויים חדשים בבעלי חיים, ולא נדרשה אישור אתי לעבודה הנוכחית.
1. תרבות IM-PTEC
- הכינו מדיום L3 כפי שמתואר בטבלה 1.
- הפשיר בקבוקון של IM-PTECs. תרבית של כ-1 על10 תאים בטמפרטורה של 33 מעלות צלזיוס בתנור לח בתנאים סטנדרטיים (5%CO2,O 2 אטמוספרי) עד למפגש של 80% (בדרך כלל מושג לאחר 3 ימים).
הערה: IM-PTECs מבודדים מעכברי אימורטו. לפרוטוקול מפורט על בידוד IM-PTEC, יש לעיין בסעיף35. - תאי תת-תרבית פעמיים בשבוע ביחס חלוק של 1:10. למעבר, נתק את השכבה המונולרית הדבקה באמצעות 0.05% טריפסין-אדטה למשך 2-3 דקות בטמפרטורה של 33 מעלות צלזיוס, מנטרל אותו עם מדיום גדילה מלא, וזרע מחדש בבקבוקי תרבית טריים.
| רכיב | כמות/ריכוז מדיה סופי |
| DMEM/F12 | 500 מ"ל |
| סרום עגל עוברי (FCS) | 10% |
| פניצילין | 10,000 U/mL |
| סטרפטומיצין | 10,000 מיקרוגרם/מ"ל |
| L-גלוטמין | 0.02 מיקרומטר |
| אינסולין | 5 מיקרוגרם/מ"ל |
| טרנספרין | 5 מיקרוגרם/מ"ל |
| סודיום סלניט | 5 מיקרוגרם/מ"ל |
| תריודוטירונין | 40 pg/mL |
| הידרוקורטיזון | 36 ng/mL |
| גורם גדילה אפידרמלי | 20 ng/mL |
| אינטרפרון γ (IFN-γ) | 10 ng/mL |
טבלה 1: הרכב בינוני L3.
2. תרבות מגבילה של IM-PTECs
- תת-תרבית כפי שמתואר בשלב 1.3 והעברת כל תליית התא מבקבוק T-25 אחד של IM-PTECs לבקבוק T-75 המכיל כ-10 מ"ל מדיום L3 ללא אינטרפרון-γ (IFN-γ). תרביות ב-37 מעלות צלזיוס בתנאים סטנדרטיים עד למפגש של 80% (בדרך כלל מושגת לאחר 3 ימים).
- תת-תרבית כפי שמתואר בשלב 1.3 והעברת כל תליית התא מבקבוק T-75 אחד לשני בקבוקי T-175 המכילים כ-20 מ"ל מדיום L3 ללא IFN-γ. תרביות ב-37 מעלות צלזיוס בתנאים סטנדרטיים עד למפגש של 80% (בדרך כלל מושגת לאחר 3 ימים).
- פלטות IM-PTEC לניסויים על ידי ניתוק תאים מתרביות מתאחדות באמצעות 0.05% טריפסין-EDTA, השעתם מחדש במדיה מלאה, וזריעה בצפיפות הרצויה (בערך 1 x 10⁵). השתמש בלוחות 6 בארות לניתוח ביטוי סמנים מולקולריים, או בלוחות מיקרו לתרבות תאים של 96 בארות המתאימות למחקרי נשימה מיטוכונדריאלית.
הערה: לניסויים אחרים, השתמשו בפורמט תרבית מתאים.- בעת ציפוי תאים במיקרופלטת תרבית תאים של 96 בארות למחקרי נשימה מיטוכונדריאלית, השאר את ארבעת הבארות בפינות ריקות כדי להשתמש בהם כתיקון רקע. השאירו את המיקרופלטה לשעה בטמפרטורת החדר לפני שמניחים אותה באינקובטור כדי לאפשר לתאים להתיישב.
3. הליך היפוקסיה/חמצון מחדש (איור 1)
- רענון IM-PTECs על ידי הסרת מדיה תרבית והוספת מדיום L3 טרי ללא IFN-γ (0.1 מ"ל לבאר ללוחות עם 96 בארות או 2 מ"ל לבאר ללוחות עם 6 בארים). הניחו תאים באינקובטור היפוקסיה ב-1% מעלות2, 5% CO2, בטמפרטורה של 37 מעלות צלזיוס למשך 48 שעות.
- הסר תאים מדוגמת ההיפוקסיה ורענן אותם עם מדיום L3 ללא IFN-γ. הכניסו תאים לאינקובטור תרבית תאים בתנאי O2 סטנדרטיים ו-5%CO2 ב-37°C למשך 24 שעות.
הערה: ניתן להשיג תנאים היפוקסיים באמצעות אינקובטור היפוקסיה או באמצעות תא היפוקסיה מודולרי המחובר לאספקת גז מבוקרת.
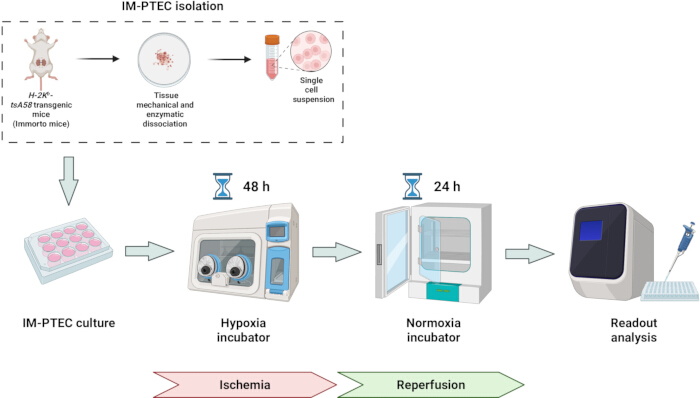
איור 1: ייצוג סכמטי של מודל H/R במבחנה בתאי אפיתל צינוריים פרוקסימליים מונצחים (IM-PTECs). IM-PTECs שמקורם בעכברי H-2Kb-tsA58 טרנסגניים (Immorto) גודלו בתנאים נורמוקסיים, נחשפו להיפוקסיה (1% O2, 48 שעות), ולאחר מכן עברו חמצון מחדש (תנאי O2 סטנדרטיים, 24 שעות), לניתוח קריאה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
4. ניתוח ביטוי של סמנים מולקולריים
- בידוד RNA
- הוסיפו 800 מיקרוליטר של תגובת בידוד RNA לכל באר בלוח בן 6 בארות. דגרו במשך 5 דקות בטמפרטורת החדר. העבר את הדגימות לצינורות מיקרוצנטריפוגות 1.5 מ"ל ללא RNAse.
- הוסיפו 200 מיקרוליטר כלורופורם וערבבו היטב במשך 15 שניות על ידי פיפטינג. דגרו בטמפרטורת החדר למשך 2-3 דקות.
- צנטריפוגה בעוצמה של 12,000 x g ב-4 מעלות צלזיוס למשך 12 דקות. העבר את הפאזה העליונה המימית לצינור מיקרוצנטריפוגה בנפח 1.5 מ"ל ללא RNAse.
- הוסיפו 500 מיקרוליטר איזופרופנול. דגרו בטמפרטורת החדר למשך 10 דקות. צנטריפוגה ב-12,000 x g ב-4 מעלות צלזיוס למשך 10 דקות.
- השליך את הסופרנטנט ושוטף את הכדור עם 1 מ"ל של 70% אתנול. צנטריפוגה ב-5,000 x גרם בטמפרטורה של 4 מעלות צלזיוס למשך 5 דקות. זרוק את הסופרנטנט.
- ייבשו את הכדור באוויר. המיס את הכדור ב-12 מיקרוליטר מים ללא RNAse.
- חממו את הדגימה בטמפרטורה של 56 מעלות צלזיוס למשך 15 דקות. למדוד ריכוז RNA בספקטרופוטומטר UV-Vis מיקרו-נפח.
הערה: תמיד השאירו את הדגימות על קרח בין שלבי הדגירה כדי למנוע התדרדרות RNA.
- תעתיק הפוך
- על קרח, יש להוסיף את רכיבי התגובה הבאים לצינור מיקרוצנטריפוגה חופשי מ-RNAse בנפח 0.2 מ"ל: 10 מיקרוליטר מאסטר מיקס (2x), 2 מיקרוליטר תערובת אנזימים, 1-5 מיקרוגרם RNA, ועד 20 מיקרו-ליטרH2O. ללא נוקליאז.
- מערבבים בעדינות ודגרו בטמפרטורה של 25 מעלות צלזיוס למשך 10 דקות, ואז דגירה בטמפרטורה של 50-55 מעלות למשך 10 דקות.
- השבית את התגובה על ידי חימום ב-85 מעלות צלזיוס למשך 5 דקות וקירור על הקרח. מדלל cDNA ביחס 1:5 או 1:10.
- PCR כמותי בזמן אמת (RT-qPCR)
- הכינו ערכות פריימר על ידי ערבובם בריכוז סופי של 10 מיקרומום (טבלה 2).
- לכל גן למדידה, יש להכין תערובת qPCR בזמן אמת (RT) הכוללת את החומרים הבאים לכל באר: 5 מיקרוליטר של RT-qPCR Master Mix; 0.4 מיקרוליטר של פריימר קדמי 10 מיקרומול, 0.4 מיקרוליטר של פריימר הפוך 10 מיקרומון, ו-2.2 מיקרוליטר H2 O.
- הוסף 8 מיקרוליטר מתערובת RT-qPCR לכל באר של פלטת PCR עם 384 בארים. הוסיפו 2 מיקרוליטר של דגימת cDNA לכל באר, והשאירו טיפה בקצה הבאר.
- לאחר הוספת כל הדגימות, הקישו בעדינות על הצלחת עד שכל הטיפות נופלות לבארות. לאטום את הפלטה היטב עם הממברנה שלו. סובב את פלטת ה-PCR עם 384 בארות.
- מדדו במערכת RT qPCR עם התוכנית הבאה: 98 מעלות צלזיוס ל-30 שניות, 40 מחזורים של 98 מעלות צלזיוס ל-10 שניות, אחריהם 60 מעלות צלזיוס ל-30 שניות, ועקומת התכה ב-95 מעלות צלזיוס.
| גן | רצפי פריימר |
| קים-1 | חלוץ: 5' - TGGTTGCCTTCCGTGTCTCTCT |
| R: 5' - TCAGCTCGGGAATGCACAA | |
| נגאל | F: 5' - ATGTCACCTCATCCTGGTCAG |
| R: 5' - GCCACTTGCACATTTAGCTCTG | |
| Acta2 | חלוץ: 5' - GCCATTTTTTTGGGATGGA |
| R: 5' - CCCCTGACAGGACGTGTTA | |
| קולון 1a1 | קבוצה: 5' - CCTCAGGGTATTGCTGGACAAC |
| R: 5' - CAGAAGGACCTTTTGCCAGG |
טבלה 2: רצפי פריימר המשמשים ל-RT-qPCR.
5. הערכת תפקוד נשימתי מיטוכונדריאלי
- יום לפני הבדיקה
- הפעל את אנלייזר קצב צריכת החמצן (OCR)/קצב החמצה החוץ-תאית (ECAR) ותן לו להתחמם לפחות 5 שעות לפני הניסוי.
- הרטבו מחסנית חיישן בטמפרטורה של 37 מעלות צלזיוס באינקובטור ללאCO2 במהלך הלילה.
- יום הבדיקה
- הכינו מדיום בדיקה למיקרופלטה אחת של תרבית תאים באורך 96 בארות המכילה: 33.4 מ"ל מדיום DMEM pH 7.4; 0.875 מ"ל גלוקוז 1 מ' (ריכוז סופי 25 מ"מ); 0.35 מ"ל פירובט 100 מ"מ (ריכוז סופי 1 מ"מ); ו-0.35 מ"ל גלוטמין 200 מ"מ (ריכוז סופי של 2 מ"מ).
- הכינו תמיסות מעכבים לפי טבלה 3.
- הסר את מחסנית החיישן המורכבת מהאינקובטור. טעין 25 מיקרוליטר מכל מעכב ליציאה המתאימה לו באמצעות פיפטה רב-ערוצית ומדריך טעינה.
- הסר את מדיום גידול תרביות התאים מהמיקרופלט של תרבית התאים. יש להוסיף 175 מיקרוליטר של מדיום בדיקה מחומם מראש (37 מעלות צלזיוס) לכל באר באמצעות פיפטה רב-ערוצית.
- הניחו את מיקרופלטה של תרבית התאים באינקובטור ללאCO-2 בטמפרטורה של 37 מעלות צלזיוס למשך 45-60 דקות לפני הבדיקה.
- הניחו את לוח הכיול עם מחסנית החיישן הטעונה באנלייזר OCR/ECAR לכיול.
- הנח את המיקרופלטה של תרבית התאים במכשיר למדידה.
- לאחר ההרצה, שמור את מיקרופלטת תרביות התאים לכימות החלבון הכולל לצורך נרמול נתונים.
| [כדור מחסנית] (μM) | [מדיום בדיקה] (μM) | פורט A | פורט B | נמל C | |
| אוליגומיצין | 12 | 1.5 | 8.4 מיקרוליטר | ||
| FCCP | 9 | 1 | 6.3 מיקרוליטר | ||
| אנטימיצין A | 25 | 2.5 | 17.5 מיקרוליטר | ||
| רוטנונה | 12.5 | 1.25 | 8.75 מיקרוליטר | ||
| מדיום הבדיקה | 3.5 מ"ל | 3.5 מ"ל |
טבלה 3: פתרונות מעכבים להערכת נשימת מיטוכונדריה.
תוצאות
בוצעה תחילה אימות מסלול זמן כדי לקבוע את תנאי ההיפוקסיה/חמצון מחדש (H/R) האופטימליים לשחזור פציעה איסכמית ב-IM-PTECs. הפעלה של Caspase-3, סימן היכר של פגיעת איסכמיה-ריפרפוזיה כליייתית הן ב-vivo והן במבחנה, שימשה כאינדיקטור לנאמנות המודל36,37. מצאנו כי 48 שעות של היפוקסיה ואחריהן 24 שעות של חמצון מחדש יצרו את העלייה הגדולה ביותר בפעילות הקספאז-3. הקיימות של התאים, שנבדקה על ידי מבחן MTT, נותרה דומה לזו של בקרות נורמוקסיות בתנאים אלו, מה שמעיד שבעוד שהופעל איתות אפופטוטי, התאים נותרו עמידים לבדיקות פרמקולוגיות מאוחרות יותר (איור משלים 1). פרוטוקול מאומת זה שימש לאחר מכן לגרימת פגיעת H/R באמצעות היפוקסיה/חמצון מבוקרת של IM-PTECs.
לאחר הפגיעה האיסכמית, בוצע RT-qPCR כדי לקבוע את הביטוי של מספר סמנים לנזק לכליות (איור 2). RT-qPCR הראה שבהקשר של IRI, הביטוי של Kim-1 38,39 ו-Ngal40,41, סמנים ידועים לפגיעה חריפה בכליות, עלה באופן משמעותי. בנוסף, הביטוי של Acta242,43 ו-Col1a1 44,45,46, סמנים של pEMT/פיברוזיס בכליות, עלה גם הוא. בנוסף להיותו סמן pEMT/פיברוזיס בכליות, ביטוי Col1a1 יכול להיות קשור לחומרת מחלת כליותכלית (CKD) 47. /p>
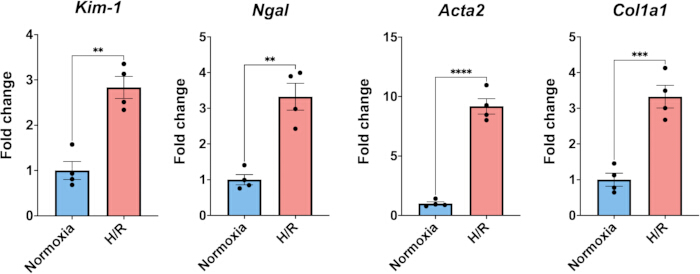
איור 2: ביטוי מולקולרי של סמני פגיעות כליות תחת נורמוקסיה או היפוקסיה/חמצון מחדש (H/R). לאחר H/R, הביטוי של סמנים מולקולריים של פגיעת הכליה Kim-1, Ngal, Acta2 ו-Col1a1 עולה משמעותית ב-IM-PTECs. הנתונים מוצגים כממוצע ± שגיאת תקן ממוצעת (SEM) מארבעה שכפולים ביולוגיים לכל מצב. המשמעות הסטטיסטית הוערכה באמצעות מבחן t לסטודנט דו-זנבי לא מזווג. רמות המובהקות מצוינות כך: p < 0.05 (*), p < 0.01 (**), p < 0.001 (***), ו-p < 0.0001 (****). אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
נערכו גם מחקרי נשימה מיטוכונדריאלית כדי לקבוע את קיבולת הנשימה המיטוכונדריאלית לאחר H/R (איור 3). באמצעות מדידת קצב צריכת החמצן (OCR), קבענו כי לאחר האתגר האיסכמי, כל פרמטרי הנשימה המיטוכונדריאלית (נשימה בסיסית, ייצור ATP, דליפת פרוטונים, נשימה מקסימלית וקיבולת עודפה) הופחתו, מה שמעיד על פגיעה במטבוליזם המיטוכונדריאלי.
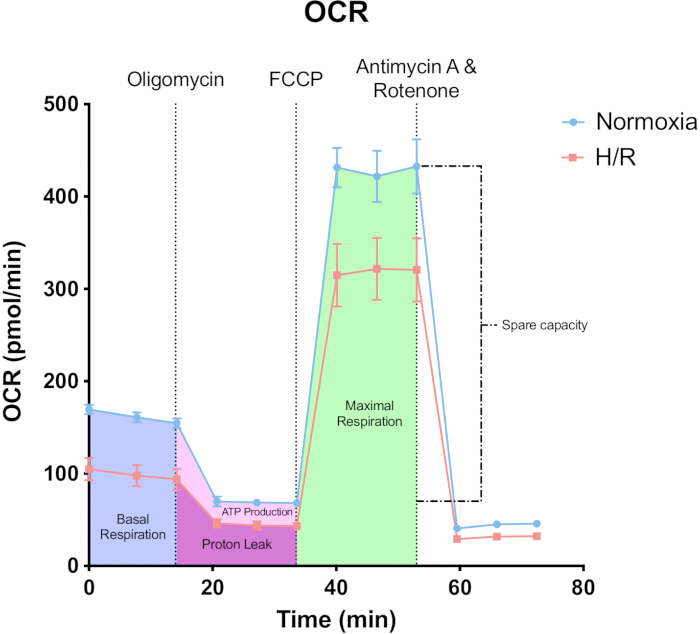
איור 3: קצב צריכת חמצן (OCR) ב-IM-PTECs בתנאים נורמוקסיים או היפוקסיים. לאחר היפוקסיה/חמצון מחדש (H/R), IM-PTECs מראים ירידה בתפקוד הנשימה המיטוכונדריאלי. הנשימה המיטוכונדריאלית הוערכה על ידי הוספת מעכבי שרשרת העברת אלקטרונים ברצף: אוליגומיצין, FCCP (קרבוניל ציאניד-p-טריפלואורומטוקסיפנילהידראזון), אנטימיצין A ורוטנון. הנתונים מוצגים כממוצע ± שגיאת תקן ממוצעת (SEM) מארבעה שכפולים ביולוגיים לכל מצב. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
תוצאות אלו מאשרות כי פרוטוקול H/R גורם ביעילות לשינויים מולקולריים ומטבוליים התואמים לפגיעה כלייתית איסכמית ב-IM-PTECs48,49. לכן, פרוטוקול זה מספק מסגרת שימושית לשחזור מצבים דמויי איסכמיה כליית-רפרפוזיה במבחנה.
איור משלים 1. חיוניות תאים ופעילות קספאז-3 בתנאי נורמוקסיה והיפוקסיה/חמצון מחדש (H/R). (א) חיוניות תאים. חיוניות התאים הוערכה באמצעות בדיקת MTT לאחר חשיפה לנורמוקסיה או היפוקסיה/חמצון מחדש (H/R). התוצאות מבוטאות כקיימות יחסית (%) שמנורמל לבקרות נורמוקסיות. (ב) קספאז חצוף-3. פעילות קספאז-3 מפוצלת (nmol/min/mg חלבון) נמדדה בתאים שנחשפו למשכי זמן שונים של נורמוקסיה (N), היפוקסיה (H) ורפוזיה חוזרת (R). הנתונים מוצגים כממוצעים ± SEM, וכל נקודה מייצגת שכפול ביולוגי בודד. אנא לחצו כאן להורדת הדמות הזו.
דיון
רוב הנתונים הפרה-קליניים על AKI המושרה על ידי IRI כלייתי נוצרים באמצעות מודלים in vivo 50,51,52,53, בשל מחסור במודלים מבוססים במבחנה. דבר זה, בנוסף לזמינות המוגבלת של קווי תאים אפיתליים פרוקסימליים פרוקסימליים מאופיינים היטב, מגביל את המחקר במבחנה, מה שהופך את פיתוח הפרוטוקול לנכס יקר ערך. שיטה זו מספקת פלטפורמה נגישה וניתנת לשחזור רבה יותר לחקר מנגנוני פגיעות בריאות/שיקום בכליות בתנאים מבוקרים, תוך הפחתת הצורך בשימוש בבעלי חיים.
יתרה מזאת, פרוטוקול זה עושה שימוש בעיקר בציוד מעבדה סטנדרטי, ומקל על יישומו ללא צורך במכשירים מיוחדים ויקרים. היוצא מן הכלל היחיד הוא הדרישה לדוגמת היפוקסיה, הזמינה בדרך כלל במעבדות מחקר סרטן לשחזור מיקרוסביבות גידול היפוקסיות 54,55,56. נגישות זו תומכת באימוץ רחב יותר ומקדמת שחזוריות בין מעבדות שונות.
שיקול קריטי בפרוטוקול זה הוא התרבות הנכונה של IM-PTECs. יש לתרבית תאים בטמפרטורה של 33 מעלות צלזיוס ולהוסיף IFN-γ כדי למנוע ירידה בפעילות SV40. לפני פרוצדורות ניסוי, IM-PTECs מועברים לתנאים מגבילים למשך 7 ימים לפני תחילת הניסויים. תרבית מגבילה מושגת על ידי העלאת הטמפרטורה ל-37 מעלות צלזיוס והסרת אינטרפרון-גמא (IFN-γ) מהמדיום למשך שבוע, מה שמפחית את ביטוי אנטיגן ה-T הגדול של SV40 - חלבון ויראלי המקודד על ידי נגיף סימיאן 40, המשמש להנצחת התאים 35,57 – מה שגורם לתאי35,57 לאבד את מעמדם האלמותי ולקידום פנוטיפ ממיין ורלוונטי פיזיולוגית 58. ראוי לציין כי IM-PTECs עלולים לפתח ואקואולות ציטופלזמיות בולטות לאחר מספר ימים בתרבית; אם מתרחשת ואקום, יש להשמיט את הידרוקסיקורטיזון מחומר התרבית כדי למנוע או להפוך את השינוי הזה.
בעוד שהשימוש ב-PTECs מונצחים מציע יתרון של יציבות וקלות תחזוקה, חוקרים עשויים גם לשקול להשתמש בתאי אפיתל צינוריים פרוקסימליים ראשוניים כדי להגדיל את הרלוונטיות הפיזיולוגית. עם זאת, PTECs ראשוניים בעכברים מציגים שונות גדולה יותר בין תורםלתורם 59.60 ויש להם יכולת רבייה מוגבלת61,62, מה שהופך אותם לפחות מתאימים לניסויים בעלי תפוקה גבוהה או לניסויים ארוכי טווח. השימוש בהם עשוי להיות מתאים יותר למחקרי אימות או בעת חקר תגובות ספציפיות שמקורן מטופלים
פרוטוקול זה מספק פלטפורמה חשובה לחקר המנגנונים המולקולריים שמאחורי פגיעת H/R, זיהוי והערכה של גישות טיפוליות פוטנציאליות, וחקר תגובות תאיות כגון דלקת, לחץ חמצוני ונתיבי מוות תאים בסביבה מבוקרת63,64.
עם זאת, מגבלה חשובה של מודל זה היא שהוא אינו משחזר תכונות מסוימות של איסכמיה שנצפו בהשתלת כליה, כגון היפותרמיה וחוסר חומרים מזיניםבמהלך אחסון קר. מצבים אלו משפיעים באופן ניכר על חילוף החומרים התאים ודפוסי הפציעות, והיעדרם עשוי להגביל את תרגום הממצאים להקשר הקליני65,66.
לסיכום, מודל H/R זה במבחנה ב-IM-PTECs מספק גישה ניתנת לשחזור, נגישה ואתית ללימוד פגיעות איסכמיה-רפווזיה בכליות בתנאים מבוקרים. למרות שהוא אינו מסכם במלואו את המורכבות של איסכמיה בחיים הקיימת, הוא מהווה כלי משלים חשוב להבהרת מנגנונים תאיים, סינון מועמדים טיפוליים והפחתת התלות בניסויים בבעלי חיים במחקר כליות.
גילויים
המחברים מצהירים שאין להם ניגודי עניינים עם היצירה הזו לחשוף
תודות
מריאנו מרין-בלסקז משתייך ל"תוכנית דוקטורדו במדעי הבריאות" מהאוניברסיטה הקתולית של מורסיה (UCAM). העבודה בקבוצת רובן רבאדן-רוס ורובן זפאטה-פרז נתמכת על ידי מענק ממשרד התעשייה, Innovación y Universidades - Proyectos de Generación de Conocimiento 2023 (PID2023-147560OA-I00). רובן רבאדן-רוס נתמך על ידי מענק מקרן המחקר - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024). AT נתמכת כלכלית על ידי מענק הצטרפות NWO-FAPESP להזדקנות בריאה שבוצע על ידי Zonmw (מס' 457002002) ומענק כישרונות צעירים מ-Nierstichting.
המחברים מודים בהכרת תודה לאוניברסיטת מורסיה (UM) ולאוניברסיטה הקתולית של מורסיה (UCAM) על מתן גישה למתקנים שלהן שבהם הוקלטו קטעי וידאו.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| לוח qPCR עם 384 בארות | מערכות ביולוגיות יישומיות | 4309849 | |
| צנטריפוגה | אורטואלרסה | Biocen22R | |
| כלורופורם | VWR | 0757-500ML | |
| DMEM/F12 | גיבקו | 21331020 | |
| גורם גדילה אפידרמלי | סיגמא-אלדריץ' | E9644 | |
| אתנול | PanReac AppliChem | 141086.1214 | |
| FCS | ביוווסט | S181B-500 | |
| בלוק חימום | אפנדורף | תרמומיקסר C | |
| הידרוקורטיזון | סיגמא-אלדריץ' | H0135 | |
| חממת היפוקסיה | ממרט | ICO 50med | |
| IFN-& Gamma; | ProspecBIo | CYT-358 | |
| חממה | ממרט | ICO 105 | |
| איזופרופנול | VWR | 0918-1L | |
| זה | גיבקו | 41400045 | |
| L-גלוטמין | גיבקו | 25030081 | |
| פיפטה רב-ערוצית | אפנדורף | 3125000052 | |
| חממה ללא CO2 | |||
| פריימרים ל-PCR | יורופינס גנומיקס | ||
| פניצילין - סטרפטומיצין | גיבקו | 15140-122 | |
| qPCR Master Mix | NZYTech | MB22303 | |
| מערכת qPCR בזמן אמת | מערכות ביולוגיות יישומיות | QuantStudio 5 | |
| מיקס מאסטר של תמלול הפוך | NZYTech | MB12502 | מכיל תערובת אנזימים |
| מים ללא RNAse | הייקלון | SH3053802 | |
| ערכת בדיקת מאמץ של Seahorse XF Cell Mito | אג'ילנט | 103015-100 | מכיל אוליגומיצין, FCCP, אנטימיצין A ורוטנון |
| Seahorse XF DMEM בינוני | אג'ילנט | 103575-100 | |
| Seahorse XF Glucose | אג'ילנט | 03577-100 | |
| סיהורס XF גלוטמין | אג'ילנט | 103579-100 | |
| סיהורס XF פירובה | אג'ילנט | 103578-100 | |
| אנלייזר Seahorse XFe96 | אג'ילנט | S7800BR | |
| Seahorse XFe96 FluxPak | אג'ילנט | 103792-100 | מכיל מיקרופלטת תרבית תאים XFe96 ומחסנית חיישן XFe96 |
| מחזור תרמי | ביו-ראד | T100 Thermal Cycler | |
| טריאודותירונין | סיגמא-אלדריץ' | T5516 | |
| טריזול | Invitrogen | 15596026 | |
| ספקטרופוטומטר UV-Vis | דה-נוביקס | DS-11 |
מקורות
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
הדפסות חוזרות והרשאות
