פרוטוקול זה מתאר שיטה לייצור והערכת הפעילות האנטי-מיקרוביאלית והציטוטוקסיות של הפפטיד הקטיוני Mel4 ושל הפפטיד המדמה RK758. על ידי שילוב סינתזה כימית, ביטוי רקומביננטי ובדיקות פונקציונליות סטנדרטיות, הוא מספק תהליך עבודה יעיל לייצור ובדיקה של פפטידים וחיקוי מולקולות קטנות.
מאמר שיטה
ייצור ובדיקות של פפטידים אנטימיקרוביאליים והחיקויים שלהם
במאמר זה
סיכום
תקציר
פפטידים אנטי-מיקרוביאליים (AMPs) והחיקויים הסינתטיים שלהם מתגלים כחלופות מבטיחות לאנטיביוטיקה קונבנציונלית, במיוחד בתגובה לאיום הגובר של עמידות לאנטימיקרוביאלית. AMPs טבעיים הם רכיבים חיוניים במערכת החיסון המולדת ומפגינים פעילות רחבת טווח נגד פתוגנים מיקרוביאליים מגוונים, בעוד שהחיקויים הסינתטיים שלהם, כולל פפטידומימטיקה ואנלוגים מבוססי פולימר, נועדו לשפר יציבות, להפחית רעילות ולשפר את הפרמקוקינטיקה. מחקר זה נועד להדגים את הייצור, האפיון וההערכה הביולוגית של AMPs וחיקוי פפטידים ממולקולות קטנות. AMPs נוצרים באמצעות מערכות ביטוי רקומביננטיות או סינתזת פפטידים בשלב מוצק, מה שמאפשר שליטה מדויקת על רצף חומצות האמינו ותכונות מבניות. חיקויי פפטידים קטנים מסונתזים באמצעות אסטרטגיות כימיות, כולל פיגום חומצה אנתרנילית (חומצה 2-אמינובנזואיק) לשיפור יציבות המבנה והביצועים הפרמקולוגיים. לאחר הסינתזה, התרכובות מטוהרות ומאופיינות כימית לפני הבדיקות הביולוגיות. פעילות אנטימיקרוביאלית מוערכת באמצעות בדיקות ריכוז מעכב מינימלי (MIC) במבחנה, וציטוטוקסיות מוערכת מול קווי תאים יונקים כדי לקבוע סלקטיביות. תוצאות מייצגות מראות שגם AMPs וגם החיקויים שלהם מפגינים פעילות חזקה נגד Klebsiella pneumoniae ו-Escherichia coli, מה שמדגיש את הפוטנציאל האנטיבקטריאלי רחב הטווח שלהם. בסך הכול, פרוטוקול זה מספק מסגרת מקיפה וניתנת לשחזור לפיתוח והערכה שיטתית של פפטידים אנטימיקרוביאליים והחיקויים שלהם כסוכנים אנטי-זיהומיים מהדור הבא.
מבוא
עמידות לאנטימיקרוביאלים (AMR) הפכה לאיום בריאותי עולמי משמעותי1. לפי ארגון הבריאות העולמי (WHO), AMR היה אחראי ישירות לכ-1.27 מיליון מקרי מוות בשנת 2019 ותרם להערכה של 4.95 מיליון מקרי מוותברחבי העולם. השימוש המופרז והשימוש לרעה באנטיביוטיקות קיימות הדגישו את הופעת פתוגנים עמידים לרב-תרופות, והשאירו אפשרויות טיפול מוגבלות נגד מיקרובים כמו חיידקים, פטריות, וירוסים ופרוטוזואה 2,3. משבר AMR זה יזם את החיפוש אחר אסטרטגיות אנטימיקרוביאליות חלופיות שהן יעילות, יציבות ופחות נוטות להתפתחות עמידות. בין המועמדים המבטיחים ביותר נמצאים AMPs והחיקויים הסינתטיים שלהם4.
AMPs הם מולקולות טבעיות שממלאות תפקיד חיוני במערכות החיסון המולדות של בני אדם, בעלי חייםוצמחים. הם בדרך כלל מציגים פעילות אנטי-מיקרוביאלית רחבת טווח באמצעות מנגנונים כגון הפרעה בממברנה, הפרעה למטבוליזם מיקרוביאלי ומודולציה של תגובות חיסוניות6. לדוגמה, פפטיד הקתליצידין האנושי LL-37 הוכיח פעילות חזקה נגד חיידקים, פטריות ווירוסים7. עם זאת, למרות הפוטנציאל המבטיחשלהם, השימוש הטיפולי הנרחב ב-AMPs טבעיים מוגבל לעיתים קרובות בשל שפע טבעי נמוך. בנוסף, השגת צורותיהם הפעילות ממקורות טבעיים יכולה להיות מאתגרת, שכן רבים מהפפטידים דורשים שינויים ספציפיים לאחר תרגום כדי להפוך לפעילים פונקציונלית8.
כדי להתמודד עם המגבלות הקשורות ל-AMPs טבעיים, חוקרים פיתחו אנלוגים סינתטיים וחיקוי פפטידים. המימיקים יכולים להיות מולקולות קטנות, מעוצבות בצורה רציונלית, השומרות על היעילות האנטי-מיקרוביאלית של AMPs טבעיים תוך מתן יציבות, סלקטיביותוביצועים פרמקוקינטיים משופרים.
התקדמות אחרונה בכימיה של פפטידים ובביולוגיה מולקולרית אפשרה ייצור יעיל של AMPs באמצעות שיטות כמו סינתזת פפטידים בשלב מוצק (SPPS), סינתזת פפטידים בשלב נוזלי (LPPS) ומערכות ביטוי רקומביננטיות, המספקות שליטה מדויקת על פרמטרים מבניים מרכזיים, כגון הרכב רצפים, התפלגות מטען ואמפפתיות10. מערכות ביטוי רקומביננטיות מתאימות לייצור בקנה מידה גדול ולפוליפפטידים ארוכים או מורכבים יותר. לאחר אופטימיזציה, שיטות רקומביננטיות – בדרך כלל משתמשות בתסיסה או במערכות ביוריאקטור – מציעות גישה חסכונית וניתנת להרחבה לייצור תעשייתי של פפטידים טיפוליים11.
מאמר זה מציג גישות משלימות לייצור והערכה של AMPs והחיקויים שלהם. בעוד שסינתזה כימית בשלב מוצק משמשת רבות לייצור פפטידים, היא עלולה להיות לא יעילה ויקרה עבור רצפים ארוכים או פפטידים קטיוניים גבוהים בשל הצטברות, תפוקות נמוכות ואתגרי טיהור12. לעומת זאת, סינתזה כימית נותרת יתרון רב ליצירת חיקויים קצרים של פפטידים עם שינויים מבניים מדויקים ושאריות לא טבעיות13. מערכות ביטוי רקומביננטיות, לעומת זאת, מאפשרות ייצור ביוסינתטי חסכוני וניתן להרחבה של פפטידים ארוכים או מורכבים מבניים במארחים מיקרוביאליים, תוך התגברות על מגבלות אורך ותפוקה הקשורות לגישות סינתטיות טהורות12. על ידי שילוב אסטרטגיות ייצור כימי וביולוגי, מסגרת משולבת זו מציעה גמישות, יכולת הרחבה ופוטנציאל תרגומי רב יותר מאשר כל אחת מהשיטות בלבד, מה שהופך אותה למתאימה במיוחד למחקר מכני ופיתוח טיפולי.
לאחר הייצור, ההערכה הביולוגית של תרכובות אלו מתבצעת באמצעות שני בדיקות מרכזיות. מבחן הפעילות האנטימיקרוביאלית מודד את הפוטנציאל המעכב של כל פפטיד או מחקה נגד מיקרואורגניזמים מייצגים, ומספק תובנות לגבי הספקטרום והעוצמה שלהם. בדיקת הרעילות מעריכה תאימות ציטו באמצעות קווי תאים של יונקים כדי להבטיח בטיחות וסלקטיביות. על ידי שילוב תכנון שלבים ניסיוניים, סינתזה ובדיקות פונקציונליות, פרוטוקול זה מספק מסגרת מקיפה לאפיון היעילות והבטיחות של AMPs והאנלוגים הסינתטיים שלהם. ביחד, מתודולוגיות אלו יוצרות גישה שיטתית לפיתוח ואימות של סוכנים אנטימיקרוביאליים חדשים כדי להתמודד עם האתגר הגלובלי הגובר של AMR.
פרוטוקול
1. סינתזה של פפטיד אנתרנילאמיד המדמה RK758
- RK758 מסונתז בתוך החברה מאבני הבניין האורגניות המרכזיות N-בנזיל מוגני קרבמט L-טריפטופן ו-5-ברומו איזאטואיק אנהידריד. דווחו מספר גישות סינתטיות; עם זאת, הגישה המדווחת למטה הראתה יכולת הרחבה טובה ותפוקה כללית, שיפור לעומת הפרוטוקולים הסינתטיים שפורסמו קודם לכן14,15.
- שיטה 1: סינתזה של בנזיל (S)-(1-((2-(((((טרט-בוטוקסיקרבוניל)אמינו)אתיל)אמינו)-3-(1H-אינדול-3-yl)-1-אוקסופרופאן-2-yl) קרבמט (2):
- בבקבוק צוואר יחיד בנפח 250 מ"ל, המצויד במוט ערבוב מגנטי, יש לשקול את Cbz-L-טריפטופן (10.0 גרם, 29.6 מ"מ) ולהתמוסס ב-30 מ"ל DMF ו-80 מ"ל DCM.
אזהרה: DMF חשוד בגורם למומים מולדים; הימנע מטיפול במצב הריון, ותטפל רק בקפוצ'ון אדים. - הוסף HOBt (4.08 גרם, 29.6 מ"מ), N-Boc-אתילנדיאמין (4.66 מ"ל, 29.6 מ"מ), ודיאיזופרופילאתילאמין (8.31 מ"ל, 59.0 מ"מ) וערבב במשך 15 דקות.
- הוסף מלח הידרוכלוריד EDC (11.3 גרם, 59 מ"מול). ערבבו בטמפרטורת החדר במשך 20 שעות.
זהירות: קרבודימידים, כמו EDC, ידועים כרגישים לתגובות אנפילקטיות בחשיפה חוזרת; ודא שיהיו כפפות מתאימות. - בדוק TLC באמצעות DCM/אתיל אצטט 1:1 (v/v) כדי לראות אם כל Cbz-L-Trp נצרך.
- לאחר סיום התגובה, השתמשו במאייד סיבובי כדי לרכז את התגובה ולהסיר דיכלורומתן מהתערובת.
- למיס את התערובת בכ-300-400 מ"ל של אתיל אצטט
הערה: שלב 1.1.1.6 מניב תערובת בדימתילפורמיד. השתמש בכמות מספקת של אתיל אצטט כדי להמיס את התלוי. - שפוך את התמיסה למשפך הפרדה של 500 מ"ל יחד עם 50 מ"ל מים. נער את משפך ההפרדה.
אזהרה: מכיוון שכאן נעשה שימוש בנפח גדול של ממס נדיף, חיוני לאוורר את המשפך המפריד לסירוגין. - נקז את שכבת המים, תוך שמירה על שכבת האצטט האתיל האורגנית.
- חזור על שלב 1.1.1.7-1.1.1.8 באמצעות 50 מ"ל מים, 50 מ"ל נתרן ביקרבונט רווי ומימי רווי, ו-50 מ"ל נתרן כלוריד מימי רווי.
- העבר את השכבה האורגנית השמורת לבקבוק קוני בנפח 1 ליטר. ייבשו את האורגניים על ידי הוספת סולפט נתרן חסר מים וסיבוב הבקבוקון עד שנוצרת אבקה זורמת בחופשיות.
- מסננים את התערובת לבקבוק עגול בנפח 1 ליטר, ואז מתרכזים לייבוש על אידוי סיבובי (אמבט מים בטמפרטורה של 40 מעלות צלזיוס באמצעות ואקום של 180 מ"בר).
- הוסיפו 50 מ"ל אתר דיאתיל ומוט ערבוב מגנטי, וערבבו את התערובת במשך 45-60 דקות.
הערה: זה יכול להיות יעיל לגרד מוצקים מדופן הבקבוק בעזרת מרית מתכת. - סיננו את התערובת כדי לאסוף את המוצקים המוצקים. שטפו את עוגת הפילטר פעמיים נוספות עם מנות של 50 מ"ל דיאתיל את'ר. ייבשו את המוצקים תחת יניקה כדי לקבל תרכובת 2 כאבקת בז' בתפוקה של 87%.
- בבקבוק צוואר יחיד בנפח 250 מ"ל, המצויד במוט ערבוב מגנטי, יש לשקול את Cbz-L-טריפטופן (10.0 גרם, 29.6 מ"מ) ולהתמוסס ב-30 מ"ל DMF ו-80 מ"ל DCM.
- שיטה 2: סינתזה של טרט-בוטיל (S)-(2-(2-אמינו-3-(1H-אינדול-3-איל) פרופנאמידו) אתיל) קרבמט (3)
- בבקבוק דו-צוואר עם תחתית עגולה בנפח 250 מ"ל, המצויד במחיצה גומי ופקק זכוכית, ניתן להמיס מוצר 2 (10.8 גרם, 22.3 מ"מ) ב-100 מ"ל מתנול באמצעות ערבוב מגנטי
הערה: אל תשמן את פקק הזכוכית, כי זה עלול לגרום לזיהום. - בזמן הערבוב, הוסף 10% פלדיום על פחמן (1.07 גרם) דרך הפתח עם פקק הזכוכית. באמצעות מניפולד של שלנק, מבעבע גז חנקן דרך התערובת לפחות 30 דקות.
הערה: ניתן להשתמש בכל גז אינרטיבי, כמו ארגון; עם זאת, בית N2 מספיק במקרה הזה. - החלף את פקק הזכוכית במתאם חיבור זכוכית דו-כיווני, כאשר קו אחד מחובר לבלון מימן והשני מחובר לוואקום. התקן סרט PTFE סביב המפרק כדי ליצור אטימה אטומה לאוויר.
- פתח את הבקבוק לשאיבה עד שהמתנול מתחיל לרתוח, ואז פתח במהירות את הבקבוק לבלון המימן. חזור על זה עוד פעמיים.
- מעקב אחרי התגובה באמצעות כרומטוגרפיה בשכבה דקה (באמצעות אתיל אצטט/דיכלורומטאן 1:1 כנוזל) על ידי הפקת אליקווטים קטנים של תערובת התגובה דרך מחיצת הגומי באמצעות מזרק וסינון דרך מסנן ממברנה PTFE של 40 מיקרון.
- על מניפולד שלנק, החלף את הוואקום לחנקן. הסר את מחיצת הגומי מהבקבוק ותן לחנקן לפנות את שארית המימן למשך כ-5 דקות.
זהירות: פלאדיום על פחמן יכול להידלק ספונטנית באוויר כאשר המימן נספג אליו. חשוב לטפל בתגובה מתחת לשמיכת גז אינרטית. - הכינו שכבת אדמה דיאטומאית, על ידי יצירת תערובת אדמה דיאטומית באתיל אצטט והעברת התערובת למשפך מסנן זכוכית עם נקבוביות בינונית המחובר לבקבוק תחתית עגול של 500 מ"ל, ומשיכת ואקום קל עד שהממס נמצא מעט מעל רמת האדמה הדיאטומית
הערה: עמודת האדמה הדיאטומית צריכה להיות בגובה של לפחות 2–4 ס"מ בעת טעינה במשפך.
אזהרה: סיליקה דיאטומאית/סיליקה גבישית היא חומר מסרטן מאוד וידועה כגורמת למזותליומה דרך חשיפה נשימתית. תמיד יש לטפל בזה עם קפוצ'ון אדים או עם מסכת נשימה מתאימה. - באמצעות פיפטה או אחרת, העבירו את תערובת התגובה לחלק העליון של עמודת הצליט, תוך היזהרות שלא להפריע לשכבה העליונה של הקליט. חזור על הפעולה עד שנשארת רק כמות קטנה של תערובת תגובה (<2 מ"ל) בבקבוק
הערה: לאחר מספיק ראש ממס מעל המיטה, ניתן לשפוך את תכולת הבקבוק אל משפך המסנן. - משכו לסירוגין ואקום קל על המשפך/הבקבוק עד שראש הממס נמצא ממש מעל המיטה, שטפו את תכולת הבקבוק בכמויות קטנות של אתיל אצטט, וחזרו על הפעולה 3–4 פעמים
הערה: שכבת הפלאדיום/פחמן שעל גבי הצליט לא צריכה להיחשף לאוויר. - המשיכו לשטוף את המשטח עד שכל המוצרים מסוננים; ניתן לבדוק זאת על ידי טפטוף חלק מהממס המסונן על חתיכה קטנה של צלחת TLC והדמיה תחת אור UV.
- הסר את כל הממס ממאייד סיבובי. הוסיפו כמות מינימלית של דיכלורומתאן (5 מ"ל) לשאריות והטמיעו את המוצר על ידי הוספת אתר דיאתיל (50 מ"ל).
- מסננים את התערובת, תוך שמירה על המשקע שמספק ביניים 3 בתפוקה כמותית.
- בבקבוק דו-צוואר עם תחתית עגולה בנפח 250 מ"ל, המצויד במחיצה גומי ופקק זכוכית, ניתן להמיס מוצר 2 (10.8 גרם, 22.3 מ"מ) ב-100 מ"ל מתנול באמצעות ערבוב מגנטי
- שיטה 3: סינתזה של טרט-בוטיל (S)-(2-(2-(2-אמינו-5-ברומובנזאמידו)-3-(1H-אינדול-3-יל)פרופנמידוך)אתיל) קרבמט (4)
- בבקבוק יבש בתנור בנפח 250 מ"ל עם תחתית עגולה בעל צוואר יחיד, יש לשקול את המוצר 3 (5.00 גרם, 14.5 מ"מ) ואנידריד ברומויסטואי 5 (5) (3.50 גרם, 14.5 מ"מון). הוסף 50 מ"ל של אצטוניטריל חסר מים.
הערה: אצטוניטריל חסר מים התקבל ממערכת טיהור ממס על ידי חדירת ממס דרך עמודה של אלומינה מופעלת. - התקן את הבקבוקון עם מעבה ריפלוקס מקורר מים וצינור ייבוש מלא בכלוריד סידן חסר מים, וחיבורי איטום עם סרט PTFE.
- חממו את התערובת לריפלוקס (b.p. אצטוניטריל = 82 מעלות צלזיוס), טמפרטורת אמבטיית שמן = 100 מעלות צלזיוס. ערבב בריפלוקס במשך 18 שעות או עד ש-TLC מראה צריכה של שלוש שעות. לאחר סיום הטיפול, מרוכז את תערובת התגובה עד ליובש תחת ואקום.
- למוצקים, הוסף 30 מ"ל אצטוניטריל ו-50 מ"ל אתר דיאתיל וסינן את התערובת, תוך שמירה על המוצר המוצק. אסוף את המוצר המוצק כדי לתת לתואר תרכובת 4 בתפוקה של 78%.
- בבקבוק יבש בתנור בנפח 250 מ"ל עם תחתית עגולה בעל צוואר יחיד, יש לשקול את המוצר 3 (5.00 גרם, 14.5 מ"מ) ואנידריד ברומויסטואי 5 (5) (3.50 גרם, 14.5 מ"מון). הוסף 50 מ"ל של אצטוניטריל חסר מים.
- שיטה 4: סינתזה של טרט-בוטיל (S)-(2-(2-(2-(2-(2-(2-נפתאמידו)-5-ברומובננזאמידו)-3-(1H-אינדול-3-יל)פרופנמיד)אתיל) קרבמט (6)
- בבקבוק 50 מ"ל יבש בתנור עם צוואר עגול ותחתית, המיס 2-נפתויל כלוריד (572 מ"ג, 3.0 מ"מ) ב-10 מ"ל דיכלורומתאן. התקן את הבקבוקון עם מחיצת גומי. בקבוק זה נקרא "בקבוק A" מאז.
הערה: נפתויל כלוריד מספק מסחרי שימש במחקר, אך היו תוצאות דומות כאשר הפיקו אותו מחומצה 2-נפתואית באמצעות אוקסליל כלוריד לפי14). - בבקבוק נפרד מיובש בתנור בנפח 100 מ"ל עם צוואר אחד ותחתית עגולה, יש לשקול את המוצר 4 (544 מ"ג, 1.0 מ"מ). הבקבוקון הזה ייקרא "בקבוק B" מעתה ויותר.
- התקן את Flask B עם מחיצה גומי וחבר למניפולד Schlenk באמצעות מחט מזרק ומתאם Luer. ניקוי בקבוקון B תחת ואקום ומלא בחנקן, חזור פעמיים.
- הוסיפו 20 מ"ל דיכלורומטאן חסר מים באמצעות מזרק לבקבוק B. הוסיפו טריאתילמין (455 מיקרוליטר, 3.24 מ"מ) באמצעות מזרק לבקבוק B. קררו על אמבט קרח למשך 10 דקות.
- משוך את תכולת הבקבוקון A למזרק בגודל מתאים. הוסף את התמיסה מהמזרק לבקבוק B טיפה עם ערבוב.
הערה: ייצור טריאתילמין הידרוכלוריד עשוי להיתפס כאדים לבנים מעל הממס. הוציאו מאמבט הקרח לאחר הוספת תמיסת הכלוריד החומצי. - ערבבו את התערובת עד שכל התרכובת 4 נצרכת בהתבסס על ניתוח TLC. ריכזו את התערובת עד כמעט יובש על מאייד סיבובי (600 מ"בר, 40 מעלות צלזיוס).
- חלק את התערובת בין מים (30 מ"ל) לאתיל אצטט (70 מ"ל). שלב שכבות על ידי ניעור במשפך נפרד והשלכת השכבה המימית.
- שטפו את התערובת האורגנית בתמיסות מימיות רוויות של NaHCO3 (30 מ"ל) ו-NaCl. ייבשו את השכבה האורגנית על ידי הוספת Na2SO4 חסר מים עד שנצפה אבקה זורמת בחופשיות במהלך הערבוב.
- להתרכז עד יובש על אידוי סיבובי (170 מ"בר, 40 מעלות צלזיוס). משלב את המוצקים הגולמיים עם אצטוניטריל (15 מ"ל) ודיאתיל אתר (15 מ"ל) כדי לקבל את התרכובת הכותרת כמוצק לבן-שמנת, בתפוקה של 70%.
- בבקבוק 50 מ"ל יבש בתנור עם צוואר עגול ותחתית, המיס 2-נפתויל כלוריד (572 מ"ג, 3.0 מ"מ) ב-10 מ"ל דיכלורומתאן. התקן את הבקבוקון עם מחיצת גומי. בקבוק זה נקרא "בקבוק A" מאז.
- שיטה 5: סינתזה של (S)-N-(2-((1-((2-(2-אמינואתיל)אמינו)-3-(1H-אינדול-3-yl)-1-אוקסופרופאן-2-yl)קרבמויל)-4-ברומופניל)-2-נפתמיד (7)
- לטפל בהוסטנס של 6 ביניים (1.5 גרם, 2.15 מ"מ) בדיכלורומתאן (0.2 מ' ריכוז סופי) עם 1,2-אתאנדיתיול (20% נפח ביחס לנפח DCM).
אזהרה: ל-1,2-אתאנדיתיול יש ריח לא נעים שעלול לגרום לבחילה, אפילו בריכוזים נמוכים. - קרר את התערובת באמבט קרח, ואז טיפל בחומצה טריפלואורואצטית (אותו נפח כמו DCM). ערבבו את התערובת בטמפרטורה של 0 מעלות צלזיוס למשך שעתיים.
- לאחר סיום הטיפול, ריכזו את תערובת התגובה על ידי טיהור בגז חנקן
הערה: גזי פליטה עשויים להיות מוזרים דרך מלכודת אקונומיקה כדי להגביל את שחרור הריח. - לשלב את המוצקים הגולמיים עם אתר דיאתיל (10 מ"ל) ולסנן כדי לאסוף את המוצקים. שטוף את עוגת המסנן פעמיים עם אתר דיאתיל (10 מ"ל כל אחד), ואז תן למוצקים להתייבש תחת יניקה.
- לטפל בהוסטנס של 6 ביניים (1.5 גרם, 2.15 מ"מ) בדיכלורומתאן (0.2 מ' ריכוז סופי) עם 1,2-אתאנדיתיול (20% נפח ביחס לנפח DCM).
- שיטה 6: סינתזה של טרט-בוטיל (S,Z)-(3-((1H-אינדול-3-יל)מתיל)-1-(2-(2-נפתמידו)-5-ברומפניל)-1,4-דיוקסו-9-(פנילימינו)-2,5,8,10-טטראזאדקן-12-yl) קרבמט (9)
- טעינו בקבוק עם צוואר יחיד עם תחתית עגולה עם 7 (1.0 גרם, 1.4 מ"מ), נגזרת תיוראה 8 (415 מ"ג, 1.4 מ"מ), וטריאתילמין (1.01 מ"ל, 4.2 מ"מ) ב-N, N-דימתילפורמאמיד (5 מ"מ).
- מקררים את התגובה ל-5- מעלות צלזיוס באמבט קרח במי מלח והוסיפו כלוריד כספית (II) (760 מ"ג, 2.8 מ"מ) וערבבו במשך 16 שעות.
אזהרה: כלוריד כספית (II) קטלני מחשיפה אוראלית, דרמלית ונשימתית. הוא גם רעיל מאוד לחיים ימיים. לבשו כפפות עמידות לכימיקלים, מגן עיניים והגנה על הגוף. בנוסף, הימנעו מתמיסות אירוסוליות המכילות כלוריד כספית(II) וטפלו בהן בתוך מכסה אדים. ודאו שפסולת מהתהליך מופרדת מזרמי פסולת אורגנית אחרים ווודאו שאין פסולת כספית שנכנסת לניקוזים. - לאחר הסיום, מדללים את התערובת עם 2-פרופנול ומסננים דרך שכבת קליטה, תוך איסוף הסינון.
- ריכזו את הסינון עד יובש על אידוי סיבובי וחשפו את השאריות לכרומטוגרפיית עמודת פלאש על סיליקה תוך שימוש במתנול/דיכלורומתן 3:97 כנוזל נוזל.
- נתח את החלקים שנאספו באמצעות TLC ואז אסוף שברים טהורים כדי להרשות לעצמך את תרכובת הכותרת.
- שיטה 7: סינתזה של RK758
- השיטה ל-Boc להסיר הגנה על ביניים 8 ליצירת RK758 זהה לשלב 1.1.5.
- ממיס מחדש את המוצר המתקבל ב-5 מ"ל של אצטוניטריל/מים טהורים במיוחד ביחס 1:1 (v/v), והעבר לבקבוק זכוכית בורוסיליקט עם פקק בורג. הקפיאו את התמיסה באמבט חנקן נוזלי ואז הקפאו לייבש כדי לקבל את המוצר.
הערה: חשוב לוודא שהבקבוקון הוא בורוסיליקט כדי למנוע סדקים בעת ההקפאה.
זהירות: חשיפה לחנקן נוזלי עלולה לגרום לכוויות קור או נזק לעור. ודא שכפפות והגנה מתאימה לעיניים נלבשות.
- שיטה 1: סינתזה של בנזיל (S)-(1-((2-(((((טרט-בוטוקסיקרבוניל)אמינו)אתיל)אמינו)-3-(1H-אינדול-3-yl)-1-אוקסופרופאן-2-yl) קרבמט (2):
2. ייצור וטיהור רקומביננטי של הפפטיד האנטימיקרוביאלי הקטיוני הגבוה Mel4 (KNKRKRRRRRGGRRR)
- פרוטוקול מותאם לייצור
- סינתזת גנים
- עיצוב וסינתזה של קלטת הגן עם הרכיבים הבאים: HIS (תג היסטידין 6x/7x לבידוד פפטידים רקומביננטיים, תג איזומראז קטוסטרואיד (KSI) ליצירת גוף הכללה (IB), ואתר חיתוך של וירוס טבק אטץ' (TEV) (ENLYFQ↓G, S, A, M, C, H), לכריתה בת-קיימא וללא כימיקלים של תג KSI ותג His-Is מהמוטיב החלבוני.
- בחר את חומצת האמינו מיד לאחר החיתוך (G, S, A, M, C, H) כך שלא תשפיע על פעילות ה-AMP.
הערה: גליצין מציע את היעילות הגבוהה ביותר של חיתוך TEV. חומצת אמינו בודדת הממוקמת בקצה N או C עשויה להשפיע על התכונות הפיזיקו-כימיות של ה-AMPs, ומכאן פעילותם. - לסנתז את רצף הגנים הסינתטיים, כולל אזורים מהצדדים, עם אתרי הגבלה של 5' XbaI ו-3' XhoI. רצף חומצות האמינו מופיע בטבלה 1 ובאופן סכמטי באיור 1.
- שיבוט
- לעכל את וקטור ה-pET באמצעות אנזימי הגבלה תואמים.
הערה: במקרה זה, הפלסמיד p15TVL (נגזרת pET15b, Ampr, T7 promoter) עוכל יחד עם XbaI, XhoI ו-ScaI (כדי לחתוך את השבר הלא רצוי). - כדי למנוע קשירה מחדש של שברים מעוכלים, יש לטפל בפוספטאז אלקליני מעי העגל למשך 10 דקות בטמפרטורה של 37 מעלות צלזיוס. לעכל את הגן הסינתטי His-KSI-Mel4 עם XbaI ו-XhoI בתגובה של 20 מיקרוליטר.
- לטהר את השברים מכל האנזימים המגבילים באמצעות ערכת טיהור QIAquick PCR. חלופה נוספת היא להריץ אלקטרופורזה בג'ל ולחתוך את הרצועה הקשורה לקטע הווקטורי הרצוי, ואז להוציא את השבר מהג'ל באמצעות ערכת חילוץ ג'ל.
הערה: ודאו שמקטעים מטוהרים עוברים כימות באמצעות שיטה ספקטרופוטומטרית (NanoDrop) לאופטימיזציה של הליגציה.
- לעכל את וקטור ה-pET באמצעות אנזימי הגבלה תואמים.
- קישור וטרנספורמציה
- ליגציה של הגן הסינתטי המעכל שהוכנס לווקטור ה-pET. ודא שהיחס בין ההכנסה לווקטור הוא אקווימולר.
- דגרו את התערובת עם ליגאז T4 למשך הלילה בטמפרטורה של 16 מעלות צלזיוס. המרה ל-DH5α כימית או אלקטרופוטית באמצעות שיטות הלם חום או אלקטרופורציה, בהתאמה.
- ערבבו בעדינות תאיDH5 α מיומנים כימית עם DNA פלסמיד ודגרו על קרח כדי לאפשר חיבור DNA. לאחר מכן הלם את התאים בחום למשך 30 שניות בטמפרטורה של 42 מעלות צלזיוס כדי להקל על קליטת ה-DNA, ואז מקרר במהירות על הקרח.
- לאחר ההחלמה במדיום Broth ללא אנטיביוטיקה 450 מיקרוליטר LB בטמפרטורה של 37 מעלות צלזיוס למשך שעה, יש לשים את התאים על אגר סלקטיבי המכיל את האנטיביוטיקה המתאימה.
הערה: מושבות שעברו שינוי צורה מופיעות בדרך כלל לאחר דגירה לילה. לתאי DH5α בעלי יכולת חשמלית, ערבבו נפח קטן של DNA פלסמיד מטוהר וללא מלח (בדרך כלל 1–2 מיקרוליטר של 10–100 ng לתאי ~50 מיקרוליטר) עם תאים בקובט אלקטרופורציה מקורר. - לאחר קור קצר, שלח פולס יחיד (הגדרות נפוצות: 1.8 קילווולט לקובטה מרווח 0.2 ס"מ שמניב קבוע זמן ~5 מילישניות; כוון את עצמו למכשיר/קובטה שלך), תוך היזהרות להימנע מקשת על ידי שימוש ב-DNA מנוטרל מלח ותגובות קרות.
- מיד הוסיפו ~450 מיקרוליטר LB מחומם מראש, התאוששו ב-37 מעלות צלזיוס עם ניעור במשך שעה, ואז הוספו אגר סלקטיבי.
- טרנספורמנטים לתרבות נשארים ללילה בציר LB לבידוד פלסמיד באמצעות ערכת טיהור פלסמידים. אמת את מבנה הפלסמיד הסופי באמצעות PCR באמצעות הפריימרים בטבלה 1 ואשר את הרצף באמצעות רצף סנגר.
- המרו את הפלסמיד המאומת למארח הביטוי (כימי או אלקטרוכשיר), E. coli BL21(DE3), כפי שצוין לעיל.
- סינתזת גנים
- הפקת גוף ביטוי והכללה (IB) אופטימלית
- החרינו 10 מ"ל ציר LB (100 מיקרוגרם/מ"ל אמפיצילין) וגדולו בטמפרטורה של 37 מעלות צלזיוס במהלך הלילה. השתמשו בזה לחיסון של 100 מ"ל, ובהמשך תרבית ייצור של 1 ליטר.
- מדלל ב-LB לצפיפות אופטית (OD600) של תרבית בזמן 0 = 0.1. השתמש במדיום LB עם תוספת של 1% גלוקוז ו-100 מיקרוגרם/מ"ל אמפיצילין.
- דגרו ב-37 מעלות צלזיוס ועוקבו אחרי OD כדי להגיע לשלב לוג (OD600 0.5–0.6). השרה עם ריכוז נמוך של IPTG איזופרופיל β-D-1-תיוגלאקטופירנוזיד, בדרך כלל 0.1 מ"מ.
שמרו על טמפרטורה של 37°C למשך 16–24 שעות כדי לשפר את היווצרות גופי הכללה. - המשך דגירה בין 16 ל-24 שעות. קציר תאים בצנטריפוגציה (5,000 x גרם, 4 מעלות צלזיוס) למשך 10 דקות ואחסן כדורים בטמפרטורה של -80 מעלות צלזיוס.
- ניתוק תאים ופיצול חלבונים
- הפשרה של כדורי תאים על קרח והשתה מחדש בתגובת באגבאסטר כדי להתחיל ללוז כימי. צנטריפוגה את הליזאט בעוצמה של 4,000 x גרם למשך 20 דקות בטמפרטורה של 4 מעלות צלזיוס. אסוף את הסופרנטנט כחלק החלבון המסיס.
- שטוף את הכדור שנותר ותשהה אותו ב-10% (v/v) Bugbuster במי MilliQ. חשוף את השעון לסוניקציה כדי לשחזר במלואו את שבר החלבון הבלתי מסיס (גופי הכללה).
- לטפל בדגימות ב-100 מיקרוליטר של בופר דגימה SDS-PAGE המכיל 5% β-מרקפטואנול. דגרו את התערובת בטמפרטורה של 95 מעלות צלזיוס למשך 5 דקות כדי להבטיח דה-דנאטורציה מלאה של החלבון.
- אלקטרופורזה SDS-PAGE
- טעינו את הליזטים המפוזרים על ג'לים של SDS-PAGE 15% כפולים להפרדה אלקטרופורטית סטנדרטית.
- שטוף ג'ל אחד עם מים לשעה. צבעי לילה בלילה עם GelCode Blue Stain Reagent. דסטריינט במים ביום הבא עד שהרצועות יהיו ברורות.
- הצג ותיעד (איור 2A) את הג'ל המוצבע להערכת פרופילי החלבון הכולל (TCP) והתפלגות החלקים באמצעות מכשיר Biorad Gel Doc עם Image Lab.
- בליטוט מערבי (זיהוי חיסוני)
- איזון את הג'ל הלא צבוע, ממברנת ניטרוצלולוז, ניירות סינון וספוגים בבופר העברה (20 מ"מ טריס-HCl pH 7.4, 150 מ"מ NaCl, 0.1% Tween 20). הרכיבו את כריך ההעברה ומבצעים את ההעברה ב-100 וולט למשך שעה בטמפרטורת הסביבה.
- דגרו את הממברנה בבופר חוסם (5% חלב רזה ב-TBST) למשך שעה בטמפרטורת החדר כדי למנוע קשירה לא ספציפית.
- דגרו את הממברנה בנוגדן ראשוני של Mouse anti-HisTag (מדולל 1:1,000 בבופר חסימה) למשך הלילה בטמפרטורה של 4°C עם ערבוב עדין.
- שטוף את הממברנה שלוש פעמים עם TBST למשך 5 דקות כל אחת. דגרו את הממברנה עם IgG אנטי-עכברי מנוגד ל-HRP (מדולל ב-1:5,000 בבופר חסימה) למשך שעה בטמפרטורת החדר.
- בצע סבב אחרון של שלוש שטיפות TBST. יש להניח תת-קרקע כימילומינסנציה מוגברת (ECL) על הממברנה למשך דקה אחת ולהמחיש באמצעות מדלמת כימילומינסנציה או בחשיפה לסרט רנטגן. תעד את התמונה (כפי שנראה באיור 2B).
- בידוד IB וטיהור זיקה
- השבת מחדש את כדור התא בבופר ליזיס (100 מ"מ טריס· Cl, pH 7.0, 5 mM EDTA, 5 mM DTT (770 mg/ליטר), 5 mM בנזמידין· HCl (780 מ"ג/ליטר)) ומבצע ליזיס מכני (למשל, פרנץ' פרס/סוניקציה). צנטריפוגה (20,000 x גרם, 4 מעלות צלזיוס למשך 20 דקות) לבידוד כדור ה-IB הבלתי מסיס KSI-Mel4.
- שטוף את הכדור היטב עם בופר שטיפה (100 מ"מ Tris· Cl, pH 7, 5 mM EDTA, 5 mM DTT, 2 M אוריאה, 2% (בלי v) Triton X-100). המיס את הכדור בכמות שלא עולה על 2M אוריאה.
הערה: ריכוז האוריאה המשמש למס IB צריך להיות בטווח העבודה של פרוטאז ה-TEV. - כמת את ה-IB המבודד באמצעות ערכת BCA בהתאם להוראות היצרן.
- מערבבים את Pierce Reagent B ו-Reactive A ביחס נפח-נפח של 1:50. חשב את הנפח הכולל הנדרש בהתבסס על מספר התקנים והדגימות שיש להריץ בשלושה עותקים.
- באמצעות אלבומין סרום בקר (BSA) כהפניה, הכינו סדרת דילול ליצירת עקומה סטנדרטית הנעה בין 3,000 מיקרוגרם/מ"ל ל-200 מיקרוגרם/מ"ל.
- באמצעות פלטת 96 בארות, פיפטה של 25 מיקרוליטר מכל תקן BSA ודגימה (כולל סופרנטנט מטוהר ומשקעים תלויים מחדש) אל הבארות.
- הוסף 200 מיקרוליטר מ-BCA Working Reagent המוכן לכל באר המכילה תקן או דגימה. ערבבו בקצרה את הצלחת ודגרו במשך שעה עד שעתיים בטמפרטורה של 37 מעלות צלזיוס כדי לאפשר התפתחות צבע.
- לאחר הדגירה, יש למדוד את ספיגת הלוח ב-562 ננומטר באמצעות ספקטרופוטומטר. שרטט את הספיגה של תקני BSA מול הריכוזים הידועים שלהם כדי ליצור עקומת תקן ליניארית או ריבועית.
- קבעו את ריכוז החלבון של דגימות His-KSI-Mel4 או דגימות Mel4 רקומביננטיות על ידי השוואת ערכי הספיגה שלהם לעקומה הסטנדרטית שנוצרה. הריכוזים לפני ואחרי חיתוך TEV מוצגים באיור 3.
- חיתוך אנזימטי והסרת תג
- תגובת חיתוך: His-tag TEV פרוטאז (יחס מולר מומלץ 1:50 עד 1:100 פרוטאז: חלבון פיוז'ן). דגרו 16 שעות בטמפרטורה של 4°C ליעילות מקסימלית.
- הסרת תגיות וטיהור כרומטוגרפיית זיקה למתכות (IMAC):
- העבר את תערובת תגובת הפיצול על עמודת חומצה ניקל-ניטרילוטריאצטית (Ni-NTA) טרייה. איזון שרף Ni-NTA עם בופר הקישור (Lysis Buffer).
- טען את תערובת תגובת החיתוך. הרכיבים המסומנים ב-His-Tag (קטע KSI ופרוטאז TEV) נקשרים לשרף.
- אספו את הזרימה, המכילה את הפפטיד הרקומביננטי Mel4 הלא-מתויג עם חומצות האמינו השאריות G, S, A, M, C ו-H מאתר הפיצול של TEV.
- ודא שחומצת האמינו הנוספת הזו אינה משפיעה על פעילות ה-AMP על ידי ביצוע בדיקת MIC עם Mel4 מסונתז כימית כבקרה.
- מחלקת KSI הקשורה ופרוטאז TEV באמצעות גרדיאנט בופר שחרור (500 מ"מ אימידזול, 500 מ"מ NaCl, 20 מ"מ בופר נתרן פוספט, pH 8).
- בצע בדיקת BCA כפי שמתואר בשלב 2.6.3.
3. פעילות אנטימיקרוביאלית
- הכנה לתקשורת
- הכינו מדיה [מרק Mueller Hinton Broth, מותאם לקטיון (CAMHB), ציר טריפטיקאז סויה (TSB), מרק מנטרל D/E, ואגר טריפטיקאז סויה (TSA)] לפי הוראות היצרן. כמו כן, יש להכין 1 × מלח מפוזר פוספט (PBS) מתוך 10 × PBS מרוכזים. ואז אוטוקלאב אותם בטמפרטורה של 121 מעלות צלזיוס ו-15 פאונדל-2.
- הכנת מלאי פפטידים
- המיס את ה-AMP והמחקה במים סטריליים בריכוז גבוה, למשל 20 מ"מ או לפחות 2 מ"ג/מ"ל. אם הפפטיד אינו מסיס, יש להשתמש במים סטריליים המכילים ריכוז סופי של 0.01% חומצה אצטית16. אם צפוי ספיחה למשטחים פלסטיים, הוסיפו לתמיסה המקורית BSA של 0.2% (w/v), שכן היא פועלת כסוכן חוסם17.
הערה: דימתיל סולפוקסיד (DMSO) מומלץ גם להמסה של פפטידים או מימיקים שאינם מסיסים במים. הכינו תמיסה מרוכזת, כמו 20 מ"מ או 2 מ"ג/מ"ל. - סנן את מאגר הפפטידים באמצעות מסנן מזרק של 0.22 מיקרון בתנאים אספטיים.
- הכינו אליקוטים של מלאי ה-AMP ואחסנו בטמפרטורה של מינוס 20°C (או לפי יציבות ה-AMP). הכן בקרת ממס זהה.
- המיס את ה-AMP והמחקה במים סטריליים בריכוז גבוה, למשל 20 מ"מ או לפחות 2 מ"ג/מ"ל. אם הפפטיד אינו מסיס, יש להשתמש במים סטריליים המכילים ריכוז סופי של 0.01% חומצה אצטית16. אם צפוי ספיחה למשטחים פלסטיים, הוסיפו לתמיסה המקורית BSA של 0.2% (w/v), שכן היא פועלת כסוכן חוסם17.
- הכנת חיסון חיידקי
- הנח את הבידוד החיידקי לבדיקה על מדיום עשיר בחומרים מזינים כמו TSA כדי לקבל מושבות טהורות ומבודדות היטב.
- דגרו את הפלטה באופן אירובי בטמפרטורה של 36 ± 1 מעלות צלזיוס למשך 18-24 שעות.
- בחרו שלוש עד חמש מושבות דומות ומבודדות היטב מפלטת הגידול באמצעות לולאת חיסון סטרילית. העבר אותם לצינור סטרילי המכיל 5–10 מ"ל של TSB או CAMHB. כדי להשיג תלייה אחידה, משפשפים בעדינות את הלולאה עם מושבות חיידקים על הקיר הפנימי של הצינור המוטה כדי לקבל תלייה הומוגנית.
- דגרו את תרבית המרק בטמפרטורה של 36 ± 1 מעלות צלזיוס תוך כדי ניעור ב-180 סל"ד למשך 18 עד 24 שעות.
- צנטריפוגה את התרבית הלילית ב-3,000 x גרם למשך 10 דקות בטמפרטורה של 25 מעלות צלזיוס ושטפו את הכדור החיידקי שלוש פעמים עם תרמיל סטרילי של 1 × PBS.
- במיכל סטרילי, יש לחלק 2 מ"ל של 1 × PBS, ואז להוסיף 50–100 מיקרוליטר של תלייה חיידקית שטופה ומערבולת למשך 5–10 שניות להשגת אחידות.
- מדוד את הצפיפות האופטית ב-600 ננומטר (OD600) באמצעות ספקטרופוטומטר. בקצרה, הוסף 200 מיקרוליטר מהמתלה החיידקלית ללוח עם 96 בארות, יחד עם אותו נפח של 1× PBS כמו פלטה ריקה, ומדד אתה-OD 600 כדי לקבל שווה ערך ל-0.1, התואם לכ-1–2 × 10⁸ CFU/מ"ל (אימות לפי ספירת לוחות ראויה ב-TSA).
- מדלל את המתלה המותאם ב-1:100 ב-CAMHB כדי לקבל חיסון סופי של10 6 CFU/mL.
- סידור לוחות
- סמנו לוח סטרילי עם תחתית שטוחה עם 96 בארות עם זן חיידקים, שם AMP, תאריך וראשי תיבות של המדען. על הלוחית, סמן את המיקומים לבארות בדיקה, ריק ובקרה, על המכסה.
- פזר 200 מיקרוליטר של תמיסת AMP (הריכוז הגבוה ביותר) אל העמודה הראשונה של הלוח. לבארות הנותרות, מעמודה 2 עד 12, הוסיפו 100 מיקרוליטר של CAMHB.
- באמצעות פיפטה רב-ערוצית, מבצעים דילול כפול סדרתי של ה-AMP מעמודה 1 ועד עמודה 10, תוך השלכת 100 מיקרוליטר מהעמודה העשירית.
- הוסף 100 מיקרוליטר מהחיידקים המוכן (106 CFU/mL) לכל באר למעט בקרת הסטריליות (ריק). זה יניב ריכוז חיידקים סופי של כ-5 × 10⁵ CFU/mL בבארות הבדיקה. הוסיפו 100 מיקרוליטר CAMHB לבארות הריקות כדי להביא את הנפח הסופי ל-200 מיקרוליטר. הכינו בארות משולשות לכל ריכוז.
הערה: עבור AMPs שמשקעים כאשר מדוללים ב-CAMHB, הוספת חומצה אצטית עם 0.1–0.2% BSA עשויה לפתור את הבעיה; אופטימיזציה עשויה לדרוש בדיקות אמפיריות16. במקרים כאלה, כלול בארות בקרה לממס (המכילים CAMHB יחד עם חומצה אצטית ו/או BSA). - באופן דומה, יש לבצע MIC ל-AMP mimic (RK758) ואנטיביוטיקה משוויה (למשל, קוליסטין).
- כסו את הצלחת במכסה, אטמו בניילון נצמד למניעת אידוי, ודגרו בטמפרטורה של 36 ± 1 מעלות צלזיוס למשך 18–24 שעות.
- כלול זן ייחוס של E. coli (למשל, MCR-1-מכיל E. coli NCTC 13846) במקביל ותהליך בדומה למחקה פפטיד או פפטיד.
- לאחר הדגירה, הקליטו את ה-MIC.
- קביעת MIC
- מדודאת ה-OD 600 של כל באר באמצעות קורא מיקרופלט. חשב את אחוז הירידה בצמיחה ביחס לבקרת הגדילה הלא מטופלת. ה-MIC מוגדר כרכוז הנמוך ביותר של ה-AMP שמוביל לירידה של לפחות 90%ב-OD 600 לעומת18 בקרת הגדילה.
- קבעו ערכי MIC לפחות משלושה ניסויים עצמאיים שבוצעו בשלושה עותקים. דווח על התוצאות כסטיית תקן ממוצעת ± כדי להבטיח שחזוריות.
הערה: ה-MIC של זן הביקורת, E. coli NCTC 13846, צריך להיות בטווח דילול כפול אחד מה-MIC הצפוי של קוליסטין. לאשר שבקרות ממס שמכילות DMSO, חומצה אצטית ו-BSA לא היו פעילות מעכבת בפני עצמן.
- קביעת ריכוז מינימלי של הרג בקטרי (MBC)
- מהבארות שב-MIC ומעליו, וכן מריכוז אחד מתחת, העבר 100 מיקרוליטר מהמתלה החיידקי ל-900 מיקרוליטר של מרק D/E להכנת דילול סדרתיים.
- פלטה של 20 מיקרוליטר מכל מתלה מדולל על TSA בשלוש עותקים כדי לקבוע ספירות חיידקים ברי קיימא.
- לאחר דגירה לילית בטמפרטורה של 36 ± 1 מעלות צלזיוס למשך 24 שעות, יש לספור את המושבות, להכפיל בגורם הדילול המתאים, ולהשוות את הספירות האפשריות לאלו מבאר בקרת הגידול, המעובדות באותו אופן.
- ה-MBC מוגדר כרכוז הנמוך ביותר של החומר האנטי-מיקרוביאלי, שמוביל לירידה של 99.9% (≥ 3 log10) בספירת חיידקים ברי קיימא לעומת החיסון הראשוני לאחר 24 שעות של דגירה (בקרת גדילה) בתנאים סטנדרטיים19.
- דיווח
- דווח על MIC ו-MBC במיקרוגרם/מ"ל ומיקרו-מיליטר.
- המרו μg/mL ל-μM באמצעות μM = μg/mL × 1,000/משקל מולקולרי (g/mol)
- סילוק פסולת זיהומית
- להשליך כל חומר שהיה במגע עם תרביות חיידקים חיים, כולל לוחות מיקרוטיטר של 96 בארים, קצות פיפטות וצינורות פלקון, לשקיות פסולת ביולוגיות מסוכנות.
- אוטוקלב הפסולת הביולוגית שנאספה בטמפרטורה של 121 מעלות צלזיוס למשך 15–20 דקות תחת לחץ של 15 psi כדי להבטיח עיקור מלא לפני ההשלכה, בהתאם להנחיות הבטיחות הביולוגית המוסדית.
4. ציטוטוקסיות
- ספירת תאים וזריעה לבדיקת רעילות
- לשמור תאים, כגון תאי פיברובלסטים של עכברים L929, בבקבוק בגודל 75 ס"מ2 במדיום החיוני המינימלי של Dulbecco (DMEM) המכיל 10% סרום בקר עוברי (FBS) ו-1% אנטיביוטיקה (סטרפטומיצין סולפט ופניצילין G) בטמפרטורה של 37°C עם 5%CO2.
- שטוף את התאים עם 1x PBS וטריפסיניז עם 0.25% טריפסין-EDTA. סופר את התאים על ידי ערבוב 50 מיקרוליטר של תלייה עם 50 מיקרוליטר של 0.4% Trypan Blue וטעין 10 מיקרוליטר לתוך המוציטומטר.
- ספירת תאים חיים (לא מוצבעים) ותאים מתים (כחולים) בארבע ריבועים בפינות וחישבו את מספר התאים הכולל באמצעות: סך התאים = (ספירת תאים חיים ממוצעת ×10 4 × 2 [גורם דילול]).
- חשב כדאיות (%) = (חי / [חי + מת]) × 100.
- כוון את ריכוז התאים הסופי ל-5 × 10⁴ תאים/מ"ל (תואם ל-5,000 תאים/באר ב-100 מיקרוליטר באמצעות מדיום DEM).
- זרע 100 מיקרוליטר של תליית תא לכל באר של לוח סטרילי עם 96 בארות. דגרו במשך 24 שעות בטמפרטורה של 37 מעלות צלזיוס עם 5%CO2 כדי לאפשר היצמדות.
- הכנת פתרונות בדיקה Mel4 ו-RK758
- הכינו תמיסות עבודה של Mel4/RK758 ב-DMEM רגיל (ללא FBS ואנטיביוטיקה) בריכוזי היעד הסופיים (1,000, 500, 250, 125, 62.5, 31.25, 15.6, 7.8 ו-3.9 מיקרומון) באמצעות תמיסת המלאי שהוכנה כמתואר בשלב 3.2.
- הסר את מדיום הגידול מכל באר. הוסיפו 100 מיקרוליטר מהתמיסה המתאימה 1×Mel4/RK758 ישירות לבארות.
- הוסיפו 100 מיקרוליטר DMEM לבארות הבקרה השלילית (NC) המיועדת.
- הוסף 100 מיקרוליטר DMSO בבארות מוגדרות על ידי בקרה חיובית (PC) (מלבד DMSO, מומלץ לסוכן ציטוטוקסי כמו Triton X-100 כבקרה חיובית).
- הוסיפו 100 מיקרוליטר של 1 x PBS כבקרה ריקה.
הערה: בצע את כל הטיפולים והביקורת בשלושה עותקים. לטפל ב-DMSO עם כפפות והגנה על עיניים; הימנעו ממגע עם עור והשליכו פסולת ממס בהתאם לנהלים המוסדיים.
- 3-(4,5-דימתילתיאזול-2-yl)-2,5-דיפנילטרזוליום ברומיד (MTT)
- לאחר 24 שעות של חשיפה ל-Mel4/RK758, יש לשאוף את מדיום הבדיקה בזהירות מבלי להפריע לתאים.
הערה: משך הטיפול בתרכובות אנטימיקרוביאליות עשוי להשתנות בהתאם לעיצוב הניסוי הספציפי. - הכינו תמיסת MTT עובדת על ידי דילול תמיסת המאגר של 5 מ"ג/מ"ל ביחס 1:9 עם DMEM פשוט (ריכוז סופי 0.5 מ"ג/מ"ל).
- הוסף 100 מיקרוליטר של תמיסת MTT לכל באר. כסו את הפלטה בנייר אלומיניום כדי להגן מפני אור ודגרו במשך שעתיים בטמפרטורה של 37 מעלות צלזיוס עד שנוצרו גבישי פורמזן סגולים.
הערה: MTT רגיש לאור ורעיל. לטפל בכפפות ולהיפטר מהפסולת בהתאם לנהלי הבטיחות הביולוגית המוסדיים. תמיד תכבה את האור בזמן העיבוד עם מגיב MTT.
- לאחר 24 שעות של חשיפה ל-Mel4/RK758, יש לשאוף את מדיום הבדיקה בזהירות מבלי להפריע לתאים.
- מדידת התמוססות וספיגה בפורמזן
- הסר בזהירות את תמיסת ה-MTT מכל באר. הוסף 100 מיקרולטר DMSO לכל באר כדי להמיס את גבישי הפורמזן.
- הנח את הצלחת על שייקר למשך 5 דקות כדי להבטיח התמוססות מוחלטת. מדוד את הספיגה ב-570 ננומטר באמצעות קורא מיקרופלט.
- ניתוח נתונים וקביעת ריכוז ציטוטוקסי של 50% (IC50 או CC50)
- מחסר ערכי ספיגה ריקים (PBS) מכל הקריאות והשתמש בערכי הספיגה הריקים המתוקנים לחישוב.
- חשב את כדאיות התאים (%) באמצעות המשוואה: חיוניות (%) = (Aמטופל/A NC (תא)) × 100.
- חשב את IC50 או CC50 באמצעות תוכנת GraphPad Prism.
הערה: חזור על ניסויים בשלושה עותקים ודווח נתונים כסטיית תקן ממוצעת ±.
תוצאות
סינתזה של RK758
נתונים אנליטיים עד 7 בינוני פורסמו קודם לכן14. הנתונים האנליטיים עבור RK758 ועבור ביניים 8–9 הם כדלקמן:
טרט-בוטיל (2-(3-פנילתיאוריידו)אתיל)קרבמט (8):
המכפלה 8 התקבלה כמוצק לבן-שמנת-שמנה (1.89 גרם, 87%); מ.פ. 167.4–168.3 מעלות צלזיוס; 1H NMR (300 MHz, DMSO-d 6) δ 9.58 (s, 1H), 7.71 (s, 1H), 7.44–7.29 (m, 4H), 7.11 (t, J = 12.0 Hz, 1H), 6.88 (br s, 1H), 3.55-3.53 (m, 2H), 3.13 (q, J = 4.0 Hz, 2H), 1.59 (s, 9H); 13C NMR (75 MHz, DMSO-d6) δ 180.9, 156.3, 139.5, 129.1, 124.7, 123.7, 78.2, 44.3, 28.7; HRMS (ESI+): m/z חושב עבור C14H21N3O2 SNa+ [M + Na]+: 318.1247, נמצא: 318.1252.
טרט-בוטיל (S,Z)-(3-((1H-אינדול-3-איל)מתיל)-1-(2-(2-נפתאמידו)-5-ברומפניל)- 1,4-דיוקסו-9-(פנילימינו)-2,5,8,10-טטראזאדקן-12-איל)קרבמט (9):
המכפלה 9 התקבלה כמוצק לבן (0.253 גרם, 62%); m.p. 173.4–174.9 °C; 1H NMR (400 MHz, DMSO-d 6) δ 12.23 (s, 1H), 10.86 (s, 1H), 9.61 (s, 1H), 9.27 (d, J = 8.0 Hz, 1H), 8.57-8.54 (m, 2H), 8.44 (s, 1H), 8.11 (d, J = 4.0 Hz, 1H), 8.06-8.03 (m, 3H), 7.84 (dd, J = 4.0, 12.0Hz, 1H), 7.78 (d, J = 12.0 Hz, 2H), 7.69–7.60 (m, 2H), 7.36 (t, J = 8.0 Hz, 2H), 7.27-7.23 (m, 5H), 7.01-6.97 (m, 3H), 4.82-4.78 (m, 1H), 3.14-3.13 (m, 10H), 1.32 (s, 9H); 13C NMR (100 MHz, DMSO-d 6) δ 172.3, 167.8, 165.1, 156.3, 154.4, 138.9, 136.5, 135.4, 134.9, 132.6, 131.7, 129.9, 129.1, 128.7, 128.4, 128.2, 127.6, 127.6, 126.4, 124.8, 124.1, 123.6, 122.8, 121.4, 118.9, 118.7, 115.1, 111.8, 110.9, 78.4, 55.2, 42.3, 41.9, 39.4, 38.3, 29.5, 28.6, 27.9; HRMS (ESI+): m/z חושב עבור C45H47BrN8O5 [M + H]+: 859.2926, נמצא: 859.2925.
(S,E)-N-(2-((1-((2-(3-(2-(2-אמינואתיל)-2-פנילגואנידינו)אתיל)אמינו)-3-(1H-אינדול-3-yl)-1-אוקסופרופאן-2-yl)קרבמויל)-4-ברומופניל)-2-נפתאמיד (RK758) (10):
RK758 התקבל כמוצק בצבע לבן שמנת-שמנה (0.039 גרם, 75%); מ.פ. 240.0–240.9 מעלות צלזיוס; 1H NMR (400 MHz, MeOD-d 4): δ 8.39 (s, 1H), 8.27 (d, J = 12.0 Hz, 1H), 7.98–7.95 (m, 3H), 7.88 (d, J = 8.0 Hz, 1H), 7.79 (d, J = 4.0 Hz, 1H), 7.71-7.60 (m, 4H), 7.40 (t, J = 8.0 Hz, 1H), 7.30-7.20 (m, 4H), 7.16 (s, 1H), 7.05-6.97 (m, 2H), 4.88-4.86 (m, 1H), 3.33-3.32 (m, 3H), 3.27-3.24 (m, 5H); 13C NMR (100 MHz, MeOD-d4): δ 174.3, 168.5, 166.4, 154.6, 137.1, 136.7, 135.1, 134.7, 131.4, 132.6, 131.3, 130.8, 129.8, 128.9, 127.9, 127.8, 127.9, 127.6, 127.5, 127.2, 126.8, 125.6, 123.5, 123.24, 123.2, 118.6, 117.8, 116.1, 111.1, 109.6; HRMS (ESI+): m/z חושב עבור C40H39BrN8O3 [M + H]+: 759.2401, נמצא: 759.2407.
הסינתזה של RK758 בוצעה עם תפוקה כוללת של 17% מ-Cbz-L-טריפטופן ב-7 שלבים (איור 4). התשואה הכוללת של תהליך זה הייתה 44% לביניים מרכזית 7 ו-19% ל-RK758. נתוני 1H NMR מצביעים על טוהר גבוה של התרכובת הסופית ללא זיהומים משמעותיים שניתן לזיהוי.
סקר PCR במושבה אישר הכנסה מוצלחת של קלטות Mel4 ו-His-KSI-Mel4 בטרנספורמנטים נבחרים (איור 5A). ניתוח PCR של פלסמידים מבודדים במיני-פרפ אישר עוד יותר את גודל האמפליקון הצפוי, ותמך בהרכבת מבנה נכונה לפני ההמרה ל-BL21(DE3) לביטוי (איור 5B).
ייצור וטיהור רקומביננטי של פפטיד אנטימיקרוביאלי קטיוני גבוה Mel4
למרות שמל4 נרכש מסחרית מחברת AusPep Peptide עם טוהר מינימלי של 90%, הוא סונתז על ידי SPPS, ושימשה גם גישה רקומביננטית לייצור ביולוגי של Mel4. בסיום הפרוטוקול, ניתוח ווסטרן בלוט של חלבון התא הכולל (TCP) מהכדור התא המפולל אישר את ביטוי חלבון המיזוג הרקומביננטי HIS-KSI-Mel4. דגימות החלבון הופרדו על ידי SDS-PAGE והוצגו באמצעות סולם חלבון כנקודת ייחוס משקל מולקולרי. נצפתה רצועה מובחנת התואמת למשקל המולקולרי הצפוי של חלבון המיזוג HIS-KSI-Mel4, שאישר ביטוי מוצלח של חלבון המטרה בתאי המארח (איור 5B).
מרצף החלבונים של המוטיב הנבחר, חושבו ההרכב התיאורטי של חומצות האמינו והושווה לתוצאות ניתוח חומצות האמינו הניסיוניות שהושגו מפפטיד IB מטוהר HIS-KSI-TEV-Mel4. ההשוואה הראתה מתאם טוב בין יחסי חומצות האמינו החזויים לאלו שנקבעו בניסוי, ואישרה את דיוק רצף הפפטידים המובע ואת הבידוד המוצלח שלו בשבר גוף ההכללה (טבלה 2).
אספרגין מומר לחומצה אספרטית וגלוטמין לחומצה גלוטמית. שיטת ניתוח חומצות האמינו אינה רגישה לציסטאין וטריפטופן, ואלו אינם מנותחים בשיטה זו. יש לקחת בחשבון זאת בניתוח התוצאות.
פעילות אנטיבקטריאלית של Mel4 ו-RK758
הריכוזים המעכבים המינימליים (MICs) של RK758, Mel4 וקוליסטין הוערכו מול שני זנים חיידקיים גרם-שליליים, K. pneumoniae JIE 2709 ו-E. coli NCTC 13846 (טבלה 3). RK758 הציג MIC של 16 מיקרוגרם/מ"ל (21 מיקרומון) נגד K. pneumoniae ו-E. coli. בהשוואה, Mel4 הראה MICs של 62.5 מיקרוגרם/מ"ל (26.6 מיקרומון) עבור K. pneumoniae ו-125 מיקרוגרם/מ"ל (53.2 מיקרומון) עבור E. coli, מה שמעיד על עוצמה נמוכה יותר מ-RK758. קוליסטין שימש כאנטיביוטיקה משוואת, שהראה את ה-MIC הנמוך ביותר של 1 מיקרוגרם/מ"ל (0.87 מיקרומון) עבור K. pneumoniae, בעוד שזן ההתייחסות העמיד לקוליסטין ל-E. coli הציג MIC של 8 מיקרוגרם/מ"ל (6.9 מיקרומון).
השפעת ציטוטוקסיות של Mel4 ו-RK758
הפוטנציאל הציטוטוקסי של Mel4 ו-RK758 הוערך בתאי פיברובלסטים בעכבר L929 (ATCC CCL-1) באמצעות בדיקת MTT לאחר חשיפה של 24 שעות לריכוזים סדרתיים. שתי התרכובות הציגו עקומות מינון-תגובה טיפוסיות סיגמואידיות שנותחו באמצעות רגרסיה לא-ליניארית עם מודל "מעכב לעומת תגובה מנורמלת - שיפוע משתנה" ב-GraphPad Prism (גרסה 9.5.1), מה שמאשר עיכוב תלויה בריכוז של חיוניות התא. RK758 הציג ערך CC50 של 172.6 מיקרומטר, בעוד ש-Mel4 הראה עוצמה ציטוטוקסית מעט גבוהה יותר עם CC50 של 147.5 מיקרומון, המייצג כ-1.17 פעמים ציטוטוקסיות גבוהה יותר מ-RK758 (איור 6 ואיור 7).
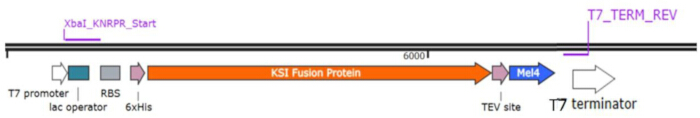
איור 1: ייצוג סכמטי של קלטת הביטוי של p15TV-L-His-KSI-Mel4. מפה סכמטית של מבנה הביטוי p15TV-L המציגה את פרומוטר T7, אתר קישור ריבוזום (RBS), 6×תג הטיהור שלו, שותף מיזוג איזומרז קטוסטרואיד (KSI), אתר חיתוך פרוטאז TEV, ורצף הפפטיד Mel4 ואחריו מסיבוב השעתוק T7. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
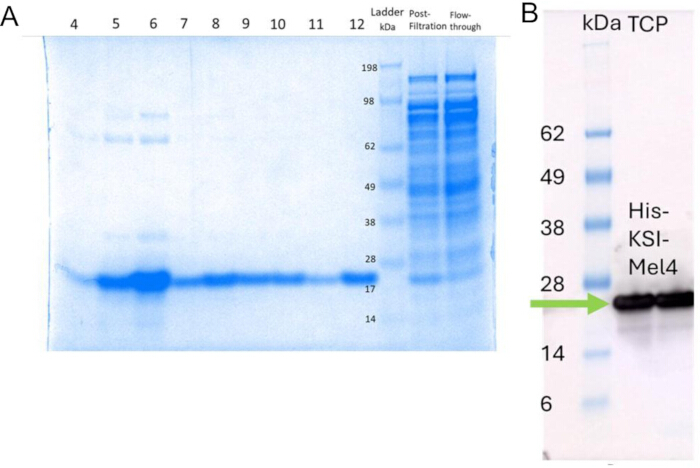
איור 2: SDS-PAGE וניתוח כתם מערבי של ביטוי חלבונים רקומביננטיים. (A) SDS-PAGE של גופי הכללה וחלבוני תא מלאים לאחר סינון וזרימה דרך ליזאט של תא גולמי. (B) כתם מערבי של חלבון תא כולל. החץ הירוק מציין את מיקום החלבון המעניין במשקל המולקולרי הצפוי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
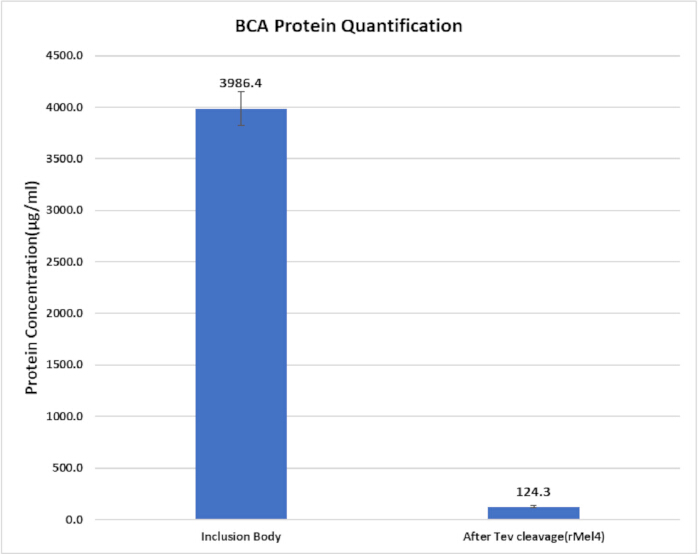
איור 3: כימות של חלבון רקומביננטי לפני ואחרי חיתוך TEV. גרף עמודות המראה ריכוזי חלבון שנקבעו על ידי בדיקת BCA עבור חלק הגוף המבודד של הכללה וה-Mel4 הרקומביננט המפורק שהושג לאחר טיפול בפרוטאז TEV. פסי השגיאה מייצגים שונות ניסיונית בין מדידות. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
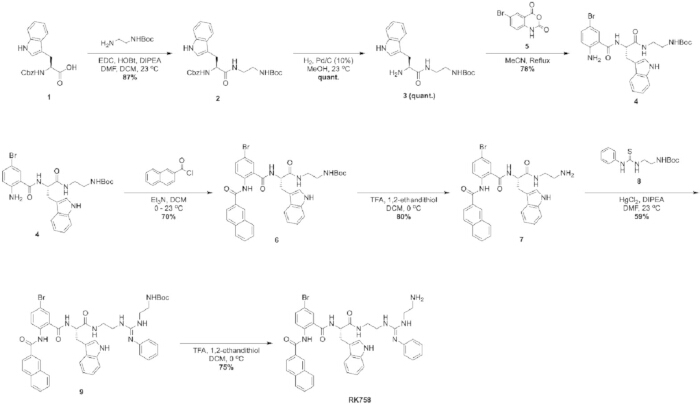
איור 4: גישה סינתטית כוללת להשגת RK758. תכנית תגובה המתארת את הסינתזה הכימית בת שבעה שלבים של RK758 החל מ-Cbz-L-טריפטופן, כולל היווצרות ביניים, טרנספורמציות קבוצות פונקציונליות והסרת הגנה סופית להשגת חיקוי הפפטיד. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
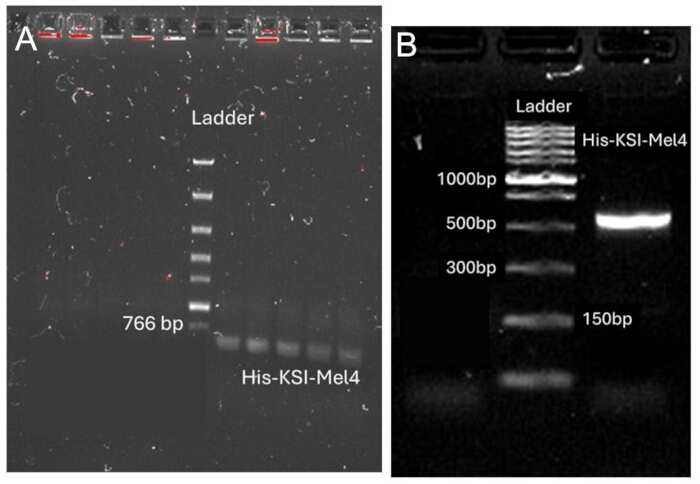
איור 5: אלקטרופורזה בג'ל אגרוז של פלסמידים רקומביננטיים. (א) PCR מושבה של טרנספורמנטים עבור His-Mel4 ו-His-KSI-Mel4. (ב) אישור PCR של פלסמידים לאחר מיני-פרפ. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
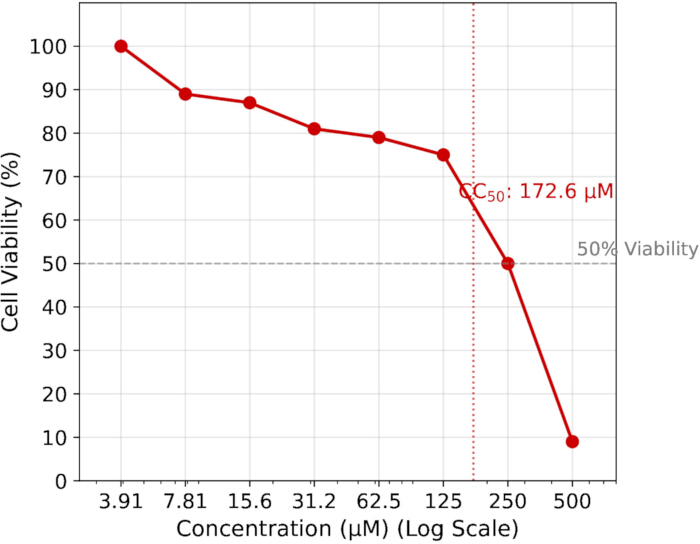
איור 6. ציטוטוקסיות של RK758 נגד תאי פיברובלסטים L929. עקומת המינון-תגובה המראה את השפעת RK758 על חיוניות התאים בריכוזים עולים. ערכי CC50 חושבו באמצעות רגרסיה לא ליניארית באמצעות מודל "מעכב לעומת תגובה מנורמלת - שיפוע משתנה" ב-GraphPad Prism, מה שמאשר עיכוב תלויה בריכוז של חיוניות התא. הנתונים מייצגים את ממוצע ± SD של שלושה שכפולים ביולוגיים עצמאיים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
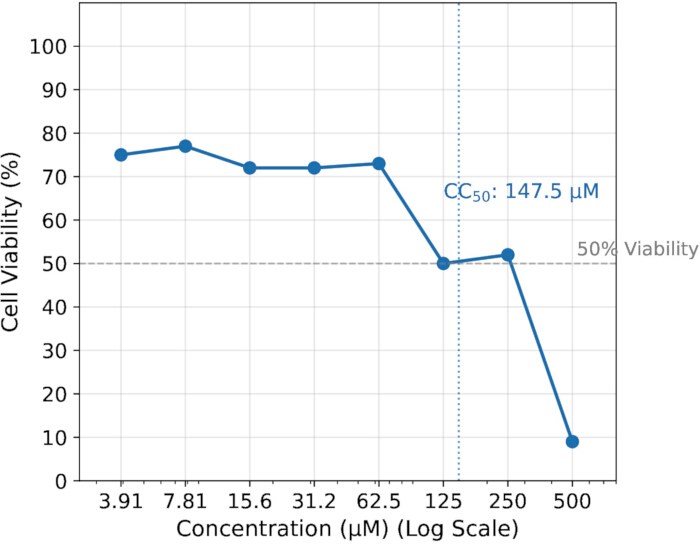
איור 7: ציטוטוקסיות של Mel4 מול תאי L929. עקומת המינון-תגובה המדגימה את ההשפעה התלויה בריכוז של Mel4 על קיום התא. ערכי CC50 חושבו באמצעות רגרסיה לא ליניארית באמצעות מודל "מעכב לעומת תגובה מנורמלת - שיפוע משתנה" ב-GraphPad Prism, מה שמאשר עיכוב תלויה בריכוז של חיוניות התא. הנתונים מייצגים את ממוצע ± SD של שלושה שכפולים ביולוגיים עצמאיים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
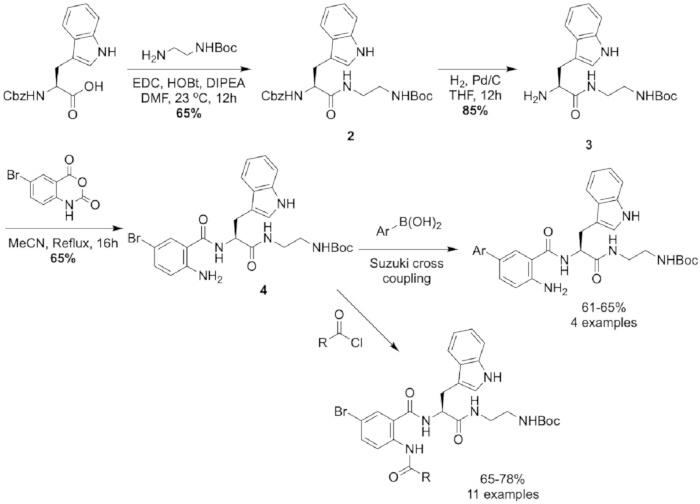
איור 8: אסטרטגיה סינתטית מותאמת החל מ-Cbz-L-טריפטופן. מסלול סינתטי חלופי הממחיש את הכנת ביניים של אנתרנילאמיד באמצעות Cbz-L-טריפטופן ושלבי פונקציונליזציה נוספים לאפשר גיוון מבני. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
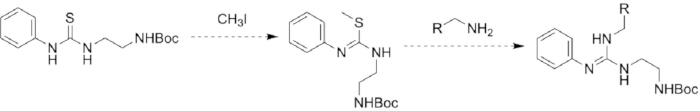
איור 9: אלקילציה של תיאוראה ואחריה החלפה נוקלאופילית במצע אמין. מסלול תגובה מוצע הכולל אלקילציה של גופרית תיוראה ואחריה החלפה נוקלאופילית עם תת-אמינים ליצירת תוצרים המכילים גואנידין. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
| קטע | שם/תכונה | רצף | |||
| מבנים | XbaI_KNRPR_Start | 5'-טאגטאקאטקקקטקטגאטאטאט-3' | |||
| T7_TERM_REV | 5'-CCAAGGGGTTATGCTAGTTATTGCTCA-3' | ||||
| קלטת גנים | רצף חומצות האמינו His-KSI-Mel4 | MDHHHHHHMIDETQRKATVLEYFERVNAKDLDGVVKLF ATDAVVADPVGAPPVAGEEALRAYFQRVLHEFDTHDVPGV PSGAQDGQSVALPLKATINNPQDPTGGVRLDVNLVSVFTIG EDGLISEMRAYWGLTDIAPAGASSGRENLYFQGKNKRRR RRRGRGRRRR | |||
| רצף DNA | 5'-TAACAATTCCCCTCTAGAAATAATTTTTTTTTTACTTAAGAGGA GATATACCATGGATCACCACCACCACCATGATGACGAGAC GCAACGTAAAGCGGGTCTTAGAGTATTTTGAACGCGTGAATGCAA AAGACTTGGATGGCGTGGTTAAACTCTTTGCGACGCCGTGT AGCCGACCCTGTTGGTGCACCAGTGTGGTGAGGAGGCACTC CGTGCCTACTTCCAGCGCGTCTTGCATGAATTTGACCACCGATGTCC CGGGCGTTCCATCTGGTGCTCAGGATGGCCAATCAGTCGCACTCCCAC TTAAAGCAACCATCAACATCCTCAAGATCCAAGGCGGGGGTCCGCCGCC TTGATGTGAACTTAGTGAGCGTATTCACGATGGCGAAGGGGTTAAT CTCCGAGATGCGTGCGTACTGGGGTGACTGATATTGCTCCGGCAGGT GCAAGCAGTGGTCGCGGAACTTGTACTTCAAGGTAAGAACAAGCGTA AGAGACGGGCGCCGCCGGGGGGGGAGGACGTCGCTAATCGAAC TCGAGATCCGGCT-3' | ||||
טבלה 1: רצפי פריימר המשמשים לאימות PCR ורצף קלטת גן מלא של מבנה הפלסמיד הסופי.
| אמינואסיד | מחושב | נבדק |
| היסטידין | 4.70% | 4.70% |
| סרין | 3.60% | 3.40% |
| ארגינין | 10.70% | 9.20% |
| גליצין | 9.50% | 11% |
| חומצה אספרטית | 11.30% | 11.50% |
| חומצה גלוטמית | 8.90% | 8.90% |
| תראונין | 4.70% | 4.60% |
| אלנין | 9.50% | 9.70% |
| פרוליין | 5.30% | 5.30% |
| ליזין | 4.10% | 4.50% |
| טירוזין | 2.40% | 2.20% |
| מתיונין | 1.80% | 1.90% |
| איזולאוצין | 3.00% | 3.20% |
| לאוסין | 7.10% | 7.40% |
| פניאלאנין | 3.60% | 3.60% |
| ואלין | 9.50% | 8.90% |
| טריפטופן | 0.60% | - |
טבלה 2: ניתוח הרכבי חומצות האמינו.
| זני חיידקים | מיקרו-מיקרוגרם/מ"ל (מיקרומם) | ||
| RK758 | מל4 | קוליסטין | |
| K. pneumoniae JIE 2709 | 16 (21) | 62.5 (26.6) | 1 (0.87) |
| E. coli NCTC 13846 | 16 (21) | 125 (53.2) | 8 (6.9) |
טבלה 3: MIC של RK758, Mel4 וקוליסטין נגד חיידקים גרם-שליליים.
דיון
הפרוטוקול המתואר כאן מספק מסגרת מקיפה לייצור והערכה פונקציונלית של ה-AMP הקטיוני Mel4 (שניתן לשנות לשימוש עם AMPs אחרים) ושל המחקה הפפטידי RK758. תהליך עבודה זה משלב סינתזה כימית רב-שלבית או ביטוי רקומביננטי ב-E. coli עם בדיקות אנטימיקרוביאליות וציטוטוקסיטיות. שילוב הגישות הללו מספק פלטפורמה גמישה למחקר שיטתי של AMP, המאפשרת השוואות ישירות בין פפטידים מסונתזים כימית לבין פפטידים ביולוגיים. מספר שלבים בפרוטוקול זה קריטיים במיוחד להצלחת ייצור פפטידים והערכת פעילות.
RK758 הוא מחקה סינתטי של פפטידים המבוסס על פיגום אנתרנילאמיד. במהלך שלב הסינון המורכב לגילוי חיקויי AMP חדשים, קשה להשתמש בסינון סילקו כדי לתכנן ספריית תרכובות. לכן, חשוב לבסס את החיקויים הללו על פיגום שמאפשר גיוון בספריית התרכובות. מסיבה זו נבחר פיגום האנתרנילאמיד. יתרון נוסף של פיגום מבוסס אנתרנילאמיד הוא שהמטבוליט RK758, חומצה 5-ברומונתרנילית, הוכח כבעל תכונות אנטימיקרוביאליות.
עבודות קודמות שאופטימום את המבנה והפעילות האנטיבקטריאלית של RK758 ואנלוגיו השתמשו בשיטות סינתטיות שונות. מחקר אופטימיזציית המבנה המקורי חקר את השפעת קבוצות קטיוניות ומחליפים שונים על קבוצת הפניל האנתרנילית. לכן, הסינתזה החלה בפתיחת הטבעת של נגזרות האנידריד האיזוטיות עם L-טריפטופן מתיל אסטר. המכפלה יכלה להשתנות כפי שמוצג על ידי Kuppusamy ואחרים. מחקר המשך חקר את מבנה ומיקום הקבוצה ההידרופובית. המחקר המעקב הראה כי הפיגום שהוחלף על ידי ברומו סבל מגוון קבוצות הידרופוביות במיקום הנפתיל, וכי ה-4 הביניים מתאים לקישור צולב של סוזוקי במיקום הברומו, כפי שמוצג באיור 8.
העבודה הנוכחית טיפלה בכמה מהבעיות של הגישות הקודמות. בגישה המתוארת באיור 4, למרות סינתזה של טיהור ביניים 11 באמצעות טריטורציה עם אתר דיאתיל, ניסיונות לשחזר תוצאה זו הניבו מאז תערובות גומי לא טהורות שדורשות טיהור כרומטוגרפי. בנוסף, ביניים 6 דרש גם טיהור כרומטוגרפי באמצעות גישה זו. בסך הכול, העבודה המקורית השיגה תפוקה ביניים של 7 ל-21% בשישה שלבים מ-L-טריפטופן מתיל אסטר הידרוכלוריד. הגישההשנייה 15, אם כי בעלת תפוקה נמוכה יותר (14% מ-Cbz-L-טריפטופן), הניקה ביניים שהיו קלים יותר לטיפול בפחות שלבים.
מחקר זה זיהה כי חיבור Cbz-L-Trp ל-N-Boc-אתילנדיאמין דרש אופטימיזציה כדי להבטיח שלא יישאר DMF שארתי במוצר, כפי שנצפה במחקרים ראשוניים להגדלת התגובה הזו. שימוש במערכת ממס ממורכבת עם יחס 3:8 (v/v) של DMF ל-DCM הפחית את כמות ה-DMF, והקל על הסרה במהלך ההכנה; עם זאת, החלפת ממסים כלוריים עלולה לעורר חששות לגבי השפעה סביבתית. שינוי זה גם שיפר את התפוקה ל-87%, ככל הנראה מיוחס לתוצר הלוואי של אוריאה מ-EDC שמשקע בתערובת DCM, ומשמש ככוח מניע לתגובה. ההידרוגנציה זוהתה גם כצוואר בקבוק, שכן תגובות אלו בדרך כלל מניבות >90%. מחקר זה מצא כי החלפת THF במתנול הניבה 3 בתפוקה כמותית, לעומת 85% בעבודות קודמות, והקטינה את זמן התגובה ל-4 שעות. ניתן גם לייחס זאת לשימוש בחומר התחלתי טהור יותר, שכן המחקר המקורי ככל הנראה הכיל שאריות DMF, שיכולות היו להרעיל את זרז הפלאדיום. בסך הכל, בהשוואה לגישות קודמות, התפוקה ל-Intermediate 7 השתפרה ל-48% ב-5 שלבים לעומת Cbz-L-טריפטופן. בניסויים קודמים (שנדונים לעיל), התפוקה הכוללת הייתה 21%, עם 14% לתגובות המשך, בעוד שבמחקר זה הושגה תפוקה כוללת של 48% עבור תרכובת 7, מה שמדגים את המגוון של אנלוגים שניתן לסנתז מנגזרות איזאטואיות אנידרידים שהוחלפו כראוי.
האמין המנוטרל מאוד באנתרנילאמיד 4 (ראו איור 8) דורש שלושה מקבילים של כלוריד חומצי לתגובה יעילה. כאשר משתמשים רק בכמויות סטוכיומטריות, מתרחשת המרה לא שלמה של 4 ל-6, מה שמסבך את הטיהור בשל תכונות הכרומטוגרפיות והמסיסות הדומות של ביניים 4 ו-6. המחברים מכירים בכך במגבלה של הפיגום ופועלים לפתח שיטה חדשה להפחתת עודף הכלוריד החומצי הנדרש.
התגובה הלפני אחרונה לחיבור תיוראה 8 לאמין 7 דורשת כלוריד כספית (II), שהוא רעיל מאוד ומזיק מאוד לסביבה, מה שעלול למנוע שיטה זו לסינתזה בקנה מידה גדול. גישה זו שימשה בעבודה הנוכחית, שכן ההצמדה המתווכת של כספית (II) מתבצעת בטמפרטורת החדר. שיטה חלופית המשתמשת בתיוראה 8 כוללת אלקילציה של אטום הגופרית, ולאחר מכן החלפה נוקלאופילית במצע אמין, כפי שמוצג באיור 9. סוג תגובה זה דווח, אך במקרים רבים הוא דורש טמפרטורות גבוהות ותנאים בסיסיים שעלולים להוביל להיווצרות תוצרי לוואי עםהמצעים. לחילופין, באמצעות מצע תיוראה מתילציה דומה, דווח על גישה פוטוקטליטית על ידי Saetan ואחרים. הם מדווחים שתגובה זו מתרחשת בטמפרטורת הסביבה תחת הקרנה עם אור נורית LED לבנה. דווח כי תגובה זו מתרחשת במגוון אמינים ראשוניים ומשניים, ומניבה מוצרים של מעל 80%. לתגובה הסופית, טריטורציה עם אתר דיאתיל ואחריה ייבוש בהקפאה מניבה מוצר שבדרך כלל אינו דורש טיהור נוסף (>95% טהור על ידי 1H NMR ב-MeOD-d4). הזיהום העיקרי הוא 1,2-אתאנדיתיול שאריתי, בעל נקודת רתיחה גבוהה, שניתן לזהות בקלות על ידי ריחו הייחודי הדמוי כרוב. ביטוי רקומביננטי של Mel4 דורש השראה בצפיפות אופטיבית אופטימלית (OD600 0.5–0.6) ושמירה קפדנית על טמפרטורת ההשראה כדי למקסם את יצירת גוף ההכללה תוך שמירה על חיוניות חיידקית22.
בדיקות אנטימיקרוביאליות וציטוטוקסיות כוללות גם שלבים חיוניים להשגת תוצאות מדויקות וניתנות לשחזור. נדרשים הכנה מדויקת של אינוקולום ודילול סדרתי של פפטידים, שכן שינויים קטנים בצפיפות החיידקים או במסיסות הפפטידים יכולים לשנות משמעותית את ערכי MIC ו-MBCהנמדדים 16. בבדיקות ציטוטוקסיות MTT, ספירת תאים מדויקת, זריעה אחידה והמסה מלאה של פורמזן הם קריטיים לקבלת קריאות מטבוליות אמינות23.
מספר שינויים בפרוטוקול יכולים להתמודד עם אתגרים נפוצים. פפטידים בעלי מסיסות מימית מוגבלת יכולים להיות מומסים ב-0.01% חומצה אצטית16 , בעוד שגם פפטידים או מימיקים יכולים להיות ממוססים ב-DMSO24 או בתוספת של 0.1–0.2% BSA17 כדי למנוע ספיחה למשטחים פלסטיים במהלך קביעת MIC. גופי הכללה רקומביננטיים ניתנים להמיס ולקפל מחדש על ידי התאמת ריכוזי גואנידיניום כלוריד או אוראה, ולאחר מכן דיאליזה מדורגת. בבדיקות MTT, ניעור עדין והמסה מלאה של DMSO יכולים להפחית שונות בקריאות הספיגה.
המשמעות של פרוטוקול זה טמונה באינטגרציה של אסטרטגיות ייצור והערכה משלימות, ומציעה יתרונות על פני גישות סטנדרטיות בשיטה אחת. מחקרים רבים מתמקדים בשיטה אחת לייצור פפטידים או חיקויים, אך אין גישה אחת אידיאלית לכל התרכובות; בחירת השיטה המתאימה המבוססת על תכונות פפטידים מבטיחה תפוקה ופונקציונליות מיטבית. לדוגמה, סינתזה כימית מאפשרת שילוב מדויק של חומצות אמינו לא טבעיות וחיקוי פפטיד4, מה שעשוי להיות מאתגר במערכות רקומביננטיות. לעומת זאת, ביטוי רקומביננטי מציע ייצור חסכוני של פפטידים קטיונייםגבוהים 25 שעשויים להצטבר במהלך סינתזה כימית. על ידי שילוב שתי השיטות עם מבחנים פונקציונליים סטנדרטיים, הפרוטוקול מאפשר אפיון קפדני של פעילות AMP וטוקסיות, תוך שהוא עולה על היקף בדיקות MIC סטנדרטיותבלבד. 26.
בהשוואה לגישות המסורתיות העצמאיות, פרוטוקול זה רלוונטי באופן רחב למחקר ולפיתוח טיפולי של פפטידים אנטימיקרוביאליים. ניתן להתאים אותו לחקור קשרי מבנה-פעילות, למקסם את עוצמת הפפטידים, ולהעריך רעילות. יתרה מזאת, השיטות יכולות לתמוך בסקר מהיר של ספריות פפטידים, חקר מנגנוני עמידות חיידקים והערכת טיפולים משולבים עם אנטיביוטיקה קונבנציונלית. מעבר ליישומים אנטיבקטריאליים, תהליך עבודה זה עשוי לשמש גם לבדיקות פפטידים אנטי-ויראליות או אנטי-פטרייתיות, ציפויי משטח לבקרת זיהומים, ויישומים ביורפואיים כגון הפרעות ביופילם או אימונומודולציה.
לסיכום, פרוטוקול זה מספק זרימת עבודה רב-שימושית וניתנת לשחזור לייצור, טיהור והערכה תפקודית של AMPs וחיקויי פפטידים. על ידי התייחסות לשיקולים מתודולוגיים קריטיים, הצעת אסטרטגיות לפתרון תקלות ואפשרות ליישומים מגוונים, היא בונה בסיס איתן למחקר אנטי-מיקרוביאלי וביו-רפואי.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
המחברים מבקשים להודות למרכז האנליטי מארק וויינרייט ולמתקן המוצר הרקומביננטי (RPF) באוניברסיטת ניו סאות' ויילס. במיוחד, מתקן ספקטרומטריית מסה ביואנליטית לניתוח HRMS ומתקן NMR לגישה למכשירי NMR.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1,2-אתאנדיתיול | אוקווד | M03555 | |
| אנטיביוטיקה 100X | סיגמא אולדריץ' | A5955-20ML | |
| 1-אתיל-3-(3-דימתילאמינופרופיל)קרבודימיד הידרוכלוריד | קומבי בלוקים | SS-7536 | להלן ייקרא EDC |
| 2-נפתואיל כלוריד | קומבי בלוקים | OR-0173 | |
| חומצה אצטית | אייאקס פינכם | R18401O | |
| אצטוניטריל | VWR | 20060.35 | |
| פוספטאז אלקליני | ניו אינגלנד ביולאבס | M0525S | |
| אלבומין סרום בקר (BSA) | סיגמא אולדריץ' | A1933 | |
| מרק מולר-הינטון מותאם לקטיון (CAMHB) | בקטון, דיקינסון ושות' | 212322 | |
| Cbz-L-Trp | קומבי בלוקים | QB-6691 | |
| קוליסטין | סיגמא אולדריץ' | C4461 | |
| מרק מנטרל דיי-אנגלי (D/E) | אוקסואיד | R453042 | |
| אדמה דיאטומית (Celite 545) | סיגמא אולדריץ' | 102693 | גודל חלקיקים 0.02-0.1 מ"מ |
| דיכלורומתאן (DCM) | VWR | 23366.327 | |
| אתר דיאתיל | אספקת כימיה | EA036 | |
| דימתיל סולפוקסיד (DMSO) | Chem-Supply Pty Ltd | LCS-CHEM-0098 | |
| דיתיותרייטול (DTT) | תרמו-סיינטיפיק | J15397.03 | |
| מדיום תרבות DMEM | תרמו פישר סיינטיפיק | UCS-BIO-0058 | |
| מארח E. coli BL21(DE3) | סיגמא אולדריץ' | 70235-M | |
| אלקטרופורטור | תרמו-סיינטיפיק | NEON1SK | |
| אתיל אצטט | אספקת כימיה | EA011-2.5L-P | |
| אתילנדיאמינטרטראאצטית (EDTA) | תרמו-סיינטיפיק | 118432500 | |
| סרום בקר עוברי (FBS) | סיגמא אולדריץ' | 12003C-500ML | |
| מתויג שלו: TEV Protease | סיגמא אולדריץ' | T4455 | |
| הידרוקסיבנזוטריאזול הידראט | כימ-אימפלקס | 24755 | |
| אימידאזול | תרמו-סיינטיפיק | 288-32-4 | |
| איזופרופיל &בטא;-D-1-תיוגלאקטופירנוזיד (IPTG) | סיגמא אולדריץ' | I6758 | |
| מרק לוריה-ברטאני (LB), | תרמו-סיינטיפיק | 12795027 | |
| Lysis Buffer | תרמו-סיינטיפיק | 89822 | |
| כלוריד כספית (II) | סיגמא אולדריץ' | 215465 | |
| מתנול (גרייז' HPLC) | VWR | A452-4K | |
| מגיב MTT | סיגמא אולדריץ' | M2128-100MG | |
| N,N-דיאיזופרופילאתילאמין (DIPEA) | סיגמא אולדריץ' | 3440 | |
| N,N-דימתיל פורמיד (DMF) | אספקת כימיה | RP1051 | |
| ננודרופ | תרמו-סיינטיפיק | ND-ONE | |
| N-בוק-אתילנדיאמין | בלוקי קומבי | AM-1613 | |
| עמוד שרף זיקה NTA | סיגמא אולדריץ' | 70666 | |
| פלאדיום על פחמן | סיגמא אולדריץ' | 205699 | 10% עם שבוע Pd |
| ערכת טיהור פלסמידים | QIAGEN | 27104 | |
| צינורות מיקרוטיטר פוליפרופילן | SARSTEDT | 72.690.008 | |
| סיליקה ג'ל לכרומטוגרפיית עמודת פלאש | סיליסייקל | R12030B | סיליקה ג'ל 60, רשת 230-400; |
| ג'ל סיליקה לוח כרומטוגרפיה בשכבה דקה | מרק | 1055540001 | עובי שכבה 0.2 מ"מ על גיבוי אלומיניום עם מד פלואורסצנטי של 254 ננומטר |
| פוספט נתרן, סולן בופר 0.2M | תרמו-סיינטיפיק | J63816. AP | |
| פלטת מיקרוטיטר פוליפרופילן שטוחה עם תחתית סטרילית עם 96 בארות עם מכסה | קורנינג | 3599 | |
| ליגאז DNA של T4 | ניו אינגלנד ביולאבס | M0202S | |
| טריאתילמין (Et3N) | אספקת כימיה | TR02151000 | |
| חומצה טריפלואורואצטית (TFA) | סיגמא אולדריץ' | T6508 | |
| טריס-HCL | תרמו-סיינטיפיק | J62848. AK | |
| טריטון X-100 | תרמו-סיינטיפיק | A16046.AE | |
| כחול טרייפן | MP BIOMEDICALS AUSTRALIA PTY LTD | ||
| טריפסין-EDTA (0.25%) | סיגמא אולדריץ' | T4049-500ML | |
| Trypticase soya agar | בקטון, דיקינסון ושות' | 211043 | |
| אוריאה | תרמו-סיינטיפיק | 29700 | |
| וקטור (פרומפטור T7) | - | פלסמיד מספר עתיר עותק מועדף |
מקורות
- Naghavi, M., et al. Global burden of bacterial antimicrobial resistance 1990–2021: a systematic analysis with forecasts to 2050. Lancet. 404 (10459), 1199-1226 (2024).
- Antimicrobial resistance. , World Health Organization. Available at: https://www.who.int/news-room/fact-sheets/detail/antimicrobial-resistance (2023).
- Puri, B., Vaishya, R., Vaish, A. Antimicrobial resistance: Current challenges and future directions. Med. J. Armed Forces India. 81 (3), 247-258 (2025).
- Zhang, T., Jin, Q., Ji, J. Antimicrobial peptides and their mimetics: promising candidates of next-generation therapeutic agents combating multidrug-resistant bacteria. Adv. Biol. 9 (4), 2400461(2025).
- Pasupuleti, M., Schmidtchen, A., Malmsten, M. Antimicrobial peptides: key components of the innate immune system. Crit. Rev. Biotechnol. 32 (2), 143-171 (2012).
- Oliveira Júnior, N. G., et al. Antimicrobial peptides: structure, functions and translational applications. Nat. Rev. Microbiol. , (2025).
- Keshri, A. K., et al. LL-37, the master antimicrobial peptide, its multifaceted role from combating infections to cancer immunity. Int. J. Antimicrob. Agents. 65 (1), 107398(2025).
- Alzain, M., et al. Antimicrobial peptides: mechanisms, applications, and therapeutic potential. Infect. Drug Resist. , 4385-4426 (2025).
- Kuppusamy, R., Willcox, M., Black, D. S., Kumar, N. Short cationic peptidomimetic antimicrobials. Antibiotics. 8 (2), (2019).
- Xu, J. Peptides chemistry, manufacturing, and controls. Peptide Science: Chemical Ligation, Lead Generation, and Therapeutic Advances. , 471-508 (2025).
- Wang, Q., et al. Expression and purification of antimicrobial peptide buforin IIb in Escherichia coli. Biotechnol. Lett. 33 (11), 2121-2126 (2011).
- Cai, Z., et al. Peptide synthesis: a review of classical and emerging methods. Biofabrication. 18 (1), 012001(2026).
- Gentilucci, L., De Marco, R., Cerisoli, L. Chemical modifications designed to improve peptide stability: incorporation of non-natural amino acids, pseudo-peptide bonds, and cyclization. Curr. Pharm pseudo-peptide. Des. 16 (28), 3185-3203 (2010).
- Kuppusamy, R., et al. Tuning the anthranilamide peptidomimetic design to selectively target planktonic bacteria and biofilm. Antibiotics. 12 (3), 585(2023).
- Kuppusamy, R., et al. Guanidine functionalized anthranilamides as effective antibacterials with biofilm disruption activity. Org. Biomol. Chem. 16 (32), 5871-5888 (2018).
- Wiegand, I., Hilpert, K., Hancock, R. E. Agar and broth dilution methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nat. Protoc. 3 (2), 163-175 (2008).
- Ji, S., et al. Adsorption and morphology analysis of bovine serum albumin on a micropillar-enhanced quartz crystal microbalance. J. Phys. Chem. B. 128 (41), 10247-10257 (2024).
- Yasir, M., Dutta, D., Willcox, M. D. Activity of antimicrobial peptides and ciprofloxacin against Pseudomonas aeruginosa biofilms. Molecules. 25 (17), (2020).
- Methods for the determination of susceptibility of bacteria to antimicrobial agents. terminology. Clin. Microbiol. Infect. 4 (5), 291-296 (1998).
- Saetan, T., Sukwattanasinitt, M., Wacharasindhu, S. A mild photocatalytic synthesis of guanidine from thiourea under visible light. Org. Lett. 22 (20), 7864-7869 (2020).
- Woodring, J. L., et al. Disrupting the conserved salt bridge in the trimerization of influenza A nucleoprotein. J. Med. Chem. 63 (1), 205-215 (2019).
- Terpe, K. Overview of bacterial expression systems for heterologous protein production: from molecular and biochemical fundamentals to commercial systems. Appl. Microbiol. Biotechnol. 72 (2), 211-222 (2006).
- Berridge, M. V., Herst, P. M., Tan, A. S. Tetrazolium dyes as tools in cell biology: new insights into their cellular reduction. Biotechnol. Annu. Rev. 11, 127-152 (2005).
- Deni, W. H., Gao, T., Wu, J. Protocol for reconstituting peptides/peptidomimetics from DMSO to aqueous buffers for circular dichroism analyses. STAR Protoc. 5 (1), 102850(2024).
- Lou, M., et al. Microbial production systems and optimization strategies of antimicrobial peptides: a review. World J. Microbiol. Biotechnol. 41 (2), 66(2025).
- Hancock, R. E., Sahl, H. G. Antimicrobial and host-defense peptides as new anti-infective therapeutic strategies. Nat. Biotechnol. 24 (12), 1551-1557 (2006).
הדפסות חוזרות והרשאות
