פרוטוקול זה מספק שיטה סטנדרטית לבידוד והעשרת מיובלסטים ראשוניים משרירי השלד של עכברים בוגרים ויילודים באמצעות ניתוק רקמות, סינון רציף, ציפוי מוקדם ותנאי תרבית מוגדרים, המאפשר הקמה ותחזוקה של תרביות מיובלסטים שמקורן בתאי לוויין ליישומים ניסיוניים במורד הזרם.
מאמר שיטה
בידוד תאי לוויין שריר השלד למחקרי מיוגנזה במבחנה
* These authors contributed equally
במאמר זה
סיכום
תקציר
התחדשות וצמיחת שרירי השלד תלויים בתאי לוויין, תאי הגזע השוהים ברקמת השריר. כיום, תאים אלו משמשים כמודל חוץ גופי שמייצג בצורה המדויקת ביותר תהליכים מיוגניים טבעיים. עם זאת, הבידוד של תאי לוויין הוא מאתגר טכנית, שכן הם קיימים במספרים קטנים בתוך שריר השלד והטבע ההטרוגני הטיפוסי של אוכלוסיות התאים המבודדות. במחקר זה אנו מתארים שיטה סטנדרטית לבידוד והעשרת מיובלסטים ראשוניים משרירי שלד של עכברים בוגרים ויילודים. ההליך מפרט פירוק שריר, דיסוציאציה אנזימטית, סינון רציף, שלבי ציפוי מוקדם להגבלת תאים לא-מיוגניים, ותנאי תרבית מוגדרים להקמת תרביות מיובלסטיות שמקורן בתאי לוויין. הפרוטוקול מספק הנחיות מעשיות לגבי תזמון, טיפול וצעדים קריטיים לבניית תרבות מוצלחת. מיובלסטים ראשוניים שנוצרים באמצעות פרוטוקול זה יכולים לשמש למגוון יישומים במורד הזרם, כולל מחקרים של מיוגנזה, ניתוח פונקציונלי, מניפולציה גנטית, דימות תאים חיים או בדיקות סמים. התאים מתמזגים ומתבגרים באופן אמין, מה שהופך אותם למתאימים מאוד לחקר מיזוג מיובלסט, התפתחות שריר, מנגנוני התחדשות לשיקום תפקוד השריר השלדי וכן למטבוליזם שלהם.
מבוא
היכולת של שריר השלד להתחדש לאחר כל פגיעה בשלמותו תלויה באופן יסודי באוכלוסייה מיוחדת של תאי קדם מיווגניים, הידועים כתאי לוויין (SCs), שנקראו על שם מיקומם הלווייני לאורך המיופייבר. הם ממוקמים מתחת ללמינה סיבי השריר, המחוברים לסיבי השריר הרב-גרעיניים 1,2,3. SCs מאופיינים בביטוי של חלבון הקופסה הזוגי Pax7, אשר נשמר במספר מינים, כולל אדם, עכבר, קוף וחזיר. Pax7, שזוהה כסמן הראשון שניתן לזהות עבור SCs במצבים דוממים ומופעלים, חיוני להתפתחות והישרדות SCs4. בתנאים רגילים, SCs נשמרים במצב שקט (שלב G0 במחזור התא), המאופיין בפעילות מטבולית נמוכה ובחוסר פעילות שעתוקית 5,6. בעת פגיעת שריר או לחץ מכני, הם מופעלים, חוזרים למחזור התאים, מתרחבים במספרם ומתמיינים כדי לתרום לסיבי שריר חדשים או לתקן את הפגועים 7,8,9. במהלך תהליך זה, תת-קבוצה של תאי הגזע חייבים לעבור התחדשות עצמית, ולחזור למצב שקט (Pax7⁺) כדי לשמור על שלמות ארוכת הטווח של מאגר תאי הגזע. חידוש עצמי מתרחש באמצעות חלוקה א-סימטרית, שבה תא בת אחד שומר על תכונות דמויות גזע בעוד השני הופך למקור מיוגני מחויב, או דרך חלוקה סימטרית, שבה שני תאי הבת שומרים על זהות דמוית גזע או מתמיינים, בהתאם להקשר הפיזיולוגי והנישה 10,11,12.
SCs ממלאים תפקיד חיוני בהתחדשות שריר, מה שהופך אותם למוקד מרכזי בביולוגיה של שרירי השלד, רפואה רגנרטיבית ומחקר בדיסטרופיה שרירית. הבנת האופן שבו תאים אלה מתנהגים ומתפקדים לא רק מאירה את תהליכי היסוד של תיקון השריר, אלא גם סוללת את הדרך לפיתוח טיפולים לטיפול במצבים של התדרדרות שרירים ולהגברת ההתחדשות.
בידוד SCs מרקמת שריר הוא שלב קריטי במחקרים במבחנה , המאפשר חקירת מאפייני המולקולר, פוטנציאל השפעה, מסלולי התמיינות ותגובות לגירויים שונים. עם זאת, לתהליך זה יש מספר אתגרים טכניים בשל מבנה השריר המורכב, השפע הנמוך יחסית של תאי לוויין בהשוואה לסוגי תאים אחרים, והצורך לשמור על חיוניותם וגזעולם במהלך הבידוד.
כיום, שלוש טכניקות עיקריות משמשות לבידוד תאים מגנטיים: שיטת הקדם-ציפוי, מיון תאים מופעל על ידי פלואורסצנציה (FACS), ומיון תאים מופעל-מגנטי (MACS). כל שיטה מציעה יתרונות ומגבלות מובחנים מבחינת טוהר, תפוקה, חיוניות תאים ושימור SCs.
שיטת הקדם-ציפוי מנצלת את תכונות ההדבקה השונה של תאים שמקורם בשריר, כאשר ה-SC הם בין הפחות דבקים. לאחר עיכול אנזימטי של שריר השלד, תליית התאים ההטרוגנית שנוצרת מצופה על לוחות תרבית שבדרך כלל מצופים בקולגן סוג I. לאחר דגירה של 1-24 שעות (בהתאם לפרוטוקול) בטמפרטורה של 37°C, תאים שאינם דבקים נאספים ומועברים לפלטה מצופה מטריג'ל להמשך תרבית 13,14,15,16. האוכלוסייה המתקבלת כוללת בדרך כלל גם SCs וגם פיברובלסטים, וכן מספר קטן של שומנים ותאי אנדותל 17,18. חזרה על תהליך ההכנה כל 24-48 שעות למשך עד שבוע עבור SCs שבודדו מעכברים בוגרים ועד שבועיים לתינוקות יכולה לשפר את טוהר אוכלוסיית התאים. למרות ששיטה זו חסכונית וטכנית פשוטה, היא דורשת עבודה רבה ולעיתים מניבה תרביות עם הרכב משתנה. שיטת הפרה-ציפוי מתאימה למעבדות ללא FACS או MACS, ומציעה דרך פשוטה להעשיר תאי לוויין תוך שמירה על חיוניות ותכונות דמויות גזע. לכן, מומלץ בדרך כלל לשלב גישה זו עם שיטות טיהור נוספות כדי לשפר את הטוהר הכולל של אוכלוסיית התאים. בפרוטוקול הנוכחי, אופטימיזציה את שלב הקדם-ציפוי על ידי שימוש בלוחות מצופים בקולגן והתאמת התזמון בהתאם למודל. הידבקות שונה זו מזרזת את הסרת הפיברובלסטים, מקצרת את תקופת הטרום-ציפוי, תוך שימוש בגורמי גדילה, ומפחיתה הן את זמן הטיפול והן את הלחץ התאי במהלך הבידוד.
FACS היא שיטה נפוצה לבידוד תאי לוויין המבוססת על ביטוי של סמני משטח ספציפיים (α7-אינטגרין, CD34, CD29, β1-אינטגרין, CXCR4), המאפשרת טוהר וספציפיות גבוהים19,20. עם זאת, לעיתים קרובות הוא מאתגר בשל מורכבות טכנית, עלות נוגדנים גבוהה, והצורך בציוד ייעודי. יתרה מזאת, הלחץ המכני והביוכימי שמופעל במהלך המיון עלול לפגוע בחיוניות התא. הדרישה ליצירת תלייה חד-תאית עלולה לגרום לאובדן משמעותי של תאים, בעוד שהסתמכות על סמנים פלואורסצנטיים ספציפיים עלולה להוביל לייצוג לא מלא של הטרוגניות של תאי לוויין. בנוסף, עיכול אנזימטי, המשמש לפירוק תאים, עלול לפרק אנטיגנים קריטיים על פני השטח, ובכך להשפיע על זיהוי ובידוד מדויקים, ועלול גם לפגוע בתפקוד המיובלסט21,22. FACS מתאים לבידוד אוכלוסיות טהורות מאוד בפרק זמן קצר, במיוחד כאשר נדרשת רזולוציה פנוטיפית מדויקת. עם זאת, שיטה זו פחות מתאימה כאשר שמירה על תאים שלמים ובריאים היא קריטית, בשל הלחצים המכניים והביוכימיים המופעלים במהלך המיון, או במעבדות שחסרות ציוד ייעודי.
MACS, לעומת זאת, היא טכניקה המשמשת לבידוד תאי לוויין על ידי קישור חרוזים מגנטיים המחוברים לנוגדנים נגד סמנים מסוימים של פיברובלסטים ותאי מערכת החיסון הכלליים על פני השטח שלהם, ולאחר מכן הפרדתם מאוכלוסיות תאים לא רצויות באמצעות שדה מגנטי. שחרור הברירה השלילית מהשלב הנייח הוא אוכלוסיית התאים הלווייניים הרלוונטית. MACS מאפשר העשרה יעילה של תאי לוויין בעלי טוהר ויכולת הרחבה יחסית גבוהים, תוך דרישה לציוד ופחות מומחיות טכנית מיוחדת בהשוואה ל-FACS. יתרה מזאת, תהליך ההפרדה המגנטית העדין שלו שומר על שלמות התא, מה שהופך אותו למתאים ליישומים בהמשך כמו תרבית תאים, ניתוח ביטוי גנים ומחקרי השתלות. עם זאת, MACS מוגבל על ידי טוהר נמוך יותר כאשר נדרשים מספר סימנים, אפשרות לקישור לא ספציפי או העברת חרוזים, ומחוסר בנתונים כמותיים על ביטוי סמן 23,24,25.
למרות זמינות פרוטוקולים לבידוד תאי שריר שלד, השגת תרביות ראשוניות ניתנות לשחזור ואחידות מבחינה הרכב נותרת מאתגרת, במיוחד בשל שונות התפתחותית וייחודית לרקמה. הבידוד של SC משרירי יילודים אופיין פחות באופן נרחב מאשר בשרירים בוגרים, עם פחות פרוטוקולים שפורסמו, רבים מהם דורשים אופטימיזציה נוספת בהתאם לתנאים טכניים ולמטרות ניסוי 26,27,28. התאמת פרמטרים, כולל ריכוז האנזימים, משך העיכול ותנאי התרבית, נדרשת לעיתים קרובות בשלבי התפתחות שונים - במיוחד אצל יילודים - כדי להשיג תפוקה מקסימלית, חיוניות וטוהר של תאי לוויין מבודדים. במאמר זה אנו מדגים פרוטוקול אופטימלי לבידוד תאי לוויין משרירי השלד של עכברים בוגרים ויילודים (ימים 6-14 לאחר הלידה, P6-P14), המשלב פרה-פלטה ומיון MACS עם התאמות לתזמון הפלטה המוקדמת והרכב התווך. פרוטוקול זה מציע אוכלוסיית תאים ניתנת לשחזור בשלבי התפתחות, כאשר תאים מבודדים מראים טוהר וחיוניות גבוהים. צביעת חיסון מצביעה על כך ששיעור תאי Pax7+ עולה בדרך כלל על 97%. יתרה מזאת, מיובלסטים אלו מציגים פוטנציאל התמיילות עמיד, ויוצרים ביעילות מיוטופסות רב-גרעיניות לאחר החלפת תווך הגידול במדיום התמיינות. ניתן לצפות במיוטיפסאות מופרדות באמצעות מיקרוסקופ פאזה-ניגודיות או לאמת באמצעות צביעת חיסון לשרשרת כבדה במיוזין (MHC), סמן המציין סיבי שריר בוגרים.
פרוטוקול
עכברים זכרים בוגרים (בני 3 חודשים) מהגנוטיפ C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J, וכן עכברים זכרים ונקבות (ימים 6-14 לאחר הלידה, P6-P14) של הגנוטיפ C57BL/6J x flox/MK5/flox, שימשו במחקר זה. העכברים הוחזקו וגודלו בתנאים נטולי פתוגנים במתקן בעלי החיים של מכון ננקי לביולוגיה ניסויית, PAS. במהלך הניסויים, העכברים קיבלו תזונה קונבנציונלית של מכרסמים. טיפול בבעלי חיים והמתת חסד בוצעו בהתאם להנחיות מועצת הקהילות האירופית שאומצו בפולין (חוק מ-15 בינואר 2015, בנוגע לשימוש בבעלי חיים במחקר). מכיוון שכל המחקרים השתמשו ברקמות מבעלי חיים מבלי לגרום לסבל, לא נדרש אישור מוועדת אתיקה. ההליכים בוצעו תחת פיקוח ואישור מנהל מכון ננקי לביולוגיה ניסויית. האישורים הפנימיים הבאים ניתנו: 410P/2021/IBD ו-487W/2022/IBD. לניסויים, נותחו שרירי הגפיים האחוריות הבאים בבעלי חיים בוגרים: גסטרוקנמיוס, סולאוס, אקסטנסור דיגיטרום לונגוס, וטיביאליס קדמי. בתינוק החדש, נבדקו כל שרירי הגפה האחורית והגפיים הקדמית של הטרייספס.
סקירה סכמטית של ההליך לבידוד וטיהור מיובלסטים ראשוניים משרירי הגפה האחורית של עכברים מוצגת באיור 1.
מידע על החומרים והציוד המשמשים במחקר זה מסופק בטבלת החומרים.
1. ניתוח שרירים
- הורד את העכבר בהתאם להנחיות שאושרו על ידי IACUC במוסד.
- נתח את שרירי הגפיים האחוריות מחוץ לארון הבטיחות הביולוגית. רסס את הגפיים האחוריות ב-70% אתנול ומקם את העכבר במצב שכיבה.
הערה: טכניקת סטרילית אינה נדרשת לשלב זה, למעט שימוש במכשירי ניתוח אוטוקלביים ו-70% אתנול לניקוי פני השטח. - איסוף שרירים
- הסר בזהירות את העור משתי הגפיים האחוריות באמצעות מספריים עם אוטוקלב כדי לחשוף את השרירים שמתחת. באמצעות מספריים סטריליים ומלקחיים, יש לבצע חתך בעור הגבי ולקלף אותו בעדינות כדי לחשוף לחלוטין את שרירי הגפיים האחוריות. הסר כל רקמת שומן וגיד גלויים כדי להבטיח הכנה נקייה.
- קילפו בזהירות את הפאשיה שמקיפה את בטן השריר כדי להבטיח בידוד הומוגני יותר ופחות זיהום. המשך לבודד את הרקמות ואיסוף שרירים מגפה אחורית אחת. העבר מיד את השרירים לפלטת תרבית המכילה 1x סליין מפוזר-פוספט עם 1% פניצילין וסטרפטומיצין (PBS + P/S). חזור על הניתוח של הגפה האחורית הנגדית ומניח את השרירים בפלטת תרבית שנייה המכילה PBS + P/S.
הערה: טווח הגילאים האופטימלי לעכברים שזה עתה נולדו הוא יום 6 לאחר הלידה (P6) ועד יום 14 לאחר הלידה (P14). מתחת ל-P6, בידוד השרירים פחות מדויק ועלול לגרום לזיהום מהרקמות הסובבות, ובכך להפחית את ההומוגניות של התרבית. החל מ-P6, בידוד בטני השרירים - מהמקור ועד גידי ההחדרה - הופך לנקי יותר וכך משפר את איכות ה-explants. בעכברים שזה עתה נולדו, שרירים של כמה בעלי חיים עשויים להתאגד ללוח אחד. מעתה ואילך, כל ההליכים צריכים להתבצע בתנאים סטריליים בארון בטיחות ביולוגית כדי למנוע זיהום, ובטמפרטורת החדר (RT) אם לא צוין אחרת.
- רסס את החלק החיצוני של הפלטה ב-70% אתנול לפני העברתה לארון בטיחות ביולוגית סטרילי. באמצעות זוג שני של מלקחיים עם אוטוקלב, העבר את השרירים מלוח התרבית לבאר הראשונה של צלחת 6 בארות המכילה PBS + P/S, ואז מוסיפים 2-3 טיפות בטדין (100 מ"ג/מ"ל) לניקוי הרקמה. לאחר ניעור עדין של פחות מ-10 שניות, העבר במהירות את השרירים דרך הבאר השנייה והשלישית המכילה PBS + P/S טרי כדי לשטוף היטב את הבטאדין ולהוציא כל שיער, רקמת חיבור או פסולת שנותרה.
הערה: אין לחשוף שרירים לבטאדין לתקופה ממושכת, שכן הוא עלול להיות רעיל לתאים.
2. עיכול שרירים
- באמצעות זוג שני של מלקחיים עם אוטוקלב, העבר את השרירים השטופים לשני צינורות של 1.5 מ"ל (צינור אחד לכל קבוצת שריר בגפה האחורית). קצצו דק את הרקמה עם מספריים אוטוקלביים עד שהשריר מצטמצם לחתיכות קטנות ואחידות בגודל של כ-1-2 מ"מ, כדי להבטיח חשיפה אחידה במהלך עיכול אנזימי נוסף.
- עיכול קולגנאז
- העבר את השרירים הקצוצים לצינורות פירוק רקמות, המכילים 0.2% קולגנאז ב-Modified Eagle Medium (DMEM) של Dulbecco, המסונן במסנן נקבוביות של 0.2 מיקרון. השתמש בצינור דיסוציאציה אחד לכל קבוצת שריר בגפה האחורית, תוך שמירה על יחס של 500 מ"ג רקמה ל-3 מ"ל של תמיסת קולגנאז.
הערה: קולגנאז הוא אנזים פרוטאוליטי שיכול לגרום לגירוי בעור ולעיניים ולרגישות נשימתית אם נשאף אותו. לטפל באבקה במכסה אדים כימי ולבש ציוד מגן אישי מתאים.
חיתוך יסודי של רקמת השריר בשלב זה הוא קריטי להשגת תפוקה מיטבית של המיובלסט. עם זאת, אם מסת הרקמה הכוללת עולה על 500 מ"ג, יש להגדיל את כמות הקולגנאז באופן פרופורציונלי, שכן רקמה מופרזת עלולה לפגוע ביעילות העיכול האנזימטי בריכוז האנזים המתואר להלן. - דגרו את הדגימות למשך 30 דקות בטמפרטורה של 37 מעלות צלזיוס כדי להתחיל עיכול אנזימטי.
- העבר את השרירים הקצוצים לצינורות פירוק רקמות, המכילים 0.2% קולגנאז ב-Modified Eagle Medium (DMEM) של Dulbecco, המסונן במסנן נקבוביות של 0.2 מיקרון. השתמש בצינור דיסוציאציה אחד לכל קבוצת שריר בגפה האחורית, תוך שמירה על יחס של 500 מ"ג רקמה ל-3 מ"ל של תמיסת קולגנאז.
- לבצע דיסוציאציה של רקמות באמצעות דיסוציאטור רקמות מכני באמצעות תוכנית m_muscle_01 (מתייחסת לתוכנית ספציפית, מוגדרת מראש ואופטימלית על הדיסוציאטור הכוללת ערבוב מכני מבוקר) שנועדה להקל על עיכול אנזימטי תוך שמירה על חיוניות התא. יישם את התוכנית פעמיים כדי לשפר את ההפרעה המכנית של הרקמות.
- אם אין מפרק רקמות זמין, העבירו את השרירים הקצוצים דרך מחט מזרק של 20 גרם מספר פעמים עד שמתקבל תלייה הומוגנית ללא שברי רקמה גדולים.
לחילופין, להעביר את השריר הקצוץ לצינור קוני של 15 מ"ל עם 0.2% קולגנאז במקום.
- אם אין מפרק רקמות זמין, העבירו את השרירים הקצוצים דרך מחט מזרק של 20 גרם מספר פעמים עד שמתקבל תלייה הומוגנית ללא שברי רקמה גדולים.
- דגרו את הדגימות שוב למשך 30 דקות נוספות בטמפרטורה של 37 מעלות צלזיוס להשלמת תהליך העיכול.
- חזור על שלב 2.3 שוב כדי להבטיח ניתוק מכני יסודי של הרקמה שנותרה.
הערה: שימו לב היטב לעיכול השרירים בשלב זה. הרקמה צריכה להיות כמעט מפורקת לחלוטין, עם מעט מאוד שברים נראים לעין, ומרכז העיכול אמור להיראות מעונן. דגירה מופרזת פוגעת בתאים.
3. סינון תאים
- הניחו מסננת תאים של 100 מיקרון מעל צינור קונוסי בקוטר 50 מ"ל. הרטיב את המסננת ב-1 מ"ל של מדיום ניטרלי (NM) מחומם מראש (עד 37 מעלות צלזיוס) המכיל רמת סוכר גבוהה DMEM עם 10% סרום בקר עוברי (FBS) ו-1% P/S.
- שפוך את תליית השריר המעכלת על מסננת 100 מיקרון הרטובה. שטפו את המסננת עם עוד 1 מ"ל של NM כדי להסיר שאריות רקמה.
- בצינור קונוסי חדש בנפח 50 מ"ל, יש להניח מסננת תא בנפח 70 מיקרון ולהרטיב אותה מראש ב-1 מ"ל של מדיום NM. העבירו את הסינון מהמסננת של 100 מיקרון דרך מסננת 70 מיקרון רטובה מראש כדי להסיר עוד תאים חודרים גדולים יותר, כולל מקרופאגים. שטוף את מסננת 70 מיקרון עם 1 מ"ל של NM כדי לשחזר תאים שנותרו.
- בצינור קוני חדש בנפח 50 מ"ל, מניחים מסננת תאים של 40 מיקרון ומעבירים את תערובת התאים דרך מסננת 40 מיקרון שהורטבה מראש. שטפו את מסננת ה-40 מיקרון ב-1 מ"ל של NM כדי לשחזר את התאים שנותרו.
- הכינו מסננת תאים של 30 מיקרון על צינור קוני של 15 מ"ל והרטיבו אותו מראש ב-1 מ"ל NM. העבר את הסינון מהמסננת של 40 מיקרון דרך מסננת 30 מיקרון שהורטבה מראש כדי ללטש עוד יותר את מתלי התא. שטוף את מסננת 30 מיקרון עם 1 מ"ל NM כדי למקסם את התאוששות התאים.
- צנטריפוגה את תליית התאים שנאספה ב-300 × גרם למשך 15 דקות ב-RT. אשר כי גלריית תאים לבנים נראית בתחתית הצינור. בעבודה מתחת לארון ביו-בטיחותי סטרילי, הסר בזהירות והשליך את הסופרנטנט (מדיום העיכול).
הערה: לאחר הצנטריפוגה, ניתן להשעות את כדור התא במדיום רביית המיובלסט (MPM) ולהמשיך ישירות לסעיף 5 להעשרת המיובלסט, או, אופציונליה, להיחשף למיון תאים מופעל-מגנטי (MACS, המתואר להלן) כדי להגדיל עוד יותר את טוהר אוכלוסיית המיובלסט.
4. (אופציונלי) מיון תאים מופעלים על ידי מגנטיות
- החזירו את כדור התא שהושג בשלב 3.6 בבופר מיון MACS טרי המורכב מ-1x PBS (pH 7.2), 0.5% FBS ו-2 mM EDTA. השתמש ב-80 מיקרו-ליטר של בופר לכל גרם רקמה מקורית.
הערה: שמור על מאגר המיון של MACS בטמפרטורה של 2-8 מעלות צלזיוס לאורך כל ההליך. - הוסף 20 מיקרול של תגובת תיוג מגנטית לבידוד תאי לוויין לכל עד גרם אחד של רקמה.
הערה: לדגימות קטנות מ-1 גרם, השתמשו באותם נפחי תגובה כפי שמצוין עבור 1 גרם. לדגימות גדולות מ-1 גרם, יש להגדיל את כל נפחי המגיב באופן פרופורציונלי (למשל, עבור 2 גרם רקמה, השתמשו בפי 2 בנפח המגיב שגדל). - ערבבו בעדינות את הדגימה כדי להבטיח תיוג הומוגני ודגרו את הדגימה במשך 15 דקות בטמפרטורה של 2-8 מעלות צלזיוס על קרח.
- לאחר הדגירה, כוונו את הנפח הכולל ל-500 מיקרוליטר באמצעות בופר מיון MACS לדגימות שמקורן עד 5 גרם רקמה. בכמויות רקמות גדולות יותר, חלקו את המתלה באופן שווה בשווה למספר צינורות כדי לשמור על יעילות הפרדה מיטבית.
- הפרדה מגנטית ואיסוף תאי לוויין
הערה: בצע הפרדה מגנטית באמצעות מערכת הפרדת תאים מגנטיים בהתאם להוראות היצרן.- הצב עמוד הפרדה בשדה המגנטי של המפרק המגנטי. שטוף את עמודת ההפרדה עם 3 מ"ל של בופר מיון כדי לאזן אותה לפני יישום הדגימה.
- מרחים את תליית התא המסומנת על העמודה ואספו את שבר הנוזל, המכיל את אוכלוסיית התאים העשירה בלוויין.
- שטוף את העמודה עם שני חלקים עוקבים של 1 מ"ל של בופר מיון. הוסף כל אליקווט רק לאחר שמאגר העמודה התרוקן. אסוף את התאים שעוברים דרכם ומשלב אותם עם הנוזל מהשלב 4.5.3.
- צנטריפוגה את המתלה המשולב של התא ב-300 × גרם ב-RT למשך 10 דקות כדי לשחק את תאי הלוויין המבודדים ב-MPM.
5. טיהור המיובלסט (שלב טרום-ציפוי)
- הכינו צלחות מצופות קולגן.
- מדלל קולגן עכברוש מסוג I בחומצה אצטית של 20 מ"מ (מומס במים מזוקקים סטריליים) לריכוז עבודה של 50 מיקרוגרם/מ"ל והוסף לכלי התרבית. תדגור ב-RT לשעה אחת.
הערה: נדרש כ-5 מ"ל של 50 מיקרוגרם/מ"ל קולגן כדי לצפות לוח בגודל 100 מ"מ עם שטח פנים של ≈80ס"מ רבוע. - שאפו בזהירות תמיסה מהצלחות.
- שטוף היטב את הלוחות 3 פעמים עם PBS סטרילי 1x בנפחים שווים כדי לנקות את החומצה שנותרה.
הערה: הלוחות מתאימים לשימוש מיידי או ניתן לייבש באוויר ולאחסן אותם בטמפרטורה של 2-8 מעלות צלזיוס עד לצורך.
- מדלל קולגן עכברוש מסוג I בחומצה אצטית של 20 מ"מ (מומס במים מזוקקים סטריליים) לריכוז עבודה של 50 מיקרוגרם/מ"ל והוסף לכלי התרבית. תדגור ב-RT לשעה אחת.
- כדורי תא מושהים שהושגו בשלב 3.6 או 4.5.4 ב-10 מ"ל של מדיום מתרבות מיובלסט (MPM) שחמם מראש ל-37 מעלות צלזיוס.
- הכינו MPM למיובלסטים בוגרים של עכברים המכילים DMEM גבוה גלוקוז, 20% FBS, 10% סרום סוס (HS), 0.5% תמצית עובר עוף (CEE), 20 ng/mL פקטור גדילה בסיסי פיברובלסטים (bFGF)מומס ב-H2 O מזוקק סטרילי, ו-1% P/S או MPM למיובלסטים של עכבר יילוד המכילים מדיום F10 (תומך בצמיחה מבוקרת וסלקטיבית יותר לתרבות יילודים, שמכיל שיעור גבוה יותר של פיברובלסטים), 20% FBS, 10% HS, 0.5% CEE, 20 ng/mL bFGF, ו-1% מ-P/S.
הערה: הוסף bFGF ישירות למדיום התרבית לריכוז סופי של 20 ng/mL. bFGF חיוני לשימור המצב הבלתי מובחן של המיובלסטים ולקידום התרבות שלהם29.
CEE גם מקדם צמיחת מיובלסט והתפשטות, וכן ממלא תפקיד חשוב בשימור תרביות מיובלסטיות בריאות על ידי מניעת מיזוג מיובלסטים ספונטני 14,30,31. - כאשר התרבית מגיעה לטוהר מיוגני גבוה יותר (בדרך כלל לאחר שלושה מעברים), ניתן לעבור את המדיום במיובלסטים יילודים ל-MPM המורכב מתערובת 1:1 של DMEM ו-F10 בעלי גלוקוז גבוה, ובהמשך לנוסחה הסטנדרטית של MPM המשמשת למיובלסטים של עכברים בוגרים.
הערה: חשוב לוודא מראש את הטוהר ההתחלתי, שכן שינויים בתווך יבטלו את היתרון הסלקטיבי של המיובלסטים על פני פיברובלסטים. - תאי פרה-פלטה.
- ציפוי ראשוני
- מיובלסטים בוגרים: תאי זרע על לוחות מצופים קולגן. שמור את הפלטה באינקובטור של 37 מעלות צלזיוס,CO2 למשך 24 שעות.
- מיובלסטים יילודים: משלבים את התאים על צלחות מצופות קולגן ומודגרים במשך 24 שעות. לשמור תרביות ב-MPM עם תוספת F10 בינונית (ראו סעיף 5.4), אלא אם צוין אחרת.
הערה: בשלב זה, בדיקה מיקרוסקופית מגלה תערובת הטרוגנית של חלקי שריר ותאים (איור 2A).
פיברובלסטים ניאונטליים מציגים יכולת רבייה גבוהה, גמישות ציטוסקלטית מוגברת (המאופיינת ברשת אקטין-מיוזין פחות קשיחה ותחלופת הידבקות מוקדית דינמית יותר), ומציגים פרופילי ביטוי אינטגרין ייחודיים, בהשוואה לפיברובלסטים בוגרים32,33. תכונות אלו מאפשרות הידבקות יעילה למשטחי התרבית גם בהיעדר ציפויים חיצוניים חיצוניים, כגון קולגן. לכן, עבור מיובלסטים יילודים, ניתן להחליף פלטות מצופות קולגן בפלסטיק סטנדרטי של תרבית רקמה לא מצופה, אם כי זה עשוי להגדיל את מספר הלוחות הנדרשים לפני הפלטות.
- ציפוי שני
- מיובלסטים בוגרים: באמצעות פיפטה סרולוגית של 10 מ"ל, העבר בעדינות את התאים שעדיין תלויים ב-MPM לפלטה מצופה קולגן שחוממה מראש ל-37 מעלות צלזיוס. שטוף את הצלחת המקורית ב-1-2 מ"ל של MPM חם כדי לשחזר תאים שנותרו לא מחוברים. שמור את הפלטה באינקובטור של 37 מעלות צלזיוס,CO2 למשך 6-8 שעות.
הערה: יש לעקוב בקפידה אחר התהליך באמצעות מיקרוסקופ פאזה-ניגודיות כדי להבטיח שכל התאים הלא-דבקים, המייצגים את כל ספקטרום התאים המיוגניים, נאספים ומועברים ללוחות תרבית חדשים. - מיובלסטים יילודים: חזרו על ציפוי שני על לוחות מצופים קולגן למשך 16 שעות נוספות, תוך שטיפה של הפלטה המקורית ב-1-2 מ"ל של MPM F10 חם כדי לשחזר תאים שנותרו לא מחוברים.
הערה: תאים גדולים, בעיקר פיברובלסטים, יישארו מחוברים לתחתית הפלטה המצופה בקולגן (איור 2B ואיור 3).
- מיובלסטים בוגרים: באמצעות פיפטה סרולוגית של 10 מ"ל, העבר בעדינות את התאים שעדיין תלויים ב-MPM לפלטה מצופה קולגן שחוממה מראש ל-37 מעלות צלזיוס. שטוף את הצלחת המקורית ב-1-2 מ"ל של MPM חם כדי לשחזר תאים שנותרו לא מחוברים. שמור את הפלטה באינקובטור של 37 מעלות צלזיוס,CO2 למשך 6-8 שעות.
- ציפוי ראשוני
- תאי ציפוי על לוחות מצופים במטריג'ל
- הכינו תמיסה של 10% Matrigel על ידי דילול Matrigel עם DMEM קר. בעזרת קצה מפזר, ציפוי באופן אחיד את משטח הצלחת עד שהיא מכוסה לחלוטין. תן למטריג'ל לפולימר ב-37 מעלות צלזיוס למשך 15 דקות.
הערה: ציפוי מטריג'ל צריך להתבצע על קרח, שכן הוא מתפשט במהירות ב-RT. - העבר תאים לא דביקים מפלט מצופה קולגן ללוח מצופה מטריג'ל. שטוף את הפלטה המצופה בקולגן ב-1-2 מ"ל של MPM חם כדי לשחזר תאים שנותרו. השאירו את הפלטה באינקובטור CO2 בטמפרטורה של 37 מעלות צלזיוס למשך 72 שעות.
- עבור מיובלסטים בוגרים, יש לוודא שהתרבית מכילה בעיקר מיובלסטים קטנים, מעוגלים ודבקים לאחר 72 שעות (איור 2C). ייתכן שגם כמה פיברובלסטים גדולים בצורת משולש קיימים, אך בשפע נמוך מאוד. אם עדיין קיימים מספר רב של פיברובלסטים לאחר הזרעה במטריג'ל, חזור על שלבי ההכנה של 2-6 שעות, בהתאם לשפע הפיברובלסטים.
- עבור מיובלסטים יילודים, יש לבצע מעברים נוספים בשילוב שלב טרום-ציפוי להסרת פיברובלסטים ולהעשיר בהדרגה את אוכלוסיית המיובלסט מהתרבית ההטרוגנית הראשונית.
- הכינו תמיסה של 10% Matrigel על ידי דילול Matrigel עם DMEM קר. בעזרת קצה מפזר, ציפוי באופן אחיד את משטח הצלחת עד שהיא מכוסה לחלוטין. תן למטריג'ל לפולימר ב-37 מעלות צלזיוס למשך 15 דקות.
6. תחזוקה והרחבה של מיובלסטים
- לשמור על מיובלסטים מטוהרים בתרבית על ידי דגירתם ב-MPM, והחלפת המדיום כל יומיים.
הערה: הימנעו מלתת לתאים לעבור את החיבור של 60-70%, שכן צפיפות גבוהה עלולה לגרום לאיחוי מיובלסט ספונטני ולהתחיל התמיינות. - אם צריך, להרחיב את התרבית על ידי פיצול התאים למספר פלטות מצופות ב-10% מטריג'ל.
הערה: מיובלסטים בוגרים: בדרך כלל מומלץ להשתמש ב-2-3 מעברים, שכן מעברים נוספים מגבירים את הארכת התאים ואת האיחוי הספונטני. מיובלסטים יילודים יכולים בדרך כלל לעבור 5-6 מעברים ללא מיזוג ספונטני משמעותי.- כדי להרחיב את אוכלוסיית המיובלסט, השתמשו בתערובת 1:1 של DMEM ו-F10 ב-MPM החל ממעבר 3, לאחר שהזיהום בפיברובלסטים פחת משמעותית. בקטע 4, התרבות מורכבת בדרך כלל מאוכלוסייה כמעט טהורה של המיובלסט; עבור ל-MPM עבור מיובלסטים של עכבר יילודים.
7. התמיינות מיובלסט
- תדמיין את התאים תחת מיקרוסקופ. ודאו שהתאים אחידים יחסית, קטנים, עגולים או בצורת כישר, מתרבים באופן פעיל, ואינם צפופים מדי. זה מבטיח שהתרבות מוכנה להבדיל.
- ציפוי את משטח תרבית הרקמה המתאים לעיצוב הניסוי ב-10% מטריג'ל, כפי שמתואר בסעיף 5.6.1.
הערה: למרות שאיכות ההדמיה עדיפה על משטחי זכוכית, תאים מיוגניים הראו ירידה בהידבקות ובחיוניות בתאי זכוכית, ככל הנראה בשל הידבקות נמוכה יותר לחלבון Matrigel בהשוואה לפלסטיק בתרבות רקמה34. - נתק את התאים על ידי הוספת 2 מ"ל של 0.25% טריפסין-EDTA ודוגר בטמפרטורה של 37°C באינקובטור CO₂ למשך 2-5 דקות.
- בדקו את התרבית תחת מיקרוסקופ כדי לוודא שכל התאים נפרדו. לאחר השלמת הניתוק, הוסף 2 מ"ל מדיום מנטרל (ראו סעיף 3.1).
- צנטריפוגה את תליית התא ב-300 × גרם ב-RT למשך 10 דקות כדי להפיל את התאים.
- החזירו וזרעו מיובלסטים ראשוניים על לוחות גידול מצופים במטריג'ל ודגרו בטמפרטורה של 37 מעלות צלזיוס באינקובטור CO₂ למשך 24 שעות.
- למחרת, החליפו את MPM במדיום התמיינות מיובלסט (MDM) המכיל DMEM גבוה גלוקוז, 5% HS ו-1% P/S.
הערה: כדי להשיג יצירת מיוטבוב איכותית, יש לוודא שמיובלסטים מגיעים ל-80-90% מפגש לפני המעבר למדיום התמיינות. אם לא מושג המפגש הרצוי ביום הבא, המשך דגירה עד להשגת צפיפות מיטבית.
8. צביעת חיסון של מיובלסטים ומיוטיובוז
- שטוף את התאים פעמיים עם 1x PBS כדי להסיר את שאריות המדיום.
- מקבע את התאים ב-4% פאראפורמלדהיד (PFA) ב-1x PBS למשך 15 דקות ב-RT. צעדים נוספים ייבוצעו ב-RT אם לא צוין אחרת.
הערה: PFA הוא רעיל. תמיד יש להשתמש בתמיסות PFA עם קפוצ'ון אדים כימי תוך כדי לבישת כפפות, חלוק מעבדה והגנה על עיניים. הימנע ממגע ישיר עם עור או עיניים. סילוק פסולת המכילה PFA בהתאם לתקנות הכימיות והביולוגיות המוסדיות. - דגרו את התאים הקבועים עם 50 מ"מ אמוניום כלוריד (NH₄Cl) למשך 30 דקות ב-RT (רצוי על שייקר, 50-100 סל"ד) כדי לכבות קבוצות אלדהיד חופשיות ולהפחית את הקישור הלא ספציפי במהלך שלבי הצביעה הבאים.
- שטוף את התאים 3 פעמים 5 דקות ב-RT עם 1x PBS (על שייקר, 50-100 סל"ד).
- בצע חדירה של התאים עם 0.2% Triton X-100 ב-1x PBS למשך 10 דקות (על שייקר).
- שטוף את התאים 2-3 פעמים 5 דקות עם 1x PBS (על שייקר).
- חסום קישור נוגדנים לא ספציפי על ידי דגירה של התאים בתמיסת חסימה (2% סרום סוס ב-1x PBS המכיל 0.02% טריטון X-100) למשך 1.5 שעות ב-RT (על שייקר, 50-100 סל"ד).
- דגרו את התאים במהלך הלילה בטמפרטורה של 4 מעלות צלזיוס עם נוגדנים ראשוניים מדוללים (Pax7 - 1:100; MHC - 1:50) בתמיסת חסימה (על שייקר, 50-100 סל"ד).
- שטוף את התאים 3 פעמים 10-15 דקות עם 1x PBS שמכיל 0.02% טריטון X-100 (על שייקר, 50-100 סל"ד).
- דגרו את התאים עם נוגדנים משניים מתאימים מדוללים ב-1:250 בתמיסת חסימה למשך 1-1.5 שעות ב-RT (על שייקר ומוגן מאור).
- שטוף את התאים למשך 3 פעמים 10-15 דקות עם 1x PBS שמכיל 0.02% Triton X-100 (על שייקר, 50-100 סל"ד).
- התקן את הדגימות באמצעות מדיום התקנה מתאים וכיסוי כיסוי, כפי שמוגדר בעיצוב הניסוי.
- לאחסון ארוך טווח, שמרו על הדגימות המותקנות בטמפרטורה של 4 מעלות צלזיוס, מוגנות מאור.
תוצאות
ביצוע מוצלח של פרוטוקול זה מניב תרביות מיובלסט ראשוניות מובחנות ומובחנות מאוד שמקורות בשרירי הגפיים האחוריות של עכברים בוגרים ויילודים. על ידי שילוב סינון רציף דרך מסנני תאים בעלי גודל נקבובית קטן עם מיון תאים מופעל מגנטי אופציונלי (MACS), פרוטוקול זה מאפשר בידוד אוכלוסיית מיובלסט מטוהרת מאוד. כדי לשפר עוד יותר את טוהר תאי Pax7+ המבודדים, הוכנס שלב פרה-פלטה אופטימלי. לאחר שלב זה (סעיף פרוטוקול 5), רוב הפיברובלסטים ותאים לא-מיוגניים אחרים נשארים דבקים (איור 3) לפני השטח הראשוני המצופה בקולגן, בעוד שמיובלסטים נשארים במצב תלוי ואז מתחברים ללוחות המצופים במטריג'ל (איור 2B). בהתבסס על היעילות שהוכחה קודם לכן של רכיבים ספציפיים במדיום הרבייה המיובלסטית (MPM), כולל ריכוז סרום גבוה, תוספת של bFGF ותמצית עובר עוף (CEE), ושימוש בציפוי Matrigel - נוסחה זו, שאופטימלית על ידינו, מספקת יתרון רבייה ברור למיובלסטים על פני תאים לא-מיוגניים 14,30,31,35 . לכן, בתוך 72 שעות של תרבית ב-MPM, מיובלסטים קטנים, עגולים עד בצורת ציטופלזמה עם יחס גרעיני-ציטופלזמי גבוה אמורים להיות דומיננטיים (איור 2C). אוכלוסייה קטנה של תאים פיברובלסטים גדולים, שטוחים, עשויה להישאר, בדרך כלל המהווים פחות מ-3% מהתרבית.
תפוקת התאים לאחר 72 שעות לאחר בידוד באמצעות פרוטוקול זה תלויה בגיל בעלי החיים התורמים. עבור מיובלסטים שבודדו מעכבר בוגר אחד באמצעות ארבעה שרירי גפיים אחוריות (גסטרוקנמיוס, סולאוס, טיביאליס קדמי, ואקסטנסור דיגיטורום לונגוס) משתי הרגליים, התפוקה הטיפוסית היא כ-2-4 ×-10⁶ תאים לכל בעל חיים. יותר מ-97% מהתאים שבודדו מעכברים בוגרים (**p < 0.01) ועכברים יילודים (***p < 0.0001) היו אבות מיוגניים, כפי שמצוין בביטוי Pax7+ (איור 4A,B), מה שמאשר את ההעשרה הגבוהה של אבות מיוגניים. הערכת טוהר מבוססת Pax7 בוצעה לאחר השלמת תהליך ההעשרה המלא, כולל ציפוי מוקדם ואחריו MACS ו/או הרחבה, ולא על חלקי הפלטה המוקדמים המוקדמים.
מיובלסטים יילודים השיגו טוהר גבוה עם או בלי MACS (איור 4A,B), מה שהופך פרוטוקול זה למתאים למעבדות עם רמות תמיכה טכניות משתנות. עם זאת, כאשר MACS מושמט, נדרשים שלבים נוספים של ציפוי מראש כדי להגיע לטוהר דומה.
עבור מיובלסטים בוגרים, לא בוצעה השוואה סטטיסטית ישירה בין אוכלוסיות ממוינות לפי MACS לעומת אוכלוסיות לא ממוינות. עם זאת, בהינתן קיבולת הפצה נמוכה יותר ומחויבות גבוהה יותר להבדלה, מצופה ש-MACS ישפר את ההעשרה ביחס לפרה-פלטה בלבד.
בעת המעבר למדיום התמיינות (MDM) לאחר הגעה לחיבור של 80-90%, המיובלסטים מתמזגים ביעילות ליצירת צינורות מיוטביים מוארכים ורב-גרעיניים בתוך 48-72 שעות. מיוצינוריות אלו ניתנות לצפייה בקלות במיקרוסקופיית פאזה-ניגודיות (איור 2D) וניתן לאשר אותן עוד יותר על ידי צביעת חיסון לשרשרת מיוזין כבדה (MHC) (איור 5A,B). נוכחות של מבנים סרקומריים מאורגנים במיוטיובסים מופרזים (איור 5B) מצביעה על בגרות מבנית התואמת התמיינות מיווגנית בתנאי תרבית אלו.
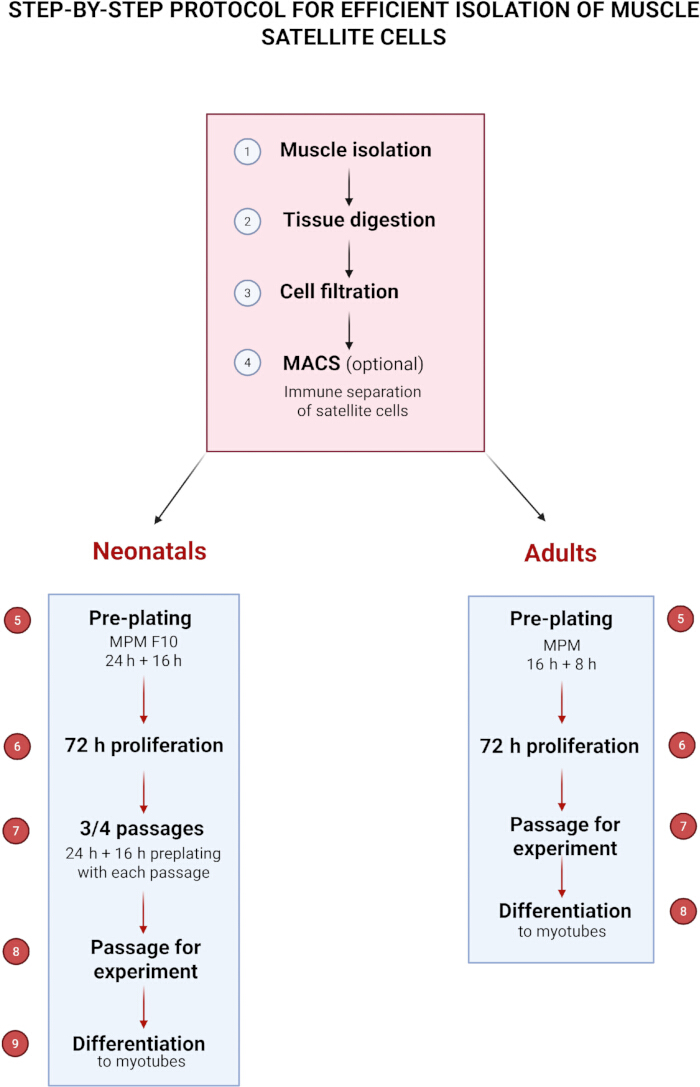
איור 1: פרוטוקול שלב אחר שלב לבידוד יעיל של תאי לוויין שריר. אנא לחצו כאן לצפייה בגרסה גדולה יותר של איור זה.
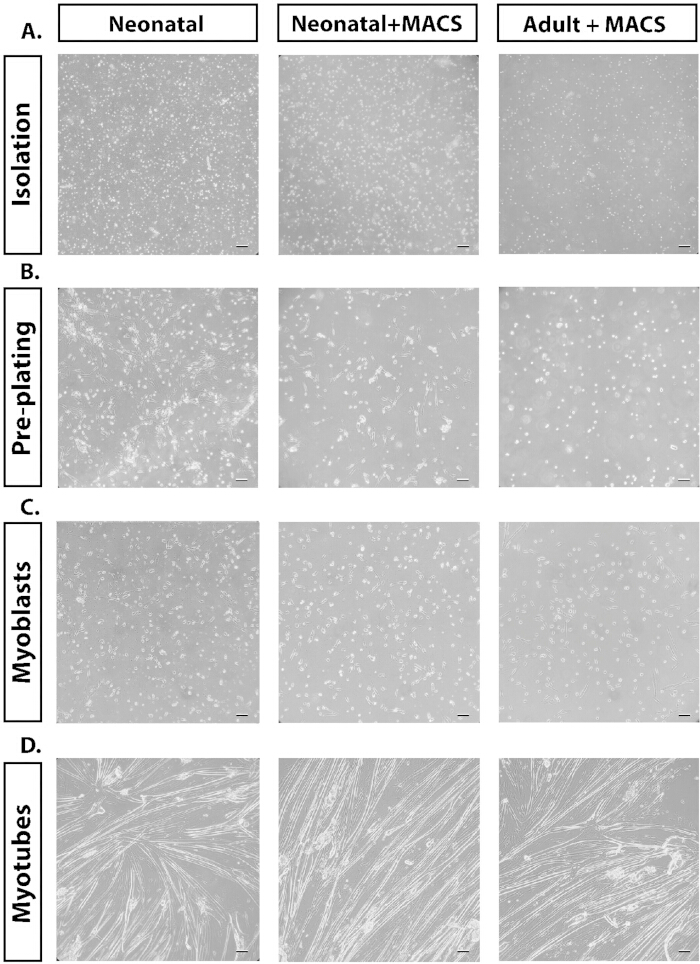
איור 2: תמונות מיקרוסקופיות פאזה-ניגודיות מייצגות של המתודולוגיות השונות שנדונו בטקסט. (A) תמונות פאזה-ניגודיות (20x) של בידוד התאים לאחר העיכול. (ב) ניגודיות פאזה (20x) של ציפוי התרביות עם פיברובלסטים מחוברים, יחד עם מיובלסטים לא מחוברים. (C) ניגודיות פאזה (פי 20) של מיובלסטים מתרבים לאחר חיבורם. (D) ניגודיות פאזה (20x) של מיוטיובסים מופרזים. פס קנה מידה = 50 מיקרון. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
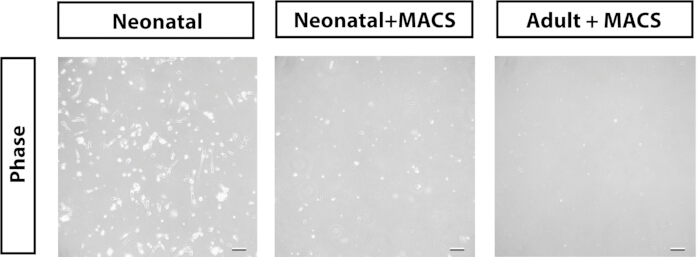
איור 3: תמונות מיקרוסקופיות ניגודיות פאזה מייצגות (20×) של תאים שנשארו מחוברים לאחר שלב הקדם-ציפוי הראשון. פס קנה מידה = 50 מיקרון. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
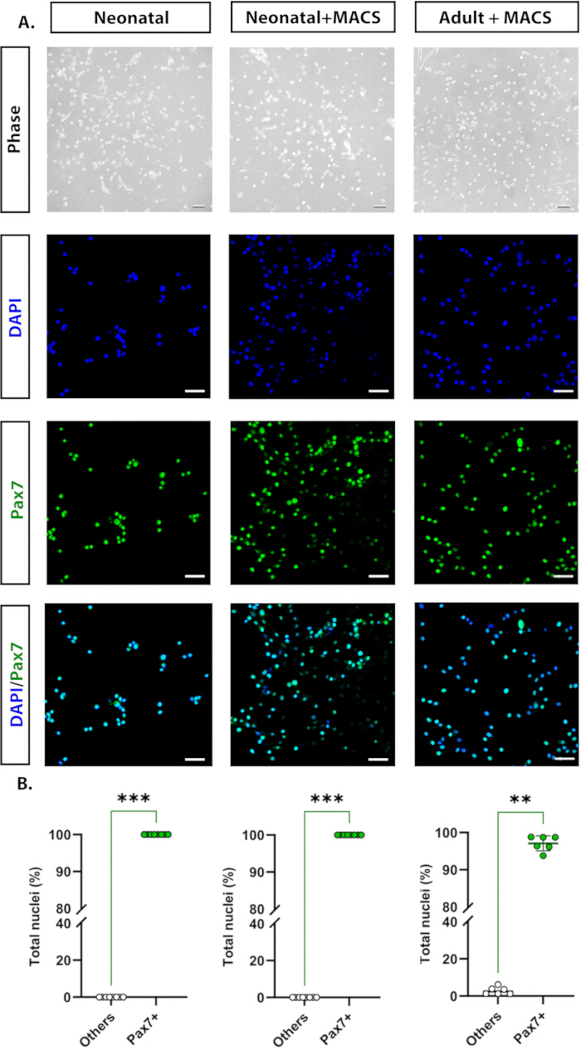
איור 4: תמונות מייצגות שצולמו תחת מיקרוסקופ פאזה-ניגודיות (20x) ואימונוציטוכימיה (40x). (A) Pax7+ (ירוק) וגרעינים צבועים ב-DAPI (כחול בהיר), והקולוקליזציה שלהם בתעלות המאוחדות. (ב) ניתוח טוהר תרבית המיובלסט, כימות אחוז תאי Pax7+ המנורמל לגרעינים בכל שדה שנרכש (שדה אחד לכל באר, לפחות בשישה בארות). צביעת חיסון חזרה על עצמה לפחות שלוש פעמים, עם שניים עד שלושה שכפולים טכניים בכל ניסוי. **p < 0.01, ***p < 0.0001 (מובהקות סטטיסטית נותחה באמצעות מבחן Mann Whitney U ). פס קנה מידה = 50 מיקרון. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
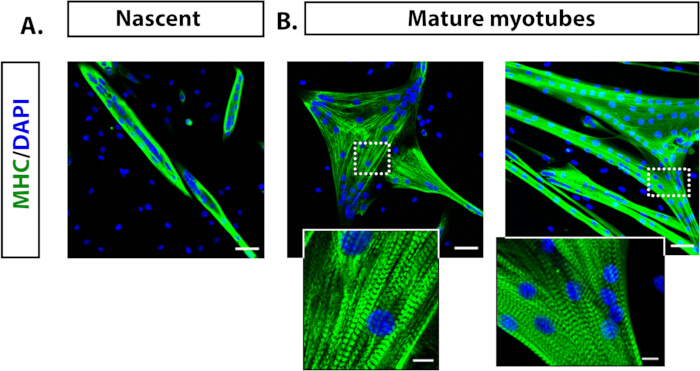
איור 5: תמונות אימונופלואורסצנציה מייצגות המציגות מיוטבוביות מובחנות ממיובלסטים של עכברים בוגרים. (א) מיוטיובס צעירים (3 ימים בתרבית) שצולמו ב-20 פעמים MHC (ירוק) וגרעינים מוצבעים ב-DAPI (כחול בהיר). (B) מיוטיובס בוגרים (6 ימים בתרבית) שצולמו ב-20x ופרטים על מבנה הדפוס הסרקומירי המוגדר על ידי צביעת המיוזין. צביעת חיסון חזרה על עצמה לפחות שלוש פעמים, עם שניים עד שלושה שכפולים טכניים בכל ניסוי. פס קנה מידה = 50 מיקרון; פס קנה מידה מוגדל = 10 מיקרון. אנא לחצו כאן לצפייה בגרסה גדולה יותר של האיור הזה.
דיון
תאי לוויין (SCs) מהווים את אוכלוסיית הגזע והאב המיוגניים העיקריים, האחראים לצמיחה, תיקון והתחדשות שרירי השלד36,37. היכולת שלהם להיכנס מחדש למחזור התאים ולהתמיין למייסיבים בוגרים הופכת אותם לחיוניים ללימוד ביולוגיית השרירים השלדיים. כאשר מבודדים ומעובדים תחת תנאי חוץ גוף מוגדרים, SCs מתרבים כמיובלסטים שניתן לגרום להתמיינות ולהתמזג למיוגנזה רב-גרעינית, ומשחזרים היבטים מרכזיים של המיוגנזה שנצפתה ב-vivo.
השיטה שלנו מאפשרת שיקום של אוכלוסיות תאים הומוגניות ויציבות על ידי התאמת פרמטרים מרכזיים בקפידה, כולל ריכוז האנזימים, משך העיכול ותנאי התרבית, המותאמים במיוחד לרקמות יילודים. השילוב בין דיסוציאציה אנזימטית ומכנית, ואחריה סינון רב-שלבי ומיון תאים מופעל מגנטי (MACS) אופציונלי יחד עם ציפוי מוקדם, מבטיח תפוקה גבוהה וטוהר של תאים. חשוב לציין כי פרוטוקול זה מאפשר יצירת תרביות שבדרך כלל עולות על 97% אבות מיווגניים של Pax7+ , מה שהופך אותן למתאימות לבדיקות התמיינות במסגרת המשך ולמחקרים מולקולריים.
טכניקת הקדם-ציפוי מתבססת על תכונות ההידבקות השונות של פיברובלסטים ו-SCs 16,38,39. שלב זה קריטי במיוחד לקביעת טוהר התרביות, וסטיות קטנות בתזמון או בשטיפה עלולות להוביל לזיהום פיברובלסטים או להפחתת התאוששות מיובלסט. הכללת שלב קדם-ציפוי מדויק היא יתרון מיוחד, שכן היא מפרידה ביעילות בין תאים מיוגניים לפיברובלסטים ואוכלוסיות לא-מיוגניות אחרות. גישה זו יכולה לשמש בהיעדר ציוד הפרדה מגנטית או כאמצעי נוסף להעלאת טוהר תרביות המיובלסט. בפרוטוקול שלנו, אופטימיזציה של שלב זה באמצעות לוחות מצופים קולגן ותקופת טרום-ציפוי מדויקת, שמפרידה ביעילות בין תאים מיוגניים לפיברובלסטים ואוכלוסיות לא-מיוגניות אחרות.
התקדמות מתודולוגית נוספת בפרוטוקול הנוכחי היא השימוש במדיום מוגדר להתרבות מיובלסט (MPM) המותאם הן לתאים בוגרים והן לתאים יילודים. השילוב של ריכוז גבוה בדם, תמצית עובר עוף (CEE) ופקטור גדילה בסיסי של פיברובלסטים (bFGF) תומך בהתרבות ושמירה מתמשכת של פנוטיפ לא מובחן. CEE, במיוחד, תורם גורמים מעודדי גדילה שמגבירים את חיוניות המיובלסט ומעכבים מיזוג ספונטני, בעוד ש-bFGF שומר על זהות SC באמצעות הפעלת מסלולי איתות קנוניים29,31. השימוש במשטחים מצופים מטריג'ל משפר עוד יותר את יעילות ההיצמדות וההתרבות של התאים, ותורם לאחידות גבוהה ולהומוגניות מורפולוגית שנצפתה בתוך 72 שעות לאחר הבידוד.
בעת המעבר למדימת התמיינות, המיובלסטים המטוהרים מתמזגים בקלות למיוטבובסים רב-גרעיניים מתכווצים המבטאים שרשרת כבדה של מיוזין (MHC), מה שמדגים פוטנציאל מיוגני ושמור בשלה מבנית. התרביות המתקבלות מתאימות מאוד למחקרים של התחדשות שריר שלד, איתות תאי, ויסות שעתוק ומודלים של מחלות. מפגש הוא גורם קריטי, שכן תרביות עם מפגש נמוך מאוד לא יתקדמו, בעוד שמפגש גבוה מדי יגרום למיזוג ומיאובלסט והבחנה. המיובלסטים לא צריכים להישמר באותו צלחת תרבית יותר מ-5 ימים, ללא קשר למפגש, שכן דגירה ממושכת יכולה גם היא לקדם התמיינות.
למרות היתרונות הללו, שלבים מסוימים נשארים רגישים לכשלים. יש לכייל בקפידה את העיכול האנזימטי כדי לאזן את התנתקות הרקמות עם חיוניות התאים. תזמון הקדם-ציפוי, צפיפות התאים לפני התמיינות, וטיפול עדין במהלך דיסוציאציה משפיעים רבות על תפוקה, טוהר ופוטנציאל ההתמזגות. בעיות נפוצות כמו זיהום מתמשך בפיברובלסטים, תפוקה נמוכה, התמיינות מוקדמת, חיבור לקוי או היווצרות מיוטיוב חלשה ניתנות לעיתים קרובות לטיפול בהתאמות קלות בפרה-פלטה, תוספי בינוניים או טכניקת ציפוי.
פתרון תקלות ושיקולים מעשיים:
טוהר בידוד ועיכול אנזימי דורשים תשומת לב קפדנית, שכן שינויים בסוג האנזים, ריכוז, זמן הדגירה או טחינת הרקמה יכולים להשפיע רבות הן על תפוקת התאים והן על טוהר התרבית. תת-עיכול עלול להשאיר את הרקמה חלקית שלמה, להפחית את שחרור ה-SCs ולסתום את המסננת בשלב הבא, בעוד שעיכול יתר עשוי להיראות דומה ויזואלית לביופילם ועלול לפגוע בחיוניות התאים. לכן, אופטימיזציה זהירה חיונית לתוצאות שניתן לשחזר.
סינון ושימוש במסננות הם גם קריטיים, שכן סינון לא שלם או לא יעיל עלול להשאיר שאריות רקמה או אגרגטים במתלה התא, מה שעלול להפריע לחיבור התא ולהפחית את טוהר התרבית. שימוש במסננות בגודל מתאים, העברת המתלים בעדינות דרכן והרטבה מוקדמת של המסננים יכולים לשפר את הסרת הפסולת תוך הפחתת העומס המכני על התאים. אם שברי רקמה גדולים יותר סותמים את המסנן, יש להחליפו במסננת חדשה במקום לדחוף את המתלה דרכו, שכן תאים עלולים להיתקע על פני המסנן, מה שמוביל לירידה בתפוקה. סינון חוזר עם פילטר טרי בעת הצורך יכול לשפר עוד יותר את ההתאוששות של מיובלסטים בריאים.
התמיינות מוקדמת או כושלת יכולה להתרחש כאשר התרביות הופכות צפופות מדי, שכן הדבר עלול לגרום להתמיינות ספונטנית או מיזוג מוקדם, ובכך לפגוע בתזמון הניסוי. לכן, ניטור צפיפות התאים והתאמת צפיפות הזריעה או נפח המדיה לפני התמיינות הם קריטיים. במקרים של מפגש מופרז, פיצול חלקי או זריעה עדינה יכולים לסייע בשמירה על התרבות מבלי לגרום להיווצרות מיוטיוב לא מתוכננת. לעומת זאת, אם לא מושג המפגש הרצוי לפני תחילת הגזירה, יש להמשיך את הדגירה עד להשגת צפיפות אופטימלית כדי להבטיח התבגרות אפקטיבית. שמירה על המיובלסטים מעבר למסגרת הזמן המומלצת (>5 ימים) מעלה את הסיכון להבדלה ספונטנית ומפחית את יכולת ההתפשטות, ללא קשר למפגש הראשוני. הערכה שוטפת של מורפולוגיית התאים, עמידה בלוחות זמנים של תרביות ושינויים בתווך בזמן הם חיוניים לשמירת היתכנות ופוטנציאל התמיינות.
זיהום מתמשך בפיברובלסטים ניתן למזעור באמצעות עיבוד רקמתי קפדני, כולל הסרה זהירה של רקמת החיבור והשומן במהלך ניתוח השריר. אופטימיזציה של שלב הקדם-ציפוי חשובה במיוחד, שכן פיברובלסטים הנדבקים במהירות נצמדים למשטחים לא מצופים בעוד ה-SCs נשארים בתלייה. השימוש בלוחות תרבית מצופים קולגן בשילוב עם מדיום התרבות מיובלסטי מוגדר בתוספת bFGF מקדם התרחבות מיובלסטים סלקטיבית תוך הגבלת גדילת הפיברובלסטים. ניתן להשיג טיהור נוסף באמצעות אסטרטגיות ברירה שליליות כמו MACS כדי לדלדל אוכלוסיות פיברובלסטים. ניטור מיקרוסקופי קבוע חיוני לזיהוי התפתחות מוקדמת של פיברובלסטים ולאפשר התערבות בזמן.
לסיכום, פרוטוקול זה מקדם את השחזוריות והיעילות של בידוד המיובלסט הראשוני על ידי שילוב טיהור רציף, תנאי תרבית אופטימליים ואפשרויות טיהור גמישות. חשוב לציין שהוא מניב באופן אמין תאי Pax7+ מועשרים מאוד, שניתן להשתמש בהם למחקרים מבוקרים של ביולוגיה של SC, מחויבות מיוגנית ודינמיקת התמיינות.
בניגוד לפרוטוקולים שמותאמים להתרחבות סדרתית ממושכת, שיכולה לשנות את התנהגות התא ולהפחית את הפוטנציאל המיוגני ואת יכולת המיזוג, השיטה שלנו נועדה במכוון לשמר תאים בעלי זהות מיוגנית איתנה וכישורים גבוהים בהיתוך מתאים. מיקוד זה מועיל ליישומים הדורשים רלוונטיות פיזיולוגית, התמיינות מיוגנית יעילה ושימור מאפייני ה-SC המגדירים, במיוחד בניסויים המתמקדים בחקר התמיינות והתחדשות מיוגנית.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
הדמיה קונפוקלית בוצעה במעבדת מבנה ותפקוד הרקמות בהדמיה, המשמשת כמתקן ליבת דימות במכון Nencki לביולוגיה ניסיונית ומהווה חלק מתשתית הצומת האירו-ביו-אימג'ימינג הפולני.
עבודה זו נתמכה על ידי המרכז הלאומי למדע, פולין (מענק סונאטה 2022/47/D/NZ3/02737 לליליה להקה ומענק סונאטה bis 2020/38/E/NZ4/00314 לגרז'גורז סומארה), וכספים סטטוטוריים ממשרד המדע וההשכלה הגבוהה למכון ננקי. עבודה זו נתמכה על ידי הפרויקט שמומן על ידי שר החינוך והמדע בהתבסס על חוזה מס' 2022/WK/05 (צומת אירו-ביו-אימג'ינג פולני "צומת מיקרוסקופיה אורית מתקדמת פולין").
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.25% trypsin-EDTA | גיבקו | 25200-056 | |
| 100 ומיקרו; מסננת תאי M | VWR | 732-2759 | |
| 30 ומיקרו; מסננת | מילטני ביוטק | 130-041-407 | |
| 40 ומיקרו; מסננת תאי M | VWR | 732-2757 | |
| 70 ומיקרו; מסננת תאי M | VWR | 130-095-823 | |
| חומצה אצטית | פוץ' | 568760114 | מומס ב-dH2O לריכוז סופי של 20 מ"מ ועוקר באמצעות 0.2 ומיקרו; מסנן m |
| אלקסה פלואר 488, חמור נגד ארנב | Invitrogen | A21206 | מומס בתמיסת חסימה (ראו סעיף 8.7) בדילול של 1:250 |
| אלקסה פלואר 488, אנטי-עכבר עזים | אבקאם | ab150113 | מומס בתמיסת חסימה (ראו סעיף 8.7) בדילול של 1:250 |
| כלוריד אמוניום (NH4Cl) | BioShop | AMC303.500 | המיס במים לריכוז סופי של 50 מ"מ |
| מדיית הרכבה אנטיפייד | וקטשילד | H-2000-10 | |
| נוגדן אנטי-PAX7 | אבקאם | ab187339 | מומס בתמיסת חסימה (ראו סעיף 8.7) בדילול של 1:100 |
| גורם גדילה בסיסי של פיברובלסטים | קורנינג | 354060 | מומס ב-dH2O סטרילי לריכוז מלאי של 10 ומיקרו; g/mL |
| בטדין, 100 מ"ג/מ"ל | EGIS תרופות | ||
| לוח תרבית תאים, 6 בארות, Cell+ | סארסטדט | 83.3902.300 | |
| תמצית עובר עוף | ביומדיקל MP | 2850145 | |
| קולגן I, זנב עכברוש | גיבקו | A10483-01 | מומס ב-20 מ"מ חומצה אצטית |
| קולגנאז, סוג I | סיגמא | C0130-500MG | מומס ב-DMEM ועוטר באמצעות 0.2 ומיקרו; מסנן m |
| שפופרת דיסוציאציה (GentleMACS C Tubes) | מילטני ביוטק | 130-093-237 | |
| Dulbecco Modified Eagle בינונית, עם רמת סוכר גבוהה | גיבקו | 31966-021 | |
| EDTA | Invitrogen | AM9260G | |
| צינורות צנטריפוגה חרוטיים של פלקון, 15 מ"ל | קורנינג | 352096 | |
| צינורות צנטריפוגה קונית של פלקון, 50 מ"ל | קורנינג | 352070 | |
| סרום בקר עוברי | גיבקו | 10082147 | |
| סרום סוסים | גיבקו | 26050088 | |
| מגיב תיוג מגנטי (ערכת בידוד תאי לוויין) | מילטני ביוטק | 130-104-268 | |
| מפריד מגנטי (מפריד MidiMACS) | מילטני ביוטק | 130-042-302 | |
| Matrigel | קורנינג | CLS356234 | מומס ב-DMEM ל-10% ריכוז |
| פאראפורמלדהיד, 4% ב-PBS | תרמו פישר סיינטיפיק | J61899. AK | |
| פניצילין-סטרפטומיצין | גיבקו | 15140122 | |
| מלח מפופר בפוספט | VWR | 392-0334 | |
| עמודת הפרדה (עמודות LS) | מילטני ביוטק | 130-042-401 | |
| נוגדן מיוזין לשריר השלד, MHC | סנטה קרוז | SC-32732 | מומס בתמיסת חסימה (ראו סעיף 8.7) בדילול של 1:50 |
| צלחת TC, 100 x 20 מ"מ | סארסטדט | 83.3902 | |
| דיסוציאטור רקמות (GentleMACS Dissociator) | מילטני ביוטק | 130-093-235 | |
| טריטון X-100 | סיגמא-אלדריץ' | X100-1L |
מקורות
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
הדפסות חוזרות והרשאות
