פרוטוקול זה מציג שיטה מפורטת לבידוד תליות חד-תאיות איכותיות הן מרקמת ריאות עכברית בריאה והן מגידולים. פרוטוקול זה יכול להיות מיושם על scRNA-seq, ניתוח ציטומטריית זרימה, ובידוד תאים ראשוניים.
מאמר שיטה
הכנה אופטימלית של רקמת ריאה נושאת גידול עכברוניים שלמים לצורך ציטומטריית זרימה וריצוף RNA חד-תאי
במאמר זה
סיכום
תקציר
NSCLC אחראי לכ-85% מסוגי סרטן הריאות, וסרקומת עכברוש קירסטן (KRAS) היא הגן המוטנטי השכיח ביותר ב-NSCLC. למרות שניהול NSCLC התקדם משמעותית בשנים האחרונות, ההטרוגניות והפלסטיות שלו עדיין לא מובנות במלואן. ריצוף RNA חד-תאי (scRNA-seq) הפך לכלי חיוני לניתוח הטרוגניות תאית ברקמות מורכבות כמו הריאה. עם זאת, יצירת תלויות חד-תאיות איכותיות מרקמת ריאה נושאת גידול היא אתגר, במיוחד במהלך היווצרות הגידול כאשר הרקמה הופכת לפיברוטית והטרוגנית. דרישה מרכזית להצלחת scRNA-seq היא הכנת תאים בודדים ברי קיימא עם לחץ או נזק מינימלי שנגרם מעיבוד. כאן מוצג פרוטוקול מפורט שלב אחר שלב לבידוד תליות תא בודדות איכותיות מרקמת ריאה בריאה של עכבר בריא ונושא גידול ב-KrasG12D; דוגמנית עכבר של עיתונאי tdTomatoes. ההליך כולל תפיכת רקמות, עיכול אנזימטי מבוקר, דיסוציאציה מכנית עדינה, ניתוק תאי דם אדומים, סינון והערכת חיות, ומשיג >85% תאים ברי קיימא לפני s-rena-seq. לבסוף, תאי הגידול tdTomato+ מבודדים ביעילות על ידי FACS וניתן לזהות אותם כאשכולות נפרדים באמצעות scRNA-seq באמצעות פרוטוקול זה.
מבוא
סרטן הריאות הוא אחד הגורמים המובילים למקרי מוות הקשורים לסרטן ברחבי העולם. ניתן לסווג אותו באופן כללי לשני תתי-סוגים עיקריים: סרטן ריאות תאים קטנים (SCLC) וסרטן ריאות לא תאים קטנים (NSCLC). NSCLC אחראית לכ-85% מכלל מקרי סרטן הריאות, כאשר אדנוקרצינומה היא תת-הסוג ההיסטולוגי הנפוץביותר 2. למרות שהאסטרטגיות הטיפוליות ל-NSCLC השתפרו משמעותית בעשורים האחרונים, שיעור התמותה מסרטן הריאות נשאר גבוה3. כימותרפיה ואימונותרפיה הן שתי שיטות הטיפול העיקריות בפרקטיקה קלינית; עם זאת, מטופלים רבים חווים עמידות לתרופות או אינם מגיבים לאימונותרפיה 4,5.
מיקרו-סביבת הגידול (TME) ממלאת תפקיד מרכזי בהתחלה, התקדמות ועמידות טיפולית של גידול.6. עדויות הולכות וגדלות מצביעות על כך שהרכב ה-TME משתנה באופן דינמי לאורך זמן 7,8. תאי חיסון אנטי-גידוליים מועשרים בדרך כלל ב-TME בשלבים הראשונים של יצירת הגידול, בעוד שאוכלוסיות תאים מדכאות חיסון וקשורות לסרטן הופכות לדומיננטיות ככל שהגידול מתפתח9. לכן, הבנת ההטרוגניות והפלסטיות של ה-TME במהלך התקדמות סרטן הריאות חיונית להבהרת מנגנוני המחלה ולשיפור התוצאות הטיפוליות.
ריצוף RNA חד-תאי (scRNA-seq) מאפשר פרופילינג ברזולוציה גבוהה של ביטוי גנים ברמת התא הבודד, ומאפשר אפיון מקיף של טרנסקריפטומים מורכבים של רקמות10. טכניקה זו הפכה לחיונית לחקר הטרוגניות תאית ולזיהוי מנגנונים העומדים בבסיס התקדמות הגידול ועמידות לתרופות בסרטן ריאות11. הכנת השעיה חד-תאית איכותית היא מרכיב קריטי בהצלחה ב-scRNA-seq, שכן לחץ או נזק תאי במהלך דיסוציאציה עלולים להוביל לתוצאות לא מדויקות12,13.
פרוטוקול זה מאפשר ריצוף RNA מכל התאים הבודדים שטוהר מהריאות הנושאות גידול שלמות, אגנוסטיים לגודל התא וללא השלכת תת-אוכלוסיות תאים חיים. מחקרים קודמים רבים דיווחו על ריצוף תאים בודדים של ריאות נושאות גידול, שהתמקדו בתאי גידול ובתאי CD45+ 14,15,16 שהושלכו, או התמקדו בתאי חיסון או סוגי תאים ספציפיים אחרים 17 ותאי גידול שנזרקו. פרוטוקול זה נועד להפריד ביעילות את כל סוגי התאים מרקמת ריאה נושאת גידול עכברו שלם, תוך הבטחת שחרור תאים ממאירים ושמירה על חיוניות התאים הרגילים. על ידי הכללת כל התאים היחידים החיים, פרוטוקול זה מאפשר חקר כל סוגי התאים הרלוונטיים בתוך מיקרו-סביבת הריאה הנושאת גידול, כולל תאי מקרופאגים הקשורים לסרטן (CAMLs)18. שלבים אופציונליים למיון תאים מופעל-פלואורסצנציה (FACS) נכללים לבקרת איכות והעשרת אוכלוסיות תאים ספציפיות. ניתנת הנחיות נוספות לצביעת נוגדנים, תיוג 4',6-דיאמידינו-2-פנילינדול (DAPI), והליכי קיבוע קצרים כאשר מיון מיידי אינו אפשרי.
מגבלה אפשרית של פרוטוקול זה היא שהוא עבר אופטימיזציה ואומת לרקמות ריאה המכילות גידולים בשלבים מוקדמים ועם עומס גידול מתחת ל-40%. בריאות המכילות גידולים בדרגה גבוהה יותר או שבהן עומס הגידול עולה על 50%, יעילות הדיסוציאציה עלולה להיפגע בשל נוכחות רכיבים סטרומליים צפופים ופיברוזיס נרחב19,20, שעלול לחסום את שחרור התאים הממאירים במלואם.
פרוטוקול
כל הניסויים הקשורים לבעלי חיים בוצעו בהתאם להנחיות Scripps Research לטיפול ושימוש בבעלי חיים ואושרו על ידי ועדת הטיפול והשימוש בבעלי חיים של Scripps Research Institution תחת פרוטוקול #10-0019. ה-KrasLSL-G12D/+; עכברי TdTomato+/- נוצרו על ידי הכלאה של עכבריKras LSL-G12D/+ עם עכברי TdTomato Reporter. קראסLSL-G12D/+, בן תשעה או עשרה שבועות; עכברי TdTomato+/- שימשו כמודלים לסרטן ריאות. הם נדבקים תוך-קנה בלנטיווירוס המבטא Cre recombinase, בטווח ויראלי של 5 ×-10-5 יחידות ליצירת פלאק לעכבר. רקמות ריאה נושאות גידול נאספו לאחר שבוע 25. בעיות עיכול פוטנציאליות ופתרון תקלות מפורטים בטבלה משלימה 1. החומרים והציוד בהם משתמשים מופיעים בטבלת החומרים.
1. הכנת בופרים
- DMEM/F12 בינונית: יש להכין 2% (v/v) FBS מושבת חום ב-DMEM/F12 בינונית.
- בופר שטיפת תאים: הכינו 2% (v/v) FBS לא פעיל בחום ב-PBS חופשי Ca+/Mg+ (pH 7.4).
- בופר פרפוזיה: PBS חופשי מקורר מראש של Ca+/Mg+ (pH 7.4).
- תמיסות מלאי אנזימים: המיס 10 מ"ג (1600 U/mg) של קולגנאז IV במדיום DMEM/F12 בנפח 1 מ"ל כדי לקבל תמיסת מלאי קולגנאז IV של 16000 U/mL; המיס 42 מ"ג (1.19 U/mg) של Dispase II במדיום DMEM/F12 של 1 מ"ל כדי לקבל תמיסת מלאי של 50 U/mL Dispase II; המיס 5 מ״ג DNase I במדיום DMEM/F12 של 1 מ״ל כדי לקבל תמיסת מלאי של 5 מ״ג/מ״ל DNase I.
- מדיום עיכול: ערבב 250 מיקרוליטר קולגנאז IV, 200 מיקרוליטר דיספאז II, ו-100 מיקרוליטר תמיסות DNase I במדיום DMEM/F12 בנפח 5 מ"ל כדי להגיע לריכוז סופי של 800 U/mL קולגנאז IV, 2 U/mL דיספאז II, ו-0.1 מ"ג/מ"ל DNase I.
- בופר תלייה מחדש: ערבב 1 מיקרוליטר של 0.5 M EDTA (10 מיקרומ'), 1 מ"ל FBS מושבת חום (2% v/v) ב-50 מ"ל Ca+/Mg+ PBS חופשי (pH 7.4).
- תמיסת המלאי BSA: המיסה של 0.5 גרם BSA ב-100 מ"ל Ca+/Mg+ PBS חופשי כדי לקבל תמיסת BSA.
- בופר FACS: מערבבים 2.5 מ״ל של 1 מ״ר HEPES, 200 מיקרוליטר של 0.5 מ״ר EDTA בתמיסת מאגר BSA של 100 מ״ל כדי לקבל ריכוז סופי של 25 מ״מ HEPES ו־1 מ״מ EDTA.
2. איסוף רקמת ריאות עכברו
הערה: כל כלי הניתוח מחוטאים עם 70% אתנול בין הדגימות. הדגימות נשמרות על הקרח בין כל שלב, וכל כלי הפלסטיק מוסמכים ללא DNase/RNase.
- המית עכבר בתאCO2 (בהתאם לפרוטוקולים שאושרו על ידי המוסד). הנח את העכבר על גבו על משטח ניתוח ותדק את הרגליים. רסס בנדיבות עם 70% אתנול.
- בצע חתך בקו האמצע ברוחב 2–3 ס"מ דרך העור והשרירים של הבטן התחתונה. פתח בזהירות את החזה והימנע מחתך את הריאות או את הלב.
- חבר מחט בטיחות מרובת זרימה 21 G למזרק 50 מ"ל ושאף בופרפוזיה של 30 מ"ל.
- הכנס את המחט לחדר השמאלי וחתוך חתך קטן בעלייה הימנית באמצעות מספריים חדה וישרה.
- פרפיוז לכל הגוף21 עם בופר פרפוזיה של 15 מ"ל.
הערה: הלבנת הכבד מצביעה על כך שהפרפוזיה לכל הגוף הושלמה. - הסר את הריאות מהחזה וחתך רקמות עודפות מחוברות לריאות22. שים את הריאות ב-10 מ"ל PBS חופשי מ-Ca+/Mg+ מקורר מראש כדי לשטוף דם עודף.
- העבר את הריאות לצינור בנפח 1.5 מ"ל המכיל 500 מיקרוליטר DMEM/F12 קר.
3. הכנת המתלה החד-תאית של הריאה
- חתכו את רקמת הריאה לחתיכות קטנות (1–2 מ"מ 3) עם מספריים ישרים וצרים במיוחד למשך 2–3 דקות.
- העבר את רקמת הריאה הטחונית לצלחת בגודל 6 ס"מ המכילה מדיום עיכול של 5 מ"ל.
- הנח צלחת בגודל 6 ס"מ על שייקר תרמוסטטי במהירות 50 סל"ד למשך 25 דקות בטמפרטורה של 37 מעלות צלזיוס. ערבב את המתלים עם פיפטה של 1 מ"ל כל 8 דקות.
- הניחו מסננת רשת של 100 מיקרון בצלחת בגודל 10 ס"מ. הרטיב מראש את המסננת עם 1 מ"ל DMEM/F12 בינונית.
- העבר את המתלה המעוכל למסננת. דחוף את הרקמה דרך המסננת עם קצה הגומי של בוכנת מזרק סטרילית.
- הנח מסננת רשת של 70 מיקרון מעל צינור צנטריפוגה של 50 מ"ל. הרטיב מראש את המסננת עם 1 מ"ל DMEM/F12 בינונית.
- סנן את מתלי התא דרך מסננת ושוטף את המסננת עם מדיום 5 מ"ל DMEM/F12.
- צנטריפוגה סיננה את מתלה התאים ב-400 גרם למשך 10 דקות בטמפרטורה של 4 מעלות צלזיוס והסרת הסופרנטנט בזהירות. החזירו את כדור התא בבופר ליסינג תאי דם אדום של 1 מ"ל למשך 2 דקות בטמפרטורת החדר.
- הוסף 14 מ"ל בופר שטיפת תאים וצנטריפוגה ב-400 גרם למשך 10 דקות בטמפרטורה של 4 מעלות צלזיוס.
הערה: אם הכדור עדיין אדום אחרי הכביסה, חזור על השלבים 8 ו-9. - זרוק את הסופרנטנט ותלווה מחדש את התאים בבופר השעיה מחדש של 20 מ"ל.
- מערבבים 10 מיקרוליטר של תלייה חד-תאית עם נפח שווה של כחול טרייפן ומוסיפים 10 מיקרוליטר מהתערובת למחסנית תא ספירת התאים. בדוק את עמידות התאים החיים, מספר התאים ומצב התא היחיד באמצעות מונה תאים.
4. ניתוח ציטומטריית זרימה
- החזירו את התאים לבופר FACS קר והעבירו 100 מיקרוליטר של תלייה לתא לצינורות של 1.5 מ"ל המכילים 1 מיקרוליטר נוגדן בלוק Fc (1:100). דגרו דגימות למשך 15 דקות על הקרח.
- דגימות צנטריפוגה ב-500 גרם למשך 5 דקות והשליכו את הסופרנטנט. החזירו את התאים ל-200 מיקרוליטר של נוגדן CD326-APC (1:100) ודגרו במשך 45 דקות בחושך בטמפרטורה של 4 מעלות צלזיוס.
- דגימות צנטריפוגה ב-500 גרם למשך 5 דקות והשליכו את הסופרנטנט. השעתי תאים ב-500 מיקרוליטר של בופר FACS המכיל צביעת DAPI (1:5000).
- העבר את כל הדגימות לצינורות FACS והגן עליהן מאור.
- נתח את הדגימות באמצעות ציטומטר הזרימה. הפלואורופורים הבאים שימשו: DAPI-V450, Tdtomato-YG585, CD326-APC. אסטרטגיית השער מוצגת באיור 1.
תוצאות
הושגה קיימות תאים גבוהה במערכת ההשעיה החד-תאית שהוכנה באמצעות פרוטוקול אופטימלי זה. שינויים ששיפרו את החיוניות של התאים לריאות נושאות גידול כללו אופטימיזציה של ריכוז האנזימים (טבלה משלימה 2), ניעור וערבוב הדגימות במהלך הדגירה בטמפרטורה של 37 מעלות צלזיוס. בנוסף, השימוש במסננת רשת נוספת של 40 מיקרון בשלב 6 בוטל כדי להפחית מאמץ גזירה מכני שמגביר את הסיכון לנזק לתאים; הוספת המסננת הנוספת עשויה להפחית את היווצרות הרב-שלבים. בממוצע, עמידות התאים עלתה על 85%, לעומת פחות מ-80% לפני האופטימיזציה (טבלה 1). השינויים בריכוז התאים מיוחסים בעיקר להבדלים בגודל הריאות ובתווך המתלה ששימש בין השכפולים.
במודל העכברים המונע על ידיKras G12D של אדנוקרצינומה ריאתית, קיימות גושים גידוליים, ועומס הגידול נע בין 10% ל-40% עשרים וחמישה שבועות לאחר תחילת הגידול23. שני תללים חד-תאיים של ריאה שלמה נחשפו ל-scRNA-seq על פלטפורמת 10x Genomics. הערכת איכות Cell Ranger זיהתה 23,488 ו-21,436 תאים מוערכים בשתי הדגימות, בהתאמה (טבלה 2). גרף הברקוד הצביע על זיהום RNA סביבתי מינימלי, ככל הנראה משקף את החיוניות הגבוהה של התאים (איור 2A,B).
ניתוח רכיבים עיקריים (PCA) וקירוב והקרנה של מניפולד אחיד (UMAP) חשפו אשכולות מוגדרים היטב, כאשר כל סוגי תאי הריאה העיקריים מיוצגים (איור 3A). גרפים של נקודות של גנים מייצגים אישרו שסמנים ביולוגיים קנוניים מבוטאים מאוד בסוגי התאים המתאימים להם (איור 3B). יתרה מזאת, תאי TdTomato+ הועשרו באשכולות הקשורים לאפיתל, ותאי TdTomato+/EpCAM+ בודדו בהצלחה על ידי FACS (איור 1).
לסיכום, פרוטוקול אופטימלי זה מאפשר פירוק יעיל של רקמת הריאה הנושאת גידול עכברים, מה שמניב חיוניות תאית גבוהה, זיהום RNA נמוך וייצוג תאי מקיף.
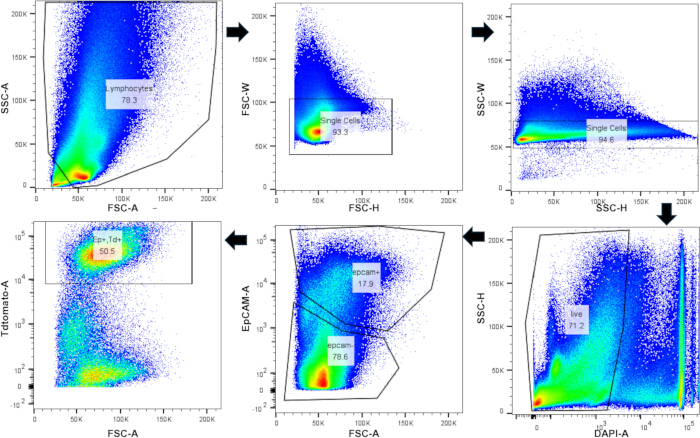
איור 1: בידוד תאי TdTomato+/CD326 (EpCAM+) באמצעות ציטומטריית זרימה. אסטרטגיית שער ציטומטריית זרימה לתלייה חד-תאית בריאות עכברים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
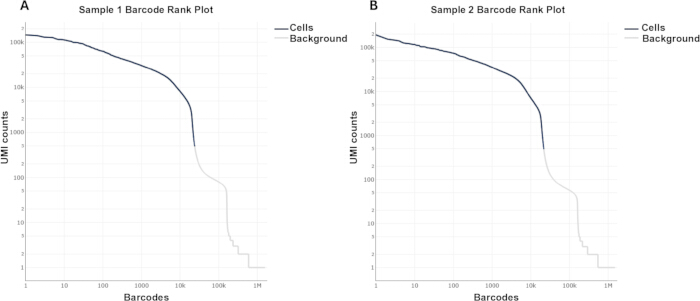
איור 2: גרף דירוג ברקוד ב-ScRNA-seq של ריאות נושאות גידול עכברים. KrasLSL-G12D/+; TdTomato+/- ריאות עכברים נאספו 25 שבועות לאחר ההדבקה בלנטיווירוס-Cre. (א,ב) גרף דירוג ברקוד ריאות נושא גידול מתוך ניתוח Cellranger אנא לחץ כאן כדי לצפות בגרסה מוגדלת של איור זה.
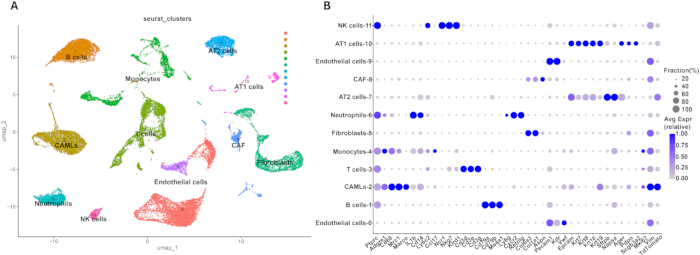
איור 3: ניתוח טרנסקריפטומיקה חד-תאית של ריאות נושאות גידול עכברו. (A) הקרנת UMAP של מערכי נתונים של ריאות שלמות הנושאות גידול. (B) גרף נקודות של גנים קלאסיים המשמשים להערות אשכולות. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
| לפני אופטימיזציה | לאחר אופטימיזציה | |||
| חזור על 1 | חזור 2 | חזור על 1 | חזור 2 | |
| מספר תא כולל | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| תאים חיים | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| אחוז התאים החיים | 76% | 77% | 83% | 89% |
טבלה 1: חיוניות תאי תלייה בודדים של הריאות הנושאות גידול לפני ואחרי אופטימיזציה. ריכוז התאים ואחוז התאים החיים נקבעו לפני ואחרי באמצעות פרוטוקול זה.
| דוגמה 1 | דוגמה 2 | |
| מספר התאים המשוער | 23,488 | 21,436 |
| קריאות ממוצעות לכל תא | 18,354 | 20,542 |
| גנים חציוניים לכל תא | 2,565 | 2,513 |
| סך הגנים שזוהו | 30,893 | 30,556 |
| ספירות UMI חציוניות לכל תא | 6,864 | 6,583 |
| ברקודים תקפים | 95.90% | 95.80% |
| רוויית ריצוף | 26.10% | 28.20% |
| שבר קורא בתאים | 94.10% | 95.40% |
טבלה 2: ניתוח בקרת איכות ScRNA-seq על ידי Cell Ranger. ההערכות המרכזיות של נתוני התא היחיד שהושגו מ-Cell Ranger
טבלה משלימה 1: פתרונות לפתרון תקלות. מוצעים פתרונות לטיפול בבעיות שעשויות להתרחש במהלך תהליך העיכול. אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימים 2: רכיבי קוקטייל אנזימים לפני ואחרי אופטימיזציה. הריכוזים הסופיים של קוקטייל האנזים שנעשה בהם שימוש לפני ואחרי האופטימיזציה. אנא לחצו כאן להורדת הקובץ הזה.
דיון
פרוטוקול זה מספק הליך מפורט שלב אחר שלב להכנת תלסיסים חד-תאיים איכותיים מרקמת ריאה של עכברים. נדרשים מספר שלבים קריטיים להשגת תוצאות מיטביות.
לפני עיכול אנזימטי, יש לבצע פרפוזיה לכל הגוף כדי להוציא דם מהריאות. זה מבטיח שתאי החיסון שמזוהים על ידי scRNA-seq מקורם ברקמת הריאה ולא בדם במחזור הדם. במהלך הפרפוזיה, חשוב להכניס את המחט לחדר השמאלי כדי למנוע כניסת הפרפוזאט למחזור הריאות ולפגוע בתאי הריאה. כדי לשמור על חיוניות התאים, כל המאגרים, כולל שטיפה, תלייה מחדש ותמיסות פרפוזיה, צריכים להיות מקוררים מראש על קרח. בהינתן ההטרוגניות הטבועה ברקמת הריאה24, יש לשמור דגימות במדיום DMEM/F12 לפני ובמהלך העיכול, שכן מדיום זה מספק חומרים מזינים חיוניים השומרים על חיוניות התא.
חיוניות תאים גבוהה ואשכולות תאים מוגדרים היטב שנצפו בפרוטוקול זה מאשרים ששילוב האנזימים הוא גם עדין וגם יעיל. יוני סידן ומגנזיום ידועים כמעודדים התגבשות תאים ומגבירים את הפעילות האנזימטית25,26. לכן, PBS חופשי של Ca+/Mg+ משמש להכנת רוב הבופרים למזעור ההצטברות, בעוד ש-DMEM/F12 המכיל יונים אלו משמש כמדיום בסיסי לבופר העיכול לשמירה על יעילות אנזימטית מאוזנת.
בעוד שמחקרים קודמים תיארו ריאות עכברוניות או רקמות גידול מתנתקות, הן לעיתים מציגות שונות משמעותית או תיאור לא שלם של בחירת וריכוז פרוטאז 11,15,27. לדוגמה, Han ואחרים השתמשו בקוקטיילים של אנזימים ללא דיווח על ריכוז, מה שמקשה על השכפול. לעומת זאת, שיטה מיוחדת מאוד שתוארה על ידי צ'ן ואחרים.28 יעילה לפירוק תאי אלוואולה סוג II (AT2) אך כוללת תהליך עבודה מורכב, דבר שאינו מעשי אם יש לאסוף מספר עכברים בו-זמנית.
אתגר קריטי במחקר אונקולוגיית הריאות הוא ההטרוגניות המבנית של הריאה הנושאת גידול, המורכבת מתאים בריאים ותאי גידול ממאירים. פרוטוקולים סטנדרטיים או ערכות מסחריות מיועדים לעיתים קרובות לדגימות רקמה או גידול תקינות במיוחד. הם גורמים לעיכול לא שלם, כישלון לשחרר תאי סרטן מליבת הגידול, או לעיכול יתר, שגורם ללחץ משמעותי ולמוות תאים ברקמה הרגישה יותר בדגימות ריאות נושאות גידול.
פרוטוקול זה מטפל בכך על ידי כיוונון עדין של הקוקטייל האנזימטי (קולגנאז IV, דיספאזה II ו-DNase I) להשגת דיסוציאציה מאוזנת. אופטימיזציה זו מבטיחה שחרור תאים ממאירים תוך שמירה על חיוניות התאים הרגילים. דבר זה נתמך על ידי ניתוח ציטומטריית זרימה, שבו זיהינו ופתרנו בהצלחה שני תאי אפיתל נפרדים. תאי האפיתל מופרדים היטב לתאי TdTomato+ או TdTomato- תאי. רמת רזולוציה זו מראה ששיטה זו מתאימה לחקר כל המיקרו-סביבה הריאתית הנושאת גידולים מבלי לפגוע בשלמות רקמת המאכסן. על ידי הכללת כל התאים הבודדים החיים בניתוח, פרוטוקול זה מאפשר חקר כל סוגי התאים הרלוונטיים בסביבת הריאה הנושאת גידול, כולל תאים דמויי מקרופאגים הקשורים לסרטן (CAMLs) (איור 3), שלא דווחו באופן נרחב במחקרים קודמים 15,16,17.
לאחר העיכול, ניתוחי scRNA-seq הראו כי הליך זה מבודד בהצלחה סוגי תאים מגוונים. תמיסות אנזימיות צריכות להיות מוכנות טריות ביום הניסוי. כל פרמטרי העיכול מותאמים לריאה אחת שלמה של עכברים. כאשר משתמשים רק באונה אחת או במספר ריאות, יש להתאים את זמן העיכול כדי להבטיח חיוניות תאית גבוהה ופירוק מלא של הרקמות. זיהום RNA סביבתי והיווצרות מולטיפלט הם שני גורמים מרכזיים המשפיעים על איכות scRNA-seq29. למרות שערכות הסרת תאים מתים משמשות לעיתים קרובות לשיפור החיוניות, פרוטוקול זה מניב באופן עקבי מעל 80% מהתאים החיים לאחר העיכול, מה שהופך שלב זה לאופציונלי. גרף דירוג הברקוד אישר זיהום RNA סביבתי מינימלי גם ללא הסרת תאים מתים.
המחקר הנוכחי מאשר את המתודולוגיה הזו בהקשר של כל ריאת העכברים הנושאת גידול. עיכול אנזימטי אופטימלי זה מספק תבנית לחקר רקמות נושאות גידול אחרות המאופיינות במיקרוסביבות דומות. יתרה מזאת, היכולת הגבוהה לשימור התאים ושימור כל סוגי התאים שהושגו באמצעות פרוטוקול זה הופכים אותו למתאים לטכנולוגיות ריצוף מתקדמות, כגון CITE-seq למיפוי חלבוני שטח ו-ATAC-seq לפרופיל אפיגנטי.
למרות שפרוטוקול זה מייצר תליות חד-תאיות איכותיות בעלות נמוכה, עדיין עשוי להתרחש עומס תאי הנגרמת על ידי תהליך במהלך העיכול האנזימטי. כדי למזער ארטיפקטים של ביטוי גנים הקשורים ללחץ, אופרטור אחד צריך לעבד לא יותר מארבע דגימות בו-זמנית.
גילויים
המחברים מצהירים שאין להם אינטרסים מתחרים.
תודות
עבודה זו נתמכה על ידי המכון הלאומי לבריאות, המכון הלאומי לעיניים (NEI), ארה"ב, מענקים 5R01EY026202, R01EY035333; מענקי המכון הלאומי למחקר שיניים וקרניופציאליים (NIDCR) R01DE031044, 2R01DE014756, ומענקי המכון הלאומי לסרטן (NCI) R01CA271500 ו-2R01CA211187.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| DMEM/F12 | תרמו פישר | 11320033 | תרבית תאים |
| קולגנאז סוג IV | סיגמא אלדיך | C5138 | אנזימי עיכול |
| Dispase II | סיגמא אלדיך | D4693 | אנזימי עיכול |
| DNase I | רוש | 11284931001 | הסרת DNA |
| מסננת תא פאלקון 70 | פלקון | 352350 | הסרת רקמה לא מעוכלת |
| מספריים סטריליים | FST | 14088-10 | רקמות חתוכות |
| בופר פירוק תאי דם אדומים | סיגמא אלדיך | R7757 | הסרת תאי דם |
| FBS לא מופעל בחום | פיניקס סיינטיפיק | PS100 | הגנה על תאים |
| PBS ללא Ca+/Mg+ | תרמו פישר | 10010023 | אנזימי דילוס/תאי ווש |
| מחט בטיחות-רב-זבוב 21G | סארסטדט | 3051524 | פרפוזיה לכל הגוף |
| 50 מ"ל מזרק | BD | 300866 | פרפוזיה לכל הגוף |
| צלחת 6 ס"מ | קורנינג | 430116 | עיכול רקמות |
| צלחת 10 ס"מ | קורנינג | 430167 | עיכול רקמות |
| נוגדן בלוק Fc | BD | 553141; RRID:AB_394655 | ציטומטריית זרימה |
| DAPI | BD | 564907; RRID:AB_2869624 | ציטומטריית זרימה |
| CD326 | BD | 563478; RRID:AB_2738234 | ציטומטריית זרימה |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U של איווה-7556 | לנטיווירוס |
| ציטומטר זרימה ZE5 (Yeti) | ביו-ראד | ניתוח ציטומטריית זרימה | |
| עכבר KrasLSL-G12D/+ | מעבדת ג'קסון | 008179; RRID:IMSR_JAX:008179 | |
| עכבר כתבת TdTomato | מעבדת ג'קסון | 007909; RRID:IMSR_JAX:007909 |
מקורות
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
הדפסות חוזרות והרשאות
תגיות
