פרוטוקול זה מספק תיאור מקיף של שיטה לרישום סימולטני של אותות סידן מנוירונים ואסטרוציטים באזורים מוחיים רבים הקשורים לזיכרון ומדגים את יישומו במהלך פרדיגמת התנהגות למידה וזיכרון.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
שיטת פוטומטריית סיבים דו-צבעונית לתיעוד פעילות אסטרוציטים-נוירונים באזורים שונים במוח במהלך התנהגויות למידה וזיכרון
במאמר זה
סיכום
תקציר
למידה וזיכרון תלויים באופן קריטי בתיאום בין נוירונים לאסטרוציטים באזורים מבוזרים במוח. אסטרוציטים מווסתים את ההעברה הסינפטית ואת ההתעוררות הנוירונלית, ובכך תורמים לקידוד ואיחוד מידע במעגלים הקשורים לזיכרון. הקורלציות התוך-אזוריות והבין-אזוריות בין אסטרוציטים לנוירונים הם חיוניים להבנת הפרעות זיכרון וקוגניטיביות. עם זאת, ניטור סימולטני של פעילות אסטרוציטית ונוירונית באזורים שונים במהלך התנהגות הזיכרון נותר מאתגר טכנית. כאן מוצגת שיטה שמקלה על הקלטה מקבילה של אותות הסידן הללו מאסטרוציטים ונוירונים באזורים הקשורים לזיכרון. אסטרטגיה זו משלבת מדדי סידן מקודדים גנטית דו-צבעיים ספציפיים לסוג התא (GECIs), מערכת פוטומטריה סיבית רב-ערוצית, ומעקב התנהגותי מסונכרן להשגת ניטור בזמן אמת של פעילות נוירונית ואסטרוציטית בקורטקס הפרה-פרונטלי המדיאלי (mPFC), באזור CA1 בהיפוקמפוס ובקליפת האנטורין המדיאלית (MEC). תוצאות מייצגות מראות דינמיקת סידן מתואמת בין אזורים וסוגי תאים במהלך משימת זיהוי האובייקטים. שיטה זו מספקת מסגרת ניסיונית ניתנת לשחזור ויעילה לחקירת אינטראקציות בין אסטרוציטים לנוירון הבסיס לתהליכי למידה וזיכרון.
מבוא
למידה וזיכרון הם תהליכים קוגניטיביים בסיסיים הכוללים רכישה, אחסון ושליפה של מידע, שהם חיוניים ליצירת התנהגויות אדפטיביות. תהליכים אלו מהווים בסיס למגוון פונקציות מורכבות, כגון ניווט מרחבי, זיהוי אובייקטים, אסוציאציה קונטקסטואלית וקבלת החלטות. בנוסף, מחלות קוגניטיביות לקויות, כולל מחלת אלצהיימר, מחלות קוגניטיביות הקשורות לגיל ופגיעת מוח טראומטית, מציגות חריגות ביצירת זיכרון 1,2,3. לכן, הבנה מקיפה של הבסיס העצבי של למידה וזיכרון דורשת הבהרת האינטראקציה הדינמית בין סוגי תאים שונים. אינטראקציה זו מתרחשת בתוך ומעבר לאזורים אלו במהלך קידוד ושליפה של מידע.
מסורתית, היווצרות הזיכרון נחשבה בעיקר לנקבעת על ידי פעילות נוירונים. עם זאת, מחקרים נרחבים הראו כי אסטרוציטים מווסתים באופן משמעותי קידוד, איחוד ושליפה של מידע. הם משיגים זאת על ידי ויסות העברה סינפטית, ויסות התעוררות נוירונים, שחרור גליוטרנסמיטרים ותמיכה מטבולית 4,5,6,7,8. האסטרוציטים מתקשרים דינמית עם נוירונים, והתקשורת הדו-כיוונית נקראת יחד "רשת האסטרוציטים-נוירונים" 9,10,11. לכן, הבנת האינטראקציות המתואמות בין אסטרוציטים לנוירונים היא קריטית להבנת המנגנונים התאיים והרשתיים של למידה וזיכרון.
למידה וזיכרון תלויים באינטגרציה הדינמית של מידע בין אזורים שונים במוח. האינטראקציות בין אסטרוציטים לנוירונים אינן מוגבלות למיקרו-מעגלים מקומיים, אלא מתפרסות על פני אזורים מוחיים מבוזרים המעורבים בזיכרון, כולל הקורטקס הפרה-פרונטלי המדיאלי (mPFC), אזור CA1 בהיפוקמפוס והקורטקס האנטוריני המדיאלי (MEC). ה-mPFC היה מעורב באיחוד זיכרון ובוויסות זיכרון לטווח ארוך; CA1 הוא מרכזי בקידוד והפעלה מחדש של זיכרון אפיזודי; ו-MEC משמש כמרכז לאינטגרציה של מידע מרחבי ורב-מודלי, ומספק קלט חיוני למעגל ההיפוקמפו-קורטיקלי 12,13,14,15,16. הראיות המצטברות מצביעות על כך שאסטרוציטים באזורים אלו משתתפים בדינמיקה מתואמת בין-אזורית עם נוירונים, ומשחקים תפקידים מרכזיים בזרימת מידע ובמעברי מצבים במהלך הלמידה והזיכרון17,18.
למרות שההכרה בתפקוד הסינרגטי של אסטרוציטים ונוירונים בעיבוד זיכרון עלתה, נותר אתגר טכני משמעותי במעקב בו-זמני אחר פעילות הסידן הן באסטרוציטים והן בנוירונים באזורים מוחיים רבים הקשורים לזיכרון במהלך התנהגות בעלי חיים הנעים בחופשיות. הדמיית שני פוטונים מציעה הדמיה ברזולוציה מרחבית גבוהה אך מוגבלת על ידי עומק וקיבוע ראש19,20; אלקטרופיזיולוגיה רב-ערוצית מאפשרת הקלטות ברזולוציה טמפורלית גבוהה אך חסרה ספציפיות של סוג תא ואינה יכולה להבחין באותות סידן אסטרוציטיים. לכן, פותחה שיטה שמאפשרת הקלטה סימולטנית של אותות סידן אסטרוציטיים ונוירונים ברחבי אזורים מוחיים הקשורים לזיכרון בעכברים הנעים בחופשיות. מדדי סידן מקודדים גנטית (GECIs) מדווחים על דינמיקת Ca2+ תוך-תאית דרך שינויים קונפורמציה תלויים בקלבניום2+ ב-CaM/M13, המווסתים את הפלואורסצנציה של פלואורופורים מקודדים גנטית. גישות GECI דו-צבעוניות משתמשות באינדיקטורים הניתנים להפרדה ספקטרלית, כגון חיישני סידן ירוק ואדום, יחד עם פרומטורים ספציפיים לסוג התאים, כדי לאפשר הקלטה סימולטנית של פעילות אסטרוציטית ונוירונית שלCa2+ באותו אזור מוח. על ידי שילוב GECIs דו-צבעוניים ספציפיים לסוג תא (GCaMP6f ו-jRGECO1a) ומערכת פוטומטריה סיבית רב-ערוצית, הושג ניטור בזמן אמת של פעילות הסידן בנוירונים ואסטרוציטים ב-mPFC, CA1 ו-MEC. יתרה מזאת, אם לוקחים לדוגמה את משימת זיהוי האובייקטים (NOR) החדשנית, הוכחו דינמיקת סידן מתואמת בין אזורי מוח וסוגי תאים במשימות למידה. שיטה זו היא פרוטוקול שניתן לשחזור, אמין וניתן להרחבה לחקירת פעילות קבוצת אסטרוציטים-נוירונים באזורים במוח במהלך הלמידה והזיכרון.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל הניסויים בבעלי חיים אושרו על ידי ועדת טיפול ושימוש בבעלי חיים של האוניברסיטה הצבאית השלישית לרפואה (אישור אתיקה לבעלי חיים מס' AMUWEC20230126) ונערכו בהתאם למדריך האוניברסיטה הצבאית השלישית לרפואה לטיפול ושימוש בבעלי חיים במעבדה, כדי להבטיח טיפול אתי בבעלי חיים. החומרים והציוד בהם משתמשים מופיעים בטבלת החומרים.
כדי להבטיח את בטיחות הניסוי, כל ההליכים הניסיוניים שכללו בעלי חיים חיים ווקטורים ויראליים בוצעו תוך לבישת בגדים מגן, כפפות סטריליות ומסכה. כל המכשירים עברו חיטוי יסודי לפני השימוש, ומשטחי הניסוי נוקו עם 70% אתנול לפני ואחרי כל ניסוי. החומרים שנותרו הושלכו בהתאם לתקנות מוסדיות לפינוי פסולת. כל החומרים והציוד טופלו כדי למנוע מגע ישיר עם עור או עיניים.
1. הכנת בעלי חיים וטיפול בווירוסים
- לאכלס עכברים בני 4 חודשים C57BL/6 (שני המינים) במחזור אור/חושך של 12 שעות עם גישה חופשית למזון ולמים.
- הפשרה של AAV5-GfaABC1D-GCaMP6f או AAV9-hSyn-jRGECO1a על קרח בטמפרטורה של 0–4 מעלות צלזיוס מיד לפני השימוש.
- חבר מיקרופיפטה מזכוכית נמשכת (קוטר הקצה 15–25 מיקרון) למזרק והתקן אותו על משאבת הזרקה מיקרו.
- הנח את העכבר על פלטפורמת ניתוח סטרילית וחטא את כל הכלים ב-70% אתנול.
2. הזרקת וירוס סטריאוטקסית
הערה: במחקר זה נעשה שימוש באסטרטגיית הזרקת וירוס דו-שלבית. בתנאים ניסיוניים נוכחיים, אסטרטגיה זו יכולה להיות מיושמת באופן אמין ויציב, ודפוס הביטוי המתקבל תואם את פרופיל הפרומטור הצפוי הספציפי לסוג התא.
- ניתוח ראשון: הזרקת AAV5-GfaABC1D-GCaMP6f (טיטר: 7 ×10 12 vg/mL) לאסטרוציטים
- השרה הרדמה עם 3% איזופלורן בתא, ואז לשמור על הרדמה עם איזופלורן של 0.8%–1.2% באמצעות קונוס אף (בהתאם לפרוטוקולים שאושרו על ידי המוסד).
- שמור על טמפרטורת גוף של 37–38 מעלות צלזיוס באמצעות כרית חימום ומרח משחה עינית למניעת ייבוש בקרנית.
- הסר את שיער הקרקפת וחטא את העור היטב. עשה חתך בקו האמצע כדי לחשוף את פני הגולגולת.
- הניחו את הראש בכלי הסטריאוטקס, כוונו את תפרי הברגמה והלמדה לאותו מישור אופקי, וכווננו את המסגרת כדי להבטיח שהנקודות ברוחב של 2 מ"מ לרוחב הברגמה בשני הצדדים יהיו ישרות.
- זהה קואורדינטות סטריאוטקסיות באמצעות אטלס מוח של עכבר, כאשר הברגמה היא נקודת ייחוס.
mPFC: AP +1.8 מ"מ, ML +0.3 מ"מ, DV −3.0 מ"מ
CA1: AP −2.1 מ"מ, ML +1.6 מ"מ, DV −1.2 מ"מ
MEC: AP −4.5 מ"מ, ML −2.9 מ"מ, DV −2.0 מ"מ - קדחו קרניוטומיה מעגלית בקוטר 0.6 מ"מ מעל כל אתר, שמרו על הדורה מטר לח ושלם לאחר פתיחת הגולגולת.
- מלא את וירוס GCaMP6f לתוך המזרק במהירות של 5 ננוליטר לשנייה והתקן את המזרק בזרוע הסטריאוטקסית.
- הנמיך את הפיפטה לאט, הזריק 150 ננוליטר במהירות 0.6 ננוליטר לשנייה, החזק 8 דקות, ואז משוך במהירות 0.1 מ"מ/שנייה. חזור על ההליך הזה לכל האזורים.
- אטום את החתך בדבק רקמה ואפשר שבועיים לביטוי ויראלי.
- ניתוח משני: הזרקת AAV9-hSyn-jRGECO1a (טיטר: 1 ×10 13 vg/mL) לנוירונים.
הערה: הניתוח בוצע 14 ימים לאחר הזרקת הווירוס הראשונה.- השרה ותחזקת הרדמה כפי שתואר לעיל (שלב 2.1.1).
- שמור על טמפרטורת הגוף והגן על העיניים.
- פתח מחדש את הקרקפת לאורך קו האמצע ויישר את הגולגולת.
הערה: הגולגולת הושפעה על ידי יישור הברגמה והלמדה באותו מישור אופקי. - שאריות רקמה שקופות באותם מקומות כמו חלונות הקרניוטומיה מהניתוח הראשון, וחשפו את הדורה מאטר שלם.
- כוון קואורדינטות תוך שימוש בברגמה כנקודת ייחוס, ביצוע הזרקות בדיוק באותם קואורדינטות ועומקים כפי שתוארו קודם.
- מלא את וירוס jRGECO1a במהירות של 5 ננוליטר לשנייה והתקן את המזרק.
- הזריק 150 ננוליטר במהירות 0.6 ננוליטר לשנייה, החזק 8 דקות, ושלל לאט. חזור על ההליך הזה בכל האזורים ואפשר 3 שבועות לביטוי ויראלי.
3. השתלת גלאי פוטומטריה סיבים מרובי אתרים
הערה: בצע מיד לאחר הזרקת jRGECO1a.
- התקן את טבעת הסיב האופטי במחזיק סטריאוטקסי.
- מיקום הסיב (פרול 1.25 מ"מ, ליבת 200 מיקרון, NA 0.39) בגובה 100–150 מיקרון מעל עומק ההזרקה הוויראלית:
mPFC: AP +1.8 מ"מ, ML +0.3 מ"מ, DV −2.9 מ"מ
CA1: AP −2.1 מ"מ, ML +1.6 מ"מ, DV −1.1 מ"מ
MEC: AP −4.5 מ"מ, ML −2.9 מ"מ, DV −1.9 מ"מ - אטום את הקרניוטומיה עם דבק רקמה ואבטח את הפרולה עם מלט דנטלי.
4. הקלטת פוטומטריה סיבים רב-ערוצית
הערה: כדי להבטיח ביטוי יציב ומלא של שני מדדי הסידן, בוצעה פוטומטריה סיבים אופטיים רב-ערוציים שלושה שבועות לאחר הזרקת הווירוס השנייה להקלטה.
- התרגל את העכברים למערכת הסיבים ולזירה פעם ביום במשך שלושה ימים.
- לאחר 3 שבועות של ביטוי ויראלי, יש להרדים את העכבר לזמן קצר עם איזופלוראן של 3%.
- חבר קצה אחד של הסיב האופטי המשולב למערכת רכישת פוטומטריית הסיבים.
- כוון את אור העירור לשני אורכי גל: 470 ננומטר ו-560 ננומטר.
- הגדר את תדר הרכישה ל-30 הרץ.
- חבר את שלושת הענפים בקצה השני של הסיב המצורף לשלושה אזורי מוח: ערוץ 1 ל-mPFC, ערוץ 2 ל-CA1, ערוץ 3 ל-MEC.
- הניחו את העכברים באזור פתוח באורך צד של 50 ס"מ ואפשרו חקירה חופשית.
- אחרי 10 דקות, נתק את הסיבים והחזיר את העכברים לכלובים הביתיים שלהם.
- הקלטת פוטומטריית סיבים במהלך משימת זיהוי אובייקטים חדשנית
הערה: נקה את הפלטפורמה והחפצים עם 75% אתנול לפני כל ניסוי.- הנח שני עצמים זהים ברבעים אלכסוניים מנוגדים.
- חבר את חבילת הסיבים במצב הרדמה קלה.
- אפשר לעכברים לחקור חפצים במשך 10 דקות, ואז להחזיר אותם לכלובים הביתיים מבלי להסיר את הסיבים.
- בצע הקלטת פוטומטריית סיבים במהלך בדיקת זיהוי אובייקטים חדשנית בעכברים.
הערה: החריג את הניסיון אם ארטיפקטים של תנועה מופרזים עבור נתוני הקלטה יציבים.- כוונן לייזרים גירוי:
470 ננומטר ל-GCaMP6f (אסטרוציטים)
560 ננומטר ל-jRGECO1a (נוירונים) - הקלטת אותות סידן ב-30 הרץ, מסונכרנת עם מעקב וידאו ב-30 הרץ. מקם דיודת לייזר בתוך מסגרת הווידאו (מחוץ לשדה הראייה של העכבר) בעת תחילת הרכישה כדי לשמש כסמן זמן.
- עשר דקות אחרי שלב הלמידה, החלף אובייקט אחד באובייקט חדש והחזר את העכבר ל-10 דקות של חקירה בזמן ההקלטה.
- נתק את הסיב עם פרווה קרמית והחזיר את העכברים לכלובים הביתיים.
- כוונן לייזרים גירוי:
5. עיבוד וניתוח נתונים
הערה: יש לסווג מעבר Ca2⁺ בהקלטות פוטומטריה סיבית כאות אמיתי רק אם המשרעת שלו עולה על פי שלושה מהסטיית התקן של תחום הרעש 21,22,23. פרוטוקול24:D efine Inspection Object Test Novel Inspection Test (NORT) הוא אינטראקציות עם עצמים כאירועים שבהם עכברים יוצרים מגע פיזי עם העצם, בין אם על ידי דקירה או רחרוח עם אפם. לצורך כימות אות, הגדר את קו הבסיס כאות ממוצע במהלך חלון ה-2 עד -1 שניות (ביחס לתחילת האינטראקציה ב-t=0). הגדר את חלון ניתוח הסביבה לאירועים כך שיתפרס מ-2 שניות לפני ועד 4 שניות לאחר תחילת כל אינטראקציה עם אובייקט, בהתאם לפרוטוקולים שנקבעו.
- ייבא עקבות פלואורסצנציה לתוכנת ניתוח.
הערה: עיבוד אותות פלואורסצנציה בוצע באמצעות תוכנת ניתוח קניינית בהתאם לזרימות עבודה סטנדרטיות של פוטומטריית סיבים. התוכנה עצמה אינה קוד פתוח ואינה ניתנת לשיתוף. לשיקולים מתודולוגיים כלליים בנוגע לעיבוד אותות פוטומטריית סיבים, ראו דוחות מתודולוגיה עדכניים25. - בצע תיקון בסיסי ויישר אותות סידן לתחילת משימת NOR באמצעות וידאו מסונכרן.
- המרו ΔF/F לציוני Z להשוואות בין-אזוריות ודו-צבעוניות9:
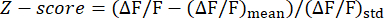
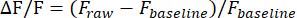
הערה:
(ΔF/F)ממוצע: ממוצע של ΔF/F.
(ΔF/F)STD: סטיית תקן של ΔF/F.
Fגולמי: עוצמת פלואורסצנציה גולמית.
קו בסיס F: עוצמת פלואורסצנציה בסיסית (ממוצע לאורך תקופת בסיס מוגדרת מראש). - כימות מדדים כמו שטח מתחת לעקומה (AUC) עבור תגובות סידן אסטרוציטים ונוירונים במהלך חקר אובייקטים חדשים לעומת מוכרים.
6. אימות היסטולוגי לאחר ההקלטה
- הרדימו את העכבר במינון יתר של פנטוברביטל עד שיאושר אובדן מוחלט של הרפלקסים.
- לבצע פרפוזיה טרנסקרדיאלית עם תמיסת מלח רגילה, ואחריה 4% פאראפורמלדהיד (PFA).
- נתח את המוח בזהירות ותקבע אותו לאחר מכן ב-4% PFA בטמפרטורה של 4°C למשך 12–24 שעות.
- העבר את המוח ל-30% סוכרוז ב-PBS בטמפרטורה של 4 מעלות צלזיוס עד שהרקמה שוקעת להגנה מקריאה.
- להטמיע את המוח בחומר טמפרטורת חיתוך אופטימלי, להקפיא אותו, ולחתוך חתכים קורונליים (בעובי 40 מיקרון) באמצעות קריוסטט.
- בצע צביעת אימונופלואורסצנציה לאימות ביטוי ויראלי ומיקום הסיבים.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
בהתבסס על הפרוטוקול שתואר לעיל, בוצעה הקלטת סיבים רב-אזורית דו-צבעונית שמכוונת ל-mPFC, CA1 ו-MEC של עכברי C57 בני 4 חודשים. במחקר הנוכחי, יישמנו אסטרטגיית הזרקה ויראלית דו-שלבית כדי להציג את שני המדדים ברצף. בתנאי הניסוי שלנו, אסטרטגיה זו יכולה להיות מיושמת באופן אמין ויציב, ודפוס הביטוי המתקבל תואם את פרופיל הפרומטור הצפוי הספציפי לסוג התא.
ביום 0, הוזרק AAV5-GfaABC1D-GCaMP6f לשלושת האזורים, וביום ה-14 הוזרק AAV9-hSyn-NES-jRGECO1a באותם קואורדינטות, ומיד לאחר...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
במחקר זה פותחה שיטה לרישום סימולטני של פעילות סידן אסטרוציטית ונוירונית באזורים מוחיים רלוונטיים לזיכרון בעכברים במהלך למידה והתנהגויות הקשורות לזיכרון. בניגוד להדמיה אזוריתבודדת 28 או טכניקות אלקטרופיזיולוגיות, הקלטה סינכרונית רב-אזורית לוכדת דינמיקות מתואמות בין רשתות זיכרון מבוזרות, ובכך מתגלה ככלי עוצמתי לחקר למידה וזיכרון 9,29,30. באמצעות שימוש ב-GECIs דו-צבעוניים ספ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
אין ניגודי עניינים, כספיים או אחרים, על ידי המחברים.
תודות
גברת ג'יה לו מוכרת על סיוע טכני, וסאי טה שין סי (כלי בינה מלאכותית) מוכרת על סיוע בעריכת שפה. עבודה זו קיבלה תמיכה מקרן המדע הטבעי הלאומית של סין (מענק מס' 82371485, 82588301, 32400932) וקרן המדעים הטבעיים של צ'ונגצ'ינג, סין (מענק מס' CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | מתחבר למיקרופיפטה להזרקה ויראלית |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | ביטוי GCaMP6f ספציפי לאסטרוציטים |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | מדד סידן אדום-מוסט לנוירונים |
| Bepanthen Eye and Nasal Ointment | Bepanthen | MA0008 | מניעת ייבוש הקרנית |
| Bundled optical fibers with ceramic sleeves | Inper | BFO-1x3-W1.25 | מחבר סיבים מושתלים למערכת הפוטומטריה |
| Camera | Mind Vision | MV-SUA502C-T | סינכרון של סרטוני התנהגות עם אותות סידן |
| Dental cement | NISSIN | Super-Bond C&B | משמש לאבטחת פרולים לגולגולת |
| Ferrule holder | Inper | SCH-1.25 | אוחז את הפרול הקרמי בצורה מאובטחת במהלך השתלה |
| Isoflurane vaporizer & Anesthesia system | RWD Life Science | R510-29 | להשראה ולהמשך הרדמה |
| Multi-channel fiber photometry system | RWD Life Science | R821 | להקלטה דו-צבעונית |
| OFRS software | RWD Life Science | ניתוח אותות סידן שהוקלטו | |
| Optical fibers | RWD Life Science | R-FOC-BL200C-39N | מושתלים באזור המוח הממוקד |
| Stereotaxic instrument | RWD Life Science | 68801 | משמש להזרקה ויראלית מדויקת והשתלת סיבים |
| Syringe pump | KD Scientific | 788130 | מספק וירוס בקצבים מבוקרים |
| Tissue glue | 3M Animal Care Products | 1469SB Vetbond | לסגירת חתכים |
מקורות
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
