פרוטוקול זה מתאר את היצירה ואפיון הפנוטיפ של מודל עכבר C57BL/6N-Cracdem1(c.538-83 to c.3352+255 del) באמצעות טכנולוגיית CRISPR/Cas9, על מנת לחקור את תפקידו של CRACD בעיצוב מחדש של הלב (cardiac remodeling) בעקבות אוטם בשריר הלב.
מאמר שיטה
יצירה ואפיון פנוטיפי של מודל עכבר חסר Cracd שהונדס באמצעות CRISPR/Cas9 למחקרי רה-מודלציה לאחר אוטם שריר הלב
במאמר זה
סיכום
תקציר
אוטם שריר הלב (Myocardial infarction - MI) נותר גורם מרכזי לתחלואה ותמותה ברחבי העולם. פרוטוקול זה מתאר שיטה ליצירה ואפיון של נראה כי הטקסט שהזנת ("Cracd") אינו מילה באנגלית או מונח מדעי מוכר, אלא שגיאת הקלדה. אנא ספק את הטקסט המדעי שברצונך לתרגם כדי שאוכל לבצע את התרגום המקצועי לעברית.קו עכברים חסר- (deficient) על רקע C57BL/6N באמצעות טכנולוגיית CRISPR/Cas9. זיגוטים הוזרקו יחד עם mRNA של Cas9, מבנה gRNA ותבנית תורם שתוכננה ליצירת מחיקה גנומית של 3153-bp. האלל הערוך אומת באמצעות גנוטיפיקציה ב-PCR וריצוף סנגר (Sanger sequencing). כדי להעריך את התפקיד התפקודי של CRACD בעיצוב מחדש (remodeling) לאחר אוטם שריר הלב (MI), Cracdעכברים חסרי- [השמט את השם החסר מהמקור] ועכברים מסוג פרא (WT, C57BL/6N) עברו אוטם בשריר הלב (MI) שהושרה על ידי קשירה קבועה של העורק הכלילי השמאלי היורד (left anterior descending coronary artery). ביום ה-7 לאחר הניתוח, תפקוד הלב ותנועת דופן הפרונטריקל השמאלי הוערכו באמצעות אקו-לב תראקסי (transthoracic echocardiography) ודימות מאמץ בשיטת מעקב אחר נקודות (speckle-tracking strain imaging), ולאחריהם בוצעו הערכות היסטופתולוגיות באמצעות [השמט את השם החסר מהמקור] H&צביעת #38;E וצביעת טריכרום של מסון (Masson's trichrome). תוצאות מייצגות הראו כי Cracdעכברים חסרי [ג'ין/חלבון] הראו התרחבות פרונטקולרית מופחתת ותפקוד סיסטולי שנשמר בהשוואה לבקרי WT. פרוטוקול זה מספק פלטפורמה ניסויית מהימנה למחקרים מכניסטיים של CRACD בפתופיזיולוגיה של הלב.
מבוא
אוטם שריר הלב (MI) נותר סיבה מובילה לתחלואה ותמותה ברחבי העולם, ותורם לנטל משמעותי על בריאות הלב וכלי הדם הגלובלית1. הפרוגנוזה ארוכת הטווח לאחר MI נקבעת בעיקר על ידי תהליך של רמיodeling של החדור השמאלי (LV)2, הכולל התרחבות של החדור, דליל דפנות ופיברוזיס אינטרסטיציאלי3,4, המהווים גורמים מרכזיים להתקדמות לכשל לבבי (HF). השכיחות העולמית של HF הנובע מרמיodeling לבבי לאחר MI מחמירה עוד יותר את נטל מחלות הלב וכלי הדם5. למרות תצפיות קליניות מבוססות אלו, חסרים מחקרים סיסטמטיים המשתמשים במודלים רגישים וניתנים לשחזור in vivo כדי להעריך את תפקידם של גנים ספציפיים ברמיodeling שלאחר MI. נכון להיום, שום פרוטוקול אינו משלב מודל knockout בהנדסת CRISPR/Cas9 עם דימות מאמץ (strain imaging) מתקדם כדי להעריך רגולטור של השלד התאי כמו CRACD. לפיכך, קיים צורך דחוף בשיטה המאפשרת מניפולציה גנטית מדויקת ופנוטיפיקה לבבית ברזולוציה גבוהה.
חלבון Capping protein inhibiting regulator of actin dynamics (CRACD), הידוע גם כ-KIAA1211, הוא רגולטור של פולימריזציית אקטין הממוקם בעיקר בציטוזול וממלא תפקיד קריטי בדינמיקה של השלד התאי6. הוא מווסת באופן חיובי את פולימריזציית האקטין על ידי קישור לחלבוני סגירה של אקטין (CAPZA1, CAPZA2, CAPZB) ומניעת סגירתם של הקצוות המהודקים (barbed ends) של סימכוני האקטין7. ברקמות אפיתליאליות, CRACD ממלא תפקיד קריטי בשמירה על מורפולוגיית התא ובהעברה של אותות על ידי שימור השלמות של שלד האקטין8,9. בתאי גידול, הפרעה בוויסות שלו קשורה להגברת גרורות תאים ושגשוגם6,10. תפקידו של CRACD בלב טרם הובן במלואו. מחקרים של טרנסקריפטום לבבי והתערבויות ניסיוניות מראים כי ביטוי הגן Cracd מגיב למעץ פתולוגי ועשוי לווסת גנים הקשורים לדינמיקה של השלד התאי במהלך עיצוב מחדש של החדרים (ventricular remodeling)9,11. יתרה מכך, החלבון המעכב שלו, CapZ, נקשר קשר הדוק לפתולוגיה לבבית: הפספורילציה של CapZ מווסתת את צמיחת המיופיברילים במהלך היפרטרופיה המושרה על ידי פנילפרין12. מחקרנו המוקדם מעיד כי הורדה מתונה בביטוי של CRACD מעניקה הגנה מפני נזק לשריר הלב ומשמרת את יכולת התכווצות המיופילמנטים בעקבות איסכמיה חריפה13. ממצאים אלו מעלים את האפשרות ש-CRACD ממלא תפקיד בעיצוב מחדש לא מסתגל של החדרים לאחר אוטם בשריר הלב (MI). עם זאת, חסרים מחקרים סיסטמטיים של אובדן תפקוד (loss-of-function) במודלים חיים (in vivo) הבודקים האם חסר ב- Cracd משפיע על העיצוב מחדש שלאחר אוטם, בעיקר בשל היעדרו של פרוטוקול מאושר שלב-אחר-שלב ליצירה ואפיון של עכבר חסר Cracd תחת מעץ איסכמי.
קיימות מספר גישות ליצירת עכברים עם נוק-אאוט (knockout) קונסטיטוטיבי. רקומבינציה הומולוגית מסורתית בתאי גזע עובריים (ES) היא מדויקת אך יקרה, גוזלת זמן רב (12–18 חודשים), ומוגבלת לזני עכברים מסוימים14. מוטגנזה באמצעות ENU (N‑ethyl‑N‑nitrosourea) יוצרת מוטציות נקודתיות אקראיות הדורשות הצלבה חוזרת (backcrossing) וריצוף נרחבים15. לעומת זאת, CRISPR/Cas9 מציע יתרונות מעשיים מובהקים למחקר זה: (i) הזרקה ישירה לזיגוט מקצרת את לוחות הזמנים ל-4–6 חודשים; (ii) היא מאפשרת מחיקה של מקטע גנומי גדול (3153 bp) כדי להבטיח אובדן תפקוד מלא; (iii) היא פועלת ישירות על רקע של C57BL/6N ללא צורך בהמרת זנים; ו-(iv) היא נמנעת משימוש בסמן ברירה (selectable marker), ובכך מזעזעת הפרעות שעתוק בלתי מכוונות. לכן, CRISPR/Cas9 הוא הבחירה היעילה ביותר ליצירת קו חסר Cracd המתאים לאפיון פנוטיפי קרדיווסקולרי שגרתי. טכנולוגיה זו נמצאה בשימוש נרחב לביצוע מחקרי אובדן תפקוד מדויקים in vivo16,17.
דימוי מאמץ באמצעות מעקב אחרי נקודות (Speckle‑tracking strain imaging) הוא טכניקה של עיבוד לאחר צילום העוקבת אחר התנועה של נקודות אקוסטיות טבעיות בתוך השריר הלבבי (myocardium) פריים אחר פריים, מה שמאפשר חישוב של פרמטרים של דפורמציה שרירית כגון מאמץ (strain - שינוי שברי באורך) וקצב מאמץ (strain rate - קצב הדפורמציה)18. בניגוד לאקו-קרדיוגרפיה קונבנציונלית במצב M (M‑mode) או דו-ממדית, המספקת מדדים תפקודיים גלובליים (שבר פליטה, קיצור שברי, קוטר פנימי של החדר השמאלי) ואינה רגישה יחסית להפרעות אזוריות בתנועת הדופן, דימוי מאמץ יכול לכמת את התפקוד כיווצי המקטעים. הדבר חשוב במיוחד בתקופה המוקדמת לאחר אוטם, כאשר היפרקינזיס פיצוי של מקטעים שאינם פגועים עשוי לשמר את שבר הפליטה הגלובלי למרות תפקוד אזורי לקוי משמעותי. מעקב אחרי נקודות מציע מספר יתרונות על פני מדדי קצה סטנדרטיים: הוא מספק מאמץ וקצב מאמץ מקטעיים, העתקה ומהירות, ובכך מזהה שינויים סוב-קליניים עדינים19; הוא יכול לזהות חוסר סנכרון וגירעונות כיווציים מוקדמים לפני שמתרחש רהמודילינג בלתי הפיך; והוא בוחן ישירות את הסוב-אנדוקארדיום, השכבה הפגיעה ביותר לאיסכמיה20. במחקר זה, CRACD הוא רגולטור של השלד התאי שעשוי להשפיע על כיווציות סיבי השריר ברמה המיקרוסקופית. מדידות קונבנציונליות המבוססות על חלל הלב עלולות להחמיץ בקלות השפעות מכניות מקומיות כאלה. לפיכך, שילוב של ניתוח מעקב אחרי נקודות בפרוטוקול זה משפר את היכולת לזהות השפעות מגן מוקדמות של חסר ב- Cracd. בהתאם לכך, שילוב מעקב אחרי נקודות בפרוטוקול זה מספק כלי רגיש וכמותי להערכת רהמודילינג לאחר אוטם, במיוחד במהלך השבוע הראשון לאחר MI, כאשר מופיעים התרחבות מוקדמת ותפקוד כיווצי לקוי21,22.
פרוטוקול זה נועד לחוקרים הבוחנים את ההשפעה התפקודית של מחיקה (deletion) של גן ספציפי על רמיodeling חריף (7 ימים) לאחר אוטם בשריר הלב (MI), באמצעות שילוב של knockout קונסטיטוטיבי ודימוי ברזולוציה גבוהה. הוא מתאים למחקרים המייצרים היפותזות שבהם אובדן גלובלי של הגן המטרה הוא מקובל, והנקודת קצה העיקרית היא תפקוד סיסטולי מוקדם ושינויים מבניים. עם זאת, יש לקחת בחשבון מספר מגבלות. ראשית, העכבר החסר Cracd הוא knockout גלובלי; לכן, לא ניתן לייחס את ההשפעות הקרדיופרוטקטיביות שנצפו באופן בלעדי לאובדן של CRACD בתאי שריר הלב (cardiomyocytes), שכן ייתכן שגם גורמים מערכתיים ממלאים תפקיד. מחקרים עתידיים המשתמשים באסטרטגיות של knockout מותנה (conditional knockout) יהיו נחוצים כדי להשיג מחיקה ספציפית ללב. שנית, הפרוטוקול מתמקד בנקודת זמן אחת (יום 7) ואינו עוסק ברמיodeling כרוני או בהתקדמות של אי-ספיקת לב (HF). יידרשו מחקרים ארוכי טווח מעבר לשלב החריף. שלישית, ניתוח speckle‑tracking דורש תמונות באיכות גבוהה (גבולות אנדוקרדיאליים ברורים) ותוכנה ייעודית, שעשויות שלא להיות זמינות בכל מעבדות השירות (core facilities). למרות מגבלות אלה, הפרוטוקול מספק פלטפורמה חסונה וניתנת לשחזור לאפיון תפקודי ראשוני של גנים המעורבים ברמיodeling של הלב לאחר אוטם.
מחקר זה נועד להשתמש במערכת CRISPR/Cas9 כדי לייצר ולתקף מודל עכברים חסרי Cracd (C57BL/6N-Cracdem1 (c.538-83 to c.3352+255 del)) לצורך חקירת ההשפעה של חסר ב-Cracd על רמיodeling לבבי לאחר אוטם שריר הלב (MI) ועל תנועת דופן הפרונטריקולר. MI הושרה הן בעכברים מסוג בר (WT, C57BL/6N) והן בעכברים חסרי Cracd, והערכות מקיפות בוצעו שבוע לאחר ה-MI. ההערכות כללו פרמטרים אקו-קרדיוגרפיים קונבנציונליים, ניתוח עיוות (strain) באמצעות מעקב נקודות (speckle-tracking) והערכה היסטופתולוגית. התמקדנו באופן ספציפי בשלב המוקדם שלאחר ה-MI (יום 7) כדי לתעד אירועי רמיodeling ראשוניים ולקבוע האם חסר ב-Cracd משפיע על התרחבות הפרונטריקולר ועל התפקוד הסיסטולי במהלך השלב החריף של ה-MI. הממצאים צפויים לספק תובנות בעלות ערך לגבי תפקידו של CRACD בוויסות רמיodeling לבבי שלילי לאחר MI.
פרוטוקול
כל ניסויי החיות אושרו על ידי הוועדה המוסדית לטיפול בבעלי חיים ולהשגחה עליהם (IACUC) של מכון הביוטכנולוגיה של גואנגדונג (מספר אישור IACUC2025179). במחקר נעשה שימוש ב-20 עכברים מסוג SPF עם מחסור ב-Cracd וב-20 עכברי WT תואמים בגיל ובמשקל. כל העכברים היו בני 10–12 שבועות ושקלם היה 20–25 g. כל בעלי החיים הזכרים שוכנו במתקן המאושר על ידי AAALAC (מספר רישיון SYXK (Yue) 2016-0122) במכון הביוטכנולוגיה של גואנגדונג (המכון לניטור בעלי מעבדה של גואנגדונג). סביבת הדיור נשמרה בטמפרטורה של 22–25 °C עם 50–70% לחות יחסית תחת מחזור של 12 שעות אור/12 שעות חושך.
1. יצירת עכברים חסרי Cracd באמצעות CRISPR/Cas9
- השתמש בטכנולוגיית עריכה גנטית CRISPR/Cas9 כדי ליצור עכברים חסרי Cracd על רקע C57BL/6N. מחק את הרצף הגנומי מ-c.538-83 עד c.3352+255 (אינטרון 5 חלקי עד אינטרון 6) של Cracd באמצעות תיקון מכוון על ידי הומולוגיה (homology-directed repair).
הערה: הגן Cracd בעכברים (NCBI RefSeq: NM_001163793.1; Ensembl: ENSMUSG00000036377) ממוקם על כרומוזום 5 ומכיל 9 אקסונים, כאשר קודון הפתיחה ATG נמצא באקסון 2 וקודון העצירה TAA נמצא באקסון 9. - תכנן את הרצף של וקטור ה-gRNA המכוון ואת האוליגונוקלאוטיד התורם (עם רצף הכיוון המוקף ברצפי הומולוגיה של 120 bp המשולבים בשני הצדדים).
- התחבר לאתר NCBI, בחר בפונקציית Primer-BLAST, ותכנן פריימרים של PCR לטיפוס גנטי (genotyping).
- הדבק את מספר רצף הייחוס של Cracd מה-NCBI (NM_001163793.1) בשדה תבנית ה-PCR, הגדר את טווח האקסונים להגברה, ולחץ על “Get Primers” כדי לקבל מספר זוגות של פריימרים מועמדים לזיהוי מבוסס PCR של אללי המחיקה והאללים מסוג wild-type.
- תכנן RNA מנחה בודד (gRNAs) לאתרי מטרה המקיפים את מרווח המחיקה המתוכנן בגן Cracd.
- בחר ארבעה רצפי gRNA (20 nt במעלה ה-PAM) באמצעות כלי תכנון CRISPR מקוונים.
- כדי למזער השפעות פוטנציאליות מחוץ למטרה (off-target), דרג את ה-gRNAs המועמדים באמצעות CRISPRater ובחר את שני הרצפים האופטימליים (כולל ה-NGG PAM).
הערה: דוגמאות לרצפים שנבחרו:
gRNA-A1: CGGCGCTCTTAACATCCAGAGGG (ציון: 0.71)
gRNA-A2: CCCTTCAGTCTGGGTAGTAGAGG (ציון: 0.71)
קבל gRNAs עם ציון CRISPRater ≥ 0.5. לצורך תיקוף in vitro, קבל gRNAs עם יעילות שסה של > 50% בערכת זיהוי יעילות מטרה של Cas9/gRNA.
- תכנן אוליגונוקלאוטיד תורם חד-גדילי כדי לקדם חיבור יעיל של נקודות השבירה המתוכננות. דוגמה לרצף תורם: TTAACCATCAACGGGCCGCTGCAAGGGCTGCTGT
GTCTATA CTCAGGACCACCTGCCCTCTAGAGGCAGGAAGGT
AGAGTTCCAAGCTCTGCTGTGCTAGGTTAAATGCAACTTAACATC. - הזרק במשותף Cas9 mRNA, gRNA ואוליגונוקלאוטיד תורם לביציות מופריות כדי ליצור עכברים חסרי Cracd. הכן Cas9 mRNA ו-gRNA באמצעות תמלול in vitro.
- הכנת gRNA.
- תמלל gRNAs in vitro מתבניות DNA באמצעות ערכת התמלול MEGAshortscript™ T7 (ראה טבלת חומרים) לפי פרוטוקול היצרן.
- טהר את ה-gRNAs התומללים באמצעות ערכה לטיהור RNA (ראה טבלת חומרים) והמס אותם במים נקיים מ-RNase.
- הערך את פעילות השסה של ה-gRNA באמצעות ערכת זיהוי יעילות מטרה של Cas9/gRNA in vitro (ראה טבלת חומרים).
- בצע את כל שלבי הכנת ה-RNA על קרח תוך שימוש בחומרים מתכלים נקיים מ-RNase (טיפים לפיפטות, מבחנות, מים). שמור את דגימות ה-RNA על קרח בכל עת כדי למנוע פירוק.
- לביצוע בדיקת השסה: ערבב את ה-gRNA התומלל (25 ng/µL) עם חלבון Cas9 רקומביננטי (50 ng/µL) ועם מקטע DNA שהוגבר ב-PCR המכיל את רצף המטרה (50 ng).
- דגור את התגובה ב-37 °C למשך 30 דקות.
- הרץ את התוצרים על ג'ל אגרוז 2% כדי להדמיא פסים שאינם שסועים ופסים שסועים.
- חשב את יעילות השסה כיחס בין עוצמת הפס השסוע לעוצמת הפסים הכוללת (שסועים + לא שסועים).
- קבל gRNAs עם יעילות שסה של > 50%.
- הכנת Cas9 mRNA.
- הפסק את הקפאת הרכיבים מערכת T7 ARCA mRNA (ראה טבלת חומרים).
- בטמפרטורת החדר, ערבב 10 µL של תערובת 2× ARCA/NTP, 1 µL של DNA תבנית, 2 µL של תערובת T7 RNA polymerase, והוסף מים נקיים מנוקלאז עד לנפח של 20 µL.
- ערבב היטב, בצע ספינ קצר במיקרופוגה (5 שניות ב-5000 × g), ודגור ב-37 °C למשך 30 דקות.
- הסר את ה-DNA התבנית על ידי הוספת 2 µL של DNase I (בריכוז 1 U/µL), ערבב היטב, ודגור ב-37 °C למשך 15 דקות לקבלת Cas9 mRNA. ניתן להוסיף לתגובה 1 µL של מעכב RNase (בריכוז 40 U/µL) (ראה טבלת חומרים) כדי למנוע פירוק של ה-RNA.
- בצע את כל השלבים על קרח עם חומרים מתכלים נקיים מ-RNase. שמור את ה-Cas9 mRNA על קרח עד לשימוש.
- בצע סופר-אובולציה לעכברות C57BL/6N בנות 4 שבועות באמצעות הזרקה תוך-פריטונית של 5 IU של גונדוטרופין מסרום של סוסה בהיריון (PMSG), ולאחר 48 שעות הזרקה של 5 IU של גונדוטרופין כוריוני אנושי (hCG).
זהירות: PMSG ו-hCG הם הורמונים שעלולים לגרום לרגישות עורית. הרכב כפפות והשלך מחטים למיכל ייעודי לחפצים חדים. - כ-14–18 שעות לאחר הזרקת hCG, בצע איות לעכברות C57BL/6N ולעכבר זכר C57BL/6N אחד בן 8–12 שבועות באמצעות פריקת צוואר. אסוף ביציות מצינורות הביצים של הנקבות וזרע מהזנב של האפידידימיס (cauda epididymis) של הזכר.
זהירות: יש לבצע את האיות בהתאם להנחיות המוסדיות. פריקת צוואר צריכה להתבצע אך ורק על ידי צוות מיומן. - בצע קבסציטציה (capacitation) לזרע בתווך קבסציטציה (ראה טבלת חומרים).
- הוסף נפח קטן של תרחיף הזרע לביציות להפריה in vitro וטפח אותם במשותף במשך 3–4 שעות ב-37 °C לקבלת זיגוטים מופריים.
- דלל את ה-gRNA וה-Cas9 mRNA התומללים במים נקיים מ-RNase לריכוזי עבודה (בדרך כלל 25 ng/µL עבור gRNA ו-50 ng/µL עבור Cas9 mRNA), ואת האוליגונוקלאוטיד התורם לריכוז של 10 ng/µL.
- הזרק במיקרו-הזרקה 1–2 pL מהתערובת לתוך הציטופלזמה של זיגוטים מופריים באמצעות מערכת מיקרו-הזרקה (ראה טבלת חומרים).
- זהה זיגוטים בריאים על ידי נוכחות של שני פרו-גרעינים מובחנים וגוף קוטבי שלם תחת מיקרוסקופ סטריאו.
- השתיל 300 זיגוטים מופריים בריאים לתוך צינורות הביצים של עכברות בהיריון מדומם שהוזדוו עם זכרים שעברו וסקטומיה.
הערה: פעולה זו תוביל ליצירת 2 עכברי מייסדים חיוביים (F0). - השתמש במים נקיים מ-RNase ובתנאי קירור (קרח) במהלך הדילול כדי לשמור על שלמות ה-RNA.
- זהה את עכברי ה-F0 באמצעות טיפוס גנטי של PCR מביופסיות של הזנב (ראה סעיף 1.6).
- הזדווג עם מייסדי F0 ועכברי WT כדי ליצור צאצאים הטרוזיגוטיים F1, במטרה להשיג העברה של המחיקה דרך תאי הנבט.
- בצע הכלאה בין עכברי F1 הטרוזיגוטים כדי להפיק עכברי F2 הומוזיגוטים חסרי Cracd.
- הכנת gRNA.
- טיפוס גנטי באמצעות תגובת שרשרת פולימראז (PCR)
הערה: הפרוטוקול הבא משתמש בערכה מסחרית TIANamp Genomic DNA Kit (ראה טבלת חומרים). Buffer GL הוא באפר הליזה, Buffer GB הוא באפר הקישור, ו-Buffer WA ו-Buffer WB הם באפרים לשטיפה.- הנח כ-2–5 ממ' של רקמת זנב של עכבר במבחנה למיקרו-צנטריפוגה המכילה 180 µL של Buffer GL, 20 µL של Proteinase K (תמיסה מלאית בריכוז 20 mg/mL), ו-10 µL של RNase A (תמיסה מלאית בריכוז 10 mg/mL).
- דגור את הדגימה ב-56 °C למשך לילה כדי לעכל את הרקמה.
- צנטריפוג את המבחנה ב-13800 × g למשך 2 דקות בטמפרטורת החדר כדי לשקיע את שאריות הרקמה, והעבר את הנוזל העליון למבחנה חדשה.
- הוסף 200 µL של Buffer GB ו-200 µL של אתנול 100% לנוזל העליון, ערבב היטב, והעבר את התערובת לעמודת ספין הממוקמת במבחנת איסוף.
- צנטריפוג ב-13800 × g למשך 2 דקות בטמפרטורת החדר והשלך את הנוזל שעבר.
- הוסף 500 µL של Buffer WA לעמודה, צנטריפוג ב-13800 × g למשך דקה אחת בטמפרטורת החדר והשלך את הנוזל שעבר.
- הוסף בזהירות 700 µL של Buffer WB (באפר שטיפה המכיל אתנול, שערבב מראש עם אתנול 100%) לעמודת הספין, צנטריפוג ב-13800 × g למשך דקה אחת בטמפרטורת החדר והשלך את הנוזל שעבר.
- מרח את Buffer WB על הדופן הפנימית של העמודה כדי לשטוף מלחים שיוריים.
- חזור על שלב 1.6.5 פעם אחת, לאחר מכן העבר את העמודה למבחנת איסוף חדשה וצנטריפוג ב-13800 × g למשך 2 דקות בטמפרטורת החדר כדי לייבש את הממברנה ולהסיר אתנול שיורי.
- הנח את העמודה בתוך מבחנת מיקרו-צנטריפוגה חדשה של 1.5 mL. הוסף 50–200 µL של מים סטריליים או באפר אלוציה (שחומם מראש ל-65 °C) למרכז הממברנה, ודגור למשך 5 דקות.
- צנטריפוג את העמודה ב-13800 × g למשך 2 דקות בטמפרטורת החדר כדי לבצע אלוציה ל-DNA.
- כדי להגדיל את תנובת ה-DNA, ניתן להעביר שוב את הנוזל שעבר לממברנה או להוסיף 50–200 µL נוספים של מים סטריליים, ולדגור למשך 5 דקות.
- בצע צנטריפוגה סופית ב-13800 × g למשך 2 דקות.
הערה: צפי לתנובת DNA של 50–200 ng/µL מרקמת זנב; יחס A260/A280 של 1.8–2.0 מעיד על DNA טהור.
- הנח כ-2–5 ממ' של רקמת זנב של עכבר במבחנה למיקרו-צנטריפוגה המכילה 180 µL של Buffer GL, 20 µL של Proteinase K (תמיסה מלאית בריכוז 20 mg/mL), ו-10 µL של RNase A (תמיסה מלאית בריכוז 10 mg/mL).
- טיפוס גנטי באמצעות multiplex PCR המשתמש בשלושה פריימרים בתגובה אחת.
- תכנן שלושה פריימרים כדי להבחין בין גנוטיפים מסוג WT, הטרוזיגוטי והומוזיגוטי בתגובת PCR אחת: פריימר קדמי F1 (5’-CAGAAGTCATAGCAGCAAGGCAG-3’, נקשר במעלה המחיקה), פריימר קדמי F2 (5’-GAGGGAATTGAGAGGGAGCC-3’, נקשר בתוך האזור שנמחק, קיים רק באלל WT), ופריימר אחורי R1 (5’-GCCAATTTAGCTGCTTCAAATGTTC-3’, פריימר אחורי משותף במורד המחיקה).
הערה: האלל המכוון מייצר אמפליקון של 421 bp (F1 + R1) רק כאשר המחיקה קיימת; אלל ה-WT מייצר אמפליקון של 357 bp (F2 + R1) רק כאשר האלל השלם קיים. - הכן את תגובת ה-PCR בנפח כולל של 25 µL המכיל 50–100 ng DNA גנומי, 0.2 µM מכל פריימר (F1, F2 ו-R1), 200 µM dNTPs, 1.5 mM MgCl₂, ו-1 U Taq DNA polymerase (ראה טבלת חומרים).
- השתמש בתוכנית תרמו-סייקלינג הבאה: דנטורציה ראשונית ב-95 °C למשך 3 דקות; 35 מחזורים של דנטורציה ב-95 °C למשך 15 שניות, היבס (annealing) ב-60°C למשך 15 שניות, והארכה ב-72 °C למשך 25 שניות; והארכה סופית ב-72 °C למשך 5 דקות.
- הפרד את תוצרי ה-PCR באמצעות אלקטרופורזה על ג'ל אגרוז 1–2% (120 V, 30 דקות) בבאפר 1× TAE.
- פרשנות של הטיפוס הגנטי על סמך תבנית הפסים: WT מראה רק פס של 357 bp (F2+R1); הטרוזיגוט מראה פסים של 421 bp (F1+R1) ושל 357 bp (F2+R1); הומוזיגוט מראה רק פס של 421 bp (F1+R1).
- תכנן שלושה פריימרים כדי להבחין בין גנוטיפים מסוג WT, הטרוזיגוטי והומוזיגוטי בתגובת PCR אחת: פריימר קדמי F1 (5’-CAGAAGTCATAGCAGCAAGGCAG-3’, נקשר במעלה המחיקה), פריימר קדמי F2 (5’-GAGGGAATTGAGAGGGAGCC-3’, נקשר בתוך האזור שנמחק, קיים רק באלל WT), ופריימר אחורי R1 (5’-GCCAATTTAGCTGCTTCAAATGTTC-3’, פריימר אחורי משותף במורד המחיקה).
2. הקמת מודל של אוטם שריר הלב
- הרדימו את העכברים באמצעות שאיפה של 3% isoflurane (המוגש ב-100% חמצן בקצב של 1 L/min), הניחו אותם בתנוחה שכיבה על פלטפורמה כירורגית, ואשרו הרדמה עמוקה על ידי היעדר רפלקס נסיגה של כף הרגל.
אזהרה: Isoflurane הוא חומר הרדמה נדיף. השתמשו בו רק באזור מאוורר היטב או תחת מicur מנדף כדי למנוע שאיפה. - בצעו אינטובציה אורוטראכאלית באמצעות שרוול קטטר תו-ורידי במידה 20-gauge. מרחו פומדת עינית בשתי העיניים כדי למנוע התייבשות של קרנית במהלך הניתוח.
- חברו את הצינור למסייע נשימה מכני לאחר אינטובציה מוצלחת כדי לשמר את הנשימה וההרדמה עם 2% isoflurane.
הערה: אינטובציה מוצלחת מאושרת על ידי תנועות חזה נראות המסתנכרנות עם מסייע הנשימה.
- חברו את הצינור למסייע נשימה מכני לאחר אינטובציה מוצלחת כדי לשמר את הנשימה וההרדמה עם 2% isoflurane.
- הסירו שיער מהחזה הקדמי באמצעות קרם להסרת שיער. חטאו את אזור הניתוח על ידי מריחת povidone-iodine ואלכוהול 70% בתנועות סיבוביות מספר פעמים, מהמרכז כלפי חוץ.
- לאחר חשיפה מלאה של העור, בצעו חתך של 1–1.5 cm בדופן החזה השמאלית בין המרווחים הבין-צלעיים השני והשלישי כדי לפתוח את חלל בית החזה.
- חתכו את פריקרד (Kisev) כדי לחשוף את הלב באופן מלא.
אזהרה: יש לבצע הליכים כירורגיים בתנאים סטריליים. השתמשו בציוד מגן אישי (PPE) מתאים, כולל כפפות ומסכה כירורגית.
- השתמשו בשפה התחתונה של העליה השמאלית כנקודת ייחוס, והשחילו מחט תפר אטראומטית 7–0 מתחת לעורון הכלי הדם התרמי הקדמי השמאלי (LAD) במרחק של כ-2–3 mm דיסטלית למקורו.
- השחילו את המחט לעומק של כ-0.5–1 mm והדקו את הקשירה לאט כדי למנוע קרעים בשריר הלב.
- אשרו חסימה מוצלחת על ידי צפייה בחיוורון (הלבנה) של הדופן הקדמית של החדר השמאלי דיסטלית לאתר הקשירה בתוך 30 s.
- בביקורות של ניתוח דמה (sham), פתחו את החזה והשחילו את התפר מתחת לעורון הכלי הדם ללא קשירת קשר.
- לאחר הקמת המודל, תפרו ברצף את הצלעות (תפר ספיג 4-0, תבנית פסיקה פשוטה) ואת העור (תפר ספיג 4-0, תבנית רציפה) לסגירת חלל בית החזה. הסירו את צינור האינטובציה ברגע שהעכבר חוזר לנשימה ספונטנית יציבה.
- הניחו את העכברים על משטח חימום (37 °C) עד להספקה מלאה של ההכרה.
- תנו משככי כאבים לאחר הניתוח (למשל, buprenorphine במינון 0.05–0.1 mg/kg, תת-עורי, כל 12 h למשך 48 h) בהתאם להנחיות ה-IACUC המוסדיות, ועקבו מקרוב אחר מצב הבריאות לאחר הניתוח למשך מספר ימים.
הערה: עקבו אחר סימני מצוקה (יציבה שפופה, פרווה מקוצבצת, ירידה בניידות, איבוד משקל > 20%).
- תנו משככי כאבים לאחר הניתוח (למשל, buprenorphine במינון 0.05–0.1 mg/kg, תת-עורי, כל 12 h למשך 48 h) בהתאם להנחיות ה-IACUC המוסדיות, ועקבו מקרוב אחר מצב הבריאות לאחר הניתוח למשך מספר ימים.
- שיעור תמותה וקריטריוני החרגה.
- רשמו את מספר העכברים שמתים בתוך 7 הימים הראשונים לאחר ניתוח ה-MI.
הערה: בקוהורט טיפוסי, צפו לשיעור תמותה של כ-10–20% עד היום ה-7 לאחר הניתוח, ללא הבדל משמעותי בין עכברי WT לעכברים חסרי Cracd. סיבות נפוצות למוות כוללות התסבך נרחב המוביל לאי-ספיקת לב חריפה, דימום כירורגי או פנומטורקס. הגרילו כל עכבר עם הפרעה קצב מתמשכת (דופק לב < 350 bpm) או סימנים למצוקה חמורה (למשל, יציבה שפופה, פרווה מקוצבצת, איבוד משקל > 20%) מניתוחים אקו-קרדיוגרפיים והיסטולוגיים עוקבים. עבור עכברים שעברו ניתוח דמה, התמותה צריכה להיות < 5%.
- רשמו את מספר העכברים שמתים בתוך 7 הימים הראשונים לאחר ניתוח ה-MI.
3. הערכה אקואקרידיוגרפית
- הכנת בעלי החיים והרדמה
- הפעל את מערכת דימות האולטרסאונד ברזולוציה גבוהה לבעלי חיים קטנים (ראה טבלת חומרים) ואת הבמה המחוממת המשולבת שבה.
- וודא שהמתמר בעל התדר הגבוה המתאים מחובר בצורה מאובטחת למנגנון ההרכבה בהתאם להוראות היצרן. הגדר את טמפרטורת הבמה המחוממת ל-37 °C והמתן להתייצבותה.
- הנח עכברים בתא השראה והרדם אותם עם 3% isoflurane בחמצן (1–2 L/min) עד להיעלמות רפלקס נסיגת הכף. העבר את העכברים המורדמים לבמה המחוממת בתנוחה גבנית (supine).
- שמר את ההרדמה עם 1–1.5% isoflurane המועבר באמצעות קונוס לאף, תוך התאמה לשמירה על קצב לב בין 450–550 פעימות לדקה.
- מרח משחה עינית בשתי העיניים כדי למנוע התייבשות של הקרנייה.
- גלה את אזור בית החזה, מרח באופן אחיד קרם להסרת שיער למשך לא יותר מ-3 min, ולאחר מכן הסר את הקרם ביסודיות בעזרת גזה רטובה.
- שטוף בעדינות את העור עם תמיסת סלין חמימה במידת הצורך ויבש את האזור. הצמד אלקטרודות ECG חיצוניות לגפיים באמצעות ג'ל אלקטרודות בנקודות המגע ואבטח אותן בסרט הדבקה.
הערה: וודא ECG יציב וקצב לב בטווח של 450–550 bpm לפני המעבר לדימות אולטרסאונד.
- הפעל את מערכת דימות האולטרסאונד ברזולוציה גבוהה לבעלי חיים קטנים (ראה טבלת חומרים) ואת הבמה המחוממת המשולבת שבה.
- רכישת תמונות באקו-קרדיוגרפיה קונבנציונלית
- מקם את העכבר בתנוחה אופקית גבנית על הבמה המחוממת, עם נטייה קלה שמאלה במידת הצורך כדי להבטיח דימות לבבי אופטימלי.
- מרח כמות נדיבה של ג'ל צימוד לאולטרסאונד שחומם מראש על האזור הפרקורדיאלי השמאלי ללא השיער, תוך הימנעות מבועות אוויר.
- הנח את המתמר בעדינות על דופן בית החזה במיקום פראסטרנלי שמאלי. התאם את כיוונו כך שסימן האינדקס יפנה לכיוון כתפו הימנית של העכבר, וכוונן את הזווית והלחץ כדי למקסם את איכות התמונה.
- עבור לדימות ב-B-mode (דו-ממדי), התאם את העומק, אזור המיקוד וקצב הפריימים כדי לקבל מבט פראסטרנלי של הציר הארוך של החדר השמאלי בצורה ברורה. איכות תמונה מקובלת דורשת ויזואליזציה ברורה של הגבול האנדוקרדיאלי ללא הפסקות (dropouts).
- מרגע התייצבות קצב הלב (450–550 bpm), רכוש שלושה לולאות cine נפרדות ב-B-mode במבט פראסטרנלי של הציר הארוך, כשכל אחת מכילה לפחות 3–5 מחזורי לב רצופים.
- שמור כל לולאה על ידי לחיצה על “Cine Store”, ושמור פריימים נבחרים באמצעות “Frame Store”.
- ממבט הציר הארוך, סובב את המתמר ב-90° עם כיוון השעון כדי לקבל מבט של הציר הקצר בגובה הפפילרי המרכזי.
- רכוש שלוש לולאות cine נפרדות ב-B-mode בציר הקצר (כל אחת עם ≥ 3–5 מחזורים).
- הפעל את ה-M-mode, מקם את הסמן בניצב למחיצה הבין-חדרית ולדופן האחורית, והקלט שלושה רישומי M-mode נפרדים.
הערה: רישומי M-mode מקובלים דורשים גבולות אנדוקרדיאליים ברורים לאורך כל מחזור הלב.
- השתמש בתוכנת VevoLab 3.2.0 (ראה טבלת חומרים) כדי למדוד את הפרמטרים הבאים מרישומי M-mode לפי שיטת ה-leading-edge של ה-American Society of Echocardiography: עובי המחיצה הבין-חדרית בדיאסטולה ובסיסטולה (IVSd, IVSs), קוטר פנימי של החדר השמאלי בדיאסטולה ובסיסטולה (LVIDd, LVIDs), ועובי הדופן האחורית של החדר השמאלי בדיאסטולה ובסיסטולה (LVPWd, LVPWs).
- חשב את מקדם הפליטה של החדר השמאלי (EF) ואת הקיצור הפראקציונלי (FS) באמצעות נוסחת Teichholz: EF (%) = [(LV Vold - LV Vols) / LV Vold] × 100, LV Vold = ((7 / (2.4 + LVIDd)) × LVIDd3), LV Vol;s = ((7 / (2.4 + LVIDs)) × LVIDs3), FS (%) = [(LVIDd – LVIDs) / LVIDd] × 100.
הערה: עבור כל עכבר, המדידות חושבו כממוצע משלושה מחזורי לב רצופים לכל הקלטת M-mode, והממוצע נלקח על פני שלוש הקלטות נפרדות, מה שהביא לסך של 9 מדידות לכל פרמטר לכל עכבר.
- חשב את מקדם הפליטה של החדר השמאלי (EF) ואת הקיצור הפראקציונלי (FS) באמצעות נוסחת Teichholz: EF (%) = [(LV Vold - LV Vols) / LV Vold] × 100, LV Vold = ((7 / (2.4 + LVIDd)) × LVIDd3), LV Vol;s = ((7 / (2.4 + LVIDs)) × LVIDs3), FS (%) = [(LVIDd – LVIDs) / LVIDd] × 100.
- מקם את העכבר בתנוחה אופקית גבנית על הבמה המחוממת, עם נטייה קלה שמאלה במידת הצורך כדי להבטיח דימות לבבי אופטימלי.
- ניתוח Strain באמצעות מעקב נקודות (Speckle-Tracking)
- בצע ניתוח מעקב נקודות באמצעות תוכנת הניתוח הייעודית (מודול VevoStrain בתוך VevoLab 3.2.0).
- פתח לולאת cine ב-B-mode ברורה במבט פראסטרנלי של הציר הארוך, בחר ב-"Vevo Strain" כדי להיכנס למצב ניתוח strain, שמור רק מחזורי לב מלאים ובחר ב-"Long Axis".
- סמן ידנית את הגבול האנדוקרדיאלי בפריים של סוף הדיאסטולה. לאחר שרישום הגבול האנדוקרדיאלי יושלם, התוכנה תיצור באופן אוטומטי גבול אפיקרדיאלי (התאם במידת הצורך). לאחר מכן התחל את ניתוח ה-strain והפעל את פונקציית ה-"toggle contour/vector/orbit line/B mode" כדי להציג את מסלול התנועה.
- הערך את איכות המעקב באמצעות הרשת המקודדת בצבעים: עליה להיראות ירוקה, לעקוב מקרוב אחרי הגבולות האנדוקרדיאליים והאפיקרדיאליים ללא קפיצות, ולזוז באופן סינכרוני עם התכווצות/הרפיית השריר הלבבי. אם לא, דייק את הגבולות ידנית ובצע ניתוח חוזר.
- הפעל את ה-"Time-to-peak analysis" כדי לחלק את החדר השמאלי לשישה סגמנטים (בזאלי קדמי, מרכזי קדמי, אפקלי קדמי, אפקלי אחורי, מרכזי אחורי, בזאלי אחורי), כאשר כל צבע מייצג סגמנט בודד. לאחר השגת מעקב משביע רצון, ייצא נתונים עבור פרמטרי תנועת דופן: מהירות (cm/s), העתקה (cm), strain (%) וקצב strain (1/s) הן עבור הכיוון האורכי והן עבור הרדיאלי.
הערה: אם איכות המעקב נותרת נמוכה לאחר שלושה ניסיונות רכישה (למשל, עקומות strain לא עקביות, או חוסר יכולת להציג מסלולי תנועה ברורים), הסר את העכבר מניתוח ה-strain.
- בצע ניתוח מעקב נקודות באמצעות תוכנת הניתוח הייעודית (מודול VevoStrain בתוך VevoLab 3.2.0).
4. ניתוח היסטופתולוגי
- After echocardiography, administer a lethal dose of isoflurane to deeply anesthetized mice and apply a secondary physical method (e.g., cervical dislocation) according to institutional guidelines.
- Open the thoracic cavity, rapidly harvest the hearts and rinse the hearts gently in cold phosphate-buffered saline (PBS).
CAUTION: Euthanasia must be performed according to institutionally approved protocols.
- Open the thoracic cavity, rapidly harvest the hearts and rinse the hearts gently in cold phosphate-buffered saline (PBS).
- Trim the hearts, remove the great vessels and cut transversely from apex to base into 2–3 slices (approximately 2–3 mm thick).
- Immerse the tissue slices in 4% paraformaldehyde in PBS and fix them at 4 °C for 12–24 h.
NOTE: Use a volume ratio of fixative to tissue of at least 10:1.
CAUTION: Paraformaldehyde is toxic and a suspected carcinogen. Handle in a fume hood and wear appropriate PPE (gloves, lab coat, safety goggles). Dispose of paraformaldehyde waste as hazardous chemical waste according to institutional guidelines.
- Immerse the tissue slices in 4% paraformaldehyde in PBS and fix them at 4 °C for 12–24 h.
- Dehydrate tissue through a graded ethanol series (50%, 70%, 80%, 95%, 100% ethanol, each for 1 h), clear them in xylene (2 changes, 30 min each), embed them in paraffin, and section them at 4–5 µm thickness using a microtome.
NOTE: Sections should be free of folds and tears.
CAUTION: Xylene is flammable and toxic. Use only in a fume hood and avoid skin contact. Collect xylene waste in a designated container and dispose of as hazardous chemical waste. - Deparaffinize the sections in xylene (2 changes, 5–10 min each), rehydrate them through descending ethanol series (100%, 95%, 80%, 70%, each for 3 min) to water.
- Stain them using standard Hematoxylin and Eosin (H&E) (see Table of Materials) and Masson’s trichrome protocols (see Table of Materials).
CAUTION: Xylene is toxic. Use only in a fume hood and avoid skin contact. Dispose of xylene waste as hazardous material.
- Stain them using standard Hematoxylin and Eosin (H&E) (see Table of Materials) and Masson’s trichrome protocols (see Table of Materials).
- Examine the stained sections under a light microscope (see Table of Materials).
- For quantitative analysis, capture digital images at 4×, 20×, and 40× magnification using a digital camera attached to the microscope. Measure infarct size and fibrotic area using ImageJ.
NOTE: Infarct size (%) = (infarct area / total LV area) × 100; collagen content (%) = (blue-stained area / total myocardial area) × 100.
- For quantitative analysis, capture digital images at 4×, 20×, and 40× magnification using a digital camera attached to the microscope. Measure infarct size and fibrotic area using ImageJ.
תוצאות
יצירת עכברים חסרי Cracd
מודל עכבר תורשתי הנושא חסר ממוקד בגן Cracd נוצר באמצעות עריכה גנומית מתווכת CRISPR/Cas9 (איור 1A, איור 1B). כדי להבדיל בין גנוטיפים מסוג WT, הטרוזיגוטים והומוזיגוטים, בוצע multiplex PCR באמצעות שלושה פריימרים (F1, F2, R1) בתגובה אחת. עכברים הומוזיגוטים למחיקה (Cracd‑deficient) הראו רק את הפס של 421 bp, ועכברי WT הראו רק את הפס של 357 bp (איור 1C). ריצוף סנגר (Sanger sequencing) של DNA גנומי מעכברים חסרי Cracd אישר את המחיקה החזויה בגן המטרה בהשוואה לבקרי WT (איור 1D). ניתוח Western blot הדגים בנוסף הפחתה ניכרת ברמות חלבון CRACD ברקמות לב מעכברים חסרי Cracd בהשוואה לבקרי WT (איור 1E). יחד, נתונים אלה מאשרים את ההקמה המוצלחת של קו העכברים החסר ב- Cracd.
אקו-קרדיוגרפיה
הערכה אקו-קרדיוגרפית ביום ה-7 לאחר הניתוח חשפה רה-מידול לבבי פתולוגי בולט בעכברי WT לאחר MI (קבוצת WT-MI) בהשוואה לקבוצת הביקורת שעברה ניתוח sham (איור 2A). קבוצת ה-WT-MI הראתה דילול של המחיצה הבין-חדרית (איור 2B, C), הרחבה משמעותית של החדר השמאלי (LV) כפי שבא לידי ביטוי בעלייה ב-LVIDd (איור 2D) וב-LVIDs (איור 2E), ודילול של הדופן האחורית (איור 2F, G). שינויים מבניים אלו היו קשורים לירידה בולטת בתפקוד הסיסטולי הגלובלי, כפי שהודגם על ידי הפחתה משמעותית ב-EF (איור 2H) וב-FS (איור 2I). בניגוד לכך, עכברים חסרי Cracd הראו פנוטיפ קרדיו-פרוטקטיבי בעקבות MI. הרחבת ה-LV נבלמה באופן משמעותי, עם LVIDd ו-LVIDs קטנים במידה ניכרת בהשוואה לקבוצת ה-WT-MI. יתרה מכך, עכברים אלו הראו שיפור בעובי הסיסטולי של הדופן האחורית ושמרו על ערכי EF ו-FS גבוהים משמעותית. ממצאים אלו מעידים על כך שחסר ב-Cracd מבלם ביעילות את הרחבת ה-LV לאחר אוטם ושומר על התפקוד הסיסטולי הגלובלי.
ניתוח מאמץ באמצעות מעקב אחר נקודות (Speckle-tracking strain analysis)
תנועת השריר והדפורמציה של החדר השמאלי הוערכו בהמשך באמצעות אקו-קרדיוגרפיה של מעקב נקודות (speckle‑tracking echocardiography) תוך שימוש במבטים בלבד בציר הארוך פאראסטרנלי (איור 3A). כדי להבטיח את מהימנות הנתונים, הגדרנו קריטריונים פרגמטיים לפלט קביל בהתבסס על יכולות תוכנת ה-VevoStrain. ניתוח מאמץ (strain) קביל דרש: (i) מבט ברור בציר הארוך פאראסטרנלי עם גבולות אנדוקרדיאליים הנראים לאורך כל המחזור הלבבי; (ii) קצב לב יציב בין 450–550 bpm במהלך הרכישה; (iii) לאחר מעקב אוטומטי, הרשת המקודדת בצבעים (שמופעלת באמצעות “toggle contour/vector/orbit line/B mode”) הייתה צריכה לעקוב מקרוב אחר הגבולות האנדוקרדיאליים והאפיקרדיאליים ללא קפיצות או אובדן מגע; ו-(iv) עקומות המאמץ היו צריכות להיות חלקות, להראות צורות גל עקביות בין הסגמנטים, ולהיות נטולות קפיצות פתאומיות או הפרעות אריתמיות. פלט שאינו אופטימלי — בדרך כלל עקומות מאמץ לא עקביות או חוסר יכולת להציג מסלולי תנועה ברורים — הוביל להתאמה ידנית של המתארים האנדוקרדיאליים או האפיקרדיאליים ולניתוח חוזר. אם האיכות נותרה נמוכה לאחר שלושה ניסיונות, העכבר הוצא מהמחקר. באמצעות קריטריונים אלה, השגנו נתוני מאמץ מהימנים בעכברי WT‑MI ובעכברי MI חסרי Cracd.
בהשוואה לקבוצת ה-sham, עכברי WT-MI הראו ירידה משמעותית במהירות רדיאלית (איור 3B) ובמהירות לונגיטודית (איור 3C), וכן בתזוזה רדיאלית (איור 3D) ותזוזה לונגיטודית (איור 3E>), מה שמעיד על פגיעה בתנועה הגלובלית של השריר הלבבי. הערכים המוחלטים של מאמץ רדיאלי (איור 3F), קצב מאמץ רדיאלי (איור 3G), מאמץ לונגיטודי (איור 3H) וקצב מאמץ לונגיטודי (איור 3I>) היו גם הם נמוכים באופן ניכר, מה שמשקף פגיעה חמורה בדפורמציה ובתפקוד האזורי של השריר הלבבי. לעומת זאת, עכברים חסרי Cracd הראו שיפור משמעותי בפרמטרים אלו. בהשוואה לקבוצת ה-WT-MI, הם הציגו התאוששות טובה יותר של התזוזות הרדיאליות והלונגיטודיות. יתרה מכך, המהירות הרדיאלית, המאמץ הרדיאלי וקצב המאמץ הרדיאלי נשמרו ברמות גבוהות יותר, בעוד שהמאמץ הלונגיטודי וקצב המאמץ הלונגיטודי השתפרו באופן משמעותי. תוצאות אלו מרמזות כי מחסור ב- Cracd לא רק משמר את התפקוד הסיסטולי הגלובלי, אלא גם משפר את הדפורמציה האזורית של השריר הלבבי בחדר השמאלי (LV) לאחר MI.
ניתוח דימות מעקב הכתמים (speckle‑tracking) כלל גם ויזואליזציה של התפלגות המאמץ הסגמנטלי ומסלולי תנועה לבביים. תמונות B‑mode בחתך אורך פאראסטרנלי עם שישה אזורים מחולקים (BA, MA, AA, AP, MP, BP) ומיפוי של מדרג צבעים מוצגים ב-איור 4A. מסלולי תנועה לבביים, עקומות זמן-לשיא עבור מאמץ רדיאלי ואורכי, מפות התפלגות פרמטריות של סנכרון מאמץ ושחזורים תלת-ממדיים מוצגים ב-איור 4B. נתונים אלו תומכים עוד יותר בשיפורים התפקודיים שנצפו בעכברים עם חסר ב-Cracd.
בדיקה היסטולוגית
כדי להעריך את ההשפעה המגנה של נראה שהטקסט שהוזן ("Cracd") אינו מכיל תוכן בעל משמעות או מונחים מדעיים לתרגום. אנא ספק את הטקסט המלא שברצונך לתרגם. חסר אל מול MI, בוצעה בדיקה היסטופתולוגית של חתכי לב מ-WT ו- Cracdעכברים חסרי- [protein/gene name] ביום השביעי לאחר אותם שריר הלב (MI), באמצעות H-&צביעה ב-E και Masson's trichrome. חתכים אורך של הלב השלם מוצגים ב- איור 5A, עם ניתוח כמותי של גודל השבץ (infarct size) ותכולת הקולגן המוצגים ב- איור 5B ו- איור 5C, בהתאמה. תצפיות בהגדלה גבוהה של אזור האוטם (infarct zone), אזור הגבול (border zone) והאזור המרוחק (remote zone) מוצגות ב- איור 5Dבלבבות של WT-MI, H&צביעת #38;E הראתה הידוק בולט של דופן החדר השמאלי ואזור אינפarkt מוגדר היטב. בתוך אזור האינפארקט נצפו חדירה נרחבת של תאי דלקת, נמק של השריר הלבבי ופיברוזיס ניכר עם היווצרות צלקת. באזור הגבולי (border zone) נצפו חדירת תאי דלקת, נמק של השריר הלבבי, פיברוזיס והיפרטרופיה של קרדיומיוציטים, בעוד שבאזור המרוחק (remote zone) נראו שינויים היפרטרופיים בולטים. צביעת Masson's trichrome תואמת הדגימה עוד יותר פיברוזיס אינטרסטיציאלי נרחב הן באזור האינפארקט והן באזור הגבולי של לבבות WT לאחר MI. לעומת זאת, נראה כי הטקסט שהוזן ("Cracd") אינו מילה באנגלית או מונח מדעי מוכר, אלא שגיאת הקלדה. אנא ספק את הטקסט המקורי לתרגום.עכברים חסרי- [חלבון/ג'ין] הראו החמרה משמעותית של שינויים פתולוגיים, כולל הפחתה בדילול דפנות הלב, ירידה בחדירה דלקתית ובנמק של השריר הלבבי (myocardial necrosis), היפרטרופיה פחות בולטת של תאי השריר הלבבי (cardiomyocyte hypertrophy) ופיברוזיס אינטרסטיציאלי מופחת באופן ניכר בהשוואה ללבות WT-MI. ממצאים היסטולוגיים אלה מעידים כי Cracd חסר מפחית נזק שרירי לב לאחר אוטם ורימודדלינג (remodeling) שלילי.
ביצוע מוצלח של הפרוטוקול אמור להניב: (i) אזור אוטם (infarct zone) מוגדר היטב עם השקעת קולגן נרחבת בלבבות WT-MI; (ii) מורפולוגיה תאית ברורה ללא ארטיפקטים של צביעה; ו-(iii) פתולוגיה מופחתת באופן משמעותי בלבבות MI חסרי Cracd. למרות שגודל האוטם עשוי להשתנות בהתאם לדיוק הקשירה, ההבדל התלוי בגנוטיפ מהווה אינדיקטור מהימן לביצוע מוצלח.
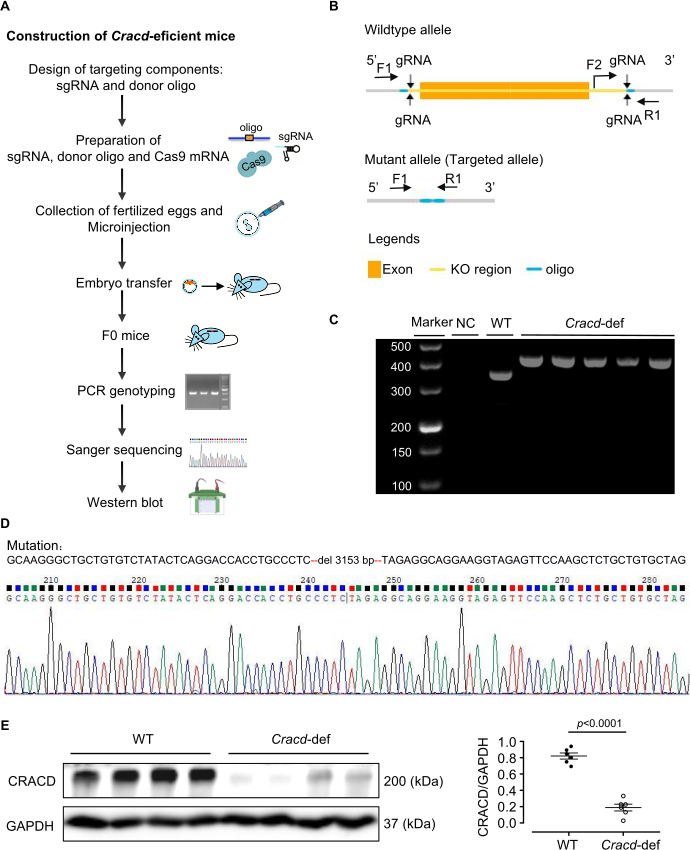
איור 1: יצירת עכברים חסרי Cracd. (A) בניית עכברים חסרי Cracd. (B) תרשים של אסטרטגיית שינוי הגן Cracd. (C) גנוטיפינג באמצעות PCR של DNA גנומי מזנב. עכברי WT מראים פס בודד של 357 bp, בעוד שעכברים הומוזיגוטים (חסרי Cracd) מראים פס בודד של 421 bp. (D) ריצוף סנגר של DNA גנומי אישש את המחיקה החזויה בלוכוס Cracd של העכברים החסרים בהשוואה לביקורות WT. (E) ניתוח Western blot הראה רמות חלבון CRACD מופחתות באופן משמעותי בלבבות של עכברים חסרי Cracd בהשוואה לביקורות WT. n = 6 עכברים לקבוצה. הנתונים מוצגים כממוצע ± SEM. מובהקות סטטיסטית חושבה באמצעות מבחן t של Student דו-זנבי למדגמים לא מזווגים. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
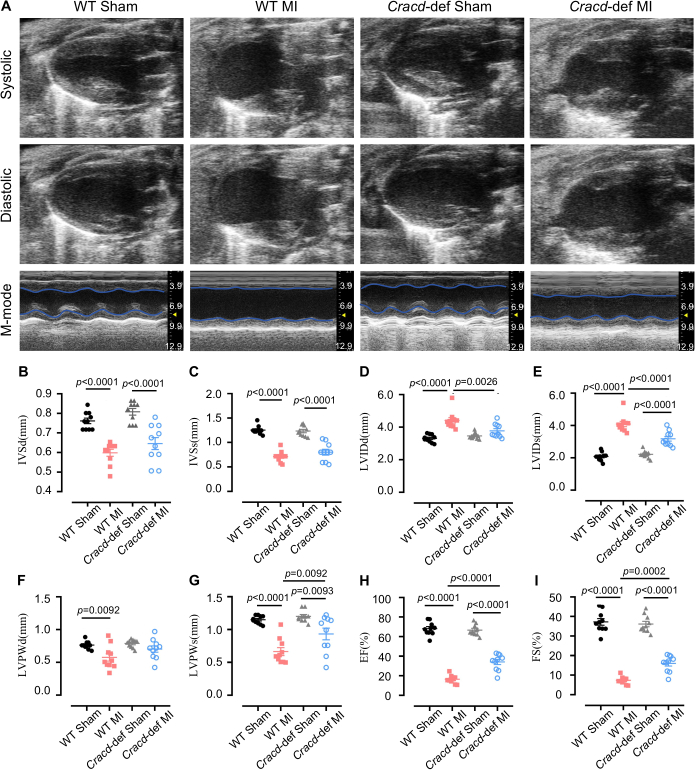
איור 2: הערכה אקו-קרדיוגרפית של תפקוד הלב. (A) תמונות אקו-קרדיוגרפיות מייצגות במצבי B-mode ו-M-mode של לבב עכברים בדיאסטולה ובסיסטולה. ניתוח כמותי של (B) עובי המחיצה הבין-חדרית בדיאסטולה (IVSd) ושל (C) סיסטולה (IVSs), (D) הקוטר הפנימי של החדר השמאלי בדיאסטולה (LVIDd) וב (E) סיסטולה (LVIDs), (F) עובי הדופן האחורית של החדר השמאלי בדיאסטולה (LVPWd) וב (G) סיסטולה (LVPWs), (H) מקדם הפליטה (EF), ו (I) קיצור פראקציונלי (FS). n = 10 עכברים לקבוצה. הנתונים מוצגים כממוצע ± SEM. מובהקות סטטיסטית נקבעה באמצעות one-way ANOVA ולאחריה מבחן השוואות מרובות של Tukey. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
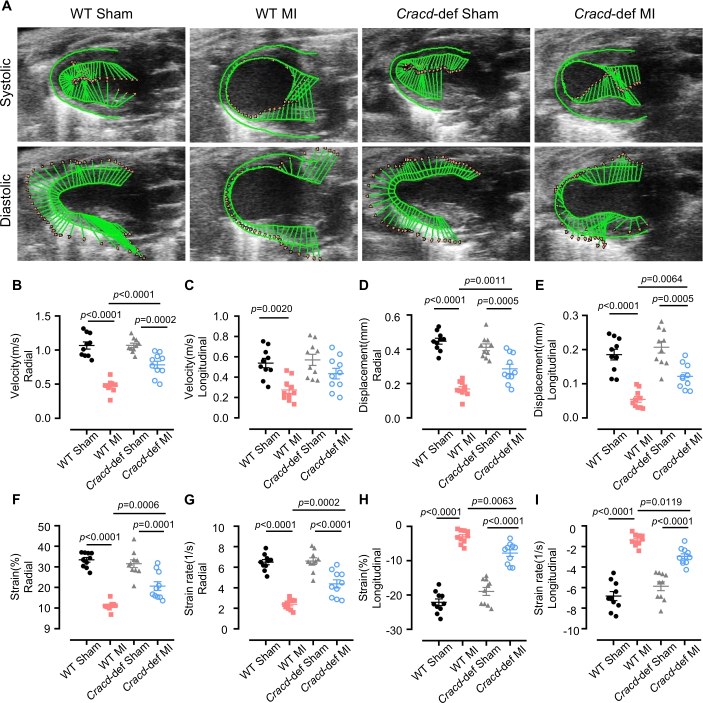
איור 3: ניתוח מאמץ באמצעות מעקב אחרי נקודות (Speckle-tracking strain analysis). (A) תמונות מייצגות של תנועת דופן החדר השמאלי ודפורמציה בדיאסטולה ובסיסטולה. ניתוחים כמותיים של הפרמטרים הבאים: (B) מהירות רדיאלית, (C) מהירות לונגיטודית, (D) העתקה רדיאלית, (E) העתקה לונגיטודית, (F) מאמץ רדיאלי, (G) קצב מאמץ רדיאלי, (H) מאמץ לונגיטודי, ו-(I) קצב מאמץ לונגיטודי. n = 10 עכברים לכל קבוצה. הנתונים מוצגים כממוצע ± SEM. מובהקות סטטיסטית נקבעה באמצעות one-way ANOVA ולאחריו מבחן השוואות מרובות של Tukey. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
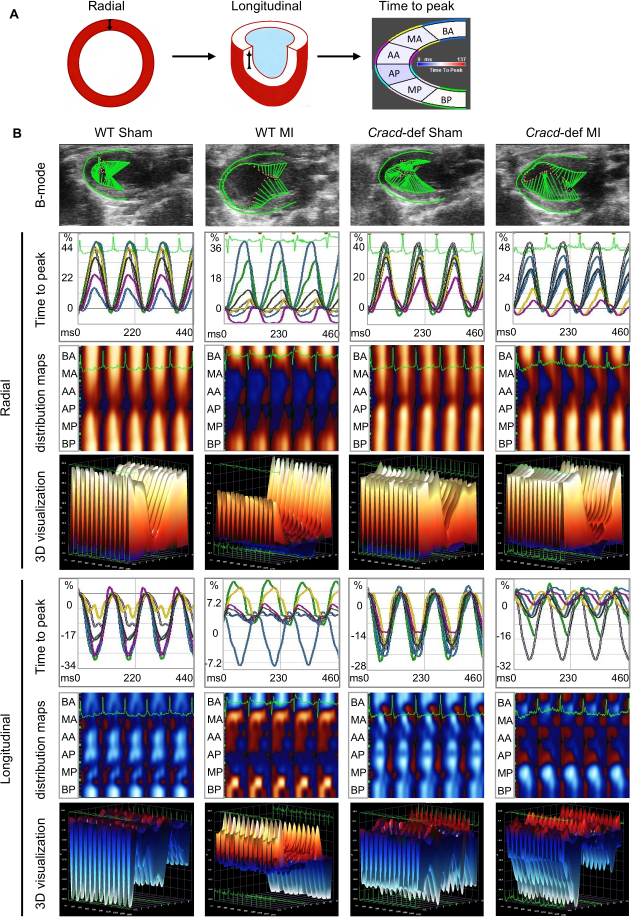
איור 4: דימות מעקב אחר נקודות (Speckle-tracking imaging) בקבוצות WT-Sham, WT-MI, Sham עם חסר ב-Cracd, ו-MI עם חסר ב-Cracd ביום ה-7 לאחר ה-MI. (A) תמונות B-mode בציר אורך פאראסטרנלי. דופן החדר השמאלי חולקה לשש אזורים: BA (בזאלי קדמי), MA (אמצעי קדמי), AA (אפיקלי קדמי), AP (אפיקלי אחורי), MP (אמצעי אחורי), ו-BP (בזאלי אחורי). מדרג צבעים מכחול לאדום מייצג עלייה בעוצמת המאמץ (strain). (B) מסלולי תנועה של הלב; עקומות זמן-לשיא עבור ערכי מאמץ רדיאלי ואורכי יחד עם זמני השיא המתאימים. מפות התפלגות פרמטריות של סנכרון מאמץ (כחול/אדום מציינים כיוון: רדיאלי – הרחק מהמרכז/אל המרכז; אורכי – הרחק מהאפקס/אל האפקס). נקודות לבנות = אזורי המהירות הגבוהה ביותר, נקודות שחורות = המהירות הנמוכה ביותר. שחזורים תלת-ממדיים (X: זמן, Y: מיקום מרחבי, Z: עוצמת המאמץ). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
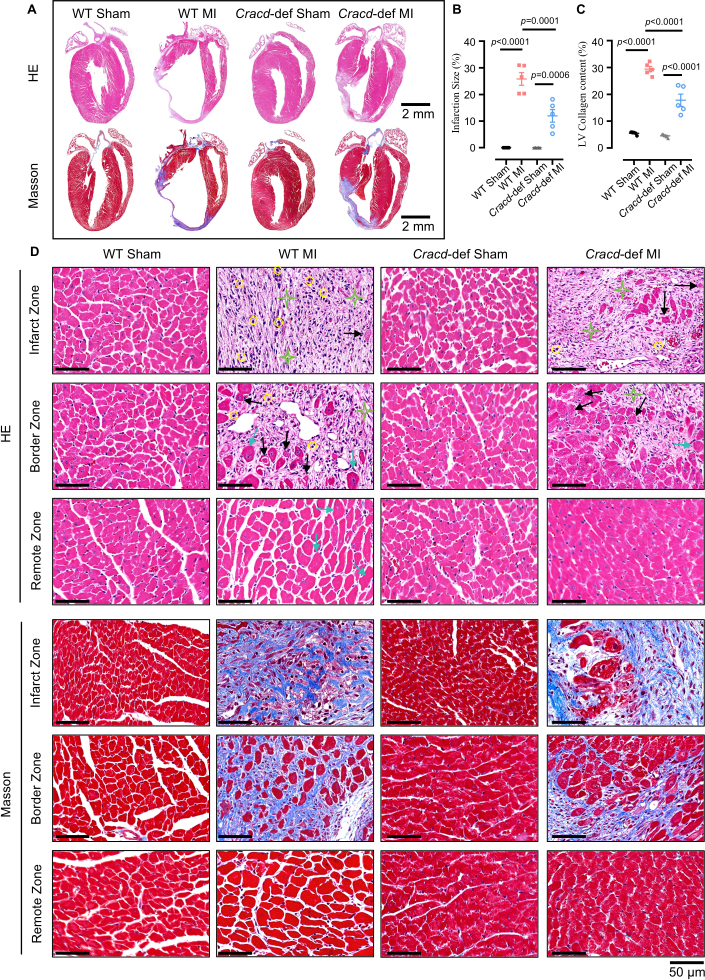
Figure 5: Histopathological analysis of cardiac remodeling after MI. (A) Whole-heart longitudinal sections with H&E and Masson's trichrome staining. Scale bars: 2 mm. (B) Quantitative analysis of infarct size and (C) collagen content. (D) High‑magnification views of infarct zone (IZ), border zone (BZ), and remote zone (RZ). H&E: yellow circles = inflammatory infiltration; black arrows = myocardial necrosis; green stars = fibrosis; blue arrows = hypertrophy. Masson’s trichrome: blue indicates collagen deposition. Scale bar: 50 μm. n = 5 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
דיון
במחקר זה, יצרנו עכבר חסר Cracd שהונדס באמצעות CRISPR/Cas9 והקמנו זרימת עבודה לאפיון הפנוטיפ שלו לאחר MI באמצעות אקו-קרדיוגרפיה קונבנציונלית, דימוי מאמץ במעקב נקודות (speckle-tracking strain imaging) והיסטולוגיה. הפרוטוקול הניב עכברי knockouts עם אובדן מאושר של חלבון CRACD. עכברים חסרי Cracd הראו פחות התרחבות פרוקיסומלית, EF טוב יותר ופיברוזיס מופחת מאשר ביקורות WT לאחר MI, מה שמאשש את יעילותו של המודל לחקר רמיodeling של הלב.
ההצלחה של מודל זה תלויה במספר שלבים קריטיים. תכנון ה-gRNA ותיקוף in vitro משפיעים ישירות על יעילות העריכה של הזיגוט23. אנו משתמשים ב-CRISPick או ב-Benchling לבחירת gRNAs עם ציוני CRISPRater של ≥ 0.5, ולאחר מכן בודקים את יעילות השסע באמצעות בדיקת in vitro Cas9/gRNA. רק gRNAs המשיגים שסע של > 50% מוזרקים במיקרו-הזרקה. ליגציה תקינה של ה-LAD חיונית באותה מידה: תפר ה-7‑0 חייב לעבור 2–3 mm ממקור ה-LAD בעומק של 0.5–1 mm כדי למנוע פגיעה בחדר הימני (עמוק מדי) או אי-חסימה של הכלי (רדוד מדי); הלבנה מיידית של הדופן הקדמית מאשרת את החסימה. בקרת קצב הלב במהלך האקו-קרדיוגרפיה היא חיונית גם כן24, ושמירה על 450–550 bpm באמצעות התאמת איסופלורן (בדרך כלל 1–2%) משפרת את השחזור של מדידות קונבנציונליות ומדידות מאמץ (strain). לבסוף, עבור ניתוח speckle‑tracking, חיונית הערכה חזותית של הרשת המקודדת בצבעים25. הרשת חייבת לעקוב אחר גבולות השריר הלבבי ללא קפיצות, אחרת נדרש תיקון ידני; אם האיכות נשארת נמוכה לאחר שלושה ניסיונות, העכבר מוצא מהמחקר.
גם כאשר הפרוטוקול מבוצע בדקדקנות, עלולים להיווצר קשיים טכניים מסוימים. פתרון בעיות שיטתי יכול לפתור את רובם. שיעורי העברה נמוכים של קו הנבט (מתחת ל-10%) מעידים בדרך כלל על שילוב לקוי של אוליגנוקלאוטיד התורם או על פעילות חלשה של ה-gRNA.26כתוצאה מכך, הגדלת כמות האוליגו התורם ל-20 ננוגרם/µL, הארכת זרועות ההומולוגיה ל-120–200 bp, ובדיקה חוזרת של שסוע ה-gRNA (> (50%) יכולים לשפר את התוצאות. תמותה גבוהה לאחר אוטם שריר הלב (מעל 30%) נובעת לעיתים קרובות מפנאומותורקס (חזה אוויר), דימומים ואוטם נרחב.27לפיכך, השארת העכברים בחמצן רציף עד להתעוררותם ושימוש במצע חימום לשמירה על טמפרטורת הגוף מפחיתים באופן ניכר את שיעורי התמותה. אם הדופן הקדמית אינה הופכת לחיוורת לאחר הקישור (ligation), ייתכן שה-LAD זוהה באופן שגוי או שהתפר רדוד מדי. במקרה זה, איתור מחדש של ה-LAD (כלי דם אלכסוני בצבע אדום בהיר) והעברת המחט שוב לעומק של 0.5–1 ממ', לעיתים באמצעות מיקרוסקופ דיסקסיה, פותרים בעיה זו. במקרה של איכות לקויה של מעקב הנקודות (speckle-tracking), הגורמים השכיחים הם קצב פריימים נמוך, גבולות מטושטשים או ארטיפקטים של תנועה.28בהתאם לכך, העלאת קצב הפרשמות (frame rate), כיוון עדין של ההגבר (gain), תיקון ידני של העקבה האנדוקרדיאלית (endocardial trace) ופסילת מחזורים עם הפרעות קצב מסייעים לכך.
מעבר לשיקולים תפעוליים אלו, למתודה יש מגבלות ברורות. נוקאאוט של Cracd הוא גלובלי, ולכן CRACD חסר בכל הרקמות. כתוצאה מכך, לא ניתן לייחס את ההגנה שנצפתה באופן בלעדי לתאי שריר הלב (cardiomyocytes), שכן ייתכן שגם תרומות מערכתיות משחקות תפקיד. יהיה צורך בנוקאאוט מותנה (conditional knockout) כדי להפריד בין תפקידים ספציפיים לסוגי תאים. מגבלה נוספת היא נקודת הזמן היחידה ביום 7; איננו מקבלים מידע על עיצוב מחדש (remodeling) כרוני. לפיכך, יש להוסיף נקודות זמן מאוחרות יותר (4 או 8 שבועות) עבור מחקרים ארוכי טווח. השחזור (reproducibility) סובל גם מהסתמכות על איכות התמונה: לא כל מערכת אולטרסאונד יכולה לספק גבולות אנדוקרדיאליים נקיים, וניסיונו של המפעיל הוא משמעותי. לפיכך, מומלץ שאדם המוכשר מקצועית יבצע את כל הניתוחים והמדידות.
לאור מגבלות אלו, מועיל להשוות את הגישה שלנו לאסטרטגיות חלופיות לבחינת תפקוד גנים בשחזור לאחר אוטם שריר הלב (post‑MI remodeling). מניפולציה גנטית באמצעות AAV ואוליגנוקלאוטידים אנטי-סנס (ASOs) הן שתי חלופות נפוצות29,30. AAV9 יכול להוביל לביטוי יתר או להשתקה (knockdown) זמנית וספציפית ללב ללא צורך בהכלאה, אך מגבלת האריזה שלו (~4.7 kb), יעילות התעתוק המשתנה והשפעות מחוץ למטרה (off‑target effects) מהוות חסרונות31. לעומת זאת, מודל ה-knockout של CRISPR/Cas9 שלנו מציע אובדן תפקוד קבוע ומלא, דבר המהווה יתרון למחקרים ארוכי טווח. ASOs מספקים השתקה הפיכה ותלוית-מינון עם התחלה מהירה, מה שהופך אותם למתאימים להתערבויות אקוטיות; עם זאת, הם דורשים מינון חוזר וחסרים ספציפיות לרקמה32. לפיכך, ה-knockout הקונסטיטוטי המתואר כאן הוא הטוב ביותר לגילוי ראשוני ולאפיון פנוטיפי כרוני.
לבסוף, ניתן להרחיב את הפרוטוקול הרבה מעבר ל-CRACD. אותו תהליך עבודה — יצירת עכברי knockout באמצעות CRISPR/Cas9 בשילוב עם אקו-קרדיוגרפיה, דימוי מאמץ (strain imaging) והיסטולוגיה — יכול להעריך כל גן מועמד בתהליכי עיצוב מחדש (remodeling) לאחר אוטם שריר הלב (MI). מסגרת הפנוטיפיקה מתאימה גם למודלים אחרים של מחלות קרדיווסקולריות, כגון היצרות שרירית של אבי העורקים (transverse aortic constriction) (עומס לחץ) או פגיעת איסכמיה-רפירפוזיה. בנוסף, ניתן להשתמש בדגימות הרקמה שהתקבלו מפרוטוקול זה לניתוחי multi-omics (טרנסקריפטומיקה, פרוטאומיקה, מטבולומיקה) כדי לחשוף מנגנונים מולקולריים. המודל החסר ב-Cracd יכול לשמש ככלי לבדיקת תרופות: ניתן להעריך תרכובות החשודים כפועלות דרך נתיב ה-CRACD. לפיכך, פרוטוקול זה מספק פלטפורמה הניתנת להתאמה למגוון רחב של מחקרים מכניסטיים ותרגומיים בחקר המערכת הקרדיווסקולרית.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
עבודה זו נתמכה על ידי Guangdong Basic and Applied Basic Research Foundation (2023A1515011278), הפרויקט במימון עצמי של Guangdong Provincial Biotechnology Research Institute (GDBRI-ZL202602), והחלפות האקדמיות ושיתופי הפעולה בין סין לקנדה בנושא מודלים ופתוגנזה של מחלות קרדיווסקולריות (MS202500058).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| CRISPR/Cas9 | |||
| תמיסת Trizma Hydrochloride | Sigma-Aldrich, USA | T2663 | משמש להכנת תמיסת סמיג (buffer) למיצוי DNA |
| פרוטינאז K | Sigma-Aldrich, ארה"ב | 539480 | משמש לעיכול של זנב עכבר |
| Green Taq Mix | Vazyme, סין | P131 | משמש להגברה באמצעות PCR |
| אגרוז | BioFroxx, גרמניה | 1110GR500 | משמש לאלקטרופורזה של DNA בג'ל ב-1–ריכוז של 2% |
| סולם DNA | Thermo Scientific, USA | SM0242 | משמש כסולם DNA לקביעת גודל של תוצרי PCR |
| ערכה להפקת DNA גנומי TIANamp | Tiangen Biotech, סין | DP304 | משמש למיצוי DNA גנומי מרקמת זנב של עכבר |
| MEGAshortscript™ ערכה לטרנסקריפציית T7 | Thermo Scientific, USA | AM1354 | משמש לטרנסקריפציה in vitro של gRNA |
| ערכה לניקוי RNA | Zymo Research, ארה"ב | R1016 | משמש לטיהור gRNA מתומלל |
| BeyoCRISPR™ ערכה לסריקת sgRNA | Beyotime, סין | D8412S | משמש להערכה במערכת in vitro של פעילות השחית (cleavage) של gRNA |
| מעכב RNase | NEB, ארה"ב | M0314 | משמש למניעת פירוק RNA במהלך תמלול במבחנה (in vitro transcription) |
| TaKaRa Taq | Takara Bio, יפן | R001A | משמש לגנוטייפינג באמצעות PCR של DNA מזנב עכבר |
| FERTIUP® מדיום להקדמה של זרע עכבר: PM | Cosmo Bio, יפן | KYD-002-EX | משמש לקבלה (capacitation) של זרע לפני הפריה חוץ-גופית |
| ערכה להכנת mRNA בשיטת T7 ARCA | NEB, ארה"ב | E2060 | משמש לתעתוק (transcription) של mRNA של Cas9 בתנאי in vitro |
| גונדוטורופין מסרום של סוסה הררית | MCE, ארה"ב | 9002-70-4 | משמש לסופראובולציה (ביוולת-יתר), ניתן בהזרקה תוך-peritoneum (אינטרפריטוניאלית) |
| הורמון גונדוטרופין כוריוני אנושי | ProSpec, ישראל | HOR-250 | משמש להשראת ביוולציה, ניתן בהזרקה תוך-פריטונית |
| מים נקיים מ-RNase | Aladdin, סין | R665526 | משמש להמסת RNA ולהכנת תגובת PCR |
| פריימרים | Sangon Biotech, סין | / | משמש לטיפוס גנטי (genotyping) |
| כירורגיה | |||
| איסופלורן | RWD Life Science, סין | R510-22-10 | משמש להשראה ולשמירה על הרדמה במהלך ניתוח |
| קרם להסרת שיער | ווט, צרפת | 1000207 | יושם על אזור החזה להסרת פרווה לפני ניתוח ואולטרסאונד |
| חוט תפירה 7-0 | לינצ'יאו, סין | LQ7022380206 | משמש לליגציה קבועה של העורק הכלילי הקדמי העולה (LAD) |
| חוט תפירה 4-0 | לינגקיאו, סין | LQ4022380412 | משמש לסגירת חתך העור לאחר ניתוח |
| מנשם להרדמה | Harvard Apparatus, USA | שולחני | משמש להגשת איזופלורן ולתמיכה בנשימה |
| מנשם לבעלי חיים קטנים | טאימנג, סין | HX-101E | משמש למתן הרשמה בלחץ חיובי במהלך ניתוח בחזה פתוח |
| פד חימום בטמפרטורה קבועה | TigerGene, USA | TG-TP-GS | משמש לשמירה על טמפרטורת גוף של עכבר במהלך ניתוח והחלמה |
| מרחיב צלעות | Shenzhen Huayon Biotech, סין | LN-18-4101 | משמש להפרדת הצלעות וחשיפת הלב לצורך קשירה (ligation) של ה-LAD |
| מספריים | Shenzhen Huayon Biotech, סין | 18-0551 | משמש לביצוע חתכים בעור ולחיתוך רקמה |
| מיקרוסקופ סטריאוסקופי | Nikon, יפן | SMZ 745 | משמש למתן תצוגה מוגדלת במהלך ניתוח של קשירה (ligation) של עורק ה-LAD |
| מחזיק מחטים מיקרוסקופי | Shenzhen Huayon Biotech, סין | 18-2211 | משמש למניפולציה של מחט התפירה הקטנה (7-0) תחת המיקרוסקופ |
| כימיקלים וריאגנטים | |||
| חומרי צימוד אולטרסוניים | Tianjin Jinya Technology Development, סין | TM-100 | מונח על החזה לצורך ביצוע אקו-לב, ומבטיח מגע תקין של המתמר |
| פאראפורמאלדהיד | Sigma-Aldrich, ארה"ב | V900894 | משמש לקיבוע רקמת לב לאחר השליפה |
| קסילן | מקליין, סין | 1330-20-7 | משמש להסרת פאראפין ולהבהרה של רקמות לפני צביעה |
| המטוקסילין | Sigma-Aldrich, USA | H3136 | צביעה גרעינית, המשמשת בצביעת HE, |
| אאוזין | Sigma-Aldrich, USA | E4009 | צביעה ציטופלזמית, המשמשת בצביעת HE, |
| פונסו S | Sigma-Aldrich, USA | P3504 | משמש בצביעת מסון לצביעת הציטופלזמה |
| חומצה פוספומוליבדית | Sigma-Aldrich, USA | 221856 | משמש כמיסב (mordant) ובשלב הדיפרנציאציה בצביעת מסון (Masson staining) |
| תמיסת אנילין כחול (Aniline blue) | Sigma-Aldrich, USA | 415049 | משמש בצביעת מסון לצביעת סיבי קולגן (כחול) |
| נוגדן CRACD | Absea, סין | KC-35356 | נוגדן ראשוני לזיהוי חלבון CRACD באמצעות Western Blot, בדילול 1:2000 |
| נוגדן GAPDH | CST, ארה"ב | 2118S | נוגדן בקרת טעינה עבור Western Blot, בדילול 1:5000 |
| אתנול | מאקלין, סין | 64-17-5 | משמש לדהידרציה ולהכנת ריאגנטים (בריכוזים של 70%, 80%, 95%, 100%) |
| ציוד מעבדה | |||
| Sorvall™ מקרא™ צנטריפוגה Micro 17 | Thermo Scientific, USA | 75002541 | משמש להכנה שגרתית של דגימות |
| מכשיר תרמי-סייקלר ל-PCR | Bio-Rad Laboratories, USA | 1861096 | משמש להגברה של DNA |
| מערכת להזרקה מיקרוסקופית | Eppendorf, גרמניה | 5193000020 | משמש להזרקה מיקרוסקופית של ריאגנטים של CRISPR/Cas9 לתוך זיגוטים |
| מערכת הדמיה Vevo 2100 | VisualSonics, קנדה | Vevo2100 | מערכת דימות בתדר גבוה להערכה לא פולשנית של תפקוד ומבנה הלב לאחר אוטם שריר הלב (MI) |
| מיקרוסקופ אור | Leica, גרמניה | DM2500 | משמש לצפייה בחתכים של לב שצבעו ב-HE ובשיטת Masson |
| תוכנת ניתוח | |||
| ImageJ | המכונים הלאומיים לבריאות, ארה"ב | / | משמש לניתוח תמונות, כולל מדידת שטח, כימות אותות ועיבוד תמונות היסטולוגיות (צביעות HE ומסון) |
| VevoLab 3.2.0 / VevoStrain | VisualSonics, קנדה | / | תוכנת VevoLab לניתוח תפקוד לבבי; מודול VevoStrain המשמש לניתוח מאמץ שריר הלב (myocardial strain) להערכת ביצועי הלב לאחר אוטם בשריר הלב (MI) |
| GraphPad Prism 8 | GraphPad Software, ארה"ב | / | משמש לניתוח סטטיסטי ולהכנת גרפים |
מקורות
- Fauconnier J, Meli AC, Thireau J, Roberge S, Shan J, Sassi Y, et al. Ryanodine receptor leak mediated by caspase-8 activation leads to left ventricular injury after myocardial ischemia-reperfusion. Proc. Natl. Acad. Sci. U. S. A. 2011;108(32):13258-63.
- Cohn JN, Ferrari R, Sharpe N. Cardiac remodeling-concepts and clinical implications: a consensus paper from an international forum on cardiac remodeling. J Am Coll Cardiol. 2000.
- Liu D, Tian X, Liu Y, Song H, Cheng X, Zhang X, et al. CREG ameliorates the phenotypic switching of cardiac fibroblasts after myocardial infarction via modulation of CDC42. Cell Death Dis. 2021;12(4).
- Contessotto P, Pandit A. Therapies to prevent post-infarction remodelling: from repair to regeneration. Biomaterials. 2021;275.
- Zhu R, Sun H, Yu K, Zhong Y, Shi H, Wei Y, et al. Interleukin-37 and dendritic cells treated with interleukin-37 plus troponin I ameliorate cardiac remodeling after myocardial infarction. J Am Heart Assoc. 2016;5(12).
- Chang Y, Zhang J, Huo X, Qu X, Xia C, Huang K, et al. Substrate rigidity dictates colorectal tumorigenic cell stemness and metastasis via CRAD-dependent mechanotransduction. Cell Rep. 2022;38(7).
- Seo Y, Jang J, Ko KP, Zou G, Huang Y, Zhang S, et al. Actin dysregulation induces immune evasion via oxidative stress-activated PD-L1 in gastric cancer. bioRxiv. 2024.
- Kim B, Zhang S, Huang Y, Ko KP, Jung YS, Jang J, et al. CRACD loss induces neuroendocrine cell plasticity of lung adenocarcinoma. Cell Rep. 2024;43(6).
- Jung YS, Wang W, Jun S, Zhang J, Srivastava M, Kim MJ, et al. Deregulation of CRAD-controlled cytoskeleton initiates mucinous colorectal cancer via β-catenin. Nat Cell Biol. 2018;20(11):1303-14.
- Liu Z, Cao H, Shi Y, Yang R. KIAA1211 plays an oncogenic role in human non-small cell lung cancer. J Cancer. 2019;10(26):6747-53.
- Snider PL, Snider E, Simmons O, Lilly B, Conway SJ. Analysis of uncharacterized mKiaa1211 expression during mouse development and cardiovascular morphogenesis. J Cardiovasc Dev Dis. 2019;6(2).
- Lin YH, Warren CM, Li J, McKinsey TA, Russell B. Myofibril growth during cardiac hypertrophy is regulated through dual phosphorylation and acetylation of the actin capping protein CapZ. Cell Signal. 2016;28(8):1015-24.
- Yang FH, Pyle WG. Reduced cardiac CapZ protein protects hearts against acute ischemia-reperfusion injury and enhances preconditioning. J Mol Cell Cardiol. 2012;52(3):761-72.
- Tong C, Huang G, Ashton C, Wu H, Yan H, Ying QL. Rapid and cost-effective gene targeting in rat embryonic stem cells by TALENs. J Genet Genomics. 2012;39(6):275-80.
- Cordes SP. N-ethyl-N-nitrosourea mutagenesis: boarding the mouse mutant express. Microbiol Mol Biol Rev. 2005;69(3):426-39.
- Cong L, Ran FA, Cox D, Lin S, Barretto R, Habib N, et al. Multiplex genome engineering using CRISPR/Cas systems. Science. 2013;339(6121):819-23.
- Kanke KL, Rayner RE, Bozik J, Abel E, Venugopalan A, Suu M, et al. Single-stranded DNA with internal base modifications mediates highly efficient knock-in in primary cells using CRISPR-Cas9. Nucleic Acids Res. 2024;52(22):13561-76.
- Mihos CG, Liu JE, Anderson KM, Pernetz MA, O'Driscoll JM, Aurigemma GP, et al. Speckle-tracking strain echocardiography for the assessment of left ventricular structure and function: a scientific statement from the American Heart Association. Circulation. 2025;152(10).
- Garg PK, Biggs ML, Kizer JR, Shah SJ, Psaty B, Carnethon M, et al. Glucose dysregulation and subclinical cardiac dysfunction in older adults: the Cardiovascular Health Study. Cardiovasc Diabetol. 2022;21(1).
- Asanuma T, Fukuta Y, Masuda K, Hioki A, Iwasaki M, Nakatani S. Assessment of myocardial ischemic memory using speckle tracking echocardiography. JACC Cardiovasc Imaging. 2012;5(1):1-11.
- Chong SY, Zharkova O, Yatim SMJM, Wang X, Lim XC, Huang C, et al. Tissue factor cytoplasmic domain exacerbates post-infarct left ventricular remodeling via orchestrating cardiac inflammation and angiogenesis. Theranostics. 2021;11(19):9243-61.
- Hung CL, Verma A, Uno H, Shin SH, Bourgoun M, Hassanein AH, et al. Longitudinal and circumferential strain rate, left ventricular remodeling, and prognosis after myocardial infarction. J Am Coll Cardiol. 2010;56(22):1812-22.
- Labuhn M, Adams FF, Ng M, Knoess S, Schambach A, Charpentier EM, et al. Refined sgRNA efficacy prediction improves large- and small-scale CRISPR-Cas9 applications. Nucleic Acids Res. 2018;46(3):1375-85.
- Wu J, Bu L, Gong H, Jiang G, Li L, Ma H, et al. Effects of heart rate and anesthetic timing on high-resolution echocardiographic assessment under isoflurane anesthesia in mice. J Ultrasound Med. 2010;29(12).
- Voigt JU, Pedrizzetti G, Lysyansky P, Marwick TH, Houle H, Baumann R, et al. Definitions for a common standard for 2D speckle tracking echocardiography: consensus document of the EACVI/ASE/Industry Task Force to standardize deformation imaging. J Am Soc Echocardiogr. 2015;28(2):183-93.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29).
- Gao E, Lei YH, Shang X, Huang ZM, Zuo L, Boucher M, et al. A novel and efficient model of coronary artery ligation and myocardial infarction in the mouse. Circ Res. 2010;107(12):1445-53.
- Rösner A, Barbosa D, Aarsæther E, Kjønås D, Schirmer H, D'Hooge J. The influence of frame rate on two-dimensional speckle-tracking strain measurements: a study on silico-simulated models and images recorded in patients. Eur Heart J Cardiovasc Imaging. 2015;16(10):1137-47.
- Argiro A, Bui Q, Hong KN, Ammirati E, Olivotto I, Adler E. Applications of gene therapy in cardiomyopathies. JACC Heart Fail. 2024;12(2):248-60.
- Micheletti R, Plaisance I, Abraham BJ, Sarre A, Ting CC, Alexanian M, et al. The long noncoding RNA Wisper controls cardiac fibrosis and remodeling. Sci Transl Med. 2017;9(395).
- Wu Z, Yang H, Colosi P. Effect of genome size on AAV vector packaging. Mol Ther. 2010;18(1):80-6.
- Juliano RL. The delivery of therapeutic oligonucleotides. Nucleic Acids Res. 2016;44(14):6518-48.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב