פרוטוקול זה מספק גישה סטנדרטית לחיתוך בתוך תא לצורך בידורים של תחילת הפליטה, תזמון השיא והקינטיקה של פליטות חומרים נדיפים המושרות על ידי פצע, יחד עם מדידות סימולטניות של חילופי גזים.
מאמר שיטה
שיטת חיתוך בתוך תא לכימות בזמן אמת של חומרים נדיפים הנוצרים כתוצאה מפציעת עלים ומחילופי גזים
31 צפיות
⸱
11 בספטמבר 2026
במאמר זה
סיכום
תקציר
תרכובות אורגניות נדיפות (VOCs) המשתחררות מעלי צמחים ממלאות תפקידים מרכזיים באיתות עקה, באינטראקציות בין צמחים לאטמוספירה ובהגנת הצמח. ביניהן, VOCs המושרים על ידי פציעה (wVOCs) נפלטים בתוך שניות מרגע נזק מכני, עשיית נזק על ידי תולעי עלים או הפרעה סביבתית. דינמיקת הפליטה שלהם תלויה באופן חזק בתזמון, בחומרה ובשיטת הפגיעה ברקמה. עם זאת, כימות מדויק נותר מאתגר בשל ארטיפקטים מכניים, תנאי חשיפה משתנים והסרטים שבין הפגיעה למדידה. מחקר זה מציג פרוטוקול סטנדרטי לחיתוך עלים בתוך תא לצורך ניטור בזמן אמת של wVOCs וחילופי גזים. חותף בדרגה כירורגית שולב בתוך תא נייד לחילופי גזים כדי לאפשר חיתוכים נקיים ומבוקרים בתוך תא אטום תחת תנאי אור, לחות, CO2 וטמפרטורה יציבים. ספקטרומטר מסות מסוג proton-transfer-reaction time-of-flight (PTR-TOF-MS) מדד באופן רציף פליטות נדיפות במוצא התא, ובכך צמצם את ההשהיה ואת העיוות באות. מערך זה מאפשר קביעה מדויקת של תחילת הפליטה, תזמון השיא, שיעור העלייה המקסימלי וכמות השחרור הכוללת ברזולוציית זמן גבוהה. יישום של השיטה על Quercus rubra, Acer platanoides, ו-Gossypium hirsutum הדגים את יכולתה להבחין בין דפוסי פליטה שונים המושרים על ידי פציעה בסוגי עלים מנוגדים. על ידי ביטול השהיות הקשורות לדגימה קונבנציונלית, שיטה זו מאפשרת לנתח את המסלול הקינטי המלא של פליטות המושרות על ידי פציעה ומגברת מגבלות עיקריות של גישות קודמות. היא מספקת מסגרת חסונה לחקר תגובות עקה מהירות בפיזיולוגיה של צמחים, בביוכימיה אקולוגית ובאינטראקציות בין צמחים לאטמוספירה.
מבוא
צמחים מגיבים לפגיעה באמצעות שחרור אות כימי מהיר, אך לכידה מדויקת של אות זה נותרת אתגר טכני. תוך שניות לאחר פגיעה על ידי רעיית צמחים, נזקי רוח או הפרעה מכנית, צמחים משחררים פרץ חולף של תרכובות אורגניות נדיפות (VOCs) המפעילות הגנות פנימיות ומכינות צמחים שכנים1,2,3,4. VOCs אלו, המושרות על ידי פגיעה (wVOCs), כוללות מרכיבים נדיפים של עלים ירוקים (GLVs), מתנול, אלכוהולים ואלדהידים בעלי שרשרת קצרה, טרפנואידים ונגזרות של אוקסילפינים. הם נוצרים מייד באמצעות סינתזה דה-נובו בתאי המזופיל או כתוצאה מקרע של מבני אגירה כגון צינורות שרף וטריכומות. כאותות סטרס מיידיים, wVOCs מתאמים הגנות פיזיולוגיות, מתווכים תקשורת בין צמחים ומתفاعלים עם הכימיה האטמוספירית1,5,6,7.
מכיוון שרעיש עשבייה טבעי משלב נזק מכני עם מעוררים רוקיים ומיקרוביאליים, מחקרים ניסיוניים משתמשים בפגיעה מדמה כדי לבודד תגובות לפגיעה פיזית בלבד8. עם זאת, אופיין החולף של wVOCs הופך אותם לקשים לתפיסה מטבעם. שיטות קונבנציונליות, כגון דגימת headspace סטטית המשולבת עם כרומטוגרפיית גז-ספקטרומטריית מסות (GC-MS), מחמיצות לעיתים קרובות את פרץ הפליטה הראשוני ומעוותות את הפרופיל הקינטי שלו9,10. השהיות בהגעה לשיווי משקל, טמפרטורות דגירה מוגברות וקווי דגימה מוארכים מגבירים את זמן השהייה ומעוותים את האות המוקלט, במיוחד עבור תרכובים ריאקטיביים כגון ססקוויטרפנים9,11,12. יחד, ארטיפקטים אלו מפחיתים את עוצמת האות ומטשטשים את הדינמיקה הזמנית של פליטות נדיפים המושרות על ידי פגיעה, ובכך מקשים על הפרשנות של תגובות עקה בצמחים.
מחקרים רבים קוטעים גם הם את המדידה כדי לפצוע עלים מחוץ לתא. הפסקה זו destabilize את זרימת הגז, משנה את עיתוי הפציעה ומפחיתה את השליטה בדיוק החיתוך13,14,15. כתוצאה מכך, הדקות הראשונות לאחר הפגיעה הולכות לעיתים לאיבוד או מעוותות13, בדיוק כאשר שיעורי הפליטה מגיעים לשיאם ודפוסים קינטיים אופייניים עולים3,6,16,17. חלק מהגישות העבירו את כריתת העלים אל תוך תאים בעלי נפח גדול תוך שימוש בלהבי Teflon או במחוררים מכניים12,18,19. עם זאת, מערכות אלו הובילו לעיתים קרובות לחוסר יציבות באיטום, לאורכי חיתוך לא עקביים ולחיתוכים לא אחידים עקב תזוזת הסכין או הבדלים בקשיחות העלה. נפח התא הגדול עיכב עוד יותר את תחלופת האוויר והרחיב את אות התחליפים הנדיפים16. יחד, מגבלות ניסיוניות אלו מונעות אפיון מדויק של הדינמיקה הזמנית של פליטות המושרות על ידי פציעה תחת תנאים פיזיולוגיים יציבים.
כדי להתגבר על אתגרים אלו, מחקר זה מציג פרוטוקול פציעה בזמן אמת בתוך התא, השילוב של חותך בדרגה כירורגית במערכת חילופי גזים המחוברת לספקטרומטר מסות מסוג proton-transfer-reaction time-of-flight (PTR-TOF-MS). הפרוטוקול מאפשר פציעה סינכרונית של עלים וזיהוי חומרים נדיפים תחת תנאים סביבתיים מבוקרים, תוך כדי מדידה סימולטנית של שטפי חומרים נדיפים וחילופי גזים ברזולוציה זמנית גבוהה. על ידי ביצוע כריתת עלים בתוך תא המדידה, הפרוטוקול ממזער עיכובי דגימה הקשורים לגישות קונבנציונליות, משמר את הדינמיקה הזמנית של חומרים נדיפים שמופרשים במהירות כתוצאה מפציעה, ומדגים הליך חיתוך סטנדרטי עבור עלים בעל תכונות מכניות שונות. רזולוציה זמנית זו מאפשרת אפיון ישיר של תחילת הפליטה, תזמון השיא והקינטיקה הספציפית למין של פליטות חומרים נדיפים המושרות על ידי פציעה.
הפרוטוקול הוערך באמצעות שלושה מינים בעלי מאפיינים אנטומיים ופיזיולוגיים מנוגדים (Quercus rubra, Acer platanoides, ו-Gossypium hirsutum) כדי להדגים את ישימותו בסוגי עלים מגוונים. יישום תנאי מדידה זהים בכל המינים מוכיח כי הפרוטוקול מסוגל להבחין בדינמיקה של VOCs המושרים על ידי פגיעה במגוון רחב של דפוסי פליטה, תוך מזעור השונות הניסויית. גישה זו ישימה באופן רחב למחקרים הדורשים מדידות ברזולוציה זמנית גבוהה של VOCs המושרים על ידי פגיעה תחת תנאים סביבתיים מבוקרים. יחד, מאפיינים אלו מספקים מסגרת סטנדרטית לחקר תגובות מהירות של צמחים לעקה ומקלים על יישום הפרוטוקול על פני מינים ומערכות ניסוייות שונות.
פרוטוקול
כל הצמחים גודלו בתנאי סביבה מבוקרים בתאי גידול. הרכיבים והציוד שבהם נעשה שימוש מפורטים ב- טבלת חומרים.
1. בנייה והתקנה של חותך העלים הפנימי לתא
- בנו חותך עלים מסתובב המתוכנן להתאים לממדים הפנימיים (4 cm × 2 cm) של ראש המדידה הסטנדרטי.
- חברו להב תער למוט פלדת אל-חלד (קוטר 1 mm) באמצעות הלחמה בכסף כדי להבטיח יציבות מכנית.
זהירות: להבי תער הם חדים ביותר. יש להשתמש בכפפות עמידות לחיתוך בזמן הטיפול. לאחר השימוש, השליכו את להבי התער בהתאם לנהלי הבטיחות במעבדה המוסדית עבור חפצים חדים. בצעו את ההלחמה בכסף תחת אוורור מתאים והשתמשו במשקפי מגן. - הכניסו את המוט המחזיק את הלהב לתוך מחט מזריקה מפלדת אל-חלד (קוטר חיצוני 1.6 mm) כדי לאפשר סיבוב צירי חופשי.
- אטמו את שני קצות המחט באמצעות פקק פוליטטרהפלואורואתילן (PTFE) בעל פליטה נמוכה כדי לשמור על תנאי אטימות לאוויר תוך שימור יכולת הסיבוב.
- התקינו ידית סיבוב ידנית בקצה הפרוקסימלי של המוט כדי לאפשר סיבוב מבוקר של החותך הפנימי.
- חברו שני תומכים גמישים העשויים מלוח פליז קפיצי (עובי 0.2 mm) למשטח החיצוני של המחט כדי לקבע את החותך לחצי התחתון של התא.
- צרו חתך משולש באטם התא התחתון כדי לאפשר הכנסת את הלהב ללא מגע עם פני העלה.
- אטמו את נקודת ההחדרה באמצעות חומר איטום בעל פליטה נמוכה כדי למנוע דליפת גז.
הערה: לפני ההמשך, ודאו שהתקנת החותך לא פגעה באטימות התא. אשרלו שהתא נסגר לחלוטין, שהתרמוקפל נותר במגע עם פני העלה, ושמערכת חילוף הגזים מעידה על זרימת אוויר יציבה ללא סימני דליפה. המשיכו רק לאחר שאישרו תנאי תא יציבים. בחרו אורך להב שיפיק חיתוך של כ-10 mm. מנגנון החיתוך המשולב ומיקומו בתוך תא העלה מוצגים ב-איור 1B.
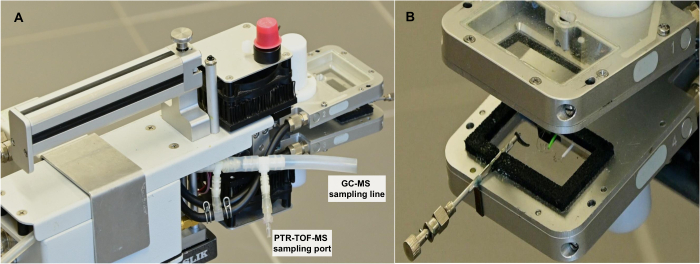
איור 1: מערכת חילופי גזים משופרת עם חיתוך עלים מובנה בתוך התא וקווי דגימה של חומרים נדיפים. (A) סקירה כללית של מערכת חילופי הגזים המשופרת, המראה את יציאת הדגימה של ה-PTR-TOF-MS ואת קו הדגימה של ה-GC–MS הממוקם סמוך לפתח היציאה של התא לאיסוף חומרים נדיפים. (B) תצוגה מקרוב של התא הפתוח המראה את מנגנון החיתוך המובנה ואת האזור שבו העלה ממוקם במהלך הפציעה. החותך משולב באופן הרמטי בתא, מה שמאפשר פציעת העלה ללא פתיחת המארז במהלך המדידה. תצורה זו מאפשרת ניטור בזמן אמת של פליטות חומרים נדיפים וחילופי גזים תחת תנאים סביבתיים מבוקרים. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
2. הגדרת נתיבי דגימה של חומרים נדיפים
- התקינו מחבר T מטפלון (קוטר פנימי 1/16″ או 1/8″) סמוך למוצא התא (איור 1A) כדי למזער את אורך הצינורית בין התא לבין מנתח חומרים נדיפים.
- חברו את המוצא למערכת איסוף ה-VOC באמצעות צינורית אינרטית (למשל FEP או PTFE; קוטר פנימי 1.6 mm). התקינו את מחבר ה-T מיד בסמוך למוצא התא כדי לשמור על צינורית קצרה ככל האפשר בין התא למנתח חומרים נדיפים, ובכך למזער את הנפח הפנימי, זמן השהייה ואבדות עקב ספיחה.
- שמרו על זרימת אוויר בתא של 750 µmol s-1.
הערה: צינורית אינרטית קצרה מפחיתה את הספיחה ואת זמן השהייה של תרכובות ריאקטיביות.
3. הכנת החומר הצמחי
- גדלו Quercus rubra, Acer platanoides, ו- Gossypium hirsutum בתא עם סביבה מבוקרת בטמפרטורה של 25 °C ביום / 20 °C בלילה, 60% לחות יחסית, עוצמת אור של 1000 µmol m-2 s-1, ופוטו-פריודה של 16 h/ 8 h למשך 4 חודשים.
- שמרו על הצמחים בריכוז CO2 אטמוספרי סביבתי (~430 ppm) לאורך כל הניסוי.
- השקו את כל הצמחים מדי יומיים עד שהקרקע תגיע לקיבולת השדה.
- בחרו עלים מורחבים לחלוטין שאינם נבולים עבור ניסויים בשלב התפתחותי דומה.
4. ניסויי פציעת עלים ואיסוף VOC
- יש לסגור את העלה ולקבוע את התנאים הסביבתיים
- הניחו עלה צמוד במלוא פריחתו בתוך הקובט המצויד בcutter הפנימי.
- הגדר את טמפרטורת הבלוק ל- 25 °C, לחות powietב יחסית ל-60%, עוצמת אור אקטיני ל- 1000 µmol מ'-2 s-1 (90% אדום, 10% כחול), וזרימת אוויר אל 750 µmol s-1.
- אפשרו לעלה להתרגל לתנאים הסביבתיים שנבחרו עד להגעה לערכי מצב יציב (steady-state) של CO נקי2 הספיגה, המוליכות הסטומטלית ואותי ה-VOC הבסיסיים הושגו, בדרך כלל תוך 20–30 דקות לאחר סגירת העלה.
- בצעו ניטור של חילוף גזים, פלואורסצנציה ו-VOC
- התחל במדידות סימולטניות של חילוף גזים ו-VOCs ברזולוציה של 1 Hz.
- לאחר השלמת מדידות חילוף הגזים, רשמו את תבואת הפלואורסצנציה במצב יציב (Fs) ואז יש להפעיל פולס רווי (8000 µmol מטר-2 s-1, 0.6 שניות) באמצעות הפלואורימטר של התא (3055-FL) לקביעת ניצול הפלואורסצנציה המקסימלי (Fמ'(′) בעלים המותאמים לאור.
- כבו את התאורה האקטינית והתאימו את העלה לחושך במשך 20 דקות.
- יש לתעד את נשיפת החשיכה של העלה.
- מדוד את הפלואורסצנציה הראשונית (F₀(באמצעות אור מדידה חלש ומודולט (0.03 µmol מ'-2 s-1), ולאחר מכן פולס רוויה להשגת פלואורסצנציה מקסימלית בעלים שהותאמו לחשיכה (Fמ׳).
- הדליקו מחדש את התאורה האקטינית.
- המשיכו במדידות VOC ומדידות חילופי גזים תחת אותם תנאים סביבתיים עד להשגת קו בסיס יציב לפני הפציעה.
הערה: לפני גרימת הפגיעה, יש לוודא כי התנאים הסביבתיים הנבחרים נותרו יציבים וכי קצב ספיגת ה-CO₂ נטו, הטרנספירציה ואותי ה-VOC הבסיסיים הגיעו לערכי מצב יציב (steady-state). יש להמשיך רק לאחר שתנאים אלו נשמרו תחת הגדרות המדידה הנבחרות.
- פציעת עלים ואיסוף VOC
- הכנס את מחשבית ה-VOC הראשונה לקו היציאה וחבר אותה למשאבת דגימת אוויר ניידת בעלת ספיקה קבועה. שאב אוויר מהתא דרך המחשבית בקצב ספיקה קבוע של 200 mL min⁻¹.-1השתמש במחלט סומך של ספיחה (adsorbent cartridge) עשוי פלדת אל-חלד בעל מספר מצעים (אורך 10.5 ס"מ, קוטר פנימי 3 מ"מ), המתאים ללכידת חומרים נדיפים C3–C17, וממולא ב-Carbotrap C 20/40 mesh (בכמות של 0.2 גרם), Carbopack B 40/60 mesh (בכמות של 0.1 גרם) ו-Carbotrap X 20/40 mesh (בכמות של 0.1 גרם), המסודרים לפי סדר עולה של עוצמת הספיחה בכיוון הדגימה.
הערה: לפני הדגימה, יש לבצע התנייה למחסניות על ידי העברת הליום בטוהר גבוה דרך המחסנית בקצב של 200 מ"ל לדקה-1 במשך 3 שעות ב- 250 °Cדגימה באמצעות מחריט (Cartridge) מאפשרת ניתוח GC-MS לא מקוון (offline) בשלב מאוחר יותר לצורך זיהוי תרכובות, כאשר זאת נדרש על פי מטרות הניסוי. אף על פי שאיסוף למחריט מהווה חלק מזרימת העבודה המתוארת כאן, התוצאים המייצגים המוצגים במחקר זה נגזרים ממדידות PTR-TOF-MS רציפות. התאימו את בחירת הסופח לטווח הנדיפות ולפולריות של ה-VOCs (תרכובות אורגניות נדיפות) המיועדות, וכן לתנאי הדגימה. - אסוף VOCs (תרכובות אורגניות נדיפות) לפני הפגיעה למשך 15 דקות בקצב של 200 מ"ל לדקה-1.
- החליפו את המחסנית ואספו VOCs למשך 2 דקות.
- סובב את הסכין הפנימית 360° לחתוך את העלה מבלי לפתוח את התא ולהחזיר את הלהב לעמדתו הראשונית.
הערה: מקמו את העלה בתוך התא כך שהחתך יבוצע בלומינה (lamina) הסגורה, תוך שמירה על אטימה מלאה של התא. ככל שגודל העלה ומורפולוגייתו מאפשרים, הימנעו מחיתוך של העורק הראשי ושמרו על מיקום חתך עקבי ככל האפשר בין הדגימות. מאחר שנזק לעורקים ראשיים עלול להגביר משמעותית את פליטת חומרים נדיפים המושרים על ידי פצעים, מיקום עקבי של הפצע משפר את השחזוריות הניסויית.5.
זהירות: ודאו שהתא אטום לחלוטין לפני החיתוך. - המשיכו באיסוף VOC עם אותה מחסנית למשך 13 דקות.
- הכנסו מחבית שלישית ואספו תרכובות אורגניות נדיפות (VOCs) למשך 15 דקות.
- הפעילו את ה-PTR-TOF-MS באופן רציף לאורך כל התקופות לצורך גילוי בזמן אמת.
הערה: לפני ואחרי כל מדידה של צמח, אספו דגימת רקע של תא ריק תחת אותם תנאים סביבתיים. השתמשו במדידות רקע אלו לצורך תיקון קו הבסיס של נתוני פליטת ה-VOC במהלך ניתוח הנתונים.
- הכנס את מחשבית ה-VOC הראשונה לקו היציאה וחבר אותה למשאבת דגימת אוויר ניידת בעלת ספיקה קבועה. שאב אוויר מהתא דרך המחשבית בקצב ספיקה קבוע של 200 mL min⁻¹.-1השתמש במחלט סומך של ספיחה (adsorbent cartridge) עשוי פלדת אל-חלד בעל מספר מצעים (אורך 10.5 ס"מ, קוטר פנימי 3 מ"מ), המתאים ללכידת חומרים נדיפים C3–C17, וממולא ב-Carbotrap C 20/40 mesh (בכמות של 0.2 גרם), Carbopack B 40/60 mesh (בכמות של 0.1 גרם) ו-Carbotrap X 20/40 mesh (בכמות של 0.1 גרם), המסודרים לפי סדר עולה של עוצמת הספיחה בכיוון הדגימה.
5. גילוי חומרים נדיפים ותפעול המכשיר
- הגדירו את הטמפרטורות של הכניסה ושפופרת הסחף של ה-PTR-TOF-MS ל-80 °C, זרימת כניסה של 100 mL min-1, זרימת אדי מים של 4.0 mL min-1, זרם יונים של 4.0 mA, לחץ תא סחף של 2.1 mbar, יחס צפיפות שדה בשפופרת הסחף של 115 Td, ולחץ של 1.2 × 10⁻⁷ mbar במודול ה-TOF-MS.
- הקליטו אותות של חומרים נדיפים ברזולוציה זמנית של 1 Hz עם מרווח דגימה של 400 ps.
- בצעו כיול ל-PTR-TOF-MS לפני כל ניסוי באמצעות תערובת סטנדרט גז מאושרת המכילה VOCs מייצגים ממחלקות נדיפים עיקריות של צמחים. עבדו את נתוני הכיול וחשבו את ריכוזי ה-VOCs באמצעות תוכנת PTR-MS Viewer בהתאם לנהלים המתוארים13,16.
6. ניתוח GC-MS לא מקוון של דגימות מהמיכון
הערה: ההליך הבא מתאר את הניתוח במצב לא מקוון (offline) של דגימות ממחסניות שנאספו במהלך זרימת העבודה המפורטת לעיל. ניתוח GC-MS מספק זיהוי תרכובים משלים, בעוד שהתוצאות המייצגות המוצגות במחקר זה מבוססות על מדידות PTR-TOF-MS רציפות.
- בצעו דסורבציה תרמית למחסניות באמצעות יחידה אוטומטית לדסורבציה תרמית המחוברת למערכת GC-MS, בהתאם לנוהל שתיארו Kännaste et al.20.
- זהו את התרכובות באמצעות השוואה לתקנים אותנטיים ולספריית הספקטרומטריה של המסה של NIST. בצעו גילוי בספקטרומטריה של מסה באמצעות יינון בהפגעה אלקטרונית (70 eV) ואשרו את זהות התרכובות על ידי התאמה של זמני השהייה ושל ספקטרי מסה עם תקנים אותנטיים כאשר אלו זמינים.
הערה: דגימה מהמחסניות מתבצעת לפי הפרוטוקול המעודכן של Kännaste et al.20 ללכידת חומרים נדיפים מסוג C3–C17.
7. ניתוח נתונים
- הפחיתו את הרקע של התא הריק מכל עקומות הפליטה לפני הניתוח. הגדירו את קו הבסיס שלפני הפציעה עבור כל מסה שנבדקה כממוצע האות במהלך פרק זמן קבוע מיד לפני החיתוך.
- השתמשו בזמן החיתוך כנקודת ייחוס משותפת לכל המסות שנבדקו. קבעו את תחילת הפליטה כעלייה הראשונה שניתן לזהות באות ה-VOC המתוקנן לקו הבסיס לאחר חיתוך העלה.
הערה: תחילת הפליטה הוגדרה כעלייה רצופה ראשונה מעל קו הבסיס שלפני הפציעה שנמשכה אל תוך שלב העלייה של פרץ הפליטה, ובכך הוחרגו תנודות בודדות המיוחסות לרעש מכשיריי. - חשבו את הזמן להגעה לשיא כפרק הזמן שבין זמן החיתוך לבין אות הפליטה המקסימלי. חשבו את השיפוע המקסימלי של פרץ הפליטה מהנגזרת הראשונה של האות המתוקנן לקו הבסיס, תוך שימוש בממוצע השיפועים הקדמי והאחורי בין נקודות נתונים סמוכות13. הגדירו את עוצמת השיא כערך הפליטה המקסימלי שנצפה במהלך הפרץ.
תוצאות
כדי להעריך האם מיקום דגימת החומרים הנדיפים משפיע על גילוי האות, השווינו בין שתי תצורות באמצעות הזרקות גז מבוקרות לתוך תא העלה. בהגדר אחת, חומרים נדיפים נדגמו ישירות בפתח היציאה של תא חילופי הגזים המותאם (איור 1). לעומת זאת, בהגדרה השנייה, האוויר עבר דרך צינורות האנליזה של חילופי הגזים לפני שהגיע לגלאי. הקלטה סימולטנית של שני האותים אפשרה השוואה ישירה של הדינמיקה הזמנית שלהם.
הזרקה של תרכובות נדיפות טהורות הניבה תגובות מהירות של הגלאי עם שיאי פליטה מובחנים (איור 2). כאשר הדגימה נלקחה ישירות מפתח היציאה של התא, האותים עלו מיד לאחר ההזרקה, הגיעו לערכי מקסימום חדים ודעכו במהירות. כאשר הדגימה נלקחה לאחר צינור המנתח, אותן תרכובות הניבו תגובות מושהות ומואטות.
עבור isoprene (m/z 69), ההשהיה הזמנית בין עמדות הדגימה הייתה מינימלית, ועוצמות השיאים נותרו דומות (איור 2A). עבור Z-3-hexen-1-ol (m/z 83), המעבר דרך הפצירה הפחית את גובה השיא והרחיב את עקומת הדעיסה ביחס לדגימה ישירה (איור 2B). אפקט זה היה החזק ביותר עבור α-pinene (m/z 137), שבהו המעבר דרך הפצירה החליש משמעותית את השיא בהשוואה לאות שנמדד ישירות ביציאת התא (איור 2C).
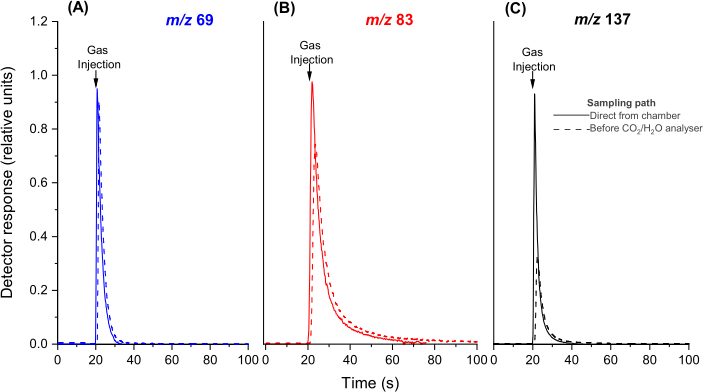
איור 2השפעה של מיקום הדגימה על התגובה הזמנית של זיהוי חומרים נדיפים. תגובות להזרקה של (A) איזופרן טהור (m/z 69), (B) Z-3-hexen-1-ol, שזוהה בעיקר כיוני השבב m/z 83, ו-(C) $\alpha$-pinene (m/z 137) נרשמו בשתי נקודות דגימה. קווים רציפים מייצגים דגימה מיד לאחר מוצא התא, בעוד שקווים מקווקווים מייצגים את נקודת הדגימה הסטנדרטית לפני מנתחי ה-CO₂/H₂O, לאחר מעבר דרך צינורות מערכת חילופי הגזים. חצים מצביעים על הזרקת הגזים. התגובות נורמלו לפי האות המקסימלי שזוהה על ידי דגימת ה-PTR-QMS לצד התא. לצורך ויזואליזציה של הבדלים בצורת התגובה, מהלכי הזמן של הדגימה הסטנדרטית הוזזו ב-0.9 שניות ביחס לדגימה ישירה. איור זה שונה מ-Rasulov et al.16. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
חיתוך עלים עורר פליטות מהירות של חומרים נדיפים ספציפיים בכל המינים (Quercus rubra, Acer platanoides, ו-Gossypium hirsutum), והמערכת זיהתה פליטות אלו תוך שניות. מכיוון שההתקנה בתוך התא פתרה באופן ישיר הן את תחילת הפליטה והן את תזמון השיא, היא אפשרה כימות של קינטיקה ספציפית לתרכובת מבלי להפסיק את המדידה.
בכל המינים, אות ה-PTR-TOF-MS הדומיננטי שהושרה על ידי פגיעה זוהה ב-m/z 99, ושויך באופן זמני לתרכובות מסוג hexenal המופקות מ-LOX, בהתבסס על מחקרי PTR-TOF-MS קודמים (איור 3, איור 4, ואיור 5). פליטות השיא נעו בין 24–300 nmol m-2 s-1 בשלושת המינים, מה שמדגים את יכולתו של הפרוטוקול להבחין בדינמיקה של VOC המושרה על ידי פגיעה בטווח רחב של עוצמות פליטה (איור 3, איור 4, ואיור 5). בכל המקרים, m/z 99 עלה בתוך שניות לאחר החיתוך, הגיע לשיא בתוך ~39–57 s, והראה את העלייה התלולה ביותר מבין המסות שניטרו (טבלה 1), מה שמזהה אותו כמרכיב האקוטי הדומיננטי של פריצת הפגיעה.
מסה 69 נותרה זניחה לפני החיתוך ב-A. platanoides (איור 4B>) וב-G. hirsutum (איור 5B>) ועלתה רק במעט לאחר הפגיעה. לעומת זאת, Q. rubra הציגה פליטות בסיסיות משמעותיות לפני החיתוך, שאחריהן חלה עלייה זמנית צנועה ולאחר מכן התייצבות, באופן העולה בקנה אחד עם שחרור איזופרן קונוסטיטי המתווסף לתגובת הפגיעה (איור 3B).
מסות מנוטרות אחרות חשפו רצף זמני ברור לאחר החיתוך. בקרב המינים השונים, m/z 43, 57, 69 ו-99 הגדירו את השלב המוקדם של הפריצה, בעוד ש-m/z 45 ו-83 הגיעו לשיא מאוחר יותר (איור 3, איור 4, ו-איור 5; טבלה 1). דפוס זה היה הבולט ביותר ב-A. platanoides, שם m/z 45 החל לעלות מיד לאחר החיתוך אך הגיע לשיאו רק לאחר ~155 s, מה שמעיד על תגובה איטית וממושכת יותר מאשר הפסיגות המוקדמות הקשורות ל-LOX (איור 4A; טבלה 1). באופן דומה, m/z 83 הגיע לשיאו מאוחר יותר מהפסיגות המוקדמות בכל המינים והיה מושהה במיוחד ב-G. hirsutum, שם הגיע למקסימום רק לאחר ~223 s (איור 5A; טבלה 1).
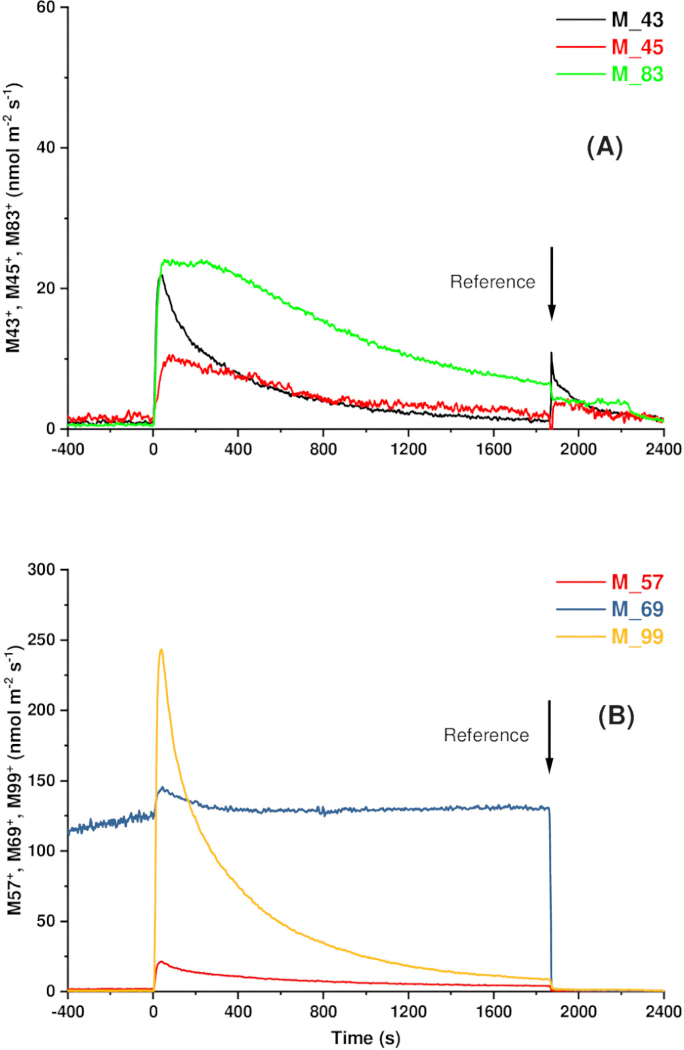
איור 3: פליטות חומרים נדיפים מושרות על ידי פצע במהלך זמן בעלה נ representatives של Quercus rubra. (A) m/z 43, 45, ו-83. (B) m/z 57, 69, ו-99. ב- t = 0, העלה נחתך באמצעות חותך עלים פנימי בתא המוצג באיור 1, אשר יצר חתך של 10 mm. פליטות חומרים נדיפים נוטרו באופן רציף באמצעות ספקטרומטר מסות מסוג proton-transfer reaction time-of-flight (PTR-TOF-MS), ושיעורי חילופי גזים נמדדו באמצעות מערכת Walz GFS-3000. האותות מוצגים כפרופילי פליטה מייצגים המתוקנים ביחס לקו הבסיס, המדגימים את הרזולוציה הזמנית הניתנת להשגה באמצעות הפרוטוקול. ראו טבלה 1 עבור מדדי קינטיקה מייצגים שהופקו מפרופילי פליטה אלו. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
למרות מאפיינים משותפים אלו, המדידות המייצגות ממחישות כי מסלולי הפליטה עשויים להשתנות בין מינים שונים. ב- Q. rubra, m/z 43 ו-57 עלו במהירות אך התבדרים במהלך שלב הדעיכה, כאשר m/z 57 דעך לאט יותר מאשר m/z 43 (איור 3A,B). ב- A. platanoides, תבנית זו התהפכה, כאשר m/z 43 הראה דעיכה איטית יותר בשלב המאוחר (איור 4A). ב- G. hirsutum, כל האותות היו בעלי עוצמה נמוכה יותר, ופרופילי הפליטה שילבו שיאים ראשוניים מהירים עם דעיכה הדרגתית יותר. באופן בולט, m/z 45 הראה עלייה משנית קטנה במהלך שלב הדעיכה (איור 5A).
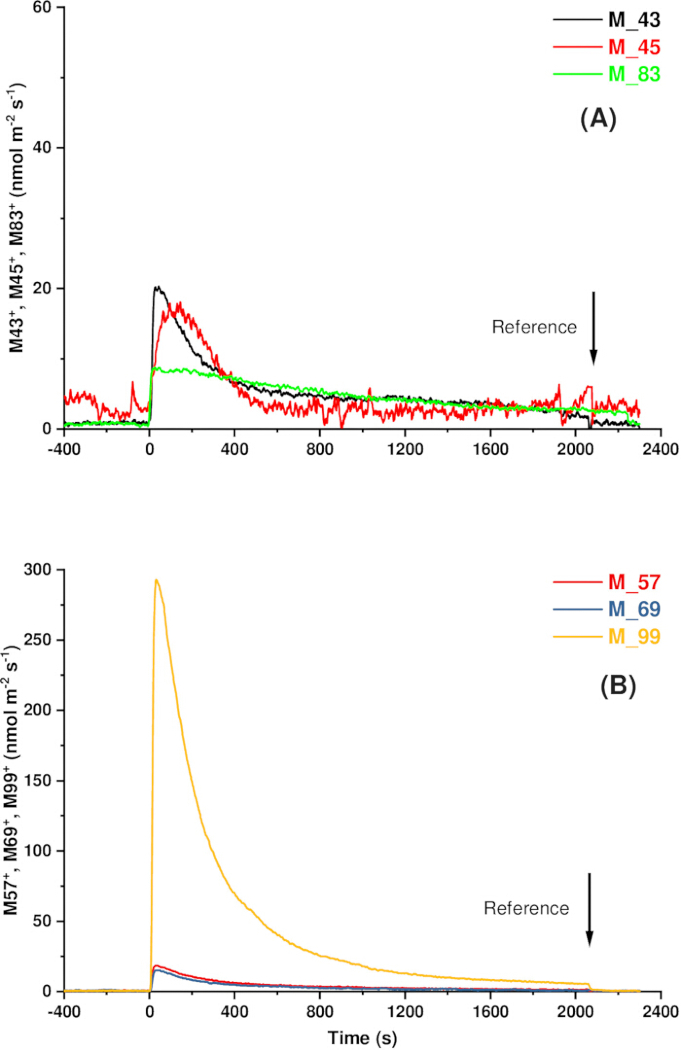
איור 4: פליטות נדיפות מושרות מפגיעה במקום פצע בפרק זמן נתון בעלה מייצגת של Acer platanoides. (A) m/z 43, 45, ו-83. (B) m/z 57, 69, ו-99. העלה נחתך ב-t = 0 באמצעות חותך פנימי לתא (איור 1; חתך של 10 mm). פליטות נדיפות נמדדו באופן רציף באמצעות ספקטרומטר מסות מסוג proton-transfer reaction time-of-flight (PTR-TOF-MS), והחלפת גזים נמדדה באמצעות מערכת Walz GFS-3000. האותים מוצגים כפרופילי פליטה מייצגים מתוקננים לקו הבסיס, המדגימים את הרזולוציה הזמנית הניתנת להשגה באמצעות הפרוטוקול. ראו טבלה 1 עבור תיאורי קינטיקה מייצגים שהופקו מפרופילי פליטה אלו. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
יחד, דפוסים אלו מעידים כי פליטות המושרות על ידי פצעים עוקבות אחר קסקדה ספציפית לתרכובת ולאחר פרץ סינכרוני יחיד, עם רכיבים מוקדמים חדים שאחריהם תגובות רחבות ומאוחרות יותר.
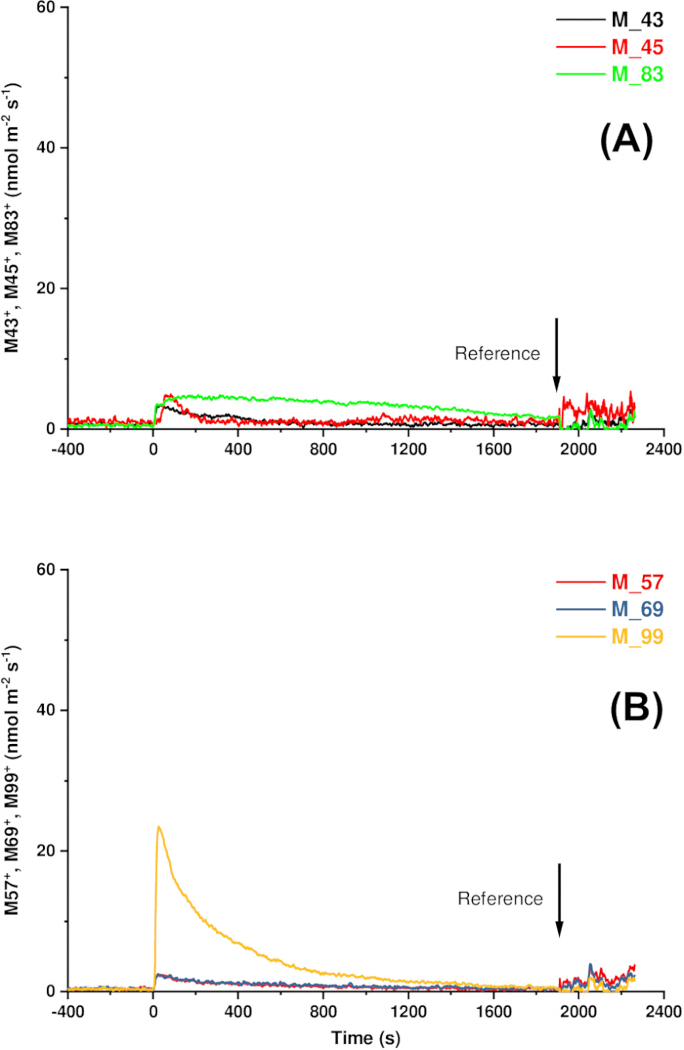
איור 5: פליטות נדיפות מושריות פצע עם רזולוציה של זמן בעלה מייצגת של Gossypium hirsutum. (A) m/z 43, 45, ו-83. (B) m/z 57, 69, ו-99. העלה נחתך ב-t = 0 באמצעות חותך פנימי לתא (איור 1; חתך של 10 mm). פליטות נדיפות נמדדו באופן רציף באמצעות ספקטרומטר מס זמן-מעוף עם תגובת העברת פרוטונים (PTR-TOF-MS), וחילופי גזים נמדדו באמצעות מערכת Walz GFS-3000. האותות מוצגים כפרופילי פליטה מייצגים המתוקננים לקו בסיס, המדגימים את הרזולוציה הזמנית שניתן להשיג באמצעות הפרוטוקול. ראו טבלה 1 עבור מדדי קינטיקה מייצגים שהופקו מפרופילי פליטה אלו. אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
דיון
הפרוטוקול המוצג כאן מאפשר ניתוח ברזולוציה זמנית גבוהה של פליטות חומרים נדיפים המושרות על ידי פצע תחת תנאים ניסיוניים מבוקרים. באמצעות שילוב אירוע החיתוך ישירות בתוך תא העלה וניטור רציף של אותות חומרים נדיפים (איור 1), המערכת לוכדת את תגובת הפליטה ללא העיוותים הנובעים מדגימה מושהית, פתיחת התא או מניפולציה של העלה מחוץ למערך המדידה. הפרעות אלו עלולות להסיט הן את העיתוי הנראה והן את העוצמה של שיאי הפליטה במדידות המבוססות על תאי סגירה3,6,13,17. על ידי שמירת הפציעה והמדידה באותו תא סגירה, הפרוטוקול משמר את ציר הזמן של הפליטה ומאפשר כימות מהימן ורגיש לזמן של תגובות חומרים נדיפים המושרות על ידי עקה.
| מין | מסה מולקולרית פרוטונית | עוצמת שיא (nmol m-2 s-1) | התחלה לאחר חיתוך (s) | זמן שיא (s) | שיפוע מקסימלי (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
טבלה 1: ערכים מייצגים של גודל השיא, תחילת הפליטה, זמן הגעה לשיא ושיפוע מקסימלי שהופקו ממדידות PTR-TOF-MS רציפות לאחר פגיעה בעלה. הערכים כוללים את גודל השיא, תחילת הפליטה, זמן הגעה לשיא ושיפוע מקסימלי. ערכים אלו ממחישים את סוג התיאורים הקינטיים המופקים על ידי הפרוטוקול ומוגשים כדוגמאות להוכחת היתכנות ולא כהשוואות סטטיסטיות בין מינים. תחילת הפליטה הוגדרה כעלייה הראשונה הניתנת לגילוי מעל קו הבסיס שלפני הפגיעה לאחר החיתוך, זמן הגעה לשיא כרווח הזמן בין החיתוך לאות המקסימלי, ושיפוע מקסימלי כנגזרת הראשונה המקסימלית של האות המתוקנן לקו הבסיס.
השוואה של מיקומי הדגימה הראתה כי תצורת הדגימה השפיעה באופן ניכר על האות שנמדד (איור 2). דגימה ישירה במוצא התא שמרה על היווצרות מהירה של שיאים, בעוד שדגימה לאחר צינורות האנליזה עיכבה את היווצרות השיאים והחלישה את עוצמת האות. השפעה זו הייתה זניחה עבור איזופרן (m/z 69), מתונה עבור m/z 83, והחזקה ביותר עבור α-pinene (m/z 137), באופן העולה בקנה אחד עם עיוות גובר הקשור להובלה עבור תרכובות כבדות יותר או רדיקליות יותר10,21. ספיחה למשטחי הצינורות, עיכוב בהובלה דרך קו הדגימה ואינטראקציות כימיות במהלך ההובלה עלולים להרחיב או להחליש את שיאי הפליטה, ובכך לשנות את הפרשנות של קינטיקת חומרים נדיפים9,12,21.
יתרון מרכזי של הפרוטוקול הנוכחי הוא יכולתו להבחין בשלב המוקדם ביותר של פליטות חומרים נדיפים המושרות על ידי פציעה. בכל המינים, שלב מוקדם זה הופיע בתוך שניות לאחר החיתוך ונשלט על ידי התפרצות ב-m/z 99, שהראתה הן את עוצמת השיא הגבוהה ביותר והן את השיפוע המקסימלי התלול ביותר (איור 3, איור 4, ו איור 5; טבלה 1). מקסימומי השיא התרחשו בתוך ~40–57 s לאחר החיתוך, מוקדם משמעותית מ-100–280 s שדווחו בדרך כלל במחקרים קודמים13,19,22.K סבירות שהסטה זו משקפת את הסנכרון בין הפציעה לגילוי בתוך התא, ובכך מזעזרת עיכובים הנגרמים מטיפול בעלים ומהסעה בקו הדגימה.
על ידי סנכרון הפציעה והזיהוי בתוך אותה תא, הפרוטוקול גם פתר רצף של מקטעים (fragment-level cascade) שבו m/z 43 ו-57 עלו מיד לאחר החיתוך, בעוד ש-m/z 45 הגיע לשיאו מאוחר יותר והראה דינמיקת דעיכה רחבה יותר (איור 3, איור 4, ו- איור 5; טבלה 1). סדר זה נותר עקבי עם מחקרים קודמים מבוססי PTR, למרות היעדר ההפרדה ברמת התרכובת בהשוואה ל-GC-MS, שבה פליטות מוקדמות נשלטות על ידי אלדהידים של C6 המופקים מליפוקסיגנאז, ואחריהם אלכוהולים ומוצרים קשורים במורד הזרם19,22. בהתאם למחקרי PTR-TOF-MS קודמים, אות m/z 99 הדומיננטי תואם לתרכובות מסוג hexenal, שאת מקטע הדהידרטציה שלהן ב-m/z 81 זיהו כאות מוקדם מרכזי, בעוד ש-m/z 83 משקף תרומות של hexenols ו-hexanal22. רצף זה תומך עוד יותר בהיררכיה התלויה בגודל ובמסלול, שבה תרכובות מחומצנות קטנות ונוצרות במהירות משתחררות מוקדם יותר מאשר מולקולות גדולות או מורכבות יותר13,23.
מעבר למקטעים הגזורים מליפוקסיגנאז, האות ב-m/z 69, ששויך באופן זמני לאיזופרן, הראה מסלולי פליטה מובחנים בקרב הדוגמאות המייצגות (איור 3, איור 4ו- איור 5). .Q. rubra הראו פליטות בסיס משמעותיות, בעוד ש- A. platanoides ו- *G. hirsutum* הפיקו רמות זכר בלבד, באופן העולה בקנה אחד עם מאפייני הפליטה הידועים שלהם24,25במינים שונים, רמות האיזופרן הגיבו באופן חלש בלבד לפגיעה, דבר העולה בקנה אחד עם דה-נובו (de novo) סינתזה דרך נתיב ה-MEP, התלוי במטבוליזם פוטוסינתטי ולכן מושפע רק באופן עקיף מפגיעה מכנית15.
דינמיקות מהירות אלו משקפות תגובות ביוכימיות מוכרות של עלים לנזק מכני. פגיעה מכנית מפעילה במהירות את מסלול הליפוקסיגנאז, המייצר פולסים חולפים של חומרים נדיפים בעלי שש פחמנים (C6) ותרכובות מחומצנות קשורות כתוצאה מחמצון ליפידים של ממברנה5,7,17,22,23. פליטות אלו מראות דינמיקות אסימטריות חזקות, עם עלייה מהירה לאחר פגיעה ברקמה, ואחריה שלב דעיכה איטי יותר16. דפוס אסימטרי זה במערכת הנוכחית מתפתח בלוח זמנים של שניות עד דקות, כפי שמוצג במדדי הקינטיקה המייצגים המסוכמים ב-טבלה 1, בעוד שמחקרים שבהם פצעו עלים מחוץ לתא מדווחים על שיאים מושהים13. רזולוציה מוקדמת זו לוכדת את האות מרגע תחילתו, מפחיתה טשטוש זמני, ומאפשרת כימות ישיר הן של שלב העלייה והן של שלב הדעיכה. מאפיינים קינטיים אלו מגדירים יחד את מסלול הפליטה המלא, שגישות של דגימה בדיסקרטית או מושהית נוטות לעיתים קרובות להמעיט בערכו5,15.
סטנדרטיזציה של פעולת החיתוך בתוך התא משפרת עוד יותר את השחזוריות הניסויית על ידי הבטחת גיאומטריה וחומרה עקביים של הפצע, שניהם נקבעים על ידי אורך החתך ומשפיעים באופן ישיר על עוצמת פליטת ה-VOC5,18,22. עם זאת, מכיוון שלהב החיתוך תופס מיקום קבוע בתוך התא, מיקום החתך מושפע מגודל העלה, המורפולוגיה והצורך לשמור על איטום הרמטי. במידת האפשר, יש למקם את החתך בתוך ה-lamina הבין-ורידית תוך הימנעות מהעורק המרכזי ומורידים עיקריים אחרים. עם זאת, לא תמיד ניתן להבטיח הימנעות מוחלטת מוורידים עיקריים, במיוחד עבור עלים צרים או קטנים. מכיוון שנזק לוורידים עיקריים עלול לשנות באופן משמעותי את פליטות ה-VOC המושרות על ידי פצע5, יש לשמור על מיקום חתך עקבי ככל האפשר בין הדגימות באותו ניסוי.
שמירה על תנאים סביבתיים יציבים חשובה באותה מידה להשגת מדידות הדירות של VOC המושרים על ידי פצעים. מכיוון שהייצור, השחרור וההסעה של VOC מושפעים מתנאים סביבתיים, טמפרטורת התא, הלחות, הקרינה, ריכוז ה-CO2 וזרימת האוויר נשמרו קבועים לאורך כל המדידות. סטנדרטיזציה של משתנים אלה מצמצמת עוד יותר את השונות הניסוית ומשפרת את ההדירות של קינטיקה של VOC המושרים על ידי פצעים. בנוסף, מכיוון שהפרוטוקול תואם באופן מלא למדידות בו-זמניות של חילופי גזים, יישומים עתידיים עשויים לקשר באופן ישיר בין דינמיקת פליטת VOC לשינויים בפוטוסינתזה ובטרנספירציה תחת תנאים ניסויים זהים26. מדידות כאלה עשויות לסייע בהבחנה בין ויסות ביוכימי של ייצור VOC לבין תהליכים פיזיקליים המשפיעים על שחרור חומרים נדיפים, כולל אידוי מוגבר של תרכובות מחומצנות ממיסות במים מרקמה פצועה16. בהתאם לכך, יש לפרש הבדלים בין טיפולים או מינים רק כאשר התנאים הסביבתיים, גאומטריית הפצע והחומר הצמחי, כולל שלב התפתחות העלה, הם סטנדרטיים לאורך כל הניסוי12.
למרות שגישות קודמות בתוך תא הדגימה הוכיחו את ההיתכנות של מדידות VOC בזמן אמת המושרות על ידי פצעים, הן גם חשפו מגבלות טכניות משמעותיות. חיתוכים לא סדירים, גודל פצע לא עקבי והפרעות באיטום התא גרמו לשונות בין המדידות18,19. בנוסף, גישות אלו התבססו לרוב על נפחי תא גדולים יחסית, מה שהאט את תחלופת האוויר, עיכב את היווצרות השיא והרחיב את פרופילי האות של החומרים הנדיפים22,27. השפעות אלה הופכות בולטות יותר עבור תרכובות פחות נדיפות ועשויות להשתנות בהתאם לטמפרטורה21. לעומת זאת, התא הקטן שנעשה בו שימוש בפרוטוקול הנוכחי (נפח פנימי של ~8 mL) מקצר את זמן שהיית האוויר, מה שתרם לתחילת העלייה החדה יותר שנצפתה במדידות שלנו (איור 1).
הפרוטוקול פותח עבור ניסויים פיזיולוגיים מבוקרים ולא עבור ניטור ישיר in situ של מערכות אקולוגיות של יערות. המדידות מבוצעות על עלים מחוברים תחת תנאים סביבתיים מוגדרים היטב, ובכך מזוערת השונות הניסויית ומאפשר מאפיין מדויק של קינטיקת VOC המושרית על ידי פצעים. יישומים בשטח יהיו תלויים בזמינותם של מערכות ניידות להחלפת גזים ולגילוי VOC. עם זאת, מכיוון שמנגנון החיתוך המשולב ניתן להתאמה לתצורות תאיות שונות באמצעות שינויים קלים בלבד, הגישה צריכה להיות ניתנת להעברה בקלות לפלטפורמות ניידות להחלפת גזים ולפלטפורמות ניסוייות אחרות ככל שטכנולוגיות אלו יהיו זמינות. גמישות זו מרחיבה את ההזדמנויות לחקור תגובות מהירות של צמחים לעקה תוך שמירה על הרזולוציה הזמנית הנדרשת לאפיון מדויק של דינמיקת פליטת VOC, ובכך מקלה על מחקרים מכניסטיים של התגובות הפיזיולוגיות והביוכימיות המוקדמות ביותר לנזק לעלה.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
אנו מאשרים מימון ממועצת המחקר האסטונית (PRG2207) וממשרד החינוך והמחקר של אסטוניה (מרכז המצוינות Agro-CropFuture, "אגרו-אקולוגיה וגידולים חדשים באקלימי העתיד", TK200U1).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מערכת GC-MS עם דסורבטור תרמי TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | מערכת GC-MS עם דסורבטור תרמי TD-20. www.shimadzu.com |
| מערכת חילופי גזים GFS-3000 | Walz GmbH | GFS-3000 | מדידות חילופי גזים בעלה. www.walz.com |
| הליום בדרגת טיהור גבוהה (99.999%) | ספק מקומי | N/A | משמש להתניית מחסיר סופח ולדסורבציה תרמית ב-GC-MS. www.airliquide.com (או ספק שווה ערך). |
| סטנדרט כיול לאיזופרן | Sigma-Aldrich Chemie GmbH | Custom | סטנדרט כיול מותאם אישית לאיזופרן (3.43 ppm). www.sigmaaldrich.com |
| חומר איטום (putty) עם פליטה נמוכה | ספק מקומי | N/A | משמש לאיטום נקודת הכנסת הכרסם לתא. |
| מחסיר סופח מפלדת אל-חלד בעל רב-שכבות | Supelco | Custom | אורך 10.5 cm × קוטר פנימי 3 mm; ממולא ב-Carbotrap C (0.2 g, 20–40 mesh), Carbopack B (0.1 g, 40–60 mesh), ו-Carbotrap X (0.1 g, 20–40 mesh). משמש לזיהוי offline אופציונלי של VOCs ב-GC-MS. www.sigmaaldrich.com |
| משאבת דגימת אוויר ניידת בזרימה קבועה | SKC Inc. | 210-1003MTX | משאבת דגימת אוויר ניידת בזרימה קבועה. |
| ספקטרומטר מסות PTR-TOF 8000 | Ionicon Analytik GmbH | PTR-TOF 8000 | גילוי VOC. www.ionicon.com |
| חוט הלחמה מכסף | ספק מקומי | N/A | משמש לחיבור להב תער למוט פלדת אל-חלד. |
| לוח פליז קפיצי (עובי 0.2 mm) | ספק מקומי | N/A | תמיכות גמישות המשמשות לאבטחת הכרסם. |
| מוט פלדת אל-חלד (קוטר 1 mm) | ספק מקומי | N/A | מוט תמיכה לכרסם. |
| מחט מזרק מפלדת אל-חלד (קוטר חיצוני 1.6 mm) | ספק מקומי | N/A | בית להב כרסם מסתובב. |
| פקקי טפלוני | ספק מקומי | N/A | משמשים לאיטום בית הכרסם תוך כדי מתן אפשרות לסיבוב. |
| מחבר T טפלוני | ספק מקומי | N/A | מותקן ליד יציאת התא להפחתת אורך הצינור. |
| צינור טפלוני (FEP או PTFE) | ספק מקומי | N/A | קו דגימת VOC בין התא לגלאים. |
| תערובת גז כיול ל-VOC | Ionimed GmbH | Custom | 1 ppm מכל תרכובת ב-N2; משמש לכיול PTR-TOF-MS. www.ionimed.com |
מקורות
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
הדפסות חוזרות והרשאות
תגיות
מאמר זה פורסם
הסרטון יגיע בקרוב