פרוטוקול זה מתאר שיבוש של לוקוס nodC ב-Mesorhizobium ciceri באמצעות CRISPR-Cas9, תוך שימוש בתיקון מודרך על ידי הומולוגיה (HDR) וסריקה מבוססת GFP, כדי ליצור מוטנטים פגומים בסימביוזה למחקרי גנומיקה פונקציונלית בריזוביה הקשור לחומוס.
מאמר שיטה
עריכת גנום באמצעות CRISPR-Cas9 ב- Mesorhizobium ciceri דרך שיבוש של nodC למחקרי סימביוזה בחומוס
* These authors contributed equally
במאמר זה
סיכום
תקציר
Mesorhizobium ciceri, סימביונט מקבע חנקן של חומוס (Cicer arietinum), נותר מאתגר מבחינה גנטית למניפולציה באמצעות גישות קונבנציונליות של רקומבינציה הומולוגית, שהן עתירות עבודה ולעתים קרובות משאירות סממני ברירה לא רצויים. בפרוטוקול זה, אנו מתארים אסטרטגיה יעילה לעריכה גנומית באמצעות מערכת Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-associated protein 9 (Cas9) בעלת טווח מאוכלים רחב, שהותאמה עבור M. ciceri. אנו מדגימים את יעילותה של שיטה זו על ידי תקיפת nodC, המקודד ל-N-acetylglucosaminyltransferase הדרוש לסנתזה של שלד הקיטין ב-Nod factors, מולקולות האיתות העיקריות המעורבות בתקשורת מולקולרית סימביוטית. פרוטוקול זה מפרט את התכנון השיטתי של RNA מנחה בודד (sgRNAs) ואת בניית תבנית לתיקון מכוון הומולוגיה (HDR). תבנית ה-HDR תוכננה כדי להקל על אינטגרציה ספציפית לאתר של רפורטר חלבון פלואורסצנטי ירוק (GFP) המקיף את אתר החיתוך של nodC. לאחר העברת מבנה ה-Cas9/sgRNA/HDR באמצעות הזיווג ביו-הורי (biparental mating), זוהו מוטנטים פוטנציאליים באמצעות גישת סריקה מבוססת פלואורסצנציה. שיבוש מוצלח של לוקוס nodC בגודל 1.3 kb בתוך קסטת הנודולציה (nod) נסרק תחילה על ידי ויזואליזציה של ביטוי GFP במושבות מוטנטיות באמצעות מיקרוסקופיית פלואורסצנציה. השיבוש תוקף עוד יותר על ידי עיכול רסצטרי, הגברה של הקסט המשולבת מ-DNA גנומי, וריצוף סנגר. ביטוי GFP נמדד בנוסף באמצעות תגובת שרשרת פולימראז כמותית עם שעתוק הפוך (RT-qPCR). כדי לתקף את ההשפעה הפונקציונלית של המוטציה, בוצעו בדיקות הדבקה של חומוס, שהדגימו פגיעה בנודולציה בצמחים שהוחדרו עם ΔnodC M. ciceri בהשוואה לזן הפרא. באופן כללי, פרוטוקול זה מספק מסגרת יעילה וניתנת לשחזור לשיבוש גנים מדויק ומחקרי גנומיקה פונקציונלית ב-Mesorhizobium.
מבוא
מערכת הנוקלאז Cas9 (חלבון 9 המשויך לרצפים קצרים פלינדרומיים מרוחקים ומקבצים - CRISPR), שזוהתה במקור כמנגנון חיסון אדפטיבי בפרוקריוטיים, הותאמה לכלי יעיל ואמין לעריכת גנום1,2. המערכת משתמשת ב-RNA מנחה סינתטי (sgRNA) כדי לזהות רצפי DNA מטרה באמצעות צימוד בסיסים של ווטסון-קריק. ה-sgRNA כולל 20 נוקלאוטידים המשלימים לאזור הגנומי הסמוך לרצף ה-PAM (protospacer adjacent motif) מסוג NGG. Cas9 יוצר שבר דו-גדילי (DSB) באתר ספציפי בתוך רצף המטרה, בדרך כלל 3 זוגות בסיסים (bp) במעלה הזרם מאתר ה-PAM1. ניתן לתקן את ה-DSBs הנוצרים על ידי חיבור קצוות לא-הומולוגי או על ידי תיקון מכוון הומולוגיה (HDR) באמצעות תבנית תורמת3,4. אסטרטגיה זו יושמה באופן נרחב לגישות של שיבוש גנים, knock-in ו-knock-out בחיידקים5,6,7,8. המטרה העיקרית של פרוטוקול זה היא לפתח שיטה יעילה לעריכת גנום עבור Mesorhizobium ciceri באמצעות מערכת CRISPR-Cas9 בעלת טווח מאכסנים רחב.
M. ciceri הוא חיידק קרקע גרם-שלילי המשמש כאנדוסימביונט חיוני לקיבוע חנקן של חומוס (Cicer arietinum)9. זן אחד, M. ciceri CC1192, מראה יעילות גבוהה ביצירת קשרי שורשים (nodulation), וגנומו רצף10. למרות חשיבותו החקלאית, מניפולציה גנטית של מיני Mesorhizobium נותרה מוגבלת. מערכות מבוססות CRISPR הוטמעו בעבר בריזוביה אחרים, כולל הפרעה מבוססת CRISPR (CRISPRi) ב- Rhizobium etli11, עריכה גנומית ב- Sinorhizobium meliloti12, ועריכת בסיסים ב- S. meliloti13. עם זאת, לא דווח על פלטפורמה חסונה לעריכה גנומית עבור M. ciceri. גישות קונבנציונליות מסתמכות על רקומבינציה הומולוגית בתיווך פלסמיד-התאבדות, תהליך עתיר עבודה, הדורש סבבים מרובים של סלקציה, ולעיתים קרובות מותיר סממני עמידות לאנטיביוטיקה כצלקות גנומיות14.
כדי להתגבר על מגבלות אלו, מערכת הווקטור pCasPP, שפותחה במקור עבור Paenibacillus polymyxa, הותאמה לשימוש ב-M. ciceri15. תשתית ה-pCasPP משתמשת ב-Cas9 מ-Streptococcus pyogenes שעבר אופטימיזציית קודונים עבור אקטינומיצטים בעלי תכולת GC גבוהה, ומכילה קסטת lacZ לסריקת כחול-לבן של שיבוט sgRNA תחת מקדם gapdh קונסטיטוטיבי8. הצמדה דו-הורית (Biparental mating) בוצעה בין זן התורם Escherichia coli לבין זן המקבל Mesorhizobium כדי להעביר את ווקטור העריכה16. כדי לשפר את יעילות הסריקה, גרסת החלבון הפלואורסצנטי הירוק (GFP) מסוג bjGFP, שעברה במקור אופטימיזציית קודונים עבור Bradyrhizobium diazoefficiens, שולבה בתבנית התורם של ה-HDR16. אסטרטגיית סריקה זו, המבוססת על פלואורסצנציה, יושמה כדי להתמקד בלוכוס nodC החיוני, הדרוש לשלבים המוקדמים של האיתות הסימביוטי בין החיידק לחומוס17,18.
פרוטוקול זה מספק חלופה מדויקת ויעילה לגישות של מוטגנזה כימית אקראית או בקרינה על-סגולה (UV). בניסויי תיקוף, למעלה מ-80% מהמושבות שהופקו הראו פלואורסצנציית GFP, ומושבות ערוכות מייצגות אושרו בהמשך באמצעות תגובת שרשרת פולימראז (PCR) וריצוף סנגר. מוטנטי ה-ΔnodC M. ciceri שהתקבלו מהווים משאב שימושי לחקר סיגנלינג סימביוטי ואינטראקציות בין מאחס למיקרוב. באופן כללי, מסגרת זו מציעה לקהילת חוקרי הריזוביום גישה יעילה וניתנת להרחבה למחקרי גנומיקה פונקציונלית ב-Mesorhizobium.
פרוטוקול
כל הפרוטוקולים הניסיוניים הכוללים גידול צמחים, הדבקה מיקרוביאלית וטיפול בחיידקים שעברו שינוי גנטי בוצעו בהתאם להנחיות ולתקנות המוסדיות. גידול הצמחים וההדבקות הבקטריאליות בוצעו בתנאים מבוקרים של תא גידול. זן ה-M. ciceri ששימש במחקר זה מסווג כמיקרואורגניזם ברמת בטיחות ביולוגית 1 (BSL-1). מאחר שכל הניסויים בוצעו בתנאי מעבדה סגורים ללא שחרור לשטח, לא נדרש אישור בטיחות ביולוגית מוסדי רשמי, וזאת בהתאם למדיניות הבטיחות הביולוגית המוסדית. כל הפסולת הביולוגית שנוצרה במהלך המחקר עברה עיקור באוטוקלאב לפני השלכתה.
1. הכנת תאים כשירים
תאי E. coli DH5α ו-E. coli S17-1λpir בעלי כשירות כימית הוכנו ותוקפו בהתאם לנוהל המתואר ב-קובץ משלים 1.
2. תכנון ה-Guide RNA
- תכנון של Guide RNAs
- פתחו את פלטפורמת Benchling (https://benchling.com/). היכנסו לחשבון Benchling קיים או צרו חשבון חדש.
- צרו פרויקט חדש ופתחו את כלי תכנון ה-CRISPR Guide.
- העלו או הדביקו את רצף ה-DNA המטרה המלא לתכנון ה-guide RNA. בחרו באפשרות התכנון "Single Guide" והגדירו את אורך ה-guide ל-20 bp.
- בחרו את רפרנס הגנום מתוך האפשרויות הזמינות. עבור תכנון guide RNA המכוון ל-M. ciceri, בחרו ב-Bradyrhizobium diazoefficiens USDA 110 כגנום הרפרנס. השתמשו ב-NGG כרצף ה-protospacer adjacent motif (PAM) הנדרש לפעילות של Streptococcus pyogenes Cas9 (SpCas9).
- השתמשו באלגוריתם של Hsu et al.19 כדי לחשב תדרי חיתוך off-target חזויים. שמרו על סף ציון של ≥50 כדי למזער שסעים לא ספציפיים על רקע גנום הרפרנס.
- השתמשו באלגוריתם של Doench-Root20 כדי לחשב ציוני יעילות on-target חזויים. הגדירו סף בחירת מטרה של ≥60 כדי לזהות guides עם יעילות חיתוך Cas9 חזויה מיטבית בלוכס המטרה.
- לחצו על "Finish" כדי להפיק את רשימת ה-guide RNAs המועמדים.
- בחירת Guide RNAs
- פתחו את פאנל הפלט של ה-guide RNA.
- תעדפו sgRNAs מועמדים שנחזו כיוצרים שבירה של גדיל כפול בטווח של 100 bp מקודון ההתחלה התרגומי (ATG), כדי להגדיל את הסבירות להפקת חלבון לא תפקודי.
- העריכו את ציוני ה-off-target וה-on-target. תעדפו ציון off-target גבוה יותר על פני ציון on-target גבוה במעט כדי להפחית את הסיכון לשסעים לא מכוונים ב-off-target.
- בחרו guide RNA בודד (sgRNA) אחד או שניים המועמדים העומדים בכל קריטריוני הבחירה.
- הכנת אוליגונוקלאוטידי gRNA
- הפיקו את רצף המשלים ההפוך (reverse-complement) של ה-guide RNA הנבחר.
- הוסיפו את הרצף 5′-ACGC לקצה ה-5′ של ה-guide RNA והוסיפו את הרצף 5′-AAAC לקצה ה-5′ של הגדיל המשלים ההפוך.
- הזמינו את שני האוליגונוקלאוטידים עם פוספורילציה ב-5′ וטיהור PAGE בקנה מידה סינתזה של 25 nmol.
- הלחמה (Annealing) של אוליגונוקלאוטידי gRNA
- הכינו באפר HEPES בריכוז 30 mM על ידי המסה של 7.15 g HEPES free acid בכ-800 mL מים מזוקקים. כוון את ה-pH ל-7.8 באמצעות נתרן הידרוקסיד והב квартиру את הנפח הסופי ל-1 L.
- המיסו מחדש כל אוליגונוקלאוטיד מפוספוריל במים נקיים מנוקליאזאז (nuclease-free water) לריכוז סופי של 100 µM. ערבבו 5 µL מכל אוליגונוקלאוטיד עם 90 µL של באפר HEPES 30 mM בתוך מבחנה מיקרוצנטריפוגה סטרילית.
- בצעו ערבוב קצר ב-Vortex וצנטריפוגה כדי לאסוף את הנוזל. הלחמימו את האוליגונוקלאוטידים בטרמוסייקלר על ידי דגירה ב-95°C למשך 5 min וקירור ל-4°C בקצב ירידה של 0.1°C/s.
- דללו את האוליגונוקלאוטידים המולחמים פי 10 באמצעות מים נקיים מנוקליאזאז.
- הרכבת gRNA לתוך וקטור pCasPP
- השיגו את וקטור pCasPP שתואר בעבר על ידי Rütering et al.15.
- רצף הפלסמיד סופק על ידי Jochen Schmid, והקונסטרוקט ששימש במחקר זה הושג באמצעות ד"ר Syed Shams Yazdani (ICGEB).
- הרכיבו תגובת Golden Gate המכילה 100 ng וקטור pCasPP, 0.3 µL אינסרט אוליגונוקלאוטיד מולחם, 2 µL באפר T4 DNA ligase 10×, 1 µL T4 DNA ligase, 1 µL אנזים הגבלה BbsI, ומים נקיים מנוקליאזאז לנפח סופי של 20 µL.
- הכינו תגובת ביקורת שלילית על ידי החלפת האינסרט במים נקיים מנוקליאזאז.
- ערבבו את התגובות בעדינות ובצעו צנטריפוגה קצרה.
- תנאי מחזוריות להרכבת Golden Gate
- העמיסו את מבחנות התגובה לתוך טרמוסייקלר. בצעו תשעה מחזורים המורכבים מ-37°C למשך 10 min ולאחריו 16°C למשך 10 min.
- דגרו את התגובות ב-50°C למשך 5 min ולאחר מכן ב-65°C למשך 20 min. שמרו את התגובות ב-4°C עד לשימוש.
- טרנספורמציה של תגובות ההרכבה
- הפשירה 50 µL תאי Escherichia coli DH5α קומפטנטיים על קרח למשך 10–15 min.
- הוסיפו 3 µL מכל תגובת הרכבת Golden Gate לתאים הקומפטנטיים. עיבדו את תגובת הביקורת השלילית במקביל. דגרו את התערובות על קרח למשך 30 min.
- בצעו הלם תרמי לתאים ב-42°C למשך 45 s והחזירו מיד את המבחנות לקרח למשך 2 min. הוסיפו 950 µL מצע Super Optimal broth with Catabolite repression (SOC).
- הכינו מצע SOC המכיל 0.5% תמצית שמרים, 2% טריפטון, 10 mM NaCl, 2.5 mM KCl, 10 mM MgCl₂, 10 mM MgSO₄, ו-20 mM גלוקוז. סטריליזציה של המצע באמצעות סינון במסנן מזרקה של 0.4 µm בתנאים אספטיים.
- דגרו את התרביות ב-37°C וב-180 rpm למשך 1 h.
- בחירת טרנספורמנטים חיוביים
- הכינו מצעי LB agar בתוספת 50 µg/mL נאומיצין, 0.2 mM isopropyl β-D-1-thiogalactopyranoside (IPTG), ו-32 mg/L 5-bromo-4-chloro-3-indolyl β-D-galactopyranoside (X-gal). פזרו 100 µL מתרבית ההשחזור על המצעים הסלקטיביים. דגרו את המצעים ב-37°C למשך 12–16 h.
- בחרו מושבות לבנות והשליכו מושבות כחולות. ודאו שמונחים פחות מחמש מושבות על מצע הביקורת השלילית.
- סריקה והרחבה של קלונים חיוביים
- העבירו שלוש עד ארבע מושבות לבנות עצמאיות למצעי LB agar סלקטיביים טריים.
- דגרו את המצעים ב-37°C למשך 12–16 h. זרעו מושבות בודדות לתוך 10 mL מצע LB בתוספת 50 µg/mL נאומיצין.
- עבדו כל קונסטרוקט של guide RNA באופן עצמאי לאורך המשך זרימת העבודה.
- תיקוף של קונסטרוקטי pCasPP-gRNA
- אספו תרביות חיידקים באמצעות צנטריפוגה. בודדו DNA של פלסמיד באמצעות קיט לטיהור פלסמידים בעמודת סיליקה.
- בצעו עיכול של ה-DNA של הפלסמיד המבודד עם XbaI ו-EcoRI בבאפר התגובה המתאים למשך 1 h ב-37°C.
- הפרידו את תוצרי העיכול על ג'ל אגרוזה 1% שהוכן בבאפר 1× Tris-acetate-EDTA (TAE) המכיל אתידיום ברומיד בריכוז סופי של 0.5 µg/mL.
- הריצו את הג'ל במתח של 90–110 V עד שחזית הצבע נודדת על פני כ-70–80% מאורך הג'ל. הדמיאו את מקטעי ה-DNA באמצעות מאיר UV (transilluminator).
- אשרו קלונים חיוביים על ידי זיהוי מקטע של 1,280 bp, וזהו בקרות של וקטור ריק על ידי זיהוי מקטע של 1,630 bp. וקטור pCasPP ריק הוא באורך של כ-9,663 bp ומכיל גן lacZ; הכנסת אוליגונוקלאוטיד gRNA של 24 bp מסירה את מקטע ה-lacZ, מה שיוצר קונסטרוקט pCasPP קטן יותר המכיל gRNA. אתרי ההגבלה XbaI ו-EcoRI המקיפים את אזור ה-lacZ משמשים לאישור דיאגנוסטי של שיבוץ ה-gRNA.
- הכנת מאגרי גליצרין (Glycerol Stocks)
- גדלו קלון חיובי מאושר במצע LB סלקטיבי.
- הכינו מאגר גליצרין על ידי ערבוב של 700 µL תרבית בשלב הלוגרי) עם 300 µL גליצרין 50% סטרילי. העבירו את התערובת למבחנות קריו סטריליות. שמרו את מאגרי הגליצרין ב-−80°C.
הערה: הימנעו ממחזורי הקפאה-הפשרה חוזרים. הכינו מספר מנות (aliquots) כדי לשמור על יציבות הפלסמיד ועל חיוניות החיידקים. ניתן לשמור את תגובת הרכבת ה-Golden Gate שהושלמה ב-4°C למשך לילה או ב-−20°C למשך 1–2 שבועות לפני הטרנספורמציה.
3. הרכבת תבנית לתיקון המונחה בהומולוגיה
- הכנת מקטע ההכנסה של חלבון פלואורסצנטי ירוק (GFP)
- השג את הפלסמיד pRJPaph-bjGFP המכיל את קסטת הדוח הפלואורסצנטית16 (טבלה 1)10,15,16,21,22,23הפלסמיד סופק על ידי פרופ' Hans-Martin Fischer (ETH Zurich, שווייץ) וזמין דרך Addgene (פלסמיד #67032).
- הוצא את קסט ה-gfp מתוך pRJPaph-bjGFP באמצעות עיכול רסטריקציה עם SacI ו-KpnI כפי שמתואר ב- קובץ נלווה 2 (שלב 3.1). רצף ה-gfp ב-pRJPaph-bjGFP הוא גן bjGFP סינתטי שעבר אופטימיזציית קודונים עבור Bradyrhizobium diazoefficiens.
- טהרו את מקטע ה-gfp הצפוי באורך 1081 bp.
- בניית pUC18-gfp
- השג את שלד ה-pUC18 (פלסמיד Addgene מספר 50004)21.
- בצע לינאריזציה של pUC18 באמצעות SacI ו-KpnI כמתואר ב- קובץ נלווה 2 (שלב 3.2).
- בצע ליגציה של מקטע ה-gfp המטוהר לתוך וקטור pUC18 שעבר לינאריזציה, כפי שמתואר ב- קובץ משלים 2 (שלב 3.2).
- טרנספורמציה של תאים כשירים E. coli DH5α תאים באמצעות הליך הטרנספורמציה המתואר בשלב 2.7, תוך החלפת תגובת הרכבת ה-Golden Gate בתערובת הליגציה שהופקה בשלב 3.2.3.
- בחר טרנספורמנטים חיוביים ואמת את השבחת ה-gfp באמצעות תגובת שרשרת פולימראז (PCR) של מושבות, כפי שמתואר ב- קובץ נלווה 2 (שלב 3.2).
- הגברה של זרועות הומולוגיה
- תכננו פריימרים להגברה של זרועות הומולוגיה במעלה הזרם (UHA) ובמורד הזרם (DHA) באורך של כ-400–500 זוג בסיסים (bp) מתוך ה-DNA הגנומי של *M. ciceri* (טבלה 2).
- שלבו אתרי הגבלה של SacI/EcoRI בפריימרים של ה-UHA ואתרי הגבלה של XbaI/KpnI בפריימרים של ה-DHA. השתמשו בפריימרים F_nodC_Up_EcoRI ו-R_nodC_Up_SacI להגברה של ה-UHA, ובפריימרים F_nodCdown_KpnI ו-R_nodCdown_XbaI להגברה של ה-DHA (טבלה 2).
- בודד M. ciceri DNA גנומי לפי Weerakkody et al.25.
- הגבירו וטהרו את מקטעי ה-UHA וה-DHA כפי שמתואר ב- קובץ משלים 2 (שלב 3.3).
- בניית pUC18-UHA-gfp
- שכפל את מקטע ה-UHA אל תוך pUC18-gfp באמצעות EcoRI ו-SacI כפי שמתואר ב- קובץ משלים 2 (שלב 3.4).
- יש לאשר את הרכבת הפלסמיד הנכונה באמצעות עיכול רסטריקציה עם XbaI ו-KpnI. הרכבה מוצלחת צריכה להניב מקטעים של כ-500 ו-3725 bp.
- המשך עם שיבט (clone) מאומת אחד.
- בניית pUC18-UHA-gfp-DHA
- שבט את מקטע ה-DHA לתוך pUC18-UHA-gfp באמצעות KpnI ו-XbaI כפי שמתואר ב- קובץ משלים 2 (שלב 3.5).
- יש לאשר את תקינות ההרכבה באמצעות עיכול רסטריקציה עם SacI ו-EcoRI. הרכבה מוצלחת אמורה להניב מקטעים של כ-400 ו-4271 bp.
- יש לאמת 5–6 שיבוטים (clones) מועמדים באמצעות ריצוף סנגר (Sanger sequencing) תוך שימוש בפריימרים F_nodC_Up_EcoRI, BjGFP_BP_F1 ו-R_nodCdown_XbaI (טבלה 2), אשר יחד מכסים את מרבית רצף קסטת התיקון המונחה על ידי הומולוגיה (HDR).
- הגברה וטיהור של תבנית ה-HDR הסופית
- בצעו הגברה של קסטת ה-HDR המלאה באמצעות הפריימרים F_FL_nodCgfp_XbaI ו-R_nodCdown_XbaI (טבלה 2).
- טהרו את פרגמנט ה-HDR הצפוי באורך 2012 bp ועזרו את תוצר ה-PCR המטוהר באמצעות XbaI כפי שמתואר ב- קובץ משלים 2 (שלב 3.6).
- הכנת וקטורי pCasPP-gRNA
- שלפו את הפלסמידים pCasPP-gRNA1 ו-pCasPP-gRNA2 שהופקו בשלב 2.
- בצע לינאריזציה לפלסמידים באמצעות XbaI והסר קבוצות פוספט (dephosphorylate) מהשלד של הווקטור כפי שמתואר ב- קובץ משלים 2 (שלב 3.7).
- שיבוט של תבנית ה-HDR לתוך וקטורי pCasPP-gRNA
- בצע ליגציה של קסטת ה-HDR לתוך pCasPP-gRNA1 או pCasPP-gRNA2 שהולינארו באמצעות XbaI, כפי שמתואר ב- קובץ משלים 2 (שלב 3.8).
- טרנספורמציה של תאים כשירים E. coli DH5α תאים ובחר טרנספורמנטים על אגר LB המכיל 50 µg/mL ניאומיצין.
- סריקת שיבוטים המכילים HDR
- סננו את הטרנספורמנטים לנוכחות פלואורסצנציית GFP באמצעות מיקרוסקופ סטריאופלואורסצנטי המצויד בסט פילטרים סטנדרטי ל-GFP (עירור 470–488 ננומטר; פליטה 507–510 ננומטר).
- סווגו את המושבות כחיוביות ל-GFP על סמך נוכחות של פלואורסצנציה ירוקה אחידה ובולטת, העולה בבירור על האוטופלואורסצנציה החלשה הנצפית במושבות של ביקורת שלילית שלא עברו עריכה.
- הרחבת שיבוטים חיוביים ל-GFP ובידוד DNA פלסמידי.
- תיקוף של הרכבת וקטור HDR
- אשרו את ההחדרה באמצעות HDR על ידי עיכול רסטיקציה באמצעות XbaI.
- יש לאמת את הצלחת ההרכבה באמצעות שחרורו של מקטע ה-HDR הצפוי באורך 2,012 bp, יחד עם שלד וקטור pCasPP-gRNA באורך של כ-9,300 bp.
הערה: לאחר השבתת חום של אנזימי ההגבלה והפוספטאז, ניתן לאחסן את תערובות התגובה ב- 4°C במהלך הלילה או ב-−20°C למשך עד חודש אחד. יש לאחסן מבני פלסמיד מאושרים בטמפרטורה של −20°C לשימור לטווח ארוך.
| זן או פלסמיד | תיאור | מקורות | ||||
| Mesorhizobium ciceri CC1192 | זן מקבל המשמש לעריכת גנום באמצעות CRISPR-Cas9 ומבחני קישרי שורשים בחומוס | הסקט ושות'.10 | ||||
| pCasPP | וקטור לעריכת גנום באמצעות CRISPR-Cas9 המשמש לשבוט של RNA מנחה ולהחדרה של תבנית HDR | .Rütering et al15 | ||||
| pRJPaph-bjGFP | פלסמיד דגיון (reporter plasmid) של GFP המשמש כמקור לקסטת ה-GFP (פלסמיד Addgene מספר 67032) | לדרמן ושות'16 | ||||
| pUC18 | וקטור שיבוט כללי המשמש להרכבת תבנית HDR (פלסמיד Addgene מספר 50004) | נורנדר ואח'.21 | ||||
| Escherichia coli S17-1λפיר (PIR) | זן התורם ששימש לקונז'וגציה דו-הורית | .Simon וחב׳22 | ||||
| Escherichia coli DH5α | מארח שיבוט המשמש להרבאת פלסמידים | Hanahan ואח'.23 | ||||
טבלה 1: זני חיידקים ופלסמידים ששימשו במחקר זה. טבלה זו מפרטת את זני החיידקים והפלסמידים ששימשו להרבאת פלסמידים, עריכה גנומית באמצעות CRISPR-Cas9, הרכבת תבנית לתיקון מכוון על ידי הומולוגיה (HDR), הזוואה דו-הורית וסימון פלואורסצנטי של Mesorhizobium ciceri CC1192.
| קטגוריה | שם | רצף (5′  3′) או תיאור |
| זן חיידקי | Escherichia coli DH5α | זן מאחס לשיבוט |
| זן חיידקי | Escherichia coli S17-1λפירוק (pir) | זן תורם להכלאה דו-הורית |
| וקטור שיクלוניזציה | pUC18 | וקטור שלד לשיבוט |
| וקטור CRISPR | pCasPP | וקטור CRISPR-Cas9 בעל טווח מאכסנים רחב |
| פלסמיד דגיש (Reporter plasmid) | pRJPaph-bjGFP | פלסמיד רפורטר GFP |
| פריימר | F_guide1_BbsI | pACGCTGTTTACAGAGGCATGCAAG |
| פריימר | מדריך_R1_BbsI | pAAACCTTGCATGCCTCTGTAAACA |
| פריימר | F_guide2_BbsI | pACGCGCTTGTTCGGATCCGACCGT |
| פריימר | מדריך_R2_BbsI | pAAACACGGTCGGATCCGAACAAGC |
| פריימר | F_nodC_Up_EcoRI | AAAGAATTCCTCATTGCAAGCCAGCAGT |
| פריימר | R_nodC_Up_SacI | AAAGAGCTCCGGAAAGCTTGTTTCGGATCC |
| פריימר | F_nodCdown_KpnI | AAAGGTACCTCGAGAGCACCGCATAAGAC |
| פריימר | R_nodCdown_XbaI | AATTCTAGATGGTTCGGTACTTTCGTGCA |
| פריימר | F_FL_nodCgfp_XbaI | AAATTCTAGACTCATTGCAAGCCAGCCAGT |
| פריימר | BjGFP_BP_F1 | GAAGTTCATCTGCACCACCG |
| פריימר | BjGFP_BP_R1 | GTCCTTGAACGAGATGGTGC |
| פריימר | BjGFP_BP_F2 | CCAACTTCAAGATCCGCCAC |
| פריימר | GFP_R | CCAACTTCAAGATCCGCCAC |
| פריימר | BjGFP_BP_R2 | CTTGTACAGCTCGTCCATGC |
| פריימר | 16S_F1 | ATCCTGGCTCAGAACGAACG |
| פריימר | 16S_R1 | ATTCCCACGCGTTACTCACC |
| פריימר | 16S_F2 | AGTCCGAGAGGGTGAGTGG |
| פריימר | 16S_R2 | GTCAGTACCGAGCCAGTGAG |
| פריימר | F1_nodC | CGATTTCCAGAACCGTCGTC |
| פריימר | nodC_R | CGATTTCCAGAACCGTCGTC |
| פריימר | R1_nodC | TCCCCTGCTACAATGAGGAC |
| פריימר | F2_nodC | AGTGACTCCGCAATTCCAGA |
| פריימר | R2_nodC | TGTCGGTAAAAGTGTTTCCC |
| פריימר | F1_nodB | TGGTTCGGTACTTTCGTGCA |
| פריימר | R1_nodB | AGTCGCGTGGATCAATGGAC |
| פריימר | F1_nodA | TGATCGTCGCTGAATTGGGC |
| פריימר | R1_nodA | CAACTGATGGAGCACTGGGT |
| פריימר | F1_nodD | TGGCCTTAAGAGACGTGTCG |
| פריימר | R1_nodD | AAATGCCTGACCAGCCGTAA |
טבלה 2: זנים בקטריאליים, פלסמידים ופריימרים של אוליגונוקלאוטידים ששימשו במחקר זה.טבלה זו מפרטת את הזנים הבקטריאליים, הפלסמידים ופריימרים של האוליגונוקלאוטידים ששימשו לבניית RNA מנחה יחיד (sgRNA), הרכבת תבנית לתיקון מכוון הומולוגיה (HDR), תגובת שרשרת פולימראז (PCR) לאבחון, ריצוף סנגר (Sanger sequencing) ותגובת שרשרת פולימראז כמותית עם שעתוק הפוך (RT-qPCR). רצפי הפריימרים מוצגים בכיוון 5′ 3′. הערה: BjGFP_BP_F2 ו-GFP_R מתייחסים לאותו רצף אוליגונוקלאוטידי, אך רשומים תחת שמות פריימר שונים כיוון ששימשו בבדיקות ניסיוניות שונות.
4. הזיווג דו-הורי להעברת פלסמיד לתוך M. ciceri CC1192
- טרנספורמציה של תאי E. coli תורמים
- בצע טרנספורמציה לתאי E. coli S17-1λpir עם מבני pCasPP-gRNA1-HDR או pCasPP-gRNA2-HDR בהתאם לנוהל המתואר ב-Supplementary File 3 (שלב 4.1).
- בצע סלקציה לטרנספורמנטים על מצע LB agar המכיל 50 µg/mL neomycin.
- סרוק את הטרנספורמנטים לנוכחות פלורסצנציית GFP תוך שימוש בעירור ב-488 nm בקירוב וגילוי פליטה ב-510–520 nm בקירוב.
- סווג את המושבות כ-GFP-positive אם הן מראות פלורסצנציה ירוקה אחידה ובולטת שאינה מופיעה במושבות ביקורת של E. coli S17-1λpir שאינן טרנספורמיות, כאשר הן נבחנות תחת הגדרות מיקרוסקופ זהות.
- הכן מנחלי גליצרין (glycerol stocks) משבטי תורמים מאושרים כ-GFP-positive.
- הכנת תרביות זריעה ותרביות התחלה
- הכן תרביות התחלה של E. coli S17-1λpir תורם ושל M. ciceri מקבל בהתאם ל-Supplementary File 3 (שלב 4.2).
- גדל את תרביות ההתחלה עד ל-OD₆₀₀ של 0.3–0.4, המתאימים לצפיפות תאים מוערכת של כ-1 × 10⁸ CFU/mL.
- הכנת תרביות משנה להכלאה דו-הורית (Biparental Mating)
- הכן תרביות משנה של התורם והמקבל וגדל אותן עד לשלב הצמיחה המעריכית הנדרש בהתאם ל-Supplementary File 3 (שלב 4.3).
- מדוד את הצפיפות האופטית ב-600 nm (OD600) באמצעות ספקטרופוטומטר UV–visible בהתאם לנוהל מדידת הצפיפות האופטית המתואר ב-Supplementary File 1 (שלב 1.2.3).
- נוהל הכלאה דו-הורית
- בצע הכלאה דו-הורית באמצעות מסנן ממברנה בהתאם ל-Supplementary File 3 (שלב 4.4).
- טפטף ארבעה מנות (aliquots) של תמיסת ההכלאה על גבי מסנן ממברנת polyvinylidene fluoride (PVDF) סטרילית בעובי 0.22 µm (קוטר 47 mm), תוך הבטחת מרווח מספק בין הטפטופים למניעת ערבוב.
- השגה וסלקציה של טרנסקונג'וגנטים (Transconjugants)
- השג את הטרנסקונג'וגנטים ובצע סלקציה כפולה לאנטיביוטיקה בהתאם ל-Supplementary File 3 (שלב 4.5).
- בצע מעברים חוזרים של הטרנסקונג'וגנטים על מצע המכיל carbenicillin בלבד כדי לסלק פלסמידים שנותרו.
- אשר את סלקציית הפלסמיד (plasmid curing) על ידי אי-צמיחה של המושבות על מצע המכיל neomycin ובדיקת PCR דיאגנוסטית המראה היעדר של שלד pCasPP תוך שימור קסטת ה-HDR המשולבת בכרומוזום.
הערה: נדרשים מעברים רצופים כדי לוודא את יציבות המודילציה המשולבת ולסלק פלסמידים אפיסומליים שנותרו.
- סריקת מושבות GFP-Positive
- סרוק טרנסקונג'וגנטים מטוהרים לפלורסצנציית GFP והשווה אותם לביקורות של M. ciceri מסוג wild-type בהתאם ל-Supplementary File 3 (שלב 4.6).
- בחר מושבות פלואורסצנטיות כזנים פוטנציאליים HDR-positive.
- סווג את המושבות כ-GFP-positive אם הן מראות פלורסצנציה ירוקה אחידה ובולטת שאינה מופיעה במושבות M. ciceri מסוג wild-type תחת הגדרות מיקרוסקופ ותנאי חשיפה זהים.
- אשר מושבות GFP-positive באמצעות PCR דיאגנוסטי לפני המעבר לשלבי תיקוף המשך.
- שמור מושבות מאושרות על מצע yeast mannitol (YM) agar בטמפרטורה של 4°C לתחזוקה לטווח קצר, או כמנחלי גליצרין המכילים 20%–25% גליצרין ב-−80°C לשימור לטווח ארוך.
5. תיקוף של מוטנטים של nodC
- תיקוף של שילוב GFP בלוקוס nodC
- חדיש מושבה בודדת של M. ciceri המבטאת GFP לתוך 10 mL של מצע צמיחה yeast mannitol broth (YMB) מועשר ב-100 µg/mL carbenicillin24. דגרו את התרבית ב-28°C עם ניעור ב-180 rpm למשך 20–24 שעות.
- קצרו את התאים הבקטריאליים על ידי סנטריפוגציה ב-8,000 × g למשך 10 דקות ב-25°C. אספו את משקע התאים ובודדו DNA גנומי לפי Weerakkody et al.25.
- בצעו PCR דיאגנוסטי תוך שימוש ב-DNA גנומי כתבנית (טבלה 2). הכינו תגובת PCR בנפח 10 µL המכילה 5 µL של 2× PCR Master Mix, ריכוז של 0.2 µM של הפריימרים F1_nodB ו-nodC_R או הפריימרים F1_nodB ו-gfp_R, ו-50 ng של DNA גנומי.
- תכנתו את הטרמוסייקלר לדנטורציה ראשונית ב-95°C למשך 5 דקות, ולאחריה 35 מחזורים של 95°C למשך 1 דקה, 62°C למשך 30 שניות, ו-72°C למשך 45 שניות, עם הארכה סופית ב-72°C למשך 5 דקות.
- הפרידו את תוצרי ה-PCR על ג'ל אגרוזה בריכוז 1% (w/v) כפי שתואר קודם לכן. אשרו את שילוב ה-GFP על ידי זיהוי תוצר של כ-430 bp בזן הבר (WT) ותוצר של כ-1500 bp במוטנט המשובש באמצעות F1_nodB/nodC_R, ותוצר של כ-1000 bp במוטנט (ללא תוצר ב-WT) באמצעות F1_nodB/gfp_R.
- הוסיפו בקרות מתאימות במהלך תיקוף ה-PCR. השתמשו ב-DNA פלסמידי המכיל את הרצף המטרה כביקורת חיובית, ובביקורת ללא תבנית (NTC) המכילה מים נקיים מנוקלאז כביקורת שלילית.
- כימות של ביטוי GFP באמצעות תגובת שרשרת פולימראז כמותית עם שעתוק הפוך (RT-qPCR)
- בודדו RNA כולל מתרביות WT ומוטנט של M. ciceri באמצעות ריאגנט TRIzol לפי הוראות היצרן.
- טפלו את ה-RNA ב-DNase I לפי הוראות היצרן כדי להסיר DNA גנומי מזוהם. ודאו הסרה מלאה של ה-DNA באמצעות בקרת ללא שעתוק הפוך (−RT) במהלך ה-qPCR.
- סנתזו cDNA של הגדיל הראשון מ-1 µg של RNA כולל באמצעות ערכה מסחרית לסנתזת cDNA של הגדיל הראשון לפי הוראות היצרן. הכינו תגובה בנפח 20 µL המכילה RNA, פריימרים מסוג oligo(dT), dNTPs, באפר תגובה, מעכב RNase ושעתוק הפוך (reverse transcriptase).
- דגרו את תגובת סנתזת ה-cDNA ב-42°C למשך 60 דקות, ולאחריה אינאקטיבציה תרמית ב-70°C למשך 5 דקות. אחסנו את ה-cDNA ב-−20°C עד לשימוש.
- הכינו תגובות RT-qPCR בשלוש חזרות טכניות. הרכיבו תגובות של 10 µL המכילות 5 µL של 2× SYBR Green Master Mix, ריכוז של 0.2 µM של הפריימרים BjGFP_BP_F1 ו-BjGFP_BP_R1 להגברת GFP, או הפריימרים 16S_F1 ו-16S_R1 להגברת הגן הייחוס (טבלה 2), 2 µL תבנית cDNA (כ-20 ng), ומים נקיים מנוקלאז.
- בצעו RT-qPCR לפי תנאי המחזור הבאים: דנטורציה ראשונית ב-95°C למשך 2 דקות, ולאחריה 40 מחזורים של 95°C למשך 15 שניות ו-58°C למשך 45 שניות, ולאחריהם ניתוח עקומת המסה (melt-curve analysis) מ-65°C עד 95°C.
- בצעו qRT-PCR באמצעות מערכת זיהוי Bio-Rad CFX96 Real-Time PCR. נתחו גרפי הגברה, ערכי Ct ועקומות המסה באמצעות תוכנת Bio-Rad CFX Manager.
- חשבו את ביטוי הגן היחסי באמצעות שיטת 2−ΔΔCt. נרמלו את הביטוי לגן הייחוס 16S rRNA והשתמשו בזן ה-WT של M. ciceri כדגימת כיול. נתחו שלוש חזרות ביולוגיות, שכל אחת מהן נמדדה בשלוש חזרות טכניות.
- הערכה של פוטנציאל נודולציה
- הכנת תמיסת חידון בקטריאלית
- חדישו מושבות בודדות של זני WT ומוטנט לתוך YMB סלקטיבי המכיל 100 µg/mL carbenicillin. דגרו את התרביות ב-28°C עם ניעור ב-180 rpm למשך 30–36 שעות.
- דללו את התרביות ביחס של 1:100 לתוך YMB סלקטיבי טרי ועקבו אחר הצמיחה על ידי מדידת OD600 באמצעות ספקטרופוטומטר UV–Visible. בצעו איפוס (blank) של המכשיר עם YMB לא מחודש והמשיכו בדגירה עד שהתרביות יגיעו ל-OD600 של 0.3–0.4, המקביל לכ-1 × 10⁸ CFU/mL.
- השתמשו ב-3 mL של התרחיף הבקטריאלי הסטנדרטי לחידון של כל צמח.
- ניסוי הדבקה בצמחי חומוס
- השיגו זרעים של C. arietinum זן BDG25618,24 מ-ICAR–Indian Agricultural Research Institute (IARI), ניו דלהי, הודו.
- שטפו את הזרעים היטב במי ברז זורמים ולאחר מכן במים מזוקקים מסוג Milli-Q. בצעו עיקור שטח של הזרעים ב-1% נתרבית היפוכלוריט למשך 5 דקות עם ערבוב ושטפו חמש פעמים במים מזוקקים סטריליים.
- טפלו את הזרעים ב-0.1% קוטל פטריות Bavistin (אבקה נרטבת של 50% carbendazim) למשך 2–3 שעות בטמפרטורת החדר. שטפו את הזרעים המטופלים פעמיים במים מזוקקים סטריליים.
- הניחו את הזרעים על נייר סינון סטרילי לח בצלחות פטרי סטריליות (110 mm × 40 mm), אטמו עם Parafilm, ודגרו בחושך ב-28°C ± 2°C למשך 3 ימים.
- העבירו את השתילים הנבטים באופן אינדיבידואלי לחול סטרילי. עיקרו את החול ב-121°C ו-15 psi למשך 20 דקות לפני השימוש.
- הכינו תמיסת הזנה של McKnight ללא חנקן על ידי המסה של 6.0 g CaSO₄, 1.0 g MgSO₄·7H₂O, 1.0 g KH₂PO₄, 1.5 g KCl, 14.3 mg H₃BO₃, 0.4 mg CuSO₄·5H₂O, 0.08 mg MnSO₄·4H₂O, 0.45 mg H₂MoO₄, ו-1.1 mg ZnSO₄·7H₂O במים מזוקקים סטריליים לנפח סופי של 5 L.
- גדלו את השתילים בעציצים בקוטר 10 ס"מ המכילים חול סטרילי, תוך שמירה על ארבעה צמחים לכל עציץ. השקו כל עציץ פעמיים בשבוע ב-20 mL של תמיסת McKnight ללא חנקן.
- שמרו על הצמחים תחת תנאים מבוקרים של 22°C ± 2°C (יום), 18°C ± 2°C (לילה), 55%–60% לחות יחСית, פוטו-תקופה של 16 שעות אור/8 שעות חושך, ועוצמת אור של 200 µmol photons m⁻2 s⁻1. גדלו את השתילים למשך 6–7 ימים לפני החידון.
- החילו 3 mL של תרחיף בקטריאלי ישירות על כל שתיל. שמרו על ביקורות שעברו טיפול דמה על ידי החלה של 3 mL YMB סטרילי. השתמשו ב-16 צמחים כחזרות ביולוגיות לכל קבוצת טיפול.
- קצרו את השורשים והנבטים 20 ימים לאחר החידון. ספרו את הנודולים באופן ידני ורשמו את הביומסה הטריה מיד לאחר הקציר.
- ייבשו את הרקמות ב-65°C עד להשגת משקל קבוע. הגדירו משקל קבוע כששתי מדידות רצופות שהתקבלו לאחר מרווחי ייבוש של 24 שעות השונות ב-<0.01 g, ואז רשמו את הביומסה היבשה.
- הציגו את התוצאות כממוצע ± טעות סטנדרטית (SE). בצעו ANOVA חד-כיווני ולאחריו מבחן השוואות מרובות של Tukey באמצעות GraphPad Prism גרסה 10.0, כאשר P < 0.05 נחשב למשמעותי סטטיסטית.
הערה: שמרו על תנאים סטריליים לאורך כל תהליך עיקור הזרעים, הנבטה, חידון וצמיחת הצמחים.
זהירות: טפלו בתמיסות נתרבית היפוכלוריט וקוטל פטריות תוך שימוש בציוד מיגון אישי מתאים, כולל כפפות והגנה על העיניים.
- הכנת תמיסת חידון בקטריאלית
תוצאות
בפרוטוקול זה, הותאמה עריכת גנום באמצעות CRISPR-Cas9 עבור .M. ciceri CC1192 באמצעות התמיה ב- nodC לוקוס. כדי לעודד אובדן תפקוד, sgRNAs תוכננו כך שיתמקדו בקצה ה-5′ האזור הפרוקסימלי של ה- nodC רצף המקודד, ובכך יוצר שבירה של גדיל כפול (DSB) בתוך אזור הקידוד הראשוני כדי לשבש את התרגום של החלבון המקודד (איור 1A).
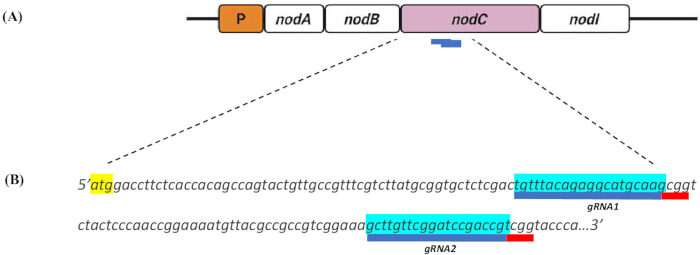
איור 1. תכנון של RNA מדריך יחיד (sgRNAs) המכוון ללוקוס nodC ב-Mesorhizobium ciceri. (A) ייצוג סכמטי של לוקוס M. ciceri nodC המראה את המיקומים של שני ה-sgRNAs באורך 20-bp שתוכננו לטרגוט באמצעות CRISPR-Cas9. אתרי המטרה של ה-sgRNA מסומנים בכחול. (B) רצפי נוקלאוטידים של sgRNA1 ו-sgRNA2 המכוונים ללוקוס nodC. מוטיב ה-PAM (protospacer adjacent motif; 5′-NGG-3′) מסומן באדום, וקודיון הפתיחה של תרגום nodC (ATG) מודגש בצהוב. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
שתי רצפי מטרה באורך 20 bp זוהו מיד במעלה הזרם של רצף PAM מסוג 5′-NGG-3′ (איור 1B). ניתוח in silico של sgRNAs מועמדים אלו באמצעות האלגוריתם של Hsu et al.19 הניב ציוני ספציפיות של 100, המעידים על ספציפיות התמטרה גבוהה בחיזוי, ללא זיהוי של קומפלמנטריות משמעותית מחוץ למטרה (off-target) בתוך הגנום של M. ciceri. הבדלים קלים נצפו בציוני יעילות ההתמטרה (on-target) החזויים של ה-sgRNAs שנבחרו (טבלה 3), נתונים אשר שימשו לבחירת המדריכים להערכה ניסויית בהמשך.
| מיקום המטרה (bp) | גדיל | רצף sgRNA (5′ 3′) | PAM | ציון ספציפיות | ציון יעילות | |
| 77 | + | TGTTTACAGAGGCATGCAAG | CGG | 100 | 43.58 | |
| 139 | + | GCTTGTTCGGATCCGACCGT | TGG | 99.7 | 47.63 | |
טבלה 3: מועמדים ל-single-guide RNAs (sgRNAs) שתוכננו לעריכה של הגן nodC ב-Mesorhizobium ciceri באמצעות CRISPR-Cas9. ה-sgRNAs המועמדים תוכננו באמצעות כלי תכנון המדריכים של Benchling CRISPR כאשר Bradyrhizobium diazoefficiens USDA 110 שימש כגנום הייחוס. המדריכים דורגו על פי ציוני ספציפיות ויעילות on-target חזויים, ונבחרו אלו המכוונים לרצפים הסמוכים לקודון הפתיחה התרגומי של nodC ומכילים את מוטיב ה-PAM (protospacer adjacent motif) מסוג NGG הנדרש עבור Cas9 של Streptococcus pyogenes (SpCas9).
כדי להקל על HDR וסינון מבוסס פלואורסצנציה של מוטנטים פוטנציאליים, הורכב קסטת HDR באמצעות וקטור השבט pUC18 (איור 2). קסטת הדוח gfp הוצאה מ-pRJPaph-bjGFP על ידי עיכול רסטריקציה באמצעות SacI ו-KpnI, וליגטה אל שלד pUC18 שהפך לליניארי (איור 2A). לאחר טרנספורמציה לתוך E. coli, זוהו קלונים חיוביים פוטנציאליים באמצעות סינון כחול-לבן. האינטגרציה של מקטע ה-gfp אל שלד pUC18 תוקפה בהמשך על ידי הגברת PCR באמצעות פריימרים ספציפיים לגן, אשר הניבו את האמפליקון הצפוי בגודל 500 bp בקלונים חיוביים (איור 2A).
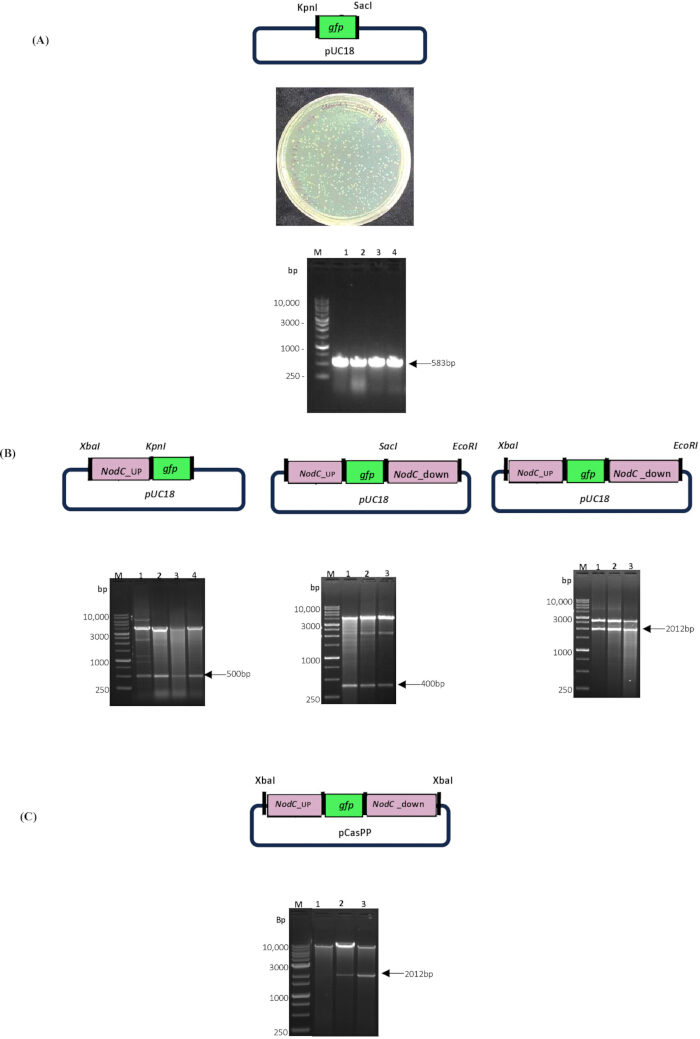
איור 2. בניית מערכת CRISPR-Cas9 לתיקון מכוון הומולוגיה (HDR) לשם שיבוש nodC. (A) בנייה ותיקוף של הפלסמיד הביניים pUC18-gfp. הפאנל העליון מציג את מפת הפלסמיד של pUC18-gfp שנוצר על ידי הכנסת קסטת החלבון הפלואורסצנטי הירוק (gfp) לתוך שלד pUC18. הפאנל האמצעי מציג מושבות מייצגות לאחר סינון כחול-לבן. הפאנל התחתון מציג תיקוף של מושבות באמצעות תגובת שרשרת פולימראז (PCR) תוך שימוש בזוג הפריימרים BjGFP_BP_F1 ו-BjGFP_BP_R2. (B) הרכבה רצפית של תבנית ה-HDR בשלד pUC18. מפות פלסמידים ואנליזות עיכול רסטריקציה מאששות את הכנסת זרוע ההומולוגיה העליונה (UHA), זרוע ההומולוגיה התחתונה (DHA), וקסטת ה-HDR המלאה UHA-gfp-DHA. (C) שיבוט ותיקוף של קסטת ה-HDR מסוג UHA-gfp-DHA לתוך וקטור ה-CRISPR-Cas9 מסוג pCasPP. הפאנל העליון מציג את מפת הפלסמיד הסופית pCasPP-HDR, והפאנל התחתון מציג עיכול רסטריקציה המאשש את הכנסת קסטת ה-HDR. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
בשלב הבא הורכב קונסטרקט ה-HDR על ידי הכנסת זרועות הומולוגיה של nodC המקיפות את קסטת ה-gfp. UHA באורך 500 bp ו-DHA באורך 400 bp, שמוקמו בסמוך לאתר החיתוך החזוי של Cas9, שובצו באופן רצופי לתוך קונסטרקט pUC18-gfp באמצעות עיכול רסטריקציה וליגציה (איור 2B). הרכבת קסטת ה-UHA-gfp-DHA אומתה על ידי ניתוח עיכול רסטריקציה, שהניב את הפרגמנט הצפוי באורך 2012 bp (איור 2B). לאחר מכן, קסטת ה-HDR המלאה שובצה לתת-וקטור CRISPR בעל טווח מאכסנים רחב, pCasPP (איור 2C). ניתוח עיכול רסטריקציה אישר את תקינות הקונסטרקט הסופי ואת ההרכבה המוצלחת של וקטור ההעברה לעריכה גנומית עבור M. ciceri (איור 2C).
הזדווגות דו-הורית (Biparental mating) בוצעה בין התורם E. coli S17-1λpir לבין זן המקבל M. ciceri כדי להעביר את מבנה ה-pCasPP-gRNA-HDR אל תוך M. ciceri (איור 3A). איור 3B ממחיש את ארגון האופרון nod ואת ההחלפה החזויה של לוקוס ה-nodC על ידי קסטת ה-gfp באמצעות רקומבינציה הומולוגית תוך שימוש בתבנית HDR. מושבות של טרנס-קונג'וגנטים זוהו בתחילה על ידי סריקת פלואורסצנציית GFP לאחר ההזדווגות הדו-הורית (איור 3B ו-3C). יותר מ-80% מהמושבות שהופקו הראו פלואורסצנציית GFP עם gRNA2, ויותר מ-65% מהמושבות הראו פלואורסצנציה לאחר הכנסת gRNA1 (איור 3C). מכיוון שסריקת פלואורסצנציה לבדה אינה יכולה להבחין בין ביטוי GFP מנשא פלסמי לבין אינטגרציה גנומית מוצלחת, בוצע תיקוף מולקולרי בהמשך כדי לאשר את ההחדרה של קסטת הדגימה ללוקוס הספציפי.
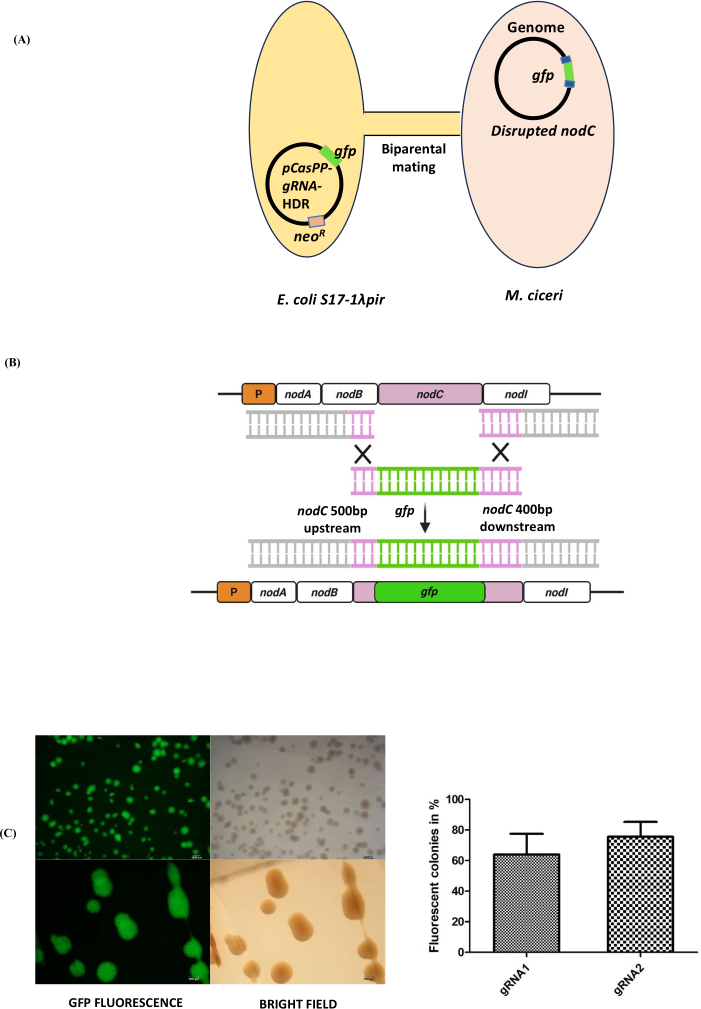
איור 3שיבוש באמצעות CRISPR-Cas9 של ה- nodC לוקוס ב- Mesorhizobium ciceri. (א) איור סכמטי של הזדווגות דו-הורית ששימשה להעברת מבנה ה-pCasPP-gRNA-HDR מ- Escherichia coli S17-1λהעברת תאי תורם לתוך *M. ciceri* תאי מקבל. (ב) תרשים הממחיש החלפה באמצעות תיקון מכוון הומולוגיה (HDR) של ה- nodC לוקוס עם ה- gfp קסטה בעקבות שסוע CRISPR-Cas9. תבנית ה-HDR מכילה זרועות הומולוגיה של כ-500 זוג בסיסים (bp) במעלה הזרם ו-400 זוג בסיסים במורד הזרם המקיפות את ה- GFP קסטרה. (ג) סריקה מבוססת פלואורסצנציה של טרנס-קונג'וגנטים .M. ciceri מושבות. תמונות מייצגות של פלואורסצנציה ושל מיקרוסקופיה סטריאוסקופית בשדה בהיר של מושבות חיוביות ל-GFP מוצגות יחד עם אחוז התעביר-צמדים (transconjugants) הפלואורסצנטיים שהתקבלו לאחר הזיווג הבי-הורי באמצעות מבנים (constructs) המכילים sgRNA1 או sgRNA2. פסי השגיאה מייצגים סטיית תקן. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
כדי לאמת את האינטגרציה של קסטת ה-gfp בלוכוס nodC, מושבות מייצגות חיוביות ל-GFP הועברו לניתוח PCR. הגברה של האזור הגנומי המקיף את nodB ו-nodC הניבה פרגמנט של 1511 bp בשיבוטים הערוכים, בדומה לאינטגרציה של קסטת הדגימה, בעוד שבזן הפרא (WT) הופק אמפליקון של 430 bp (איור 4A). הגברת PCR באמצעות פריימרים ספציפיים ל-gfp ולמרגלי nodC הניבה פרגמנט מובחן של 997 bp בשיבוטים הערוכים, בעוד שבביקרת ה-WT לא זוהתה הגברה, מה שתומך בהחדרה ספציפית ללוכוס. אוריינטציית קסטת הדגימה אוששה באמצעות ריצוף סנגר (Sanger sequencing). בנוסף, ביטוי GFP בזנים הערוכים הוערך באמצעות RT-qPCR, אשר הדגים הצטברות מוגברת של תמלילי GFP ביחס לזן ה-WT (איור 4B). ערכי הביטוי חושבו באמצעות שיטת 2−ΔΔCt ונורמליזציה לגן הייחוס 16s, כאשר זן ה-WT שימש כביקורת. הנתונים מייצגים את הממוצע ± SD של שלושה חזרות ביולוגיות (n = 3). מובהקות סטטיסטית נקבעה באמצעות ANOVA חד-כיווני ולאחריו מבחן דאנאט (Dunnett’s test) מול ביקרת ה-WT.
המגבלה הנוכחית של המחקר היא היעדרו של וקטור ביקורת, כגון pCasPP-HDR עם gRNA ריק, כדי לקבוע את מקדם הרקומינציה הבסיסי. מחקרים עתידיים צריכים לכלול ביקורת כזו.
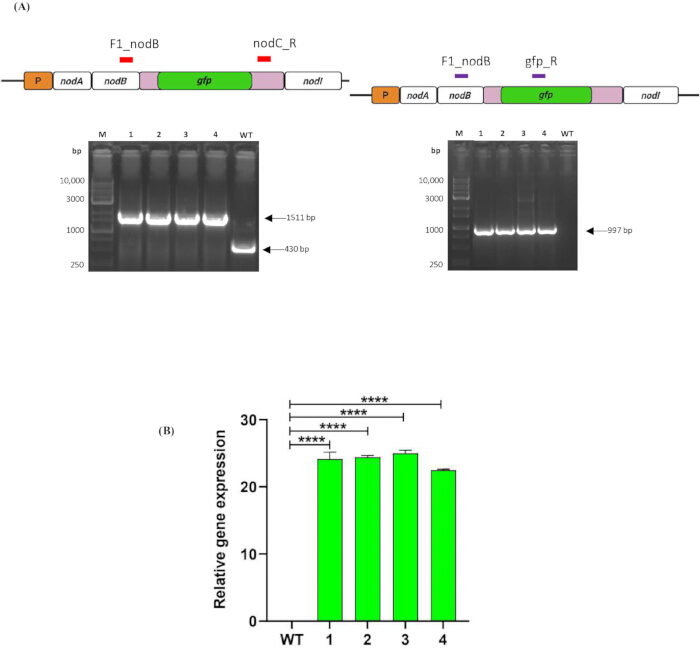
איור 4. תיקוף מולקולרי של מוטנטים של ΔnodC Mesorhizobium ciceri. (A) אישור של שיבוש nodC באמצעות PCR. הפאנל השמאלי מראה הגברה באמצעות זוג הפריימרים F1_nodB ו-nodC_R. נתיב M, סולם DNA; נתיבים 1–4, מוטנטים של ΔnodC M. ciceri; נתיב WT, M. ciceri מסוג בר. הפאנל הימני מראה הגברה באמצעות זוג הפריימרים F1_nodB ו-gfp_R. נתיב M, סולם DNA; נתיבים 1–4, מוטנטים של ΔnodC M. ciceri; נתיב WT, M. ciceri מסוג בר. גודלי האמפליקונים הצפויים מסומנים. (B) ביטוי יחסי של חלבון פלואורסצנטי ירוק (GFP) במוטנטים של ΔnodC M. ciceri שנקבע באמצעות תגובת שרשרת פולימראז כמותית עם שעתוק הפוך (RT-qPCR). ביטוי הגנים ננורמל לגן הייחוס 16S ribosomal RNA (16S rRNA) של M. ciceri והובע ביחס לביקורת מסוג בר (WT) באמצעות שיטת 2^−ΔΔCt. פסי השגיאה מייצגים סטיית תקן. מובהקות סטטיסטית נקבעה ביחס לביקורת ה-WT. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
ההשפעה הביולוגית של nodC השיבוש הוערך באמצעות בדיקות הדבקה של חומוס. צמחים שהוחדרו ב-WT M. ciceri הובילו להיווצרות קשרי שורשים נראים לעין, בעוד שצמחים שהוחדרו ב- ΔnodC M. ciceri הראו הפחתה ניכרת או היעדר של קשרי שורשים (איור 5A). צמחי הביקורת שלא חוללו נותרו ללא קשרי שורשים (nodules), ממצא התומך בשמירה על תנאי ניסוי סטריליים (איור 5A). ניתוח כמותי של פרמטרי גדילה של הצמח הדגים עוד הבדלים בין WT לבין ΔnodC של *M. ciceri*צמחים מוחדרים, כולל אורך שורש, משקל שורש טרי, משקל שורש יבש, אורך נבט, משקל נבט טרי, משקל נבט יבש ומספר קשרי שורשים (איור 5B). צמחים שהוחדרו ב-WT הראו מספר קשרינים גבוה יותר ושיפור במדדי צמיחה בהשוואה ל- ΔnodC של *M. ciceri*-צמחי ביקורת שעברו החדרה וצמחים שלא עברו החדרה. ממצאים אלו עולים בקנה אחד עם שיבוש של nodCתפקוד התקינה הקשור ל- ויתמכו בישימות של סבב העבודה זה, המבוסס על CRISPR-Cas9, למחקרי גנומיקה תפקודית ב- .M. ciceriנתוני פנוטיפ כמותיים של הצמחים הוערכו כדי להשוות הבדלים בין קבוצות הטיפול. סך של 90 חזרות ביולוגיות נכללו בניתוח (נּ = 30 צמחים לכל קבוצת טיפול). הנתונים מוצגים כממוצע ± SD. מובהקות סטטיסטית הוערכה באמצעות ניתוח שונות חד-כיווני (ANOVA), ולאחריו מבחן השוואות מרובות post hoc של Tukey. הבדלים נחשבו למובהקים סטטיסטית ב- P < 0.05.
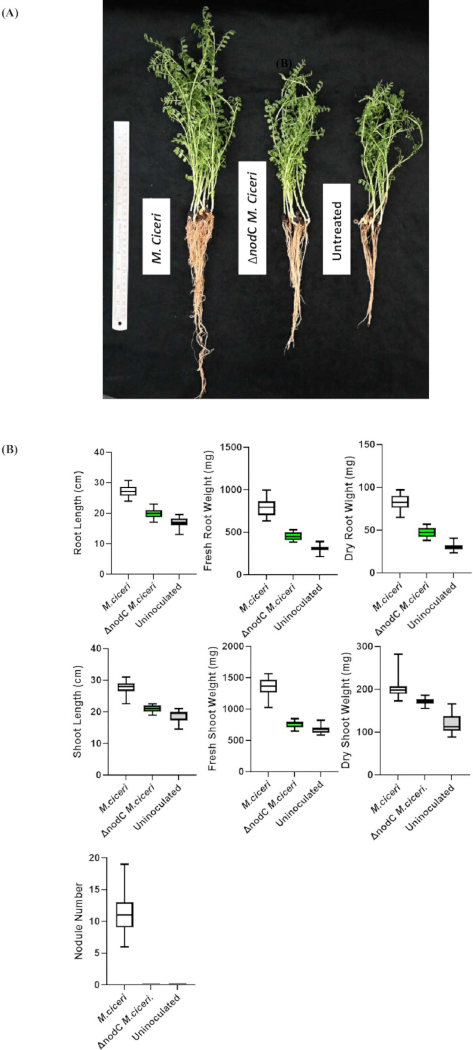
איור 5תיקוף תפקודי של ΔnodC של Mesorhizobium ciceri מוטנטים באמצעות בדיקת זיהום באפונה סינית. (א) דוגמה מייצגת של חומוס (Cicer arietinumצמחים 20 יום לאחר הדבקה בזרע בר (wild-type) *M. ciceri*, ΔnodC M. ciceri, או בישגרי ביקורת שלא הוחדרו. (ב) ניתוח כמותי של פרמטרי גדילת צמחים ונודולציה, כולל אורך שורש, משקל שורש רטוב, משקל שורש יבש, אורך נבט, משקל נבט רטוב, משקל נבט יבש ומספר הקשרינים. הנתונים מוצגים עבור צמחים שנוקולו עם זן פרא (wild-type) *M. ciceri*, ΔnodC M. ciceri, או בביקרים שלא חולקו (uninoculated controls). פסי השגיאה מייצגים סטיית תקן. מובהקות סטטיסטית נקבעה באמצעות ניתוח שונות חד-כיווני (ANOVA), ולאחריו מבחן השוואות מרובות של Tukey. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
קובץ משלים 1. פרוטוקול מפורט להכנה ותיקוף של תאי Escherichia coli בעלי כשירות כימית.קובץ משלים זה מספק את ההליך המלא להכנה ותיקוף של תאי Escherichia coli DH5α ותאי E. coli S17-1λpir בעלי כשירות כימית, כולל הכנת תרבית חיידקים, השראת כשירות, קציר תאים, שטיפה עם בופר CaCl₂–גליצרין, חלוקה למנות, שימור בהקפאה ותיקוף באמצעות בדיקת יעילות טרנספורמציה. כמו כן, נכללו מדדי בקרת איכות קריטיים, המלצות לאחסון וקריטריונים לקבלת הכשירות. אנא לחצו כאן להורדת קובץ זה.
קובץ משלים 2. פרוטוקול מפורט לבניית תבניות לתיקון מכוון הומולוגיה (HDR) והרכבת וקטורים לעריכה גנומית באמצעות CRISPR-Cas9.קובץ משלים זה מספק נהלים מפורטים לחיתוך קסאט של חלבון פלואורסצנטי ירוק (GFP), בניית הפלסמיד הביניים pUC18-gfp, הגברה ושבט של זרועות הומולוגיה במעלה ובמורד הרצף, הרכבה של תבנית תיקון מכוון הומולוגיה (HDR) מלאה, הכנה של וקטורי pCasPP-guide RNA (gRNA), הכנסת תבניות HDR לפלסמידי CRISPR-Cas9, סריקת שבטים מבוססת פלואורסצנציה, ותיקוף של פלסמידים רקומביננטיים באמצעות אנליזת הגבלה וריצוף סנגר. אנא לחצו כאן להורדת קובץ זה.
קובץ משלים 3. פרוטוקול מפורט להכלאה דו-הורית ויצירת טרנסקונג'וגנטים של Mesorhizobium ciceri המסומנים ב-GFP. קובץ משלים זה מתאר את הכנת זני התורם והמקבל, הכלאה דו-הורית באמצעות מסנן ממברנה, התאוששות וברירה אנטיביוטית של טרנסקונג'וגנטים, הליכי ניקוי פלסמידים (plasmid-curing), סריקה מבוססת פלואורסצנציה של מושבות רקומביננטיות, אישור מולקולרי של זנים שעברו עריכה גנומית, ושימור לטווח קצר וארוך של טרנסקונג'וגנטים של M. ciceri מאושרים חיוביים ל-GFP. מפורטים תנאי תרבית מקיפים, פרמטרי הכלאה והליכי ברירה. אנא לחצו כאן להורדת קובץ זה.
דיון
הקמתו של מערכת עריכה גנומית מבוססת CRISPR-Cas9 ב-M. ciceri נותנת מענה למגבלה טכנית משמעותית במניפולציה גנטית של סימביונט זה, המקבע חנקן ובעל חשיבות חקלאית. באמצעות שיבוש של הלוקוס nodC תוך שימוש ברפורטר gfp ו-HDR, סבב עבודה זה מספק מסגרת מודרכת פלואורסצנציה לביצוע שינויים גנומיים ממוקדים ב-M. ciceri.
גישות מסורתיות למניפולציה גנטית בריזוביה הסתמכו בעיקר על מוטגנזה אקראית מבוססת Tn5 או על חליפת אללים בתיווך sacB19,26,27. למרות שגישות אלו נותרו בעלות ערך, הן דורשות עבודה רבה, לעיתים קרובות מחייבות מספר סבבים של ברירה נגדית (counter-selection), ועשויות להשאיר סמני עמידות לאנטיביוטיקה בתוך הגנום המסבכים סבבי עריכה עוקבים. לעומת זאת, עריכת גנום בתיווך CRISPR-Cas9 מציעה חלופה ממוקדת ויעילה יותר להנדסה גנומית. מחקרים אחרונים דיווחו על עריכת בסיסים מבוססת CRISPR ומערכות מבוססות Cas12e ב-S. meliloti כדי להפחית את הרעילות הקשורה ל-Cas912,13, בעוד שדיכוי שעתוק בתיווך dCas9 נחקר ב-R. etli11. למיטב ידיעתנו, מחקר זה מהווה את אחת היישומים הראשונים של שיבוש כרומוזומלי בתיווך CRISPR-Cas9 ב-M. ciceri. הפרוטוקול משלב תכנון מטרות מודרך על ידי sgRNA, העברה של פלסמידים דו-הורית, ורקומבינציה בתיווך HDR לעריכה ספציפית של לוקוס. שילוב של הגן המדווח gfp בתוך קסטת ה-HDR מקל גם על סינון מהיר מבוסס פלואורסצנציה של מושבות ערוכות פוטנציאליות, ובכך מפחית את מספר המושבות הדורשות תיקוף מולקולרי בהמשך התהליך.
מספר גורמים היו חשובים ליישום מוצלח של זרימת העבודה. בחירה של sgRNAs עם ספציפיות גבוהה שנחזתה מינמזה השפעות פוטנציאליות מחוץ למטרה (off-target) בתוך הגנום של M. ciceri, בעוד ששמירה על שלמות זרועות ההומולוגיה תמכה ביעילות הרקומינציה המתווכת על ידי HDR. בנוסף, אופטימיזציה של תנאי הצמיחה של התורם והמקבל במהלך הזיווג הבי-הורי שיפרה את התשואה של הטרנסקונג'וגנטים. סינון מבוסס פלואורסצנציה אפשר זיהוי מהיר של מוטנטים משוערים; עם זאת, תיקוף מולקולרי באמצעות PCR וריצוף סנגר עדיין היה נחוץ כדי לאשר אינטגרציה של קסטת הדגימה בלוקוס הספציפי. מחקרים עתידיים יוכלו להשתמש בביקורת של וקטור pCasPP-HDR עם gRNA ריק כדי לכמת את מקדם הרקומינציה הבסיסי.
מעבר לקידום מתודולוגי, פלטפורמה זו עשויה לתמוך במחקרים עתידיים שיבחנוו סיגנלינג סימביוטי וגנומיקה פונקציונלית בריזוביה הקשורה לחומוס28. חומוס (Cicer arietinum L.) מהווה גידול קטני בעל חשיבות עולמית ותורם מרכזי למערכות חקלאיות בר-קיימא29,30. זן ה-ΔnodC M. ciceri שנוצר במחקר זה מספק רקע גנטי שעשוי להיות שימושי לבחינת תאימות בין מאחס למיקרובה ומסלולי סיגנלינג הקשורים לנודולציה. מחקרים קודמים הצביעו על כך ש-sRNAs פועלים כאפקטורים רגולטוריים במהלך שלבים מוקדמים של סימביוזה של קשרי שורש31. כתוצאה מכך, זן ה-ΔnodC M. ciceri חסר היכולת לנודולציה המתואר כאן עשוי להקל על מחקרים עתידיים המתמקדים במנגנונים המולקולריים העומדים בבסיס התקשורת בריזוספירה וסימביוזה של קיבוע חנקן.
גילויים
המחברים מצהירים כי אין להם ניגודי עניינים פיננסיים או קונפליקטים של אינטרסים.
תודות
עבודה זו נתמכת על ידי מחלקת הביוטכנולוגיה (DBT)-MK Bhan Grant HRD-16016/15/2023-AFS-DBT עבור ד"ר Nandita Pasari. עבודה זו נתמכת גם על ידי מענק ליבה שהוענק לד"ר Senjuti Sinharoy מהמכון הלאומי למחקר גנום של צמחים, ניו דלהי, הודו.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אגרוז (Agarose) | Genetix | PG-40005 | אלקטרופורזה של ג'ל |
| נייר אלומיניום | Rolia’s | GF83048115 | שימוש כללי במעבדה |
| אגר בקטריולוגי | HiMedia | GRM026 | הכנת מצע גידול |
| פלטפורמת Benchling לעיצוב מדריכי CRISPR | Benchling | N/A | עיצוב RNA מדריך (guide RNA) |
| חומצה בורית | HiMedia | PCT0102 | הכנת תמיסת McKnight’s |
| בקבוק חרוטי מזכוכית בורוסיליקט | Sigma | CLS5100500 | הכנת תרבית |
| מבחנות מזכוכית בורוסיליקט | Sigma | DWK73500-1075 | הכנת תרבית |
| קלציום כלוריד דיהידראט | HiMedia | MB034 | הכנת תאים קומפטיבליים (Competent cells) |
| קלציום סולפט דיהידראט | HiMedia | GRM328 | הכנת תמיסת McKnight’s |
| קרבניסילין דיסודיום | Duchefa Biochemie | DUC-C0109.005-18 | בשימוש בריכוז 100 µg/mL |
| ערכה לסינתזת cDNA | Thermo Fisher Scientific | AB1543A | סינתזת cDNA |
| ניילון נצמד | OA | 10954049 | שימוש כללי במעבדה |
| ערכת שיבוט/T4 DNA ligase | Thermo Fisher Scientific | K1422 | תגובות ליגציה |
| קונגו רד (Congo red) | HiMedia | 573-58-0 | עבודה עם תרביות מיקרוביאליות |
| נחושת(II) סולפט פנטהידראט | HiMedia | PCT0104 | הכנת תמיסת McKnight’s |
| מבחנה לתרבית | Borosil | 9800U08 | גידול של תרבית בקטריאלית ראשונית; 15 cm × 2.5 cm |
| מד pH דיגיטלי | Eutech Instruments | EC PH TUTOR DS | כוונון pH |
| דיפוטסיום פוספט | HiMedia | TC596M | הכנת YMB |
| סולם DNA (DNA ladder) | BIO-HELIX | DM015-R500 | אלקטרופורזה של ג'ל |
| ערכה להסרת DNase | Invitrogen | AM1907 | הסרת DNA מ-RNA מבודד |
| תערובת dNTP | Thermo Scientific | R0181 | הגברת PCR |
| אתנול | Sigma-Aldrich | 1.00983.0511 | בשימוש בריכוז 75% |
| אתידיום ברומיד | Sigma-Aldrich | E1510 | צביעת ג'ל DNA |
| FastAP Alkaline Phosphatase רגיש לטמפרטורה | Thermo Fisher Scientific | EF0651 | דה-פוספורילציה של וקטור במהלך שיבוט |
| בופר FastDigest | Thermo Fisher Scientific | B64 | עיכולים על ידי אנזימי הגבלה |
| ברזל(III) כלוריד ללא מים | HiMedia | TC583 | הכנת תמיסת McKnight’s |
| מיקרוסקופ סטריאו פלואורסצנטי | Nikon | SMZ25 | סריקת GFP |
| קוטל פטריות, Bavistin | Crystal Crop Protection | Bavistin Carbendazim 50% WP | טיפול בזרעים |
| ערכה למיצוי ג'ל | QIAGEN | 28704 | טיהור DNA |
| גליצרול | Thermo Fisher Scientific | Q24505 | תאים קומפטיבליים/מלאי גליצרול |
| אינקובטור גידול עם שייקר אורביטלי | MRC | LOM-150 | תרבית בקטריאלית |
| כפפות יד | Kimtech | 97612 | ציוד מגן אישי |
| HEPES | HiMedia | MB016 | הסנכרנת (annealing) של אוליגו-נוקלאוטידים |
| IPTG | G Biosciences | RC1113D | סריקה כחולה-לבנה |
| מrepresents Laminar flow (מ chụp זרימה למינרית) | Biolink | BL-H1300 | טיפול סטרילי |
| אגר LB | HiMedia | M1151 | צלחות תרבית בקטריאלית |
| ציר LB (LB broth) | HiMedia | G1245 | תרבית בקטריאלית |
| מגנזיום סולפט | HiMedia | GRM1281-500G | הכנת YMB |
| מגנזיום סולפט הפטהידראט | HiMedia | PCT0008 | הכנת תמיסת McKnight’s |
| מנגן(II) סולפט טטרהידראט | Sigma-Aldrich | M3634 | הכנת תמיסת McKnight’s |
| מניטול | HiMedia | MB198 | הכנת YMB |
| תמיסת McKnight’s | הכנה מעבדתית | N/A | תמיסת תזונה לצמחים |
| טיפים מיקרו, 0.2–10 µL | Tarsons | 521000 | טיפול בנוזלים |
| טיפים מיקרו, 2–200 µL | Tarsons | 521010 | טיפול בנוזלים |
| טיפים מיקרו, 200–1000 µL | Tarsons | 521020X | טיפול בנוזלים |
| מבחנה למיקרוצנטריפוגה, 0.5 mL | Tarsons | 500000 | טיפול בדגימות |
| מבחנה למיקרוצנטריפוגה, 1.5 mL | Tarsons | 500010 | טיפול בדגימות |
| מבחנה למיקרוצנטריפוגה, 2.0 mL | Tarsons | 500020 | טיפול בדגימות |
| חומצה מוליבדית | Sigma-Aldrich | 232084 | הכנת תמיסת McKnight’s |
| ספקטרופוטומטר NanoDrop | Thermo Fisher Scientific | 13-400-519 | כימות DNA/RNA |
| נאומיצין | Duchefa Biochemie | M0135 | בשימוש בריכוז 50 µg/mL |
| מים ללא נוקלאז (Nuclease-free water) | HiMedia | ML064-100ML | שימוש בביולוגיה מולקולרית |
| PCR master mix | Thermo Fisher Scientific | K0171 | 2× master mix |
| רצועות מבחנות PCR, 0.2 mL | Tarsons | 610040 | הכנת PCR |
| צלחות פטרי, 90 mm | PSC | 2041 | צלחות אגר |
| פיפטה, 0.1–2.5 µL | Eppendorf | N10178M | טיפול בנוזלים |
| פיפטה, 0.5–10 µL | Eppendorf | H40069L | טיפול בנוזלים |
| פיפטה, 2–20 µL | Eppendorf | H30046M | טיפול בנוזלים |
| פיפטה, 10–100 µL | Eppendorf | I00395M | טיפול בנוזלים |
| פיפטה, 20–200 µL | Eppendorf | M38186M | טיפול בנוזלים |
| פיפטה, 100–1000 µL | Eppendorf | N20610M | טיפול בנוזלים |
| ערכה למיצוי DNA פלסמידי | QIAGEN | 12143 | בידוד פלסמיד |
| אשלגן כלוריד | HiMedia | TC010 | הכנת תמיסת McKnight’s |
| אשלגן דיהידרוגן פוספט ללא מים | HiMedia | TC011M | הכנת תמיסת McKnight’s |
| מסנן ממברנת PVDF, 0.22 µm, 47 mm | MilliporeSigma | GVWP04700 | הכלאה דו-הורית (Biparental mating) |
| מכשיר PCR כמותי בזמן אמת (Quantitative real-time PCR) | Bio-Rad | CFX96 | RT-qPCR |
| צנטריפוגת שולחנית מקוררת | Eppendorf | 04-987-373 | קציר תאים |
| אנזים הגבלה, BbsI | Thermo Fisher Scientific | ER1011 | שיבוט gRNA |
| אנזים הגבלה, EcoRI | Thermo Fisher Scientific | FD0274 | שיבוט |
| אנזים הגבלה, KpnI | Thermo Fisher Scientific | FD0524 | שיבוט |
| אנזים הגבלה, SacI | Thermo Fisher Scientific | FD1133 | שיבוט |
| אנזים הגבלה, XbaI | Thermo Fisher Scientific | FD0684 | שיבוט |
| DNase ללא RNase | QIAGEN | 79254 | ניקוי RNA |
| חול | Ram Surat | Sand | מצע גידול לצמחים |
| סיקוונסר (Sequencer) | Applied Biosystems | ABI3730xl DNA Analyzer | ריצוף סנגר (Sanger sequencing) |
| מצע SOC | הכנה מעבדתית | N/A | התאוששות לאחר טרנספורמציה |
| נתרן כלוריד | HiMedia | TC046 | הכנת מצע גידול |
| נתרן הידרוקסיד | HiMedia | PCT1325 | כוונון pH של HEPES |
| להב ניתוחי סטרילי | Medicare Surgical | 16020 | חיתוך ג'ל/טיפול ברקמה |
| מזרק סטרילי | HMD Dispovan | 10ml syringe without needle | סינון סטרילי |
| מסנן מזרק סטרילי, 0.22 µm | Merck Millex Durapore | 12766842 | סטריליזציה בסינון |
| SYBR Green master mix | New England Biolabs | M3003E | RT-qPCR |
| טטרהציקלין | Duchefa Biochemie | T01050 | בשימוש בריכוז 5 µg/mL |
| תרמוציקלר (Thermal cycler) | Applied Biosystems | A24811 | הגברת PCR |
| גליל נייר סופג | Rolia’s | 07AAECR4885K1ZT | שימוש כללי במעבדה |
| ריאגנט TRIzol | Invitrogen | 15596026 | בידוד RNA |
| טרנס-אילומינטור UV | Analytik Jena | TW-43 | ויזואליזציה של ג'ל |
| ספקטרופוטומטר UV-Vis | Eppendorf | D30 | מדידת OD600 |
| קיובטות Vis | Eppendorf | 30079345 | מדידת OD600 |
| מיקסר וורטקס (Vortex mixer) | Neuation | iSWIX-VT | ערבוב דגימות |
| X-gal | G Biosciences | RC1233 | סריקה כחולה-לבנה |
| תמצית שמרים | HiMedia | RM668-500G | הכנת מצע גידול |
| אבץ סולפט הפטהידראט | Sigma-Aldrich | Z0251 | הכנת תמיסת McKnight’s |
מקורות
- Doudna JA, Charpentier E. The new frontier of genome engineering with CRISPR-Cas9. Science. 2014;346(6213):1258096.
- Jiang W, Bikard D, Cox D, Zhang F, Marraffini LA. RNA-guided editing of bacterial genomes using CRISPR-Cas systems. Nature biotechnology. 2013;31(3):233-9.
- Bertrand C, Thibessard A, Bruand C, Lecointe F, Leblond P. Bacterial NHEJ: a never ending story. Molecular microbiology. 2019;111(5):1139-51.
- Loureiro A, da Silva GJ. Crispr-cas: Converting a bacterial defence mechanism into a state-of-the-art genetic manipulation tool. Antibiotics. 2019;8(1):18.
- Altenbuchner J. Editing of the Bacillus subtilis genome by the CRISPR-Cas9 system. Applied and environmental microbiology. 2016;82(17):5421-7.
- Wang Y, et al. Bacterial genome editing with CRISPR-Cas9: deletion, integration, single nucleotide modification, and desirable “clean” mutant selection in Clostridium beijerinckii as an example. ACS synthetic biology. 2016;5(7):721-32.
- Oh J-H, van Pijkeren J-P. CRISPR–Cas9-assisted recombineering in Lactobacillus reuteri. Nucleic acids research. 2014;42(17):e131-e.
- Cobb RE, Wang Y, Zhao H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS synthetic biology. 2015;4(6):723-8.
- Wanjofu EI, et al. Nodulation and growth promotion of chickpea by Mesorhizobium isolates from diverse sources. Microorganisms. 2022;10(12):2467.
- Haskett T, et al. Complete genome sequence of Mesorhizobium ciceri strain CC1192, an efficient nitrogen-fixing microsymbiont of Cicer arietinum. Genome Announcements. 2016;4(3):10.1128/genomea. 00516-16.
- Bellahsen O, Díaz-Méndez R, Romero D. Genomic engineering in Rhizobium etli: implementation and evaluation of systems based on dCas9. Frontiers in Microbiology. 2025;16:1604430.
- Liu G, et al. An efficient CRISPR/Cas12e system for genome editing in Sinorhizobium meliloti. ACS Synthetic Biology. 2023;12(3):898-903.
- Wang L, Xiao Y, Wei X, Pan J, Duanmu D. Highly efficient CRISPR-mediated base editing in Sinorhizobium meliloti. Frontiers in Microbiology. 2021;12:686008.
- Schäfer A, et al. Small mobilizable multi-purpose cloning vectors derived from the Escherichia coli plasmids pK18 and pK19: selection of defined deletions in the chromosome of Corynebacterium glutamicum. Gene. 1994;145(1):69-73.
- Rütering M, et al. Tailor-made exopolysaccharides—CRISPR-Cas9 mediated genome editing in Paenibacillus polymyxa. Synthetic Biology. 2017;2(1):ysx007.
- Ledermann R, Bartsch I, Remus-Emsermann MN, Vorholt JA, Fischer H-M. Stable fluorescent and enzymatic tagging of Bradyrhizobium diazoefficiens to analyze host-plant infection and colonization. Molecular Plant-Microbe Interactions. 2015;28(9):959-67.
- Göttfert M. Regulation and function of rhizobial nodulation genes. FEMS microbiology reviews. 1993;10(1-2):39-63.
- Kant C, Pradhan S, Bhatia S. Dissecting the root nodule transcriptome of chickpea (Cicer arietinum L.). PLoS One. 2016;11(6):e0157908.
- Hsu PD, et al. DNA targeting specificity of RNA-guided Cas9 nucleases. Nature biotechnology. 2013;31(9):827-32.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nature biotechnology. 2016;34(2):184-91.
- Norrander J, Kempe T, Messing J. Construction of improved M13 vectors using oligodeoxynucleotide-directed mutagenesis. Gene. 1983;26(1):101-6.
- Simon R, Priefer U, Pühler A. A broad host range mobilization system for in vivo genetic engineering: transposon mutagenesis in gram negative bacteria. Bio/technology. 1983;1(9):784-91.
- Hanahan D, Jessee J, Bloom FR. [4] Plasmid transformation of Escherichia coli and other bacteria. Methods in enzymology. 1991;204:63-113.
- Alexandre A, et al. Natural populations of chickpea rhizobia evaluated by antibiotic resistance profiles and molecular methods. Microbial Ecology. 2006:128-36.
- Weerakkody LR, et al. A rapid, inexpensive and effective method for the efficient isolation of genomic DNA from Gram-negative bacteria. Molecular Genetics and Genomics. 2024;299(1):26.
- Selbitschka W, Niemann S, Pühler A. Construction of gene replacement vectors for Gram− bacteria using a genetically modified sacRB gene as a positve selection marker. Applied microbiology and biotechnology. 1993;38(5):615-8.
- Yadav A, Singh RP, Singh AL, Singh M. Identification of genes involved in phosphate solubilization and drought stress tolerance in chickpea symbiont Mesorhizobium ciceri Ca181. Archives of microbiology. 2021;203(3):1167-74.
- Dicenzo GC, et al. Multidisciplinary approaches for studying rhizobium–legume symbioses. Canadian Journal of Microbiology. 2019;65(1):1-33.
- Calia C, et al. A bibliometric analysis of chickpea agronomic practices in the world during 45 years of scientific research. Legume Science. 2024;6(1):e219.
- Sandhu J, Tripathi S, Chaturvedi S. Chickpea nutritional status and value chain for sustainable development. Sustainable food value chain development: Perspectives from developing and emerging economies: Springer; 2023. p. 175-83.
- Ren B, Wang X, Duan J, Ma J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 2019;365(6456):919-22.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב