נפרופתיה סוכרת (DN) כרוכה בתפקוד מיטוכונדריאלי לקוי. באמצעות טרנסקריפטומיקה, פרמקולוגיה רשתית ולמידת מכונה, זיהינו את CAT, FABP1, MAOA ו-MAOB כסמנים ביולוגיים מועמדים הקשורים למיטוכונדריה עבור Ligustri Lucidi Fructus. בעכברים מסוג db/db, LLF הוביל לעלייה בביטוי של CAT ו-MAOA, ממצא התומך בחקירה מכניסטית מעמיקה יותר.
מאמר מחקר
זיהוי ביומארקרים מועמדים הקשורים למיטוכונדריה של Ligustri Lucidi Fructus בנפרופת סוכרת
במאמר זה
סיכום
תקציר
תפקוד לקוי של מיטוכונדריה ועקה חמצונית מוגברת בתוך המיטוכונדריה הם גורמים פתולוגיים מרכזיים המניעים פגיעה בצינוריות הכליה בנפרופתיה סוכרתית (DN). למרות ש-Ligustri Lucidi Fructus (LLF) משמש באופן מסורתי לטיפול ב-DN, המנגנונים המעורבים, ובמיוחד אלו הקשורים לגנים ומסלולים הקשורים למיטוכונדריה, נותרו לא מובנים דיו. מחקר זה השתמש בניתוח ביטוי דיפרנציאלי של מערך הנתונים GSE142025 כדי לזהות גנים בעלי ביטוי דיפרנציאלי (DEGs) הקשורים ל-DN. גנים מאפיינים נבחרו על ידי הצלבת הפלטים של ארבעה מודלים של למידה חישובית. גנים שהראו ביטוי דיפרנציאלי משמעותי ודפוסי ביטוי עקביים בשני מערכי הנתונים הערכו בהמשך באמצעות ניתוח עקומת מאפייני תפעול מקבל (ROC). אלו עם שטח תחת העקומה (AUC) > 0.7 בשני מערכי הנתונים הוגדרו כסמנים ביולוגיים מועמדים. בוצעו ניתוחים של העשרה תפקודית, חלחול חיסוני, בניית רשת ועגינה מולקולרית. מודל עכברים עם DN שימש להערכת רמות סוכר בדם, מיקרואלבומין בשתן, היסטופתולוגיה וביטוי RT-qPCR של הסמנים הביולוגיים המועמדים. CAT ו-MAOA הראו עלייה משמעותית בביטוי in vivo. הסמנים הביולוגיים המועמדים היו מועשרים במסלולים הקשורים לתפקוד הריבוזום, פירוק של ולין, לויצין ואיסולויצין, אינטראקציות בין ציטוקינים לקולטני ציטוקינים ופרוקסיזומים. הם נמצאו במתאם שלילי עם תאי T מסוג CD8+ ותאי מאסט מופעלים, ובמתאם חיובי עם תאי NK מופעלים ותאי B נאיביים. Taxifolin, beta-sitosterol ו-eriodictyol הראו אנרגיות קשירה נמוכות מ-5- kcal/mol עם הסמנים הביולוגיים המועמדים. CAT ו-MAOA הם מועמדים מבטיחים המצדיקים חקירה מנגנונית נוספת.
מבוא
נפרופתיה סוכרתית (DN), הגורם המוביל למחלת כליות בשלב מסוף ברחבי העולם, היא אחת הסיבוכים השכיחים ביותר של סוכרת (diabetes mellitus). מבחינה פתולוגית, היא מאופיינת בהצטברות מוגברת של מטריקס חוץ-תאי הן במדורה הגלומרולרית והן במדורה התובולרית, יחד עם עיבוי וסקלרוזיס של כלי דם תוך-כלייתיים2. DN קשורה בדרך כלל לחלבון בשתן (פרוטאינוריה) ויתר לחץ דם3. התפתחותה קשורה באופן הדוק לנזק בתאי אנדותל וסקולריים, לתגובה דלקתית מוגברת ולעקה חמצונית מוגברת כתוצאה מהיפרגליקמיה ממושכת4. שכיחות ה-DN עולה ברחבי העולם, במיוחד בקרב חולי סוכרת בגיל העמידה ובקרב קשישים. ככל שהמחלה מתקדמת, היא עלולה להוביל לאי-ספיקת כליות בשלב מסוף ואף לסיבוכים קרדיו-וסקולריים, דבר הפוגע משמעותית באיכות חיי החולים ובפרוגנוזה שלהם5. למרות התקדמויות בגישות האבחנתיות והטיפוליות ב-DN, ביומרקרים מועמדים מוקדמים ומדויקים לאבחנה עדיין אינם זמינים, ואסטרטגיות טיפול יעילות להפיכת התהליכים הפתולוגיים עדיין חסרות. לפיכך, קיים צורך דחוף בפיתוח תרופות חדשות וממוקדות נגד DN.
מיטוכונדריה חיוניות לביואנרגטיקה תאית, סינתזה של מקדימים מטבוליים, הומאוסטזיס של סידן, ייצור של מיני חמצן רהאקטיביים (ROS), סיגנלינג חיסוני ואפופטוזיס, כולם חיוניים לשמירה על יציבות התא והאורגניזם6. כ"תחנות הכוח" של התא, המיטוכונדריה ממלאות תפקיד מרכזי בתהליכים בסיים כגון גליקוליזה, מעגל חומצה טריקרבক্সילית ופוספורילציה חמצונית7. השמנת יתר משבשת את מעגל קרבס ואת שרשרת הנשימה המיטוכונדריאלית, מה שמוביל לתפקוד לקוי של המיטוכונדריה ולעלייה בייצור ROS. רמות גבוהות של ROS בשרת הנשימה המיטוכונדריאלית עלולות להוביל לעקה חמצונית, אשר מחמירה את התגובה הדלקתית הקשורה להשמנת יתר ומקדמת אפופטוזיס8. מחקרים עדכניים הדגישו את התפקיד המשמעותי של תפקוד לקוי של מיטוכונדריה בפתוגנזה ובהתקדמות של DN, כולל הפרעות במטבוליזם של אנרגיה, ייצור מוגבר של ROS ואיתות אפופטוטי מוגבר9. תפקוד מיטוכונדריאלי לקוי כרוני מאיץ את התקדמות מחלת הכליות10. לפיכך, שיפור התפקוד המיטוכונדריאלי עשוי להוות אסטרטגיה הגנתית מכרעת נגד DN.
Ligustri Lucidi Fructus (LLF) הוא פרי בשל ומייבש ממשפחת ה-Luteaceae, הידוע בסגולותיו להזנת הכבד והכליות, וכן ביכולתו להכהות את השיער ולשפר את הראייה. הטרפוליסכריד המופיע באופן טבעי ומופק מ-LLF זוה, ונחשף פוטנציאל שלו להגן על הכליות מפני פיברוזיס1. בשנים האחרונות ניתנה תשומת לב גוברת לשימוש ב-LLF לטיפול ב-DN, תוך הדגמה של השפעות רנפרוטקטיביות (מגינות על הכליות) בולטות1,12,13. יתרה מכך, הקשר המורכב בין LLF למיטוכונדריה נחקר ואומת באופן נרחב. באופן בולט, מחקר הראה כי LLF מפעיל את השפעותיו המיטיבות על ידי ויסות התפקוד המיטוכונדרי באמצעות הפעלה של מסלול האיתות AMPK14. מנגנון זה מגן ביעילות על המיטוכונדריה מפני נזקים הנגרמים על ידי עקה חמצונית. ממצאים אלו מדגישים עוד יותר את תפקידו החיוני של LLF בשמירה על מטבוליזם אנרגטי תאי ובשיפור עמידות התאים לעקה חמצונית. עם זאת, המנגנון הטיפולי המדויק, ובמיוחד בנוגע לשיקום התפקוד המיטוכונדרי, נותר פחות מובן.
מטרת מחקר זה הייתה להבהיר את המנגנונים הביולוגיים העומדים בבסיס ההשפעה הטיפולית של LLF על תפקוד המיטוכונדריה ב-DN. בוצע חיפוש במאגרי מידע ציבוריים באמצעות כלים של ביואינפורמטיקה כדי לזהות ביומרקרים מועמדים הקשורים להשפעות ההגנה הכלית של LLF, תוך שילוב נתוני טרנסקריפטומיקה ומידע על רכיבים פעילים. ניתוחים נוספים, כולל חדירה חיסונית, קשר למאפיינים קליניים, מודיפיקציית m6A RNA, העשרה תפקודית, בניית רשת רגולטורית ועגינה מולקולרית (molecular docking), הצביעו על כך שביומרקרים מועמדים אלו ממלאים תפקיד מרכזי בויסות תפקוד המיטוכונדריה במהלך טיפול ב-DN. תיקוף In vivo אישר עוד יותר את חשיבותם. ניתוח מקיף זה מעמיק את הבנתנו לגבי המנגנונים שבאמצעותם LLF מטפל ב-DN ומספק בסיס איתן לפיתוח מטרות טיפוליות חדשות המבוסות על תפקוד לקוי של המיטוכונדריה.
פרוטוקול
איסוף נתונים
מטריצת ביטוי הגנים והנתונים הקליניים התואמים עבור מאגרי הנתונים GSE142025 ו-GSE96804, הקשורים ל-DN, נשלפו ממאגר הנתונים Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)15. קבוצת האימון (GSE142025) כללה דגימות רקמת כליה מ-27 חולי DN ותשעה ביקורות, שרוצפו באמצעות פלטפורמת GPL20301. קבוצת התיקוף (GSE96804) כללה נתוני ריצוף מ-41 חולי DN ו-20 ביקורות, שעובדו באמצעות פלטפורמת GPL17586. שני מאגרי הנתונים מתמקדים ברקמת כליה; מאגר הנתונים GSE96804 בוחן באופן ספציפי את הגלומרולוס, יחידת הסינון הראשית של הכליה (איור 1). מאגר הנתונים GSE142025 (קבוצת האימון) מורכב מדגימות רקמת כליה שלמה ומספק סקירה נרחבת של הנוף הטרנסקריפטומי של DN. לעומת זאת, מאגר הנתונים GSE96804 (קבוצת התיקוף) מתמקד ספציפית ברקמת גלומרולוס, שהיא האתר העיקרי של פגיעה בסינון הגלומרולרי. מכיוון ששני מאגרי נתונים אלו לא מוזגו באופן ישיר עקב הבדלים בפלטפורמה וברקמה, לא בוצע תיקון אפקט אצווה (batch effect correction). במקום זאת, ביצוע תיקוף בין-מאגרי בוצע באופן עצמאי. גנים עם שינויים כיווניים עקביים ושטח תחת העקומה (AUC) הגבוה מ-0.7 בשני מאגרי הנתונים נבחרו כמועמדים חסונים, התומכים ביכולת ההכללה בין מדורי הכליה השונים.
בסך הכל 1,136 גנים הקשורים למיטוכונדריה (MRGs) הופקו ממאגר הנתונים MitoCarta3.0 (https://www.broadinstitute.org/mitocarta). הרכיבים הפעילים של LLF נחזו באמצעות מאגר הנתונים Traditional Chinese Medicine Systems Pharmacology (TCMSP) (http://sm.nwsuaf.edu.cn/lsp/tcmsp.php), בהתבס על סף זמינות ביולוגית経oral (OB) של ≥30% וסף דמיון לתרופה (DL) של ≥0.18. לאחר מכן, גנים שהם מטרות פוטנציאליות עבור הרכיבים הפעילים נחזו באמצעות מאגר הנתונים Swiss Target Prediction (http://www.swisstargetprediction.ch/).
ניתוח ביטוי דיפרנציאלי
ניתוח ביטוי דיפרנציאלי של GSE142025 (DN לעומת ביקורת) בוצע באמצעות חבילת limma (גרסה 3.54.1), כאשר קריטריוני המובהקות נקבעו כ- Pתואר < 0.05 ו- |log2FoldChange| > 0.516 תרשימי געש (Volcano plots) ומפות חום (heat maps) הוצגו באמצעות החבילות ggplot2 (גרסה 3.3.6) ו-ComplexHeatmap (גרסה 2.14.0).17,18, בהתאמה. בוצע חפיפה בין הגנים בעלי ביטוי Differentially Expressed Genes (DEGs), הגנים הקשורים למחלה (MRGs) והגנים המהווים מטרות פוטנציאליות של הרכיבים הפעילים, והגנים החופפים הוגדרו כגנים מועמדים. הרשת המקשרת בין הרכיבים הפעילים לבין הגנים המועמדים נבנתה באמצעות תוכנת Cytoscape (גרסה 3.9.0).19.
ניתוח העשרה פונקציונלית ובניית רשת אינטראקציות חלבון-חלבון (PPI)
ניתוחי העשרה של Gene Ontology (GO) ו-Kyoto Encyclopedia of Genes and Genomes (KEGG) עבור הגנים המועמדים בוצעו באמצעות חבילת clusterProfiler (גרסה 4.6.2) כדי לבחון את תפקודיהם הביולוגיים ואת מסלולי השליחות הקשורים אליהם (P.adjust < 0.05). לאחר מכן, הגנים המועמדים הוזנו למסד הנתונים STRING (https://cn.string-db.org/) לשליפת קשרי PPI (רמת ביטחון ≥ 0.4), ולאחר מכן נבנתה רשת PPI באמצעות Cytoscape (גרסה 3.9.0)20.
למידת מכונה
ארבעה אלגוריתמים של למידת מכונה, הכוללים random forest (RF), k-nearest neighbor (KNN), partial least squares (PLS), ו-support vector machine עם radial basis kernel (SVM), הוטמעו באמצעות חבילת caret (גרסה v6.0-93) בהתבסס על מערך הנתונים GSE142025. הגנים המועמדים שזוהו בניתוח הקודם שימשו כמשתני ניבוי, ומצב המחלה (DN או ביקורת) שימש כתוצאה. עבור מודל ה-KNN, בוצע אימות צולב של 10 מקפלים (10-fold cross-validation) באמצעות פונקציית trainControl, עם tuneLength = 10. מודל ה-RF הותאם עם 20 עצים (ntree = 20); מודלי ה-PLS וה-SVM הותאמו באמצעות ההגדרות שהוטמעו בזרימת העבודה המקורית של caret.
התפלגויות השאריות של המודלים הוערכו באמצעות חבילת DALEX (גרסה 2.4.3). לאחר מכן בוצעו הערכות משתנים מבוסות פרמוטציה באמצעות הפונקציה variable_importance של DALEX, כאשר שגיאת השורש הממוצעת של הריבועים (RMSE) הוגדרה כפונקציית ההפסד. ה-dropout_loss המתקבל מייצג את ה-RMSE שהושג לאחר פרמוטציה של המשתנה המתאים21,2. בזרימת העבודה האנליטית המקורית, נשמרו משתנים עם dropout loss < 0.281 בכל המודלים, וגנים המשותפים לכל ארבעת המודלים הוגדרו כגני מאפייני קונסנזוס לצורך תיקוף עוקב.
ארבעת המודלים של למידת מכונה שימשו בעיקר לתעדוף מאפיינים ולא לבניית מסווג קליני סופי. בהתאם לכך, ההבחנה האבחנתית הוערכה לאחר מכן ברמת הגן הבודד באמצעות ניתוח ROC הן במערך הנתונים לגילוי והן במערך הנתונים לתיקוף.
זיהוי ביומרקרים מועמדים
במערכי הנתונים GSE142025 ו-GSE96804, נבחנו הבדלי ביטוי של גנים מאפיינים בין דגימות DN לדגימות ביקורת באמצעות מבחן Wilcoxon. רק גנים עם ביטוי דיפרנציאלי מובהק (P < 0.05) ומגמות ביטוי תואמות בשני מערכי הנתונים נבחרו לניתוח עקומי מאפיין תפעול מקלט (ROC). חבילת pROC (גרסה 1.18.0) שימשה להפקת עקומי ROC ולחישוב השטח תחת העקומה (AUC), כאשר גנים שהראו AUC > 0.7 בשני מערכי הנתונים סווגו כביומרקרים מועמדים23.
ניתוח העשרה של קבוצות גנים (GSEA)
הפונקציות הביולוגיות ומסלולי האיתות הקשורים לסממנים הביולוגיים המועמדים נבחנו בהמשך באמצעות GSEA על מערך הנתונים GSE142025. ראשית, בוצע ניתוח מתאם של ספירמן (Spearman correlation analysis) בין הסמנים הביולוגיים המועמדים לבין כל שאר הגנים באמצעות חבילת ה-psych (גרסה 2.2.9).24חושבו מקדמי מתאם ודורגו (מהגבוה לנמוך). סט הגנים הייחסי היה c2.cp.kegg.v2023.1.Hs.symbols.gmt ממאגר החתימות המולקולריות (MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/). לאחר מכן בוצע GSEA כדי להעריך את העשירה של הגנים המדורגים בסט הגנים ברקע באמצעות החבילה clusterProfiler (גרסה 4.6.2). הוחל תיקון לבדיקות מרובות. באמצעות שיטת ה-FDR, ומותאם P-ערכים (המסומנים כ- P.adjust) נחשבו למשמעותיים אם < 0.05.
ניתוח מודיפיקציית M6A
כדי לחקור מודיפיקציות של מתילציה של RNA בביומרקרים מועמדים, נעשה שימוש במאגר הנתונים SRAMP (http://www.cuilab.cn/sramp/) כדי לנבא אתרי מודיפיקציית m6A בביומרקרים מועמדים, תוך התמקדות במיקומים בעלי רמת ביטחון גבוהה בתוך המבנים השניוניים שלהם. לאחר מכן, נעשה שימוש במאגר הנתונים ENCORI (https://starbase.sysu.edu.cn/) כדי לזהות חלבונים שעברו מודיפיקציית m6A אשר מקיימים אינטראקציה עם הביומרקרים המועמדים, תוך שימוש בפרמטר |HepG2 (shRNA)| > 1 לסינון חלבונים מרכזיים. בהמשך, נעשה שימוש במאגר הנתונים RPISeq (http://pridb.gdcb.iastate.edu/RPISeq/) כדי לנבא את הסבירות לאינטראקציות בין החלבונים המרכזיים לבין הביומרקרים המועמדים. רצפי ה-RNA של שניהם הועלו בפורמט טקסט פשוט כדי להפיק ציוני ניבוי של מסווגי RF ו-SVM. אינטראקציה נחשבה למשמעותית כאשר הציון עלה על 0.525. ניתוח ה-SRAMP בוצע עם סף 'High' לניבוי אתרי m6A, תוך שימוש במצב 'Transcript' ובפרמטרים ברירת המחדל. ניתוח ה-ENCORI השתמש בפונקציית האינטראקציה 'miRNA-mRNA' עם הפרמטר 'HepG2 (shRNA)' > 1. ניתוח ה-RPISeq השתמש במסווג RF עם פרמטרים ברירת המחדל; ציונים > 0.5 העידו על אינטראקציה חיובית. אלו הם ניבויים חישוביים, ולא ראיות ניסיוניות למודיפיקציית m6A או לאינטראקציות RNA-חלבון ברקמת כליה. הקריטריון של HepG2 shRNA נגזר ממאגרי הנתונים שחושבו מראש של ENCORI וייתכן שאינו משקף רגולציה ספציפית לכליות.
ניתוח חדירה חיסונית
אלגוריתם CIBERSORT יושם כדי להעריך את הפרופורציות של 2 סוגי תאי חיסון הן בדגימות ביקורת והן בדגימות DN מ-GSE142025, עם ויזואליזציה באמצעות מפת חום (heatmap) שנוצרה באמצעות חבילת ggplot2 (גרסה 3.3.6)26. CIBERSORT הופעל באמצעות מטריצת החתימה LM2, עם 1,0 פרמוטציות ובלי נורמליזציית קוונטיל (כפי שמומלץ עבור נתוני microarray). דגימות עם CIBERSORT p < 0.05 נשמרו לניתוח נוסף. CIBERSORT מעריך שברי תאי חיסון מביטוי של רקמת כליה כוללת (bulk), אשר אינו יכול להבחין בין חדירה ספציפית למדור (למשל, גלומרולרית לעומת טובולו-אינטרסטיציאלית) ואינו יכול להבדיל בין לוקוציטים חודרים לבין תאי חיסון תושבי הרקמה. לפיכך, הקורלציות המדווחות הן ברמת הרקמה ויש לתקפן באמצעות שיטות מרחביות. ניתוח קורלציית Spearman בין תאי חיסון בשפע שונה לבין ביומארקרים מועמדים בוצע באמצעות חבילת psych.
בניית רשתות ועגינה מולקולרית (molecular docking)
MicroRNAs (miRNAs) המקיימים אינטראקציה עם ביומארקרים מועמדים נחזו באמצעות מאגר הנתונים miRNet (https://www.mirnet.ca). לאחר מכן, long noncoding RNAs (lncRNAs) המטרים את ה-miRNAs שזוהו נחזו באמצעות מאגרי הנתונים TarBase (http://www.diana.pcbi.upenn.edu/tarbase) ו-starbase (http://starbase.sysu.edu.cn/). lncRNAs המשותפים לשני מאגרי הנתונים נבחרו לבניית הרשת. רשת ויסות של lncRNA-miRNA-mRNA נבנתה לאחר מכן באמצעות תוכנת Cytoscape. רכיבים פעילים פוטנציאליים המטרים את הביומארקרים המועמדים נבחרו לבניית רשת של רכיב פעיל-ביומארקר. בנוסף, רכיבים פעילים, ביומארקרים מועמדים ומסלולים שזוהו ב-GSEA שולבו ב-Cytoscape ליצירת רשת של רכיב פעיל-ביומארקר-מסלול.
ביצוע ניתוח עגינה מולקולרית (Molecular docking) נועד להעריך את זיקת הקישור בין רכיבים פעילים פוטנציאליים לבין סמנים ביולוגיים מועמדים. מבנים תלת-מדיים של חלבוני הסמנים הביולוגיים התקבלו ממאגר החלבונים של ה-Research Collaboratory for Structural Bioinformatics Protein Data Bank (RCSB PDB, https://www.rscb.org/pdb) בפורמט קובץ PDB. מבנים דו-מדיים של רכיבים פעילים פוטנציאליים נשלפו בפורמט SDF ממאגר הנתונים PubChem (http://pubchem.ncbi.nlm.nih.gov). העגינה המולקולרית בוצעה באמצעות פלטפורמת CB-Dock (http://clab.labshare.cn/cb-dock/php/blinddock.php). אנרגיית קישור של פחות מ- -5 kcal/mol העידה על זיקת קישור חזקה27.
הכנה ואימות של Ligustri Lucidi Fructus
כאן, Ligustri Lucidi Fructus (LLF) מתייחס לפרי הבשל והמיובש של Ligustrum lucidum W. T. Aiton (Oleaceae). החומר הבוטני אומת על פי הפרמקופיה הסינית (Chinese Pharmacopoeia), ודגימת ביקורת (voucher specimen) מספר 20240506,2024091,2024103 הופקדה באוניברסיטת שאנשי לרפואה סינית מסורתית.
להכנת התסבית, השרגו 200 g של פרוסות LLF מאושרות ב-1,0 mL של מים מזוקקים למשך 30 min בטמפרטורת החדר. התערובת הורתכה בעוצמה ולאחר מכן בושלה בבעבוע עדין למשך 60 min. התסנין נאסף, וחומרי הצמח שנותרו בושלו שוב עם 1,0 mL נוספים של מים מזוקקים למשך 60 min. שני התסנינים אוחדו, סוננו, עברו סנטריפוגה ורוכזו תחת לחץ מופחת כדי להגיע לריכוז מלאי סופי של 1 g של תמצית גולמית/mL (נפח כולל של 10 mL). התסבית שהוכנה נשמרה ב-4 °C לשימוש קצר טווח או ב-−20 °C לשימור ארוך טווח. איכות ה-LLF והתסבית שלו זוהו ואומתו בקפידה לפי התקנים של הפרמקופה הסינית כדי להבטיח את מהימנות הניסוי ואת יכולת השחזור שלו.
לזיהוי איכותי, בוצע כרומטוגרפיה בשכבה דקה. בקצרה, נפח מתאים של התשבוח שהוכן הועבר לסרכזפוגה, והנוזל העליון חולץ באמצעות methanol. לאחר סינון, תמיסת הדגימה ותמיסת תקן ייחוס של specnuezhenide הונחתו על אותה פלטת silica gel G. לאחר פיתוח, ייבוש ובדיקה תחת אור ultraviolet, הכתם של תמיסת הדגימה הראה צבע ומיקום עקביים עם תרכובת הייחוס, מה שאיש את קיומו של הרכיב הביולוגי הפעיל האופייני של LLF.
לצורך בקרת איכות כמותית, בוצעה דטקציה באמצעות כרומטוגרפיה נוזלית בעוצמה גבוהה (HPLC). הניתוח בוצע באמצעות עמודת C18 כאשר המהלול היה תערובת של methanol–water. אורך גל הדטקציה נקבע על 24 nm. תכולת ה-specnuezhenide במיצוי נקבעה על בסיס עקום סטנדרטי. התוצאות הדגימו הרכב כימי יציב ואחיד של מיצוי הדגימה שהוכן, מה שהבטיח איכות תרופתית עקבית לאורך כל ניסוי ההתערבות בבעלי החיים.
ניסויי בעלי חיים
שנים עשר עכברי db/db זכרים בדרגת SPF (בני 8–9 שבועות) ושישה עכברי db/m תואמים בגילם הוחזקו במתקן בעלי החיים SPF של אוניברסיטת שאנשי לרפואה סינית מסורתית. לפני הניסויים, בעלי החיים עברו תקופת אקלמיזציה של 7 ימים תחת מחזור של 12 שעות אור/12 שעות חושך, עם גישה חופשית (ad libitum) למזון ומים. המחקר אושר על ידי ועדת האתיקה של אוניברסיטת שאנשי לרפואה סינית מסורתית (מספר אישור 202DW167). בעלי חיים שהפגינו ירידה במשקל הגוף של >20%, מצב גסיסה, או חוסר יכולת לגשת למזון או למים, הומתו באופן הומני לפני נקודת הסיום המתוכננת של המחקר. בסיום המחקר, כל שאר העכברים הומתו באמצעות הזרקה תוך-פריטונית של pentobarbital sodium ולאחריה פריקה של עמוד השדרה הצווארי בהתאם לפרוטוקולים המוסדיים.
בעקבות תקופת האקלימטציה, אישור להקמת מודל DN בעכברי db/db התקבל על סמך רמת גלוקוז בדם מווריד הזנב של ≥ 16 mmol/L ומיקרואלבומינוריה, כפי שהודגם על ידי בדיקת רצועה חיובית למיקרואלבומין בשתן. לאחר הקמה מוצלחת של מודל ה-DN, חולקו עכברי ה-db/db באופן אקראי לשתי קבוצות (n = 6 לכל קבוצה): קבוצת מודל ה-DN (DN) וקבוצת הטיפול ב-LLF (Treatment). בנוסף, עכברי db/m (מספרם n = 6) שימשו כקבוצת ביקורת (Control). המינון נבחר על בסיס מחקרי פרמקודנמיקה קודמים של LLF בחולדות סוכרתיות והומר למינון השקול בבני אדם באמצעות נרמול לפי שטח פני השטח של הגוף28. קבוצות הביקורת וה-DN קיבלו מים מזוקקים, בעוד שקבוצת הטיפול קיבלה 3.5 g/kg של LLF למשך 8 שבועות. לאחר 8 שבועות של מתן החומר, כל העכברים הורדמו כדי לאסוף סרום, שתן ורקמת כליה לבדיקות המשך.
מדדי דם ושתן
רמות הגלוקוז בסרום נותחו באמצעות מנתח ביוכימיה של דם אוטומטי מלא. ריכוז המיקרואלבומין בשתן נמדד בהתאם להוראות הערכה (קובץ משלים 1).
בחינה פתולוגית של רקמות כליה בעכבר
רקמות הכליה עובדו לצורך בדיקה היסטופתולוגית. לאחר קיבוע ב-4% paraformaldehyde, הרקמות נשטפו, עברו דהידרטציה, נטמנו בפרפין ונחתכו לפרוסות. לאחר מכן בוצע צביעת Hematoxylin and eosin (HE), והפרוסות הצבועות נבחנו תחת מיקרוסקופ אופטי להערכת שינויים פתולוגיים.
תגובת שרשרת פולימראז כמותית עם שעתוק הפוך (RT-qPCR)
נעשה שימוש ב-RT-qPCR כדי לקבוע את רמת הביטוי של הביו-מרקרים הפוטנציאליים ברקמת כליה של עכבר. RNA כולל הוצא מהרקמה בהתאם להוראות היצרן, ולאחר מכן הוערכו ריכוז ה-RNA ואיכותו (טבלה 1). cDNA סונתז מה-RNA שהופק באמצעות ה-cDNA Synthesis Kit. ההגברה בוצעה עם זוגות הפריימרים המפורטים ב- טבלה 1בשימוש ב- GAPDH כגן ייחוס. רמות ביטוי יחסיות חושבו באמצעות שיטת 2^-ΔCt−ΔΔCt שיטה13,26.
ניתוח סטטיסטי
כל הניתוחים הסטטיסטיים בוצעו באמצעות תוכנת R (גרסה 4.2.2) יחד עם התוכנות הנדרשות להליכים הניסויים המתאימים. אלא אם צוין אחרת, כל המבחנים הסטטיסטיים היו דו-זנביים, והבדלים נחשבו למשמעותיים סטטיסטית כאשר P < 0.05. ניתוח ביטוי דיפרנציאלי טרנסקריפטומי בוצע באמצעות חבילת ה-limma. גנים עם P מותאם < 0.05 וערך מוחלט של log2fold change הגבוה מ-0.5 הוגדרו כבעלי ביטוי דיפרנציאלי.
להשוואות של ביטוי גנים מועמדים בין דגימות DN עצמאיות לדגימות ביקורת, נעשה שימוש במבחני Wilcoxon rank-sum לא-פרמטריים במקומות שצוינו בזרימת העבודה האנליטית המקורית. מתאמים בין סמנים ביולוגיים מועמדים לבין פראקציות של תאי מערכת החיסון הוערכו באמצעות מתאם דרג של Spearman.
נתונים ניסיוניים מוצגים כממוצע ± SD. השוואות בין שלוש קבוצות בעלי החיים הבלתי תלויות בוצעו באמצעות ניתוח שונות חד-כיווני (one-way ANOVA) כאשר התקיימו הנחות הניתוח הפרמטרי. להשוואות פוסט-הוק (post hoc), נעשה שימוש במבחן ההבדל המשמעותי המינימלי (LSD) כאשר השונויות היו הומוגניות, בעוד שמבחן Dunnett's T3 שימש כאשר השונויות לא היו שוות. המדידות הפרמקודינמיות בנקודת הבסיס ובשבוע השמיני נותחו והוצגו בנפרד; לא הוסקו מסקנות בנוגע לאינטראקציה בין קבוצה לזמן. סקריפטי ה-R ונתוני המקור ששימשו לניתוחים של ביואינפורמטיקה ולמידה חישובית מסופקים ב- קובץ משלים 1.
תוצאות
כדי לבחון באופן שיטתי סמנים ביולוגים מועמדים פוטנציאליים הקשורים למיטוכונדריה עבור LLF בטיפול ב-DN, תכננו זרימת עבודה אנליטית בת ארבעה שלבים (איור 1). בשלב I, שילבנו נתוני טרנסקריפטומיקה ממאגר הנתונים GSE142025 (קבוצת אימון, כליה שלמה, n=36) ו-GSE96804 (קבוצת תיקוף, גלומרולוס, n = 61) עם 1,136 גנים הקשורים למיטוכונדריה ממאגר הנתונים MitoCarta 3.0 ו-517 מטרות חזויות של 9 רכיבים פעילים ממאגר הנתונים TCMSP. חפיפה של שלוש קבוצות גנים אלו הניבה 9 גנים מועמדים. בשלב II, יושמו ארבעה מודלים של למידת מכונה (RF, KNN, PLS ו-SVM) כדי לתעדף גנים מאפיינים תוך שימוש ב-RMSE < 0.281 כסף. תיקוף בין-מאגרי נתונים באמצעות ניתוח ROC (AUC > 0.7 בשני מאגרי הנתונים) זיהה ארבעה סמנים ביולוגים מועמדים: CAT, FABP1, MAOB ו-MAOA. בשלב III, ביצענו GSEA כדי לזהות מסלולי KEGG מועשרים, ניתוח חדירה חיסונית באמצעות CIBERSORT, חיזוי מודיפיקציית m6A, ובנינו רשתות של lncRNA-miRNA-mRNA, רכיב פעיל–סמן ביולוגי, ורכיב פעיל–סמן ביולוגי–מסלול, ולאחר מכן ביצענו דוקינג מולקולרי. בשלב IV, הוערכו ההשפעות הפרמקודינמיות של LLF ושינויים בביטוי mRNA של ארבעת הסמנים הביולוגים המועמדים במודל עכברים db/db של DN.
סריקת גנים מועמדים עבור טיפול ב-DN באמצעות LLF
במאגר הנתונים GSE142025, זוהו 3,810 DEGs בין קבוצת ה-DN לקבוצת הביקורת, הכוללים 1,904 DEGs שעלו בביטויים ו-1,906 DEGs שירדו בביטויים (Figure 2A,B). שלושה-עשר רכיבים פעילים מ-LLF נחזו באמצעות מאגר הנתונים TCMSP, והם: beta-sitosterol, kaempferol, taxifolin, Lucidumoside D, Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, eriodictyol, syringaresinol diglucoside_qt, Lucidusculine, Olitoriside, Olitoriside_qt, luteolin, ו-quercetin (Table 2). ארבעה רכיבים פעילים—Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, syringaresinol diglucoside_qt, ו-Olitoriside_qt—לא חזו אף גן מטרה פוטנציאלי, בעוד שתשעת הרכיבים הנותרים חזו 517 גנים מטרה פוטנציאליים. על ידי חפיפה של 3,810 ה-DEGs, 1,136 ה-MRGs ו-517 הגנים מטרה הפוטנציאליים, זוהו תשעה גנים מועמדים: GPX1, BAX, CASP8, MAOA, MAOB, CAT, AKR1B10, ALDH2, ו-FABP1 (Figure 2C). לאחר מכן נבנתה רשת של רכיב פעיל-גן מועמד (Figure 2D). תשעת הגנים המועמדים הללו היו מועשרים ב-341 מונחי GO, כולל תגובה לחומרים רעילים, תהליך קטבולי של תרכובת הידרוקסית אורגנית וניקוז רעלים תאי (Figure 2E). בנוסף, הם היו קשורים ל-52 מסלולי KEGG, כגון מטבוליזם של tryptophan, מסלולים נוירודגנרטיביים ומטבוליזם של histidine (Figure 2F).
סריקת סמנים ביולוגיים מועמדים לטיפול ב-DN ב-LLF
רשת ה-PPI חשפה שבעה צמתים ושמונה קשתות, כאשר MAOA, ALDH2, MAOB, ו-AKR1B10 נמצאים באינטראקציה (איור 3A). גנים עם ערכי RMSE נמוכים מ-0.281 בארבעה מודלים של למידה חישובית זוהו כגנים מאפיינים: CAT, MAOB, MAOA, BAX, ו-FABP1 (איור 3B-E). ניתוח ביטוי הראה כי CAT, FABP1, MAOB, ו-MAOA היו שונים באופן מובהק בין קבוצת ה-DN לקבוצת הביקורת והיו עקביים הן במערך הנתונים GSE142025 והן במערך הנתונים GSE96804 (איור 3F,G). יתרה מכך, ערכי ה-AUC שלהם בניתוח עקומות ROC עלו על 0.7 בשני מערכי הנתונים, מה שמעיד על כך שגנים אלו יכולים להבדיל ביעילות בין דגימות DN לדגימות ביקורת ולשמש כסמנים ביולוגיים מועמדים לטיפול ב-DN ב-LLF (איור 4A-H).
העשרה משמעותית של ביומרקרים מועמדים במסלולים דלקתיים ובמסלולים הקשורים למערכת החיסון
GSEA זיהה ארבעה ביומרקרים מועמדים שהועשרו באופן בולט במסלול השהיית הכמקינים (chemokine signaling pathway) ובאינטראקציות בין ציטוקינים לקולטני ציטוקינים (Figure 5A-D). מבין אלו, מסלול השהיית הפרוקסידאז (peroxidase signaling pathway) הראה קשר משמעותי עם CAT, MAOA, ו-MAOB.
מתאם של ביומארקרים מועמדים עם תאי מערכת החיסון
הבדלים בולטים בביטוי של תשעה סוגי תאי חיסון - תאי B נאיביים, M0 Macrophage, M1 Macrophage, M2 Macrophage, תאי Mast פעילים, תאי NK פעילים, תאי memory CD4+ T במצב מנוחה, תאי CD4+ T נאיביים, ותאי CD8+ T - נצפו בין דגימות ה-DN לדגימות הביקורת (P < 0.05) (איור 6A,B). נמצא מתאם חיובי מובהק (cor = 0.6) בין תאי B נאיביים לתאי NK פעילים, בעוד שמתאם שלילי מובהק (cor = -0.69) זוה בין תאי B נאיביים לתאי Mast פעילים (איור 6C). כל הביומארקרים המועמדים הראו מתאמים שליליים חזקים עם תאי CD8+ T ותאי Mast פעילים, ומתאמים חיוביים עם תאי NK פעילים ותאי B נאיביים (איור 6D).
אינטראקציה של חלבוני m6A משוערים עם סמנים ביולוגיים מועמדים
המודיפיקציה של מתילציה של RNA מסוג m6A משפיעה באופן עמוק על סינתזת RNA ומטבוליזם של RNA, והיא מעורבת בפתוגנזה של מחלות שונות29. מיקומי אתרי המודיפיקציה של m6A בסמנים הביולוגיים המועמדים והמיקומים בעלי הביטחון הגבוה במבנים השניים מוצגים באיור 7A-H. ניתוח נוסף גילה כי חלבוני m6A-modified מרכזיים המקיימים אינטראקציה עם CAT כללו את AQR ו-RBM2, בעוד ש-FABP1 קיים אינטראקציה הן עם SF3A3 והן עם AQR. נמצא כי MAOA מקיימת אינטראקציה עם IGF2BP3 ו-IGF2BP2, ו-MAOB עם TIA1 (טבלה 3).
חיזויים חיוביים של קישור in silico עבור taxifolin, beta-sitosterol ו-eriodictyol ב-LLF לטיפול ב-DN
ב-miRNet, חזוי היה ש-CAT יקיים אינטראקציה עם 24 miRNAs, בעוד ש-FABP1 היה קשור לחמישה miRNAs. בנוסף, MAOB ו-MAOA היו מקושרים ל-29 ו-26 miRNAs, בהתאמה. מתוכם, 23 lncRNAs זוהו הן במאגר הנתונים TarBase והן במאגר Starbase. לאחר מכן נבנתה רשת בקרה של lncRNA-miRNA-mRNA, ששילבה ארבעה סממנים ביולוגיים מועמדים, 74 miRNAs ו-23 lncRNAs (איור 8A). רכיבים פעילים פוטנציאליים המכוונים לסמנים הביולוגיים המועמדים כללו luteolin, beta-sitosterol, eriodictyol, kaempferol, quercetin ו-taxifolin (איור 8B). יתרה מכך, הוקמה רשת של רכיב פעיל-סמן ביולוגי-מסלול בהתבס על הרכיבים הפעילים, הסמנים הביולוגיים המועמדים וחמשת המסלולים המובילים שזוהו ב-GSEA (איור 8C). לדוגמה, taxifolin כוון ל-CAT במסלול הפרוקסיזום. אנרגיות הקישור בין CAT ל-taxifolin (-8.8 kcal/mol), בין FABP1 ל-beta-sitosterol (-8.1 kcal/mol), ובין MAOB ל-eriodictyol (-9.8 kcal/mol) היו כולן נמוכות מ-5- kcal/mol, מה שמעיד על זיקות חזקות בין סמנים ביולוגיים מועמדים אלו לבין הרכיבים הפעילים שלהם27. Taxifolin, beta-sitosterol ו-eriodictyol זוהו כרכיבים פעילים פוטנציאליים עם חיזויים חיוביים של קישור in silico ב-LLF לטיפול ב-DN (איור 8D-F). עם זאת, הם מוצגים כמרכיבים שחזויי במאגרי נתונים ולא כמתווכים ביו-אקטיביים מאושרים של ההשפעות שנצפו in vivo.
תיקוף של ביומארקרים מועמדים במודל עכברים ל-DN
הערכה פרמקודינמית של LLF בטיפול בעכברי DN
במהלך תקופת המתן, נוטרו רמות הגלוקוז בדם ורמות מיקרואלבומין בשתן בעכברים (איור 9A-D). בהשוואה לקבוצת הביקורת, רמות הגלוקוז בדם והמיקרואלבומין בשתן בקבוצת מודל ה-DN היו גבוהות באופן מובהק (P < 0.01); בהשוואה לקבוצת מודל ה-DN, רמות הגלוקוז בדם של העכברים בקבוצת הטיפול פחתו באופן מובהק לאחר 4 שבועות של מתן (P < 0.01) ורמות המיקרואלבומין בשתן של העכברים בקבוצת הטיפול פחתו באופן מובהק לאחר 8 שבועות של מתן (P < 0.05). התוצאות מצביעות על כך ש-LLF עשוי להועיל בטיפול ב-DN.
הערכה פתולוגית של LLF בטיפול בעכברים עם DN
בעקבות צביעת HE, קבוצת הביקורת הראתה מבני גלומרולוס ברורים ברקמת הכליה. לעומת זאת, קבוצת מודל ה-DN הראתה pyknosis גרעיני והיפרכרומזיה בגלומרולוס, יחד עם חדירה של תאי דלקת סביב הגלומרולוס, בהשוואה לקבוצה הנורמלית. טיפול ב-LLF שיפר את הנזק הפתולוגי בכליות של עכברי db/db (Figure 9E).
ניתוח RT-PCR של ביטוי סמנים ביולוגיים מועמדים בעכברי DN
בעקבות ההקמה המוצלחת של מודל עכברי ל-DN והבחנה בשיפור משמעותי בתסמינים בעקבות טיפול ב-LLF, נעשה שימוש ב-RT-qPCR כדי לנתח את השינויים בסמנים ביולוגיים מועמדים. בהשוואה לקבוצת הביקורת, קבוצת ה-DN הראתה ביטוי מופחת משמעותית של CAT ו-MAOA (P < 0.05 או P < 0.01). לעומת זאת, קבוצת הטיפול הראתה ביטוי גבוה משמעותית של CAT ו-MAOA בהשוואה לקבוצת ה-DN (P < 0.05). עם זאת, לא נצפו הבדלים מובהקים סטטיסטית בביטוי של MAOB ו-FABP1 בין הקבוצות (איור 9F-I).
זמינות נתונים
מאגרי נתונים של ביטוי גנים שנותחו במחקר זה זמינים לציבור ב-Gene Expression Omnibus (GEO) תחת מספרי גישה GSE142025 ו-GSE96804. סקריפטי ה-R ששימשו לניתוחים הביואינפורמטיים, יחד עם נתוני המקור הניסויים (סוכר בדם, מיקרואלבומין בשתן ונתוני RT-qPCR), מסופקים ב-קובץ משלים 1. כל שאר מאגרי המידע, התוכנות ומשאבי הרשת ששימשו במחקר זה רשומים ב-טבלת החומרים.
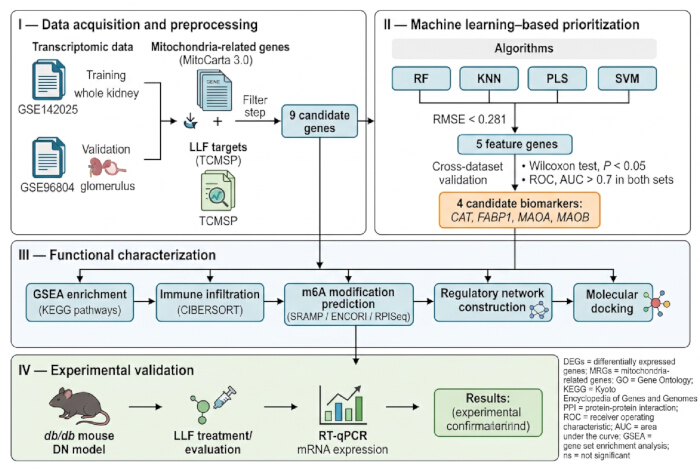
איור 1: זרימת העבודה של המחקר. מאגרי נתונים טרנסקריפטומיים, גנים הקשורים למיטוכונדריה ומטרות חזויות של Ligustri Lucidi Fructus שולבו כדי לזהות גנים מועמדים. לאחר מכן נעשה שימוש בארבעה אלגוריתמים של למידת מכונה כדי לתעדף גנים מאפיינים, ולאחר מכן בוצעו תיקוף בין-מאגרי נתונים, אפיון תפקודי ותיקוף ניסויי בעכברי db/db. קיצורים: DN = diabetic nephropathy; DEGs = differentially expressed genes; MRGs = mitochondria-related genes; LLF = Ligustri Lucidi Fructus; RF, random forest; KNN = k-nearest neighbor; PLS = partial least squares; SVM = support vector machine; RMSE = root mean square error; GSEA = gene set enrichment analysis; RT-qPCR = reverse transcription quantitative polymerase chain reaction. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
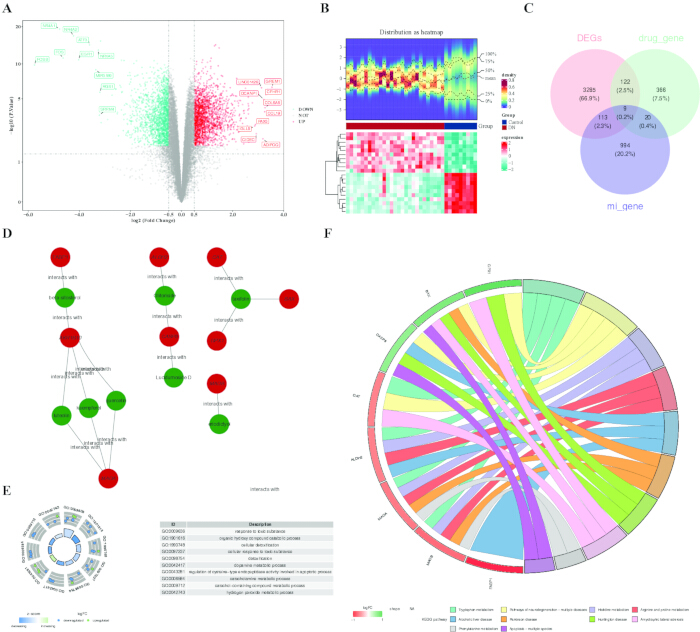
איור 2: סריקה ואפיון תפקודי של גנים מועמדים לטיפול ב-DN באמצעות LLF. (A) תרשים Volcano המציג גנים בעלי ביטוי Differentially expressed בין דגימות DN לדגימות ביקורת ב-GSE142025. (B) מפת חום (Heatmap) של 10 הגנים בעלי הביטוי הגבוה ביותר (upregulated) ו-10 הגנים בעלי הביטוי הנמוך ביותר (downregulated) המדורגים לפי |log2FC|. (C) דיאגרמת ונ המראה את החיתוך בין DEGs, MRGs וגנים שהינם מטרות חזויות של LLF. (D) רשת של רכיבים פעילים וגנים מועמדים. (E) ניתוח העשרה של Gene Ontology לגנים המועמדים. גובה העמודה מייצג את מובהקות ההעשרה, וערך ה-z-score מצביע על הכיוון החזוי של הבקרה התפקודית. (F) ניתוח העשרה של מסלולי Kyoto Encyclopedia of Genes and Genomes עבור הגנים המועמדים. קיצורים: DN = diabetic nephropathy; LLF = Ligustri Lucidi Fructus; DEGs = differentially expressed genes; MRGs = mitochondria-related genes; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
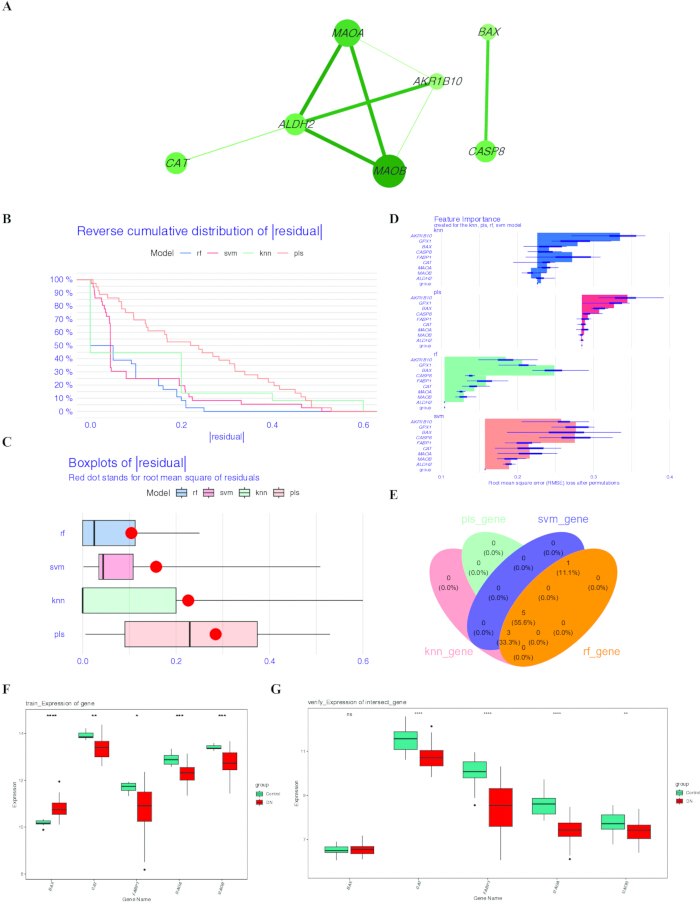
איור 3: זיהוי סממנים ביולוגיים מועמדים המבוס על למידה חישובית (Machine-learning). (A) רשת אינטראקציית חלבון-חלבון של חלבונים המקודדים על ידי הגנים המועמדים. (B) התפלגות מצטברת הפוכה של שאריות עבור מודלי RF, KNN, PLS ו-SVM. (C) תרשימי קופסה המראים את התפלגות השאריות של ארבעת המודלים; הנקודה האדומה מציינת את שורש ממוצע הריבועים של השגיאה (RMSE). (D) חשיבות גנים מועמדים המבוססת על RMSE על פני ארבעת מודלי הלמידה החישובית. (E) חיתוך של גני מאפיינים העומדים בקריטריון RMSE < 0.281 בכל ארבעת המודלים. (F,G) ביטוי של גני המאפיינים שנבחרו ב-GSE142025 וב-GSE96804, בהתאמה. קיצורים: RF = random forest; KNN = k-nearest neighbor; PLS = partial least squares; SVM = support vector machine; RMSE = root mean square error. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
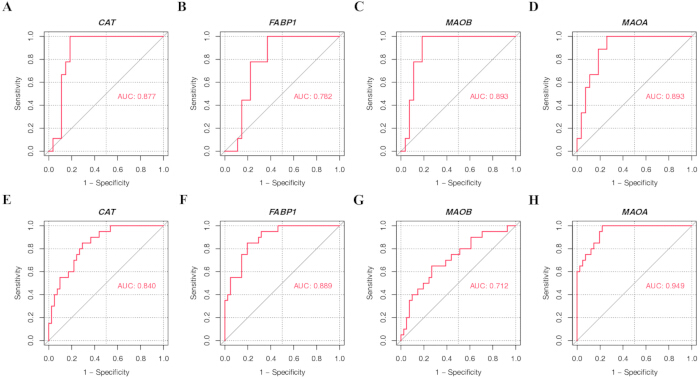
איור 4: עקומות מאפייני תפעול של מקלט (ROC) עבור ארבעת הביומרקרים המועמדים. עקומות ROC עבור CAT, FABP1, MAOB, ו-MAOA בסט נתוני האימון (A-D) GSE142025 ובסט נתוני האימות (E-H) GSE96804. ה-AUC מייצג את השטח תחת עקומת מאפייני התפעול של המקלט. קיצורים: ROC = receiver operating characteristic; AUC = area under the curve. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
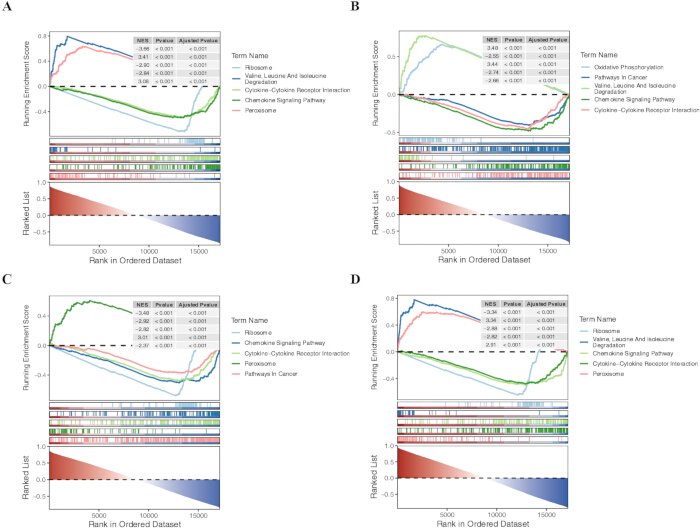
איור 5: ניתוח העשרה של קבוצות גנים עבור ביומרקרים מועמדים. GSEA המציג מסלולי KEGG המועשרים באופן מובהק הקשורים ל-(A) CAT, (B) FABP1, (C) MAOA, ו-(D) MAOB במערך הנתונים GSE142025. קיצורים: GSEA = gene set enrichment analysis; KEGG = Kyoto Encyclopedia of Genes and Genomes. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
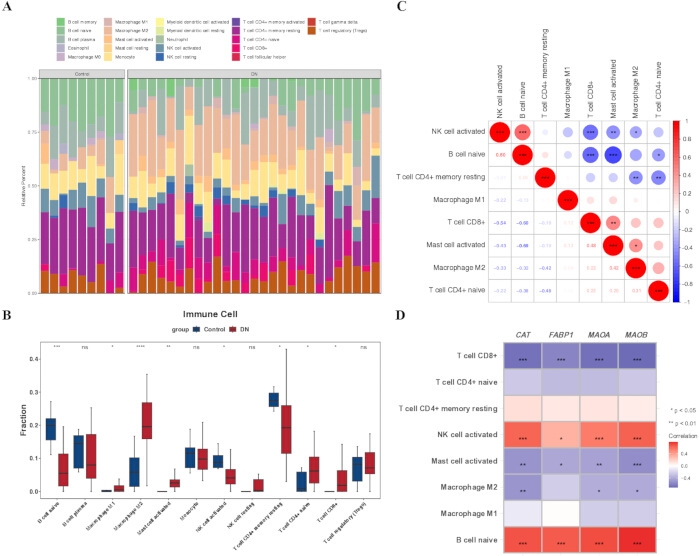
איור 6: חדירה של תאי מערכת החיסון והקשר שלה לסמנים ביולוגיים מועמדים ב-DN. (A) פרופורציות יחסיות של 2 סוגי תאי חיסון שהוערכו באמצעות CIBERSORT בדגימות DN ובדגימות ביקורת. (B) השוואה של פракציות תאי חיסון השונות באופן מובהק בין קבוצות ה-DN וקבוצות הביקורת. (C) מטריצת מתאם בין סוגי תאי החיסון בעלי השפעות השונות. (D) מתאמי Spearman בין הביטוי של CAT, FABP1, MAOA, ו-MAOB לבין סוגי תאי החיסון בעלי השפעות השונות. קיצורים: DN = diabetic nephropathy. נא ללחוץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
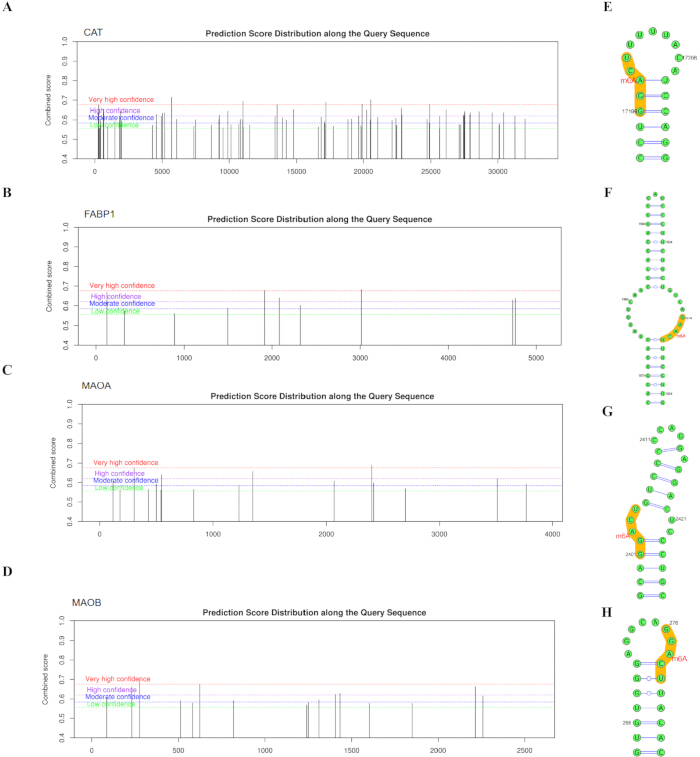
איור 7: אתרי מודיפיקציית m6A ומבני RNA משניים חזויים של תמלילי ביומרקרים מועמדים. אתרי מודיפיקציית m6A חזויים ב-(A) CAT, (B) FABP1, (C) MAOA, ו-(D) MAOB. מבני RNA משניים חזויים המראים אזורים בעלי ביטחון גבוה הקשורים ל-m6A של (E) CAT, (F) FABP1, (G) MAOA, ו-(H) MAOB. אזורים המודגשים בצהוב מצביעים על אזורי הרצף החזויים המכילים אתרי מודיפיקציית m6A. קיצורי מילים: m6A = N6-methyladenosine. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
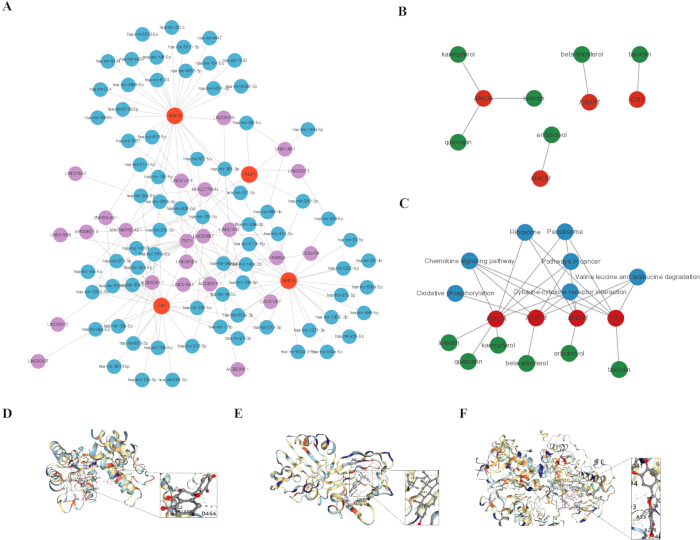
איור 8: רשתות בקרה ועגינה מולקולרית (molecular docking) של רכיבים פעילים פוטנציאליים של LLF. (A) רשת בקרה חוזה של lncRNA–miRNA–mRNA המערבת את הביומרקרים המועמדים. (B) רשת של רכיבים פעילים פוטנציאליים של LLF וביומרקרים מועמדים. (C) רשת של רכיב פעיל–ביומרקר–מסלול המבוססת על תוצאות GSEA. (D-F) קונפורמציות עגינה מולקולרית חוזות של (D) CAT עם taxifolin, (E) FABP1 עם beta-sitosterol, ו-(F) MAOB עם eriodictyol. קיצורים: LLF = Ligustri Lucidi Fructus; lncRNA = long noncoding RNA; miRNA = microRNA; GSEA = gene set enrichment analysis. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
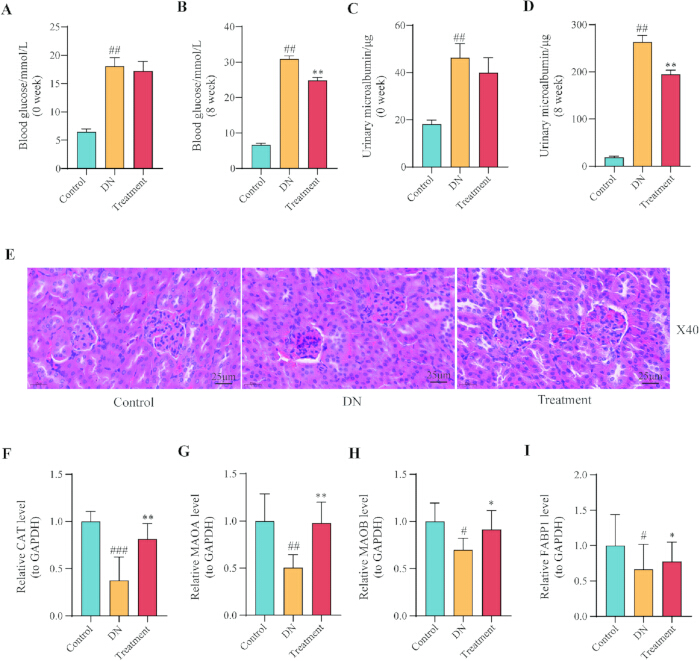
איור 9: השפעות הטיפול ב-LLF על מדדים ביוכימיים, היסטופתולוגיה כלייתית וביטוי של ביומרקרים מועמדים בעכברים מסוג db/db. (A,B) רמות גלוקוז בדם בקו הבסיס ובשבוע 8, בהתאמה. (C,D) רמות מיקרואלבומין בשתן בקו הבסיס ובשבוע 8, בהתאמה. (E) חתכי כליה מייצגים הצבועים בהמטוקסילין ואאוזין מקבוצות הביקורת (Control), ה-DN וקבוצת הטיפול (Treatment) (הגדלה, ×40; סרגל קנה מידה = 25 µm). (F-I) רמות ביטוי יחסיות של mRNA כלייתי עבור Cat, Maoa, Maob, ו-Fabp1, בהתאמה, שנמדדו ב-RT-qPCR. #P < 0.05, ##P < 0.01, ו-###P < 0.01 לעומת קבוצת הביקורת; *P < 0.05, **P < 0.01, ו-***P < 0.01 לעומת קבוצת ה-DN. קיצורים: LLF = Ligustri Lucidi Fructus; DN = נפרופתיה סוכרתית; RT-qPCR = תגובת שרשרת פולימראז כמותית עם שעתוק הפוך. אנא לחץ כאן להצגת גרסה מוגדלת של איור זה.
| primer | sequences |
| CAT F | TCACTGACGAGATGGCACAC |
| CAT R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| MAOB F | GCACTGAAACAGCCTCACAC |
| MAOB R | TCGTGCAGGGACATCCAAAG |
| MAOA F | ACTTACCCATTCCGTGGTGC |
| MAOA R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
טבלה 1: רצפי פריימרים ששימשו לניתוח RT-qPCR של רקמות כליה בעכבר. קיצורים: F = פריימר קדמי; R = פריימר אחורי; RT-qPCR = תגובת שרשרת פולימראז כמותית עם שעתוק הפוך.
| מזהה מולקולרי | שם המולקולה | OB (%) | DL | מספר המטרה |
| MOL0358 | בטא-סיטוסטרון | 36.91 | 0.75 | 100 |
| MOL0042 | קמפרוול | 41.88 | 0.24 | 103 |
| MOL04576 | טקסיפולין | 57.84 | 0.27 | 92 |
| MOL05146 | לוצידומוסיד D | 48.87 | 0.71 | 104 |
| MOL05147 | לוסידומוסיד D_qt | 54.41 | 0.47 | 0 |
| MOL05169 | (20S)-24-ene-3,20-diol-3-acetate | 40.23 | 0.82 | 0 |
| MOL05190 | פריודיקטיול | 71.79 | 0.24 | 101 |
| MOL05195 | סירינגארזינול דיגלוקוזיד_qt | 83.12 | 0.8 | 0 |
| MOL05209 | לוסידוסקולין | 30.11 | 0.75 | 105 |
| MOL0521 | אוליטוריסיד (Olitoriside) | 65.45 | 0.23 | 100 |
| MOL05212 | אוליטוריסיד_qt | 103.23 | 0.78 | 0 |
| MOL006 | לוטאולין | 36.16 | 0.25 | 102 |
| MOL0098 | קוורצטין | 46.43 | 0.28 | 103 |
טבלה 2: שלושה-עשר רכיבים פעילים של Ligustri Lucidi Fructus שזוהו באמצעות מאגר הנתונים TCMSP. קיצורים: OB = זמינות ביולוגית経 פומית; DL = דמיון לתרופה.
| mRNA | חלבון | תדר רדיו (RF) | מכונה וקטורית תומכת (SVM) |
| סריקת CT | AQR | 0.7 | 0.98 |
| חתול | RBM2 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAOB | TIA1 | 0.85 | 0.89 |
טבלה 3: אינטראקציות חזויות בין ארבעה mRNA של סמנים ביולוגיים מיטוכונדריאליים לבין חלבונים קושרים RNA הקשורים ל-m6A. CAT, FABP1, MAOA, ו-MAOB מציינים mRNA של סמנים ביולוגיים אנושיים; AQR, RBM2, SF3A3, IGF2BP2, IGF2BP3, ו-TIA1 מציינים חלבונים קושרים RNA. ציוני RF ו-SVM > 0.5 מעידים על אינטראקציות RNA-חלבון חזויות. קיצורים: RF = random forest; SVM = support vector machine.
קובץ נלווה 1. סקריפטים של ביואינפורמטיקה ונתוני מקור ניסיוניים. ארכיון זה מכיל את סקריפטי ה-R ששימשו לעיבוד נתונים, ניתוח ביטוי דיפרנציאלי, העשרה פונקציונלית, למידת מכונה, ניתוח עקומת ROC (receiver operating characteristic), ניתוח העשרת קבוצות גנים (GSEA), ניתוח מתאם Spearman וניתוח חדירת תאי חיסון בשיטת CIBERSORT, יחד עם נתוני המקור עבור ניסויי גלוקוז בדם, מיקרואלבומין בשתן ו-RT-qPCR. אנא לחץ כאן כדי להוריד קובץ זה.
דיון
LLF היא תרופה נפוצה מהרפואה הסינית המסורתית, המשמשת בעיקר לחיזוק הכבד והכליות ולטיפול בסוכרת ובסיבוכיה. נכון להיום, אין תרופות או טיפולים ספציפיים עבור DN, והניהול של המחלה נשען בעיקר על טיפולים להורדת רמות הסוכר (hypoglycemic), הורדת רמות השומנים (hypolipidemic) והורדת לחץ הדם (antihypertensive)30,31,32. עם זאת, טיפולים אלו יכולים להאט את התקדמות הנזק הכליתי רק בחלק קטן מהמטופלים3. הוכח כי LLF מפעילה השפעות מגנות על הכליות במודלים של חולדות עם DN על ידי תיקון הפרעות במטבוליזם של גלוקוז ושומנים והפחתת עקה חמצונית (oxidative stress)34. ראוי לציין כי כאיבר בעל תכולת מיטוכונדריה וצריכת חמצן גבוהות במיוחד, דינמיקה מיטוכונדריאלית לא תקינה בכליות ממלאת תפקיד מרכזי בפתוגנזה של DN35. מחקר זה חושף מנגנון חדש שבאמצעותו LLF עשויה להשפיע על התפקוד המיטוכונדריאלי דרך סמנים ביולוגיים מועמדים ספציפיים (CAT, FABP1, MAOB, ו-MAOA) בטיפול ב-DN.
מחקרים קודמים הצביעו על כך שקטלאז (CAT), חלבון מאבס חומצות שומן 1 (FABP1), מונואמין אוקסידאז B (MAOB) ומונואמין אוקסידאז A (MAOA) מעורבים ב-DN בדרגות משתנות. CAT מעורב במערכת ההגנה נגד חמצון, המגנה על הכליה מפני נזקים הנגרמים מעקה חמצוני36. CAT, אנזים נוגד חמצון מרכזי בגוף, משתתף בבקרת ההתרחשות וההתקדמות של DN על ידי ויסות תהליכים פיזיולוגיים הקשורים למיטוכונדריה37. CAT מקטליז באופן ספציפי את הפירוק של מימן פראוקסיד (H₂O₂) למים וחמצן, ובכך מנקה ביעילות ROS שמקורו במיטוכונדריה. פעולה זו מפחיתה נזקים למבנה ולתפקוד המיטוכונדריאל הנגרמים מעקה חמצוני, שומרת על יציבות פוטנציאל ממברנת המיטוכונדריה ועל יעילות הפספורילציה החמצונית, ובכך מקלה על פגיעה בתאי כליה המושרה על ידי רמות גלוקוז גבוהות ומעכבת את התקדמות ה-DN38. יתרה מכך, דה-רגולציה (downregulation) של ביטוי CAT מובילה לניקוי לא מספיק של ROS מיטוכונדריאלי, מה שמחמיר את הפרגמנטציה של המיטוכונדריה ואת שיבוש הקריסטה. דבר זה מעכב את איחוי המיטוכונדריאלי תוך קידום ביקוע, ובכך פוגע עוד יותר בדינמיקה המיטוכונדריאלית. כתוצאה מכך, תאים פנימיים כגון תאי מזנגיום ופודוציטים מפתחים הפרעות מטבוליות, ובכך מאיצים את הפיברוזיס של רקמת הכליה39.
FABP1, כחבר במשפחת החלבונים קושרי חומצות השומן, משתף בעיקר בהובלה, בחילוף חומרים ובסיגנלינג תוך-תאי של חומצות שומן בעלות שרשרת ארוכה. הוכח כי ביטויו החריג קשור באופן הדוק למחלות מטבוליות שונות ולפגיעה כלייתית, והוא ממלא תפקיד רגולטורי מכריע בהתפתחות ובהחמרה של נפת סוכרת (DN)40. מחקרים מצביעים על כך ש-FABP1 מווסת את התקדמות ה-DN על ידי שיבוש מטבוליזם של ליפידים. בסוכרת, ביטוי חריג של FABP1 משבש את הובלת חומצות השומן ואת חילוף החומרים שלהן. חומצות שומן חופשיות רבות מדי ומטבוליטים שלהן מצטברים ברקמת הכליה, גורמים לנזק ישיר לתאי אנדותל גלומרולריים ולתאי אפיתל תובוליים, ובכך מחמירים את הדלקת והפיברוזיס הכליתיים41. במקביל, FABP1 מחמיר את הפגיעה ברקמת הכליה על ידי תיווך של סטרס חמצוני ונזק מושרה היפוקסיה. הפרשתו בשתן עשויה לעלות לפני הופעת רמות חריגות של אלבומין בשתן, מה שמהווה מטרה חדשה לסריקה ואבחון מוקדמים של DN41,42. יתרה מכך, FABP1 ממלא תפקיד רגולטורי מרכזי במטבוליזם של חומצות שומן במיטוכונדריה43. מחקרים מצביעים על כך שביטוי מוגבר (upregulation) של FABP1 משפר משמעותית את יעילות הובלת חומצות השומן אל תוך המיטוכונדריה, מגביר את פעילות ה-β-oxidation המיטוכונדריאלית ואת פעילות אנזימי מחזור חומצה טריקרבליטית, ובכך משפר את מטבוליזם האנרגיה התאי4. עם זאת, המנגנון שבו FABP1 משפיע על הפתוגנזה של DN באמצעות מעורבותו בתהליכים הקשורים למיטוכונדריה נותר לא ברור. במצבים אחרים הקשורים ל-DN, MAOB ו-MAOA, כאנזימים המעורבים במטבוליזם של מוליכים עצביים, נקשרו להתקדמות ה-DN, ותרמו לחוסר איזון במצב החמצון-חיזור (redox) של הרקמה. מחקר זה מאשר עוד את תפקידם המכריע של ארבעת הביומארקרים המועמדים הללו ב-DN, כאשר רמות הביטוי שלהם פחתו בקבוצת ה-DN. ההשערה היא שוויסות הביטוי של ביומארקרים מועמדים אלה עשוי לסייע בהפחתת הדלקת והסטרס החמצוני ב-DN.
על בסיס ניתוח העשרה של GSEA, ארבעה סמנים ביולוגיים מועמדים—CAT, FABP1, MAOB, ו-MAOA—הועשרו במסלולים מרובים, כולל מסלול השליח הכימי (chemokine), אינטראקציית ציטוקין-רספטור לציטוקינים, ומסלולי פרוקסיזום. כימוקינים הם מרכיבים מרכזיים בתגובה החיסונית המקדמים דלקת. מסלול הפרוקסידאז (POD) קשור לעקה חמצונית45. דווח כי Baicalin מקל על DN על ידי הפחתת עקה חמצונית ודלקת, כאשר המנגנון שלו עשוי לכלול הפעלה של מסלול השליח האנטי-חמצוני המתווך על ידי NrF2 ועכבה של מסלול הדלקת המתווך על ידי MAPK45. יתרה מכך, הפרה של FABP1 במטבוליזם של ליפידים עשויה לתרום לסקלרוזה גלומרולרית ופיברוזיס אינטרסטיציאלי ב-DN9. ממצאים אלה מרמזים כי לסמנים הביולוגיים המועמדים תפקיד קריטי בתהליכי הדלקת והעקה החמצונית ב-DN. התמקדות בסמנים ביולוגיים מועמדים אלו כדי לווסת את המסלולים שהם משפיעים עליהם עשויה להפחית את הדלקת והעקה החמצונית הקשורות ל-DN, ובכך להקל על התקדמות המחלה.
ניתוח ביואינפורמטיקה הראה שרמות החדירה של תתי-אוכלוסיות חיסוניות, כגון תאי CD8+ T, השתנו באופן משמעותי ברקמת כליה של DN, והעלייה בתאי CD8+ T הייתה במתאם שלילי ומובהק עם הביטוי של ארבעה ביומרקרים מועמדים הקשורים למיטוכונדריה (CAT, FABP1, MAOB, MAOA). תחזיות חישוביות אלו עולות בקנה אחד עם תוצאות התצפית הפתולוגית של ניסויי בעלי חיים: חתכי צביעת HE של כליות עכברים מקבוצת המודל של DN הראו חדירה ברורה של תאי דלקת מסביב לגלומרולי; לאחר התערבות ב-LLF, חדירת תאי דלקת כלייתיים בקבוצת הטיפול פחתה באופן משמעותי, והנזק הפתולוגי השתפר. הדבר מרמז כי עלייה בחדירת תאי דלקת היא מאפיין מרכזי של פגיעה כלייתית ב-DN, ו-LLF עשוי למלא תפקיד מגונן על ידי ויסות חדירה חיסונית. ממצא זה עקבי עם מחקרים קודמים: חדירה של תאי CD8+ T קשורה להתפתחות של DN, ועיכוב של תגובתם יכול להקל על המחלה46, דבר המחמיר גם פגיעה כלייתית בנפרופתיה מ-Adriamycin47. בנוסף, מגוון של תאי מערכת החיסון, כגון תאי B, מקרופאגים M1 / M2 ותאי NK, משתנים בפתולוגיה של DN48. הביומרקר CAT עשוי להשפיע על תפקודם של תאי מערכת החיסון ב-DN49, ו-MAOA עשוי גם הוא להשפיע על המיקרוסביבה החיסונית על ידי ויסות קיטוב מקרופאגים. תוצאות אלו מעידות כי ההשפעה המגוננת על הכליות של LLF קשורה קשורה באופן הדוק לוויסות של חדירה חיסונית לא תקינה, כולל תאי CD8+ T, ובכך להפחתת נזק דלקתי. המתאמים השליים בין ארבעת הביומרקרים המועמדים לבין תאי CD8+ T ותאי mast מופעלים מרמזים כי גנים אלו עשויים לווסת את המיקרוסביבה החיסונית של הכליה. ביטוי של CAT נקשר לקיטוב מקרופאגים ופעילות של תאי T ברקמות מטבוליות. עם זאת, הערכות CIBERSORT שלנו נגזרות מתסריפטורומים של רקמת כליה כוללת (bulk), אשר אינם יכולים להבחין בין תתי-סוגים של תאי מערכת החיסון החודרים למדורי הגלומרול לעומת מדורי ה-tubulointerstitial. יש לפרש את המתאמים שנצפו כקשרים המייצרים היפותזה ולא כראיה לוויסות חיסוני סיבתי. מחקרים עתידיים המשתמשים באימונוהיסטוכימיה מולטיפלקס או ב-single-cell RNA-seq נדרשים כדי למקם אינטראקציות אלו בין תאי מערכת החיסון לביומרקרים.
מחקרים קודמים דיווחו על סמנים ביולוגיים הקשורים למיטוכונדריה ב-DN, כולל OPA1, MFN2, DRP1, PGC-1α ו-SOD2. הממצאים שלנו לגבי CAT ו-MAOA משלימים את הספרות הקיימת על ידי הדגשת מסלולי פרוקסיסומים ומונואמין אוקסידאז שקיבלו פחות תשומת לב בהקשר המיטוכונדריאלי של DN. ראוי לציין כי בעוד ש-SOD2 ו-GPX1 הם אנזימים קלאסיים לסילוק ROS, CAT פועל באופן ספציפי על H2O2 פרוקסיסומלי, מה שמרמז על מדור תת-תאי נפרד של בקרה על עקה חמצונית.
כפלבנואיד טבעי, Taxifolin (TA) הראה הפחתה משמעותית ברמות הגלוקוז בדם, חומצת שתן, קריאטינין ואינסולין בנסיוב של חולדות עם סוכרת, ובמקביל הפחית שינויים פתולוגיים בכליות של בעלי חיים אלו50. β-sitosterol עשוי לשפר DN בעקיפין על ידי ויסות מאזן הליפידים והפעלת השפעות אנטי-דלקתיות. רכיבי ה-β-sitosterol בתשבץ Huangqi Gegen (HGD) משתפים במסלולים הקשורים ל-DN, תוך מיקוד במולקולות כגון Vascular Endothelial Growth Factor A (VEGFA) ו-Interleukin-6 (IL-6). השפעות אלו כוללות פעולות אנטי-דלקתיות, אנטי-אפופטוטיות, נוגדות חמצון ואוטופגיה, אשר מפחיתות פיברוזיס כלייתי ונזק לקליפת הכליה ומשפרות את תפקוד הכליות, ובסופו של דבר מעכבות את התקדמות ה-DN51. Eriodictyol, פלבנואיד טבעי נוסף, הראה הגנה מפני שבץ איסכמי (IS) על ידי איזון של עקה חמצונית ודלקת52. למרות שישנם מחקרים מוגבלים על eriodictyol בהקשר של DN, ובהינתן הקשר של המחלה לדלקת ועקה חמצונית, קיימת השערה כי הוא עשוי להקל על DN באמצעות מנגנונים דומים. תחזיות תרופתיות במחקר זה מצביעות גם על כך של-Taxifolin, β-sitosterol ו-eriodictyol יש השפעות טיפוליות פוטנציאליות ב-DN. עגינה מולקולרית (Molecular docking) חוזה קונפורמציות ואפיניות קישור אפשריות, אך אינה מבססת מעורבות של מטרה in vivo, זמינות ביולוגית או פעילות פרמקולוגית. יש לפרש תוצאות אלו כיוצרות היפותזות ולא כמאששות אותן.
מחקרים קודמים בפרמקולוגיה של רשתות על נפתופתיה סוכרתית (DN) התמקדו במידה רבה במסלולי איתות בודדים (למשל, AGE-RAGE, PI3K-AKT ו-MAPK), ולא התחשבו בתפקוד לקוי של המיטוכונדריה או השתמשו בלמידה חישובית רב-מודלית לתעדוף של סמנים ביולוגיים. המחקר שלנו מציג שלושה חידושים מתודולוגיים וביולוגיים: (1) שילוב של גנים המבטאים ביטוי Differentially Expressed Genes (DEGs) לכל אורך הטרנסקריפטום עם קבוצות גנים מיטוכונדריאליים וחיזויי מטרה של תרופות; (2) יישום של ארבעה מודלים נפרדים של למידה חישובית עם תיקוף בין-נתונים (cross-dataset validation) לצורך תעדוף מועמדים חסונים; ו-(3) זיהוי של מסלולי פרוקסיסומים (CAT) ומוןואמין אוקסידאז (MAOA/MAOB) — שנחקרו פחות בהקשרים מיטוכונדריאליים של DN — כצירים טיפוליים פוטנציאליים.
העדר שינויים בעלי מובהקות סטטיסטית בביטוי של MaoB ו-Fabp1 בכליה של העכבר עשוי לנבוע ממספר גורמים. ראשית, שני מאגרי הנתונים של Gene Expression Omnibus (GEO) ששימשו לתעדוף המועמדים נגזרו מדגימות של כליה אנושית (כליה שלמה וגלומרולס, בהתאמה), בעוד שניסוי החיות שלנו השתמש ברקמת כליה של עכבר. הבדלים בין-מיניים בבקרת גנים עשויים להשפיע על רמות הביטוי הבסיות ועל התגובה לתרופה. שנית, גודל המדגם הקטן יחסית (n = 6 לכל קבוצה) עשוי היה להגביל את העוצמה הסטטיסטית לזיהוי גדלי אפקט בינוניים. שלישית, הרקמה נאספה 8 שבועות לאחר הטיפול, דבר שעשוי שלא ללכוד את החלון האופטימלי לזיהוי שינויים טרנסקריפטומיים ב-MaoB וב-Fabp1, שכן גנים אלו עשויים להיות מווסתים ברמת החלבון או הפעילות ולא ברמת ה-mRNA. רביעית, הטרוגניות של הרקמה — בין הכליה השלמה למדורים ספציפיים — עשויה לתרום לפערים. נדרשת בדיקה מעמיקה יותר של אפשרויות אלו.
מחקר זה השתמש בגישה אינטגרטיבית של ביו-אינפורמטיקה ולמידת מכונה כדי לזהות את CAT, FABP1, MAOA ו-MAOB כגנים מיטוכונדריאליים פוטנציאליים עבור LLF ב-DN. ניסויי In vivo אישרו כי LLF מעלה באופן משמעותי את הביטוי של CAT ו-MAOA ברקמת הכליה, מה שמעיד על כך שגנים אלו הם מטרות מבטיחות לחקירה מכניסטית וטיפולית נוספת. לעומת זאת, MAOB ו-FABP1 הראו מגמות שאינן מובהקות באותו כיוון, דבר המדגיש את חשיבות התיקוף הניסויי בעת תיעדוף תחזיות חישוביות. ממצאים אלו מספקים בסיס למחקרים עתידיים לבחינת אסטרטגיות טיפוליות הקשורות למיטוכונדריה ב-DN.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
ברצוננו להביע את תודתנו הכנה לכל האנשים והארגונים שתמכו וסייעו לנו לאורך מחקר זה. מחקר זה נתמך על ידי National Natural Science Foundation of China (מספרים 81973486 ו-82173974), פרויקטי המחקר של מינהל הרפואה הסינית המסורתית של מחוז Shanxi (מספר 2024ZYYA021), פרויקט הדיסציפלינה של אוניברסיטת Shanxi לרפואה סינית (מספר 2026XK24), ופרויקט קרן המחקר המדעי של אוניברסיטת Shandong לרפואה סינית (מספר KYZK2024Q13). אנו מודים ל-Qinqing Li, פרופסור חבר באוניברסיטת Shanxi לרפואה סינית, שאימת את החומר הבוטני.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| תמיסת קיבוע רקמות של 4% פראפורמלהיד | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| אתנול מוחלט | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| מד סוכר בדם | Sinocare Inc. | GA-3 | |
| ערכה לבדיקת חנקן שלוריאה בדם (BUN) | המכון להנדסה ביו-רפואית נאנג'ינג ג'יאנוויי (Nanjing Jianwei Bioengineering Institute) | C03-2-1 | |
| עכברי C57BLKS/J db/db | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-013 | |
| עכברי C57BLKS/J db/m | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-013 | |
| צנטריפוגה | Hunan Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| כלורל הידרט | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | <קישור ל-"https://cytoscape.org/">https://cytoscape.org | ||
| מאגר נתונים עבור m6חיזוי מודיפיקציה | <קישור ל-"http://www.cuilab.cn/sramp/">http://www.cuilab.cn/sramp/ | ||
| מאגר מידע של רכיבים פעילים ברפואה סינית מסורתית | <קישור ל-"http://sm.nwsuaf.edu.cn/lsp/tcmsp.php">http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| Gene Expression Omnibus (GEO) | <קישור ל-"https://www.ncbi.nlm.nih.gov/geo/">https://www.ncbi.nlm.nih.gov/geo/ | ||
| ערכה לצביעת המטוקסילין ואאוזין (HE) | Servicebio | C0105S | |
| צנטריפוגה מהירה | Labnet, ארה"ב | C250-R-230V | |
| כלי לניתוח חדירה חיסונית | <קישור ל-"https://cibersort.stanford.edu/">https://cibersort.stanford.edu/ | ||
| Ligustri Lucidi Fructus | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| מערבל מגנטי | מפעל המכשירים ג'ינטאן ז'ונגטיאן, ג'יאנגסו (Jintan Zhongtian Instrument Factory, Jiangsu) | T8-1 | |
| מיקרוסקופ | Olympus | BX53 | |
| מיקרוטום | Leica, גרמניה | RM 2016 | |
| ספקטרופוטומטר לנפחים קטנים | Hangzhou Aosheng Instrument Co., Ltd. | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | <קישור ל-"https://www.broadinstitute.org/mitocarta">https://www.broadinstitute.org/mitocarta | ||
| חבילת R לפירוש מודלים | <קישור ל-"https://cran.r-project.org/package=DALEX">https://cran.r-project.org/package=DALEX | ||
| פלטפורמה לעגינה מולקולרית | <קישור ל-"http://clab.labshare.cn/cb-dock/">http://clab.labshare.cn/cb-dock/ | ||
| ערכה לביצוע ELISA למיקרואלבומינוריה בעכברים | בדיקה מדויקת | EM0632 | |
| פס סטריפ לבדיקת מיקרואלבומינוריה בעכברים | Guangzhou Huadu Gaoerbao Biotechnology Co., Ltd. | 20211203 | |
| ערכה לביצוע בדיקת ELISA למדידת קריאטינין בסרום של עכבר | Abmart | AB590A | |
| MSigDB | <קישור ל-"https://www.gsea-msigdb.org/gsea/msigdb/">https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| מעגל תרמי ל-PCR | Roche | Roche LightCycler 480 | |
| תוכנת R (גרסה 4.2.2) + חבילות R | <קישור ל-"https://www.r-project.org / CRAN/Bioconductor">https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | <קישור ל-"https://www.rcsb.org/">https://www.rcsb.org | ||
| ערכה למיצוי RNA | Beijing Jumei Biotech Co., Ltd. | MF-036-01 | |
| RPISeq | <קישור ל-"http://pridb.gdcb.iastate.edu/RPISeq/">http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| ערכה ל-RT-qPCR | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| סלידרוסיד | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| ערכה לבדיקת קראטינין בסרום | מכון הביו-הנדסה נאנג'ינג ג'יאנווי (Nanjing Jianwei Bioengineering Institute) | C01-2-1 | |
| מתקן בעלי מעבדה SPF | אוניברסיטת Shanxi לרפואה סינית מסורתית | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| נא ספק את הטקסט באנגלית שברצונך לתרגם. | <קישור ל-"https://cn.string-db.org/">https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | <קישור ל-"http://sm.nwsuaf.edu.cn/lsp/tcmsp.php">http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| תחזי פיגן | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| אמבט ציפה לרקמות | וואוהאן ג'ונג'י (Wuhan Junjie) | JK-6 |
מקורות
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.