קטניות משתפות פעולה עם הקרקע חיידקים, היוצרים קשרי שורש שבהם החיידקים מקבעים חנקן אטמוספרי לשימוש הצמח. MicroCT מאפשר דימיון תלת-ממדי לא-הרסני של ארגון הרקמה, אזורי הבקטרואידים ואגדות הכליים של רקמה קשה ועמומה זו של קשרי השורש, ומספק יתרונות על פני טכניקות דימיון מסורתיות הדורשות חיתוך של הקשרים.
מאמר שיטה
דימות MicroCT בתלת-ממד של קשרי שורשים של Medicago sativa
* These authors contributed equally
במאמר זה
סיכום
תקציר
הקשר הסימביוטי בין הקטנית Medicago sativa לבין חיידקי הקרקע Sinorhizobium meliloti מוביל להיווצרותם של קשרי שורשים מקבעים מקבעי חנקן. שיטות הרסניות מסורתיות, הכוללות חיתוך בפרפין, חיתוך בוויברטום וחיתוך קריוגני, יושמו כדי להמחיש את האופן שבו החיידקים מאכלים את הקשרי השורשים, דבר המקשה מאוד על השגת מידע תלת-ממדי מהימן. גישות אלו משולבות לעיתים קרובות עם סימון פלואורסצנטי או צביעה, אשר עלולים להוסיף עקה המשפיעה על צמיחת הצמח ועל היווצרות הקשרי השורשים. ה-MicroCT הופיע ככלי מהיר, קל וחזק יחסית לביולוגיה של צמחים, המאפשר הדמיה לא-הרסנית של מאפיינים היסטולוגיים של צמחים בתלת-ממד (3D), ובכך נמנעים מארטפקטים הרסניים במהלך הכנת הדגימה ומובטחת שחזור תלת-ממדי ברמת דיוק גבוהה. בעוד ש-microCT יושם על קשרי שורשים של קטניות, חסר פרוטוקול מפורט ומבוסס המתעד את התהליך מקציר הצמח והכנת הדגימה ועד לסריקה והדמיה בתוכנה.
במחקר זה, אנו מציגים זרימת עבודה (workflow) של microCT שלב אחר שלב תוך שימוש ב-Medicago sativa כמודל. הפרוטוקול כולל חילוץ קשריים מהשורשים, קיבוע, הגברת ניגודיות (contrast enhancement), הרכבה, סריקה ושחזור תלת-ממדי. פרמטרים קריטיים המשפיעים על גורמים כגון איכות התמונה, שימור הרקמה והניגודיות מודגשים במדריך. באמצעות גישה זו, ניתן להמחיש את ארגון הרקמה הכללי, תאים מזוהמים בבקטרואידים ואגודות כלי דם בתלת-ממד ללא צורך בחיתוך פיזי של הקשריים. תהליך העבודה המתואר כאן מספק שיטה הניתנת לשחזור להדמיה ברזולוציה גבוהה ובאופן לא פולשני של קשרי שורשים טבעיים, וככל הנראה ניתן להתאימו למיני קטניות אחרים, ובכך הוא מציע לחוקרים כלי מעשי ללימוד מבנה הקשריים וארגון חיידקים בתוך הקשריים ב-3D.
מבוא
צמחים ממשפחת ה-Leguminosae (או Fabaceae), כגון Medicago sativa (אספסת), יוצרים קשר סימביוטי עם חיידקי קרקע מקבעים חנקן ממשפחת ה-Rhizobiaceae, כגון Sinorhizobium meliloti, מה שמוביל להתפתחות קשרי שורש. הצמח משחרר פלבונואידים כדי למשוך את החיידקים בתנאים של מחסור בחנקן. תהליך זה מפעיל את הביטוי של גורמי Nod בחיידקים הסימביוטיים, מה שמעורר את התכרבלות שערות השורש ויצירה עוקבת של תא זיהום המקיף את החיידקים1,2,3,4. חוט זיהום נוצר מחלק מוחלש של דופן התא, ויוצר צינור המתארך ומעביר את החיידקים דרך תא שערת השורש5. כאשר חוט הזיהום מגיע לקליפה הפנימית, סדרה של חלוקות תאים יוזמת את היווצרות איבר שורש מיוחד הנקרא קשר שורש1,2,5. לאחר מכן החיידקים מדביקים את תא הקשר וחיים באופן תוך-תאי, מוקפים על ידי ממברנת הסימביוזום בתוך התא. כאן, הצמח מספק פחמן וחומרי הזנה אחרים לחיידקים. בתמורה, החיידקים מקבעים חנקן עבור הצמח, והופכים חנקן אטמוספרי שאינו ניתן לניצול לאמוניה, צורה שניתנת לשימוש על ידי הצמח2,3,4. כך, קשר השורש מתפקד כמפעל ביולוגי חיוני לקיבוע חנקן, התומך בצמיחת הצמח גם בהיעדסות של דשני חנקן סינתטיים. תהליך זה של קיבוע חנקן ביולוגי הוא חשוב מבחינה כלכלית וסביבתית, כיוון שהוא מאפשר לקטניות לצמוח ללא דשנים סינתטיים6. יתרה מכך, חלק מהקטניות יוצרות קשרי שורש לא-קבועים (indeterminate) היוצרים אזורים מובחנים שבהם החיידקים עוברים התמיינות ומקבעים חנקן ביעילות רבה יותר4. לכן, חשוב להדמיות הן את החלק החיצוני והן את החלק הפנימי של הקשר (שם החיידקים תופסים פיזית תאי צמח בתוך הקשר) כדי לחקור את קיבוע החנקן הביולוגי בפירוט. עם זאת, מדובר באיבר אטום המלא בחלבון הצמחי לגהמוגלובין בעל גוון אדום, מה שהופך את שיטות ההדמיה המסורתיות למאתגרות.
טכניקות דימוי ששימשו בעבר היו הרסניות. חיתוך בפרפין, חיתוך בוויברטום וחיתוך בהקפאה שימשו להפקת חתכי רקמה, אך אלו משבשים את המצב הטבעי של הרקמה ומכניסים ארטיפקטים המסבכים שחזור תלת-ממדי (3D)6,7,8,9,10. שחזור מחתכי רקמה של קשרי שורשים הטמעים בפרפין בוצע בהצלחה, אך הוא משתמש בדגימות מיובשות ודורש למעלה מ-200 חתכים בודדים8. בחתכים בודדים ניתן לראות חלקים מהמערכת הווסקולרית, אך לא את האופן שבו הצרורות מתפצלות ועוטפות את הקשר. טכניקות שונות של סימון פלואורסצנטי וצביעה בוצעו על חתכי רקמה לפני מיקרוסקופיה קונפוקלית, אך אלו נוטות לסבול מהבעיות הבאות8,9,10: (i) רקמת קשרי שורשים של צמחים היא בעלת אוטופלואורסצנציה גבוהה, (ii) שיטות רבות דורשות הבהרה של הרקמה לפני הדימוי, (iii) צביעה פלואורסצנטית עלולה לגרום נזק לרקמת הקשר, iv) הדבקת צמחים בחיידקים המסומנים בחלבון פלואורסצנטי ירוק (GFP) יוצרת סטרס המשפיע הן על גדילת הצמח והן על היווצרות הקשרים, ו-v) קשרי שורשים טבעיים הם גדולים מדי מכדי שניתן יהיה לחתוך בקלות את הדגימה כולה5,11.
דימות באמצעות טומוגרפיה ממוחשבת (CT), הנפוץ בשימוש במסגרות רפואיות, משמש למטרות אבחנתיות וטיפוליות כאחד12,13. גרסה קטנה יותר של שיטה זו, מיקרו-טומוגרפיה של קרני X (MicroCT), היא טכניקת דימות המאפשרת ויזואליזציה תלת-ממדית (3D) לא-הרסנית של דגימות קטנות. בעוד שב-CT המכשיר מסתובב סביב הדגימה הגדולה, ב-microCT הדגימה הקטנה מסתובבתת בקרבת מקור קרני ה-X. דבר זה מאפשר רזולוציה גבוהה בהרבה. MicroCT יושם בביולוגיה התפתחותית של בעלי חיים, אך הוא התגלה גם ככלי מבטיח בביולוגיה של צמחים6,10,14,15,16,17,18,19. באופן משמעותי, microCT וטומוגרפיה של קרני X מבוססת סינכרוטרון שימשו באופן נרחב בפיזיולוגיה של צמחים כדי לחקור אמבוליזציה של xylem ולהצליב נתוני הערכה מבוססי דימות מול מדידות זרימה הידראולית קונבנציונליות20,21,22. מכיוון שהוא מדמה איברים שלמים בקנה מידה שאינו דורש חיתוך פיזי, microCT שומר על יחסים מרחביים לאורך כל הקשרית. באמצעות חומרי ניגודיות מתאימים, הוא מקיף מבנים ברמת הרקמה כגון צרורות כליים ואזורי זיהום, ויכול לחדור מעבר למגבלות פיזור האור של גישות אופטיות קונבנציונליות, דבר בעל ערך מיוחד עבור קשריות אטומות ואוטו-פלורסצנטיות. ניתן גם לסרוק דגימות שוב, לשלבן בתהליכי עבודה קורלטיביים לאחר עיבוד דגימות למיקרוסקופיה של אור או אלקטרונים, או לשמרן לניתוח עתידי. למרות שמספר מצומצם של מחקרים השתמשו ב-microCT וב-X-ray CT מבוסס סינכרוטרון כדי לחקור קשריות שורשים של סויה, אין תיעוד מפורט המכסה את התהליך המלא מקצירת הקשריות וצביגתן ועד לדימוי ושחזור, במיוחד עבור קשריות קטנות יותר כגון אלו של אלפאלפא6,14. ניגודיות של קרני X תלויה בצפיפות הרקמה, ורוב רקמי הצמחים הם בעלי צפיפות נמוכה ומחלישים את קרני ה-X באופן חלש. ללא חומר ניגודיות, לא ניתן להבחין בין הקשריות לרקע ב-microCT שולחני קונבנציונלי. השתמשנו בחומצה פוספוטנגסטית (PTA), צבע לא ספציפי הנקשר לחלבונים ולביומולקולות אחרות אשר הוכח כי הוא מייצר ניגודיות גבוהה ברקמת צמחים14.
מחקר זה מספק פרוטוקול מפורט ומדורג לצילום microCT של קשרי שורש בצמחי קטניות תוך שימוש באספסות כמודל, על גבי מערכת מעבדה קונבנציונלית המהווה חלופה נגישה יותר למיקרוסקופיית קרני רנטגן (XRM) ולפלטפורמות מבוססות סינכרוטרון6,14. זרימה זו כוללת הוראות ספציפיות לקציר קשרי השורש, קיבוע, צביעה, הגברת ניגודיות, עיגון, סריקה, שחזור תלת-ממדי ואנליזה (איור 1). בין שלבים אלו, אנו מספקים פרמטרים מפורטים כדי להבטיח עיגון יציב, שימור לחות וניגודיות טובה. בסופו של דבר, צינור העבודה של ה-microCT הוא שיטה הניתנת לשחזור המאפשרת ויזואליזציה לא-הרסנית ובשליפות גבוהות של מאפיינים היסטולוגיים תלת-ממדיים, כולל ארגון רקמות כללי, תפיסה של חיידקים בתאי הצומח, אזורי קיבוע חנקן מובחנים וצרורות כליים של קשרי שורש שלמים של אספסת במצבם הטבעי. אנו מאמינים כי פרוטוקול זה יהיה ניתן להתאמה למיני קטניות אחרים, ויספק לחוקרים שיטה מעשית לשמירה על שלמות הדגימה לצורך ויזואליזציה של המבנה והארגון התלת-ממדי של איבר שורש חשוב זה.
פרוטוקול
1. קציר וקיבוע של קשריות
- השתמש בסקאלפל (ראה טבלת חומרים) כדי לבצע חתך ישר דרך השורש משני צדדיו של הקשריר המבוקש, כך שהקשריר יישאר מחובר לשורש (איור 2).
- העבר שמונה עד שנים-עשר קשרירים אל בקבק זכוכית בנפח 20 mL המכיל 10 mL של 70% (v/v) ethanol (ראה טבלת חומרים).
2. צביעת קשריות
- הכינו PTA בריכוז 1% (משקל/נפח) באתנול 70% על ידי הוספת 2 גרם אבקת PTA ל-200 מ"ל אתנול 70% בבקבוק ריבוע עם פיה רחבה בנפח 200 מ"ל (ראה טבלת חומרים). נערו עד להמסה מלאה, ולאחר מכן אחסנו ב- 4 °Cהכינו את הצבע יום אחד לפני השימוש.
- הסיר את האתנול בריכוז 70% ששימש במהלך הקיבוע והחלף אותו ב-10 מ"ל של תמיסת PTA בריכוז 1% (ראה טבלת חומרים).
- הניחו את בקבק הזכוכית על מנער מסלולי (orbital shaker) בטמפרטורת החדר במהירות של 80 סבב לדקה (rpm) למשך 4 שבועות. החליפו את תמיסת הצביעה ב-10 מ"ל של 1% PTA טרי פעם בשבוע (ראו טבלת חומרים, איור 2).
3. קיבוע קשרי שורשים (Nodules)
- המיסו פראפין באמצעות פלטה מחממת ב- 100 °C בכלי זכוכית פתוח (beaker) בנפח 100 מ"ל (ראה טבלת חומרים).
- בחר 200 µL טיפי פפטה עבור השembedding של הדגימה. אטמו את קצות הטיפים החלקים על ידי טבילה רדודה (1–2 ממ') בפרפין מומס (ראו טבלת חומרים).
- שטפו את הדגימה ב-2 מ"ל אתנול 70% בצלחת מיקרו-בארים (microwell dish) בקוטר 35 מ"מ למשך 5 דקות (ראו טבלת חומרים).
- הוסיפו 0.2 גרם של אגרוז בנקודת התכה נמוכה (low-melting-point agarose) לבקבוק ארלנמאייר בנפח 25 מ"ל וערבבו עם 20 מ"ל מים דה-מינרליים כדי להכין תמיסת אגרוז בנקודת התכה נמוכה בריכוז של 1% (משקל/נפח). חממו זאת על פלטה מחממת ב- 50 °C ונערו אותו מספר פעמים עד להמסה מלאה. לאחר מכן, הניחו את הבקבוק במקלח מים המכוון ל- 40 °C (ראה טבלת חומרים).
- הוסף כמעט/בקירוב 25 µL של 1% אגרוז בנקודת התכה נמוכה לתוך קצות פיפטה אטומים הפוכים, ולהמתין דקה אחת להתקררות (ראה טבלת חומרים).
- הוציאו פקעת אחת והעבירו אותה אל קצה הפיפטה באמצעות פינצטה עדינה כדי לקבע אותה באגרוזה בריכוז 1% בעלת נקודת התכה נמוכה. השתמשו בקצה טעינה של ג'ל כדי להזיז את הפקעת כמה שיותר קרוב לצד אטום הפרפין של קצה הפיפטה, מבלי לפגוע בפקעת השורש (ראה טבלת חומרים).
- הניחו את קצות הפיפטות עם קשרי השורשים במעמד כדי לאפשר לאגרוז בעל נקודת ההמסכה הנמוכה להתמצק. לאחר ההתמצקות, אטמו את הצד הפתוח של קצות הפיפטות באמצעות Parafilm כדי לשמר את הלחות (ראו טבלת חומרים). אחסן את הדגימה במקרר בטמפרטורה של 4 °C וסרוק את הדגימות המוטמעות בתוך שבוע.
4. דימויי MicroCT
- הרכיבו את קצות הפיפטה כשהם הפוכים על מחזיק דגימות בגודל מתאים, כדי לאפשר מיקום קרוב ככל האפשר למקור קרני ה-X ולהבטיח מרכוז מדויק של הדגימה (ראו טבלת חומרים).
- פתח את תוכנת ה-CT. הברג את הדגימה על התפסן בחוזקה אל במה הסיבוב של ה-microCT (ראה טבלת חומרים, איור 3, איור משלים 1).
- הפעל את תצוגת המצלמה ואת מקור קרני ה-X, ולאחר מכן הפעל את מסך התצוגה הרציף של קרני ה-X (איור משלים 1).
- כווננו את גובה הדגימה בצורה אנכית כדי להביא את האזור הנבחר (region of interest) למרכז מסך ה-X-ray הרציף. רשמו את גובה זה לשימוש מאוחר יותר בשלב 4.10.איור משלים 1).
- עם בינינג (binning) של 512 × 512, התאם את גודל הפיקסל (ראה טבלה משלימה 1כך שהמדגם ימלא את רוב שדה הראייה של התצוגה הרציפה בקרני X, עם מעט שטח ריק בכל צד (איור משלים 1).
- מרכז את הדגימה במסך התצוגה של קרני ה-X הרציפות על ידי סיבוב כל 45° וכוונון למרכז (איור משלים 1).
- שנו את הקיבוץ (binning) ל-2048 × 2048 (ראה טבלה משלימה 1, איור משלים 1).
- בחר "ללא מסנן" (no filter) והגדר את המתח ל-50 kV ואת הזרם ל- 40 µA ב- מצבי סריקה תפריט (ראה טבלה נלווית 1, איור משלים 1).
- בצעו תיקון שדה שטוח (flat field correction) על ידי הזזת הדגימה למטה למרחק של 68 מ"מ, כך שלא תהיה בתוך שדה הראייה של מסך התצוגה של קרני ה-X הרציפות. כבו תיקון שדה שטוח (Flat Field Correction) והגדר את ה- זמן חשיפה כך, העברה הממוצעת של קרני X היא 55%. סובב תיקון שדה שטוח (Flat Field Correction) על (ראו טבלה משלימה 1, איור משלים 1).
- החזירו את הדגימה לגובה שנקבע בשלב 4.4 (איור משלים 1).
- ב- אפשרויות סריקה, הגדירו את שם הקובץ ואת מיקום התיקייה (איור משלים 1).
- הגדירו את שלב הסיבוב ל- 0.200°הגדר את ה- ממוצע פריימים אל 3 ו-ה- תנועה אקראית אל 30בחר/י 360° סריקה (ראו טבלה משלימה 1, איור משלים 1).
- במידת הצורך, כוון/י רוחב חלקי כדי למנוע שטח ריק מרובה ולהקטין את נפח הנתונים (איור משלים 1).
- לחץ סריקה כדי להתחיל את הסריקה (איור משלים 1).
5. שחזור תמונה
- פתחו את התוכנה לשחזור תמונות וטענו את כל ההסבסות (projections) הדו-ממדיות מהסריקה (ראו טבלת חומרים, איור 4).
- לחצו על Preview כדי להציג את תוצאות השחזור במיקום של הקו הירוק (איור משלים 2).
- כווננו את ההיסטוגרמה בלשונית Output. חתכו את האזור השטוח בצד ימין והשאירו את הערך ב-0 או מעט פחות מ-0 בצד שמאל (איור משלים 2).
- בלשונית Start, לחצו על Fine Tuning לצורך יישור לאחר עיבוד (post-alignment). התחילו עם ערך של 1 ב-Parameter step וערך של 5 ב-Number של הניסיונות. לחצו על Start ולאחר מכן על OK. כאשר התוצאות יופיעו בלשונית Output, לחצו על חלון ה-prv ועברו עם החיצים בין התוצאות כדי לבחור את היישור הטוב ביותר. השאירו את התוכנה על התמונה הטובה ביותר (איור משלים 2).
- הפעילו את ה-ROI בלשונית Output על ידי סימון התיבה לצד Use ROI. בחרו ב-circle כצורת ה-ROI. התאימו את גודל ה-ROI לגודל הדגימה לאורך נפח הנתונים על ידי חזרה ללשונית Start והזזת הקו הירוק כדי לצפות במיקומים שונים. השאירו מעט שטח ריק מסביב לדגימה (איור משלים 2).
- חזרו ללשונית Start. הזו את הקווים האדומים בחלק העליון והתחתון כדי לחתוך את האזורים שאינם נחוצים בנתוני השחזור. בדקו אם נתונים חשובים הושמטו על ידי הזזת הקו הירוק קרוב לקווים האדומים ותצוגה מקדימה של השחזורים בלשונית Output (איור משלים 2).
- בלשונית Output, שמרו את השחזור כתמונות TIFF (16-bit) במיקום הרצוי (איור משלים 2).
- חזרו ללשונית Start ולחצו על Start (איור משלים 2).
6. ויזואליזציה בתלת-ממד
- פתח את תוכנת Dragonfly (ראה טבלת חומרים).
הערה: למידע נוסף על Dragonfly ויכולותיה, אנא עיין בכתובת https://dragonfly.comet.tech/ - ייבא את תמונות ה-TIFF השוחזרות.
- בחר את כל התמונות ואשר כי המרווח בין התמונות זהה ל-Scaled Image Pixel Size בקובץ הטקסט של הסריקה (איור משלים 3).
- כוון את רמות החלון (window leveling) כדי להשיג תצוגת תלת-ממד עם ניגודיות טובה (איור משלים 3).
- גלוש בין מישורי החיתוך הדו-ממדיים השונים (XY, טרנסברסלי; XZ, קורונלי; YZ, סגיטלי) (איור משלים 3).
- לחץ קליק ימני על התמונה וייצא צילום מסך של התצוגה כדי לשמור תצוגות של חיתוכים לפי הצורך (איור 4).
תוצאות
אספנו שני קשרי שורשים מכל אחד משלושה צמחי M. sativa. שני קשרים שימשו להשוואות של משכי צביעה, וארבעה נסרקו לאחר צביעה מלאה של 28 ימים ב-1% PTA ב-70% אתנול לשיפור הניגודיות. על ידי שימוש ב-1% אגרוז בעל נקודת התכה נמוכה כחומר קיבוע בתוך קצות פ pipette, השגנו סביבת קיבוע בעלת צפיפות קרני X נמוכה סביב הדגימה. תמיסת הצביעה הגבירה בהצלחה את הניגודיות של רקמת הצמח (איור 5A,B, איור משלים 4). האות מהדגימה הופרד בקלות מהרקע ומקצה ה-pipette באמצעות היסטוגרמת הנתונים, מה שאפשר ויזואליזציה תלת-ממדית ללא הפרעה של המבנה החיצוני והפנימי של קשר השורש השלם (איור 5A,B).
האפידרמיס החיצוני נראה, אך הוא מציג ניגודיות נמוכה יותר מאשר הרקמות האחרות (איור 5C–E). מאידך, הצורות הvסקולריות ברורות ומחוברות היטב מתחתית הדגימה ועד לראשה (איור 5A,B). בחתכים רוחביים, ניתן לראות בבירור את מספרן ואת הפיצול של צורות אלו (איור 5C). יתרה מכך, הרקמה הפנימית מראה ניגודיות טובה, המאפשרת זיהוי של הקורטקס ושל ואקואולות הצמח (איור 5C–E). הניגודיות הגבוהה מקלה גם על זיהוי תאים נגועים ותאים שאינם נגועים (איור 5C–E). חתכים קורונליים וסגיטליים חושפים את ההתפלגות של אזורי המריסטמה, ההדבקה וההבחנה (איור 5D). סרטון משלים 1 מציג מבט של 360° של קשרית ששוחזרה בתלת-ממד.
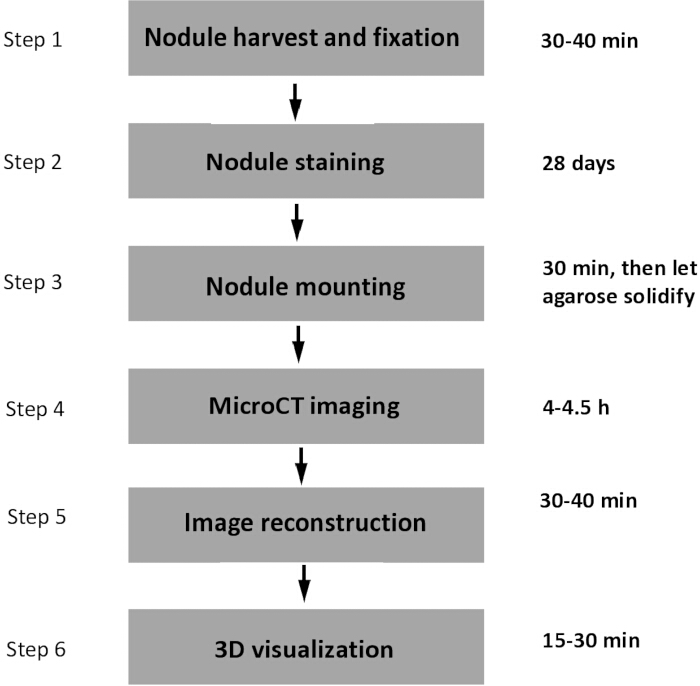
איור 1: זרימת הפרוטוקול. סקירה כללית של זרימת העבודה לשימוש ב-microCT לצילום קשרי שורשים של קטניות והתזמון הנדרש לכל שלב. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
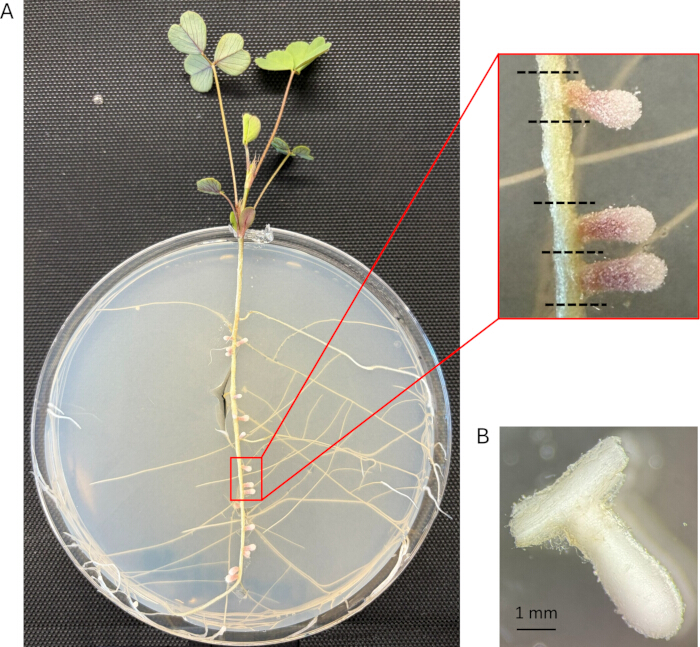
איור 2: קשרי שורשים של M. sativa עבור פרוטוקול זה. (A) צמח M. sativa 28 ימים לאחר הדבקה בחיידקי S. meliloti (28 dpi). קווים שחורים מקווקווים מייצגים את קווי החיתוך המוצעים להוצאת הקשרי השורשים המוצגים. שני קשרי שורשים הוצאו מכל צמח עבור שלושה צמחים, וארבע דגימות נסרקו. (B) קשר שורשים של M. sativa ב-28 dpi לאחר 4 שבועות של צביעת PTA. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
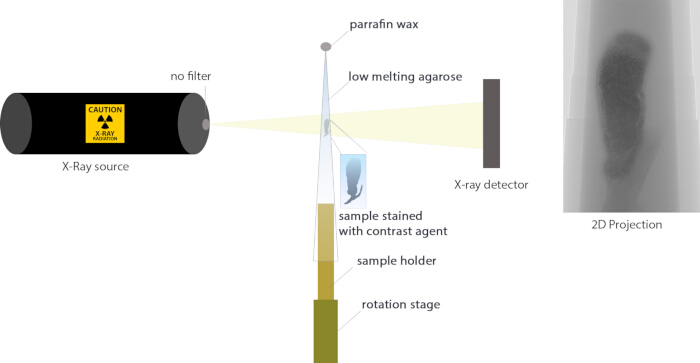
איור 3: סקירה כללית של הגדרת הדגימה ל-microCT. קשרי שורש שנצבעו בחומר ניגוד מקובעים באגרוז בעל נקודת התכה נמוכה בתוך טיפ של מיקרופיפט. הטיפ של המיקרופיפט נסגר בקצה אחד באמצעות שעוות פראפין ומקובע על במת הסיבוב בתוך מכשיר ה-microCT. מקור קרני ה-X (ללא מסנן) נמצא בצד אחד של המכשיר, והקרניים עוברות דרך הדגימה כדי להגיע לגלאי קרני ה-X בצד השני. הסריקה מניבה הקרנה דו-ממדית (2D) המבוססת על צפיפות הרקמה. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
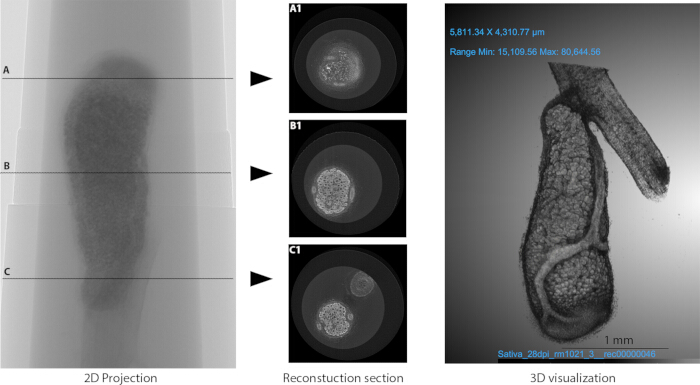
איור 4: דוגמה לשחזור תמונה וויזואליזציה בתלת-ממד. (שמאל) היטל דו-ממדי. (מרכז) חתך שחזור. A1, B1 ו-C1 מראים חתכים רוחביים ששוחזרו במיקומים A, B ו-C מההיטל הדו-ממדי של ה-microCT. (ימין) ויזואליזציה בתלת-ממד של קשרישור השורש שהופקה מהתמונות המשוחזרות. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
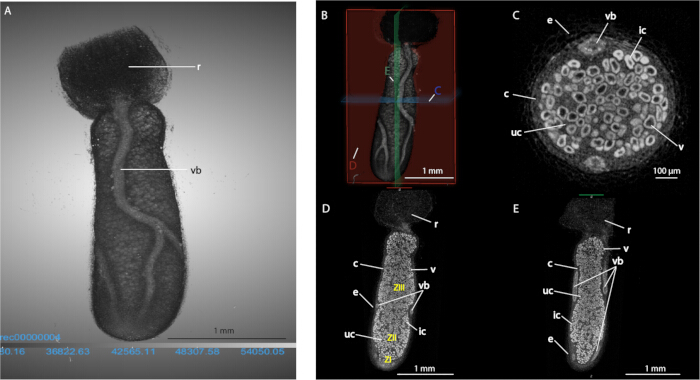
איור 5תמונות מייצגות עם הערות. (A(עם הערות) הדמיה בתלת-ממד של *M. sativa* קשריר שורש. (Bקווי מתאר באדום, כחול וירוק על גבי תמונה בתלת-ממד המראים את החתך הרוחבי (C), קורונלי (ד'), וסגיטלי (ה_) מישורים, בהתאמה. חתכים רוחביים עם סימונים (C), קורונלי (ד), וסגיטלי (המקטעים של *M. sativa* קשרישור. קיצורים: c – קורטקס; e – אפიდרמיס; ic – תא נגוע; r – שורש; uc – תא שאינו נגוע; v – ואקואולה; vb – צרור כליים; ZI – אזור I (מריסטמטי); ZII – אזור II (הדבקה); ZIII – אזור III (דיפרנציאציה). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
איור משלים 1. צילומי מסך של התוכנה עבור דימות microCT. (A1) פתיחה וסגירה של דלת הבמה. (A2) הפעלת תצוגת המצלמה. (A3) הפעלת מקור קרני ה-X. (A4) הפעלת תצוגת X-ray רציפה. (A5) כיוון גובה הדגימה. (A6) כיוון גודל הפיקסל. (A7) סיבוב הדגימה. (A8) שינוי ה-binning. (A9) שינוי המסנן. (A10) אפשרויות לגישה למצבי סריקה. (A11) הגדרת המתח והזרם של מקור קרני ה-X. (A12) לחיצה כפולה לביטול תיקון שדה שטוח (flat-field correction). (A13) אפשרויות סריקה. (B1) תיקון שדה שטוח כבוי. (B2) אפשרויות לגישה למצבי סריקה. (B3) ממוצע העברת קרני X. (B4) כיוון זמן החשיפה. (B5) עדכון שדות שטוחים. (C1) מתן שם לקובץ ובחירת מיקום לשמירת הנתונים. (C2) הגדרת שלב הסיבוב, מיצוע פריימים, תנועה אקראית וסריקה של 360 deg. (C3) כיוון רוחב חלקי. (C4) תחילת סריקה.אנא לחצו כאן להורדת קובץ זה.
איור משלים 2. צילומי מסך של התוכנה לשחזור תמונה. (A1) בחירת מיקום לתצוגה מקדימה של הדגימה. (A2) תצוגה מקדימה של הדגימה. (A3) כיוון עדין של הפרמטרים. (A4) קביעת מספר הניסיונות ושלב הפרמטר עבור יישור לאחר השחזור (post-alignment). (A5-6) החלק העליון והתחתון של אזור השחזור. (A7) התחלת השחזור. (B1) התאמת הניגודיות. (B2) צפייה ולחיצה למעבר לתוצאות היישור לאחר השחזור. (B3) יצירת ROI מעגלי. (B4) בחירת פורמט הקובץ ומיקום השמירת הנתונים.אנא לחצו כאן כדי להוריד קובץ זה.
איור משלים 3. צילומי מסך של התוכנה להדמיה בתלת-ממד. (A) מידע על המרווחים בין התמונות. (B) כלי בחירה, סיבוב וזום (למעלה). כיוון רמות חלון לניגודיות (למטה). (C) הצגת סרגל קנה מידה (למעלה). שינוי צבע הרקע (למטה). אנא לחצו כאן להורדת קובץ זה.
איור משלים 4. שחזור MicroCT לאחר צביעה ב-PTA למשך 14, 17 ו-28 ימים. (A) חתך משוחזר של M. sativa לאחר 14 ימי צביעה ב-PTA מראה רעש בשכבה החיצונית (n = 1). (B) חתך משוחזר של M. sativa לאחר 17 ימי צביעה ב-PTA מראה ניגודיות גבוהה יותר בשכבה החיצונית אך פחות בהירות בחלק הפנימי בהשוואה ל-(A) (n = 1). (C) חתך משוחזר של M. sativa לאחר 28 ימי צביעה ב-PTA מראה ניגודיות גבוהה יותר הן בשכבה החיצונית והן בשכבה הפנימית בהשוואה ל-(A) ו-(B) (n = 4).אנא לחץ כאן להורדת קובץ זה.
טבלה משלימה 1: פרמטרים להדמיית microCT.אנא לחצו כאן להורדת קובץ זה.
סרטון משלים 1: סרטון תלת-ממדי של קשריות.אנא לחצו כאן להורדת קובץ זה.
דיון
להלן מספר המלצות לגבי הכנת דגימות וצביעה. במהלך הכנת דגימות לדימוי ב-microCT, חיתוך זהיר של הקשרי השורשים (nodules) חיוני כדי לשמר את השלמות המבנית. אנו ממליצים להשאיר מקטע קטן של השורש משני צדדי נקודת החיבור של הקשרי השורשים כדי לשמור על ההקשר המרחבי ולמזער נזק לרקמות. השימוש בחומר ניגודיות הוא קריטי להגברת הבלימה של קרני X ולהדמיית מאפיינים אנטומיים פנימיים14. מחקר קודם שהשתמש בצביעת PTA הראה כי נדרשת תקופת צביעה מינימלית של 14 ימים כדי להשיג ניגודיות מספקת במיני צמחים ובסוגי רקמות שונים, ללא עדות לצביעת יתר14. באותו מחקר, קשרי שורשים של פולי סויה שסומנו על ידי Bradyrhizobium (שקובעו ב-14 dpi) נצבעו במשך 35 ימים14. תוך שימוש בטווח זה (14–35 ימים) כנקודת ייחוס, ביצענו ניסיונות צביעה מקדימים על דגימות הקשרי שורשים משלנו במספר נקודות זמן (14, 17 ו-28 ימים) והשוויתינו את ניגודיות התמונה שהתקבלה. תקופת צביעה של 28 ימים נבחרה עבור פרוטוקול זה, שכן היא סיפקה ניגודיות טובה יותר, גבולות תא ברורים יותר וצביעה אחידה יותר בהשוואה לנקודות זמן קצרות יותר (Supplementary Figure 4). נציין כי השחזורים של 14 ו-17 ימים מגיעים מקשרי שורשים בודדים ולא ממחקר חזרתי שיטתי, בעוד שהתנאי של 28 ימים כולל את כל ארבעת קשרי השורשים שנסרקו, ויש להתאים את משך הצביעה בהתאם לרזולוציה הדרושה למחקר. תקופת צביעה של 28 ימים אינה מסגרת זמן קצרה. כפי שהוצע במחקרים קודמים, צביעה בסיוע מיקרוגל עשויה לסייע בהאצת חדירות ה-PTA ובכך לקצר את משך הצביעה הנדרש14. חומרים מבוססי יוד, כגון תמיסת Lugol, משמשים גם הם להגברת הניגודיות ברקמות צמחים23,24. בחרנו ב-PTA על בסיס ביצועיו המוכחים ברקמת קשרי שורשים ולא השווינו בין חומרי צביעה, שכן המטרה העיקרית של מחקר זה הייתה לבסס פרוטוקול בודד הניתן לשחזור14. מחקרים עתידיים צריכים לבחון צבעים אחרים במיני צמחים ובסוגי רקמות שונים.
הטמעה נכונה היא חשובה באותה מידה. הדגימה צריכה להישאר מכוסה לחלוטין באגרוז בנקודת התכה נמוכה כדי למנוע התייבשות ולשמור על המורפולוגיה הטבעית שלה. לאחר ההטמעה, יש לאחסן את הדגימות למשך לילה ב-4 °C כדי להבטיח את התגבשות האגרוז לשמירה על היציבות במהלך הסריקה. יש לקבע את הדגימה המורכבת באופן מאובטח לבמת הסריקה כדי למנוע סחיפה או ארטיפקטים של רעידות במהלך רכישת הנתונים.
MicroCT מאפשר ויזואליזציה תלת-ממדית לא הורסת של רקמת קשרית שלמה ברזולוציה גסה יותר מזו של מיקרוסקופיה של אור ואלקטרונים. הן XRM והן X-ray CT מבוסס סינכרוטרון מספקים בדרך כלל תמונות באיכות ורזולוציה גבוהה יותר מאשר microCT קונבנציונלי. X-ray CT מבוסס סינכרוטרון יכול לאפשר גם סריקה ישירה של דגימות טריות שאינן צבועות, שכן שטף פוטונים גבוה וקוהרנטיות של קרן מאפשרים רכישה מהירה וניגודיות מספקת ללא חומרי הגברת ניגודיות6. השוואה ישירה עם Duncan et al. (2022)14 ו-Nakhforoosh et al. (2024)6 מוגבלת בשל הבדלים במערך המחקר: מינים (פולי סויה לעומת Medicago sativa), סוג הקשרית (determinate לעומת indeterminate), ואופן הדימות (XRM ו-X-ray CT מבוסס סינכרוטרון לעומת microCT קונבנציונלי). עם זאת, גודל הפיקסל הנומינלי של שחזורי הקשריות שלנו הוא כ-1.75 µm, דק יותר מסריקת הקשרית ב-Duncan et al. (2022)14 (2.2 µm, איור 4A), אך השחזורים שלהם עדיין מראים בהירות רבה יותר משלנו. הדבר משקף ככל הנראה את העובדה שהרזולוציה האפקטיבית תלויה ביותר מגודל פיקסל נומינלי; ההגדלה האופטית של עדשות העדשה של ה-XRM, רגישות הגלאי, יציבות המקור, איכות המצלמה ושיטות השחזור תורמים כולן לכך. בעוד שמאפיינים גדולים בעלי צפיפות נמוכה, כגון ואקואולות, ניתנים להבחנה בקלות, כפי שמוצג כאן, תפיסת תאים בודדים על ידי בקטרואידים ואורגנלות קטנות יותר או פחות דחוסות אינה אפשרית, ותהליכים ביולוגיים דינמיים אינם יכולים להילכד בזמן אמת. חומרי ניגודיות מבוססי PTA ויוד הם לא ספציפיים ואינם יכולים לדווח על זהות מולקולרית. שאלות תת-תאיות עדיין ידרשו פלואורסצנציה או מיקרוסקופיה אלקטרונית. גישות דימות אלו הן משלימות, כאשר microCT מתאים היטב למורפולוגיה של איבר שלם ולארכיטקטורת רקמה בתלת-ממד, ובכך מספק הקשר למיקרוסקופיה של אור ואלקטרונים, העוסקת בפרטים מבניים ומולקולריים עדינים יותר.
שכפלנו בהצלחה את תהליך העבודה הזה עם קשרי שורשים בנקודות זמן ובשלבי התפתחות דומים של M. sativa שהוחדרו עם זנים אחרים של S. meliloti, ושל M. truncatula ו-Trigonella foenum-graecum שהוחדרו עם מספר זנים שונים של S. meliloti (נתונים שלא פורסמו). לא בדקנו קשרי שורשים בשלבי התפתחות שונים, כיוון שמטרתנו הייתה לאפיין ולספק פרוטוקול הניתן לשחזור עבור קשרי שורשים בוגרים המקבעים חנקן. למרות זאת, תהליך העבודה אמור להיות ישים עבור קשרי שורשים בשלבי התפתחות משתנים, שכן המגבלה הרלוונטית יותר היא גודל קשרי השורשים. קשרי השורשים שסרקנו היו באורך של כ-2.5 mm (Supplementary Table 1). במכשיר ה-microCT ששימש במחקר זה, הגודל המינימלי שאנו ממליצים עליו הוא 1 mm באורך. הגודל שניתן יהיה לדגם יושפע מהמכשיר שבו נעשה שימוש, שכן ההגדלות עשויות להשתנות.
ראיות אחרונות מצביעות על כך שהתפיסות (occupancy) בתוך הקשרית הן פרמטר חשוב המתאם באופן ישיר ליעילות קיבוע החנקן. הוכח כי קשריות עם פרופורציה גבוהה יותר של תאים נגועים מקבעות חנקן טוב יותר מאלו שבהן תאים מעטים יותר תפוסים על ידי חיידקים25. בנוסף, בריאות הקשרית תלויה בהיקף כלי הדם (vasculature), וכלי דם פגומים או מוגבלים מעידים על קשריות פגומות ועל בריאות צמח מופחתת26. בהינתן הפוטנציאל להדמיית התפיסות והארכיטקטורה של כלי הדם, ה-microCT ממלא פער חשוב בתחום קיבוע החנקן. תהליך עבודה זה הופך את ההדמיה הלא-הרסנית של המבנים הפנימיים והחיצוניים של קשריות השורש לנגישה באופן שגרתי, ומבנים אלו הם קובעים ישירים של יעילות הקיבוע המניעה את אספקת החנקן הסימביוטית לגידולים חקלאיים.
גילויים
למחברים אין הצהרות לגבי ניגודי利益.
תודות
ברצוננו להודות ל-Stephanie Sage על עזרתה בהכנת הצמחים. Xia Zhao סייעה בטמיסת הדגימות. אנו אסירי תודה ל-Madi Mitchell על הדיון הראשוני בפרויקט. ברצוננו להודות ל-Tom Kleist ול-Kexi Yi על עצותיהם בנוגע לפרשנות הנתונים. אנו מודים גם ל-Keith Duncan (מרכז Donald Danforth למדעי הצמחים) על עצותיו בנוגע לפרוטוקול. פרויקט זה מומן על ידי מכון Stowers למחקר רפואי.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| בקבוק זכוכית 20 mL | Sigma-Aldrich | Z190527 | משמש להחזקת קשרי שורשים לצורך קיבוע וצביעה. |
| טיפי פ pipette 200 µL | Fisherbrand | 02-717-144 | משמשים להחזקת קשרי שורשים לצורך דימות. |
| צלחת מיקרו-בארות 35 mm | Fisher Scientific | 507532924 | משמשת לשטיפת קשרי שורשים לאחר הצביעה. |
| תוכנת Dragonfly | Comet Technologies Canada Inc. | V2022.2 | משמשת להדמיה ומניפולציה של שחזורי דו-ממד בתצוגת תלת-ממד. |
| אתנול | Decon Labs | V1001 | משמש לקיבוע ושטיפה של קשרי שורשים. |
| פינצטה עדינה | Dumont | AA-Inox-E | משמשת לסידור קשרי שורשים בתוך טיפ הפ pipette. |
| טיפ להעמסת ג'ל | Corning (Costar) | 4853 | משמש למניפולציה של קשר השורשים בתוך האגרוזה בטיפ הפ pipette. |
| פלטה מחממת | Mirak | SP72725 | משמשת להמסת פראפין והמסה של lowMelt agarose. |
| LowMelt agarose | GeneMate | 490001-602 | משמש להטמעה של קשרי שורשים לשמירה על האוריינטציה והלחות. |
| MicroCT | Bruker | Bruker SkyScan 1272 | משמש לסריקת קשרי השורשים. |
| תוכנת NRecon | Bruker | V2.2.0.6 | משמשת לשחזור של היטלי דו-ממד. |
| מנער אורביטלי | VWR | 77591-858 | משמש לניעור קשרי השורשים להגברת חדירת הצבע. |
| פראפין | McCormick Scientific | 39503002 | משמש לאטימה של הקצה הצר של טיפ הפ pipette. |
| Parafilm | Alkali Scientific | PM996 | משמש לאטימת טיפי הפ pipette למניעת התייבשות הדגימה. |
| חומצה פוספוטונגסטית | Electron Microscopy Science (EMS) | 19500 | משמשת לצביעת קשרי שורשים. |
| מחזיק דגימות - אורך 3.4 cm קוטר 0.63 mm | Bruker | Set from Bruker with machine | משמש להחזקת טיפ הפ pipette והדגימה במהלך הדימות. |
| סכין מנתח | Fisher Scientific | S07890 | משמש לקצירת קשרי שורשים. |
| תוכנת Skyscan | Bruker | v1.5.1.0 | משמשת לתפעול ה-MicroCT. |
| בן-מאט | Boekel Grant | 640013001 | משמש לשמירה על האגרוזה במצב נוזלי בזמן הטמעת קשרי השורשים. |
מקורות
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב