פרוטוקול זה מתאר הליכים שלביים להערכת עמידות של אורגניזם שלם לעקה תרמית, עקה חמצונית, עקה של הרשת האנדופלזמית (ER stress) ועקה מיטוכונדריאלית. כמו כן, הוא מספק שיטות להערכה האם לנוירונים יש תפקיד בעמידות לעקה.
מאמר שיטה
שיטות למדידת עמידות למספר גורמי עקה ב-Caenorhabditis elegans
במאמר זה
סיכום
תקציר
אורגניזמים נחשפים למגוון של גורמי עקה סביבתיים ותאיים במהלך חייהם. היכולת לעמוד בפני גורמי עקה שונים נמצאת במתאם הדוק עם תוחלת הבריאות ותוחלת החיים של האורגניזמים. Caenorhabditis elegans (C. elegans) הוא אורגניזם מודל אידיאלי למדידת עמידות לעקה, במטרה להקל על חקר מנגנונים מולקולריים שמורים העומדים בבסיס העמידות לעקה. ל-C. elegans יש גם מערכת עצבים פשוטה, החיונית להבנת הבסיס העצבי של העמידות לעקה. כאן, אנו מציגים שיטות למדידת עמידות לעקה של C. elegans תחת ארבעה תנאי עקה שונים: עקת חום, עקה של הרשת האנדופלזמית (ER), עקה מיטוכונדריאלית ועקה חמצונית. קבוצות של תולעים מונחות על פלטות אגר מוצקות, ונחשפות לטמפרטורות מאתגרות עבור עקת חום, או לאגר המכיל מינונים שונים של תרכובות המשרות עקת ER, עקה מיטוכונדריאלית או עקה חמצונית. קבענו מינונים עולים של כל סוג עקה וביצענו תיטרציה למציאת המינון האופטימלי כדי לקבוע הבדלים בעמידות לעקה בזן שבו הושמדו נוירוני RIC בהשוואה לזן מסוג wild-type, כדוגמה. תחת תנאי עקה, הישרדות ה-C. elegans מנוטרת מדי שעה או מדי יום, ועקומות הישרדות נבנות ומושווים כדי לזהות יכולות שונות של עמידות לעקה בזני C. elegans שונים. אלו מספקות גישה הניתנת לשחזור להערכת העמידות למספר גורמי עקה על פני טווח של מינונים וסקאלות זמן ב-C. elegans מסוג wild-type, מוטנטים או זנים שעברו מניפולציה עצבית, וכן מסייעות בחשיפת המנגנונים המולקולריים והעצביים העומדים בבסיס גורמי עקה מרובים.
מבוא
אורגניזמים נחשפים למגוון של עקות סביבתיות במהלך חייהם. רוב הגורמים המעקיים, הכוללים חום, היפוקסיה, קרינה, עקה חמצונית, עקה אוסמוטית ועקה פתוגנית, גורמים לתפקוד תאי לקוי ולאיזון הומיאוסטטי שמעוררים תגובות עקה תוך-תאיות. אורגניזמים פיתחו מסלולי תגובה לעקה שנשמרו היטב (conserved) כדי להתמודד עם אתגרים וגורמי עקה סביבתיים דינמיים. מסלולי תגובה לעקה שנשמרו אלה כוללים תגובות להלם חום (HSR)1, תגובות לחלבונים לא מקופלים (UPR) ברשתיתית התוך-פלזמית (ER) ובמיטוכונדריה2, ותגובה לעקה חמצונית3. רגולטורים מרכזיים של מסלולי תגובה לעקה שונים, בדרך כלל גורמי שעתוק, משרים את ביטויים של גנים מגיבים כדי לשחזר את הפרוטאוסטזיס ולקדם הישרדות תאית4. תגובות אלה כוללות סינתזה של שפרונים (chaperones) המקפלים מחדש חלבונים שאינם מקופלים נכון, והסרה של חלבונים פגומים על ידי פירוק חלבונים4. כישלון בהפעלת תגובות עקה מוביל להצטברות של חלבונים פגומים בציטופלזמה או באברונים, דבר שמוביל לתפקוד לקוי של התאים והרקמות. תגובת עקה תאית לא מאוזנת נקשרה למגוון מחלות כרוניות, החל מניוון עצבי ועד לתסמונת מטבולית5,6. לעומת זאת, הפעלה נאותה של מסלולי תגובה לעקה מובילה לשיפור בטווח הבריאות (healthspan) ולהארכה משמעותית של תוחלת החיים7. לפיכך, חשוב לחקור את המנגנונים המולקולריים של עמידות לעקה כדי לנצל את תגובת העקה המגנה לשיפור הבריאות. לפיכך, נדרש לבסס שיטות וטכניקות הניתנות לשחזור כדי לכמת במדויק את העמידות לעקה בבעלי חיים חיים.
תגליות ב-15 השנים האחרונות הראו תפקיד של סיגנלינג עצבי בשיפור העמידות לעקה במינים מרובים8. ממצאים ראשוניים הראו כי ה-HSR וה-ER UPR בנוירונים מספיקים כדי להפעיל תגובת עקה ברקמות שאינן נוירונליות, ובכך ביססו את הקונספט של בקרה של עמידות לעקה באופן תא-לא-אוטונומי (cell non-autonomous regulation)8,9,10. מאז גילוי ראשוני זה, ראיות גוברות הראו כי נתיבי עמידות לעקה מרובים מגיבים לרמזים סביבתיים ומקדמים עמידות לעקה באמצעות סיגנלינג עצבי. באופן ספציפי, ה-HSR10,11, ה-ER UPR12,13, התגובה לחלבונים לא מקופלים במיטוכונדריה (UPRmt)14,15, והתגובה לעקה חמצונית3, מקדמים כל אחד עמידות לעקה באופן תא-לא-אוטונומי באמצעות נוירונים. המנגנון של בקרה תא-לא-אוטונומית של עמידות לעקה שמור באורגניזמים הכוללים את זבוב הפירות D. melanogaster16,17,18,19 ועכברים20,21.
כדי להקל על מחקרים הבוחנים את תפקידם של נוירונים בעמידות לעקה תחת גורמי עקה מרובים, אנו מציגים כאן פרוטוקול שיטתי לבדיקת עמידות תחת ארבעה גורמי עקה המווסתים על ידי נוירונים: עקת חום, עקת ER, עקה מיטוכונדריאלית ועקת חמצון. C. elegans, אורגניזם מודל נגיש, שימש למדידת העמידות לארבעה גורמי עקה אלו. שימוש ב-C. elegans בבדיקות עמידות לעקה מאפשר לחקור את הפעלת תגובות העקה לא רק ברמה התאית, אלא גם ברמת האורגניזם.
נתיבי תגובת העקה המופעלים על ידי עקה תרמית, עקה של הרשת האנדופלזמית (ER stress), עקה מיטוכונדריאלית ועקה חמצונית הם נשמרים ובעלי חשיבות תפקודית באורגניזמים שונים, כולל בני אדם22,23,24,25. עקה תרמית מובילה לקיפול שגוי של חלבונים ולצבירתם, ומפעילה את תגובת הלם החום (heat shock response), החיונית לשמירה על הומאוסטזיס של חלבונים26. הטמפרטורה הסביבתית הפיזיולוגית של C. elegans היא 20 °C, וטמפרטורות גבוהות יותר מעל 25 °C גורמות לעקה תרמית ב-C. elegans27. אנו משרים עקה תרמית תחת שלוש טמפרטורות מאתגרות ומורמות: 30 °C, 35 °C ו-37 °C.
ה-ER הוא האתר העיקרי לסינתזה וקיפול של חלבונים28. הצטברות של חלבונים לא מקופלים או מקופלים באופן שגוי בתוך לומן ה-ER מפעילה תגובות לחלבונים לא מקופלים במטרה להחזיר את הפרוטאוסטזיס29. ניתן להשרות עקה של ER באמצעות הכימיקל tunicamycin, אשר חוסם גליקוזילציה מסוג N-linked וגורם להצטברות של חלבונים מקופלים באופן שגוי בלומן ה-ER30. עמידות מוגברת לעקה של קיפול חלבונים שגוי בלומן ה-ER מעידה על שיעורי הישרדות גבוהים יותר12. אנו חושפים תולעים למינונים שונים של tunicamycin (25–200 µg/mL) ומעריכים את הרגישות שלהן על ידי מדידת הישרדותן.
מיטוכונדריה הן המרכז המטבולי התאי ו"תחנות הכוח" של התא. מיני חמצן רעילים (ROS) וחלבונים לא מקפלים במיטוכונדריה מעוררים תגובות של חלבונים מיטוכונדריאליים לא מקפלים ומסבים סטרס מיטוכונדריאלי31. ניתן להשרות סטרס מיטוכונדריאלי באמצעות antimycin A, מעכב של קומפלקס III מיטוכונדריאלי החוסם את מעבר האלקטרונים וגורם לייצור ROS32. אנו משתמשים במינונים שונים של antimycin A (5–80 µg/mL) כדי לזהות את המינון האופטימלי עבור בדיקת העמידות לסטרס מיטוכונדריאלי.
עקה חמצונית נגרמת בדרך כלל על ידי רעלים סביבתיים ורדיקלים חופשיים תאיים הנוצרים כתוצאה מחילוף חומרים. עקה חמצונית גורמת לנזקים לחלבונים, ליפידים ו-DNA בכל האורגניזמים33. פאראקוואט (Paraquat), כימיקל המשמש כקולישרי עשבים המעביר אלקטרונים לחמצן ומייצר כמות מוגברת של רדיקלי superoxide, הוא מעורר חזק של עקה חמצונית34. אנו מיישמים ארבעה מינונים עולים של פאראקוואט (2.5–20 mM) ומראים טווח של הישרדות מקסימלית הנע בין 3 ל-12 ימים ב- C. elegans.
ארבעה תנאי עקה אלו פשוטים ליישום ומספקים תוצאות בעלות הדירות גבוהה של עמידות לעקה ב-C. elegans. שיטות לבדיקת עמידות לעקה דווחו בעבר35,36,37,38,39,40. בהשוואה לסקירה שפורסמה בעבר ומסכמת גורמי עקה שונים ואנליזות הישרדות35, מאמר זה מבסס פרוטוקולים מפורטים, ישימים ושלביים לביצוע בדיקות עקה עקביות ובעלות הדירות. מספר פרוטוקולים שפורסמו בעבר התמקדו בבדיקת עקה ספציפית אחת, כגון הלם חום36 או עקה חמצונית38; זאת בעוד שפרוטוקול זה מדגים את כל ארבע בדיקות העקה השונות: חום, ER, מיטוכונדריה ועקה חמצונית. פרוטוקולים לבדיקות עקה שדווחו בעבר מציגים גם בדיקות נקודת-סוף שונות של רהפורטרים פלואורסצנטיים, כגון רהפורטרים תעתוקיים פלואורסצנטיים ספציפיים למסלולים עבור עקת ER, מיטוכונדריה ועקה חמצונית40, או תגובה להלם חום39; זאת בעוד שפרוטוקול זה משתמש בבדיקות הישרדות כדי למדוד ביעילות את הבריאות הכללית של C. elegans. באופן חשוב, פרוטוקול זה מציג טיטרציית מינון עבור כל ארבע הבדיקות כדי לספק סימוכין לטווח המינון היעיל שניתן לבחור עבור בדיקות עקה; פרוטוקול זה ביצע אופטימיזציה של סולם הזמן (משעות לימים) בבדיקות עקה שונות; בנוסף, הצגנו תפקיד חדש של נוירון המווסת תגובות עקה מרובות, כדוגמה לבדיקה האם נוירונים מווסתים עמידות לעקה.
פיתוח של בדיקת עמידות לעקה דורש בחירה של גורם עקה מתאים ומדד הערכה מהימן. בדיקות הישרדות של C. elegans היו כלים עוצמתיים למדידת תהליכים פיזיולוגיים, כולל תוחלת חיים, עמידות לעקה וזיהומים פתולוגיים. יתרון מרכזי אחד בשימוש ב-C. elegans לבדיקות הישרדות הוא שקל להכין ולבדוק תולעים מסונכרנות באותו גיל, וזאת בשל ההפריה העצמית שלהן, גודל השגרה הגדול ומחזור הפיתוח הקצר של שלושה ימים מביצים לבוגרים צעירים. זכרים הם נדירים באוכלוסייה טבעית של C. elegans בתרבית ולכן אינם משמשים בדרך כלל לבדיקות הישרדות, כולל פרוטוקול זה, ומשמשים בעיקר להכלאות גנטיות35. בהשוואה לשיטות הערכה של נקודת סיום אחרות (למשל, רפורטרים פלואורסצנטיים, הצטברות חלבונים וליפידים), בדיקות הישרדות יעילות במדידת הבריאות הכללית של C. elegans ולוקחות זמן קצר יחסית להשלמה, בדרך כלל משעות עד מספר שבועות, תלוי במינון של גורמי העקה. אנו משתמשים בשיעורי הישרדות כאינדיקטור העיקרי לעמידות לעקה במאבטים שונים של C. elegans. ההישרדות נקבעת על פי ניידות ותגובה לגירוי מכני עדין; היעדר תגובה לגירוי משמש להגדרת תמותה בבדיקות עקה של C. elegans. ניתן לבצע בדיקות הישרדות ב-C. elegans במצע מוצק או נוזלי עם מזון חיידקי35. עם זאת, המצע הנוזלי אינו הסביבה הטבעית של התולעים, והתולעים נאלצות להתפתל ללא הרף בתרבית הנוזלית, מה שמוביל לעקומת הישרדות קצרה יותר41. כאן, אנו משתמשים במצע מוצק כדי להעריך את ההשפעות של ריכוזים שונים של גורמי עקה על הישרדותן של תולעים מסוג פרא (wild-type) ותולעים מוטנטיות עם תאי עצב שהוסרו (neuron-ablated). נתוני טיטרציית הריכוזים הללו עשויים לספק הכוונה לחוקרים אחרים המבצעים בדיקות עמידות לעקה דומות.
פרוטוקול
ניסויים הכוללים C. elegans בוצעו באוניברסיטת קנזס סטייט (Kansas State University), מנהטן, קנזס, ארה"ב, בהתאם להנחיות הביו-בטיחות והמעבדה המוסדיות. כ- C. elegans הוא אורגניזם מודל חסר חוליות, ולכן לא נדרש אישור מוועדה לאתיקה של ניסויים בבעלי חוליות עבור מחקר זה. הפרטים של כל الريאגנטים, הציוד, התוכנות והזנים ששימשו במחקר מופיעים ב- טבלת חומרים
1. הכנת פלטות NGM (מצע גידול לנמטודות) והכנת Escherichia coli OP50
- הכנת מצעי NGM
- שקלו 3 g של NaCl, 17 g של Agar (באבקה), ו-2.5 g של Peptone, הוסיפו 900 mL של מים מזוקקים ונטרליים (ddH2O) והביאו לנפח סופי של 1 L, ועקרו באמצעות אוטוקלאב. צננו את המצע לטמפרטורה של כ-60 °C באמבט מים של 60 °C.
- הוסיפו 1 mL של CaCl2 בריכוז 1 M (שהוכן ב-ddH2O ועוקר בסינון), 1 mL של כולסטרול בריכוז 5 mg/mL (שהוכן באתנול ועוקר בסינון), 1 mL של MgSO4 בריכוז 1 M (שהוכן ב-ddH2O ועוקר בסינון), ו-25 mL של KP Buffer בריכוז 1 M.
להכנת KP Buffer, ערבבו 130 mL של K2HPO4 בריכוז 1 M עם 870 mL של KH2PO4 בריכוז 1 M שהוכנו ב-ddH2O. לאחר ערבוב יסודי, כווננו את ה-pH ל-6.0. לאחר ההכנה, ה-pH הנמדד הוא בדרך כלל קרוב ל-6.0 ולא נדרשת כוונון נוסף. טווח ה-pH המקובל עבור KP buffer הוא 5.8–6.2, כאשר ערך היעד הוא pH 6.0. ודאו כי ה-pH הסופי הוא כ-6.0 לפני השימוש. במידת הצורך, כווננו ל-pH 6.0 באמצעות K2HPO4 בריכוז 1 M או KH2PO4 בריכוז 1 M. - ערבבו היטב וצקו את המצע (NGM) לתוך צלחות (פטריות). עבור צלחות של 60 mm, צקו 10 mL של מצע NGM לכל צלחת; עבור צלחות של 35 mm, צקו 3 mL של מצע NGM לכל צלחת. השאירו את צלחות ה-NGM agar בטמפרטורת החדר (22–25 °C) על משטח ישר למשך 24 שעות לפחות לפני זריעת המזון הבקטריאלי.
זהירות: בעת הכנה ומזיגה של NGM agar נוזלי, השתמשו בכפפות עמידות לחום ובציוד מגן אישי (PPE) מתאים למעבדה כדי למנוע כוויות וחשיפה לנוזל חם.
- הכנת מזון בקטריאלי מסוג Escherichia coli OP50 עבור Caenorhabditis elegans
- בצעו מריחה (streak) של בקטריות Escherichia coli OP50 על צלחת Luria-Bertani (LB) agar והדגירו ב-37 °C למשך לילה (צלחות LB agar: הוסיפו 1 g של NaCl, 1 g של tryptone, 0.5 g של תמצית שמרים ו-1.5-2.0 g של אבקת agar ל-100 mL של ddH2O, עקרו באוטוקלאב למשך 20 דקות, צננו ל-50-60 °C וצקו את המצע לצלחות. הניחו על משטח נקי וישר והניחו להן להתייבש).
- הדגירו מושבה בודדת לתוך 100 mL של מצע LB נוזלי (מצע LB: הוסיפו 1 g של NaCl, 1 g של tryptone ו-0.5 g של תמצית שמרים ל-100 mL של ddH2O, עקרו באוטוקלאב למשך 20 דקות. צננו לטמפרטורה נמוכה מ-37 °C לפני ההדגיה).
- תרבתו את הבקטריות באינקובטור עם ניעור ב-37 °C עד שהתגסות הבקטריאלית תגיע לצפיפות אופטית ב-600 nm (OD600) של כ-0.3 בדילול של פי 10 של התגסות הבקטריאלית (ערבוב של 100 µL מתגסות הבקטריות עם 900 µL של מצע LB). אספו ואחסנו את תגסות הבקטריות ב-4 °C. ניתן לאחסן את המזון הבקטריאלי עד שבוע לפני הזריעה על צלחת NGM40.
- השתמשו בפיפטור חוזר (repeat pipettor) כדי לזרוע בקטריות OP50 על צלחות ה-NGM. זרעו 200 µL עבור צלחות agar של 60 mm, ו-100 µL עבור צלחות agar של 35 mm. השאירו את צלחות ה-NGM הזרועות בטמפרטורת החדר (~22–25 °C) על משטח ישר למשך 24 שעות לפחות לפני השימוש. אין להשאיר את הצלחות בטמפרטורת החדר למשך יותר מ-48 שעות. סדרו את הצלחות הזרועות בקופסת פלסטיק נקייה ואחסנו אותן ב-4 °C.
הערה: בשימוש בצלחות ללא פתחי אוורור, ייתכן שזריעת ה-OP50 תדרוש זמן ייבוש ארוך יותר.
זהירות: טפלו בתרביות E. coli OP50 תוך שימוש בשיטות מיקרוביולוגיות מתאימות ולבשו חלוק מעבדה, כפפות והגנה על העיניים. חטאו את משטחי העבודה והשליכו פסולת בקטריאלית בהתאם לנהלי הבטיחות הביולוגית של המוסד.
2. תחזוקה וסנכרון של C. elegans
זרימת העבודה של חלק זה מסוכמת באיור 1A.
- יש לתחזק את התולעים בטמפרטורה של 20 °C על מצעי NGM המזורעים ב-OP50, על ידי העברת תולעים בוגרות למצעי NGM חדשים המזורעים ב-OP50 פעמיים בשבוע כדי למנוע הרעבה של התולעים. העבר 20–40 תולעים בוגרות עם ביצים (gravid) למצע NGM טרי המזורע ב-OP50 באמצעות פיקה של תיל פלטינה, והסר כל לרווה או ביצים שהועברו יחד עם הבוגרות מהמצע המקורי. שימוש במספר ידוע של תולעים עם ביצים מקל על ניהול רישומים מדויקים ומבטיח את הסרתן המלאה בשלב מאוחר יותר (סעיף 1.2).
הערה: סך של 20–40 תולעים עם ביצים מספיק לייצור של 80–120 ביצים בתוך 2 h, בהתבסס על מצב של זן פרא (N2). חלון זמן הנחת הביצים הוא אופטימלי כאשר התולעים הבוגרות עם הביצים נמצאות ביום הראשון (day 1) של שלב הבגרות. עבור זנים בעלי פריון נמוך או גבוה יותר, התאם את מספר התולעים עם הביצים בהתאם. מטרת שלב זה היא להשיג מספיק ביצים שיפתחו לתולעים מסונכרנות עבור בדיקות העקה (stress assays) בהמשך. - לאחר כ-2 h, הסר את התולעים עם הביצים מהמצע. ספור את מספר התולעים עם הביצים שהוסרו בשלב זה ואשש שכל 20–40 התולעים שהועברו למצע הוסרו.
- דגור את המצעים המכילים ביצים בטמפרטורה של 20 °C עד שהתולעים מגיעות לשלב L4 המאוחר לצורך בדיקות העקה. סנכרן את התולעים לשלב L4 כדי למזער את השונות הנובעת מהבדלים בגיל הבוגרים ובמצב הרבייתי12,35,37,38,40,42,43. בטמפרטורה של 20 °C, תולעים בזן הפרא מגיעות לשלב L4 המאוחר באופן מסונכרן באופן אחיד כ-54–58 h לאחר הנחת הביצים על מצעי אגר מוצקים (על פי תצפיותינו ועל פי 36,40).
הערה: עבור זנים עם עיכוב התפתחותי, התאם את תזמון הסנכרון לשלב L4 המאוחר בהתאם לקצבי ההתפתחות הספציפיים שלהם.
זהירות: יש לטפל ב-C. elegans תוך שימוש בשיטות מיקרוביולוגיות הולמות וללבוש חלוק מעבדה וכפפות כדי למזער חשיפה לחומר ביולוגי ולמנוע זיהום.
3. תנאי עקה ואיסוף נתונים
- בדיקת עקת חום
תהליך העבודה של חלק זה מסוכם ב- איור 1B.- סנכרנו את התולעים לשלב L4 המאוחר (סעיף 2) ותחזקו אותן ב- 20 °Cהעבירו את התולעים המסונכרנות בשלב L4 למשטחי NGM בקוטר 35 מ"מ הזרועים ב-OP50 (סעיף 1), תוך שימוש ב-4 משטחים לכל קבוצה כחזרות טכניות, עם 30–35 תולעים למשטח. לעיון בהגדרת החזרות הביולוגיות, עיינו בסעיף 4.
- העבירו את הצלחות עם התולעים בשלב L4 המאוחר לתוך 30, 35 או 37 °C אינקובטור. ודאו כי האינקובטור מגיע לטמפרטורה המוגדרת לפני הנחת הצלחות עם התולעים שנבדקו בתוכו. שיעור ההישרדות הממוצע של תולעי פרא (wild-type) תחת 30, 35, או 37 °C נע בין כ-4 שעות ל-3 ימים (איור 2B–D) בהשוואה להישרדות ממוצעת של כ-20 ימים ללא עקה פיזיולוגית (איור 2A).
שלב קריטי: הנח את כל פלטות הבדיקה כשהצד של האגר פונה כלפי מטה, כשכבה אחת בתוך ה- 35 °C אינקובטור כדי לאפשר השוואת טמפרטורה מהירה ואחידה.
הערה: במהלך בדיקות עקה תרמית ב-30, 35 או 37 °Cמרבית התולעים אינן מטילות ביצים. במקרים הנדירים שבהם מוטלות ביצים, לא נצפה ששום ביצה בוקעת. לפיכך, אין צורך להעביר את התולעים לצלחות טריות. - ספרו את מספר התולעים המתות בכל נקודת זמן בכל כרסומת (plate) של שחזור טכני, ורשמו את המספר בגיליון נתוני הניקוד. הישרדות התולעים נספרת מדי שעה תחת 35 °C או 37 °C עקה תרמית ופעם ביום תחת 30 °C עקה תרמית. הדירוג מבוצע תחת מיקרוסקופ סטריאו (מיקרוסקופ dissection) בטמפרטורת החדר. במהלך הדירוג, הוצא מהאינקובטור רק את הפלטה הנבדקת; כל שאר הפלטות צריכות להישאר בטמפרטורת העקה התרמית שנקבעה כדי לצמצם את ההפרעה לחשיפה לעקה התרמית. נוהג זה מסייע בשמירה על תנאי ניסוי עקביים בכל הדגימות.
שלב קריטי: כדי למזער את ההפרעה לחשיפה למעקה תרמי (heat stress), יש להוציא כל פיתח מהאינקובטור למשך לא יותר מ-3 דקות במהלך כל סבב דירוג. בהתאם לשיעור הישרדות התולעים בנקודות זמן שונות במהלך בדיקת המעקה, דירוג פיתח בטמפרטורת החדר אורך בדרך כלל כ-30 שניות עד 3 דקות. סדר הדירוג הוא משמעותי בהתחשב בזמן המוקדש לדירוג ידני. אנו ממליצים על סדר דירוג של שחזור טכני אחד מכל תנאי עד להשלמת כל השחזורים הטכניים בכל התנאים. לדוגמה, בשלושה תנאים/קבוצות (A, B ו-C) עם 4 פיתחים של שחזורים טכניים, יש לקבוע את סדר הדירוג כך: A1, B1, C1. → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - העריכו את הישרדות התולעים על בסיס האם ניתן להבחין בתגובת תנועה לגירוי פיזי עדין. תולעים הנעות באופן פעיל נספרות כחיות, ובמקרה זה אין צורך בגירוי פיזי. עבור תולעים שאינן מפגינות תנועה ספונטנית, גרו את התולעים בעדינות על ידי נגיעה פעמיים באזור הגוף האחורי באמצעות פיק של תיל פלטינה. היעדר תגובת תנועה נרשם כמוות, והתולעה המתה מוסרת מהצלחת לאחר הרישום. תצפית של כ-2 שניות לאחר כל נגיעה מספיקה כדי לקבוע אם קיימת תגובת תנועה. מומלץ להשתמש במונה ידני כדי לרשום את מספר התולעים החיות והמתות במהלך הספירה ולהפחית טעויות בספירה. כדי להבטיח שכל התולעים ייספרו פעם אחת בלבד ולא שוב ושוב, הניחו דף פלסטיק שקוף עם רשת תחת הצלחת, או שרטטו רשת בתחתית הצלחת כדי לחלק אותה למקטעי רשת לצורך הספירה.
הערה: החזירו את הצלחות לאינקובטור בתנאי החום מיד לאחר הדירוג. - יש לעקוב אחר הישרדות התולעים במרווחי זמן קבועים עד שכל בעלי החיים ימותו או יסוננו (censored) בהתאם לקריטריונים שהוגדרו מראש. יש לרכז את נתוני ההישרדות שנרשמו ולהשתמש בהם ליצירת עקומות הישרדות לצורך ניתוח בהמשך.
- בדיקת עקה של הרשת האנדופלזמית (ER stress assay)
מהלך העבודה של סעיף זה מסוכם ב- איור 1C.- הכינו פלטות עם מצע לבדיקת עקה של הרשת האנדופלזמית (ER stress). הוסיפו תמיסת מלאי של טוניקמיצין (10 mg/mL בתוך דימתיל סולפוקסיד (DMSO), המאוחסן ב-20 °C) אל תוך מצע NGM נוזלי (מסעיף 1.1.2) לריכוז סופי של 25, 50, 100, או 200 µg/mLלדוגמה, עבור 1 ליטר של תוצר עבור בדיקת עקה של הרשתית האנדופלזמית (ER stress assay medium), יש להוסיף 2.5, 5, 10 או 20 מ"ל תמיסת מלאי של tunicamycin (בריכוז של 10 מ"ג/מ"ל ב-DMSO) כדי להגיע לריכוז סופי של 25, 50, 100 או 200 µg/mL tunicamycin לתוך צלחות המצע. אם נכללת בבדיקה ביקורת ללא טיפול, יש להוסיף את אותה כמות של DMSO (בנפחים של 2.5, 5, 10 או 20 מ"ל) למצע הביקורת המתאים.
שלב קריטי: קהרו את מצע ה-NGM שעבר עיקור באוטוקלאב לטמפרטורה של כ- 55 °C בעודכם מערבבים, הוסיפו tunicamycin עד לריכוז הסופי הרצוי. ערבבו היטב לפני מזיגת 3 מ"ל של מצע NGM עם tunicamycin לתוך כל צלחת בקוטר 35 מ"מ. זרעו בכל צלחת אגר בקוטר 35 מ"מ את 100 µL חיידקי OP50 (סעיף 1.2). ניתן לאחסן מצעי NGM הזרועים בחיידקי OP50 עם tunicamycin ב- 4 °C עד שבוע לפני השימוש.
זהירות: Tunicamycin הוא חומר מסוכן ויש לטפל בו במנדף כימי תוך לבישת חלוק מעבדה, כפפות והגנה לעיניים. יש להימנע משאיפה וממגע עם העור או העיניים. - סנכרנו את התולעים לשלב L4 המאוחר (סעיף 2) ותחזקו אותן ב- 20 °Cהעבירו את התולעים המסונכרנות בשלב L4 אל מצעי NGM בקוטר 35 מ"מ המפוזרים ב-OP50 ומכילים tunicamycin, תוך שימוש ב-4 מצעים לכל קבוצה כשחזורים טכניים, עם 30–35 תולעים למצע. עיינו בסעיף 4 להגדרת השחזורים הביולוגיים.
- דגרו את כל הצלחות ב- 20 °Cיש לתעד מדי יום את מספר התולעים המתות. השרידות הממוצעת של תולעי פרא (wild-type) תחת 25, 50, 100 או 200 µg/mL טווח הזמנים עבור tunicamycin הוא כ-8 עד 11 ימים (איור 2E,F) בהשוואה להישרדות ממוצעת של כ-20 ימים במצב ללא עקה פיזיולוגית (איור 2A).
הערה: במבחן עקה של הרשתית האנדופלזמית (ER stress) המושרה על ידי tunicamycin, מונחות ביצים, אך הן אינן בוקעות על מצעי אגר המכילים tunicamycin. לפיכך, אין צורך להעביר את התולעים לצלחות רעננות. - ספרו מדי יום את מספר התולעים המתות בכל צלחת של חזרה טכנית ורשמו את המספר בגיליון נתוני דירוג. הדירוג מבוצע ידנית תחת מיקרוסקופ סטריאוסקופי (dissecting microscope) על שולחן העבודה בטמפרטורת החדר. תולעים הנעות באופן פעיל נספרות כחיות ואין צורך בגירוי פיזי. עבור תולעים שאינן מפגינות תנועה ספונטנית, גררו את התולעים בעדינות על ידי נגיעה פעמיים באזור הגוף האחורי באמצעות מחט פלטינה. היעדר תגובה נרשם כמוות, והתולעת המתה מוסרת מהצלחת לאחר הרישום. מומלץ להשתמש במונה ידני כדי להבטיח ספירה מדויקת. כדי להבטיח שכל התולעים ייספרו פעם אחת בלבד ולא שוב ושוב, הניחו דף פלסטיק שקוף עם רשת מתחת לצלחת, או שרטטו רשת בתחתית הצלחת כדי לחלק אותה למקטעי רשת לצורך הספירה.
הערה: החזירו את הצלחות לאינקובטור מיד לאחר הניסוף. השאירו את התולעים באינקובטור למשך כ-24 שעות לפני הניסוף הבא. - יש לעקוב אחר הישרדות התולעים מדי יום עד שכל בעלי החיים ימותו או יסוננו בהתאם לקריטריונים שהוגדרו מראש. יש לרכז את נתוני ההישרדות שנרשמו ולהשתמש בהם ליצירת עקומות הישרדות לצורך ניתוח המשך.
- הכינו פלטות עם מצע לבדיקת עקה של הרשת האנדופלזמית (ER stress). הוסיפו תמיסת מלאי של טוניקמיצין (10 mg/mL בתוך דימתיל סולפוקסיד (DMSO), המאוחסן ב-20 °C) אל תוך מצע NGM נוזלי (מסעיף 1.1.2) לריכוז סופי של 25, 50, 100, או 200 µg/mLלדוגמה, עבור 1 ליטר של תוצר עבור בדיקת עקה של הרשתית האנדופלזמית (ER stress assay medium), יש להוסיף 2.5, 5, 10 או 20 מ"ל תמיסת מלאי של tunicamycin (בריכוז של 10 מ"ג/מ"ל ב-DMSO) כדי להגיע לריכוז סופי של 25, 50, 100 או 200 µg/mL tunicamycin לתוך צלחות המצע. אם נכללת בבדיקה ביקורת ללא טיפול, יש להוסיף את אותה כמות של DMSO (בנפחים של 2.5, 5, 10 או 20 מ"ל) למצע הביקורת המתאים.
- בדיקת עקה מיטוכונדריאלית
זרימת העבודה של חלק זה מסוכמת ב- איור 1D.- הכינו פלטות של מצע לבדיקת עקה מיטוכונדריאלית. הוסיפו תמיסת סטוק של antimycin A (בריכוז 5 מג/מ"ל ב-DMSO, מאוחסנת ב-20 °C) אל תוך מצע NGM נוזלי (מסעיף 1.1.2) לריכוז סופי של 5, 10, 20, 40, או 80 µg/mLלדוגמה, עבור 1 ליטר של תווך לבדיקת עקה מיטוכונדריאלית, יש להוסיף 1, 2, 4, 8 או 16 מיליליטר של תמיסת סטוק של antimycin A (בריכוז של 5 מ"ג/מ"ל ב-DMSO). לריכוז סופי של 5, 10, 20, 40, או 80 µg/mL antimycin A במועדות המצע. אם נכללה בבדיקה ביקורת ללא טיפול, יש להוסיף את אותה כמות של DMSO (בנפח של 1, 2, 4, 8 או 16 מ"ל) למצע הביקורת התואם.
שלב קריטי: קוררו את מצע ה-NGM שעבר עיקור באוטוקלאב לטמפרטורה של כ- 55 °C תוך כדי ערבוב, הוסיפו antimycin A עד לריכוז הסופי הרצוי. ערבבו היטב לפני מזיגת 3 מ"ל של מצע NGM עם antimycin A לתוך כל צלחת של 35 מ"מ. זרעו בכל צלחת אגר של 35 מ"מ את 100 µL חיידקי OP50 (סעיף 1.2). ניתן לאחסן פלטות NGM עם זריעת OP50 ואנטימיצין A ב- 4 °C עד שבוע אחד לפני השימוש.
זהירות: Antimycin A הוא חומר מסוכן ויש לטפל בו במנדף כימי תוך לבישת חלוק מעבדה, כפפות מתאימות והגנה על העיניים. הימנעו משאיפה וממגע עם העור או העיניים. - סנכרנו את התולעים לשלב L4 המאוחר (סעיף 2) ושמרו אותן ב- 20 °Cהעבירו את התולעים המסונכרנות בשלב L4 אל מצעי NGM בקוטר 35 מ"מ הזרועים ב-OP50 ומכילים antimycin A, תוך שימוש ב-4 מצעים לכל קבוצה כשחזורים טכניים, עם 30–35 תולעים למצע. עיינו בסעיף 4 להגדרת השחזורים הביולוגיים.
- דגרו את כל הצלחות ב- 20 °Cיש לרשום מדי יום את מספר התולעים המתות.
שלב קריטי: עקב בעיות בבקיעת ביצים ובפיתוח זחלים, יש להעביר את התולעים לצלחות רעננות מדי יומיים במהלך 10 הימים הראשונים. יש להפסיק את ההעברות כאשר לא נצפים עוד זחלים או ביצים חדשים על הצלחת. כל החזרות הטכניות צריכות לעבור את אותו מספר של העברות. לדוגמה, כאשר רק צלחת אחת דורשת העברה, יש להעביר את כל הצלחות ברפליקה ביולוגית זו בו-זמנית. השרידות הממוצעת של תולעים מסוג פרא (wild-type) תחת 5, 10, 20, 40, או 80 µg/mL טווח הזמנים עבור אנטימיצין A (antimycin A) הוא כ-1.5 עד 5 ימים (איור 2G,ה) בהשוואה להישרדות ממוצעת של כ-20 ימים ללא עקה פיזיולוגית (איור 2A).
הערה: בדיקת עקה מיטוכונדריאלית המושרית על ידי Antimycin A מחייבת העברה של התולעים לצלחות רעננות מדי יומיים במהלך 10 הימים הראשונים. ההעברה מבוצעת כדי למנוע צפיפות והרעבה, וכדי להבדיל בין התולעים הניסוייות לבין צאצאיהן. - ספרו מדי יום את מספר התולעים המתות בכל צלחת של שכפול טכני ורשמו את המספר בגיליון נתוני דירוג. הדירוג מבוצע ידנית תחת מיקרוסקופ סטריאוסקופי (מיקרוסקופ למשלוח) על השולחן בטמפרטורת החדר. תולעים הנעות באופן פעיל מדורגות כחיות ואין צורך בגירוי פיזי. עבור תולעים שאינן מפגינות תנועה ספונטנית, גרו את התולעים בעדינות על ידי נגיעה פעמיים באזור הגוף האחורי באמצעות פיקה של תיל פלטינה. היעדר תגובה נרשם כמוות, והתולעה המתה מוסרת מהצלחת לאחר הרישום. מומלץ להשתמש במונה ידני כדי להבטיח ספירה מדויקת. כדי להבטיח שכל התולעים ייספרו פעם אחת בלבד ולא שוב ושוב, הניחו דף פלסטיק שקוף עם רשת מתחת לצלחת, או שרטטו רשת בתחתית הפיתח כדי לחלק את הפיתחים למקטעי רשת לצורך ספירה.
הערה: החזירו את התולעים לאינקובטור מיד לאחר הדירוג. השאירו את התולעים באינקובטור למשך כ-24 שעות לפני הדירוג הבא. - יש לעקוב מדי יום אחר הישרדות התולעים עד שכל בעלי החיים ימותו או יסוננו בהתאם לקריטריונים שהוגדרו מראש. יש לרכז את נתוני ההישרדות שנרשמו ולהשתמש בהם ליצירת עקומות הישרדות לצורך ניתוח המשך.
- הכינו פלטות של מצע לבדיקת עקה מיטוכונדריאלית. הוסיפו תמיסת סטוק של antimycin A (בריכוז 5 מג/מ"ל ב-DMSO, מאוחסנת ב-20 °C) אל תוך מצע NGM נוזלי (מסעיף 1.1.2) לריכוז סופי של 5, 10, 20, 40, או 80 µg/mLלדוגמה, עבור 1 ליטר של תווך לבדיקת עקה מיטוכונדריאלית, יש להוסיף 1, 2, 4, 8 או 16 מיליליטר של תמיסת סטוק של antimycin A (בריכוז של 5 מ"ג/מ"ל ב-DMSO). לריכוז סופי של 5, 10, 20, 40, או 80 µg/mL antimycin A במועדות המצע. אם נכללה בבדיקה ביקורת ללא טיפול, יש להוסיף את אותה כמות של DMSO (בנפח של 1, 2, 4, 8 או 16 מ"ל) למצע הביקורת התואם.
- בדיקה למעקה חמצוני (Oxidative stress assay)
זרימת העבודה של סעיף זה מסוכמת ב- איור 1E.- הכינו מצעים בלוחיות עבור בדיקת עקה חמצונית. הוסיפו תמיסת מלאי של פאראקוואט (0.5 M ב-ddH2O)2O, מאוחסן ב-–20 °C) אל תוך מצע NGM נוזלי (מסעיף 1.1.2) לריכוז סופי של 2.5, 5, 10 או 20 mM.
שלב קריטי: צננו את מצע ה-NGM שעבר עיקור באוטוקלאב לטמפרטורה של כ- 55 °C בעודכם מערבבים, הוסיפו פאראקוואט (paraquat) עד לריכוז הסופי הרצוי. ערבבו היטב לפני מזיגת 3 מ"ל של מצע NGM עם פאראקוואט לתוך צלחות של 35 מ"מ. זרעו בכל צלחת אגר של 35 מ"מ את 100 µL חיידקי OP50 (סעיף 1.2). ניתן לזרע חיידקי OP50 כ-2–3 ימים לפני מועד הבדיקה. ניתן לאחסן מצעי NGM עם זריעת OP50 ופאראקוואט ב- 4 °C עד שבוע אחד לפני השימוש.
זהירות: פאראקוואט (Paraquat) הוא רעיל ביותר ויש לטפל בו במכסה כימית (chemical fume hood) תוך שימוש בכפפות מתאימות, חלוק מעבדה והגנה על העיניים. יש להימנע משאיפה, בליעה וממגע עם העור או העיניים. - סנכרנו את התולעים לשלב L4 המאוחר (סעיף 2) והחזיקו אותן ב- 20 °Cהעבירו את התולעים המסונכרנות בשלב L4 לצלחות NGM בקוטר 35 מ"מ עם זריעת OP50 המכילות פאראקוואט (paraquat), תוך שימוש ב-4 צלחות לכל קבוצה כשכפולים טכניים, עם 30–35 תולעים לצלחת. לעיון בהגדרת השכפולים הביולוגיים, עיינו בסעיף 4.
- דגרו את כל הצלחות ב- 20 °Cיש לתעד מדי יום את מספר התולעים המתות. הישרדות הממוצעת של תולעי פרא (wild-type) בריכוזי פאראקוואט (paraquat) של 2.5, 5, 10 או 20 מילימול (mM) נעה בין כ-2.5 ל-5 ימים (איור 2I,J), בהשוואה למשך הישרדות ממוצע של כ-20 ימים ללא עקה פיזיולוגית (איור 2A).
הערה: במבחן לעקה עקב עקה חמצונית המושרית על ידי פאראקוואט (paraquat), אין צורך להעביר את התולעים לצלחות רעננות. מספר מוגבל של זחלים נמצא על צלחות הפאראקוואט, והם נעצרים בשלב התפתחותי בשלב L2 או לפניו לאורך כל המבחן. הם אינם מפריעים לזיהוי של קהריות מסונכרנות ואינם גורמים להרעבה. בהתחשב בעקה הפיזית שעלולה להיגרם מהעברת תולעים, לא מומלץ להעביר תולעים במהלך המבחן. - ספרו את מספר התולעים המתות בכל צלחת של שחזור טכני מדי יום, ורשמו את המספר בגיליון נתוני דירוג. הדירוג מבוצע ידנית תחת מיקרוסקופ סטריאוסקופי (dissecting microscope) על השולחן בטמפרטורת החדר. תולעים הנעות באופן פעיל נספרות כחיות ואין צורך בגירוי פיזי. עבור תולעים שאינן מפגינות תנועה ספונטנית, גרו את התולעים בעדינות על ידי נגיעה פעמיים באזור הגוף האחורי באמצעות פיק של תיל פלטינה. היעדר תגובה נרשם כמוות, והתולעה המתה מוסרת מהצלחת לאחר הרישום. מומלץ להשתמש במונה ידני כדי להבטיח ספירה מדויקת. כדי להבטיח שכל התולעים נספרות פעם אחת בלבד ולא שוב ושוב, הניחו גיליון פלסטיק שקוף עם רשת מתחת לצלחת, או שרטטו רשת בתחתית הצלחת כדי לחלק אותה למקטעי רשת לצורך הספירה.
הערה: החזירו את התולעים לאינקובטור מיד לאחר הדירוג. השאירו את התולעים באינקובטור למשך כ-24 שעות לפני הדירוג הבא. - יש לעקוב מדי יום אחר הישרדות התולעים עד שכל בעלי החיים ימותו או יסוננו על פי הקריטריונים שהוגדרו מראש. יש לרכז את נתוני ההישרדות שתועדו ולהשתמש בהם להפקת עקומות הישרדות לצורך ניתוח המשך.
- הכינו מצעים בלוחיות עבור בדיקת עקה חמצונית. הוסיפו תמיסת מלאי של פאראקוואט (0.5 M ב-ddH2O)2O, מאוחסן ב-–20 °C) אל תוך מצע NGM נוזלי (מסעיף 1.1.2) לריכוז סופי של 2.5, 5, 10 או 20 mM.
4. ניתוח נתונים
- יש לתעד את מספר התולעים המתות בכל צלחת של כפיל טכני בכל נקודת זמן. נתוני התמותה נרשמים בגיליון דירוג המאורגן לפי נקודת זמן (שעות או ימים לאחר תחילת תנאי העקה), קבוצת ניסוי (זנים שונים או תנאי טיפול שונים) וכפיל טכני (צלחת 1, 2, 3 או 4). בכל מרווח דירוג (שעתי או יומי, בהתאם לבדיקה), מספר התולעים המתות נרשם בנפרד עבור כל צלחת, והתמותה המצטברת נמעקבת עד לסיום הבדיקה.
- הזינו את נתוני התמותה מכל נקודת זמן של הדירוג לתוך OASIS 2 (online application for survival analysis 2)44 ליצירת עקומות הישרדות מסוג Kaplan–Meier ולביצוע ניתוח סטטיסטי מסוג log-rank. לחלופין, ניתן לחשב את שיעור התמותה כאחוז התולעים המתות בנקודות זמן בודדות ולהשוות בין הקבוצות באמצעות מבחן Student's t לשני זנבות למדגמים לא מזווגים מבחן t (עבור שתי קבוצות) או מבחן ANOVA חד-כיווני ולאחריו מבחן השוואות מרובות של Tukey (עבור שלוש קבוצות או יותר).
הערה: תולעים המראות קרע או בקיעה מטריצידלית (bagging) נספרות כמתות במועד שבו הן נצפו, כדי לשקף את ההישרדות הכוללת. תולעים שסבלו מקרע ותולעים בבקיעה מטריצידלית נכללו בעקומות ההישרדות המדווחות בתוצאות המייצגות להלן. מספר התולעים שנסננו (censored) מתנאים שונים נרשם ב- טבלה נלווית 1. תולעים שבורחות מלוח הבדיקה, מתייבשות על דופן הלוח או חסרות במהלך הניקוד נחשבות לתצפיות מצונזרות (censored observations) ומוחרגות מניתוח ההישרדות העוקב. בעלי חיים המראים תנועה לקויה אך מגיבים למגע עדין נסמנים כחיים. תולעים המראים פגמים בהטלת ביצים לפני תחילת הבדיקה מוחרגות מניתוח ההישרדות. - יש לבצע את כל בדיקות העקה בלפחות שלוש חזרות ביולוגיות עצמאיות שבוצעו בימים שונים. כל חזרה ביולוגית מורכבת מארבעה לוחות של חזרות טכניות עם תולעים. נתונים מהחזרות הטכניות בתוך חזרה ביולוגית מאוגדים כדי ליצור עקומת הישרדות אחת. חזרות ביולוגיות עצמאיות מנותחות בנפרד ומוצגות כמאגרי נתונים נפרדים ולא כמאוגדים. כל חזרה ביולוגית מבוצעת באמצעות מצעים שהוכנו באופן עצמאי ומנות טריות של תרכובות מעוררות עקה. הפרוטוקולים המתוארים לעיל הם שלבים ליצירת חזרה ביולוגית אחת עבור כל בדיקת עקה. זכרים מוחרגים ורק הרמאפרודיטים נכללים ומנותחים בפרוטוקול זה.
הערה: הלחות של האינקובטורים בפרוטוקול זה אינה נשלטת, בעוד שטמפרטורת האינקובטור נשלטת בקפידה לפי הטמפרטורה הניסויית. הניסויים המדווחים כאן לא בוצעו בתנאי סמיות, והנסיין היה מודע לגנוטיפ ולתנאי הטיפול במהלך הדירוג. מומלץ להחיל סמיות לגנוטיפ ולתנאי הטיפול במידת האפשר כדי למזער הטיות פוטנציאליות בדירוג.
תוצאות
תוך שימוש בפרוטוקולים המתוארים לעיל, השתמשנו תחילה בתולעי N2 מסוג פרא (WT) כדי לבחון את הישרדות התולעים תחת טווח של מינונים עולים של ארבעת הגורמים למעץ: מעץ חום, מעץ של הרשת האנדופלזמית (ER), מעץ מיטוכונדריאלי ומעץ חמצוני. לאחר מכן, השתמשנו בזן שבו בוצעה אבלציה של נוירונים כדי לבחון את תפקידו של הנוירון הביניים RIC בעמידות למעץ בהשוואה לתולעי WT.
תיחור מינון של עקה תרמית והשוואת עמידות לעקה תרמית בזן ה-RIC ablation
בטמפרטורה פיזיולוגית של 20 °C, תולעים מסוג WT חיות תוחלת חיים ממוצעת של 20.67 ימים (איור 2A). בהמשך לשלבי בדיקת העקה התרמית המוצגים בסעיף 3.1, מדדנו את שיעור ההישרדות של WT בטמפרטורות מוגברות של 30, 35 ו- 37 °C ככל שמינוני הסטרס התרמי עולים. הנתונים הראו כי תולעי WT חיות תוחלת חיים ממוצעת של 3.11 ימים ב- 30 °C (איור 2B); ולתולעי WT זמן הישרדות ממוצע של 5.36 שעות ב- 35 °C ו-4.89 שעות ב- 37 °C (איור 2C). תוצאות אלו העידו על ירידה משמעותית בהישרדות תחת טמפרטורות גבוהות יותר. ניתוחים סטטיסטיים ו- P הערכים מוצגים בפירוט ב- טבלה משלימה 2 וכן מקראים לאיורים. נתונים אלו מספקים מידע מהימן לחוקרים לבחירת טמפרטורת דחק אופטימלית וסולם זמן בתכנון של בדיקת דחק תרמי. חוקרים עשויים להשתמש 30 °C לבחינת הישרדותם של תולעים לאורך מספר ימים תוך שימוש ב- 35 °C או 37 °C כדי להשיג הערכה מהירה יותר של הישרות התולעים בתוך מספר שעות.
לאחר מכן השתמשנו ב-35 °C כתנאי למעקה חום כדי להעריך את השפעת השמדת נוירוני RIC על ההישרדות בהשוואה לבעלי חיים מסוג WT. טמפרטורה זו מספקת רמה בינונית של מעקה חום, המונעת את החומרה הקיצונית של 37 °C תוך יצירת תגובה חזקה יותר מאשר ב-30 °C, ומובילה לסיום בדיקת הישרדות מלאה תוך כ-12 h.
נוירוני RIC הם זוג אינטרנוירונים אוקטופמינרגיים הממוקמים באזור הראש של C. elegans9,10. זן שבו נוירוני RIC הושמדו נוצר על ידי ביטוי של הגן caspase-3 המונחה על ידי פרומוטור של הגן tbh-1, והוא היה בשימוש בעבר45. בקצרה, פרומוטור tbh-1 הוכנס לתוך פלסמידי התור mec-18p::caspase-3 (p12)::nz ו-mec-18p cz::caspase-3 (p17) כדי להחליף את הפרומוטור mec-18. שלושה קונסטרוקטים, tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL), ו-tbh-1p::GFP (20 ng/µL, כסמן של נוירוני RIC כדי להעיד האם נוירוני RIC הושמדו), הוזרקו במשותף עם סמן ההזרקה הפלואורסצנטי myo-3p::GFP (5 ng/µL) לתוך זן N2 מסוג wild-type כדי ליצור זני השמדה גנטית של RIC. שלושה קווים שהוזרקו באופן עצמאי נשמרו כזן השמדה של נוירוני RIC. קווים טרנסגניים נשמרו על ידי בחירת תולעים עם הסמן הפלואורסצנטי myo-3p::GFP. תוצאות מכל בדיקת עקה תוקפו על ידי שניים או שלושה קווים עצמאיים. השמדה מוצלחת של נוירוני RIC אומתה על ידי היעדר פלואורסצנציית tbh-1p::GFP בזן שבו נוירוני RIC הושמדו, בעוד שביטוי GFP נצפה בנוירוני RIC של זן ביקורת הדיווח tbh-1p::GFP (Supplementary Figure 1).
באמצעות שלבי בדיקת העקה תרמית המוצגים בסעיף 3.1, בחנו את הישרדותם של זני WT ושל זנים עם אבלציה של נוירוני RIC תחת העקה תרמית של 35 °C (איור 2D). באמצעות שלבי ניתוח הנתונים המוצגים בסעיפים 4.1–4.3, התוצאות הראו כי לא נמצא הבדל מובהק בין הזן עם אבלציית נוירוני RIC לבין קבוצת הביקורת מסוג wild-type N2 תחת העקה תרמית של 35 °C (איור 2D).
כל התוצאות המייצגות מבדיקות עקה תרמית בוצעו עם שלושה שחזורים ביולוגיים בלתי תלויים שנערכו בימים שונים (איור משלים 2). מספר החיות (ערך n המצוי במקראי האיורים) התורמות לעקום ההישרדות המוצג בתוצאות המייצגות ובאיורים המשלימים הוא המספר המאוחד מארבעה שחזורים טכניים בשחזור ביולוגי יחיד.
תיחור מינון של עקה של הרשתית האנדופלזמית (ER stress) והשוואת עמידות לעקה של הרשתית האנדופלזמית בזן עם אבלציה של RIC
תוך שימוש בשלבי בדיקת עקה של הרשת האנדופלזמית (ER stress assay) המוצגים בסעיף 3.2, מדדנו את שיעור ההישרדות של WT תחת 25, 50, 100 או 200 µg/mL tunicamycin כגורם להעלאת מינוני הלחץ על הרשתית האנדופלזמית (ER stress)איור 2E). בהשוואה להישרדות ממוצעת של כ-20 ימים במצב ללא עקה פיזיולוגית (איור 2A), משך ההישרדות הממוצע של תולעים מסוג הבר (wild-type) הוא 10.74 ימים ב- 25 µg/mL, 9.13 ימים ב- 50 µg/mL, 9.3 ימים ב- 100 µg/mL, ו-8.93 ימים ב- 200 µg/mL טוניקמיצין (איור 2E). הגדלת המינון של tunicamycin לא שינתה באופן משמעותי את ההישרדות במינונים אלו. ניתוחים סטטיסטיים ו P הערכים מוצגים בפירוט ב- טבלה נלווית 2 ומקראים לאיורים. נתונים אלה מספקים מידע מהימן לחוקרים לבחירת מינון אופטימלי של tunicamycin במערך לבדיקת עקה של הרשתית האנדופלזמית (ER stress).
לאחר מכן השתמשנו ב-50 µg/mL tunicamycin, מינון בינוני מבין המינונים שנבדקו, כתנאי למעקה של ה-ER כדי להעריך את השפעת החסר של נוירוני RIC על ההישרדות בהשוואה לבעלי חיים מסוג WT. באמצעות שלבי בדיקת מעקה ה-ER המוצגים בסעיף 3.2, בחנו את ההישרדות של זני WT ושל זנים עם חסר של נוירוני RIC תחת מעקה ER המושרה על ידי 50 µg/mL tunicamycin (איור 2F). בהתאם לשלבי ניתוח הנתונים המוצגים בסעיפים 4.1–4.3, עקומת ההישרדות של הזן עם החסר של נוירוני RIC הראתה הסטה משמעותית ימינה ביחס לביקורת WT N2, מה שמעיד על הישרדות ממושכת תחת מעקה ER. תוצאה זו מרמזת כי חסר של נוירוני RIC מגביר את העמידות למעקה ER (איור 2F).
כל התוצאות המייצגות מבדיקות עקה של ER בוצעו עם שלושה חזרות ביולוגיות בלתי תלויות שנערכו בימים שונים (איור משלים 3). מספר החיות (ערך n המצוי במקראי האיורים) התורמות לעקומת ההישרדות המוצגת בתוצאות המייצגות ובאיורים המשלימים הוא המספר המאוחד מארבע חזרות טכניות בחזרה ביולוגית אחת.
תיסור של מינון עקה מיטוכונדריאלית והשוואת עמידות לעקה מיטוכונדריאלית בזן ה-RIC ablation
באמצעות שלבי בדיקת העקה המיטוכונדריאלית המוצגים בסעיף 3.3, מדדנו את הישרדות ה-WT תחת 5, 10, 20, 40, או 80 µg/mL אנטימיצין A (antimycin A) כגורם לעטף מינונים של עקה מיטוכונדריאלית (איור 2G). עקומות ההישרדות של תולעי WT הראו שינויים משמעותיים באופן תלוי-מינון. בהשוואה להישרדות ממוצעת של כ-20 ימים במצב של היעדר עקה פיזיולוגית (איור 2A), ממוצע ההישרדות של תולעים מסוג wild-type הוא 4.96 ימים ב- 5 µg/mL, 3.77 ימים ב- 10 µg/mL, 2.68 ימים ב- 20 µg/mL, 1.65 ימים ב- 40 µg/mL, ו-1.4 ימים ב- 80 µg/mL אנטימיצין A (איור 2G). ניתוחים סטטיסטיים ו- P הערכים מוצגים בפירוט ב- טבלה נלווית 2 וכן מקראים לאיורים. נתונים אלו מספקים מידע מהימן לחוקרים לבחירת מינון אופטימלי של antimycin A וסולם זמן בתכנון של בדיקת עקה מיטוכונדריאלית. חוקרים רשאים לבחור 5 µg/mL כדי להעריך את הישרדות התולעים לאורך כ-10 ימים, או להשתמש בריכוזים גבוהים יותר של antimycin A כדי לקבל תוצאות הישרדות בתוך מספר ימים. יש לשים לב כי ריכוזים גבוהים יותר מאיצים את התמותה, וריכוזים נמוכים יותר גורמים לירידה הדרגתית יותר בהישרדות, מה שמאפשר להבחין ביתר קלות בהבדלים דקים בין זנים.
בשלב הבא השתמשנו ב-5 µg/mL antimycin A, אשר הפיק ירידה הדרגתית יותר בשיעורי ההישרדות בטווח המינונים שנבדקו, כתנאי למעקה מיטוכונדריאלי להערכת השפעת השמדת נוירוני RIC על ההישרדות בהשוואה לבעלי חיים מסוג WT. באמצעות שלבי הבדיקה למעקה מיטוכונדריאלי המוצגים בסעיף 3.3, בחנו את ההישרדות של זני WT ושל זנים שבהם הושמדו נוירוני RIC תחת מעקה מיטוכונדריאלי המושרה על ידי 5 µg/mL antimycin A (איור 2H). בהתאם לשלבי ניתוח הנתונים המוצגים בסעיפים 4.1–4.3, עקומת ההישרדות של הזן שבו הושמדו נוירוני RIC הפגינה הסטה משמעותית ימינה ביחס לבקרת WT N2, מה שמעיד על הישרדות ממושכת תחת מעקה מיטוכונדריאלי. תוצאה זו מרמזת כי השמדת נוירוני RIC מגבירה את העמידות למעקה מיטוכונדריאלי (איור 2H).
כל התוצאות המייצגות מבדיקות עקה מיטוכונדריאלית בוצעו עם שלושה שחזורים ביולוגיים בלתי תלויים שנערכו בימים שונים (איור משלים 4). מספר בעלי החיים (ערך n המצוי במקראי האיורים) התורמים לעקום ההישרדות המוצג בתוצאות המייצגות ובאיורים המשלימים הוא המספר המאוחד מארבעה שחזורים טכניים בתוך שחזור ביולוגי בודד.
תיחור מינון של עקה חמצונית והשוואת עמידות לעקה חמצונית בזן עם אבלציה של RIC
תוך שימוש בשלבי בדיקת העקה החמצונית המוצגים בסעיף 3.4, מדדנו את הישרדות ה-WT תחת 2.5, 5, 10 או 20 mM paraquat כמינונים עולים של עקה חמצונית (איור 2I). עקומות ההישרדות של תולעי WT הראו שינויים משמעותיים באופן תלוי-מינון. בהשוואה להישרדות ממוצעת של כ-20 ימים ללא עקה פיזיולוגית (איור 2A), ההישרדות הממוצעת של תולעי פרא היא 4.92 ימים בריכוז של 2.5 mM, 3.81 ימים ב-5 mM, 2.93 ימים ב-10 mM, ו-2.81 ימים ב-20 mM paraquat (איור 2I). ניתוחים סטטיסטיים וערכי P מוצגים בפירוט בטבלה נלווית 2 ובמקראי האיורים. נתונים אלה מספקים מידע מהימן לחוקרים לצורך בחירת מינון paraquat ולוח זמנים אופטימליים בתכנון בדיקת עקה חמצונית. חוקרים עשויים לבחור ב-2.5 mM כדי להעריך את הישרדות התולעים לאורך כ-10 ימים, או להשתמש בריכוזי paraquat גבוהים יותר כדי לקבל תוצאות הישרדות בתוך מספר ימים. שימו לב כי ריכוזים גבוהים יותר (10 mM ו-20 mM) מאיצים את התמותה, וריכוזים בינוניים ונמוכים יותר (2.5 mM ו-5 mM) גורמים לירידה הדרגתית יותר בהישרדות, מה שמאפשר להבחין בקלות רבה יותר בהבדלים דקים בין זנים.
לאחר מכן השתמשנו ב-5 mM paraquat, מינון בינוני מבין המינונים שנבדקו, כתנאי לעקה חמצונית כדי להעריך את השפעת השבתת נוירוני RIC על ההישרדות בהשוואה לבעלי חיים מסוג WT. באמצעות שלבי בדיקת העקה החמצונית המוצגים בסעיף 3.4, בחנו את ההישרדות של זני WT ושל זנים שבהם הושבתו נוירוני RIC תחת עקה חמצונית המושרה על ידי 5 mM paraquat (איור 2J). באמצעות שלבי ניתוח הנתונים המוצגים בסעיפים 4.1–4.3, הראו התוצאות כי לא נמצא הבדל מובהק בין הזן שבו הושבתו נוירוני RIC לבין קבוצת הביקורת של wild-type N2 תחת עקה חמצונית המושרה על ידי 5 mM paraquat (איור 2J).
כל התוצאות המייצגות מבדיקות העקה חמצונית בוצעו עם שלושה שחזורים ביולוגיים בלתי תלויים שנערכו בימים שונים (איור משלים 5). מספר החיות (ערך n המצוי במקראי האיורים) התורמות לעקומת ההישרדות המוצגת בתוצאות המייצגות ובאיורים המשלימים הוא המספר המצטבר מארבעה שחזורים טכניים בשחזור ביולוגי בודד.
פתרון בעיות
בעיה חוזרת במבחני עקה חמצונית המושרה על ידי פאראקוואט היא בריחת תולעים מלוחיות האגר, מה שמוביל לאובדן בעלי חיים ולמספר מופחת של תולעים הזמינות לניתוח. ניתן להוסיף מחסום חומצה פלמיטית או "גדר" אחר ללוחיות המבחן כדי לדכא חלקית התנהגות בריחה זו46,47, אם כי השיפור הוא צנוע ואינו פותר את הבעיה לחלוטין. לא נצפה הבדל משמעותי בבריאות ובתוחלת החיים של C. elegans לאחר טיפול בחומצה פלמיטית48. מחסום חומצה הפלמיטית פועל כ"גדר" דוחה על לוחיות NGM כדי למנוע מ-C. elegans לברוח עקב עקה, הרעבה או פתוגנים. כדי לצמצם את בריחת התולעים, יש למרוח 30 µL של חומצה פלמיטית בריכוז 10 mg/mL באתנול (הוסף 0.5 g של חומצה פלמיטית ל-50 mL של 100% EtOH) לקצה לוחית המבחן בגודל 35 mm ולסובב את הלוחית בעדינות כדי ליצור טבעת רציפה. לאחר התאדות האתנול, טבעת חומצה הפלמיטית משמשת כמחסום פיזי וכימי להפחתת בריחת התולעים. תולעים שמתות בזמן מגע עם טבעת חומצה הפלמיטית נחשבות כנתונים מצונזרים (censored) ומוחרגות מניתוח ההישרדות.
זהירות: יש לטפל בחומצה פלמיטית ובתמיסותיה תוך שימוש בציוד מגן אישי (PPE) מתאים למעבדה, כולל כפפות, חלוק מעבדה והגנה על העיניים, ויש לנקוט משנה זהירות כדי למנוע מגע עם העור והעיניים.
זמינות נתונים
נתוני ההישרדות העומדים בבסיס איור 2 והאיורים המשלימים, כולל נתונים עבור כל החזרות הביולוגיות ותוצאות סטטיסטיות, מופיעים באיורים משלימים 1–5, טבלאות משלימות 1–2 וקובץ משלים 1.
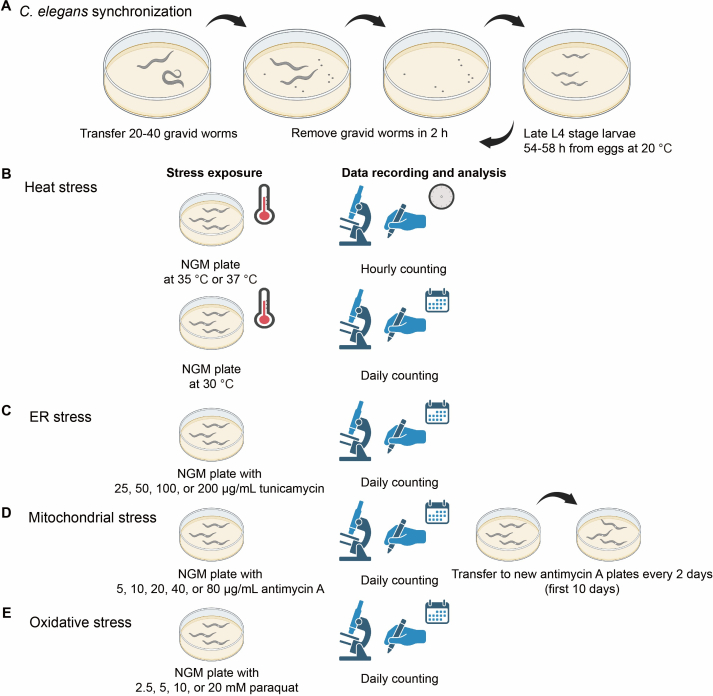
איור 1: זרימת העבודה של בדיקות העקה. (A) תולעים מסונכרנות מושגות על ידי איסוף ביצים שהוטלו בפרק זמן של 2 שעות מתולעים עמוסות ביצים. תולעים מסונכרנות משמשות לכל בדיקות העקה ומועברות לצלחות או לתנאי עקה בשלב L4 המאוחר, לאחר 54-58 שעות של התפתחות מביצים ב-20 °C. (B) בבדיקת העקת חום, תולעים מסונכרנות מועברות לצלחות NGM באינקובטור ב-35 °C או 37 °C, ותולעים מתות נספרות מדי שעה. עבור בדיקת העקת חום באינקובטור ב-30 °C, תולעים מתות נספרות מדי יום. (C) בבדיקת עקת ER, תולעים מסונכרנות מועברות לצלחות NGM המכילות 25, 50, 100 או 200 µg/mL tunicamycin. תולעים מתות נספרות מדי יום. (D) בבדיקת עקה מיטוכונדריאלית, תולעים מסונכרנות מועברות לצלחות NGM המכילות 5, 10, 20, 40 או 80 µg/mL antimycin A, וההישרדות מוערכת באמצעות ספירה יומית. כדי למנוע הפרעה מצאצאים, התולעים מועברות לצלחות טריות המכילות antimycin A מדי יומיים במהלך 10 הימים הראשונים של הבדיקה. (E) בבדיקת עקה חמצונית, תולעים מסונכרנות מועברות לצלחות NGM המכילות 2.5, 5, 10 או 20 mM paraquat, וההישרדות מוערכת באמצעות ספירה יומית. עמידות לעקה מוערכת על ידי השוואת עקומות הישרדות Kaplan–Meier שהופקו מכל בדיקה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
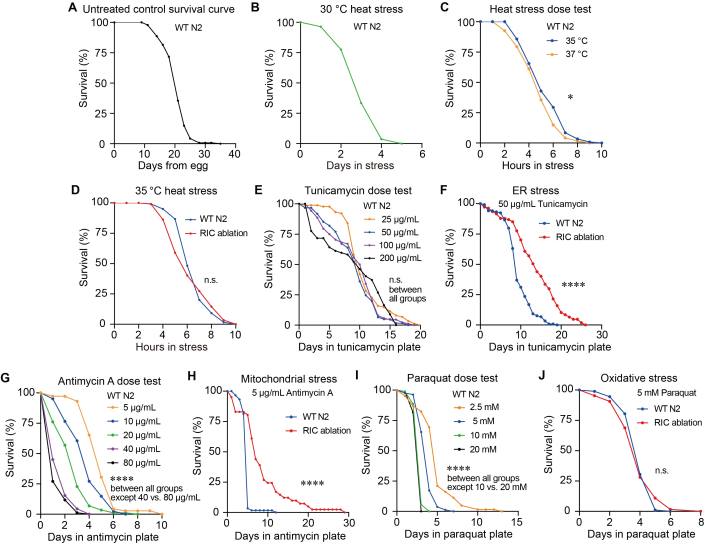
איור 2: תיתוּר של מינוני חום, עקה של הרשת האנדופלזמית (ER), עקה מיטוכונדריאלית ועקה חמצונית, והשוואת עמידות לעקה בזן שבו הושמדו נוירוני RIC . (A) עקומת הישרדות Kaplan–Meier מייצגת של זן WT N2 בתנאים ללא עקה (n = 141, הישרדות ממוצעת = 20.67 ימים). (B) עקומת הישרדות Kaplan–Meier מייצגת של זן WT N2 תחת עקת חום של 30 °C (n = 111, הישרדות ממוצעת = 3.11 ימים). (C) עקומת הישרדות Kaplan–Meier מייצגת של זן WT N2 תחת עקת חום של 35 °C ו-37 °C (n = 119, 121); מבחן log-rank, P = 0.0244, * מציין P < 0.05. (D) עקומת הישרדות Kaplan–Meier מייצגת של WT N2 ושל זן שבו הושמדו נוירוני RIC תחת עקת חום של 35 °C (n = 117, 120); מבחן log-rank, P = 0.4972, n.s. מציין שאין הבדל מובהק. WT N2 שימש כביקורת. (E) עקומות הישרדות של תגובה למינון של זן WT N2 תחת ריכוזים עולים של טיפול ב-tunicamycin (n = 88, 61, 88, 67); מבחן log-rank, P = 0.6472 (25 µg/mL לעומת 100 µg/mL), P = 0.1473 (25 µg/mL לעומת 50 µg/mL), P = 0.6581 (50 µg/mL לעומת 200 µg/mL), P = 1 (25 µg/mL לעומת 200 µg/mL; 50 µg/mL לעומת 100 µg/mL; 100 µg/mL לעומת 200 µg/mL), n.s. מציין שאין הבדל מובהק. (F) עקומת הישרדות Kaplan–Meier מייצגת של WT N2 ושל זן שבו הושמדו נוירוני RIC תחת עקת ER המושרית על ידי 50 µg/mL tunicamycin (n = 119, 107); מבחן log-rank, **** מציין P < 0.0001. (G) עקומות הישרדות Kaplan–Meier מייצגות של זן WT N2 שטופל בריכוזים עולים של antimycin A (n =72, 81, 88, 91, 85); מבחן log-rank, P = 0.000038 (5 µg/mL לעומת 10 µg/mL), P = 0.00002 (10 µg/mL לעומת 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL לעומת 40 µg/mL), P < 0.0001 (5 µg/mL לעומת 20 µg/mL; 5 µg/mL לעומת 40 µg/mL; 5 µg/mL לעומת 80 µg/mL; 10 µg/mL לעומת 40 µg/mL; 10 µg/mL לעומת 80 µg/mL; או 20 µg/mL לעומת 80 µg/mL), P = 0.189 (40 µg/mL לעומת 80 µg/mL), **** מציין P < 0.0001. (H) עקומת הישרדות Kaplan–Meier מייצגת של WT N2 ושל זן שבו הושמדו נוירוני RIC תחת עקה מיטוכונדריאלית המושרית על ידי 5 µg/mL antimycin A (n = 59, 41); מבחן log-rank, P = 3.2 × 10⁻9, **** מציין P < 0.0001. (I) עקומות הישרדות Kaplan–Meier מייצגות של זן WT N2 תחת מינונים שונים של paraquat (n = 62, 81, 88, 93); מבחן log-rank, P = 1.80 × 10⁻7 (2.5 mM לעומת 5 mM), P < 0.0001 (2.5 mM לעומת 10 mM; 2.5 mM לעומת 20 mM; 5 mM לעומת 10 mM; 5 mM לעומת 20 mM), P = 0.1445 (10 mM לעומת 20 mM), **** מציין P < 0.0001. (J) עקומות הישרדות Kaplan–Meier מייצגות של WT N2 ושל זן שבו הושמדו נוירוני RIC תחת עקה חמצונית המושרית על ידי 5 mM paraquat (n = 92, 64); מבחן log-rank, P = 0.9817, n.s. מציין שאין הבדל מובהק. כל הניסויים בוצעו עם שלושה חזרות ביולוגיות בלתי תלויות. תוצאות מייצגות מחזרה ביולוגית אחת מוצגות באיור זה. כל חזרה ביולוגית מורכבת מארבעה פלטות של חזרות טכניות עם תולעים. מספר החיות (n) התורמות לעקומת ההישרדות באיור זה הוא המספר המאוחד מארבע החזרות הטכניות בחזרה ביולוגית אחת. חזרות ביולוגיות בלתי תלויות נותחו בנפרד ולא כמאוחדות והוצגו כמאגרי נתונים אינדיבידואליים באיור משלים 2–5. המובהקות הוערכה באמצעות מבחן log-rank המשווה התפלגויות הישרדות. ערכי P סטטיסטיים מפורטים, הישרדות ממוצעת ו-S. E. בין חזרות טכניות מופיעים בטבלה משלימה 2. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
איור משלים 1: היעדר פלואורסצנציית tbh-1p::GFP בזן שבו הושמדו נוירוני ה-RIC, בעוד שביטוי של GFP נצפה בנוירוני ה-RIC של זן הבקרה עם השאב tbh-1p::GFP. (A) תמונות פלואורסצנטיות של הזן עם השמדת נוירוני ה-RIC tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP ושל זן בקרה עם השאב tbh-1p::GFP מסוג OH16150 tbh-1p::GFP; tdc-1p::mCherry. תולעים בשלב L4 מאוחר צולמו באמצעות עירור של 488 nm עם זמן חשיפה של 800 ms לערוץ ה-GFP וזמן חשיפה של 176 ms לערוץ השדה בהיר. חצי חצים צהובים מצביעים על מיקום נוירוני ה-RIC בזן הבקרה עם השאב tbh-1p::GFP או על המיקום הצפוי של נוירוני ה-RIC, אשר נעדר בזן שבו הושמדו נוירוני ה-RIC. אות tbh-1p::GFP לא גילה במיקום נוירוני ה-RIC בזן שבו הושמדו נוירוני ה-RIC, בעוד שאות tbh-1p::GFP נצפה בנוירוני ה-RIC של זן הבקרה עם השאב tbh-1p::GFP מסוג OH16150. הפלואורסצנציה של שרירי דופן הגוף בזן שבו הושמדו נוירוני ה-RIC נובעת מ- myo-3p::GFP, המהווה סמן להזרקה משותפת. (A) n = 14 עבור OH16150; n = 20 עבור הזן שבו הושמדו נוירוני ה-RIC. (B, C) תוצאות מייצגות משני חזרות ביולוגיות אחרות. תולעים בשלב L4 מאוחר צולמו באמצעות עירור של 488 nm עם זמן חשיפה של 1007 ms (B) או 1998 ms (C) לערוץ ה-GFP וזמן חשיפה של 176 ms (B ו- C) לערוץ השדה בהיר. (B) n = 8 עבור OH16150; n = 17 עבור הזן שבו הושמדו נוירוני ה-RIC. (C) n = 14 עבור OH16150; n = 13 עבור הזן שבו הושמדו נוירוני ה-RIC . אנא לחצו כאן להורדת קובץ זה.
איור משלים 2: חזרות ביולוגיות של עקומות הישרדות בתנאים ללא עקה או תחת עקת חום. (A, B) עקומות הישרדות Kaplan-Meier משתי חזרות ביולוגיות בלתי תלויות בתנאים ללא עקה. (A) n = 123, הישרדות ממוצעת = 20.52 days; (B) n = 130, הישרדות ממוצעת = 22.74 days. (C, D) עקומות הישרדות Kaplan-Meier של זן WT N2 תחת עקת חום של 30 °C. הנתונים הם משתי חזרות ביולוגיות בלתי תלויות. (C) n = 130, הישרדות ממוצעת = 3.72 days. (D) n = 98, הישרדות ממוצעת = 3.77 days. (E, F) עקומות הישרדות Kaplan-Meier תחת תנאי עקת חום של 35 °C או 37 °C. הנתונים הם משתי חזרות ביולוגיות בלתי תלויות. (E) n = 118, 121; מבחן log-rank, P = 0.0409, * מציין P < 0.05, (F) n = 122, 120; מבחן log-rank, P = 0.0251, * מציין P < 0.05. (G, H) עקומות הישרדות Kaplan-Meier של זני WT N2 וזנים עם השמדת נוירוני RIC תחת תנאי עקת חום של 35 °C. הנתונים הם משתי חזרות ביולוגיות בלתי תלויות. (G) n = 79, 76; מבחן log-rank, P = 0.2217, n.s. מציין היעדר הבדל מובהק. (H) n = 77, 81; מבחן log-rank, P = 0.1881, n.s. מציין היעדר הבדל מובהק. המובהקות הוערכה באמצעות מבחן log-rank המשווה התפלגויות הישרדות. ערכי P סטטיסטיים מפורטים, הישרדות ממוצעת ו-S. E. בין חזרות טכניות מופיעים בטבלה המשלימה 2. אנא לחצו כאן להורדת קובץ זה.
איור משלים 3: חזרות ביולוגיות של עקומות הישרדות בתנאי עקה של ER. (A, B) עקומות הישרדות Kaplan-Meier של זן WT N2 תחת ריכוזים שונים של טיפול ב-tunicamycin. הנתונים הם משתי חזרות ביולוגיות עצמאיות. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. ערכי P סטטיסטיים בין הקבוצות השונות (A ו-B) מצוינים בטבלה המשלימה 2. (C, D) עקומות הישרדות Kaplan-Meier של זן WT N2 ושל זן עם השמדת נוירוני RIC תחת תנאי עקה של ER המושרים על ידי 50 µg/mL tunicamycin. הנתונים הם משתי חזרות ביולוגיות עצמאיות. (C) n = 104, 55; מבחן log-rank, P = 0.012, * מסמן P < 0.05, (D) n = 85, 109; מבחן log-rank, P = 0.0001, *** מסמנים P < 0.001. המובהקות הוערכה באמצעות מבחן log-rank להשוואת התפלגויות הישרדות. ערכי P סטטיסטיים מפורטים, הישרדות ממוצעת ו-S. E. בין חזרות טכניות מופיעים בטבלה המשלימה 2. אנא לחץ כאן להורדת קובץ זה.
איור משלים 4: חזרות ביולוגיות של עקומות הישרדות תחת תנאי עקה מיטוכונדריאלית. (A, B) עקומות הישרדות קפלן-מייר של זן WT N2 תחת ריכוזים שונים של טיפול ב-antimycin A. הנתונים הם משתי חזרות ביולוגיות בלתי תלויות. (A) n = 71, 80, 81, 88, 90. (B) n=71, 85, 83, 88, 87. ערכי P סטטיסטיים בין קבוצות שונות (A ו-B) מצוינים בטבלה המשלימה 2. (C, D) עקומות הישרדות קפלן-מייר של זן WT N2 ושל זן עם השמדת נוירונים ב-RIC תחת עקה מיטוכונדריאלית המושרה על ידי antimycin A. הנתונים הם משתי חזרות ביולוגיות בלתי תלויות. (C) n = 105, 78; מבחן log-rank, P = 0.000004, **** מציין P < 0.0001. (D) n = 89, 73; מבחן log-rank, **** מציין P < 0.0001. המובהקות הוערכה באמצעות מבחן log-rank להשוואת התפלגויות הישרדות. ערכי P סטטיסטיים מפורטים, הישרדות ממוצעת ו-S. E. בין חזרות טכניות נכללים בטבלה המשלימה 2. אנא לחץ כאן להורדת קובץ זה.
איור משלים 5: שחזורים ביולוגיים של עקומות הישרדות תחת תנאי עקה חמצונית. (A, B) עקומות הישרדות Kaplan-Meier של זן WT N2 תחת ריכוזים שונים של טיפול ב-paraquat. הנתונים לקוחים משני שחזורים ביולוגיים עצמאיים. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. ערכי P סטטיסטיים בין קבוצות שונות (A ו-B) מצוינים בטבלה המשלימה 2. (C, D) עקומות הישרדות Kaplan-Meier של זן WT N2 ושל זן עם השמדת נוירוני RIC תחת תנאי עקה חמצונית המושרה על ידי 5 mM paraquat. הנתונים לקוחים משני שחזורים ביולוגיים עצמאיים. (C) n = 87, 82; מבחן log-rank, P = 0.2629, n.s. מציין כי אין הבדל מובהק. (D) n = 116, 118; מבחן log-rank, P = 0.1184, n.s. מציין כי אין הבדל מובהק. המובהקות נבדקה באמצעות מבחן log-rank להשוואת התפלגויות הישרדות. ערכי P סטטיסטיים מפורטים, הישרדות ממוצעת ו-S. E. בין שחזורים טכניים כלולים בטבלה המשלימה 2. אנא לחצו כאן להורדת קובץ זה.
טבלה נלווית 1: סיכום של מספר התולעים שנכללו בכל עקומות ההישרדות. הטבלה מסכמת את מספר התולעים הראשוני ואת מספר התולעים שנפרצו, נארזו בשקיות או הוצאו מהניתוח (censored). אנא לחצו כאן להורדת קובץ זה.
טבלה נלווית 2: ניתוחים סטטיסטיים מפורטים של כל עקומות ההישרדות, כולל ערכי P, הישרדות ממוצעת ו-S. E. אנא לחצו כאן להורדת קובץ זה.
קובץ משלים 1: נתונים התומכים בממצאי מחקר זה.
כולל את אימות ההשמדה המוצלחת של נוירוני ה-RIC ואת התוצאות של כל החזרות הביולוגיות העומדות בבסיס הנתונים המוצגים בדמויות הראשיות. נא לחץ כאן להורדת קובץ זה.
דיון
כאן תיארנו שלבים סטנדרטיים לביצוע בדיקות עקה הדירות תחת עקה תרמית, עקה של הרשת האנדופלזמית (ER), עקה מיטוכונדריאלית ועקה חמצונית ב-C. elegans (איור 1). בחנו טווח של מינונים עולים של ארבעת הגורמים המעוררים עקה על הישרדותם של תולעים מסוג WT (איור 2). כמו כן, הצגנו דוגמה לבחינת תפקידו של נוירון ביניים בעמידות לעקה נגד ארבעת הגורמים המעוררים עקה, תוך שימוש בזן עם אבלציה של נוירונים (איור 2).
כדי להשתמש בהצלחה בפרוטוקול בדיקת העקה המוצג כאן, יש לשים לב למספר שיקולים מרכזיים בתהליך. בשל שונות בין מעבדות הנובעת מהבדלים הכוללים אבקת אגר, מצע גידול, טמפרטורת הסביבה ולחות, מומלץ לבצע טיטרציה לכל סוג עקה או לריכוזי תרכובות מעוררות עקה, בהתאם לטיטרציה ולשלבים המפורטים בסעיפי הפרוטוקול והתוצאות. תנאי עקה מתאימים צריכים להוביל לתגובת הישרדות בינונית הניתנת לשחזור בתולעי בקרה מסוג wild-type, ובכך לאפשר טווח דינמי מספיק לזיהוי של הן עלייה והן ירידה בעמידות לעקה. יש להימנע מתנאים המובילים להישרדות כמעט מלאה או לתמותה כמעט מלאה. לאחר מכן, חיוני להבטיח שהתולעים מסונכרנות לאותו שלב התפתחותי עבור כל החזרות הביולוגיות והטכניות. ניתן להשיג סנכרון של התולעים באמצעות הפרונצורה המפורטת בסעיפים 2.1–2.3. מומלץ לבצע סנכרון לשלב L4 המאוחר. התחלת בדיקות עקה בשלב L4 היא פרקטיקה מקובלת בתחום המחקר של תגובות עקה ב- C. elegans, ומחקרים רבים השתמשו בבעלי חיים מסונכרנים בשלב L4 עבור בדיקות עמידות לעקה חמצונית42, חום 40,43, ועקות אחרות35. התחלה בשלב L4 מבטיחה סנכרון התפתחותי תוך מזעור השונות הנובעת מהבדלים בגיל הבוגר ובמצב הרבייתי, כולל תחילת ייצור ביצים והחזקת עוברים, ששניהם יכולים להשפיע על מדידות העמידות לעקה12,37,38,40. מכיוון שכל הקבוצות הניסיוניות במחקרנו היו מסונכרנות וטופלו באופן זהה, גישה זו מספקת בסיס עקבי ומתאים להשוואת עמידות לעקה. לבסוף, אם התולעים היו מורעבות או בעקה לפני תחילת הבדיקה, יש לשקם את צאצאיהן למשך מספר דורות בתנאים של הזנה ללא עקה לפני שישמשו כתולעים עם ביצים (gravid) ליצירת צאצאים מסונכרנים עבור בדיקות העקה.
שונות בין-ניסויית בין חזרות ביולוגיות עצמאיות עלולה לנבוע מהבדלים בהכנת המצעים ובאחסונם, כולל משך אחסון המצעים המכילים תרכובות מעוררות סטרס ב-4 °C ותזמון זריעת חיידקי OP50. כדי לשפר את השחזוריות בין ניסויים שנערכו בימים שונים, יש לסטנדרטיזציה של שלבים קריטיים בהכנת המצעים בהתאם לפרוטוקול המתואר להכנת מצעי NGM בסעיף 1.1, מצעים לסטרס של ER המושרה על ידי tunicamycin בסעיף 3.2.1, מצעים לסטרס מיטוכונדריאלי המושרה על ידי antimycin A בסעיף 3.3.1, ומצעים לסטרס חמצוני המושרה על ידי paraquat בסעיף 3.4.1. באופן ספציפי, יש לייבש מצעי אגר בטמפרטורת החדר למשך כ-24 h לאחר המזיגה, ולאחר מכן לזרוע OP50 ברגע שהאגר התמצק לחלוטין. יש לאפשר למצעי NGM הזרועים ב-OP50 להתייבש בטמפרטורת החדר למשך 24 h נוספות לפני אחסונם ב-4 °C. זמן הייבוש האופטימלי עשוי להשתנות בהתאם לשימוש במצעים מאווררים או לא מאווררים ובתנאים סביבתיים מקומיים, כגון טמפרטורה ולחות. לכן, כל מעבדה צריכה לבצע אופטימיזציה של שלב זה עבור תנאיה שלה ולשמור על זמן ייבוש עקבי בכל החזרות הביולוגיות העצמאיות כדי להבטיח שחזוריות. יש להשתמש במצעי בדיקת הסטרס בתוך שבוע מההכנה כדי למזער את פירוק התרכובות המעוררות סטרס וצמיחת חיידקים מוגברת, שניהם עלולים להשפיע על עקביות הבדיקה.
פרוטוקול זה הציג גם דוגמה לבדיקת תפקידו של נוירון ביניים בתגובת דחק לארבעת הגורמים למשחקי דחק באמצעות זן עם אבלציה של נוירונים (איור 2). ניתן להשתמש בקידומת (promoter) של גן המתבטא באופן ספציפי בנוירון כדי להניע ביטוי של caspase-3 ולבצע אבלציה לנוירון המטרה. כאן השתמשנו בקידומת של tbh-1, המניעה ביטוי גנתי באופן ספציפי בנוירוני RIC, לצורך אבלציה של נוירוני RIC. קידומת tbh-1 תוקפה רחבה למניפולציות גנטיות המכוונות ל-RIC והיא נמצאת בשימוש שגרתי לביטוי ספציפי לתאים, הצלה (rescue), דימות סידן והשתקה נוירונלית45,49,50. בהתאם לאפיון המדווח של tbh-1, צפינו בביטוי של tbh-1p::GFP המוגבל לנוירוני RIC ולא זיהינו פלואורסצנציה ברקמות אחרות (איור משלים 1). לא בחנו באופן ספציפי את גודל השגרה או את מורפולוגיית קו הנבט בזן שבו בוצעה אבלציה לנוירוני RIC; עם זאת, לא צפינו בפגמים פיזיולוגיים ברורים בזן עם אבלציה לנוירוני RIC. דווח כי הדיווח של tbh-1 מראה ביטוי נוסף בתאי המעטפת הסומטיים של הגונדה, שהם תאים סומטיים של מערכת הרבייה51,52. למרות שאיננו יכולים לשלול לחלוטין את האפשרות של ביטוי ברמה נמוכה מחוץ לנוירוני RIC, אנו סבורים שבלתי סביר שביטוי של tbh-1 שאינו ב-RIC מסביר את העמידות המוגברת לדחק שנצפתה בבעלי חיים עם אבלציה לנוירוני RIC. למרות ששיטה זו מבוססת היטב49,50, היא מוגבלת בשל ביטוי אפשרי בתאים שאינם הנוירון המטרה. יש צורך במתודולוגיות אחרות לאישור תפקידו של נוירון, למשל, ניטור פעילות נוירונלית בתגובה לגורמי דחק, או הערכת תפקידם של מוליכים עצביים המשתחררים מנוירון זה בבדיקות דחק.
C. elegans בדיקות הישרדות הן כלים רב-עוצמה למדידת עמידות לעקה בשל ה- תוחלת חיים קצרה יחסית של תולעים (כ-20 עד 30 ימים, איור 2) והתמותה המהירה המושרית על ידי גורמי עקה מרובים, המתרחשת בדרך כלל על פני שעות עד ימים (איור 2). עם זאת, מגבלה של בדיקות הישרדות היא השימוש בנקודת קצה בינארית של חי/מת, ולפיכך הן אינן לוכדות את ההידרדרות הפיזיולוגית הדרגתית המתרחשת במהלך חשיפה למעמדים (stress). בדיקות משלימות, כגון בדיקות תנועת רסס (thrashing assays) או מדידות אוטומטיות של התניידות (מהירות) המבוצעות במספר נקודות זמן, יכולות לספק מידע נוסף על האובדן ההדרגתי של התפקוד הנוירו-שרירי במהלך מאמץ. מגבלה נוספת היא שהמוות נקבע על סמך היעדר תגובה לגירוי פיזי עדין, דבר שעלול להוביל להערכה חסרה של החיוניות בבעלי חיים עם ליקוי חמור בניידות. בנוסף, דירוג ידני מביא לשונות התלויה בצופה ולטיה פוטנציאלית. כדי למזער השפעות אלו, את כל הדירוגים בתוך שכפול ביולוגי עצמאי יש לבצע על ידי אותו חוקר, אשר צריך להיות מסוייג (blinded) לגבי הגנוטיפ והתנאים הניסיוניים. תנאי דירוג עקביים, כולל שימוש באותה הגדלה של המיקרוסקופ והגדרות תאורה בכל נקודת זמן, חשובים אף הם להפחתת השונות בין פלטות ובמהלך ניסויים. בתוצאות המייצגות, הצגנו דוגמה שבה זן שבו הוסרו נוירוני RIC הראה עמידות מוגברת למעמדי ER ומעמדים מיטוכונדריאליים, אך לא למעמדי חום ומעמדים חמצוניים, בהשוואה לתולעים מסוג פרא (wild-type) (איור 2הבדל בהישרדות תחת שניים מארבעה גורמי עקה אינו מבסס כשלעצמו תפקיד ספציפי למסלול עבור הנוירון; המסקנה הביולוגית בכתב יד זה מוצגת כהדגמה של השיטה ושל התצפית, ולא כטענה מכניסטית.
מעבר לבדיקות הישרדות תחת עקה המתוארות כאן, פותחו מספר פלטפורמות אוטומטיות למדידת הישרדות של C. elegans. דירוג אוטומטי מגביר משמעותית את התפוקה, מאפשר ניטור רציף או בתדירות גבוהה, ומפחית את ההטיה התלויה בבודק ואת העבודה הכרוכה בדירוג ידני53,54,55. מערכות אלו יתרוניות במיוחד עבור סריקות גנטיות או כימיות רחבות היקף. עם זאת, רוב השיטות האוטומטיות מסיקות מוות מהפסקת התנועה, דבר שעלול להוביל לסיווג שגוי של תולעים שנמצאות במצב של שקט (quiescence) או מראות פגיעה חמורה בניידות תחת עקה, בהתאם לאלגוריתם הדימוג וסף הגילוי. זיהוי אוטומטי עלול להיות מושפע גם מגורמים סביבתיים, כולל טמפרטורה, עיבוי, זיהום פטרייתי או חיידקי, ושינויים בתנאי התרבית, אשר כולם עשויים להפריע לזיהוי התולעים ולהשפיע על מדידות ההישרדות. לעומת זאת, דירוג ידני מאפשר לחוקר לזהות פנוטיפים חריגים, כגון bagging, בקיעה פנימית או בעלי חיים קרועים, שעשויים לדרוש קריטריונים ספציפיים לדירוג או לצנזור. למרות שדירוג ידני דורש יותר עבודה וכפוף לשונות הקשורה לבודק, ניתן למזער מגבלות אלו על ידי דירוג עיוור, קריטריוני דירוג סטנדרטיים ודירוג עקבי על ידי אותו חוקר. כתוצאה מכך, לבדיקות הישרדות ידניות ואוטומטיות יש יתרונות ומגבלות נפרדים, ובחירת השיטה צריכה להיות מונחית על ידי יעדי הניסוי, התפוקה הנדרשת ואופי מודל העקה.
במבט כולל, השיטות המתוארות כאן מספקות מסגרת סטנדרטית וניתנת לשחזור להערכת תגובות של C. elegans למספר גורמי עקה סביבתיים, כולל עקה תרמית, עקה מיטוכונדריאלית, עקה של הרשת האנדופלזמית ועקה חמצונית. הערכת העמידות לגורמי עקה מגוונים היא חיונית, כיוון שהפרעות גנטיות או פיזיולוגיות עשויות להגביר את העמידות לסוג אחד של עקה תוך הגברת הרגישות לעקה אחרת, ובכך לחשוף מנגנונים של הסתגלות לעקה שהם ספציפיים לגורם עקה מסוים או משותפים לכמה גורמים. בדיקות אלו מאפשרות השוואות כמותיות של עמידות לעקה בין גנוטיפים ותנאים ניסיוניים שונים, וניתן ליישמן בקלות כדי לחקור את תפקידם של גנים, נוירונים ומסלולים מטבוליים בשמירה על עמידות לעקה והומאוסטזיס פיזיולוגי. במובן רחב יותר, שיטות אלו מספקות פלטפורמה חסונה לזיהוי מנגנונים המקדמים בריאות והישרדות של האורגניזם תחת תנאים סביבתיים קשים.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
המחקר המדווח בפרסום זה נתמך על ידי Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), Center of Biomedical Research Excellence (COBRE, P20 GM113109), ו-Johnson Cancer Research Center באוניברסיטת קנזס סטייט (Cancer Research Expansion Award) עבור S.H. לצורך מימון.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| טוניקמיצין (Tunicamycin) | Sigma-Aldrich | T7765 | משרה עקה של הרשת האנדופלזמית (ER stress inducer) |
| אנטימיצין A | Sigma-Aldrich | A8674 | משרה עקה מיטוכונדריאלית |
| מתיל ויולוגן דיכלוריד הידרט (פראקוואט) | Sigma-Aldrich | 856177 | מעורר עקה חמצונית |
| חומצה פלמיטית | MP Biomedicals, LLC | 100905 | דכא C. elegans בריחה התנהגות |
| כולסטרול | MP Biomedicals, LLC | 101382 | עבור NGM |
| סידן כלוריד | Thermo Fisher Scientific Inc. | C79-500 | עבור NGM |
| מגנזיום סולפט ללא מים | Mallinckrodt Pharmaceuticals plc | 6070 | עבור NGM |
| אגר | Apex Chemicals Co., Ltd | 20-273 | עבור NGM |
| פפטון | Apex Chemicals Co., Ltd | 20-260 | עבור NGM |
| אשלגן פוספט מונובסי (Potassium phosphate monobasic) | Thermo Fisher Scientific Inc. | P285-3 | עבור NGM |
| נתרן כלוריד | Thermo Fisher Scientific Inc. | S640-3 | עבור NGM |
| אשלגן פוספט דיבסי (Potassium phosphate dibasic) | Allied Chemical, חטיבת הכימיה הכללית (General Chemical Division) | קוד 2131 | עבור NGM |
| צלוחיות פטרי (35 מ"מ) | Genesee Scientific, LLC | 32-103 | פלטות לבדיקת עמידות למעמט (Stress assay plates) |
| צלוחיות פטרי (60 מ"מ) | Genesee Scientific, LLC | 32-105 | תחזוקה C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| מנער-אינקובטור מקורר New Brunswick Scientific (Eppendorf) C24KC | Eppendorf / New Brunswick Scientific | C24KC | 37 °C אינקובטור |
| DigiTherm® אינקובטור חימום/קירור בנפח 38 ליטר | Tritech Research Inc. | DT2-MP-47L | 35 °C אינקובטור |
| אינקובטור לטמפרטורות נמוכות מדגם Isotemp של Fisher Scientific | Fisher Scientific | 146E | 30 °C אינקובטור |
| אינקובטור מקורר SHELab SRI20P | Sheldon Manufacturing Inc. | SRI20P | 20 °C אינקובטור |
| מיקרוסקופ סטריאו למחקר Leica M165 FC | Leica Microsystems | M165 FC | מיקרוסקופ לדימוי |
| מיקרוסקופ סטריאו עם זום ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | מיקרוסקופ לטיפול ותיעוד תולעים |
| Microsoft Excel 2019 | Microsoft Corporation | שרטוט נתונים גולמיים | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | ויזואליזציה של נתונים | |
| OASIS 2 | POSTECH, PMID: 27528229 | ניתוח סטטיסטי | |
| BioRender | Science Suite Inc. | איור סכמטי | |
| ImageJ | המכונים הלאומיים לבריאות (NIH) | עיבוד תמונה | |
| Adobe Illustrator 2021 | Adobe Inc. | הרכבת איורים פריסה | |
| סוג בר (wild-type) | מרכז הגנטיקה של Caenorhabditis, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | תוספת ביתית | אבליציה ב-RIC | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. נוירוני RIC מסומנים הן ב-GFP והן ב-mCherry | מרכז הגנטיקה של Caenorhabditis, CGC | OH16150 |
מקורות
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב